Ce protocole détaille la préparation de milieux limités en Zn2+, de vaisseaux de croissance et de cultures de graines pour produire des ribosomes limités en Zn2+ chez les mycobactéries. Des traces de Zn2+ conduisent à une croissance limitant le Zn2+ et nous décrivons les caractéristiques morphogéniques utilisées comme bioindicateurs pour vérifier la limitation du Zn2+ in vitro chez la bactérie modèle, Mycobacterium smegmatis, et l’agent pathogène humain M. tuberculosis.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Utilisation de Mycobacterium smegmatis comme bioindicateur des conditions de croissance limitées en zinc chez les mycobactéries
* These authors contributed equally
Dans cet article
Résumé
Résumé
De nombreuses bactéries construisent des ribosomes alternatifs dans des conditions de croissance limitant le Zn2+ en remplaçant les protéines ribosomiques liant le Zn2+ par des paralogues indépendants du Zn2+. La définition d’un système pour étudier ces ribosomes alternatifs s’est avérée difficile car la contamination en Zn2+ en laboratoire est courante. Pour résoudre ce problème, des agents chélateurs sont parfois ajoutés aux milieux de croissance, mais cette approche complique la réponse biologique à la limitation progressive de Zn2+ et est associée à l’hibernation des ribosomes. Vous trouverez ici des instructions détaillées sur la préparation des milieux et l’ensemencement des cultures pour une croissance limitée en Zn2+ sans ajout de chélateurs. Selon cette méthode, la bactérie modèle, Mycobacterium smegmatis, subit une morphogenèse, qui dépend de ribosomes alternatifs. Parce que la morphogenèse est traitable et ne se produit que dans des conditions limitantes de Zn2+, M. smegmatis peut être utilisé comme bioindicateur pour vérifier les conditions de croissance biologiquement pertinentes. Trois phénotypes de bioindicateurs (densité cellulaire, longueur cellulaire et fluorescence de la coenzyme F420) qui indiquent une limitation de Zn2+ chez le type sauvage sont décrits, et les changements dans ces bioindicateurs pour un mutant de délétion qui ne peut pas construire de ribosomes alternatifs sont décrits. Étant donné que la contamination à l’état de traces de Zn2+ est difficile à contrôler pour chaque lot de milieux, et que la quantification précise du Zn2+ dans chaque préparation de milieu est trop lourde, le suivi de ce phénotype de bioindicateur est un moyen accessible de valider la préparation de milieux de croissance limités en Zn2+. Afin d’aider à identifier les conditions propices à la croissance limitant le Zn2+ et à la production de ribosomes alternatifs, les changements dans les phénotypes bioindicateurs ont également été profilés pour les préparations de milieux limités en Zn2+ ou gravement appauvris en Zn2+. D’autres détails pour atteindre une croissance limitant le Zn2+ et une production alternative de ribosomes chez M. tuberculosis sont présentés, ainsi que le phénotype du bioindicateur associé. Dans l’ensemble, les instructions détaillées et les phénotypes de bioindicateurs décrits ici aideront à normaliser la production de ribosomes alternatifs actifs translationnellement chez les mycobactéries.
Introduction
L’ion zinc (Zn2+) est un micronutriment essentiel et un composant standard des milieux microbiologiques. Cependant, de nombreuses bactéries subissent une limitation de Zn2+ dans l’environnement, car les conditions de limitation de Zn2+ sont répandues ; soil1, marine2, et les niches au sein de host3 sont souvent limitées en Zn2+. En tant que telles, la plupart des bactéries ont développé des mécanismes pour surmonter la limitation de Zn2+ et préserver la fonction cellulaire4. Les systèmes impliqués dans le maintien de l’homéostasie du Zn2+ sont soumis à un contrôle transcriptionnel strict5 et sont impliqués dans le piégeage du Zn2+ à l’aide de systèmes d’importation de Zn2+ de haute affinité, la mobilisation des réserves cellulaires de Zn2+ et le remplacement de certaines protéines de liaison au Zn2+ par des paralogues alternatifs indépendants du Zn2+6. Un exemple de ce dernier est celui des paralogues de la protéine ribosomique (RP) indépendante du Zn2+, qui sont une caractéristique commune des régulons sensibles au Zn2+ dans les bactéries4. Ces RP hautement divergents indépendants du Zn2+ se distinguent de leurs paralogues de liaison au Zn2+ par la perturbation du motif CXXC de liaison au Zn2+7. Plus de la moitié des génomes procaryotes séquencés contiennent au moins une paire de RP dupliqués où, dans beaucoup d’entre eux, un RP se lie à Zn2+, tandis que son paralogue ne 8. Alors que la notation C+/C- (indiquant la présence/l’absence du motif de liaison au Zn2+ riche en cystéine) est couramment utilisée en référence à ces paires de RP paralogues7, les RP indépendants du Zn2+ ont également été décrits comme des versions alternatives (Alt) des paralogues RP primaires (Prim), liant le Zn2+, puisque les AltRP servent de RP alternatifs pour la biogenèse des ribosomes dans le Zn2+-limité chez certaines bactéries et c’est un mot-clé avec une meilleure facilité de recherche9,10,11.
Comme l’expression d’AltRP est étroitement régulée par Zn2+, il est logique de supposer que l’expression d’AltRP offre une redondance fonctionnelle aux protéines ribosomales dépendantes de Zn2+ face à la limitation de Zn2+. En effet, cette caractéristique des AltRP a été démontrée pour la bactérie modèle du sol Bacillus subtilis, où la croissance est sauvée pendant la limitation de Zn2+ par la libération de la surface PrimRP L31 et le remplacement par l’AltRP L3112,13. Cependant, certains AltRP sont paralogues aux PrimRP de base, par exemple S14, ce qui signifie que leur incorporation est nécessaire pendant la biogenèse des ribosomes12,13. La reconstruction du ribosome avec des AltRP est un programme engagé et énergivore. Bien que ces AltRP centraux puissent servir à libérer Zn2+ du ribosome, il est également possible que certains AltRP aient développé une fonction supplémentaire dans l’environnement limité à Zn2+. Ceci est soutenu par l’observation que les AltRP sont divergents de leurs PrimRP paralogues ; L’homologie de séquence des gènes AltRP est souvent plus élevée entre homologues de différentes espèces qu’avec la séquence du gène PrimRP liant Zn2+ au sein de la même espèce7,10. Parce que les gènes codant pour des AltRP hautement divergents sont sous contrôle transcriptionnel dépendant de Zn2+, ils sont retirés de la pression sélective exercée sur les superopérons ribosomales étroitement régulés et hautement conservés14. La pression sélective découplée sur l’information génétique codant pour la machinerie ribosomique et les AltRP expose ces RP à des trajectoires évolutives différentes de celles des PrimRP homologues et pourrait permettre une évolution spécifique à la lignée du même AltRP chez différentes bactéries10,15. L’existence généralisée des AltRP chez les bactéries et la régulation génétique découplée de ces RP uniques soulèvent une question intéressante : savoir si l’incorporation des AltRP dans les ribosomes bactériens confère une propriété spéciale aux ribosomes contenant des AltRP (ribosomes Alt).
Les mycobactéries constituent un groupe idéal de bactéries pour étudier les propriétés mécanistes des ribosomes Alt. Tout d’abord, les mycobactéries possèdent un opéron altRP hautement conservé contenant quatre gènes qui codent pour les AltRP : S14-2, S18-2, L28-2 et L33-28,9. Les AltRP mycobactériens sont significativement différents de leurs paralogues PrimRP ; dans les quatre paires PrimRP/AltRP, un gène AltRP donné est plus similaire chez toutes les espèces mycobactériennes qu’il ne l’est au gène PrimRP de la même espèce10. L’évolution spécifique de la lignée des AltRP est également apparente chez les mycobactéries, comme en témoignent les AltRP S18-2 et L28-2 chez Mycobacterium tuberculosis et M. bovis, qui contiennent des séquences uniques à l’extrémité C-terminale qui ne sont pas présentes chez d’autres mycobactéries10. Deuxièmement, ce groupe de bactéries très apparentées contient des membres non pathogènes et pathogènes qui résident dans divers environnements, du sol (p. ex., M. smegmatis) à une myriade d’hôtes : humains (p. ex., M. tuberculosis), bovins (p. ex., M. bovis), aquatiques (p. ex., M. marinum) et aviaires (p. ex., M. avium), pour n’en nommer que quelques-uns. La nature hautement conservée de l’opéron altRP chez les mycobactéries, l’évolution spécifique à la lignée de gènes AltRP spécifiques et les environnements très différents dans lesquels les membres de ce groupe existent offrent une occasion unique d’analyser l’évolution conservée et spécifique à la lignée de la fonction AltRP et les propriétés mécanistes des ribosomes Alt. Malgré l’abondance des AltRP dans les génomes procaryotes, le rôle des AltRP et des ribosomes Alt n’a été étudié que chez quelques bactéries 9,10,11,12,13,16,17,18,19. La mise en place d’un système normalisé avec des mesures spécifiques pour valider les conditions de croissance limitant le Zn2+ chez les mycobactéries améliorerait les résultats expérimentaux et ferait progresser la compréhension des ribosomes Alt dans le domaine de la recherche sur les ribosomes.
Zn2+ est un micronutriment ; par conséquent, des traces de Zn2+ contaminant dans les produits chimiques et l’eau contribuent à la biodisponibilité du Zn2+, même lorsqu’elles sont omises de la préparation du milieu. Les traces de Zn2+ présentes dans l’eau ou les produits chimiques peuvent varier considérablement d’un laboratoire à l’autre, affectant ainsi le résultat de la croissance limitant le Zn2+. La quantification empirique du [Zn2+] dans chaque préparation indépendante de milieux est trop lourde pour la plupart des laboratoires qui effectuent des essais de croissance de routine, mais un mécanisme permettant d’éliminer la possibilité de contamination par le Zn2+ dans les milieux de croissance serait intrinsèquement précieux. À cette fin, nous présentons ici une méthode détaillée pour préparer un milieu limité en Zn2+ (ZLM), des vaisseaux de croissance et des cultures de graines chimiquement définis pour la croissance limitant le Zn2+ et la production de ribosomes alternatifs chez M. smegmatis et M. tuberculosis. Les principales caractéristiques morphogéniques (densité cellulaire mesurée par OD600, longueur cellulaire et fluorescence de la coenzyme F420) après croissance dans ZLM sont utilisées pour vérifier que la limitation de Zn2+ a été atteinte. La coenzyme F420 est un cofacteur de la déazaflavine qui joue un rôle important dans le catabolisme et la défense contre le stress oxydatif chez les méthanogènes et les mycobactéries20,21. Il est important de noter que les mycobactéries sont autofluorescentes lorsqu’elles sont excitées à 420 nm en raison de l’abondance de ce cofacteur 22. Le lien moléculaire entre la fluorescence de [Zn2+] et de F420 n’est pas résolu, mais le suivi de la fluorescence de F420 dans les cultures est un bio-indicateur traitable et fiable.
Chez M. smegmatis, les phénotypes bioindicateurs sont présents chez les bactéries de type sauvage, mais un mutant de délétion dépourvu de l’opéron altRP ne subit pas le même programme morphogénique et peut être utilisé comme bioindicateur différentiel10. Bien que M. tuberculosis ne suive pas le même programme morphogénique que M. smegmatis pendant la limitation en Zn2+, M. tuberculosis a une réponse robuste et globale au Zn2+ et un phénotype de bioindicateur clé suivant cette méthode 23. Ainsi, le système défini ici permet de générer des ribosomes Prim- et Alt- dans les mêmes conditions de croissance (c’est-à-dire une limitation Zn2+), facilitant la dissection mécaniste de la fonction des ribosomes Alt et son rôle dans la formation de la physiologie bactérienne. Cette méthode de croissance a été utilisée pour résoudre la structure des ribosomes Alt actifs et démontrer leur activité translationnelle chez M. smegmatis24. De plus, l’expression d’AltRP est nécessaire pour la morphogenèse dépendante de Zn2+ et a un effet profond sur le transcriptome et le protéome de M. smegmatis Zn2+ class="xref">10,25. La même méthode, avec des modifications mineures de la quantité d’inoculum et du temps d’incubation, est utilisée pour générer des cultures de M. tuberculosis9,23. Ici, les protocoles et les phénotypes de bioindicateurs permettant d’atteindre une croissance limitant le Zn2+ chez M. smegmatis et M. tuberculosis sont détaillés, en mettant l’accent sur M. smegmatis, car cette bactérie est plus sensible à la contamination par le Zn2+ dans les milieux et est plus largement accessible que l’agent pathogène à croissance lente.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
REMARQUE : Les souches utilisées dans cette étude sont M. smegmatis sauvage mc2 155 (don du Dr Robert Husson, Boston Children's Hospital) et la souche de délétion ΔaltRP (provenant du laboratoire Prisic10). Elles peuvent être cultivées dans un laboratoire de niveau de biosécurité 1 (BSL1) ou de niveau 2 (BSL2), selon les réglementations locales de biosécurité et les ressources disponibles. Ici, le protocole est rédigé pour un laboratoire BSL2. S’il est réalisé dans un laboratoire BSL1, une technique aseptique avec un bec Bunsen peut remplacer la cabine de sécurité microbiologique. De plus, les chercheurs qui souhaitent inclure d'autres souches ou conditions devront calculer le volume de milieu nécessaire en fonction du nombre total de cultures analysées. Manipuler M. tuberculosis H37Rv pathogène (Mtb-H37Rv ; don du Dr Robert Husson, Boston Children's Hospital) dans un laboratoire BSL3 en portant un respirateur (par exemple, PAPR ou N95). Ne pas réutiliser les flacons lors de la culture de mycobactéries hautement virulentes, telles que Mtb-H37Rv. M. tuberculosis auxotrophe mc26206 (Mtb-Aux) est atténué et peut être manipulé dans un laboratoire BSL2 (don du Dr William R. Jacobs Jr., Albert Einstein College of Medicine).
1. Préparation des flacons
REMARQUE : Les conditions de croissance limitantes en Zn2+ sont obtenues dans des flacons Erlenmeyer en polycarbonate réutilisables (autoclavables) de 250 mL. N'utilisez pas de flacons en verre pour la croissance limitante en Zn2+, ou bien étudiez et comparez des procédures rigoureuses de lavage à l'acide aux résultats présentés dans ce protocole19. Des flacons tout neufs permettent d'obtenir des conditions de croissance limitantes en Zn2+, mais il ne faut jamais mélanger des flacons neufs et usagés dans une même expérience. Jetez les flacons qui présentent des signes de fragilité (généralement au niveau des soudures) ou qui ont été utilisés plus d'environ 20 fois. Vérifiez régulièrement l'état des filtres des bouchons et éliminez-les s'ils sont détériorés. S'ils sont présents, jetez les couvercles filetés qui se vissent sur le dessus des bouchons et recouvrent les filtres. Cette méthode décrit les précautions prises pour nettoyer les flacons et les préparer à une réutilisation.
- Étiqueter de façon permanente les flacons afin qu'un même jeu ne soit utilisé que pour des conditions de limitation en Zn2+. Étiqueter un autre jeu de flacons pour la croissance en présence suffisante de Zn2+. L'utilisation de couleurs différentes est utile pour éviter de mélanger les flacons.
- Ne jamais laisser résider des résidus de culture séchés dans les flacons. Ajouter de l'eau immédiatement dans les flacons après avoir décanté la culture (par exemple, 100 mL). Si la culture n'est pas récoltée à la fin de la croissance, vider les flacons en versant l'ensemble de la culture dans un récipient de déchets liquides contenant une concentration finale de 10 % d'eau de Javel, après avoir enregistré les phénotypes des bioindicateurs comme décrit dans ce protocole.
- Stériliser les flacons en autoclave selon le cycle liquide (au moins 121 °C à 15 psi) pendant 20 min, avec de l'eau à l'intérieur et les couvercles en place.
- Après stérilisation, laver les flacons avec un détergent non ionique à faible pouvoir moussant et bien les brosser à l'aide d'une brosse douce. Réserver une brosse exclusivement à laver les flacons utilisés pour la croissance en conditions de limitation en Zn2+. S'assurer que les flacons sont propres, sans résidu ni débris. Ne pas frotter ni utiliser de savon sur les bouchons ; rincer délicatement à l'eau déionisée.
- Rincer soigneusement les flacons à l'eau du robinet, puis effectuer trois rinçages à l'eau déionisée (type II ou III) et au moins un rinçage supplémentaire à l'eau ultrapure (type I) (18,2 MΩ-cm à 25 °C et ≤ 5 ppb de carbone organique total).
- Placer les flacons verticalement à l'envers afin qu'aucune eau ne puisse s'accumuler au fond. Ne pas utiliser les porte-flacons muraux standards, car ils maintiennent les flacons en biais et permettent la formation d'une petite flaque d'eau. Des porte-flacons standards pour vaisselle conviennent. Laisser les flacons et les couvercles sécher complètement.
- Une fois secs, visser les bouchons sur les flacons et recouvrir les couvercles de papier d'aluminium. Fixer un morceau de ruban indicateur d'autoclave sur le papier d'aluminium pour indiquer l'état stérile et protéger les filtres des bouchons contre la poussière.
- Stériliser à nouveau les flacons nettoyés en autoclave (au moins 121 °C à 15 psi) pendant 20 min, suivis d'un cycle de vide post-autoclavage pour sécher la charge (si l'autoclave dispose de cette fonction). Conserver les flacons au sec et à l'abri de la poussière.
2. Préparation du milieu limité en Zn2+ (ZLM)
REMARQUE : Utilisez uniquement des béchers en plastique, des cylindres gradués et tout autre matériel pour préparer les milieux. Réservez un ensemble de matériel de laboratoire utilisé exclusivement pour la préparation de milieux limités en Zn2+. Rincez soigneusement tout le matériel avec de l’eau ultrapure (type I) avant et après utilisation. Utilisez des produits chimiques de haute pureté et achetez-les auprès des mêmes fournisseurs, si possible.
- Préparer le milieu de Sauton limité en Zn2+, sans sels de Zn2+ ajoutés26, en mélangeant les produits chimiques suivants avec environ 950 mL d'eau ultrapure dans un bécher en plastique de 1 L muni d'un barreau aimanté :
0,5 g de KH2PO4 (0,05 % ; MM : 136,09)
0,5 g de MgSO4 x 7H2O (0,05 % ; MM : 246,48)
2 g d'acide citrique anhydre (0,2 % ; MM : 192,12)
4 g de L-asparagine, 99 % (0,4 % ; MM : 132,12)
60 mL de glycérol (6 %)
189 µL de solution de citrate ferrique d'ammonium 1 M (0,005 % ; MM : 265)- Ajouter le glycérol à l’aide d’une pipette seringue en plastique jetable de 50 mL. Rincer soigneusement la pipette en aspirant et en expulsant le liquide environ 10 fois dans le milieu, jusqu’à ce qu’aucun résidu de glycérol ne reste dans la pipette.
REMARQUE : Le glycérol est très visqueux et difficile à mesurer. Alternativement, on peut verser le glycérol dans un cylindre gradué, puis le rincer plusieurs fois avec environ 30 mL d’eau ultrapure, que l’on ajoute ensuite au milieu. Si cette méthode est utilisée, commencer avec un volume inférieur (~600 mL) afin que le volume final n’excède pas environ 950 mL après l’ajout du glycérol et des rinçages du cylindre gradué.
- Ajouter le glycérol à l’aide d’une pipette seringue en plastique jetable de 50 mL. Rincer soigneusement la pipette en aspirant et en expulsant le liquide environ 10 fois dans le milieu, jusqu’à ce qu’aucun résidu de glycérol ne reste dans la pipette.
- Compléter le volume du milieu à environ 950 mL et bien mélanger. La L-asparagine met quelques minutes à se dissoudre ; attendre qu’il ne reste plus aucun flocon blanc avant de poursuivre.
REMARQUE : La solution de citrate ferrique d'ammonium confère au milieu une couleur jaune pâle. - Préparer 15 mL de solution fraîche de NaOH (~10 % p/v) avec de l’eau ultrapure dans un récipient en plastique (par exemple, un tube conique de 15 mL).
- Rincer soigneusement un pH-mètre avec de l’eau ultrapure avant utilisation, puis plonger uniquement la bulbe du pH-mètre dans le milieu. Laisser le pH-mètre dans le milieu sous agitation douce pendant le réglage du pH. À l’aide d’une pipette plastique jetable, ajouter la solution fraîchement préparée de NaOH jusqu’à atteindre un pH final de 7,4.
REMARQUE : Le pH initial du milieu est fortement acide. Un grand volume de solution de NaOH est nécessaire pour porter le pH à la zone neutre. Ajouter initialement 4 à 6 mL de solution de NaOH ; une fois que le pH atteint environ 6,5, ajouter la solution de NaOH goutte à goutte. Ne pas dépasser le pH cible de 7,4. Si cela se produit, ne pas tenter de réajuster avec du HCl ou d’autres acides : jeter le milieu. Il est recommandé de réserver un pH-mètre exclusivement à la préparation du milieu ZLM, afin d’éviter toute contamination de la sonde par d’autres milieux ou tampons. - Transférer le milieu dans un cylindre gradué et compléter jusqu’à un volume final de 1 L avec de l’eau ultrapure. Stériliser le milieu par filtration à travers un filtre jetable de 0,2 µm monté sur un flacon filtrant.
- Ajouter aseptiquement 2,5 mL de solution de Tween-80 à 20 %, stérilisée par filtration (concentration finale de 0,05 %). Conserver à 4 °C, à l’abri de la lumière, jusqu’à 6 mois.
Croissance limitée par le Zn2+ chez M. smegmatis
REMARQUE : En raison des variations entre lots de la quantité de Zn2+ présente dans le ZLM, il est impératif d'utiliser le même lot de milieu, ou plusieurs lots de milieu soigneusement mélangés ensemble, pour toutes les cultures d'une expérience. En plus du milieu nécessaire pour installer les cultures, environ 100 mL supplémentaires sont nécessaires pour le lavage et la normalisation des cultures initiales.
- Réalisez toutes les étapes dans une hotte de sécurité biologique. Préparez les cultures initiales 18 h avant de démarrer l'expérience de croissance. N'utilisez pas de cultures initiales surcroîtées ou formant des agrégats. Une culture initiale par souche est suffisante.
- Ajoutez aseptiquement 5 mL de milieu 7H9-ADC (bouillon Middlebrook 7H9 contenant 0,05 % de Tween 80 et un enrichissement ADC à 10 % [concentration finale : 0,5 % d'albumine de sérum bovin, 0,2 % de dextrose, 0,085 % de NaCl et, facultativement, 0,0003 % de catalase]) dans un tube de bioréacteur de 50 mL.
- Ajoutez aseptiquement 10 µL de cellules en stock glycérol décongelées (préparées selon26) directement dans le milieu. Vissez le bouchon sur le tube.
- Placez fermement les tubes dans un incubateur agité à un angle d'environ 45°, de sorte que le liquide monte à mi-hauteur du tube pendant l'agitation.
- Incubez les tubes à 37 °C sous agitation à 120 tr/min pendant environ 18 h.
- Examinez les cultures initiales de la nuit pour vous assurer qu'elles sont uniformément troubles et ne présentent pas d'agglomération importante. La densité optique à 600 nm (DO600) de la culture de la nuit devrait idéalement se situer autour de 0,5-0,8.
- Centrifugez les cultures de la nuit dans les tubes de bioréacteur utilisés pour la croissance nocturne, à 3 000 x g pendant 5 min à température ambiante, afin de former un culot.
- Décantez ou aspirez le surnageant et resuspendez dans 5 mL de ZLM. Répétez les étapes de centrifugation et de resuspension 2 fois, pour un total de trois lavages.
- Pendant les étapes de centrifugation, remplissez une cuvette jusqu'au débordement avec de l'éthanol à 70 % pour la stériliser. Laissez la cuvette remplie reposer dans la hotte de sécurité biologique pendant 10 min, puis rincez-la soigneusement 3 fois avec du ZLM à l'aide d'une pipette.
REMARQUE : Le processus de normalisation des cellules demande du temps et de la pratique pour être réalisé efficacement. En normalisant directement les cellules dans la cuvette stérilisée à l'éthanol, ce processus est grandement accéléré. - Préparez suffisamment de cuvettes pour le nombre de souches incluses dans l'étude ; par exemple, ce protocole nécessite deux cuvettes stérilisées, une pour la souche sauvage et une pour le mutant ΔaltRP.
- Pendant les étapes de centrifugation, remplissez une cuvette jusqu'au débordement avec de l'éthanol à 70 % pour la stériliser. Laissez la cuvette remplie reposer dans la hotte de sécurité biologique pendant 10 min, puis rincez-la soigneusement 3 fois avec du ZLM à l'aide d'une pipette.
- Après trois lavages avec du ZLM, resuspendez chaque culot cellulaire dans 2 mL de ZLM.
- Effectuez le blanc d'un spectrophotomètre avec 600 µL de ZLM dans une cuvette. La cuvette n'a pas besoin d'être stérilisée. Mettez-la de côté et utilisez-la pour effectuer le blanc du spectrophotomètre avant de normaliser chaque culture (c'est-à-dire chaque souche).
- En travaillant avec une souche à la fois, transférez 600 µL de cellules lavées de l'étape 3.5 dans une cuvette stérilisée préparée à l'étape 3.4.1 et mesurez la DO600 initiale. Si la DO600 est supérieure à 1, passez à l'étape 3.8. Si la DO600 est inférieure à 1, suivez les sous-étapes 3.7.1 et 3.7.2.
- Si la mesure initiale de DO600 obtenue à l'étape 3.7 est inférieure à 1, récupérez toute la culture contenue dans la cuvette, remettez-la dans les cellules initiales lavées restantes dans le tube de centrifugation, puis centrifugez à nouveau la culture comme à l'étape 3.3. Resuspendez la culture dans un volume inférieur à celui utilisé à l'étape 3.5 (par exemple, 1 mL) afin d'obtenir une densité cellulaire plus élevée, puis répétez l'étape 3.7.
- Si la DO600 après l'étape 3.7.1 est toujours inférieure à 1, la culture n'est pas assez dense ; recommencez la procédure à partir de l'étape 3.1. Incubez les cultures plus longtemps ou augmentez la quantité d'inoculum pour préparer les cultures nocturnes, de sorte que la densité finale de la culture nocturne soit d'environ DO600 = 0,5-0,8, comme décrit à l'étape 3.2.
- Calculez le volume de ZLM à ajouter aux 600 µL de cellules lavées dans la cuvette pour obtenir une DO600 de 1, en utilisant l'équation suivante et la DO600 mesurée à l'étape 3.7 :
Volume de ZLM (µL) = (DO600 initiale - 1) × 600 µL - Ajoutez au tube le volume de ZLM calculé à l'étape 3.8, mélangez bien en pipetant 5 à 10 fois, puis remesurez la DO600.
- Ajustez la DO600 à moins de 5 % de DO600 = 1 en suivant les sous-étapes ci-dessous. Utilisez deux pipettes, dont une (de taille P1000) dédiée au mélange de la culture, afin d'éviter d'utiliser trop de pointes à chaque ajustement.
- Si la DO600 est supérieure à 1, ajoutez du ZLM goutte à goutte (~50 µL à la fois), mélangez bien en aspirant et en expulsant 5 à 10 fois, puis mesurez la DO600. Répétez ce processus au besoin jusqu'à ce que la culture soit à moins de 5 % de DO600 = 1.
- Si la DO600 tombe en dessous de 1 pendant la normalisation, ajoutez davantage de cellules lavées (~20 µL au départ) provenant de l'étape 3.5, mélangez bien en aspirant et en expulsant 5 à 10 fois, puis mesurez la DO600. Répétez ce processus au besoin (ou ajoutez davantage de ZLM comme décrit à l'étape 3.10.1 si la DO600 dépasse 1) jusqu'à ce que la culture soit à moins de 5 % de DO600 = 1.
- Veillez à ce que le volume dans la cuvette n'excède pas environ 1,5 mL pendant la normalisation cellulaire afin d'éviter tout déversement dans le spectrophotomètre. Retirez de la cuvette le volume de culture nécessaire lors des dilutions, si nécessaire. Assurez-vous également que le volume de culture dans la cuvette est supérieur au volume minimal requis pour mesurer précisément la DO600 avec le spectrophotomètre. La plupart des spectrophotomètres nécessitent au moins 600 µL.
- Répétez les étapes de normalisation cellulaire (3.6 à 3.10) pour toutes les souches et conditions incluses dans l'étude.
- Préparez le nombre total de flacons requis pour une expérience en ajoutant aseptiquement 50 mL de ZLM dans des flacons Erlenmeyer en plastique de 250 mL préparés comme décrit à l'étape 1.
- Inoculez les flacons en ajoutant aseptiquement 50 µL de la culture normalisée à DO600 = 1 directement depuis la cuvette, afin d'obtenir une DO600 finale de 0,001 (dilution 1:1000 de l'inoculum normalisé).
- Pour les cultures cultivées sans limitation en Zn2+ (c'est-à-dire dans un milieu riche en Zn2+, ZRM), ajoutez 30 µL de ZnSO4 stérile à 10 mM (préparé frais à partir d'une solution mère stérile à 1 M) directement dans les flacons de culture, pour une concentration finale de 6 µM de ZnSO4.
- Incubez les flacons à 37 °C sous agitation à 100 tr/min pendant 3 jours jusqu'à la phase stationnaire (le jour 0 correspond au jour de l'inoculation).
- Chaque jour de croissance, utilisez un lecteur de microplaque à monochromateur ou à filtres pour mesurer les paramètres de croissance suivants, en utilisant 200 µL de culture dans une microplaque à 96 puits à fond plat. Effectuez les lectures immédiatement après le prélèvement des aliquotes afin d'éviter tout dépôt des cellules.
REMARQUE : Il n'est pas nécessaire de préchauffer le lecteur de microplaque, car les valeurs absolues de fluorescence sont moins informatives que les rapports et les balayages de fluorescence, et le petit volume mesuré s'équilibre rapidement à la température ambiante pendant la préparation de la plaque. La fluorescence peut être mesurée par le haut ou par le bas de la plaque si la condensation sur le couvercle pose problème, bien que les intensités de fluorescence soient globalement plus faibles lorsqu'elles sont lues par le bas.- Densité cellulaire (c'est-à-dire DO600) : Pour rapporter la DO600 obtenue à partir d'un lecteur de microplaque, établissez une courbe d'étalonnage permettant de convertir la lecture effectuée avec la longueur de trajet optique de la microplaque (pour un volume fixe, par exemple 200 µL) en longueur de trajet optique standard de 1 cm.
- Fluorescence du cofacteur F420 (ex 420 nm/em 475 nm) : Pour les lecteurs de microplaque à filtres, utilisez le jeu de filtres le plus proche (par exemple, ex 430 nm/em 488 nm) et des microplaques noires à 96 puits.
- Mesurez la fluorescence de fond à 375 nm (ex 375 nm/em 475 nm).
- Si vous utilisez un monochromateur, effectuez un balayage d'intensité de fluorescence de ex 230 à 440 nm par pas de 5 nm, avec une émission fixe à 475 nm.
- Si vous utilisez un monochromateur, calculez le pourcentage d'intensité de fluorescence à 375 nm par rapport à 420 nm à l'aide de l'équation suivante :
F375/420 (%) = (F375/F420) × 100
4. Enregistrement et mesure de la longueur des cellules
- Au jour 3, visualiser et enregistrer la longueur des cellules. Nettoyer une lame et une lamelle avec un chiffon sans peluches. Déposer une goutte de 10 µL de culture sur la lame, puis poser délicatement la lamelle directement au-dessus de la culture. Appuyer légèrement sur la lamelle afin que la culture s'étale et occupe presque entièrement la surface située sous la lamelle. Préparer les lames et les observer immédiatement pour éviter qu'elles ne s'assèchent.
NOTE : Si la culture ne s'étale pas facilement, les débris empêchent un bon contact et les mouvements du liquide rendront difficile la mise au point sur les cellules. Préparer une nouvelle lame. - À l’aide d’un microscope composé (ou en contraste interférentiel différentiel, voir ci-dessous) équipé d’un objectif à immersion huile 100x et d’oculaires 10x (grossissement total de 1000x) et d’un dispositif caméra, observer la lame préparée.
NOTE : Les cellules sont beaucoup plus faciles à visualiser grâce au contraste offert par la microscopie en contraste interférentiel différentiel (DIC)10. Utiliser ce type de microscope pour obtenir des images de haute qualité, si possible. Pour une analyse de routine et la vérification de l’état de croissance limité en Zn2+, un microscope composé à lumière ordinaire est suffisant. - Prendre des photographies de zones de la lame contenant plusieurs cellules bien mises au point, en plan (c’est-à-dire que toute la longueur de la cellule est visible) et immobiles. Enregistrer suffisamment d’images provenant de différentes zones de la lame (ou de plusieurs lames de la même culture) afin de mesurer au moins 100 cellules.
- À l’aide du même microscope et du même objectif, acquérir une image d’une lame de calibration.
- Dans Fiji27, utiliser l’outil ligne droite pour tracer une ligne sur la longueur de la lame de calibration. Sélectionner Analyser > Définir l’échelle et indiquer la distance et l’unité connues de la barre d’échelle. Cocher Global pour appliquer cette échelle à toutes les images et mesures futures.
- Ouvrir une photographie microscopique. Utiliser l’outil ligne droite pour tracer une ligne sur la longueur d’une cellule, puis appuyer sur la touche M du clavier pour mesurer la cellule. Mesurer au moins 100 cellules pour chaque culture.
- Copier les données de longueur provenant de la fenêtre contextuelle de Fiji dans un logiciel tableur ou les enregistrer sous forme de fichier de valeurs séparées par des virgules (.csv) pour une analyse statistique.
5. Modifications pour la culture de M. tuberculosis (Mtb) limitée en Zn2+
REMARQUE : Contrairement à Mtb-H37Rv, Mtb-Aux ne peut pas synthétiser la L-leucine ni le D-pantothenate, et ces suppléments sont ajoutés au milieu28. La supplémentation pour Mtb-Aux n'affecte pas la limitation en Zn2+, et les deux souches présentent des phénotypes similaires dans le ZLM23. Ce protocole est une adaptation d'un protocole précédemment publié23, la principale différence étant que les cultures sont incubées pendant 8 jours au lieu de 10 jours afin de réduire l'agglomération et permettre l'enrichissement en cellules isolées, nécessaire pour des applications ultérieures telles que les infections de macrophages. Pour d'autres différences mineures, veuillez consulter la publication originale23. La méthode d'inoculation diffère de celle de M. smegmatis en raison de l'inoculum nettement plus élevé requis pour initier la croissance de M. tuberculosis.
- Pour Mtb-Aux, ajouter une supplémentation supplémentaire de 50 µg/mL de L-leucine et de 48 µg/mL de D-pantothenate dans tous les milieux. Stériliser par filtration des solutions mères 1000x de 50 mg/mL de L-leucine et de 48 mg/mL de D-pantothenate de calcium à l’aide d’un filtre de 0,2 µm, puis ajouter aux milieux stérilisés.
- Ajouter aseptiquement 1 mL de cellules en stock glycérol décongelé à 4 mL de 7H9-ADC dans un tube conique de 14 mL à bouchon vissable (pour Mtb-Aux) ou dans un tube bioreacteur de 50 mL (pour Mtb-H37Rv).
- Incuber à 37 °C sans agitation jusqu’à ce que la culture atteigne une DO600 d’environ 1. Cela prendra environ 1 semaine. Aérer la culture une fois par jour en ouvrant le tube dans une hotte de sécurité biologique et en pipetant plusieurs fois pour bien mélanger la culture.
- Inoculer 1 mL de la culture statique dans 50 mL de 7H9-ADC dans un flacon en plastique aéré de 250 mL. Une culture de 50 mL en 7H9-ADC est suffisante pour des réplicats biologiques en triplicat par souche et par condition (c’est-à-dire sauvage en ZLM et ZRM). Veiller à éviter les gros agrégats (c’est-à-dire de grands amas de cellules) en laissant la culture reposer 5 à 10 minutes avant l’inoculation, afin que les agrégats sédimentent au fond du tube, puis prélever la culture depuis le haut.
NOTE : L’inoculation avec de gros agrégats produit des cultures grumeleuses, ce qui affecte la normalisation et la reproductibilité des cultures. - Incuber à 37 °C avec agitation à 100 tr/min jusqu’à ce que la culture atteigne une DO600 comprise entre 0,5 et 0,8 (phase exponentielle moyenne). Cela prendra 3 à 5 jours.
- Transférer la culture dans un tube conique de 50 mL et récupérer les cellules par centrifugation à 3 000 x g pendant 10 minutes à température ambiante. Éliminer le surnageant en aspirant 40 mL à l’aide d’une pipette serologique, puis retirer le surnageant restant avec une micropipette P1000.
NOTE : Cette étape est essentielle pour réduire le transfert résiduel de Zn2+ provenant du milieu 7H9-ADC. - Resuspendre le culot dans 5 mL de ZLM et compléter le volume total de la culture à 50 mL dans le tube conique avec du ZLM.
- Répéter la centrifugation à 3 000 x g pendant 10 minutes à température ambiante pour récupérer les cellules. Éliminer le surnageant. Resuspendre le culot cellulaire à un volume final de 50 mL comme décrit à l’étape 5.7.
- Mesurer la DO600 des cellules germinales lavées et calculer le volume nécessaire pour obtenir une DO600 initiale de 0,05 (Mtb-H37Rv) ou de 0,08 (Mtb-Aux) dans 50 mL, en utilisant l’équation suivante :
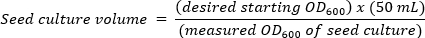
NOTE : La croissance de Mtb-Aux avec une DO600 initiale de 0,05 est irrégulière ; par conséquent, une DO600 plus élevée de 0,08 est utilisée pour assurer une croissance constante. - Prélever par aliquots le volume de culture germinale calculé à l’étape 5.9 dans un nouveau tube conique de 50 mL et compléter le volume à 50 mL avec du ZLM. Verser la culture lavée et normalisée depuis le tube conique dans des flacons Erlenmeyer en plastique préparés comme décrit à l’étape 1. Répéter l’opération en utilisant le même tube conique pour tous les réplicats biologiques de chaque souche et condition.
- Pour les cultures cultivées sans limitation en Zn2+ (c’est-à-dire en milieu suffisant en Zn2+, ZRM), ajouter directement 30 µL de ZnSO4 stérile à 10 mM dans les flacons de culture, pour une concentration finale de 6 µM de ZnSO4.
- Incuber les flacons de culture à 37 °C avec agitation à 100 tr/min pendant 8 jours. Mesurer la DO600 et la fluorescence F420 tout au long de la croissance comme décrit à l’étape 3. Jeter les cultures si elles présentent des grumeaux durant les premiers jours de croissance (c’est-à-dire si la culture n’apparaît pas trouble et que des agrégats sont visibles dans toute la culture).
NOTE : Idéalement, les cultures doivent être majoritairement planctoniques (c’est-à-dire dépourvues de gros agrégats visibles à l’œil nu) durant les premiers jours de croissance. Les cultures de Mtb, en particulier celles en ZLM, deviennent progressivement plus grumeleuses au fil de la croissance, et la présence d’agrégats flottant à la surface du milieu sous forme de flocons est attendue en fin de phase exponentielle23.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Phénotypes bioindicateurs de M. smegmatis
sauvage M. smegmatis cultures cultivées dans du ZLM ayant atteint le Zn2+- limitant la croissance présentent trois phénotypes bioindicateurs principaux par rapport aux cellules cultivées en présence de Zn2+- conditions de réplétion : [1] diminution de la DO600, [2] des cellules allongées et [3] une diminution du pic de fluorescence à 420 nm. Le mutant dépourvu d'AltRPs (ΔaltRP) n'a p...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Une contribution majeure au manque de connaissances sur les fondements mécanistes des ribosomes Alt est la difficulté d’obtenir des conditions limitant le Zn2+ in vitro. La contamination à l’état de tracesZn 2+ en laboratoire est courante ; il est donc difficile d’obtenir des conditions de croissance reproductibles limitées en Zn2+. La contamination par le Zn2+ peut provenir de plusieurs sources, bien que la source la plus importante et la plus courante de contaminatio...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts.
Remerciements
Cette étude a été financée par le CAREER Award 1844854 de la National Science Foundation (NSF), le prix de l'innovation IA -937538 de l'American Lung Association et le NIAID R21 de l'Institut national de la santé (NIH) AI109293 à S.P. L'adresse actuelle d'Allexa D. Burger est le Pacific Biosciences Research Center, University of Hawai'i at Mānoa, Honolulu, Hawaii, États-Unis.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
Systèmes de
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| filtration sous vide de 1000 ml, ligne standard | VWR | 10040-440 | |
| Erlenmeyer Flacons agitateurs | Greiner Bio-One | 679501 | |
| 14 mL Tubes de culture, plastique, avec capuchons à double position VWR | 60818-725 | ||
| Erlenmeyer Flacons agitateurs | Greiner Bio-One | 679502 | |
| 40X-1000X Composé biologique binoculaire de laboratoire Microscope | Omax | M82EZ | |
| 50 mL Tubes de bioréaction, stériles | VWR | 76211-286 | |
| 50 mL Tubes à centrifuger haute performance avec capuchons de drapeau | VWR | 89039-656 | |
| Alcojet Détergent en poudre peu moussant | Alconox | 1404 | |
| Citrate d’ammonium et de fer (III), brun | Thermo Scientific | AAA1119930 ; | MW : 265 g/mol, pour une solution 1M, ajouter 1,325 g à 5 mL d’eau ultrapure ; conserver à l’abri de la lumière à 4 °C |
| Albumine sérique bovine | Thermo Scientific | J10857-A1 | |
| D-Pantothénate de calcium | Thermo Scientific | AC243300050 | |
| Catalase | Sigma-Aldrich | C1345-10G | |
| Acide citrique anhydre, cristallin | Fisher Scientific | BP339-500 | |
| Dextrose anhydre | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Broth | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 pour la détermination de la densité cellulaire et les dosages Bradford | Implen | OD600-10 | |
| GENios FL Lecteur de microplaques | Tecan | Discontinued | |
| Glycerol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Lecteur de microplaques multimode | Tecan | LGE140213-20BL | |
| L-Asparagine | Thermo Scientific | AAB2147336 | |
| L-Leucine | Thermo Scientific | A1231122 | |
| Macrofire SP Caméra CCD | Optronique | À utiliser avec le microscope Olympus | |
| Sulfate de magnésium heptahydraté | VWR | 97062-134 | |
| Système de purification d’eau Milli-Q Direct 8 Millipore | C85358 | ||
| Moticam X3 | Motic | Abandonné, remplacé par Moticam X5 Plus ; pour utilisation avec un microscope composé | |
| Acide oléique | Thermo Scientific | 031997-14 | |
| Olympus BX51 microscope droit | Olympus | Abandonné, remplacé par BX53M | |
| Phosphate de potassium, monobasique | Fisher Scientific | BP362-500 | |
| Semi-Micro Two-Sided Disposable Plastic Cuvettes | VWR | 97000-590 | |
| Chlorure de sodium, cristal | VWR | VW1494-01 | |
| Hydroxyde de sodium | Fisher Scientific | S318-500 ; | |
| Tween 80 | MP Biomedicals | 103170 | |
| Sulfure de zinc heptahydraté, cristallin/ACS | MP Biomedicals | 219145290 |
Références
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
