Cet article couvre les procédures pour induire des réponses de stress à l’aide du stress de contention physique chez les souris et les rats. D’autres considérations à prendre en compte lors du choix et de l’utilisation du stress de contention dans les modèles de rongeurs sont abordées.
Article de méthode
Contention pour induire un stress chez les souris et les rats
Dans cet article
Résumé
Résumé
Chez toutes les espèces animales, l’exposition à des conditions stressantes induit des réponses de stress. Une méthode pour étudier les effets du stress à l’aide de modèles de rongeurs est la procédure de stress de contention. Le stress de contention est utilisé depuis des décennies pour étudier les changements dans la physiologie, la génétique, la neurobiologie, l’immunologie et d’autres systèmes affectés par le stress. En raison de la facilité d’exécution de la procédure, du faible coût et des nombreuses modifications apportées à l’échelle de l’intensité et de la durée de l’exposition au stress, une vaste littérature d’études a utilisé le stress de contention chez les souris et les rats. À titre d’exemple, cette étude présente des données précédemment publiées montrant l’impact du stress de contention chez les souris transgéniques sur les niveaux de corticostérone plasmatique et la libération de noradrénaline induite par l’optogénétique. Le stress aigu de contention a augmenté les niveaux de corticostérone plasmatique, mais cet effet a été atténué chez les souris après un stress de contention répété. Cependant, la libération stimulée de noradrénaline dans le noyau du lit de la strie terminale n’a augmenté que dans le groupe de stress répété. Ces données mettent en évidence des considérations importantes concernant les paramètres de restriction sur les mesures dépendantes. D’autres descriptions du stress de contention chez les rats sont également incluses à des fins de comparaison. Enfin, l’influence des paramètres de la contention (par exemple, aiguë ou chronique) et des caractéristiques des sujets animaux (tension, sexe, âge) est discutée.
Introduction
En raison de l’expérience universelle du stress, l’étude des mécanismes de modification des réponses à la suite d’expositions au stress fait l’objet d’un domaine de recherche constant depuis plusieurs décennies1. Ces recherches ont commencé à analyser les aspects du stress qui peuvent être bénéfiques pour augmenter l’adaptabilité et la réactivité aux facteurs de stress aigus provenant d’expériences de stress qui induisent des altérations inadaptées des fonctions physiologiques et comportementales, résultant souvent d’une exposition prolongée à des facteurs de stress répétés et/ou imprévisibles. Bon nombre de ces réponses aux facteurs de stress ont un impact sur la fonction cérébrale, l’axe hypothalamo-hypophyso-surrénalien (HPA), les branches sympathiques et parasympathiques du système nerveux autonome et le système immunitaire. L’exposition à des facteurs de stress déclenche la libération accrue de facteur de libération de la corticotrophine (CRF) pour augmenter l’hormone adrénocorticotrope (ACTH) et les hormones glucocorticoïdes, telles que le cortisol chez les primates et de nombreux autres mammifères et la corticostérone chez les rongeurs2. De plus, l’épinéphrine et la noradrénaline sont libérées dans toute la périphérie et le cerveau dans le cadre de la réponse du système nerveux sympathique3. Ces signaux chimiques interagissent ensuite avec un certain nombre de systèmes physiologiques, tels que la fonction immunitaire, le métabolisme, la reproduction et la réactivité neuronale4.
Les expériences stressantes sont associées à une myriade de conditions, notamment une augmentation de l’anxiété et de la dépression, des altérations de l’apprentissage et de la mémoire, des déficiences de la prise de décision et des fonctions exécutives et une susceptibilité aux troubles liés à la consommation de substances, entre autres. Chacun de ces effets dépend à la fois des paramètres du facteur de stress et des caractéristiques de l’individu qui subit le stress4. La nature du facteur de stress, qu’il soit aigu ou chronique et qu’il soit contrôlable ou imprévisible, modifie considérablement les résultats observés. Ces aspects du stress semblent cohérents entre les expériences humaines et les modèles animaux. Ainsi, pour modéliser le stress dans les études animales, il faut soigneusement sélectionner les paramètres d’exposition au stress qui conviennent à l’espèce, au sexe et à la condition.
Bien qu’un certain nombre de facteurs de stress soient disponibles pour des études sur des rongeurs (y compris des facteurs de stress psychosociaux comme le stress d’isolement social ou la défaite sociale, des facteurs de stress pharmacologiques comme l’administration de cortisol ou de yohimbine, des facteurs de stress physiques comme le choc du pied et la contention, et des facteurs de stress multimodaux qui se combinent ou alternent entre les conditions), ce manuscrit se concentrera sur l’utilisation du stress de contention chez les souris et les rats. Le stress de contention peut être choisi par rapport à d’autres facteurs de stress parce qu’il est facile à réaliser, peu coûteux, adaptable à différentes tailles de rongeurs, évolutif à la fois à des périodes aiguës et à long terme, et entraîne rarement des dommages négatifs pour le sujet5. Bien que ce manuscrit se concentre sur les changements durables induits par l’exposition au stress de contention, certaines études utilisent la contention chez les rongeurs pour examiner les mécanismes et les comportements qui se produisent pendant la contention, y compris les comportements d’adaptation actifs impliqués dans l’évasion du facteur de stress 6,7,8,9. L’objectif de ce manuscrit est de fournir des considérations méthodologiques pour évaluer l’impact du stress de contention sur des souris ou des rats.
Protocole
Les expériences et les protocoles ont été approuvés par l’Institutional Animal Care and Use Committee (IACUC) de l’Université de Caroline du Nord à Chapel Hill (souris) et de l’Université Fairfield (rats) et suivent les directives du NIH10.
1. Stress de contention chez la souris
REMARQUE : Les souris offrent un certain nombre d’avantages lorsqu’elles étudient les effets du stress sur la physiologie et les systèmes neuronaux. Avec la prévalence des lignées de souris transgéniques, des études mécanistes sur les interactions entre les gènes et les expositions au stress sont facilement réalisables. Que vous utilisiez des souris transgéniques ou de type sauvage, il est recommandé de tenir compte de la souche de fond. De plus, en raison de leur taille et de leur logement social, les souris offrent un avantage dans l’utilisation de l’espace par rapport aux autres espèces.
- Exposition au stress de contention
- Attribuez au hasard des souris à des groupes de contrôle de la cage familiale, de stress aigu ou de stress chronique de contention.
- Déterminez la durée de l’exposition au stress. Pour les facteurs de stress aigus, utilisez une seule séance de 5 min à 12 h confinée dans l’appareil de contention. Pour les facteurs de stress chroniques, assurez-vous que la séance correspond à la durée du facteur de stress aigu, mais qu’elle est répétée quotidiennement pendant aussi peu que 3 jours et aussi longtemps que 21 jours.
REMARQUE : Étant donné que les souris n’auront pas accès à de la nourriture et à de l’eau lorsqu’elles sont dans des conditions de contention, demandez-vous si les animaux de contrôle en cage familiale ne devraient pas non plus avoir accès à de la nourriture et à de l’eau. - Modifier les tubes coniques de 50 mL pour ajouter des trous de ventilation.
- Utilisez une perceuse électrique avec un foret de 1/8 po pour espacer uniformément les trous autour de chaque tube conique afin d’assurer la circulation de l’air dans toutes les zones du tube.
- Placez ces trous pour permettre à la souris d’accéder à l’air, quelle que soit la direction dans laquelle la souris fait face dans le tube. Assurez-vous qu’il ne reste pas d’arêtes vives après la modification.
REMARQUE : Ces tubes coniques modifiés devraient être efficaces pour la plupart des souris adultes (~20-40 g) mais peuvent ne pas retenir les petites / jeunes souris ou les souches plus grandes.
- Dans une salle d’essai, distincte du logement des animaux et des tests comportementaux, placez l’animal assigné à la contention dans le tube conique modifié avec le capuchon attaché pour confiner la souris dans le tube pendant la durée de contention désignée.
REMARQUE : Les spécificités de la conception de la salle d’essai peuvent varier en fonction de l’espace disponible dans l’installation. La pièce peut comprendre des hottes et d’autres équipements de laboratoire et/ou des tables/paillasses de laboratoire ou être une salle d’intervention vide. Cependant, quelle que soit la configuration de la salle, l’environnement de la salle de contention doit rester constant pendant les expositions répétées afin d’éviter les modifications induites par le contexte dans les réponses au stress11. - Placez le tube de retenue horizontalement sur une surface plane. Si nécessaire, fixez le tube avec du ruban adhésif de laboratoire ou un bassin de pipette/réservoir de réactif afin qu’il ne roule pas avec la souris à l’intérieur.
REMARQUE : Dans des conditions de stress, les souris produisent des vocalisations ultrasonores. Déterminer si la conception de l’étude nécessite une isolation acoustique par rapport à d’autres sujets retenus12. La corticostérone et d’autres marqueurs des réponses au stress suivent les rythmes circadiens. Par conséquent, il faut tenir compte des conditions d’éclairage et du temps de l’agent de stress. Dans tous les groupes de stress, la contention doit avoir lieu à un moment constant de la journée, de préférence au début du cycle de lumière 13,14,15. Pour l’étude présentée ici, les souris ont été immobilisées pendant environ 3 heures après l’allumage des lumières. - Surveillez chaque animal pendant le stress de contention au moins toutes les 20 minutes. Déterminer visuellement si l’animal présente des réponses inhabituelles (respiration lente, manque de mouvement). Si vous observez, retirez la souris du tube de contention, contactez un vétérinaire et excluez la souris de l’étude.
- Remettez la souris dans la cage de la maison et donnez-lui accès à de la nourriture et de l’eau.
2. Stress de contention chez le rat
REMARQUE : En tant que rongeurs plus gros, les rats ont des avantages à prendre en compte lorsqu’ils étudient les effets du stress. Comme les souris, les rats ont diverses souches avec des réponses différentielles à l’exposition au stress16,17. De plus, l’augmentation de la taille des rats rend les rats plus faciles à utiliser avec certaines mesures comportementales, par exemple l’auto-administration de médicaments.
- Exposition au stress de contention
- Attribuez au hasard le rat aux groupes de contrôle de la cage familiale, de stress aigu ou de stress chronique par contention.
- Déterminez la durée de l’exposition au stress. Pour les facteurs de stress aigus, utilisez une seule séance de 5 min à 12 h confinée dans l’appareil de contention. Pour les facteurs de stress chroniques, assurez-vous que la séance correspond à la durée du facteur de stress aigu, mais qu’elle est répétée quotidiennement pendant aussi peu que 3 jours et aussi longtemps que 21 jours.
REMARQUE : Étant donné que les rats n’auront pas accès à de la nourriture et à de l’eau lorsqu’ils seront en condition de contention, demandez-vous si les animaux témoins des cages familiales ne devraient pas non plus avoir accès à la nourriture et à l’eau. - Pour un tube de retenue disponible dans le commerce, suivez les étapes décrites ci-dessous.
REMARQUE : Des tubes de contention pour rats disponibles dans le commerce sont disponibles. Ces appareils ont une variété de conceptions, y compris des fils métalliques, des conteneurs et des tubes en plastique/plexiglas avec des options à fond arrondi et plat. Chaque option est simple à utiliser.- Insérez le rat dans l’appareil, puis ajoutez une prise ajustée à la taille du sujet et verrouillez-le en place. Lorsqu’il est placé dans le tube de retenue, assurez-vous que le rat est bien confiné pour éviter les virages de la tête à la queue, mais qu’il peut respirer facilement.
REMARQUE : Ces appareils sont conçus pour retenir les rats et n’ont pas besoin d’être modifiés pour la respiration. Cette étude utilise le dispositif de retenue du tailveiner (Table of Materials), qui comprend des ventouses sur une plate-forme sous le tube pour fixer le dispositif. Un avantage supplémentaire de ce dispositif est que la queue est accessible à l’extérieur du dispositif pour le contrôle du sujet lors de l’insertion et du retrait du tube ou de la prise de sang dans la veine de la queue pendant la contention.
- Insérez le rat dans l’appareil, puis ajoutez une prise ajustée à la taille du sujet et verrouillez-le en place. Lorsqu’il est placé dans le tube de retenue, assurez-vous que le rat est bien confiné pour éviter les virages de la tête à la queue, mais qu’il peut respirer facilement.
- Dans une salle d’essai distincte du logement des animaux et des tests comportementaux, placez les animas assignés à la contention dans le tube de contention pendant la durée de contention désignée. Placez le tube de retenue horizontalement sur une surface plane.
REMARQUE : Dans des conditions de stress, les rats produisent également des vocalisations ultrasonores. Déterminez si la conception de l’étude nécessite une isolation acoustique par rapport à d’autres sujets restreints. - Surveillez chaque animal pendant le stress de contention au moins toutes les 20 minutes. Déterminer visuellement si l’animal présente des réponses inhabituelles (respiration lente, manque de mouvement). Si vous l’observez, retirez le rat du tube de contention, contactez un vétérinaire et excluez le rat de l’étude.
- Remettez le rat dans la cage de la maison et donnez-lui accès à de la nourriture et de l’eau.
3. Évaluation du stress
- Mesure de l’activation de l’HPA
- S’il y a lieu, après une exposition au stress de contention ou un retrait de la cage familiale, décapiter rapidement les sujets pour recueillir le sang du tronc dans des tubes héparinisés.
- Isolez le plasma par centrifugation et stockez les échantillons de plasma à -80 °C. Analysez la corticostérone sanguine à l’aide d’un kit de dosage immuno-enzymatique (ELISA).
REMARQUE : Bien que la corticostérone soit souvent utilisée comme mesure de la gravité de l’exposition au stress, en particulier le stress aigu, les niveaux de corticostérone ne sont pas toujours corrélés avec les changements de comportement induits par le stress6. De plus, la réponse de l’axe HPA régulant la libération de corticostérone s’habitue à l’exposition répétée au même facteur de stress18. Alternativement, l’hormone adrénocorticotrope (ACTH) peut être une mesure plus fiable de l’intensité d’un facteur de stress aigu4. Il reste élevé pendant environ une heure après l’arrêt de l’exposition aux facteurs de stress, mais un stress sévère et prolongé (environ > 2 heures) peut fatiguer sa production.
- Effets comportementaux
- Le cas échéant, après l’exposition au stress de contention ou le retrait de la cage familiale, évaluez la performance comportementale du rongeur avec la tâche comportementale appropriée.
REMARQUE : De plus amples informations concernant les effets de la contention sur divers modèles comportementaux peuvent être trouvées dans la section de discussion.
- Le cas échéant, après l’exposition au stress de contention ou le retrait de la cage familiale, évaluez la performance comportementale du rongeur avec la tâche comportementale appropriée.
- Neurobiologie
- Alternativement ou en plus, évaluer la fonction neurobiologique après la contention, l’exposition au stress ou le contrôle. Un large éventail de tests peut étudier les effets du stress de contention sur les cellules, les synaptiques et les circuits. En fonction du test, implantez un appareil de mesure in vivo ou prélevez du tissu cérébral pour effectuer l’analyse sélectionnée.
REMARQUE : Les effets du stress sur les changements spécifiques au type cellulaire dans la synthèse des protéines et les modifications épigénétiques ont été examinés en profondeur par McEwen et ses collègues1. Ces modifications génétiques et protéiques induisent la plasticité pour modifier les connexions et les circuits synaptiques. Afin de mener ces études, prélever du tissu cérébral après une exposition au stress et effectuer des analyses génomiques, protéomiques, physiologiques ex vivo et autres. Vous pouvez également évaluer les changements neurobiologiques à l’aide de mesures in vivo telles que la microdialyse, la voltampérométrie cyclique à balayage rapide (FSCV), la photométrie par fibre, etc. Ces approches enregistrent la libération neurochimique et l’activation neuronale, à la fois après l’exposition au stress de contention 2,19 et maintenant pendant la contention 8,9,20. La boîte à outils permettant d’évaluer les mécanismes neurobiologiques sous-jacents aux effets du stress de contention s’élargit rapidement, ce qui permet de mieux comprendre les complexités du stress.
- Alternativement ou en plus, évaluer la fonction neurobiologique après la contention, l’exposition au stress ou le contrôle. Un large éventail de tests peut étudier les effets du stress de contention sur les cellules, les synaptiques et les circuits. En fonction du test, implantez un appareil de mesure in vivo ou prélevez du tissu cérébral pour effectuer l’analyse sélectionnée.
Résultats
Dans une étude publiée antérieurement21, les procédures de stress de contention décrites dans ce manuscrit ont été utilisées pour évaluer l’impact du stress de contention sur la régulation du cortisol et de la noradrénaline, relevant des larges possibilités de changements neurobiologiques induits par le stress mentionnées dans le protocole 3.3. Dans cette étude, nous avons utilisé le protocole décrit ci-dessus pour la contention des souris. Des détails supplémentaires qui dépassent le cadre de l’objectif de restriction de cet article, par exemple, la raison d’être de la région du cerveau, les paramètres de stimulation optogénétique, ou FSCV, peuvent être trouvés dans le manuscrit référencé.
Nous avons utilisé des souris transgéniques mâles et femelles (DBH :Cre+/- ::Ai32+/-) exprimant sélectivement la channelrhodopsine dans les neurones noradrénergiques et mesuré la libération stimulée de noradrénaline dans le noyau du lit de la strie terminale (BNST) avec ex vivo FSCV21. Les souris ont été maîtrisées comme décrit dans le protocole 1 de manière aiguë (2 h) et chronique (2 h/jour pendant 5 jours) ou dans un contrôle de la cage domestique. Après l’exposition, du sang a été prélevé chez certains sujets pour l’analyse de la corticostérone, comme décrit dans le protocole 3.1. Immédiatement après un stress aigu de contention, les souris ont montré des niveaux élevés de corticostérone, mais la réponse a été émoussée après un stress répété (voir Figure 1). D’autres souris ont été utilisées pour évaluer l’impact du stress de contention sur la libération de noradrénaline. 24 heures après la dernière exposition au stress, le tissu cérébral a été rapidement prélevé et tranché pour enregistrer la libération de noradrénaline dans le BNST. Il est intéressant de noter que la contention aiguë n’a pas eu d’impact sur la libération stimulée de noradrénaline, mais que l’exposition répétée au stress a entraîné une augmentation significative de la libération de noradrénaline stimulée dans tous les paramètres de stimulation (voir figure 2). Ces résultats convergent avec des études antérieures sur l’impact du stress de contention sur la libération de noradrénaline chez le rat en utilisant les approches décrites dans le protocole 217,22.

Figure 1 : Corticostérone dans le plasma de témoins en cage domestique (naïf) et après un stress aigu (unique) et chronique (répété) de contention. Après une seule séance de stress aigu de contention de 2 heures, les taux plasmatiques de corticostérone étaient élevés par rapport aux sujets naïfs et aux sujets de stress répété. Les résultats sont exprimés en moyenne ± MEB. N = 5-6 souris par groupe. **p < 0,05, ***p < 0,005. Cette figure a été modifiée avec la permission de Schmidt et al.21. Veuillez cliquer ici pour voir une version agrandie de cette figure.
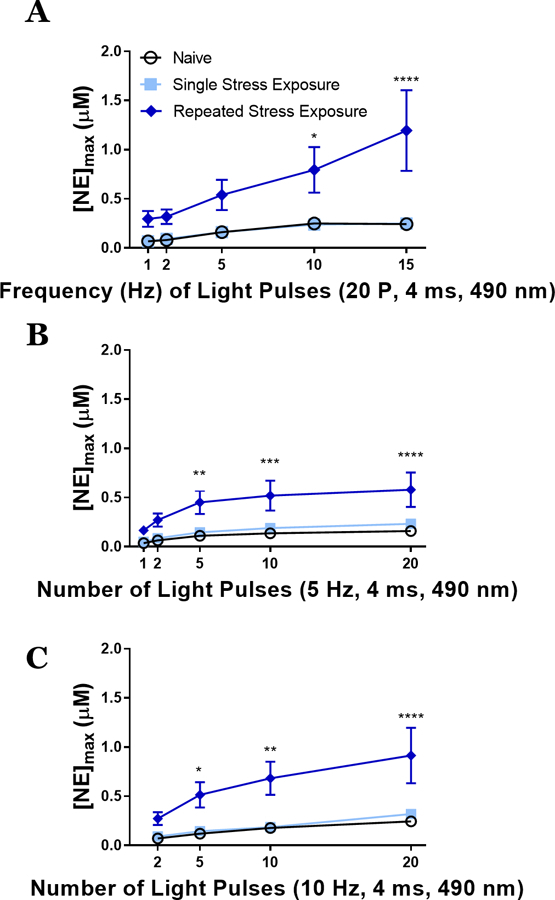
Figure 2 : La libération de noradrénaline stimulée par l’optogénétique est augmentée après un stress chronique (répété). Le lendemain de l’exposition finale au stress, une voltampérométrie cyclique à balayage rapide ex vivo a été réalisée pour mesurer la libération de noradrénaline stimulée optogénétiquement dans le noyau du lit de la strie terminale de souris. (A) Les variations de fréquence (Hz) de 20 stimulations pulsées (20 P) ont libéré plus de noradrénaline dans le groupe de stress répété. (B, C) Les variations du nombre d’impulsions (2-20) à une fréquence de stimulation de 5 Hz (B) ou 10 Hz (C) indiquaient une plus grande libération de noradrénaline dans le groupe de stress répété. Moyenne ± SEM ; n = 5 à 6 souris/groupe fournissant 7 à 8 tranches/groupe. *p < 0,05, **p < 0,05, ***p < 0,005 et ****p < 0,0001. Cette figure a été modifiée avec la permission de Schmidt et al.21. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Pour étudier les effets du stress sur les fonctions physiologiques, neurobiologiques et comportementales dans des modèles de rongeurs, il faut utiliser les conditions qui produisent du stress chez les rongeurs. Parmi ces considérations, il y a les conditions qui produisent des réponses au stress chez le sujet. La contention est une procédure validée pour produire des réponses physiologiques et comportementales chez les rongeurs correspondant aux effets du stress chez l’homme. À l’aide d’une méthodologie similaire à ce protocole, la contention a été utilisée pour évaluer un certain nombre de réponses moléculaires, cellulaires, endocriniennes et physiologiques liées à des modèles de troubles psychiatriques, y compris l’anxiété, la dépression, la douleur et les troubles liés à l’utilisation de substances 1,19. Ici, les données d’une étude publiée sont présentées comme un exemple de contention chez les rongeurs, mais les effets de la contention s’étendent au-delà de cet exemple particulier à une vaste gamme de mesures dépendantes. La contention peut être choisie pour être utilisée comme facteur de stress parce qu’elle est facile à réaliser chez les souris et les rats, peu coûteuse à établir et adaptable pour induire divers niveaux de réponses au stress en fonction des paramètres utilisés.
Comparée à d’autres approches stressantes, la contention présente certaines limites à prendre en compte lors de la conception de l’étude 4,23. Notamment, le stress de contention n’induit pas toujours les changements de comportement observés avec d’autres facteurs de stress physiques, comme le footshockintermittent 24. Ces incohérences peuvent être le résultat de l’avantage de la retenue qu’elle peut se produire dans une variété d’environnements, alors que le choc du pied est plus limité à une chambre d’essai équipée de planchers de grille de choc. Les contextes de stress influencent grandement les effets qui en résultent11. De plus, l’enfermement à l’intérieur d’un tube ou d’un dispositif de contention traditionnel est un inconvénient car il limite l’accès au sujet pendant la contention. De nouveaux dispositifs de contention ont été mis au point, par exemple « REcomping Signal TRansients ACCessible IN a Tube (RESTRAINT) », pour surmonter cette limitation et permettre l’attache pour la collecte de données neurobiologiques pendant les séances de contention 8,9,20. Une autre approche pour surmonter cet obstacle utilise le stress d’immobilisation comme une technique similaire à la contention - souvent, l’immobilisation et la contention sont utilisées comme synonymes, mais avec des différences importantes25. Le stress d’immobilisation consiste à fixer les bras, les pattes et la tête d’un animal à une surface, tandis que la contention consiste à le placer à l’intérieur d’un dispositif restrictif. En tant que tel, le stress d’immobilisation restreint les mouvements tout en permettant l’accès au sujet pour la collecte de sang, de liquide céphalo-rachidien, de réponses pupillaires ou d’autres effets physiologiques qui peuvent être intéressants pour la recherche sur le stress. Parmi les autres facteurs de stress qui ont été utilisés pour induire le stress chez les rongeurs, citons le stress dû au froid environnemental, l’administration d’agents pharmacologiques comme la corticostérone ou la yohimbine, les expériences éthologiquement pertinentes de défaite sociale ou d’exposition à des odeurs de prédateurs, et le stress multimodal comme le stress imprévisible chronique (CUS). Ces modalités de stress alternatives sont sélectionnées pour être utilisées en raison de leurs avantages dans la modélisation d’aspects spécifiques du stress. Par exemple, bien que la contention soit un aspect des modèles CUS chez les souris et les rats26, les effets de CUS peuvent être distincts de ceux produits par une exposition équivalente à un stress chronique de contention27,28. La prévisibilité de la contention répétée réduit la réponse aux épisodes de contention futurs, ce qui limite l’efficacité du stress de contention homotypique. Comme alternative, CUS et d’autres modèles de stress hétérotypiques font pivoter les facteurs de stress ou les contextes pour minimiser l’accoutumance11,18. Ces modèles de stress imprévisibles pourraient mieux modéliser les aspects des conditions psychiatriques humaines pour encapsuler pleinement la perte de contrôle et l’attente. Un autre inconvénient de la contention que d’autres modalités de stress sont mieux à même de traiter est la contribution sociale à la susceptibilité au stress et à l’amortissement du stress 29,30,31. Les rongeurs et les humains sont des animaux sociaux avec des relations et des hiérarchies conspécifiques. Bien que le stress de contention n’intègre pas la socialisation, les facteurs de stress psychosociaux tels que le stress de défaite sociale constituent un facteur de stress éthologiquement pertinent pour les rongeurs 32,33,34.
Dans l’utilisation du stress de contention, l’intensité et la répétition de l’administration sont un paramètre qui pourrait être manipulé5. Pour créer une contrainte de contention plus robuste, la conception de l’étude peut nécessiter une plus longue période de temps dans le dispositif de retenue. Des paramètres aussi courts que 5 min ou aussi longs que 12 h sont possibles pour des séances de contention aiguës ou prolongées, respectivement35,36. Une fois que la durée de l’exposition à la contention est déterminée, la répétition du facteur de stress peut également être un facteur d’induction de divers niveaux de stress35,37. Il est à noter que le stress répété de la contention ne signifie pas nécessairement une augmentation des effets observés. Le stress de contention souvent répété habitue ou réduit les réponses au stress18. Dans les données présentées ici, nous avons observé une accoutumance à la réponse de la corticostérone au stress de contention répété, alors que dans le même temps, nous avons mesuré les différences dans la libération stimulée de noradrénaline uniquement dans le groupe d’exposition au stress répété. Par conséquent, les effets de la contention répétée doivent être soigneusement étudiés avant de déterminer les effets de l’accoutumance35.
De plus, les conséquences des conditions de logement utilisées dans les études utilisant le stress de contention doivent être prises en compte. L’interaction avec des congénères stressés a un impact sur les réponses au stress chez les rongeurs 30,38,39. Ainsi, pour maintenir des réponses cohérentes entre les groupes expérimentaux, les sujets devraient être soit logés individuellement, soit logés en groupe, tous les compagnons de cage éprouvant la même condition de stress37. L’un des inconvénients de cette approche de l’isolement social de tous les sujets est que le logement d’isolement social est également un facteur de stress40,41. Cependant, quelles que soient les conditions de logement, l’exposition au stress devrait se produire de manière isolée, si possible, afin d’éviter que l’amortissement social du stress n’ait un impact sur les mesures de résultats30. Parallèlement à ces conditions de logement, le moment de l’exposition au stress par rapport aux cycles de lumière environnementaux doit être pris en compte14,15. Comme le notent certaines études37, les niveaux de corticostéroïdes suivent les rythmes circadiens, de sorte que l’administration de facteurs de stress à différents moments du cycle de lumière peut produire des effets incohérents. Par conséquent, il est essentiel d’établir et de maintenir une heure de début uniforme pour la retenue. Par exemple, un article examinant les effets du stress de l’exercice sur le contrôle circadien de la corticostérone montre que chez les souris témoins, la corticostérone atteint un pic tard dans le cycle de lumière, mais chez les souris stressées, la corticostérone reste élevée sans un pic stablede 13. À la lumière de ces résultats, il est recommandé de stresser les rongeurs au début du cycle de lumière pour produire les effets les plus importants.
Au-delà des paramètres des conditions de contention, les caractéristiques du sujet animal ont également été importantes à prendre en compte dans les études utilisant des facteurs de stress de contention. Par exemple, de nombreuses études ont rapporté des différences entre les sexes en utilisant le stress de contention 12,35,37,42,43,44. Comprendre les mécanismes sous-jacents à ces différences mérite d’être étudié et pourrait conduire à de meilleurs résultats pour des traitements équitables lorsque les gens ressentent du stress. Peut-être que les femmes et les hommes vivent et traitent les facteurs de stress différemment, ce qui conduit à l’augmentation de l’anxiété et de la dépression chez les femmes44. Par exemple, le stress lié à la contention diminue les performances d’apprentissage chez les mâles, mais augmente les performances d’apprentissage chez les femelles45. Historiquement, les études sur le stress de contention chez les rongeurs ont limité leurs sujets aux mâles, mais à l’avenir, nous devrions concevoir des expériences pour inclure les deux sexes. Une autre caractéristique du sujet à prendre en compte lors de la conception d’expériences utilisant des facteurs de stress de contention (et autres) chez les espèces de souris ou de rats est la souche 46,47,48,49,50,51. Des effets de tension ont été observés dans un certain nombre de paradigmes, certaines souches affichant des réponses exacerbées au stress de contention. Enfin, l’âge du sujet doit être pris en compte lors de l’utilisation du stress de contention. De l’exposition prénatale au stress par la contention d’une mère enceinte à la contention chez les populations âgées, le stress par contention peut être adapté à n’importe quel moment dans le temps. Des différences dans la réponse au stress ont été observées tout au long de la vie 45,52,53,54,55,56. En plus d’exiger différents dispositifs de contention pour s’adapter aux changements de taille du corps à mesure que l’âge se produit, les expériences de stress liées à l’âge doivent être prises en compte lors de l’utilisation de facteurs de stress de contention.
Le choix de la mesure de résultat appropriée, qu’il s’agisse d’une tâche comportementale décrite à la section 3.2 ou d’une variable neurobiologique décrite à la section 3.3, doit être prise en considération. D’une part, il a été démontré qu’une exposition aiguë et légère au stress améliore les performances dans certaines tâches d’apprentissage, mais une exposition intense ou chronique au stress altère les performances dans les tâches d’apprentissage et de mémoire57. On pense que ces changements dans les performances cognitives sont régulés par une dysrégulation du circuit entre le cortex préfrontal, l’amygdale et l’hippocampe. Cependant, les effets du stress de contention sur la flexibilité cognitive sont plus mitigés, avec des résultats incohérents qui empêchent une image claire de la façon dont divers paramètres de la contention modifient l’apprentissage par inversion ou le déplacement des ensembles58. En ce qui concerne les effets comportementaux des drogues, il a été démontré, comme d’autres facteurs de stress, que le stress lié à la contention augmente les comportements liés aux troubles liés à l’utilisation de substances dans un certain nombre de classes de drogues59. Cependant, ces effets sont quelque peu sélectifs dans la mesure où le stress de contention n’est pas signalé comme conduisant à la recherche de drogues dans les modèles de conditionnement opérant de la rechute, mais augmente les effets de l’apprentissage associatif des drogues mesurés par les tâches de préférence de lieu conditionnées, y compris la réintégration60. On pense que cet écart se produit parce que les dispositifs de contention créent un contexte distinct de celui des chambres de conditionnement opérantes, alors que le stress par choc au pied peut se produire dans l’environnement opérant. Pour surmonter cette limitation, l’association de l’exposition au stress avec des signaux qui peuvent être présentés lors des séances d’auto-administration opérante a démontré une augmentation induite par le stress de la prise et de la recherche de drogues61. Les effets de la contention chronique sur les comportements liés à la drogue sont moins bien caractérisés. Si l’on considère les modèles de troubles affectifs comme l’anxiété et la dépression, chez les humains et les animaux, l’exposition au stress augmente les mesures de l’anxiété. Chez les rongeurs, les évaluations du stress de contention de l’anxiété incluent les réponses thigmotaxiques dans l’appareil en plein champ, mesurées en suivant la réponse locomotrice de l’animal le long des murs de l’arène par rapport au centre. Les animaux présentant des comportements anxieux après la contention passeront plus de temps près des côtés et auront moins de croisements centraux. Une autre approche pour mesurer l’anxiété est le labyrinthe plus élevé. Cette tâche utilise un appareil en forme de croix élevé à environ 3 pieds au-dessus du sol. Deux bras de l’appareil comprennent des barrières murales ; Deux bras ont des côtés ouverts. Les animaux présentant des comportements anxieux passeront plus de temps dans les bras fermés que dans les bras ouverts62,63. Les comportements de type dépression sont évalués par la tâche de nage forcée dans laquelle les rongeurs sont placés dans un cylindre d’eau et mesurés pour les réponses en difficulté par rapport aux réponses flottantes64. La question de savoir si l’arrêt de la lutte pour s’échapper représente vraiment un comportement semblable à la dépression a été remise en question65, mais la tâche a montré son utilité en tant que dépistage des médicaments antidépresseurs. Les comportements de type dépressif peuvent également être évalués par des réductions induites par le stress de la préférence pour le saccharose66. Ces changements dans la consommation de liquide sucré sont considérés comme une évaluation des aspects anhédoniens de la dépression clinique.
En résumé, la contention chez les souris et les rats est une procédure validée pour produire des réponses de stress et d’anxiété dans des études de physiologie, de génétique, d’immunologie et de neurosciences. Comparée à d’autres approches stressantes, la contention est peu coûteuse, facile à réaliser, utile pour modéliser des aspects des troubles humains tels que l’anxiété, la dépression, les troubles liés à la consommation de substances et le trouble de stress post-traumatique, et peut être adaptée avec un large éventail de paramètres. Pour ces raisons, le stress de contention continue d’être une méthode utile pour déterminer l’impact du stress chez les rongeurs.
Déclarations de divulgation
Aucun conflit d’intérêts à signaler.
Remerciements
J’apprécie les commentaires éditoriaux fournis par Holly Rahurahu et Sam Shaffer.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 50 mL Bouchon à vis à usage général Tube conique | Globe Scientific | 6288 | |
| Bassin de pipette jetable | Fisher Scientific | 13-681-500 | |
| Kit ELISA pour corticostérone | Essais d’arbre | K014-H | |
| Tailveiner Restrainer Tube | Braintree Scientific | RTV |
Références
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Réimpressions et autorisations
