Les lignées cellulaires sont utiles dans les études sur les organismes intracellulaires qui ne peuvent pas être cultivés en dehors de leurs cellules hôtes. Bien que les lignées infectées par Wolbachia aient permis de nombreuses découvertes, l’hétérogénéité au sein de ces lignées peut conduire à des résultats expérimentaux variables. Nous présentons un protocole pour générer des clones unicellulaires et des cultures continues à partir de cellules JW18 infectées par Wolbachia.
Article de méthode
Génération de cultures monoclonales à partir de la lignée cellulaire de Drosophila melanogaster JW18 infectée par Wolbachia
Dans cet article
Résumé
Résumé
Les lignées cellulaires sont des modèles largement utilisés dans la recherche biologique. Ils sont particulièrement utiles dans les études sur les bactéries intracellulaires qui ne peuvent pas être propagées efficacement en dehors des organismes hôtes. Wolbachia, un symbiote intracellulaire de nombreux invertébrés, induit de forts effets reproducteurs et antiviraux chez ses hôtes insectes. Les cellules d’insectes infectées par Wolbachia ont été largement utilisées pour étudier les phénotypes de Wolbachia. Cependant, ces lignées cellulaires sont souvent constituées de populations mixtes de cellules avec des phénotypes et des réponses potentiellement variables aux traitements expérimentaux. En particulier, les lignées cellulaires avec Wolbachia ont été signalées comme présentant des taux de croissance variables et une prévalence variable de l’infection à Wolbachia d’un passage à l’autre. Pour remédier à cela, nous avons généré des lignées cellulaires monoclonales à partir de la lignée cellulaire JW18 dérivée de Drosophila melanogaster infectée par Wolbachia. Ces lignées clonales ont été établies à différents moments et montrent différents statuts d’infection à Wolbachia. Cette variabilité suggère que tout traitement appliqué à une population parentale de JW18 pourrait conduire à la sélection de sous-populations plutôt qu’à influencer la physiologie de l’ensemble de la culture. Ici, nous présentons un protocole pour générer des clones unicellulaires et des cultures clonales continues à partir de cellules d’insectes infectées par Wolbachia, permettant des expériences plus contrôlées et reproductibles.
Introduction
Les cellules de Drosophila melanogaster sont largement utilisées dans les études génétiques, la recherche sur les maladies et comme plate-forme pour le criblage de médicaments à haut débit1. Ils sont également utiles dans l’étude de l’un des microbes intracellulaires les plus répandus sur la planète : Wolbachia. Wolbachia est une bactérie intracellulaire à Gram négatif que l’on trouve chez 40 à 70 % des espèces d’insectes 2,3,4, où elle se propage maternellement et induit des manipulations reproductives 5,6,7,8. Wolbachia peut également fournir aux hôtes infectés une protection antivirale 9,10,11,12,13,14,15 qui, avec les manipulations reproductives, est exploitée pour contrôler la transmission des arbovirus des moustiques aux humains 16,17. Dans divers systèmes, il a été démontré que Wolbachia contrôle l’apoptose18, fournit des nutriments essentiels19 et modifie l’expression des gènes et des protéines 20,21,22,23,24,25.
Les lignées cellulaires sont apparues comme un modèle pour étudier Wolbachia en raison de leur biologie simple, de leur commodité et de leur capacité à se propager en grandes quantités. Les lignées cellulaires se sont avérées utiles pour pré-adapter Wolbachia à la symbiose avec de nouveaux hôtes26 et permettre à Wolbachia d’accumuler des mutations27,28. Ils ont été utilisés pour dépister les composés anti-Wolbachia, ce qui peut être utile dans le traitement des maladies filaires29 et l’étude de l’interaction de traduction Wolbachia-hôte 30. Bien que les lignées cellulaires soient indispensables dans les études sur les symbioses de Wolbachia 29,30,31, les mécanismes sous-jacents à la plupart des phénotypes de Wolbachia restent inconnus. Cela suggère que le système de culture cellulaire peut encore être amélioré.
Les lignées cellulaires d’insectes infectés par Wolbachia sont dérivées d’embryons et de larves d’insectes. Aa23, dérivée d’embryons d’Aedes albopictus, a été la première lignée stable infectée par Wolbachia 32, utilisée par la suite pour de nombreuses études sur la symbiose Wolbachia 33,34,35. La lignée cellulaire JW18 a été l’une des premières lignées naturellement infectées par Wolbachia générées à partir de D. melanogaster29,36. Cette lignée, dérivée d’embryons de 1 h à 15 h de mouches infectées par wMel, a également servi de source de Wolbachia pour d’autres lignées cellulaires de drosophile : 1182-4H et S2R+37. Comme les embryons ont une forte proportion de cellules pluripotentes, en s’adaptant pour se développer dans le plastique, ils peuvent acquérir de nouvelles caractéristiques, parfois différentes pour les lignées cellulaires individuelles. Cela peut expliquer l’hétérogénéité des morphologies cellulaires et les fréquences d’infection à Wolbachia observées dans ces cellules à un moment donné et au cours des générations29.
La diversité cellulaire au sein de la culture JW18 soulève des inquiétudes, car des études sur des lignées cellulaires de moustiques, telles que Aag2, ont montré que les lignées cellulaires monoclonales et parentales peuvent répondre différemment aux traitements en raison des variations des caractéristiques cellulaires38. Par conséquent, l’administration de traitements à une population cellulaire mixte pourrait donner des résultats trompeurs. Pour étudier la réponse d’une population cellulaire homogène à un traitement (et non la sélection pour des types de cellules individuels), nous avons généré des cultures monoclonales à partir de la lignée cellulaire parentale JW18. Il n’y a pas eu de tentatives antérieures pour générer des cultures monoclonales à partir de ces cellules. Le protocole consiste à isoler des cellules uniques de la lignée cellulaire parentale JW18, puis à les entretenir et à les transférer dans des flacons pour établir des cultures clonales continues. Nous avons vérifié le statut d’infection à Wolbachia de lignées individuelles, montrant qu’elles diffèrent sur ce trait caractéristique. Des cultures cellulaires homogènes sont essentielles pour garantir la précision et la reproductibilité des expériences futures.
Protocole
REMARQUE : Tous les travaux avec des cellules vivantes et leurs milieux doivent être effectués dans une enceinte de sécurité biologique pour éviter toute contamination.
1. Préparation des supports
- Préparez le milieu de culture frais en complétant le milieu Shield and Sang Insect avec 10 % de sérum fœtal bovin (FBS).
- Supports usagés et conditionnés
- Cultivez des cellules JW18 dans une fiole de25 cm contenant du milieu frais Shield et Sang Insect complété par 10 % de FBS à 25 °C. Incuber jusqu’à ce que les cellules atteignent la confluence (~1 semaine).
- Filtrez le milieu de culture cellulaire usagé de 1 semaine utilisé pour la croissance des cellules, afin d’éliminer Wolbachia, les débris cellulaires et autres contaminants : utilisez un filtre stérile de 5 μm, puis un filtre stérile de 0,2 μm monté sur une seringue de 50 mL.
- Préparez le milieu conditionné en complétant le milieu frais avec 20 % de milieu épuisé. Préparer suffisamment de milieu conditionné pour une plaque de 96 puits (~30 ml) ; À l’aide d’une pipette sérologique, mélanger 6 mL de milieu filtré avec 24 mL de milieu frais Shield and Sang Insect complété par 10 % de FBS.
2. Préparation de la plaque à 96 puits
- Préparation de la suspension cellulaire JW18
- Grattez les cellules d’un ballon confluent âgé d’une semaine à l’aide d’un grattoir cellulaire et mettez-les en suspension à l’aide d’une pipette sérologique.
- Comptez les cellules à l’aide d’une chambre Neubauer et diluez-les avec un milieu conditionné pour obtenir une concentration finale de 2 x 10³ cellules/mL.
- Ajout de fluide conditionné à la plaque
- Transférez le fluide conditionné préparé dans un réservoir de réactif.
- À l’aide d’une pipette multicanaux, ajouter 100 μL de fluide conditionné dans chaque puits de la plaque à 96 puits, à l’exception du puits A1.
- Dilution en série de la suspension cellulaire
- Ajouter 200 μL de suspension cellulaire dans le puits A1.
- À l’aide d’une pipette monocanal, transférez 100 μL du puits A1 au puits B1 et mélangez doucement (évitez les bulles) comme sur la figure 1A.
- Répétez la dilution en série dans la colonne 1, en jetant les 100 μL restants du dernier puits.
- Dilution à travers la plaque
- Ajouter 100 μL de fluide conditionné dans chaque puits de la première colonne, jusqu’à un volume total de 200 μL. Mélanger délicatement.
- À l’aide de la pipette multicanaux, transférez 100 μL de la première colonne à la seconde. Mélangez délicatement.
- Répétez ce processus pour toutes les colonnes (1-12) de la plaque (Figure 1A).
- Après la remise en suspension, jeter 100 μL de la dernière colonne. À ce stade, chaque puits contient 100 μL de suspension cellulaire.
- Ajoutez 100 μL supplémentaires de milieu de culture à tous les puits, ce qui porte le volume final de chaque puits à 200 μL.
3. Identification des cellules individuelles
- Couvrez la plaque, scellez-la avec du Parafilm et étiquetez-la de manière appropriée.
- Observez la plaque au microscope, en vérifiant soigneusement chaque puits pour les cellules individuelles (Figure 1B). Assurez-vous de bien balayer les puits et les bords pour confirmer la présence d’une seule cellule.
REMARQUE : Il s’agit de l’une des étapes les plus critiques du protocole. - Enregistrez le nombre de cellules individuelles sur une carte de plaque de 96 puits (sur papier).
REMARQUE : Les cellules simples sont plus susceptibles d’être trouvées dans les puits vers la droite et le bas de la plaque. - Une fois les cellules individuelles identifiées et marquées, conservez la plaque dans un incubateur à 25 °C. Surveillez les cellules tous les 2 jours.
4. Maintenance et transfert des cellules
- Surveillance cellulaire
REMARQUE : Les cellules JW18 mettent généralement 3 jours pour commencer à se diviser à partir d’une seule cellule, et les populations clonales peuvent croître à des rythmes différents (Figure 2).- Surveillez les puits tous les 2 à 3 jours pour détecter toute contamination bactérienne et pour vous assurer que le milieu n’a pas séché. Si les puits semblent s’assécher, remplissez-les de milieu frais si nécessaire.
- Expansion cellulaire
- Une fois que les cellules atteignent la confluence dans la plaque de 96 puits, transférez-les dans une plaque de 24 puits (Figure 1D).
- Par la suite, transférez les cellules dans une plaque à 6 puits et enfin dans un ballon (figures 1E, F).
REMARQUE : Cette expansion progressive augmente la probabilité d’établir une lignée cellulaire clonale continue.
- Congélation de cellules
- Une fois qu’une culture clonale est établie, congelez une partie des cellules pour une utilisation future.
- Grattez les cellules du ballon à l’aide d’un grattoir à cellules et transférez-les dans un tube à centrifuger de 15 ml. Centrifugeuse à 250 x g pendant 5 min à 4 °C.
- Préparez un milieu de congélation 2x (Shield and Sang Insect Medium complété par 20 % de FBS et 10 % de DMSO).
- Après la centrifugation, jetez une partie du surnageant, en laissant la moitié du volume final souhaité. Ajoutez un volume égal de 2x fluide de congélation au surnageant restant et remettez doucement la pastille en suspension à l’aide d’une pipette.
- Placez 1 mL de suspension dans chaque flacon cryogénique de 1,5 mL et placez les flacons sur de la glace. Conservez les flacons à −80 °C pendant la nuit, puis transférez-les dans un réservoir d’azote liquide le lendemain pour un stockage à long terme.
- Une fois qu’une culture clonale est établie, congelez une partie des cellules pour une utilisation future.
5. PCR pour confirmer le statut de Wolbachia
- Extraire l’ADN des échantillons de culture monoclonale à l’aide de la méthode phénol-chloroforme39.
- Placer 1 mL de cellules confluentes grattées et remises en suspension dans un milieu dans un tube de microcentrifugation de 1,5 mL et centrifuger les cellules à 290 x g pendant 5 min à 4 °C. Jetez le surnageant (milieu de culture cellulaire) et placez le tube sur de la glace.
- Ajouter 250 μL de solution A, qui se compose de 0,1 M de Tris HCl (pH 9,0), de 0,1 M d’EDTA et de 1 % de SDS. Remettre les cellules en suspension et incuber à 70 °C pendant 30 min dans un bloc chauffant.
- Après l’incubation, ajoutez 35 μL d’acétate de potassium 8 M, agitez doucement le tube (éviter le vortex) et incubez sur de la glace pendant encore 30 min.
- Faites tourner à 13 000 tr/min pendant 15 min à 4 °C, transférez le surnageant dans un nouveau tube et ajoutez un volume égal de phénol-chloroforme. Secouez bien et tournez à nouveau, en répétant cette étape une fois.
- Transférez le surnageant dans un nouveau tube, puis ajoutez 150 μL d’isopropanol, agitez et tournez à 10 000 tr/min pendant 5 min. Retirez le surnageant avec précaution, lavez la pastille avec 1 ml d’éthanol à 70 % et essorez-la à 13 000 tr/min.
- Après avoir séché la pastille pendant 10 min à température ambiante, la remettre en suspension dans 100 μL de tampon TE. Quantifiez l’ADN et stockez-le à -20 °C.
- Effectuez une PCR conventionnelle avec l’ADN extrait des échantillons de culture monoclonale pour détecter Wolbachia à l’aide du master mix PCR DreamTaq Green. Utilisez les amorces wsp 81F et wsp 691R40 pour Wolbachia et les amorces drosophiles rpl32 41 pour le contrôle de la qualité de l’ADN.
- Ajoutez 7,5 μL de mélange maître, 0,5 μL de chaque amorce à 10 μM, 1 μL d’ADN dilué 1:50 et 5,5 μL d’eau de qualité moléculaire pour obtenir 15 μL du mélange réactionnel.
- Utilisez le programme PCR suivant : 94 °C pendant 4 min, 30 cycles x (94 °C pendant 40 sec, 55 °C pendant 40 sec, 72 °C pendant 30 sec), 72 °C pendant 10 min. Après la PCR, conservez les échantillons à 4 °C.
- Réaliser l’électrophorèse sur gel d’agarose dans un gel d’agarose à 2 % dans un tampon TAE à 90 V avec les produits de PCR obtenus pour visualiser les bandes. Ajoutez une échelle d’ADN à côté pour identifier les bandes de wsp (632 pb) et rpl32 (194 pb).
6. Coloration FISH pour visualiser l’infection à Wolbachia dans les lignées cellulaires
- Effectuer une hybridation in situ fluorescente (FISH) comme décrit dans le protocole FISH de Stellaris pour que les cellules adhérentes colorent Wolbachia avec un ensemble de sondes FISH à ARNr 16s marquées Quasar 670. Teindre les acides nucléiques avec Hoechst 33342.
REMARQUE : Cet ensemble de sondes a été conçu sur la base de la séquence d’ADNr wMel 16S et correspond à l’ensemble de sondes publié dans Schneider et al.42 (voir le tableau supplémentaire S1).- Préparez les réactifs (tampon de fixation, tampon d’hybridation, tampon de lavage A et B, ensemble de sondes personnalisées reconstituées) en suivant les instructions du fabricant43.
- Cultivez des cellules adhérentes sur du verre rond de 18 mm stérilisé à 70 % à l’éthanol dans une plaque de culture à 24 puits. Une fois que les cellules atteignent la confluence souhaitée, aspirez le milieu de croissance et lavez-les avec 1 ml de 1x PBS. Ajouter 1 mL de tampon de fixation et incuber à température ambiante pendant 10 min. Lavez les cellules deux fois avec 1 ml de 1x PBS.
- Perméabiliser en immergeant la lamelle avec des cellules dans 1 mL d’éthanol à 70 % et incuber toute la nuit à 4 °C ; Conservez les échantillons dans de l’éthanol à cette température jusqu’à 1 semaine avant l’hybridation. Aspirez l’éthanol et ajoutez 1 mL de tampon de lavage A ; Incuber à température ambiante pendant 2 à 5 min.
- Préparez une chambre humidifiée en plaçant une serviette en papier saturée d’eau et une couche de Parafilm dans un plat de culture de 150 mm. Pipetez 100 μL de tampon d’hybridation contenant 1 μL de sonde de 12,5 μM sur le Parafilm. Retournez doucement le verre de protection, en plaçant les cellules côté vers le bas sur la goutte de tampon d’hybridation. Couvrez et scellez la chambre avec du Parafilm, puis incubez dans l’obscurité à 37 °C pendant au moins 4 h (jusqu’à 16 h si nécessaire).
- Après l’hybridation, transférez soigneusement les cellules de verre de couverture côté vers le haut dans un puits frais contenant 1 mL de tampon de lavage A et incubez à 37 °C pendant 30 min. Aspirer le tampon et ajouter 0,5 μL de 20 mM de matériau Hoechst à 700 μL de tampon de lavage A ; Incuber à 37 °C pendant 30 min dans l’obscurité.
- Retirer la solution Hoechst et ajouter 1 mL de tampon de lavage B ; Incuber à température ambiante pendant 2 à 5 min. Enfin, placez une petite goutte (10 μL) de support de montage sur une lame de microscope et fixez les cellules de verre de couverture côté bas sur la goutte. Évacuez doucement l’excès de support de montage et scellez le pourtour du verre de protection avec du vernis à ongles transparent.
- Stockez les lames à 4 °C et passez à l’imagerie dès que possible.
- Traitez les images à l’aide d’ImageJ44. Divisez les canaux et modifiez la palette de couleurs selon vos besoins.
Résultats
Nous avons visualisé le processus d’établissement de cultures monoclonales par microscopie optique, depuis le jour de la préparation de la suspension unicellulaire et du placage (jour 0) jusqu’à l’établissement de lignées cellulaires continues (jour 45 ou 77, Figure 2). Les premiers signes de division cellulaire ont été observés le jour 3 (4 jours après le placage, car le placage a été effectué le jour 0) alors qu’il y avait déjà quatre cellules par puits (Figure 2). Le 14e jour, les clones se sont développés soit sous la forme d’une monocouche (JW18-B9, C7 et E5), soit sous la forme d’une sphère (JW18-G4), qui a été perturbée pendant le passage. Au 28e jour, les différences de croissance entre les lignées cellulaires étaient les plus évidentes. La culture JW18-C7 était confluente au jour 45, tandis que les cultures clonales restantes n’étaient établies qu’au jour 77. Nous avons également visualisé les quatre cultures différentes 30 passages après l’établissement pour capturer les différences de morphologies cellulaires (Figure 3).
Pour déterminer le statut d’infection à Wolbachia des cultures monoclonales, nous avons effectué une PCR (Figure 4) et une FISH (Figure 5). Nous avons observé que tous les clones sauf un (JW18-C7) produisaient une bande pour le gène wsp , indiquant une infection à Wolbachia . L’étude FISH a corroboré les résultats de la PCR : les clones JW18-B9, JW18-E5 et JW18-G4 ont conservé l’infection à Wolbachia , tandis que le clone JW18-C7 n’a pas été infecté par Wolbachia. Dans l’ensemble, à partir d’une population mixte de cellules JW18, nous avons pu établir quatre cultures clonales, dont trois ont conservé l’infection originale à Wolbachia . Les données brutes sont accessibles à l’adresse Figshare : https://figshare.com/s/15fde47ca7338f31dda9.
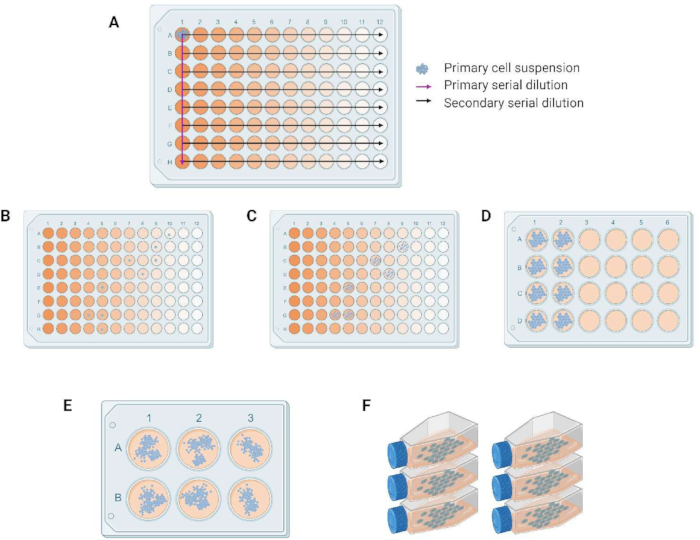
Figure 1 : Flux de travail pour la génération de cultures monoclonales. (A) Dilutions primaires et secondaires dans la plaque à 96 puits. (B) Cellules uniques après dilution en série. (C-E) Progression de la multiplication des cellules et du transfert de la plaque de 96 puits à 24 et 6 puits, respectivement. (F) Cultures continues dans des flacons deculture de 25 cm à 2 cellules. Veuillez cliquer ici pour voir une version agrandie de cette figure.
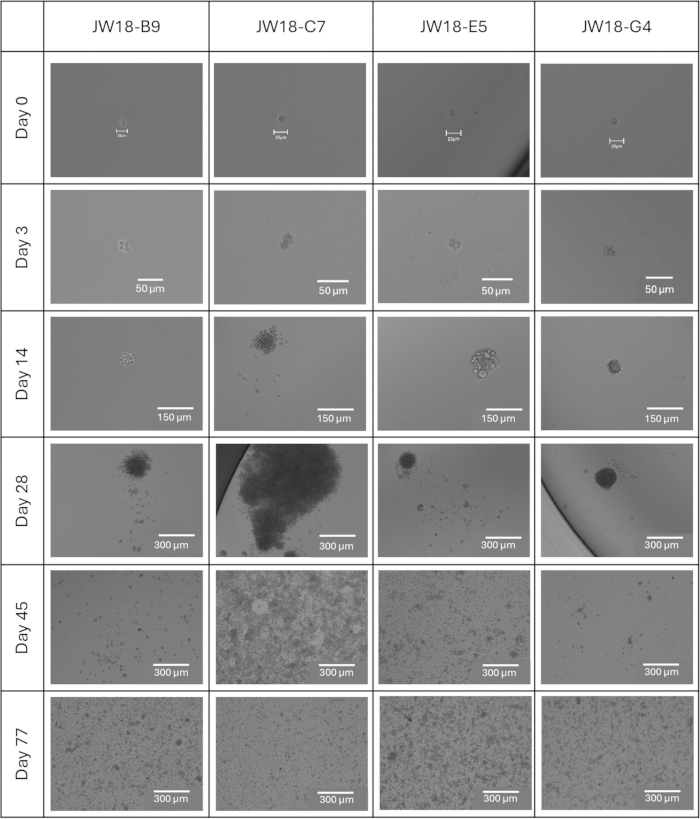
Figure 2 : Progression des lignées clonales de JW18 de la culture unicellulaire à la culture multicellulaire. Images en fond clair de lignées clonales du jour 0 (jour du placage) au jour 77, lorsque toutes les lignées ont été établies avec succès dans un flacon de culture cellulaire de25 cm 2. Barres d’échelle = 25 μm (jour 0), 50 μm (jour 3), 150 μm (jour 14), 300 μm (jours 28, 45, 77). Veuillez cliquer ici pour voir une version agrandie de cette figure.
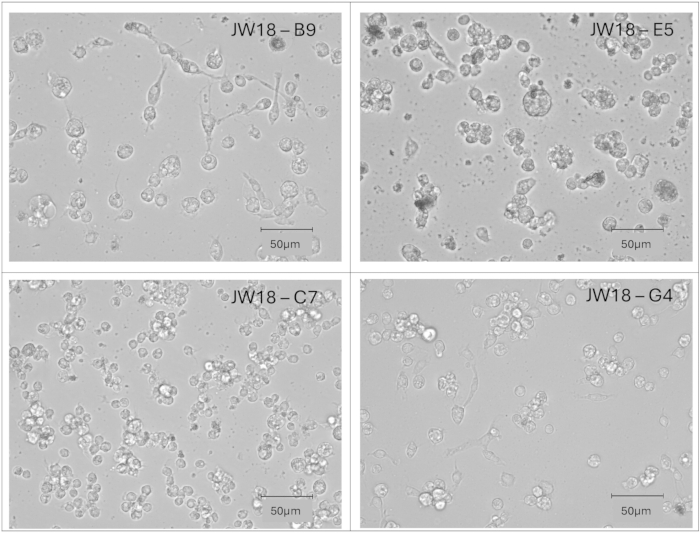
Figure 3 : Morphologie des lignées clonales individuelles de JW18. Images en fond clair de lignées clonales montrant les morphologies cellulaires au passage 30 après l’établissement. Barres d’échelle = 50 μm. Veuillez cliquer ici pour voir une version plus grande de cette figure.
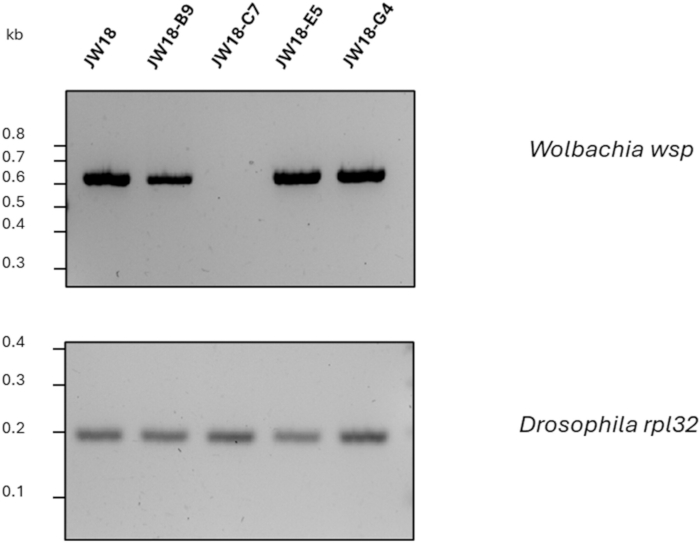
Figure 4 : Statut de Wolbachia des cultures clonales examinées par PCR. PCR pour Wolbachia dans la lignée cellulaire parentale JW18 et les lignées clonales JW18-B9, JW18-C7, JW18-E5 et JW18-G4 au passage 11 après l’établissement. La bande Wolbachiawsp confirme la présence de Wolbachia, tandis que la bande Drosophilarpl32 est une PCR de contrôle de la qualité de l’ADN. Veuillez cliquer ici pour voir une version agrandie de cette figure.
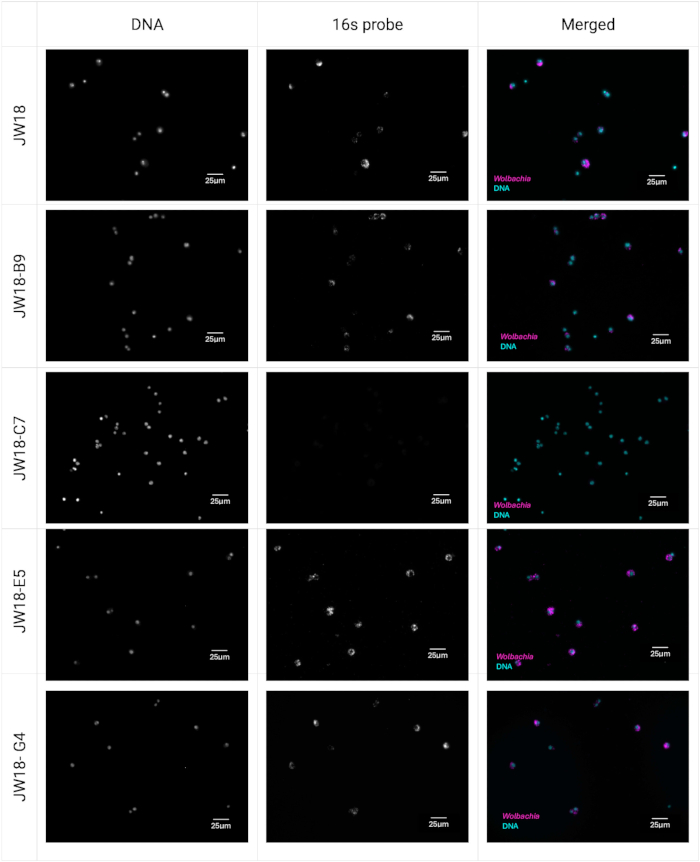
Figure 5 : Statut de Wolbachia des cultures clonales examinées par FISH. Lignée cellulaire parentale JW18 et clones JW18-B9, JW18-C7, JW18-E5, JW18-G4 visualisés par coloration FISH au passage 13 après l’établissement. Wolbachia est coloré avec la sonde FISH Stellaris à ARNr 16s marquée Quasar 670 et définie en magenta, et les acides nucléiques sont colorés avec Hoechst 33342 en cyan. Barres d’échelle = 25 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Tableau supplémentaire S1 : Sondes oligonucléotidiques conçues contre l’ADNr de Wolbachia wMel 16S et leur comparaison avec les sondes publiées par Schneider et al.42. Veuillez cliquer ici pour télécharger ce tableau.
Discussion
Nous décrivons ici une méthode standardisée pour générer des clones unicellulaires à partir de la lignée cellulaire JW18 D.melanogaster, qui peut être appliquée à d’autres lignées cellulaires de drosophile et d’insectes. Le protocole implique la dilution en série d’une suspension cellulaire préparée sur une plaque de 96 puits pour isoler des cellules individuelles. Ces cellules sont ensuite incubées dans des conditions optimales pour établir des cultures continues. Le protocole comprend également l’ajout de 20 % de milieux conditionnés pour favoriser la survie cellulaire et la division unicellulaire45,46.
Une étape critique du protocole consiste à vérifier la présence d’une seule cellule dans chaque puits après dilution en série. Cette étape nécessite une attention méticuleuse, car elle est essentielle à la réussite de l’ensemble du protocole. Pour faciliter la confirmation future de l’origine de la cellule unique, il est recommandé de capturer des images des puits sélectionnés sous différents angles.
Une autre étape clé consiste à transférer des cellules entre des boîtes de culture. Pour assurer l’établissement réussi d’une culture continue, les cellules ne doivent être transférées qu’une fois qu’elles ont atteint la confluence. Si la croissance cellulaire stagne pendant plus de deux semaines, le rafraîchissement du milieu peut favoriser une croissance supplémentaire. Le transfert prématuré de cellules avant la confluence peut entraîner la mort cellulaire.
Bien que ce protocole prenne plus de temps et de main-d’œuvre que d’autres méthodes couramment utilisées, telles que le tri cellulaire activé par fluorescence (FACS)38,46, il offre plusieurs avantages. Il s’agit notamment de la rentabilité, du risque minimal d’endommager les cellules, de l’absence de marqueurs fluorescents, d’un équipement coûteux et d’un temps d’optimisation. Dans l’ensemble, ce protocole est bien adapté pour générer des populations homogènes de cellules d’insectes à partir de lignées cellulaires continues.
Propriétés des cultures monoclonales
Nos résultats montrent que les cultures monoclonales diffèrent en termes de vitesse d’établissement et de statut d’infection à Wolbachia (Figure 2, Figure 4 et Figure 5). Le clone JW18-C7 sans Wolbachia a été le plus rapide à atteindre la confluence dans notre protocole d’isolement de cellule unique. Wolbachia aurait pu soit être toujours absent de cette lignée cellulaire, soit être perdu en raison de l’incapacité à suivre le taux de division de la cellule hôte. Il aurait également pu être perdu en raison de la faible densité cellulaire initiale de notre protocole de clonage. Cependant, comme cela ne s’est pas produit pour les autres lignées cellulaires clonales, nous considérons que cela est peu probable. L’infection expérimentale de JW18-C7 par Wolbachia (aux côtés d’autres clones traités à la tétracycline) pourrait répondre à la question de savoir si cette lignée est permissive au symbiote.
L’hétérogénéité cellulaire n’est pas propre à la lignée cellulaire JW18 et a déjà été signalée pour d’autres lignées cellulaires infectées par Wolbachia 32,47,48,49,50,51,52. Une tentative précédente d’amélioration de celle-ci impliquait le transfert de Wolbachia d’œufs de D. simulans ou de cellules Aa23 vers une lignée cellulaire53 d’A. albopictus en C7-10. C7-10 a été cloné de nombreuses années avant les transferts de Wolbachia 54,55, et les transferts ne constituent pas l’infection naturelle que nous avons l’intention d’étudier.
La différence dans le statut d’infection à Wolbachia et le moment de l’établissement de la culture monoclonale (indicative des différences dans le taux de division cellulaire) pour les clones individuels de JW18 peut avoir de profondes implications pour les études antérieures reliant le titre de Wolbachia et le taux de croissance cellulaire des insectes en réponse à des traitements spécifiques. La modification du nombre de cellules, des densités de symbiotes ou des modifications de l’expression des gènes lors du traitement peut résulter de la sélection de types de cellules ayant des propriétés spécifiques plutôt que de changements dans l’état de toutes les cellules d’une population mixte. L’administration de traitements à une population cellulaire mixte présentant une variabilité des caractéristiques clés peut donc donner des résultats biaisés et non reproductibles.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à divulguer.
Remerciements
Nous remercions William Sullivan (Université de Californie, Santa Cruz, États-Unis), Laura Serbus (Florida International University, États-Unis) et Luis Teixeira (Universidade Católica Portuguesa, Lisbonne, Portugal) pour la lignée cellulaire JW18 et des suggestions utiles sur la façon de l’utiliser. Nous sommes reconnaissants à Nidhi Krishna Shrivastava (Université Jagellonne, Cracovie, Pologne) pour ses suggestions utiles sur le protocole. Nous remercions Yuliya Chykunova (Université Jagellonne, Cracovie, Pologne) pour la relecture du manuscrit.
La figure 1 a été créée avec BioRender (Chrostek, E. (2024) https://BioRender.com/o69b306).
Ce travail est soutenu par la bourse ERC Starting Grant (Grant agreement ID : 101040311) attribuée à EC et la bourse doctorale de l’École doctorale des sciences exactes et naturelles (Université Jagellonne) attribuée à NF. Les points de vue et opinions exprimés n’engagent toutefois que leurs auteurs et ne reflètent pas nécessairement ceux de l’Union européenne ou de l’Agence exécutive du Conseil européen de la recherche. Ni l’Union européenne ni l’autorité qui les octroie ne peuvent en être tenues responsables.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 0,22 et micro ; m seringue fliter ; ; | Le | 99722 | Stérile |
| 10x solution saline tamponnée au phosphate (PBS) | ThermoFisher Scientific | 70011044 | Stérile |
| Verre de protection rond de 12 ou 18 mm ; | N’importe quelle marque | ||
| Tubes Falcon de 15 mL | Génoplaste | 601052 | Stérile |
| Plaque à 24 puits | CytoOne | Référence CC7682-7524 | Culture tissulaire traitée |
| 5 et micro ; Filtre à seringue M | Whatman | 10462000 | Stérile |
| Plaque à 6 puits | CytoOne | Référence CC7682-7506 | Culture tissulaire traitée |
| Plaque à 96 puits | CytoOne | Référence CC7682-7596 | Culture tissulaire traitée |
| Agarose | ThermoFisher Scientific | J66501.30 | |
| Fiole de culture cellulaire, 25 cm2 | Greiner Bio-one | 391-3103 | Stérile |
| Racleurs de cellules ; | Greiner Bio-one | 391-3010 | Stérile |
| Vernis à ongles transparent ; | N’importe quelle marque | ||
| Flacons CryoPure | Sarstedt | 72.379 | Stérile |
| DMSO, qualité culture cellulaire | Merck | D2650-100ML | Stérile |
| DreamTaq PCR Master Mix | ThermoFisher Scientific | K1081 | |
| EDTA | Merck | Référence 324503-100GM | Stérile |
| Alimentation par électrophorèse | Merck | PS 251-2 | |
| Eppendorf ; Concentrateur Plus | Merck | EP5305000509 | Un concentrateur d’aspirateur de n’importe quelle marque peut être utilisé à la place. |
| Éthanol | Merck | 1009861000 | |
| Système d’imagerie EVOS M5000 | ThermoFisher Scientific | AMF5000 | Un microscope inversé de n’importe quelle marque peut être utilisé pour surveiller la progression des clones. Un microscope fluorescent est nécessaire pour visualiser les POISSONS. |
| Sérum fœtal bovin | Merck | F9665 | Inactivé par la chaleur |
| Formaldéhyde ; | ThermoFisher Scientific | 047377.9L | |
| Formamide ; | Merck | F7503-100ML | |
| Cuves d’électrophorèse sur gel | Cleaver Scientific | MSMIDI | |
| Imageur Gel | BioRad | 12009077 | Système d’imagerie GelDoc Go Gel |
| Échelle d’ADN GeneRuler 100 bp | ThermoFisher Scientific | Référence SM0243 | |
| Bloc chauffant | ThermoFisher Scientific | 88870005 | |
| Herasafe 2025 Enceinte de sécurité biologique de classe II | ThermoFisher Scientific | 51033314 | L’enceinte de sécurité biologique de n’importe quelle marque peut être utilisée tant qu’elle maintient un environnement stérile à l’intérieur. |
| Solution Hoechst 33342 (20 mM) 5 mL | ThermoFisher Scientific | 62249 | Stocker dans l’obscurité. |
| Acide chlorhydrique | Merck | 258148-2,5 L | |
| Integra Biosciences Corp. PIPETBOY acu 2 Aide à la pipette | Fisher Scientific | NC0085686 | Un contrôleur de pipette sérologique de n’importe quelle marque peut être utilisé. |
| Isopropanol | Merck | I9516-1L | |
| Congélateur de laboratoire | ; Liebherr ; | LGUex 1500 MediLine | Tout congélateur capable de maintenir une température constante convient. ; |
| Réservoir d’azote liquide | ThermoFisher Scientific | CY50985 | |
| Lames de microscope | Merck | CLS294875X25-72EA | |
| Eau de qualité moléculaire | |||
| Pipette multicanaux | Eppendorf | 3125000036 | |
| Nanogoutte | Peqlab | ND-1000 | |
| Hémocytomètre Neubauer | Merck | BR717810-1EA | |
| Parafilm ; M Film d’étanchéité | Merck | HS234526B-1EA | |
| Incubateur refroidi par Peltier | Memmert | IPP55plus | Y a-t-il un incubateur capable de maintenir une constante de 25 ? C convient. Aucun contrôle CO2 n’est requis pour la lignée cellulaire JW18 ou ses clones. |
| Phénol/chloroforme/alcool isoamylique (25:24:1) | ThermoFisher Scientific | 327115000 | |
| Set de pipettes | Eppendorf | EP2231300008 | |
| Acétate de potassium | Merck | P1190-500G | Stérile |
| Quasar ; Sonde FISH à ARNr 16s marquée 670 ; poser | Technologies de biorecherche | Sur mesure, les séquences des sondes se trouvent dans le tableau 1. | |
| Microcentrifugeuse réfrigérée | Labnet | C2500-R | |
| rpl32 amorce avant 5'-CCGCTTCAAGGGACAGTATC-3' | Génomique Eurofins | Fabriqué sur mesure sur la base de la référence citée dans l’article | |
| rpl32 amorce inversée 5'-CAATCTCCTTGCGCTTCTTG-3' | Génomique Eurofins | Fabriqué sur mesure sur la base de la référence citée dans l’article | |
| SDS | ThermoFisher Scientific | Référence AM9823 | Stérile |
| Pipettes sérologiques | Corning | 357771 | |
| Boucliers et Sang M3 Insecte Medium | Merck | S8398 | Stérile |
| Tampon d’hybridation Stellaris RNA FISH ; ; | Technologies de biorecherche | Référence SMF-HB1-10 | Stérile |
| Stellaris RNA FISH Tampon de lavage A ; ; ; | Technologies de biorecherche | Référence SMF-WA1-60 | Stérile |
| Stellaris RNA FISH Tampon de lavage B ; ; ; | Technologies de biorecherche | SMF-WB1-20 | Stérile |
| Réservoirs de réactifs stériles ; | ThermoFisher Scientific | 8094 | Stérile |
| Tampon TAE | Merck | 1061741000 | 1x ; |
| Tampon TE ; | Merck | 93283 | Stérile |
| Thermocycleur | Syngen Biotech | Bloc thermique 96 | Un thermocycleur de n’importe quelle marque peut être utilisé à la place. |
| Base Tris | Merck | 10708976001 | Stérile |
| Congélateur ultra basse température | Société PHC ; | MDF-DU502VH-PE | Y a-t-il un congélateur de laboratoire capable de maintenir -80 °C ? C peut être utilisé. |
| Support de montage Vectashield ; ; ; | Laboratoires Vecteurs | N° H-1000-10 | |
| wsp apprêt avant 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | Génomique Eurofins | Fabriqué sur mesure sur la base de la référence citée dans l’article | |
| wsp apprêt inverse 5'-AAAAATTAAACGCTACTCCA-3' | Génomique Eurofins | Fabriqué sur mesure sur la base de la référence citée dans l’article |
Références
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Réimpressions et autorisations
