L’amplification in vitro stable des cellules germinales primordiales (PGCLC), un modèle de substitution dérivé de cellules souches pluripotentes des cellules germinales primordiales embryonnaires, a été confrontée à des défis techniques. Ce protocole soutient l’expansion à long terme des PGCLC dans un état in vitro sans cellules sériques ou de couche nourricière.
Article de méthode
Culture à long terme de cellules germinales primitives humaines
Dans cet article
Résumé
Résumé
Les cellules germinales primordiales (PGC) sont des précurseurs communs de toutes les cellules germinales mâles et femelles. Les PGC apparaissent dans les embryons de mammifères péri-implantatoires et deviennent des précurseurs de cellules germinales spécifiques au sexe lors de la différenciation sexuelle de l’anlage gonadique. Le modèle in vitro communément appelé PGC-Like Cells (PGCLC), généré à partir de cellules souches pluripotentes humaines, est un substitut utile des PGC embryonnaires humains, offrant une occasion unique d’explorer la gamétogenèse humaine in vitro. Le protocole présenté ici soutient l’expansion in vitro à long terme des PGCLC humains. Les PGCLC fraîchement isolés sont maintenus initialement sur une couche nourricière STO, puis expansés à l’état sans mangeoire sur un extrait de membrane basale. Les PGCLC de culture à long terme (LTC-PGCLC) peuvent être enrichis en FACS (Fluorescence-Activated Cell Sorting (FACS) en tant que cellules CD38-positives et sont facilement amplifiés à des dizaines de millions de cellules sous forme de culture monotone pure, sans feeder et sans sérum sans limitations apparentes telles que la sénescence. Il est pratiquement possible d’obtenir une population pure de plus de 1 million de PGCLC humaines à partir de quelques milliers de PGCLC fraîchement isolés. La culture de cellules humaines LTC-PGCLC est un modèle in vitro utile et pratique pour étudier la biologie des cellules germinales humaines et la différenciation en cellules germinales en aval.
Introduction
Les cellules germinales primordiales (PGC) sont les premiers précurseurs de toutes les cellules germinales. Les PGC humaines émergent de l’épiblaste postérieur - probablement des cellules précurseurs amniotiques non engagées - au début de la post-implantation, gazaturant les embryons à 2-3 semaines de gestation 1,2,3,4,5,6,7. Pour la spécification des PGC humaines et de souris, les voies de signalisation activées par les protéines morphogénétiques osseuses (BMP) et WNT3 jouent un rôle essentiel 3,6. Alors que l’induction de trois facteurs de transcription, BLIMP1, PRDM14 et TFAP2C, est nécessaire pour la spécification des PGC de souris, dans la spécification des PGC humaines, le rôle de PRDM14 est diminué. SOX17, qui est dispensable pour la spécification PGC de souris mais indispensable pour la spécification PGC humaine, est induit par la signalisation BMP d’une manière dépendant exclusivement de l’EOMES ou de l’EOMES et de TBXT 7,8,9. Les PGCs humains migrent de l’épiblaste postérieur vers l’anlagen gonadique dans les crêtes génitales à travers le mésentère dorsal à 5-6 semaines de gestation 10,11,12,13,14,15,16. La migration humaine des PGC peut être provoquée par la chimiotaxie, bien qu’elle attende une confirmation expérimentale. Les profils transcriptomiques des PGC humaines migratrices ne sont pas identiques à ceux des PGC de souris au même stade17,18. Par exemple, les PGC humaines expriment DAZL avant même leur installation dans l’anlagen gonadique, tandis que les PGC de souris n’expriment DAZL qu’après leur installation gonadique9. Lors de l’initiation de la différenciation spécifique au sexe des cellules somatiques gonadiques, les PGC subissent également une différenciation en prospermatogonie (également connue sous le nom de gonocytes) ou en oogogone.
Étant donné que l’accès aux PGC embryonnaires humains est extrêmement difficile en raison de barrières techniques et éthiques, l’utilisation des cellules de type PGC (PGCLC) dérivées de cellules souches pluripotentes devient de plus en plus populaire3. Les PGCLC de souris ressemblent à l’étape post-migration des PGC, caractérisée par une déméthylation avancée de l’ADN génomique global (ADNg), et elles sont capables de générer des spermatozoïdes et des ovocytes compétents pour la fécondation 19,20,21. En revanche, les PGCLC humaines ressemblent aux stades précoces des PGC embryonnaires avec une déméthylation globale limitéede l’ADNg 7,22,23,24. Les preuves s’accumulent que les PGCLC humaines, malgré leur statut relativement immature, sont capables de se différencier in vitro en stades plus avancés de cellules germinales ressemblant à l’oogonie25,26 ou à la prospermatogonie27.
Depuis qu’Irie et al. ont publié la première génération de PGCLC à partir de cellules souches pluripotentes humaines en 20157, un certain nombre de laboratoires ont publié divers protocoles pour la production de PGCLC humains. Les protocoles précoces et standard impliquent la formation d’agrégats de cellules pluripotentes, souvent appelés corps embryoïdes 7,22,24,26,28,29. Les PGCLC humaines peuvent être produites à l’aide de divers protocoles basés sur des agrégats qui partagent des profils transcriptomiques comparables, qui expriment tous fortement des gènes marqueurs clés de PGC tels que PRDM1, SOX17, TFAP2C, POU5F1 et NANOS3, tandis que l’expression du marqueur de pluripotence SOX2 ou du marqueur PGC DDX4 à un stade avancé est généralement supprimée24. Des tentatives réussies ont également été signalées pour produire des PGCLC humains à partir de cultures de cellules monocouches pour une évolutivité et une commodité améliorées30. Bien que le rendement des PGCLCs soit relativement faible, la production réussie de PGCLCs humains à partir de modèles in vitro d’embryons au stade de la gastrulation dérivés de cellules souches pluripotentes contribue de manière significative à l’élucidation des mécanismes de spécification de la lignée germinale et de développement précoce des PGC 31,32,33,34,35,36.
Bien que le rendement et la qualité des PGCLC humains produits à l’aide de diverses méthodes de culture cellulaire se soient améliorés, la difficulté technique de l’expansion de la culture cellulaire des PGCLC humains constitue un obstacle important à leur application pour des expériences nécessitant de grandes quantités de populations cellulaires homogènes, telles que le criblage chimique ou génétique, ainsi que la production de cellules germinales à des stades avancés.. Gell et al. ont signalé le maintien de PGCLCs humains jusqu’à 21 jours sur des mangeoires STO dans un milieu à base de FR10 contenant du facteur de cellules souches (SCF) et 2,5 % de sérum de veau fœtal (FCS) ; cependant, les PGCLC avaient tendance à diverger de l’identité de type PGC vers d’autres types de cellules qui peuvent ne pas être pertinentes pour le développement des cellules germinales37. Murase et al. ont éliminé à plusieurs reprises ces cellules indésirables de la culture par FACS à chaque passage et ont montré que les PGCLC humaines sont capables de maintenir leur potentiel de prolifération à long terme in vitro38. Plus tard, Murase et al. ont rapporté une amplification réussie des PGCLC humaines dans un milieu contenant 2,5 % de FCS39, mais leur méthode nécessite les cellules de la couche nourricière m220-5, qui sont des sous-clones résistants à la MMC émergés spontanément des cellules embryonnaires de souris m220 qui expriment la forme liée à la membrane du SCF de souris à partir d’un vecteur exogène40. À ce jour, les cellules m220-5 n’ont pas encore été déposées dans un dépôt accessible au public. Ainsi, il reste un défi majeur d’étendre la culture humaine de PGCLC in vitro à un grand nombre de cellules homogènes, en conservant leurs caractéristiques de type PGC dans une condition simple qui ne nécessite pas de ressource de cellules nourricières non standard et qui est exempte de réactifs d’origine animale, dont l’efficacité peut varier d’un lot à l’autre.
Pour surmonter l’obstacle technique ci-dessus, une méthode qui permet l’expansion in vitro à long terme des PGCLC humains en tant que population cellulaire homogène, en maintenant les caractéristiques de type PGC dans une condition exempte de cellules sériques ou de couches nourricières, a été mise au point41. Parce que les PGCLC humaines expriment la télomérase, ces cellules s’amplifient à un rythme constant sans aucun signe de sénescence ou de déviation par rapport à d’autres types de cellules pendant au moins 150 jours. Les PGCLC de culture à long terme (LTC-PGCLC) conservent leurs caractéristiques transcriptomiques humaines de type PGC, bien que leur ADNg global soit modestement déméthylé lors de passages répétés. Les LTC-PGCLS sont facilement convertis en cellules germinales embryonnaires pluripotentes (EGCLC), restaurant le transcriptome de type iPSC et le méthylome de l’ADNg, bien que la restriction allélique imprimée de l’expression de l’ARN H19 soit perdue. Les LTC-PGCLC sont également capables de se différencier en cellules exprimant DAZL ressemblant à la prospermatogonie dans la culture d’organoïdes xénobiotiques xrTestis27. Ainsi, le modèle humain LTC-PGCLC représente un nouveau type de ressource de culture cellulaire maintenue de manière stable et pertinente pour la pluripotence qui conserve en permanence les caractéristiques biologiques des PGCLC et est facilement élargie in vitro en tant que lignée cellulaire stable.
Cet article décrit la méthode d’adaptation d’une population pure de PGCLC humaines fraîchement isolée et enrichie en FACS à une culture d’entretien à long terme sans sérum grâce à un soutien temporel par les cellules standard de la couche nourricière STO, puis dans un état exempt de nutrition sur de l’extrait de membrane basale (BME). Cette méthode soutient l’expansion in vitro de PGCLC humains produits à l’aide du protocole dépendant du corps embryoïde, tel que décrit précédemment24, 41, 42 ou rapporté par Sasaki et al22, et la méthode de culture monocouche rapportée par Overeem et al30. Lorsqu’il est appliqué à des PGCLC humaines préparées comme décrit41, une population initiale de 10 000 cellules peut être étendue à près de 1 x 10⁹ cellules en 1,5 à 2 mois avec une population de 4 à 4,5 jours doublant le temps41. L’applicabilité de cette méthode aux PGCLC humains produits par d’autres méthodes est également attendue.
Protocole
1. Préparation des milieux de culture cellulaire
- Préparez le support comme décrit dans les tableaux 1, 2, 3 et 4. Conservez les aliquotes de ces supports congelées.
- Préparez le milieu de base PGCLC comme décrit dans le tableau 1. Préparez 40 mL d’aliquotes et conservez-les à -20 °C pendant 6 mois. Préparez le milieu STO 1 comme décrit dans le tableau 2. Conserver 50 mL d’aliquotes dans des tubes à centrifuger de 50 mL à 4 °C pendant 1 mois.
- Préparez le milieu STO 2 comme décrit dans le tableau 3. Utiliser immédiatement. Préparez le support de stockage des cellules STO traitées à la mitomycine C (MMC-STO) comme décrit dans le tableau 4. Conserver 10 mL d’aliquotes à -20 °C pendant 6 mois.
ATTENTION : Comme le diméthylsulfoxyde est considéré comme dangereux (liquide combustible), il doit être conservé à l’abri de la chaleur, des étincelles, des flammes nues ou des surfaces chaudes. Suivre le protocole réglementaire local pour son élimination.
2. Préparation des cellules STO traitées à la MMC
REMARQUE : Le traitement MMC des cellules STO inactive leur activité de prolifération sans nuire de manière significative à leur viabilité. Les cellules MMC-STO sont utilisées comme cellules de couche nourricière lors de la culture initiale de PGCLC humaines (étape 4) ainsi que comme source du milieu conditionné acellulaire (étape 3).
- Cultiver des cellules STO dans un milieu STO, 1 dans quatre boîtes P15 jusqu’à ce qu’elles soient proches de la confluence. Changer STO moyen 1 à 23 mL/plat. Ajouter 23 μL/plat de MMC de concentration de 10 mg/mL directement sur le milieu jusqu’à une concentration finale de 10 μg/mL.
- Bien agiter et incuber à 37 °C dans un incubateur de CO2 pendant 4 h.
ATTENTION : La MMC est mortelle si une grande quantité est avalée, et c’est un cancérogène suspecté. La manipulation et l’élimination de ce composé doivent suivre les protocoles réglementaires locaux. - Laver les cellules avec 20 ml/plat de PBS Dulbecco (sans Ca/Mg) 2x à température ambiante.
- Dissocier les cellules avec 4 mL/boîte de TrypLE Express dans un incubateur de CO2 pendant 2 min. Suspendre les cellules à une suspension unicellulaire par pipetage doux.
- Transférez deux boîtes de suspension cellulaire (8 ml) dans un tube à centrifuger de 50 ml contenant 30 ml de STO medium-1 glacé. Répétez l’opération pour les deux autres plats pour former deux tubes de suspension cellulaire de 38 ml.
- Compter les cellules en présence de bleu de trypan à 0,2 % pour évaluer la viabilité cellulaire à l’aide d’un hémocytomètre ou d’un compteur de cellules automatisé.
- Cellules de centrifugation à 300 x g pendant 5 min à 4 °C. Jeter le surnageant. Remettre en suspension les granules de cellules dans un milieu de stockage de cellules congelées glacées à 5 x 10⁶ cellules/mL.
- Préparez des aliquotes de 1 mL de cellules STO traitées au MMC dans les flacons cryogéniques. Congelez lentement les cellules dans une boîte en polystyrène ou un appareil de congélation lente et conservez-les à -80 °C jusqu’à 12 mois.
3. Préparation du milieu conditionné STO (S-CM)
REMARQUE : Le milieu conditionné sans cellules des cellules MMC-STO (préparé à l’étape 2) favorise la survie et la prolifération des PGCLC humains tout en réprimant leur déviation vers les cellules perdant des caractéristiques similaires à celles des PGC.
- Jour 1 : Décongeler des cellules STO traitées à la MMC à partir de stocks congelés et inoculer 5 x 10⁶ cellules dans une boîte P10 enrobée de gélatine avec 10 ml/boîte de STO-medium 2. La taille typique d’un lot se compose de 4 à 8 plats P10. Incuber des cellules à 37 °C dans un incubateur de CO2 pendant la nuit.
- Pour enrober les puits de gélatine, ajouter 1 ml/puits de gélatine à 0,1 % et incuber à température ambiante pendant au moins 20 min. Aspirez l’excès de solution de gélatine et laissez les puits ouverts dans l’enceinte de biosécurité jusqu’à ce qu’ils soient secs. Conservez les articles en plastique enduits de gélatine à température ambiante pendant 2 semaines ou à 4 °C pendant 3 mois.
- Décongeler les aliquotes du milieu de base PGCLC à 4 °C pendant la nuit.
REMARQUE : Il n’est pas recommandé de décongeler ce milieu plus rapidement à une température plus élevée. Ne pas conserver le milieu de base PGCLC à 4 °C pendant plus d'1 semaine. - Jour 2 : Retirez et jetez le STO-medium 2. Laver les cellules avec du DPBS chaud (~10 ml/plat) suivi d’un lavage avec du milieu basal PGCLC chaud (2 ml/plat). Ajouter du milieu de base PGCLC chaud (12 ml/boîte) et incuber des cellules à 37 °C dans un incubateur de CO2 pendant la nuit.
- Jour 3 : Recueillir tout le milieu conditionné dans un tube à centrifuger de 50 ml. Répéter l’utilisation du milieu basal PGCLC (12 mL/boîte) et l’incubation pour la collecte du milieu conditionné le lendemain à partir de la même culture cellulaire STO. Centrifuger le milieu conditionné recueilli à 300 x g pendant 5 min à 4 °C. Faire 10 mL d’aliquotes du surnageant (S-CM) dans des tubes à centrifuger de 15 mL. Ne pas prélever les 3 derniers ml du milieu restant au fond des tubes de 50 ml pour éviter la contamination des cellules MMC-STO dans le S-CM. Conservez les aliquotes à -80 °C jusqu’à 6 mois.
- Jour 4 : Récoltez le S-CM en répétant l’étape 3.4 tous les jours jusqu’à ce que la culture monocouche MMC-STO se détériore après 5-6 jours de culture dans un milieu de base PGCLC. Arrêtez la récolte lorsque 25 % ou plus des cellules sont détachées de la parabole.
4. Adaptation des PGCLC humains à la culture à long terme
- Cultivez des PGCLC humains fraîchement isolés sur la couche nourricière MMC-STO. Préparer des PGCLC humains à l’aide d’une méthode publiée précédemment (Mitsunaga et al.24 ; Kobayashi et al.41). Des protocoles détaillés de l’induction humaine de la PGCLC ont également été publiés42,43.
- Après l’amplification initiale pendant une période pouvant aller jusqu’à 28 jours, maintenir les PGCLC en tant que LTC-PGCLCs sur le BME en tant que culture sans nourrissage. Tout au long de ces deux étapes de culture PGCLC, utilisez le milieu conditionné par STO (S-CM, préparé à l’étape 3) avec une supplémentation en SCF mais sans inclusion de FCS. L’inhibiteur de ROCK n’est nécessaire qu’immédiatement après le passage.
REMARQUE : En tant que BME, le Matrigel de qualité ESC a été utilisé dans notre laboratoire. D’autres produits commerciaux n’ont pas soutenu l’expansion à long terme des LTC-hPGCLC. - Jour 1 : Inoculer des cellules de couche nourricière de STO traitées à la MMC dans des plaques à 6 puits recouvertes de gélatine à 8 x 10⁴ cellules/cm2 avec 3 mL/puits STO-medium 2. Incuber la couche nourricière à 37 °C dans un incubateur de CO2 pendant la nuit.
- Jour 2 : Jeter le milieu STO de la culture et laver les cellules avec du MEM Dulbecco’s chaud (sans sérum), 3 mL/puits. Ajouter 3 mL/puits de S-CM fraîchement complété par 0,1 mM de 2-Mercaptoéthanol, 50 μg/mL d’acide ascorbique, 100 ng/mL de SCF recombinant humain et 10 μM d’Y-27632. Inoculez 500 à 2 000 PGCLC humains fraîchement isolés sur la couche d’alimentation STO dans chaque puits. Incuber des cellules à 37 °C dans un incubateur de CO2 pendant la nuit.
REMARQUE : La présence de sérum, même à de faibles concentrations, a tendance à provoquer l’émergence de types de cellules indésirables à partir de PGCLCs humains41. La croissance des PGCLC humaines dépend strictement du SCF41. L’Y-27632 favorise la survie des PGCLC humains unicellulaires au moment de l’inoculation, mais n’est pas nécessaire pendant la culture d’entretien. Ajoutez du 2-Mercaptoéthanol, de l’acide ascorbique, du SCF et du Y-27632 fraîchement dans le milieu. Dans une expérience typique, les PGCLC sont inoculés dans tous les puits d’une plaque à 6 puits. Si un plus grand nombre de PGCLC est disponible comme matériau de départ, une densité plus élevée allant jusqu’à 10 000 PGCLC par puits est acceptable. - Jour 3 : Remplacer la moitié du milieu (1,5 mL/puits) par du S-CM chaud fraîchement complété par 0,1 mM de 2-Mercaptoéthanol, 50 μg/mL d’acide ascorbique, 100 ng/mL de SCF recombinant humain, mais sans Y-27632. Ne dérangez pas les PGCLC, qui peuvent être détachées de la couche d’alimentation par un fort écoulement de fluide.
- Jours 5 à 28 : Répétez l’étape 4.5 tous les deux jours. Comme les PGCLC prolifèrent généralement à 4,5 jours de population doublant le temps41, de petits groupes de PGCLC émergent aux jours 6-7 ou plus tard (figure 1A-D). Les grappes deviendront plus évidentes d’ici les jours 14 et 15 (figures 1E, F). Si des types indésirables d’amas cellulaires présentant des caractéristiques morphologiques anormales s’écartant des PGCLC corrects apparaissent, jeter les puits contenant de tels amas ou tenter d’éliminer les cellules anormales en utilisant la technique d’adhésion différentielle décrite plus loin à l’étape 4.9.
- Lorsque les PGCLC se développent pour former des grappes qui couvrent plus de 20 % de la surface de culture (~Jour 28), dissociez les cellules à l’aide de la solution de détachement cellulaire (CDS). Retirer le S-CM des puits de la culture PGCLC et ajouter le CDS préchauffé à 1 mL/puits sans laver les cellules. Incuber les cellules à 37 °C dans un incubateur de CO2 pendant 5 min jusqu’à ce que les PGCLC se détachent des puits.
REMARQUE : L’accutase est recommandée comme CDS pour la dissociation légère. Ne préchauffez pas les CDS à 37 °C pendant plus de 5 min. Le détachement des PGCLC peut être facilité par un pipetage doux, mais il n’est pas nécessaire de les dissocier complètement en une suspension unicellulaire. De petits agrégats de PGCLC peuvent augmenter la viabilité. Si des types de cellules indésirables émergent et se développent rapidement, ajustez le temps d’incubation dans les CDS pendant le détachement cellulaire pour la collecte sélective des PGCLC, qui ont tendance à se détacher plus tôt que les cellules nourricières et la plupart des types de cellules indésirables. Si l’émergence persistante de types de cellules indésirables perturbe l’expansion des PGCLC, essayez d’éliminer les cellules indésirables en utilisant leur adhésion plus rapide aux puits recouverts de gélatine, comme décrit à l’étape 4.9. Comme l’enrichissement des PGCLC par FACS a tendance à perdre une partie importante des PGCLC vivants, réduisez la taille de la couche d’alimentation en conséquence. - Pour arrêter le détachement cellulaire par CDS, diluez la suspension cellulaire avec 10 fois le volume de milieu basal PGCLC chaud et centrifugez à 300 x g pendant 5 min à 4 °C. Notez que l’activité enzymatique de certains CDS, tels que l’accutase, n’est pas supprimée par les inhibiteurs sériques ou de la trypsine. Jetez le surnageant et remettez les cellules en suspension dans 3 mL de S-CM chaud fraîchement complété par 0,1 mM de 2-Mercaptoéthanol, 50 μg/mL d’acide ascorbique, 100 ng/mL de SCF recombinant humain et 10 μM Y-27632.
- Inoculer la suspension cellulaire dans des puits de plaques à 6 puits recouvertes de gélatine à 0,1 % et incuber à 37 °C dans un incubateur de CO2 pendant 30 minutes pour éliminer les cellules MMC-STO (et les types de cellules indésirables), qui adhèrent rapidement aux puits recouverts de gélatine.
REMARQUE : Il est recommandé d’inspecter les cellules par microscopie à contraste de phase à 20 min d’incubation ainsi qu’à 30 min pour évaluer l’adhésion des cellules nourricières. Il peut être nécessaire d’allonger le temps d’incubation jusqu’à 45 min. L’utilisation de FACS ou de MACS pour éliminer les cellules nourricières n’est généralement pas nécessaire car les cellules STO traitées par MMC ne peuvent pas proliférer et se détériorer dans le S-CM. - Transférer des PGCLC appauvris en types anormaux de cellules sur des puits recouverts d’une matrice de membrane basale pour commencer la culture à long terme sans nourrisseur de PGCLC humains. Pour un seul puits dans une plaque à 6 puits, l’inoculation de 1 x 10⁵ PGCLC viables est recommandée.
REMARQUE : Il est généralement nécessaire de regrouper des hPGCLCs à partir d’un maximum de 6 puits pour collecter 1 x 10⁵ PGCLC viables (coloration au bleu de trypan négative) et de les ensemencer dans un seul puits pour augmenter la densité cellulaire de l’inoculum. Si le nombre de PGCLC récoltés n’atteint pas 1 x 10⁵, utilisez un puits de plus petite taille, tel qu’une plaque de 12 ou 24 puits pour obtenir une densité de PGCLC relativement élevée. Au moment de la première sous-culture, la plupart des cellules de la couche nourricière MMC-STO sont détériorées et ne survivent pas à la procédure de passage. Un petit nombre de cellules MMC-STO viables sont efficacement éliminées par la technique d’adhésion différentielle. Même si quelques cellules MMC-STO sont contaminées dans des puits recouverts de BME, elles disparaîtront de la culture lors de multiples passages. - Les PGCLC humaines se développent sous la forme d’une population cellulaire très dispersée sans signe significatif de contact physique direct entre les cellules individuelles (Figure 1). Si des amas de cellules présentant des interactions intercellulaires serrées émergent (Figure 2A), passez la culture en utilisant la technique décrite à l’étape 4.7. Une fois par semaine, le passage (1:4) est généralement suffisant.
REMARQUE : L’enrichissement FACS des PGCLC humains n’est généralement pas nécessaire. Cependant, si les cellules anormales indésirables ne peuvent pas être éliminées efficacement après la technique d’adhésion différentielle répétée décrite à l’étape 4.11, quelques cycles d’enrichissement en FACS de PGCLC humaines en tant que cellules CD38-positives42,43 facilitent l’établissement d’une population pure de LTC-hPGCLCs. Des exemples de cellules anormales dérivées de PGCLC se développant sur des boîtes recouvertes de BME en l’absence d’une couche nourricière sont illustrés à la figure 3. Il est important de maintenir une densité relativement élevée de culture cellulaire PGCLC pour réduire le risque d’induire des types de cellules indésirables.- Préparez des plats recouverts de BME comme décrit précédemment42,43. Décongelez le BME sur de la glace dans un réfrigérateur ou une chambre froide pendant la nuit. Ne décongelez pas le BME congelé à température ambiante ou n’utilisez pas un bain d’eau chaude.
- Aliquote BME (~200 μL ; le volume d’une aliquote est déterminé par le fabricant pour chaque lot et indiqué sur l’étiquette du flacon) dans des tubes à centrifuger stériles et pré-refroidis à faible liaison ou des tubes de cryoconservation cellulaire sur glace. Il est important de garder le BME glacé pendant la distribution pour éviter la solidification. Conservez les aliquotes à -80 °C.
- Diluer une aliquote de BME avec 25 mL de DMEM/F12 glacé et étaler dans trois boîtes de 10 cm (~8 mL/boîte) ou quatre assiettes à 6 puits (total de 24 puits, 1 mL par puits). Incuber les plats à température ambiante pendant au moins 1 h. Après l’enrobage, la vaisselle peut être scellée avec un film transparent et conservée à température ambiante jusqu’à 1 semaine.
- Aspirez le milieu de la vaisselle immédiatement avant utilisation. Il n’est pas nécessaire de laver la vaisselle enduite.
- Maintenir une densité relativement élevée de culture de LTC-PGCLC sur le BME pour supprimer l’émergence de types de cellules indésirables. Le passage des PGCLCs est recommandé lorsque les cellules atteignent plus de 25 % de confluence. La moitié du milieu (1,5 mL/puits) doit être remplacée par du S-CM chaud fraîchement complété par 0,1 mM de 2-Mercaptoéthanol, 50 μg/mL d’acide ascorbique et 100 ng/mL de SCF recombinant humain.
REMARQUE : L’inoculation de PGCLCs à une densité plus faible augmente le risque de production de cellules indésirables. Étant donné que le temps de doublement de la population des PGCLC humains est d’environ 4,5 jours41, le passage hebdomadaire régulier est généralement suffisant pour maintenir la culture à long terme. L’inclusion de l’inhibiteur de ROCK (Y-27632) n’est nécessaire qu’après le passage pour améliorer la viabilité de la PGCLC. - Ne dérangez pas les PGCLC, qui peuvent être détachées de la couche d’alimentation par un fort écoulement de fluide.
REMARQUE : Parce que les PGCLC humaines expriment la télomérase, elles prolifèrent sans signes apparents de sénescence tels que le raccourcissement des télomères ou l’expression de la β-galactosidase41 associée à la sénescence. - Lorsque les PGCLC humaines ont acquis une prolifération stable sans générer de quantités significatives de types de cellules indésirables, examinez leurs caractéristiques de type PGC en profilant l’expression des gènes marqueurs.
REMARQUE : Les approches analytiques adaptées à la caractérisation de chaque cellule (telles que l’immunofluorescence, le FACS ou le séquençage de l’ARN sur cellule unique) sont encouragées pour évaluer la contamination possible des types de cellules indésirables. Si les résultats de ces analyses confirment la nature de type PGC des PGCLC, l’établissement d’une culture LTC-hPGCLC est confirmé. - Conserver les PGCL-LTC congelés dans un milieu de congélation cellulaire (1 x 10⁶ cellules/mL par flacon cryogénique). À partir d’un total de 10 000 PGCLC humains comme matériel initial, le rendement total de 1 x 10⁶ PGCLC est réalisable en 6 semaines. Placez une boîte en papier ou en plastique contenant les flacons cryogéniques dans une boîte en polystyrène hermétiquement refermable. Placez la boîte scellée dans un congélateur à -80 °C pendant la nuit pour une congélation lente. Placez ensuite les flacons dans un congélateur à -80 °C ou un réservoir d’azote liquide.
- Pour commencer la culture à partir d’un flacon de cellules congelées, suivez les étapes décrites ci-dessous.
- Décongelez rapidement les cellules dans un bain-marie à 37 °C avec agitation manuelle tout en gardant le fond du flacon dans l’eau. Lorsque >80 % du contenu est décongelé dans le flacon, séchez le flacon avec des mouchoirs non pelucheux ou du papier de laboratoire équivalent et essuyez le capuchon avec un tampon imbibé d’alcool.
- Transférer les cellules dans un tube à centrifuger de 15 mL contenant un milieu de base PGCLC préchauffé (37 °C). S’il reste de petites cellules congelées dans le flacon, récupérez-les avec le milieu basal PGCLC par pipetage.
- Centrifuger immédiatement les cellules à 300 x g pendant 5 min à température ambiante et éliminer le surnageant.
- Remettez en suspension la pastille cellulaire avec 9 mL de S-CM préchauffé fraîchement complété par 0,1 mM de 2-Mercaptoéthanol, 50 μg/mL d’acide ascorbique, 100 ng/mL de SCF recombinant humain et 10 μM Y-27632. Suspendez doucement les cellules à l’aide d’embouts de pipette de 1 000 ml.
- Inoculer 3 mL/puits dans 3 puits de la plaque recouverte de BME pour amorcer la culture. Secouez doucement les plaques verticalement et horizontalement pour une répartition uniforme des cellules. Évitez les mouvements circulaires ou les secousses, car un tel mouvement déplacera les cellules vers le centre des puits. La viabilité des cellules immédiatement après la récupération d’un stock congelé est généralement supérieure à 80 %.
Résultats
Résultats représentatifs - Les PGCLC forment généralement des grappes visibles sur la couche d’alimentation MMC-STO dans les 2 semaines suivant l’inoculation (figure 1A-D). Il faut environ 3 à 4 semaines avant que les PGCLC soient prêts pour la culture sans nourrissage. Comme les PGCLC présentent une forte activité cytocinétique, leur interaction intercellulaire est faible lorsqu’ils forment des grappes sur la couche nourricière (Figure 1E,F). On observe souvent des PGCLC sortant des grappes (figure 1F, pointes de flèches rouges). En l’absence d’une couche nourricière, les LTC-PGCLC se développent sous forme de cellules dispersées avec peu de signes d’adhésion intercellulaire, même lorsque la densité cellulaire est élevée (Figure 3). Chaque LTC-PGCLC conserve la morphologie d’origine du PGCLC humain fraîchement isolé, montrant des signes de cytokinèse active. Lorsque des cellules déviées des caractéristiques morphologiques de type PGC émergent (Figure 2), l’enrichissement des PGCLC par une technique d’adhésion différentielle répétée améliore souvent la qualité de la culture. Si les cellules anormales persistent, un enrichissement occasionnel en PGCLCs en tant que cellules CD38-positives peut aider.
Une publication précédente a identifié les PGCLC humaines comme des cellules PRDM1 positives, TFAP2C positives, mais SOX2 négatives41. Ils expriment également POU5F1, mais leurs précurseurs iPSC expriment également ce marqueur de pluripotence41. Il est fortement encouragé de confirmer le rendement au niveau de la cellule unique et les profils d’expression des marqueurs des PGCLC humains en expansion le plus tôt possible en utilisant des marqueurs génétiquement inductibles, l’immunofluorescence, les FAC ou le séquençage de l’ARN unicellulaire. Cependant, en l’absence de telles analyses de confirmation, le rendement et la qualité des PGCLC humains en présence ou en l’absence des cellules nourricières peuvent être facilement estimés à l’aide de la microscopie à contraste de phase standard, comme le montrent les figures 1, 2 et 3.
Au cours de la culture à long terme, les LTC-PGCLCs maintiennent une population cellulaire homogène contenant une sous-population en prolifération active, comme l’ont démontré des données antérieures de séquençage de l’ARN sur cellule unique41. Le profil transcriptomique des PGCLC originaux est largement maintenu, sauf que l’expression des marqueurs PGCLC précoces GATA2 et GATA3 est rapidement perdue41. Le niveau global de méthylation de l’ADN dans les iPSC humaines est d’environ 73 %, et il diminue à environ 64 % dans les PGCLC41 fraîchement produits. Le niveau global de méthylation de l’ADN diminue encore dans les LTC-PGCLC à environ 54 % après 12 semaines d’expansion in vitro 41. La plupart des caractéristiques transcriptomiques et épigénétiques des LTC-PGCLC humaines sont complètement inversées par rapport à celles des iPSC d’origine lorsqu’elles sont converties en cellules germinales embryonnaires pluripotentes, sauf que les marques épigénétiques spécifiques de l’allèle à plusieurs régions de contrôle de l’empreinte sont effacées dans les PGCLC et ne reviennent jamais41.
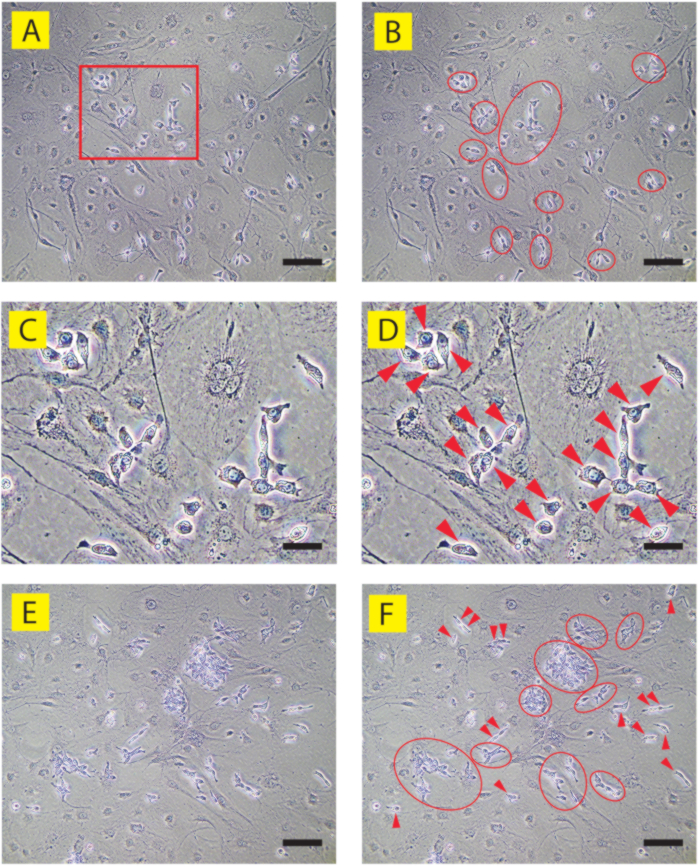
Figure 1 : Images en contraste de phase de PGCLC humaines correctes sur la couche d’alimentation STO (clone humain iPSC 9A13). (A, C, E) sont annotées respectivement en (B, D, F). (A-D) Jour 6 : culture. Une partie de (A) représentée par un rectangle rouge est agrandie en (C, D). La plupart des PGCLC sont observées sous forme de cellules dispersées qui forment souvent des amas lâches (ovales rouges). Les PGCLC individuelles (pointes de flèches rouges) ne forment pas de contact étroit les unes avec les autres et sont facilement identifiées par microscopie à contraste de phase comme des cellules saillantes des cellules nourricières de STO en détérioration, plates et largement étalées. (E, F) Jour 15 : la culture. Plusieurs grappes de PGCLC sont facilement identifiées (ovales rouges), tandis que le contact intercellulaire est encore lâche. Certains PGCLC se trouvent à l’extérieur des grappes, souvent sous forme de doublets (pointes de flèches rouges), reflétant leur prolifération active lors de la migration aléatoire sur et entre la couche nourricière très détériorée. Barres d’échelle = 50 μm (A, B, E, F) ou 15 μm (C, D). Veuillez cliquer ici pour voir une version agrandie de cette figure.
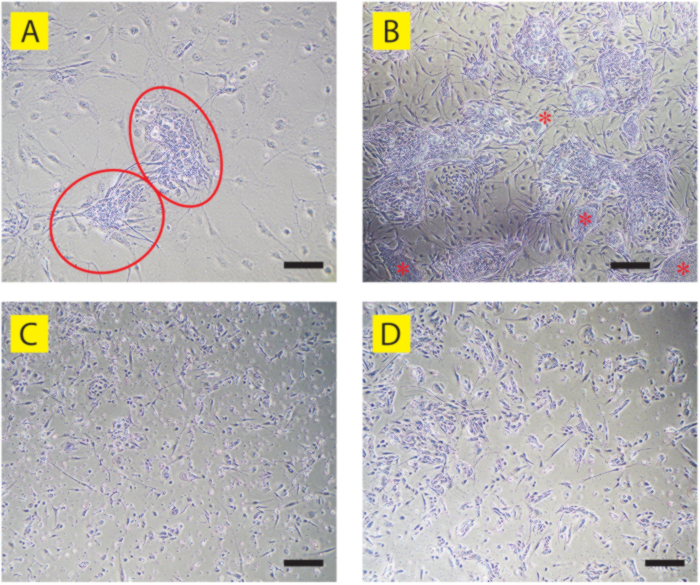
Figure 2 : Images à contraste de phase de PGCLC humains qui sont déviées des caractéristiques de type PGC. (A) Deux grappes anormales de PGCLC (ovales rouges) sont apparues dans la culture du jour 9 de PGCLC 9A13 sur la couche nourricière de STO. Contrairement aux clusters PGCLC corrects (voir Figure 1A-D), les cellules présentent un fort contact intercellulaire qui obscurcit les limites de chaque cellule individuelle. (B) Culture du jour 18 de la culture humaine PGCLC montrée en (A). De multiples amas anormaux de PGCLC sont observés, dont certains présentent des colonies denses ressemblant aux iPSC humaines précurseurs (astérisques rouges). Notez que la plupart des cellules allongées de type fibroblaste trouvées entre les amas sont également des cellules anormales dérivées de PGCLC, tandis que la plupart des cellules nourricières STO sont détériorées et délogées. (C) LTC-hPGCLCs (clone humain B6 d’iPSC) montrant une mort cellulaire massive et des morphologies anormales sur des boîtes recouvertes de BME et sans mangeoire. (D) LTC-hPGCLC qui sont largement déviés vers des cellules présentant des morphologies anormales sur des boîtes sans mangeoire recouvertes de BME (clone humain d’iPSC T548). Comparez ces LTC-hPGCLC anormaux avec les LTC-hPGCLC corrects illustrés à la figure 3B. Barres d’échelle = 50 μm (A, B) ou 100 μm (C, D). Veuillez cliquer ici pour voir une version agrandie de cette figure.
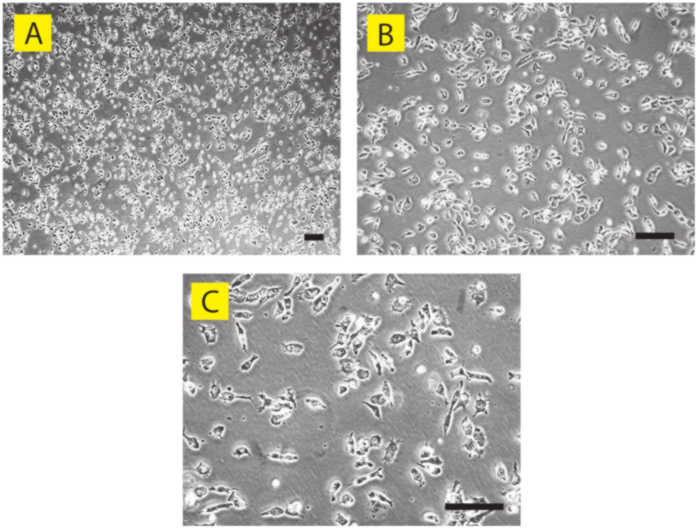
Figure 3 : Images en contraste de phase de PGCLC humaines correctes en culture sans nourrisseur (clone A4 d’iPSC humain). Au jour 56, la culture sans nourrissage de LTC-PGCLCs sur des boîtes recouvertes de BME est illustrée en (A) grossissements faibles, (B) moyens et (C) élevés. Même si la densité cellulaire est relativement élevée, chaque PGCLC individuel ne forme pas de contacts intercellulaires étroits, à l’exception des cellules qui ont récemment terminé leur division cellulaire. En raison de la cytokinèse active, certains PGCLC présentent une morphologie allongée tandis que d’autres sont de forme ronde. Barres d’échelle = 50 μm. Veuillez cliquer ici pour voir une version plus grande de cette figure.
| Milieu basal PGCLC | |
| Ingrédients | Volume |
| MEM de Glasgow | 500 ml |
| Remplacement du sérum knockout (KSR) | 75 ml |
| MEM NEAA (100X) | 6 mL |
| Pyruvate de sodium (100X) | 6 mL |
| Pénicilline-streptomycine (100X) | 6 mL |
Tableau 1 : Milieu basal PGCLC. Composition du milieu basal PGCLC (593 mL).
| STO moyen 1 | |
| Ingrédients | Volume |
| Le MEM de Dulbecco | 445 ml |
| Sérum de veau fœtal | 50 ml |
| Pénicilline-streptomycine (100X) | 5 mL |
Tableau 2 : STO moyen 1. Composition du STO medium 1 (500 mL).
| STO moyen 2 | |
| Ingrédients | Volume |
| Le MEM de Dulbecco | 47 ml |
| Sérum de veau fœtal | 2,5 ml |
| Pénicilline-streptomycine (100X) | 0,5 mL |
| FGF2 (200 μg/mL) | 2,5 μL |
Tableau 3 : STO medium 2. Composition du milieu STO 2, qui est complété par FGF2 pour une croissance accrue des cellules STO (50 mL).
| Support de stockage MMC-STO | |
| Ingrédients | Volume |
| Le MEM de Dulbecco | 42,5 ml |
| Sérum de veau fœtal | 5 mL |
| Diméthylsulfoxyde | 2,5 ml |
Tableau 4 : support de stockage MMC-STO Composition du support de stockage MMC-STO, qui est utilisé pour préparer des stocks congelés de cellules d’alimentation STO traitées au MMC (50 mL).
Discussion
La méthode de maintenance humaine PGCLC décrite dans cet article est relativement simple, sans nécessiter d’appareils spécifiques ou de matériaux non standard. Les méthodes précédemment publiées de maintenance de la PGCLC humaine nécessitent un tri FACS fréquent en raison de l’écart significatif des cellules par rapport au statut de type PGCLC38. Ces méthodes nécessitent également une lignée cellulaire de couche nourricière non standard (m220-5), qui n’est pas facilement disponible dans les dépôts accessibles au public et à l’échelle internationale39,40. L’inclusion de FCS dans leurs milieux introduit de l’incertitude en raison de la dépendance à l’égard de la performance d’un lot spécifique du sérum. En revanche, la méthode actuellement présentée permet d’obtenir facilement plusieurs millions de PGCLC humains, qui peuvent être stockés congelés tout en maintenant une viabilité élevée (> 90 %), sans nécessiter de sérum ou d’autres réactifs d’origine animale. Le protocole nécessite la lignée cellulaire standard de la couche nourricière STO, qui est généralement disponible dans de nombreux dépôts publics. La méthode offre un niveau de commodité sans précédent pour manipuler les PGCLC humains comme s’il s’agissait de lignées cellulaires conventionnelles. L’approvisionnement illimité de PGCLC humaines obtenu à l’aide de cette méthode élargira le champ des applications des PGCLC humaines dans des domaines tels que les productions expérimentales de cellules germinales humaines et/ou de gamètes, les évaluations de troubles des cellules germinales humaines telles que l’infertilité (y compris les tentatives de gamétogenèse in vitro) ou les tumeurs germinales, et les évaluations toxicologiques de toxiques potentiels des cellules germinales.
La méthode exclut les SCF dans le S-CM afin de minimiser l’émergence de types de cellules indésirables à partir de PGCLC humains41. Plusieurs clones d’iPSC avaient tendance à produire des types de cellules indésirables pendant la phase dépendante de l’alimentation ou par la suite, et certains d’entre eux ont dû passer par deux ou trois cycles de purification FACS des PGCLC. Cependant, une fois que la culture LTC-PGCLC est établie avec une confluence de plus de 50 %, la nécessité de la purification FACS est généralement diminuée. La croissance des PGCLC humaines in vitro dépend strictement de la présence de SCF41. Si le taux de croissance des LTC-PGCLC diminue, il est recommandé de tester différents lots ou réactifs SCF des fabricants. Parce que les PGCLC humaines expriment la télomérase, elles ne connaissent pas de sénescence lors de l’expansion à long terme in vitro41. Il a été utilisé avec succès pour établir des CSLD-PGCLC dérivées de CSPi humaines masculines et féminines de diverses origines ethniques41. Parmi les exemples d’application réussie de la méthode actuellement présentée, citons les clones mâles A4 et A5 (nouveau-né caucasien), PGP1 (adulte caucasien) et 9A13 (adulte japonais), et les clones femelles ATCC-BXS0116 (caucasien) et ATCC-BXS0115/ACS-1029 (hispanique). L’applicabilité générale de cette méthode et des marqueurs de prédiction doit être établie dans les études futures.
La nécessité d’une purification FACS occasionnelle des PGCLC humaines dépend du clone précurseur de l’iPSC. Alors que quelques clones d’iPSC n’ont jamais nécessité d’enrichissement en FACS après l’isolement initial des PGCLC en tant que cellules CD38 positives, certains PGCLC ont dû être enrichis en cellules CD38 positives jusqu’à trois fois par FACS pendant la phase dépendante de l’alimentateur. Des PGCLC enrichis en FACS ont été inoculés dans des mangeoires MMC-STO fraîchement préparées. L’enrichissement FACS n’est généralement pas nécessaire à chaque passage une fois que les PGCLC commencent l’amplification stable sur le BME sans le chargeur.
On ne dispose pas actuellement de données détaillées sur la proportion de cellules conservant les caractéristiques de type PGC par rapport aux cellules déviant vers des types cellulaires indésirables pour le clone iPSC individuel à chaque passage. En général, la culture LTC-hPGCLC est stabilisée après 2 à 4 semaines de culture avec des passages répétés. Lorsque les PGCLC humains ont tendance à générer des types de cellules indésirables, la méthode d’adhésion différentielle peut enrichir efficacement les PGCLC, car la plupart des cellules indésirables ont tendance à adhérer plus fortement à la boîte de culture que les PGCLC. Si des tentatives répétées d’adhésion différentielle n’aident pas l’enrichissement en PGCLC, l’enrichissement en FACS des PGCLC humains en tant que cellules CD38-positives élimine souvent les cellules indésirables, et par la suite, le LTC-hPGCLC pur peut être maintenu en utilisant uniquement la méthode d’adhésion différentielle. L’établissement d’une culture à long terme de PGCLC humains générés à l’aide de la méthode 2D décrite par Overeem et al. a parfois été difficile. Cependant, les mêmes PGCLC humaines qui ont acquis une résistance à l’apoptose par l’inactivation CRISPR de gènes pro-apoptotiques ont été facilement étendues aux LTC-hPGCLC. Les détails de la compatibilité de cette méthode avec chaque iPSC et PGCLC humains individuels doivent être examinés dans des études futures.
Alors que les cellules de la couche nourricière STO traitées au MMC favorisent initialement la survie et la prolifération des PGCLC humains fraîchement isolés, les PGCLC à prolifération rapide se développent in vitro sans couche nourricière tant qu’elles sont soutenues par le milieu conditionné STO et le revêtement BME des plats. L’avantage unique de la méthode actuellement présentée par rapport aux autres approches est la capacité d’établir des LTC-hPGCLCs comme une culture sans nourrissage. Les cellules de la couche nourricière MMC-STO montrent des signes initiaux de détérioration dans le milieu S-CM après 5 à 6 jours de culture. Aux jours 6 et 7 (figures 1A et D), la couche nourricière présente des dommages modestes, qui deviennent plus évidents aux jours 14 et 15 (figures 1E, F). En l’absence de cellules nourricières, le taux de survie des PGCLC humains fraîchement isolés est généralement faible, apparemment en raison de leur faible efficacité à adhérer au fond des boîtes de culture cellulaire. On suppose que les protéines de la matrice extracellulaire déposées par les cellules MMC-STO facilitent l’adhésion et la survie des PGCLC même après la détérioration des cellules MMC-STO. Une fois que le nombre de PGCLC humaines devient suffisamment important pour former des grappes visibles au 14e ou 15e jour, la matrice extracellulaire déposée par les PGCLC eux-mêmes peut être suffisante pour soutenir leur survie et leur prolifération. À l’appui de cette hypothèse, l’inoculation de PGCLC humains fraîchement isolés à une densité élevée (par exemple, 100 000 cellules dans un puits d’une plaque de 12 puits) dans des puits exempts de nourrisseurs et recouverts de BME initie souvent une expansion réussie de la culture LTC-hPGCLC. D’autre part, l’utilisation du milieu conditionné MMC-STO est absolument nécessaire tout au long de la culture humaine de PGCLC, soulignant l’importance d’un conditionnement continu par les cellules MMC-STO.
Il est important de maintenir une densité relativement élevée de culture de LTC-PGCLC sur BME pour supprimer l’émergence de types de cellules indésirables. Il est recommandé de passer les PGCLC à plus de 25 % de confluence. L’inoculation de PGCLCs à une densité plus faible augmente le risque de production de cellules indésirables. Étant donné que le temps de doublement de la population des PGCLC humains est d’environ 4,5 jours41, le passage hebdomadaire régulier est généralement suffisant pour maintenir la culture à long terme. Si une grande partie des PGCLC s’écartent de leurs caractéristiques de type PGC, et si la technique d’adhésion différentielle ou FACS est insuffisante pour éliminer les cellules indésirables, envisager l’inoculation de la couche nourricière MMC-STO dans des puits recouverts d’un BME au lieu d’un enrobage de gélatine, et/ou une culture allongée des cellules MMC-STO jusqu’à 3 ou 4 jours avant l’inoculation des PGCLC.
Les caractéristiques morphologiques et d’expression des marqueurs parmi les types de cellules indésirables varient considérablement, bien qu’elles puissent être facilement identifiées par la microscopie à contraste de phase standard (Figure 2). Les cellules présentant des caractéristiques de croissance agrégées ou un aspect aplati s’écartent des caractéristiques de type PGC. L’expression des marqueurs PGC standard tels que PRDM1 ou TFAP2C est généralement diminuée dans ces cellules indésirables, bien qu’il n’existe actuellement aucun critère clair pour distinguer la population cellulaire indésirable de la population cellulaire de type PGC, ce qui peut être confirmé par coloration par immunofluorescence, FACS ou RNA-seq sur cellule unique. À ce jour, l’identité ou la pertinence des types de cellules non-PGC qui émergent lors de l’expansion des LTC-hPGCLCs est inconnue.
Bien que la méthode présentée dans cet article utilise les cellules de la couche nourricière STO, les cellules SNL 76/7 peuvent également être utilisées pour la production du milieu conditionné et de la couche nourricière. Certaines cultures PGCLC ont pu s’adapter à la culture à long terme sans passer par la culture dépendante de l’alimentation, en particulier lors de l’initiation de la culture avec un inoculum de grande taille (>100 000 cellules). D’autre part, l’établissement d’une culture LTC-PGCLC peut être difficile lorsque la taille initiale est inférieure à 10 000 cellules. Bien que les composants clés du milieu conditionné STO aient déjà été décrits, les composants qui soutiennent l’expansion à long terme de la PGCLC n’ont pas encore été identifiés44.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à divulguer.
Remerciements
Ce travail a été soutenu par des subventions des NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 et R21CA290650 à TS. TS est également récipiendaire d’une subvention 63299 de la Fondation John Templeton (PI, John McCarrey, Université du Texas, San Antonio). Une partie de l’étude présentée a également été financée par le James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Plaques de culture cellulaire à 6 puits | Corning | 3506 | |
| Accutase | Technologies cellulaires innovantes | AT104 | Conserver à -20 ° ; C pendant 6 mois. |
| Boîtes en plastique de 10 cm traitées pour culture cellulaire (boîtes P10) | Corning | 353003 | |
| Boîtes en plastique de 15 cm traitées pour culture cellulaire (boîtes P15) | Corning | 353025 | |
| Flacon cryogénique ; | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | STEMCELL Technologies | 7930 | Conserver à 4 °C. |
| Sulfoxyde de diméthyle | Fisher Scientific | BP231-1 | Conserver à température ambiante. Qualité de culture cellulaire. |
| Dulbecco ; s Solution saline tamponnée au phosphate (sans Ca/Mg) (DPBS) | Gibco | 14190144 | Conserver à température ambiante. Qualité de culture cellulaire. |
| Le support essentiel minimum de Dulbecco (Dulbecco’s MEM) | Corning | Référence 10-013-CM | Conserver à 4 °C. NUtilisez un milieu contenant 4,5 g/L de glucose, 1X L-glutamine et 1X pyruvate de sodium. |
| Sérum de veau fœtal | Sérum CPS | FBS-500 | Conserver à -20 ° ; C pendant 12 mois. |
| Gélatine | STEMCELL Technologies | 7903 | 0,1 % dans l’eau. Stérile. |
| Le médium essentiel Miminum de Glasgow (MEM de Glasgow) | Gibco | 11710-035 | Conserver à 4 °C. |
| Facteur de croissance des fibroblastes recombinants humains 2 (FGF2) | PeproTech | 100 à 18 milliards | Conserver à -80 ° ; C pendant 3 mois. |
| Facteur de cellules souches recombinantes humaines (SCF) | PeproTech | 300-07 | Reconstituer dans l’eau en suivant les instructions du fabricant. Conserver à -80 ° ; C pendant 3 mois. |
| Remplacement du sérum knockoutq | Gibco | 10828-028 | Conserver à -20 ° ; C pendant 6 mois. |
| Matrigel (qualifié pour les cellules souches embryonnaires humaines) | Corning | 354277 | |
| Minimum Essentiel Milieu Acides aminés non essentiels (MEM NEAA) | Gibco | 11140-050 | Conserver à 4 °C. |
| Mitomycine-C (10 mM dans l’eau) | Millipore-Sigma | Référence M5353 | Dissoudre la mitomycine-C (MMC) dans de l’eau et un filtre stérile (taille des pores de 0,22 mM). Conserver 100 mL d’aliquotes à -20 ° ; C pendant 6 mois. Pour décongeler la MMC congelée, décongelez les cristaux violets dans un bain d’eau chaude (>60 ° ; C) à une solution violet foncé. |
| Pénicilline-streptomycine (100X) | Gibco | 15140-122 | Conserver à 4 °C. |
| Tubes à centrifuger en plastique (15 ml) | Corning | 352196 | |
| Tubes à centrifuger en plastique (50 mL) | Corning | 352070 | |
| Pyruvate de sodium (100X) | Gibco | 11360-070 | Conserver à 4 °C. |
| fibroblastes embryonnaires de souris STO™ | ATCC | CRL-1503 | |
| Bleu trypan (0,4 %) | Fisher Scientific | Réf. T10282 | Conserver à température ambiante. |
| TrypLE Express | Gibco | 12604-013 | Conserver à température ambiante. |
| Y-27632 (10 mM dans l’eau) | Tocris | 1254 | Dissoudre l’Y-27362, qui est un inhibiteur de ROCK, dans de l’eau à 10 mM et stérile avec filtre (taille des pores de 0,22 mM). Conserver 100 mL d’aliquotes à -20 ° ; C pendant 6 mois. |
Références
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible