Ici, nous décrivons un protocole in vitro pour modéliser les dommages hypoxiques/réoxygénations dans les cellules épithéliales tubulaires proximales très métaboliques. Ce modèle est conçu pour induire des lésions métaboliques induites par le stress, mesurées par l’expression de marqueurs de lésions des tubules proximaux et l’évaluation de la fonction respiratoire mitochondriale.
Article de méthode
Modélisation de l’hypoxie/lésion par réoxygénation dans les cellules épithéliales tubulaires proximales
Dans cet article
Résumé
Résumé
La transplantation rénale représente environ 60 % à 65 % de tous les organes solides transplantés. La plupart des reins de donneurs sont prélevés auprès de personnes décédées, nécessitant une conservation prolongée au froid, ce qui est un facteur connu pour de mauvais résultats de greffe. Malgré les stratégies actuelles de préservation, la lésion ischémie-reperfusion (IRI) reste une conséquence inévitable d’une interruption transitoire du flux sanguin, entraînant une privation d’oxygène et de nutriments. Au sein du néphron, les cellules épithéliales tubulaires proximales (PTEC) du segment S3 sont particulièrement sensibles à l’IRI en raison de leur forte demande métabolique et de leur dépendance à la phosphorylation oxydative mitochondriale. Au niveau moléculaire, l’IRI perturbe le métabolisme mitochondrial et réduit la production d’ATP, compromettant les besoins énergétiques des cellules épithéliales tubulaires proximales (PTEC) et favorisant l’apoptose et la nécrose. Pour étudier ces mécanismes et évaluer les stratégies thérapeutiques potentielles, des modèles in vitro robustes et reproductibles de l’IRI rénale qui reproduisent avec précision la vulnérabilité métabolique des PTEC sont essentiels. Ici, nous décrivons un protocole pour l’induction et l’évaluation des lésions hypoxies/réoxygénation (H/R) chez les PTEC im-PTEC (IM-PTEC) immortisés par la murine. Le protocole inclut des informations détaillées sur la composition du milieu et les conditions de culture nécessaires au maintien de ces cellules, suivies de l’induction des lésions H/R par des phases contrôlées d’hypoxie et de réoxygénation qui imitent étroitement les événements d’ischémie et de réperfusion dans les reins transplantés. Ce modèle offre une plateforme précieuse pour évaluer les effets de différentes interventions sur les cellules épithéliales rénales exposées à une lésion H/R. L’impact de ces traitements peut être évalué par l’analyse de l’expression des marqueurs associés aux lésions de la PT, ainsi que par l’évaluation de la fonction respiratoire mitochondriale. Ensemble, ces résultats offrent des perspectives mécanistes sur l’efficacité des composés et les processus de récupération cellulaire, soutenant le développement de thérapies ciblées pour l’IRI rénale.
Introduction
Selon l’Observatoire mondial sur le don et la transplantation, la transplantation rénale représente environ 60 % à 65 % de toutes les greffes d’organes solides dans le monde, le nombre d’interventions réalisées en 2023 étant près de trois fois supérieur à celui des greffes de foie, cette dernière étant le deuxième type le plus courant. Dans 61 % des greffes rénales réalisées cette année-là, l’organe provenait de donneursdécédés 1, ce qui implique une période de conservation plus longue que celle des donneurs vivants, où le délai d’attente est nettement pluscourt 2. Pendant cette période de préservation, les reins sont généralement préservés à l’aide d’un stockage statique à froid afin de ralentir le métabolisme cellulaire, ce qui réduit la demande en oxygène et énergie et limite ainsi les lésionsischémiques 3. Cependant, le stockage statique à froid ne fournit qu’une protection partielle, car il ne peut pas soutenir pleinement le métabolisme cellulaire ni la délivrance d’oxygène, entraînant un dysfonctionnement métabolique progressif lors de la préservation 4,5. Alternativement, la préservation normothermique ex vivo est apparue comme une stratégie viable pour maintenir l’organe à une température proche de la physiologie, soutenant ainsi le métabolisme cellulaire et l’oxygénation, et réduisant par conséquent la lésion ischémie-reperfusion (IRI)6.
Cependant, lors d’une transplantation rénale, une lésió rénale aiguë (AKI) due à l’IRI est une conséquence inévitable. L’IRI résulte de l’interruption du flux sanguin à travers l’organe, entraînant un déséquilibre entre l’offre et la demande d’oxygène et denutriments 7. Ce processus a un impact direct sur la fonction du rein transplanté, augmente le risque de rejet aigu et de diminution de la fonction du greffonà long terme 8,9.
Les PTEC — particulièrement abondants dans le cortex rénal — sont particulièrement vulnérables à l’IRI. Ces cellules constituent environ 60 % à 70 % de l’épithélium tubulaire et sont responsables de la réabsorption de la majeure partie du filtrat glomérulaire, y compris l’eau, les ions, le glucose et les acidesaminés 10. Leur activité métabolique élevée est soutenue par un vaste réseau mitochondrial pour répondre aux besoins de transport dépendants del’ATP 11. Par conséquent, ils sont extrêmement sensibles aux troubles métaboliques, tels que la privation d’oxygène et les dysfonctionnements mitochondriaux, deux caractéristiques centrales del’IRI 12.
Pendant l’IRI, la privation d’oxygène perturbe la phosphorylation oxydative mitochondriale, entraînant une déplétion de l’ATP et une fonction de réabsorptionaltérée 13,14. Cela initie un changement métabolique de l’oxydation des acides gras (FAO) vers la glycolyse anaérobie et l’activation de la voie du pentose phosphate, qui, bien que temporairement protectrice, est insuffisante pour répondre pleinement aux besoins énergétiques et redox de cescellules 15. Si la suppression de la FAO persiste pendant la phase de réparation, l’accumulationlipidique 16 et la lipotoxicité s’ensuivent17, endommageant davantage les cellules et affaiblissant leur capacitérégénérative 18. Cet état métabolique inadaptatif peut finalement entraîner une atrophie tubulaire, une mucoviscidose, et une progression vers une maladie rénalechronique 19.
Cette altération métabolique, due à un FAO défectueux, entrave la capacité à répondre aux fortes exigences énergétiques du tubulerénal 17,19. La déplétion d’ATP et l’accumulation lipidique qui en résultent favorisent la dysfonction mitochondriale et la génération d’espèces réactives de l’oxygène, qui activent la signalisation pro-inflammatoire et l’infiltrationleucocytaire 20,21,22. L’inflammation persistante et les lésions oxydatives déstabilisent l’intégrité mitochondriale, amplifiant la défaillance énergétique et déclenchant finalement la mort cellulaire apoptotiqueet nécrotique 23,24. Durant cette phase de lésion aiguë, des biomarqueurs spécifiques tels que la molécule de léssion rénale 1 (KIM-1) et la lipocaline associée à la gélatinase des neutrophiles (NGAL) sont régulés à la hausse, servant d’indicateurs sensibles des lésions tubulaires proximales et de l’AKI25 précoce.
Après une blessure aiguë, les mécanismes de réparation maladaptés favorisent un dépôt excessif de la matrice extracellulaire, une caractéristique de la fibroserénale 26. Parmi les composants de la matrice extracellulaire, le collagène, en particulier le collagène de type I (codé par le gène Col1a1), s’accumule dans l’espace interstitiel, contribuant à l’atrophie tubulaire et à la perte du parenchymefonctionnel 27. Ce remodelage fibreux est en grande partie provoqué par la sénescence tubulaire et la transition partielle épithéliale-mésenchymatose (pEMT) dans les cellules épithéliales tubulaires, conduisant finalement à un déclin fonctionnelrénal 28,29,30. L’apparition de la TEP rénale et de la fibrose favorise la progression de l’AKI à la maladie rénale chronique (MRC), aboutissant à une perte irréversible de la fonction rénale et à une survie compromise desgreffons 31,32.
Dans ce protocole, nous décrivons un modèle in vitro de lésions H/R utilisant des cellules épithéliales tubulaires proximales (IM-PTEC) immortalisées SV40 de souris, soumises à des conditions H/R contrôlées. La plupart des études précliniques sur l’IRI rénale se sont traditionnellement appuyées sur des modèles animaux, qui reproduisent les réponses vasculaires et immunitaires complexes du rein mais entraînent des coûts plus élevés, des préoccupations éthiques et une variabilité biologique nettement plusélevée 33,34. Ces limitations ont ralenti le développement de systèmes complémentaires basés sur des cellules, valides pour des études mécanistes détaillées et à haut débit. Cette configuration expérimentale permet la simulation reproductible de la privation et de la restauration d’oxygène, imitant les caractéristiques clés de l’IRI observées dans les reins transplantés. Le modèle sert d’outil précieux pour étudier les mécanismes cellulaires et moléculaires sous-jacents à la lésion tubulaire, à l’expression des biomarqueurs et aux réponses fibreuses dans un environnement contrôlé. De plus, elle offre une plateforme pertinente pour le dépistage et l’évaluation de stratégies thérapeutiques potentielles visant à prévenir ou atténuer les lésions ischémiques et à améliorer les résultats post-transplantation.
Protocole
Les cellules utilisées dans ce protocole n’ont pas été isolées dans le contexte de cette étude. Ils avaient été auparavant isolés et mis à disposition par d’autres chercheurs35. Par conséquent, aucune nouvelle expérimentation animale n’a été réalisée, et aucune approbation éthique n’a été requise pour les travaux présents.
1. Culture IM-PTEC
- Préparez le milieu L3 comme décrit dans le Tableau 1.
- Décongelez un flacon d’IM-PTEC. Cultivez environ 1 x 10⁶ cellules à 33 °C dans un incubateur humidifié dans des conditions standard (5 % de CO2, O 2 atmosphérique) jusqu’à 80 % de confluence (généralement atteinte après 3 jours).
REMARQUE : Les IM-PTEC sont isolés à partir de souris Immorto. Pour un protocole détaillé sur l’isolement des IM-PTEC, veuillez consulterla section 35. - Sous-culture de cellules 2 fois par semaine avec un ratio de répartition approximatif de 1:10. Pour le passage, détachez la monocouche adhésive à l’aide de trypsine-EDTA à 0,05 % pendant 2-3 minutes à 33 °C, neutralisez avec un milieu de croissance complet, puis resemez dans des flasques de culture fraîches.
| Composant | Concentration en quantité/Média final |
| DMEM/F12 | 500 mL |
| Sérum fœtal pour veaux (FCS) | 10% |
| Pénicilline | 10 000 U/mL |
| Streptomycine | 10 000 μg/mL |
| L-glutamine | 0,02 μM |
| Insuline | 5 μg/mL |
| Transferrin | 5 μg/mL |
| Sélénite sodique | 5 μg/mL |
| Triiodothyronine | 40 pg/mL |
| Hydrocortisone | 36 ng/mL |
| Facteur de croissance épidermique | 20 ng/mL |
| Interféron γ (IFN-γ) | 10 ng/mL |
Tableau 1 : Composition du médium L3.
2. Culture restrictive des IM-PTEC
- Sous-culture comme décrit à l’étape 1.3 et transférer l’ensemble de la suspension cellulaire d’un flacon T-25 d’IM-PTEC vers un flacon T-75 contenant environ 10 mL de milieu L3 sans interféron-γ (IFN-γ). Culture à 37 °C dans des conditions standards jusqu’à 80 % de confluence (généralement atteinte après 3 jours).
- Sous-culture comme décrit à l’étape 1.3 et transférer toute la suspension cellulaire d’un flacon T-75 en deux flasques T-175 contenant environ 20 mL de milieu L3 sans IFN-γ. Culture à 37 °C dans des conditions standards jusqu’à 80 % de confluence (généralement atteinte après 3 jours).
- Plaquer les IM-PTEC pour les expériences en détachant des cellules de cultures confluentes en utilisant 0,05 % de trypsine-EDTA, en les resuspendant dans un milieu complet, puis en les ensemençant à la densité souhaitée (environ 1 x 10⁵). Utiliser des plaques à 6 puits pour l’analyse de l’expression des marqueurs moléculaires, ou des microplaques de culture cellulaire à 96 puits adaptées aux études de respiration mitochondriale.
REMARQUE : Pour d’autres expériences, utilisez un format de culture approprié.- Lorsque vous placez les cellules dans une microplaque de culture cellulaire à 96 puits pour des études de respiration mitochondriale, laissez les quatre puits aux coins vides pour les utiliser comme correction de fond. Laissez la microplaque 1 heure à température ambiante avant de la placer dans l’incubateur pour permettre aux cellules de se stabiliser.
3. Procédure d’hypoxie/réoxygénation (Figure 1)
- Rafraîchir les IM-PTEC en retirant le milieu de culture et en ajoutant un nouveau milieu L3 sans IFN-γ (0,1 mL/puits pour les plaques à 96 puits ou 2 mL/puits pour les plaques à 6 puits). Placez les cellules dans un incubateur hypoxique à 1 % O2, 5 % CO2, à 37 °C pendant 48 heures.
- Retirez les cellules de l’incubateur d’hypoxie et rafraîchissez les avec un milieu L3 sans IFN-γ. Placez les cellules dans un incubateur de culture cellulaire dans des conditions standard d’O2 et 5 % deCO2 à 37 °C pendant 24 heures.
REMARQUE : Les conditions hypoxiques peuvent être atteintes soit à l’aide d’un incubateur d’hypoxie, soit d’une chambre modulaire d’hypoxie reliée à une alimentation gazeuse contrôlée.
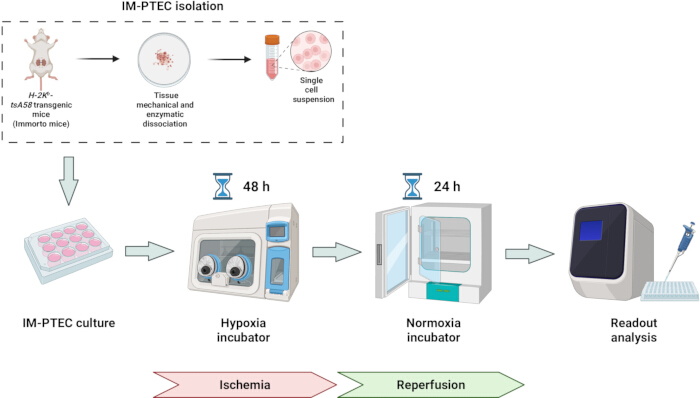
Figure 1 : Représentation schématique du modèle H/R in vitro dans des cellules épithéliales tubulaires proximales immortalisées (IM-PTECs). Les IM-PTEC dérivés de souris transgéniques H-2Kb-tsA58 (Immorto) ont été cultivés dans des conditions normoxiques, exposés à l’hypoxie (1 %O2, 48 h), puis réoxygénés (conditions standardO2, 24 h), pour une analyse de lecture. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
4. Analyse de l’expression des marqueurs moléculaires
- Isolation de l’ARN
- Ajoutez 800 μL de réactif d’isolation à ARN à chaque puits d’une plaque à 6 puits. Incubez pendant 5 minutes à température ambiante. Transférez les échantillons dans des tubes microcentrifuges de 1,5 mL sans ARNase.
- Ajoutez 200 μL de chloroforme et mélangez bien pendant 15 secondes en pipettant. Incubez à température ambiante pendant 2-3 minutes.
- Centrifugez à 12 000 x g à 4 °C pendant 12 minutes. Transférer la phase supérieure aqueuse dans un tube de microcentrifuge de 1,5 mL sans ARNase.
- Ajoutez 500 μL d’isopropanol. Incubez à température ambiante pendant 10 minutes. Centrifugez à 12 000 x g à 4 °C pendant 10 minutes.
- Jetez le surnageant et lavez la pastille avec 1 mL d’éthanol à 70 %. Centrifugez à 5 000 x g à 4 °C pendant 5 minutes. Jetez le surnageant.
- Faites sécher la granule à l’air libre. Dissoudez la pellete dans 12 μL d’eau sans ARNase.
- Chauffez l’échantillon à 56 °C pendant 15 minutes. Mesurez la concentration d’ARN dans un spectrophotomètre UV-Vis en microvolume.
REMARQUE : Gardez toujours les échantillons sur la glace entre les étapes d’incubation pour éviter la dégradation de l’ARN.
- Transcription inversée
- Sur glace, ajoutez les composants de la réaction suivants dans un tube de microcentrifuge de 0,2 mL sans ARN : 10 μL de Master Mix (2x), 2 μL d’Enzyme Mix, 1 à 5 μg d’ARN, et jusqu’à 20 μL de H2O sans nucléase.
- Mélangez doucement et éclovez à 25 °C pendant 10 minutes, puis à 50-55 °C pendant 10 minutes.
- Désactivez la réaction en chauffant à 85 °C pendant 5 minutes et laissez refroidir sur glace. Diluez l’ADN cD à 1:5 ou 1:10.
- PCR quantitative en temps réel (RT-qPCR)
- Préparez les ensembles d’amorces en les mélangeant à une concentration finale de 10 μM (Tableau 2).
- Pour chaque gène à mesurer, préparez un mélange qPCR en temps réel (RT) contenant les réactifs suivants par puits : 5 μL de mélange maître RT-qPCR ; 0,4 μL d’amorce avant 10 μM, 0,4 μL d’amorce inverse 10 μM, et 2,2 μL d’H2Osans nucléase.
- Ajoutez 8 μL du mélange RT-qPCR à chaque puits d’une plaque PCR de 384 puits. Ajoutez 2 μL d’échantillon d’ADNc à chaque puits, en laissant une goutte au bord du puits.
- Après avoir ajouté tous les échantillons, tapotez doucement la plaque jusqu’à ce que toutes les gouttes tombent dans les puits. Scellez fermement la plaque avec sa membrane. Faites tourner la plaque PCR à 384 puits.
- Mesurez dans un système RT qPCR avec le programme suivant : 98 °C pendant 30 s, 40 cycles de 98 °C pendant 10 s suivis de 60 °C pendant 30 s, et une courbe de fusion à 95 °C.
| Gène | Séquences d’amorces |
| Kim-1 | F : 5' - TGGTTGCCTTTTCTCT |
| R : 5' - TCAGCTCGGGAATGCACAA | |
| Ngal | F : 1,5 m - ATGTCACCTCCCTCCTGTCGGTCAG |
| R : 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | F : 1,5 m - GCCATCTTTCATTGGGATGGA |
| R : 1,5 m - CCCCTGACAGGACGTTGTTA | |
| Col1a1 | F : 1,57 m - CCTCAGGGTATTGCTGGACAAC |
| R : 5' - CAGAAGGTTTTTTTTGCCAGG |
Tableau 2 : Séquences d’amorce utilisées pour la RT-qPCR.
5. Évaluation de la fonction respiratoire mitochondriale
- La veille de l’analyse
- Allumez l’analyseur de taux de consommation d’oxygène (OCR)/taux d’acidification extracellulaire (ECAR) et laissez-le chauffer au moins 5 heures avant l’expérience.
- Hydratez une cartouche capteur à 37 °C dans un incubateur nonCO2 toute la nuit.
- Jour de l’analyse
- Préparer un milieu d’analyse pour une microplaque de culture cellulaire à 96 puits contenant : 33,4 mL de milieu DMEM pH 7,4 ; 0,875 mL de glucose 1 M (concentration finale 25 mM) ; 0,35 mL de pyruvate 100 mM (concentration finale 1 mM) ; et 0,35 mL de Glutamine 200 mM (concentration finale 2 mM).
- Préparez des solutions inhibitrices selon le tableau 3.
- Retirez la cartouche captrice assemblée de l’incubateur. Chargez 25 μL de chaque inhibiteur dans son port correspondant à l’aide d’une pipette multicanal et d’un guide de chargement.
- Retirez le milieu de culture cellulaire de la microplaque de culture cellulaire. Ajoutez 175 μL de milieu d’essai préchauffé (37 °C) à chaque puits à l’aide d’une pipette multicanal.
- Placez la microplaque de culture cellulaire dansun incubateur non-CO 2 à 37 °C pendant 45 à 60 minutes avant l’analyse.
- Placez la plaque d’étalonnage avec la cartouche capteur chargée dans l’analyseur OCR/ECAR pour étalonnage.
- Placez la microplaque de culture cellulaire dans l’instrument pour la mesure.
- Après l’exécution, conservez la microplaque de culture cellulaire pour quantifier la protéine totale afin de normaliser les données.
| [Cartouche] (μM) | [Médium de test] (μM) | Port A | Port B | Port C | |
| Oligomycine | 12 | 1.5 | 8,4 μL | ||
| FCCP | 9 | 1 | 6,3 μL | ||
| Antimycine A | 25 | 2.5 | 17,5 μL | ||
| Roténone | 12.5 | 1.25 | 8,75 μL | ||
| Milieu d’essai | 3,5 mL | 3,5 mL |
Tableau 3 : Solutions inhibitrices pour l’évaluation de la respiration mitochondriale.
Résultats
Une validation temporelle a d’abord été réalisée pour déterminer les conditions optimales d’hypoxie/réoxygénation (H/R) afin de reproduire une lésion ischémique chez les IM-PTEC. L’activation de la caspase-3, caractéristique de la lésion ischémie-rénale à la réperfusion tant in vivo qu’in vitro, a été utilisée comme indicateur de fidélité du modèle36,37. Nous avons constaté que 48 heures d’hypoxie suivies de 24 heures de réoxygénation ont produit la plus forte augmentation de l’activité de la caspase-3. La viabilité cellulaire, évaluée par l’essai MTT, restait comparable à celle des contrôles normoxiques dans ces conditions, indiquant que bien que la signalisation apoptotique ait été initiée, les cellules restaient viables pour des tests pharmacologiques ultérieurs (Figure supplémentaire 1). Ce protocole validé a ensuite été utilisé pour induire une lésion H/R par hypoxie/réoxygénation contrôlée des IM-PTEC.
Après l’insulte ischémique, une RT-qPCR a été réalisée pour déterminer l’expression de plusieurs marqueurs de lésions rénales (Figure 2). La RT-qPCR a montré que, dans le contexte de l’IRI, l’expression de Kim-138,39 et Ngal40,41, marqueurs connus de l’insuffisance rénale aiguë, était significativement augmentée. De plus, l’expression d’Acta2 42,43 et Col1a144,45,46, marqueurs de la pEMT/fibrose rénale, a également été augmentée. En plus d’être un marqueur rénal de pEMT/fibrose, l’expression de Col1a1 peut être corrélée à la gravité47 de la MRC. /p>
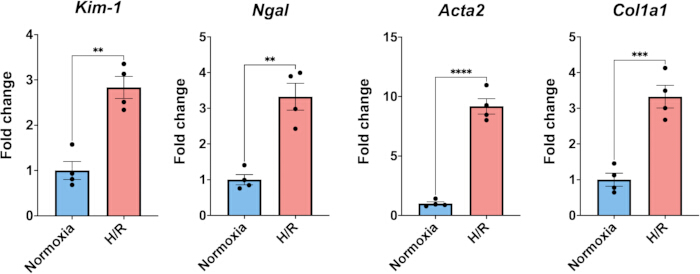
Figure 2 : Expression moléculaire des marqueurs de lésions rénales sous normoxie ou hypoxie/réoxygénation (H/R). Après H/R, l’expression des marqueurs moléculaires de lésions rénales Kim-1, Ngal, Acta2 et Col1a1 est significativement augmentée chez les IM-PTEC. Les données sont présentées comme une erreur moyenne ± standard de la moyenne (MEB) provenant de quatre réplicés biologiques par condition. La signification statistique a été évaluée à l’aide d’un test t de Student à deux queues non apparié. Les niveaux de signification sont indiqués comme suit : p < 0,05 (*), p < 0,01 (**), p < 0,001 (***), et p < 0,0001 (****). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Des études de respiration mitochondriale ont également été réalisées pour déterminer la capacité respiratoire mitochondriale après H/R (Figure 3). Grâce à la mesure du taux de consommation d’oxygène (OCR), nous avons déterminé qu’après le défi ischémique, tous les paramètres de respiration mitochondriale (respiration basale, production d’ATP, fuite de protons, respiration maximale et capacité de réserve) étaient réduits, ce qui indiquait un métabolisme mitochondrial entravé.
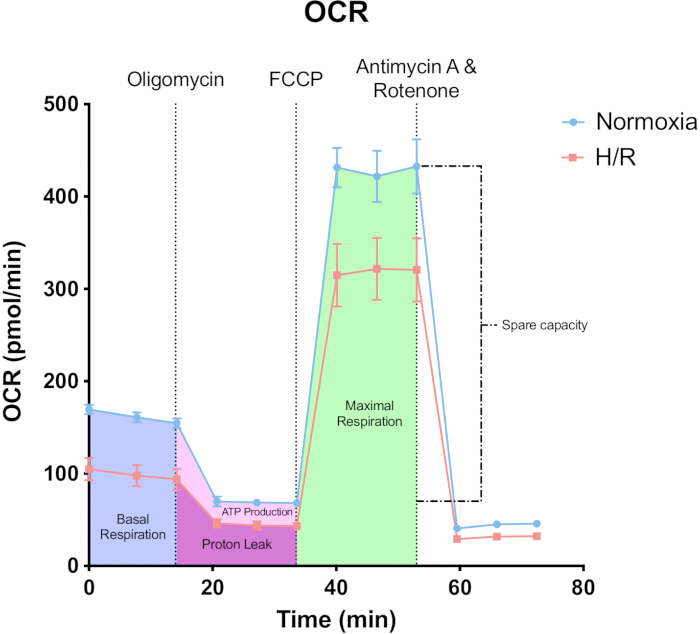
Figure 3 : OCR (taux de consommation d’oxygène) dans les IM-PTEC en conditions normoxiques ou hypoxiques. Après hypoxie/réoxygénation (H/R), les IM-PTEC présentent une diminution de la fonction respiratoire mitochondriale. La respiration mitochondriale a été évaluée en ajoutant séquentiellement des inhibiteurs de la chaîne de transport électronique : oligomycine, FCCP (cyanure de carbonyle-p-trifluorométhoxyphénylhydrazone), antimycine A et roténone. Les données sont présentées comme une erreur moyenne ± standard de la moyenne (MEB) provenant de quatre réplicés biologiques par condition. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Ces résultats confirment que le protocole H/R induit efficacement des altérations moléculaires et métaboliques compatibles avec une lésion rénale ischémique chez les IM-PTEC48,49. Ce protocole fournit donc un cadre utile pour reproduire des conditions similaires à l’ischémie rénale et à la réperfusion in vitro.
Figure supplémentaire 1. Viabilité cellulaire et activité de la caspase-3 sous des conditions de normoxie et d’hypoxie/réoxygénation (H/R). (A) Viabilité cellulaire. La viabilité cellulaire a été évaluée par test MTT après exposition à la normoxie ou à l’hypoxie/réoxygénation (H/R). Les résultats sont exprimés en viabilité relative ( %) normalisée aux témoins normoxiques. (B) Caspase fendue-3. L’activité de la caspase 3 fendue (protéine nmol/min/mg) a été quantifiée dans des cellules soumises à différentes durées de normoxie (N), d’hypoxie (H) et de reperfusion (R). Les données sont présentées en moyenne ± SEM, et chaque point représente une réplique biologique individuelle. Veuillez cliquer ici pour télécharger cette figurine.
Discussion
La plupart des données précliniques sur l’IRI rénale induite par l’IRI proviennent de modèles in vivo 50,51,52,53, en raison de l’absence de modèles in vitro établis. Cela, ajouté à la disponibilité limitée de lignées cellulaires tubulaires proximales muriennes bien caractérisées, restreint la recherche in vitro, faisant du développement de ce protocole un atout précieux. Cette méthode offre une plateforme plus accessible et reproductible pour étudier les mécanismes de lésions rénales H/R dans des conditions contrôlées, tout en réduisant le besoin d’utilisation animale.
De plus, ce protocole utilise principalement des équipements de laboratoire standards, facilitant sa mise en œuvre sans nécessiter d’instruments spécialisés et coûteux. La seule exception est la nécessité d’un incubateur d’hypoxie, généralement disponible dans les laboratoires de recherche sur le cancer pour recréer les microenvironnements tumorauxhypoxiques 54,55,56. Cette accessibilité favorise une adoption plus large et favorise la reproductibilité entre différents laboratoires.
Une considération cruciale dans ce protocole est la bonne culture des IM-PTEC. Les cellules doivent être cultivées à 33 °C et complétées par IFN-γ afin d’éviter la régulation à la baisse de l’activité SV40. Avant les procédures expérimentales, les IM-PTEC sont ensuite déplacés dans des conditions restrictives pendant 7 jours avant le début des expériences. La culture restrictive est obtenue en augmentant la température à 37 °C et en retirant l’interféron-gamma (IFN-γ) du milieu pendant une semaine, ce qui diminue l’expression de l’antigène T de grande taille SV40 — une protéine virale codée par le virus simien 40, utilisée pour immortaliser les cellules responsables descellules 35,57 afin de perdre leur statut d’immortalisation et favorisant un phénotype58 plus différencié et physiologiquement pertinent. Notamment, les IM-PTEC peuvent développer des vacuoles cytoplasmiques proéminentes après plusieurs jours de culture ; Si une vacuolation survient, l’hydroxycortisone doit être omise du milieu de culture pour prévenir ou inverser ce changement.
Bien que l’utilisation de PTEC immortalisés offre l’avantage de la stabilité et de la facilité d’entretien, les chercheurs peuvent également envisager d’utiliser des cellules épithéliales tubulaires primaires pour augmenter leur pertinence physiologique. Cependant, les PTEC primaires de souris présentent une plus grande variabilité donneur àdonneur 59,60 et ont une capacité prolifativelimitée 61,62, ce qui les rend moins adaptés aux expériences à haut débit ou à long terme. Leur utilisation peut être plus appropriée pour des études de validation ou pour l’étude de réponses spécifiques dérivées du patient
Ce protocole offre une plateforme précieuse pour étudier les mécanismes moléculaires sous-jacents aux lésions H/R, identifier et évaluer des approches thérapeutiques potentielles, et explorer les réponses cellulaires telles que l’inflammation, le stress oxydatif et les voies de mort cellulaire dans un environnementcontrôlé 63,64.
Néanmoins, une limitation importante de ce modèle est qu’il ne reproduit pas certaines caractéristiques d’ischémie observées lors de la transplantation rénale, telles que l’hypothermie et la privation de nutriments lors du stockage au froid9. Ces affections influencent fortement le métabolisme cellulaire et les schémas de lésions, et leur absence peut limiter la traduction des résultats au contexte clinique65,66.
En conclusion, ce modèle H/R in vitro chez les IM-PTEC offre une approche reproductible, accessible et éthiquement favorable pour étudier la lésion ischémie-rénale par réperfusion dans des conditions contrôlées. Bien qu’il ne retranscrive pas entièrement la complexité de l’ischémie in vivo , il représente un outil complémentaire précieux pour élucider les mécanismes cellulaires, cribler les candidats thérapeutiques et réduire la dépendance à l’expérimentation animale dans la recherche sur les reins.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun conflit d’intérêts à divulguer avec cette œuvre
Remerciements
Mariano Marin-Blazquez fait partie du « Programa de Doctorado en Ciencias de la Santé » de l’Université catholique de Murcie (UCAM). Le travail dans les groupes Ruben Rabadan-Ros et Ruben Zapata-Perez est soutenu par une subvention du Ministerio de Ciencia, Innovación y Universidades - Proyectos de Generación de Conocimiento 2023 (PID2023-147560OA-I00). Ruben Rabadán-Ros est soutenu par une subvention de la Fundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Leaders en Investigación 2024). AT est financée par une subvention NWO-FAPESP sur le vieillissement sain réalisée par Zonmw (n° 457002002) et une bourse Junior Talent de Nierstichting.
Les auteurs reconnaissent chaleureusement l’Universidad de Murcia (UM) et l’Universidad Católica de Murcia (UCAM) pour leur accès à leurs installations où les images vidéo ont été enregistrées.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Plaque qPCR à 384 puits | Biosystèmes appliqués | 4309849 | |
| Centrifugeuse | Ortoalresa | Biocen22R | |
| Chloroforme | VWR | 0757-500ML | |
| DMEM/F12 | Gibco | 21331020 | |
| Facteur de croissance épidermique | Sigma-Aldrich | E9644 | |
| Éthanol | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Bloc chauffant | Eppendorf | ThermoMixer C | |
| Hydrocortisone | Sigma-Aldrich | H0135 | |
| Incubateur d’hypoxie | Memmert | ICO 50med | |
| IFN-& gamma ; | ProspecBIo | CYT-358 | |
| Incubateur | Memmert | ICO 105 | |
| Isopropanol | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-glutamine | Gibco | 25030081 | |
| Pipette multicanal | Eppendorf | 3125000052 | |
| Incubateur nonsous2 | |||
| Amorces PCR | Eurofins Génomique | ||
| Pénicilline - Streptomycine | Gibco | 15140-122 | |
| Mix maître qPCR | NZYTech | MB22303 | |
| Système qPCR en temps réel | Biosystèmes appliqués | QuantStudio 5 | |
| Mix maître à transcription inversée | NZYTech | MB12502 | Contient un mélange enzymatique |
| Eau sans ARNase | HyClone | SH3053802 | |
| Kit de test de stress Mito pour cellule XF Seahorse | Agilent | 103015-100 | Contient de l’oligomycine, du FCCP, de l’antimycine A et de la roténone |
| Seahorse XF DMEM medium | Agilent | 103575-100 | |
| Hippocampe XF Glucose | Agilent | 03577-100 | |
| Glutamine XF Hippocampe | Agilent | 103579-100 | |
| Seahorse XF Pyruvate | Agilent | 103578-100 | |
| Analyseur Seahorse XFe96 | Agilent | S7800BR | |
| Seahorse XFe96 FluxPak | Agilent | 103792-100 | Contient une microplaque de culture cellulaire XFe96 et une cartouche de capteur XFe96 |
| Cycleur thermique | BIO-RAD | Cycleur thermique T100 | |
| Triiodothyronine | Sigma-Aldrich | T5516 | |
| Trizol | Invitrogen | 15596026 | |
| Spectrophotomètre UV-Vis | DeNovix | DS-11 |
Références
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Réimpressions et autorisations
