Ce protocole détaille un test quantitatif de défécation chez le jeune mutant RAC1/CED-10 Caenorhabditis elegans, fournissant un modèle simple pour étudier les stades de la maladie de Parkinson prodromique. Elle surmonte les limites d’autres modèles animaux et facilite l’essai de stratégies thérapeutiques ciblant la pathologie parkinsonienne précoce.
Article de méthode
Évaluation de la motilité gastro-intestinale chez les mutants RAC1/CED-10 de Caenorhabditis elegans comme outil d’étude de la maladie de Parkinson précoce
Dans cet article
Résumé
Résumé
La maladie de Parkinson (MP) est l’un des troubles neurodégénératifs les plus répandus et est diagnostiquée en fonction des symptômes moteurs qui apparaissent après une perte importante de neurones dopaminergiques. Les symptômes non moteurs, tels que la constipation, sont les plus courants et apparaissent souvent plus tôt, indiquant l’apparition de la maladie. De nombreux modèles animaux sont utilisés pour étudier les maladies neurodégénératives, mais la plupart se concentrent sur les stades avancés. Comme il est difficile de déterminer le début exact de la neurodégénérescence, aucun modèle unique ne représente pleinement la progression complète de la maladie. Les modèles mammifères sont particulièrement chronophages et coûteux en raison de leurs cycles de vie longs. En revanche, Caenorhabditis elegans (C. elegans), un nématode transparent de 1 mm avec un cycle de vie et de reproduction courts (~3 semaines et 3 jours), permet des expériences plus rapides et rentables grâce à son renouvellement de génération rapide. Le programme moteur de défécation chez C. elegans consiste en des cycles rythmiques régulés par un réseau génétique complexe auquel participent les GTPases Rho/rac, et RAC1 (CED-10 chez C. elegans) en fait partie. Nous avons montré que les mutants RAC1/CED-10 présentent une morphologie et une fonction GABAergiques compromises, ce qui entraîne des cycles de défécation perturbés. Nous présentons ici le protocole expérimental pour mesurer la constipation chez RAC1/CED-10 C. elegans à des stades précoces. En plus de servir d’outil prédictif pour étudier les premiers symptômes de la MP avant la neurodégénérescence, ce protocole pourrait également être utilisé comme point final précoce pour évaluer l’efficacité de l’intervention pharmacologique. Parce que ces changements ne sont pas spécifiques à chaque maladie, nous pensons que ce modèle constitue un outil précieux pour étudier les altérations qui surviennent tôt dans d’autres maladies.
Introduction
La maladie de Parkinson (MP) est la deuxième maladie neurodégénérative la plus courante et une cause majeure de handicapneurologique 1,2. Ses caractéristiques pathologiques incluent les corps de Lewy et les neurites de Lewy, principalement composés de α-synucléine, ainsi que de la perte neuronale dans la substance noire et d’autres régionscérébrales 3.
Cliniquement, la MP est classée comme un trouble du mouvement mais se caractérise également par un large éventail de symptômes non moteurs. Les troubles moteurs résultent de la dégénérescence des neurones dopaminergiques dans la substance noire et de la déplétion striatale de la dopamine. Cependant, les symptômes non moteurs — tels que la constipation, l’anxiété et le trouble du comportement du sommeil paradoxal4 — apparaissent souvent des années plus tôt, lors de la phase prodromique, lorsque la neurodégénérescence affecte des structures extranigrales (par exemple, tronc cérébral, système olfactif et voies autonomes).
Un défi majeur dans la recherche sur la MP est le déclenchement clinique retardé : les symptômes moteurs n’apparaissent généralement qu’aprèsla perte de 60 % à 80 % des neurones dopaminergiques, moment où l’intervention thérapeutique devient moins efficace. Des symptômes non moteurs précoces (par exemple, dysfonction autonome) pourraient servir de biomarqueurs pour la MPprodromale 6, mais leur non-spécificité complique un diagnostic définitif. Compte tenu de ces limitations, les modèles animaux sont essentiels pour étudier les premiers stades de la MP, standardiser la caractérisation des symptômes et développer des thérapies neuroprotectrices — actuellement absentes — qui pourraient ralentir ou prévenir la neurodégénérescence.
RAC1/CED-10 C. elegans mutants récapitulent les caractéristiques clés des phases précoces et avancéesde la défense de la planète 6. Nous avons précédemment démontré que l’activité RAC1 est essentielle à la survie et au fonctionnement des neurones dopaminergiques, protégeant contre la toxicité induite par la α-synucléine7. De plus, les mutants RAC1/CED-10 présentent des altérations phénotypiques ressemblant à des troubles précoces de la MP, notamment une dysrégulation du métabolisme lipidique et une dysfonction GABAergique, cette dernière se reflétant dans des cycles de défécationperturbés 6. Ces résultats établissent les mutants RAC1/CED-10 comme un modèle facile pour étudier la physiopathologie prédégénérative de la MP.
Ici, nous décrivons un test de défécation optimisé pour les mutants RAC1/CED-10, qui capture quantitativement la dysmotilité intestinale, permettant une étude systématique des caractéristiques gastro-intestinales pendant la phase prodromale de la DP.
Protocole
REMARQUE : Type sauvage : N2 Bristol a été utilisé. Modèle des premiers RAC1/CED-10 : La souche BR3579 est génotypée ced-10(n3246) et est nommée RAC1/CED-10 ici. Il s’agissait d’un généreux don du Dr Ralf Baumeister (Université Albert-Ludwig, Fribourg/Breisgau, Allemagne). Cette variante du ced-10 (N3246) est un allèle fort. La mutation ced-10(n3246) est une transition G-A, entraînant un changement de glycine 60 de CED-10 en arginine (G60R), ce qui entraîne une fonction modifiée nonnulle 8,9. La gravité de cet allèle est plus forte que celle des autres allèles CED-10 10. Les hermaphrodites ont été utilisés tout au long de l’étude.
1. Entretien des vers
- Versez 25 mL de milieu de croissance au nématode (NGM) dans des boîtes de Petri de 150 mm et laissez l’agar se solidifier. Semez chaque plaque avec 500 μL d’une culture OP50 d’Escherichia coli , en répartissant la suspension uniformément sur la surface de l’agar. Incubez les plaques à 30 °C toute la nuit pour permettre la croissance bactérienne. Préparez les assiettes 24 heures avant utilisation.
2. Obtenir des vers synchronisés au 4e stade du développement larvaire (L4)
- Effectuer des mesures de la motilité intestinale avec des vers synchronisés au stade larvaire L4. Pour obtenir des vers à ce stade de développement, suivez le protocole de blanchiment décrit ci-dessous (adapté de 11) avec de légères modifications liées au phénotype11 RAC1/CED-10.
- Ajoutez 10 adultes gravides aux plaques NGM avec Escherichia coli OP50, préparée comme à l’étape 1, pour pondre des œufs et laisser les vers se développer pendant 3 jours. Sinon, transférez un morceau d’agar d’une plaque NGM contenant une population mixte vers une nouvelle plaque NGM. Dans ce cas, le contrôle du cycle de vie n’est pas aussi précis que lorsqu’on utilise 10 adultes gravides. Après 80 h, une population mixte de C. elegans hermaphrodites avec des adultes gravides a été observée chez les espèces sauvages. Les mutants RAC1/CED-10 ont montré 6 heures de développementretardé 6, si bien que les adultes gravides sont apparus à 86 heures.
REMARQUE : Les adultes gravides sont identifiés car ils contiennent des œufs à l’intérieur. - Laver les plaques avec 10 mL de M9 pour récupérer les adultes gravides dans des tubes de 15 mL (marqués avec le génotype correspondant).
- Pelletez les vers en centrifugant pendant 2 minutes à 2000 x g (~1500 tr/min sur une centrifugeuse de table standard) à température ambiante, jetez le surnageant et ajoutez 10 mL de tampon M9 frais.
REMARQUE : Bien qu’il fonctionne à température ambiante, nous avons obtenu de meilleurs résultats en centrifugant à 10 °C. - Effectuez l’étape 2.4 3 fois ou jusqu’à ce que le tampon semble dégagé de bactéries (surnageant transparent). La présence de bactéries peut être déduite du fait que le surnageant apparaît légèrement jaunâtre et trouble.
- Ajoutez le tampon M9 à un volume total de 3,5 mL.
REMARQUE : D’après notre expérience, l’eau distillée stérile – voire l’eau du robinet – peut être utilisée à cette étape sans introduire de contamination, car le processus de blanchiment qui suit élimine tout microbe. Cependant, nous recommandons l’eau tampon M9 ou stérile pour garantir la reproductibilité dans les laboratoires. - Mélangez 0,5 mL de NaOH 5M avec 1 mL d’eau de Javel pour préparer la solution de blanchiment. Préparez cette solution fraîche juste avant utilisation. Ajoutez 1,5 mL de mélange dans le tube centrifugeuse contenant des vers.
- Agitez vigoureusement les tubes pendant le blanchiment tout en surveillant la destruction des tissus adultes au microscope disséquant. Arrêtez la réaction dès que seules des traces d’adultes restent visibles.
REMARQUE : Le traitement de blanchiment lyse les vers adultes et les larves, tandis que les embryons restent viables car leur coquille d’œufs les protège de l’eau de Javel. Cette étape est cruciale pour obtenir des survivants. Un excès de temps peut tuer tous les vers. L’utilisation d’un vortex est fortement recommandée, mais ensuite, vérifiez la destruction de la cuticule toutes les 3 minutes. Les mutants RAC1/CED-10 sont plus sensibles à l’eau de Javel. Surveillez la désintégration du tissu adulte toutes les 2 minutes et ne dépassez jamais 8 minutes. - Arrêtez la réaction en ajoutant un tampon M9 pour remplir le tube (~15 mL). Centrifugez rapidement (car le traitement peut encore être actif) pendant 1 minute à 2 000 x g et jetez le surnageant.
- Lavez la pastille trois fois en remplissant le tube avec un tampon M9 et en centrifugant comme décrit ci-dessus. Après le lavage final, retirez soigneusement le surnageant jusqu’à ce qu’il reste environ 0,1 mL.
- Ajoutez ces œufs dans un nouveau tube de 15 mL et ajoutez M9 à 5 mL. Incubez à température ambiante avec une rotation douce. Une aération appropriée doit être assurée.
REMARQUE : Nous avons obtenu de bons résultats de synchronisation en utilisant de l’eau du robinet au lieu de M9 à toutes les étapes sauf à l’étape 2.9. - Après 24 heures, arrêtez la rotation et pelletez les vers en centrifugant à 2 000 x g pendant 1 minute à 10 °C.
- Plaque 30-50 μL de vers granulés des génotypes correspondants dans des plaques NGM de 150 cm semées d’OP50 et marquées avec le génotype correspondant. Plusieurs vers RAC1/CED-10 semblaient morts, propriété intrinsèque du génotype RAC1/CED-10 (observation personnelle). En conséquence, placez le double volume de ces mutants et surveillez-les le lendemain.
REMARQUE : Le volume de vers plaqués dépend du rendement du protocole de blanchiment. Ne jamais dépasser le nombre de 250 vers par assiette, car la nourriture s’épuise plus vite et les vers pourraient entrer dans la famine. La différence de temps de développement pourrait être utilisée judicieusement pour enregistrer les premiers cycles de défécation des vers sauvages puis RAC1/CED-10 (voir section suivante). - Vérifiez la présence de vers sauvages au stade L4 du développement larvaire après 34 heures d’incubation. Le même stade de développement pour les vers RAC1/CED-10 sera atteint en 40h 6. Distinguez les vers L4 des L3 et des jeunes adultes en mesurant leur taille (~650 μm) et en vérifiant leur structure vulvale detype lunaire, 12.
3. Enregistrement de la motilité intestinale
- Lavez les plaques avec 3 mL de M9 pour récupérer les vers L4 dans deux tubes centrifugeuses de 1,5 mL.
- Centrifugez à 2 000 x g pendant 1 minute (Figure 1A), jetez le surnageant et ajoutez 1 mL de tampon M9 frais. Répétez l’étape 3 fois.
- Placez ces vers lavés dans une plaque NGM sans OP50 (Figure 1B). Avec ces étapes de lavage et de plaquage final, éliminez l’excès de bactéries.
- Transférez les vers individuellement sur des plaques à 12 puits contenant 5 μL de bactéries OP50 ensemencées (Figure 1C). Laissez les vers s’adapter pendant 1 heure à 20 °C.
REMARQUE : Ces plaques ont été semées et laissées sécher avant l’ajout de vers. Il est préférable de ne pas préparer ces plaques à l’avance, car une prolifération bactérienne peut rendre difficile la visualisation du cycle de défécation. - Placez les plaques à 12 puits avec des vers sous le microscope, localisez un ver, puis commencez l’enregistrement. Enregistrer les cycles de défécation pendant 15 minutes (15 cycles ; Figure 1D). Utilisez un objectif 5x pour l’imagerie avec une caméra offrant une résolution 12 bits et un taux d’images par seconde (fps) de 60 images par seconde. Effectuez l’acquisition vidéo à l’aide de l’outil de découpe sous Windows. Lance l’enregistrement dès que tu détectes le premier cycle de défécation.
REMARQUE : Si le microscope est connecté à un ordinateur, vous pouvez enregistrer l’écran directement avec l’outil de coupe. Nous recommandons vivement d’avoir un chronomètre informatique pour le suivi du cycle de défécation. Cliquez sur le bouton Tours à chaque fois à la fin du cycle de défécation.
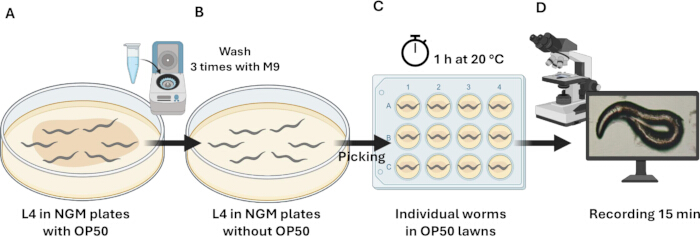
Figure 1 : Schéma du protocole expérimental de mesure de la motilité intestinale. (A) Vers synchronisés au stade L4 du développement. Ces vers ont été collectés et lavés 3 fois avec du M9. (B) Les vers lavés étaient plaqués dans des plaques NGM sans OP50. (C) Les vers étaient cueillis individuellement dans une plaque à 12 puits avec OP50 et laissés ramper pendant 1 heure à 20 °C. Pendant cette période, les vers s’adaptent au nouveau milieu et se détendent du stress du transfert. (D) Des vers individuels ont été enregistrés pendant 15 minutes pour analyser la motilité intestinale. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
4. Analyse du cycle de défécation
REMARQUE : Chez C. elegans, le programme moteur de défécation comprend des cycles rythmiques orchestrés par un réseau génétique complexe. Ce programme se compose de trois contractions musculaires séquentielles et distinctes, chacune facilement détectable au microscope de dissection. La première étape consiste en la contraction des muscles postérieurs de la paroi du corps (pBoc), suivie de la contraction des muscles antérieurs de la paroi du corps (aBoc), et enfin des contractions des muscles enfériques (EMC), qui entraînent l’expulsion du contenu intestinal (Exp)13 (Figure 2).
- Effectuer des expériences à 20 °C. Une fois toutes les vidéos enregistrées, commencez l’analyse des données.
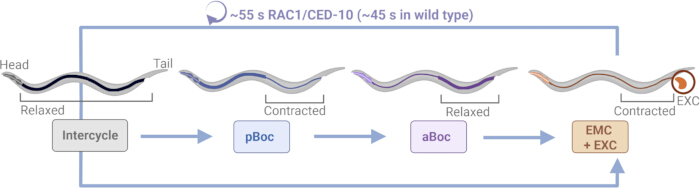
Figure 2 : Cycle de défécation chez les mutants RAC1/CED-10 de C. elegans. Une représentation diagrammatique du cycle de défécation de C. elegans chez les nématodes mutants RAC1/CED-10. pBoc désigne la contraction de la musculature de la paroi postérieure du corps ; aBoc désigne la contraction de la musculature de la paroi antérieure du corps, et EMC + EXC correspond à l’éjection du contenu intestin. Chez les animaux sauvages qui se nourrissent sans perturbation, ce programme moteur est lancé tous les 45 s avec une très granderégularité de 18. Les vers sont orientés avec la tête tournée vers la gauche et la queue vers la droite. L’excrétion (EXC) est surbrillée en orange. Ce chiffre a été modifié depuis6. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
5. Analyse vidéo
- Ouvrez une vidéo avec un programme lecteur vidéo.
REMARQUE : Nous avons utilisé Windows Media Player Legacy v12. D’autres programmes de lecteur vidéo peuvent être utilisés. - Préparez le fichier de tableur. Ouvrez le fichier Modèle fourni (Tableau Supplémentaire 1). Saisissez le nom du fichier vidéo et la taille du ver (optionnelle) dans les champs désignés, puis lancez la lecture vidéo.
- Définissez et enregistrez la première excrétion. Définissez le temps zéro comme le moment où l’enregistrement commence lorsque les vers sont placés sous le microscope. Observez la région de l’anus du ver et identifiez le premier événement d’excrétion. Notez l’heure (en s) de cet événement dans la cellule intitulée Première Excrétion du tableur.
REMARQUE : Le temps de la première excrétion variera selon les vers (par exemple, ver 1 = 5 s, ver 2 = 26 s, ver 3 = 34 s) car le moment de la dernière excrétion avant l’enregistrement est inconnu. - Enregistrez les événements d’excrétion suivants : Poursuivez la lecture et documentez chaque excrétion suivante de manière séquentielle (Excrétion 2, Excrétion 3, etc.) jusqu’à ce qu’un total de 16 excrétions aient été introduites.
- Calculer les intervalles de cycle : Le modèle détermine automatiquement l’intervalle entre les excrétions consécutives (par exemple, Excrétion 2 - Excrétion 1 ; Excrétion 3 - Excrétion 2 ; ...). Utilisez ces intervalles comme longueur du cycle.
- Déterminer le temps total du cycle : Une fois les 16 événements enregistrés, le modèle calcule le temps nécessaire pour que le ver complète 15 cycles. Cette valeur est affichée dans la cellule intitulée Temps Total du tableur. Répétez ce processus pour chaque ver.
REMARQUE : Actuellement, aucun logiciel automatisé ne détecte de manière fiable les cycles de défécation chez C. elegans. Bien que des plateformes telles que WMicrotracker soient efficaces pour quantifier les paramètres de mouvement (vitesse, distance parcourue, nombre de ver ou taillecorporelle 14,15), elles n’offrent pas la résolution nécessaire pour surveiller la région de l’anus et identifier les événements de contraction ou d’excrétion. Par conséquent, le score manuel reste nécessaire, similaire à la limitation observée dans les tests du pompage pharyngé16.
6. Mesures de la longueur du cycle
- Durée du cycle de score comme le temps entre deux excrétions consécutives. Calculez en soustrayant l’heure de fin d’un cycle de la fin du cycle suivant, comme expliqué dans le tableau 1 et l’équation 1.
Durée du cycle (n) (en secondes) = Temps d’excrétion (n+1) - Temps d’excrétion (n) Équation 1
Durée du cycle (1st) = 66 s ((excrétion temporelle 2 = 71 s) - (excrétion temporelle 1 = 5 s)) - Pour chaque ensemble de données, calculez la période moyenne du cycle de défécation, l’écart-type (DS) et l’erreur standard de la moyenne (SEM) à l’aide d’un logiciel d’analyse statistique.
7. Rythmicité ou régularité du cycle de défécation
- Le coefficient de variation (CV) est utilisé pour décrire la variabilité relative et explique comment les données sont réparties par rapport à la moyenne. Il a déjà été utilisé comme indicateur de la régularité du cycle de défécation chez C. elegans6. Calculez la CV pour chaque ver en appliquant l’équation 2.
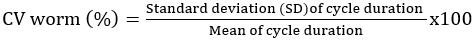 Équation 2
- Pour chaque déformation de C. elegans , calculez la moyenne CV, l’écart-type (SD) et l’erreur standard de la moyenne (SEM) à l’aide d’un logiciel d’analyse statistique.
8. Analyse statistique
- Réaliser des expériences sur trois réplications indépendantes, avec cinq vers analysés par condition. Évaluer la normalité des données à l’aide du test de Shapiro-Wilk (α=0,05), recommandé pour n < 50.
- Comme les mesures de longueur de cycle ne suivaient pas une distribution normale, l’analyse a été réalisée avec le test de Mann-Whitney non paramétrique, qui est bien adapté à la détection des différences de médianes avec de petites tailles d’échantillons. Inversement, les données CV ( %) sont normalement réparties ; les analyser à l’aide d’un test t non apparié avec la correction de Welch pour tenir compte des variances inégales.
- Effectuer toutes les analyses statistiques à l’aide d’un logiciel d’analyse statistique. Pour les expériences comprenant plus de deux souches, appliquer un test alternatif, tel que l’ANOVA unidirectionnel, avec une vérification continue de la distribution de l’échantillon.
Résultats
Le test vidéo décrit a été mis en œuvre dans le modèle RAC1/CED-10 de C. elegans de la MP précoce afin d’évaluer quantitativement la motilité intestinale. Compte tenu du retard de développement des mutants RAC1/CED-10, les populations synchronisées ont été ajustées pour assurer des comparaisons de stade appariées avec les témoins de type sauvage. Des vers individuels ont été enregistrés au stade L4, et 15 cycles consécutifs de défécation ont été analysés pour déterminer la durée et la régularité du cycle. Cette approche permet une mesure précise et à haute résolution de la fonction motrice intestinale et permet de détecter des altérations non motrices subtiles associées aux phénotypes précoces de la MP chez C. elegans.
Retard de développement chez les animaux RAC1/CED-10 pour des expériences synchronisées
Compte tenu du retard de développement observé chez lemutant 6 de C. elegans RAC1/CED-10, les expériences de synchronisation menées en parallèle avec des animaux sauvages nécessitent un ajustement temporel. Pour compenser ce délai et garantir des comparaisons correspondantes à l’étape lors de l’enregistrement vidéo, les animaux RAC1/CED-10 ont été placés 6 heures plus tôt que les contrôles de type sauvage le même jour.
Vers RAC1/CED-10 pour étudier les altérations de la défécation associées à la maladie de Parkinson
La constipation peut être détectée dès deux décennies avant le diagnostic de MP moteur, ce qui en fait l’un des premiers signes reconnaissables indiquant l’apparition de lamaladie 17. Nous avons déjà montré que le modèle RAC1/CED-10 présente des altérations non motrices au stade de développement L4, avant l’apparition de laneurodégénérescence 6, et une altération de la motilité intestinale en fait partie. Comme décrit dans le protocole, les vers individuels ont été enregistrés au stade L4. La figure 3 montre un ver RAC1/CED-10 représentatif.
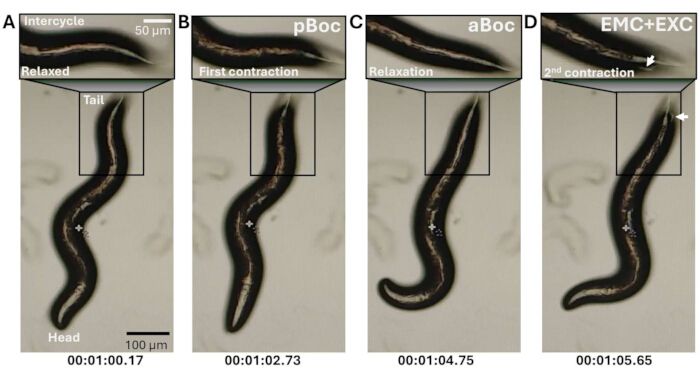
Figure 3 : Cycle de défécation de C. elegans dans les images des animaux mutants RAC1/CED-10. Cycle de défécation chez les mutants RAC1/CED-10 dans les images. Les vers sont orientés tête vers le bas. Les régions de la queue, mises en évidence dans des boîtes horizontales, montrent la séquence des étapes motrices de défécation telle que décrite dansle 6 et schématisée dans la Figure 2 : (A) tractus antérieur détendu, (B) contraction postérieure du corps (pBoc), (C) contraction antérieure du corps (aBoc), et (D) contraction du muscle entérique avec expulsion (EMC+EXC). La durée du cycle est indiquée ci-dessous. Les flèches marquent le matériau expulsé. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Les deux paramètres utilisés pour analyser la motilité intestinale sont la durée du cycle et la régularité du cycle13. Tout d’abord, nous avons mesuré 15 cycles de chaque ver, représentés à la Figure 4.
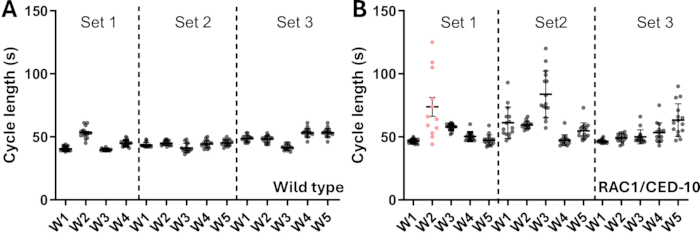
Figure 4 : Durée du cycle des espèces sauvages (A) et des individus RAC1/CED-10 (B). Les réglages 1, 2 et 3 indiquent des réplications indépendantes. Chaque point représente un cycle de défécation, et il y a 15 cycles par ver. Le W2 rose dans B a été écarté pour une analyse plus approfondie car il n’a pas complété 15 cycles. W = ver. Aucune analyse statistique n’a été réalisée dans cette figure. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Les vers individuels étaient désignés avec W (W1, W2, etc.) à travers les différentes répliques expérimentales (Set = 1, 2, 3). Pour chaque ver (W), 15 mesures ont été prises sur 15 minutes. Dans le premier ensemble d’expériences sur des animaux sauvages (Figure 4A, Ensemble 1), un ver a été exclu car il s’agissait d’un jeune adulte et non d’un L4. Dans le cas de RAC1/CED-10, un ver a été écarté car, après traitement des données, il n’a pas complété 15 cycles en 15 minutes. Pour cette raison, nous recommandons d’utiliser l’application d’horloge pour savoir combien de cycles ont été complétés, car les vers RAC1/CED-10 étaient assez irréguliers.
Sur la base de ces valeurs individuelles, la moyenne et l’écart-type de la durée du cycle pour les vers sauvages et les mutants RAC1/CED-10 ont été calculés (Tableau 1 et Figure 5). Comme précédemmentpublié 6, les vers RAC1/CED-10 présentent des cycles plus longs et moins réguliers que les vers sauvages. Les vers de type sauvage présentent des cycles plus courts (46 s ± 5 s) que les mutants RAC1/CED-10 (55 s ± 12 s).
Tableau 1 : Ensemble de données représentatif des mesures du cycle d’excrétion pour des vers individuels. Le tableau résume les données représentatives collectées sur trois animaux. Pour chaque ver, le jeu de données inclut l’identifiant du fichier vidéo, la taille corporelle (μm), les points temporels (en s) correspondant aux événements d’excrétion individuels, les durées de cycle calculées sur 15 cycles consécutifs, ainsi que la durée totale de l’enregistrement. La durée du cycle a été obtenue en soustrayant des points de temps d’excrétion consécutifs (par exemple, pour le ver VID_154028, la durée du premier cycle était de 66 s, calculée comme 71-5 s). Les entrées restantes illustrent des mesures similaires pour deux vers supplémentaires, fournissant des exemples de variabilité typique au sein de l’ensemble de données. Veuillez cliquer ici pour télécharger ce tableau.
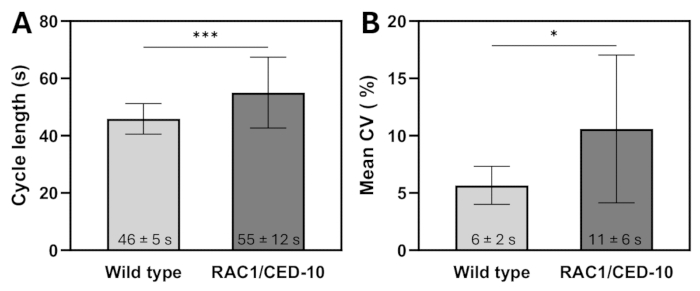
Figure 5 : Paramètres du cycle de défécation. (A) Durée du cycle de défécation et (B) Moyenne du CV des vers sauvages et RAC1/CED-10. Les données représentent la moyenne ± SD. N=3 n=5. Le test de Mann-Whitney non paramétrique a été appliqué pour la durée du cycle de défécation. Un test t non apparié avec correction de Welch a été appliqué pour les données de la moyenne CV. p < 0,001 * p < 0,05. Voir l’étape 8 pour des informations d’analyse statistique. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
La régularité du cycle est calculée à l’aide du coefficient moyen de variation (CV), qui est la moyenne des coefficients de variation pour chaque ver de l’expérience18. La figure 5B montre une plus grande variabilité chez les animaux mutants RAC1/CED-10 comparés aux animaux sauvages. La moyenne de la CV est de 6 % ± 2 % chez les types sauvages, contre 11 % ± 6 % chez les mutants RAC1/CED-10.
Tableau supplémentaire 1 : Modèle pour le calcul de la durée du cycle de défécation chez Caenorhabditis elegans. Les utilisateurs doivent entrer le nom de chaque fichier de ver dans la première colonne et peuvent éventuellement enregistrer la longueur du corps du ver. Le temps (en s) correspondant à chaque événement d’excrétion (Excrétion 1-16) est alors saisi séquentiellement, tel que déterminé à partir de la lecture vidéo. Le modèle calcule automatiquement l’intervalle entre les excrétions consécutives (excrétion temporelle N - Excrétion temporelle N-1), représentant la durée du cycle de défécation. Une fois que 16 événements d’excrétion ont été saisis, le temps total nécessaire pour compléter quinze cycles complets est automatiquement calculé et affiché dans la cellule du Temps Total (mm :ss). Veuillez cliquer ici pour télécharger ce fichier.
Discussion
C. elegans comme modèle puissant pour étudier la DP prodromique
Alors que la plupart des modèles de maladies neurodégénératives se concentrent sur la pathologie à un stadeavancé 19, étudier l’apparition précoce de la maladie reste techniquement un défi. Les modèles mammifères traditionnels, comme les souris, les rats ou les primates, sont contraints par de longs cycles de vie et des coûts élevés. Le nématode microscopique C. elegans surmonte ces limitations grâce à sa durée de vie de 3 semaines, son cycle reproductif de 3 jours et sa facilité génétique – ce qui en fait un système idéal pour des études efficaces et à grande échelle de laneurodégénérescence 6.
Le mutant RAC1/CED-10 de C. elegans offre trois avantages clés pour étudier la pathogénise précoce de la MP. Premièrement, sa résolution temporelle précise permet de suivre les événements neurodégénératifs à travers des étapes de développement biendéfinies 6. Deuxièmement, le modèle offre une polyvalence expérimentale exceptionnelle grâce à une manipulabilité génétique, des exigences d’entretien faibles et une compatibilité à haut débit 6,7. Troisièmement, parce que C. elegans ne possède pas d’homologue endogène α-synucléine, y compris dans le modèle RAC-1/CED-10, il offre un avantage précieux. Les chercheurs peuvent examiner les mécanismes précliniques de la MP sans interférence α-synucléine, ce qui marque des stadesplus avancés 6. Cela positionne le modèle comme un excellent outil pour étudier les événements pathogènes initiaux et pour une intégration ultérieure de l’expression de la α-synucléine afin d’étudier la pathogenèse avancée. Enfin, la conservation évolutive de l’homologie de CED-10 avec RAC1 humain assure une pertinence translationnelle directe 10,20.
Le modèle de C. elegans décrit ici est bien adapté aux testspharmacologiques 17,21. Comme les mutants RAC-1/CED-10 présentent un retard de développement, l’aveuglement n’est pas possible à l’étape initiale, car leur identité ne peut être dissimulée par rapport au type sauvage. Pour les criblages pharmacologiques, cependant, le biais peut être minimisé en adoptant un plan en double aveugle dans lequel l’expérimentateur collectant les données et la personne qui les analyse ignorent toutes les variables expérimentales.
La constipation touche presque tous les patients atteints de MP pendant la phase prodromal, précédant souvent les symptômes moteurs5. C. elegans offre des avantages uniques pour étudier ce dysfonctionnement gastro-intestinal précoce. Contrairement aux modèles mammifères nécessitant des interventions invasives, la transparence et la simplicité du nématode permettent une observation non invasive et en temps réel de son programme moteur de défécation hautement stéréotypé — une caractéristique essentielle pour quantifier les défauts de motilité intestinale. Le cycle de vie court et la rythmicité précise de la défécation de C. elegans permettent une analyse rapide et reproductible des troubles fonctionnels. Chez les mutants RAC1/CED-10, les écarts dans le moment de la défécation reflètent des phénotypes similaires à la constipation observés chez le prodrome6. Ces résultats fournissent un cadre fondamental pour une validation ultérieure chez les mammifères complexes (par exemple, souris, primates) tout en liant directement la signalisation RAC1 à la dysfonction entérique.
Au-delà de sa pertinence mécanistique, le modèle RAC1/CED-10 offre également une utilité translationnelle. Le test de défécation est simple, reproductible et évolutif, ce qui le rend adapté au dépistage de drogues en phase précoce. Les composés qui normalisent le temps ou la régularité du cycle peuvent être rapidement priorisés pour les tests dans des modèles de mammifères, fournissant un filtre rentable pour les candidats thérapeutiques. Parce que le dysfonctionnement gastro-intestinal est courant dans plusieurs affections neurodégénératives, ce test peut également être appliqué au-delà de la MP, servant à la fois d’outil de découverte et de pont translationnel vers la recherche préclinique.
Étapes critiques du protocole
Nous présentons une méthodologie affinée pour étudier la dysmotilité intestinale chez les mutants RAC1/CED-10, un phénotype non moteur clé pertinent pour la MP prodromal. Bien que basé sur les tests de défécationétablis 18,22, ce protocole répond aux défis uniques posés par les mutants RAC1/CED-10 afin d’assurer des résultats robustes et reproductibles.
Les principales adaptations pour les mutants RAC1/CED-10 sont les suivantes :
Ajustements de synchronisation : les mutants RAC1/CED-10 présentent une fécondité réduite par rapport aux souches de type sauvage (observation personnelle). Pour compenser le rendement plus faible de la progéniture, appliquez les ajustements suivants lors de la synchronisation : Méthode du bloc de plaque - utiliser un inocule plus grand, environ deux fois le volume utilisé pour les souches de type sauvage, pour tenir compte de la variabilité développementale accrue. Méthode adulte gravide - Transférer 15 à 20 adultes (contre 10 standards) pour garantir un nombre suffisant d’embryons pour les expériences ultérieures.
Sensibilité à l’eau de Javel : Les embryons des mutants RAC1/CED-10 présentent une sensibilité accrue au traitement à l’hypochlorite. Pour minimiser les dégâts, réduisez le temps d’exposition à l’eau de Javel de 20 % à 30 % par rapport aux protocoles de type sauvage et vérifiez l’intégrité de l’embryon de manière microscopique après traitement.
Considérations sur le retard de développement : les mutants RAC1/CED-10 mûrissent plus lentement que les verssauvages 10. Pour assurer une synchronisation correcte des enregistrements, commencez des analyses vidéo avec des vers sauvages afin d’établir une référence temporelle et d’enregistrer les mutants à des stades morphologiques correspondants (par exemple, morphologie vulvare) plutôt que par âge chronologique.
Justification du flux de travail : Réaliser des expériences initiales avec le type sauvage C. elegans contrôle la variabilité environnementale et fournit une référence pour les rythmes normaux de défécation. En raison des retards de développement chez les mutants RAC1/CED-10-10, les plannings d’enregistrement doivent être adaptés pour privilégier les comparaisons par stade (plutôt que strictement par âge correspondance).
Considérations temporelles spécifiques à la souche : Les retards de développement chez les mutants nécessitent une planification expérimentale flexible, avec un accent sur la correspondance des stades de développement entre les génotypes plutôt que de se fier uniquement à l’âge chronologique.
Limites du modèle du nématode
Bien que C. elegans manque de complexité anatomique et de redondance des voies des systèmes mammifères — une limitation pour certaines études translationnelles — sa simplicité est avantageuse pour examiner des fonctions biologiques distinctes. Se concentrer sur la motilité intestinale exploite cette force, car la physiologie rationalisée du nématode permet une analyse précise de paramètres fonctionnels spécifiques. Bien que des études complémentaires chez les mammifères soient nécessaires pour la validation thérapeutique, C. elegans offre une plateforme exceptionnelle pour l’investigation mécanistique des processus biologiquesconservés 21,23.
Notre modèle ne contient pas non plus de α-synucléine endogène, bénéfique pour étudier la maladie de Parkinson (Parkinson) précoce et préclinique, un stade où la constipation peut apparaître comme un symptômeprodromique 3. La durée du cycle de défécation fournit une mesure objective et à haut débit, mais elle ne reflète qu’un seul aspect du dysfonctionnement gastro-intestinal et n’est pas spécifique à la maladie.
Bien que ce test ne capture pas l’agrégation progressive de la α-synucléine, la neurodégénérescence complexe ou la pathologie systémique liée à l’âge observée chez la DP5 humaine, nous observons une altération de la fonction dopaminergique et GABAergique ainsi que des perturbations de la signalisationRac1 6, soulignant la pertinence mécanistique de ce modèle. Il reste donc précieux pour disséquer les mécanismes neuro-gastro-intestinaux précoces liés à la MP et les voies conservées.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
L’A.M.J. reconnaît la bourse de doctorat (FPU18/05190) dans le cadre du doctorat en biotechnologie à l’Université Autònoma de Barcelone. AL et AMJ accusent réception du financement PID2021-122645OB-100 et PID2024-1576370B-100 par MCIN/AEI//10.13039/501100011033/FEDER « Una manera de hacer Europa » ; le programme « Severo Ochoa » pour les centres d’excellence, en R&D CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, et le programme de recherche et innovation Horizon Europe de l’Union européenne sous accord de subvention n° 101057527 (NextGEM). L’EDC reconnaît son soutien grâce à la subvention APR-2024 (PMI24006), financée par la Fundació d’Estudis Supérieurs en Ciències de la Salut (FESS) et la Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Plaques multipuits Culture à 12 puits, traitées, stériles | Labbox | CCPP-012-100 | |
| Agar & nbsp ; | VWR | AAA10752-0E | Pour préparer les plaques NGM |
| Bactopeptone ; | VWR | 90000-264 | Pour préparer les plaques NGM |
| Javel ; | N’importe quel foyer | Pour le processus de blanchiment | |
| CaCl2 ; | Labkem | CACH-02P-1K0 | Pour préparer les plaques NGM |
| Centrifugeuse Sorvall ST8 | Sorvall | 15194923 | |
| Cholestérol & nbsp ; | Sigma-Aldrich | C8667-25G | Pour préparer les plaques NGM |
| Horloge | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Éthanol & nbsp ; | Panreac | 131086.1214 | Pour préparer les plaques NGM |
| Incubateur 20 & degrés ; C | Ecogen | CIR180 | |
| KH2PO4 ; | Sigma-Aldrich | P0662 | Pour préparer le tampon M9 |
| KPO4 ; | Sigma-Aldrich | P5655 + P3786 | ; KH2PO4 + K2HPO4 ; Pour préparer les plaques NGM |
| MgSO4 ; | Sigma-Aldrich | M7506 | Pour préparer les plaques NGM ; Pour préparer le tampon M9 |
| Microscope | Olympe | Olympus BX51 | |
| Na2HPO4 ; | Sigma-Aldrich | S9763 | Pour préparer le tampon M9 |
| Na2HPO4 ; | Sigma Aldrich | 7558-79-4 | Pour préparer le tampon M9 |
| NaCl | Sigma-Aldrich | S5886 | Pour préparer les plaques NGM ; Pour préparer le tampon M9 ; LB |
| NaOH ; | Sigma-Aldrich | 567530 | Pour le processus de blanchiment ; LB |
| Outil de découpe dans Windows ; | Windows | V 11.2504.42.0 | |
| Tryptone | CONDA | 1612 | LB |
| Extrait de levure | CONDA | 1702 | LB |
Références
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Réimpressions et autorisations
