Cette étude présente un protocole d’évaluation des effets de la curcumine sur le comportement des cellules de rétinoblastome par la modulation de la voie Wnt/β-caténine et l’expression de miR-22.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de recherche
Régulation médiée par miR-22 de la signalisation Wnt/β-caténine par la curcumine dans le rétinoblastome
* These authors contributed equally
Dans cet article
Résumé
Résumé
Le rétinoblastome (RB) est une tumeur maligne intraoculaire courante affectant les nourrissons et les enfants, mais son étiologie précise et sa pathogenèse restent incomplètement comprises. La curcumine, un polyphénol bioactif, inhibe la progression tumorale via la modulation médiée par les microARN de la cascade de signalisation Wnt/β-caténine. Cette étude visait à clarifier comment la curcumine médie ses effets antitumoraux dans RB en étudiant sa régulation de l’expression de miRNA-22 (miR-22) et en explorant les mécanismes moléculaires sous-jacents. Deux modèles validés de rétinoblastome (SO-RB50/WERI-Rb-1) ont été traités avec de la curcumine à des concentrations variables. Pour délimiter la régulation de la signalisation Wnt/β-caténine par miR-22, les cellules cibles ont été transduites soit avec un lentivirus mimique miR-22, soit avec un lentivirus témoin non fonctionnel. Des modèles tumoraux de xénogreffe ont été établis chez des souris en utilisant des cellules RB humaines pour observer les effets in vivo de la curcumine sur la taille de la tumeur, l’expression de miR-22 et les niveaux de protéine Wnt/β-caténine. La prolifération, l’invasion et l’apoptose cellulaires ont été évaluées à l’aide du test de coloration double CCK-8, Transwell et Annexin V-APC-PI, respectivement. Les niveaux de miR-22 ont été quantifiés par RT-PCR, et les profils d’expression de Wnt1 et de β-caténine ont été déterminés par analyse par transfert de Western. Le traitement à la curcumine a entraîné une diminution de la prolifération et de l’invasivité des cellules RB, tout en améliorant l’apoptose et en augmentant l’expression de miR-22. L’inhibition de miR-22 a diminué les effets de la curcumine sur la voie de signalisation Wnt/β-caténine. Dans les études de xénogreffe, la curcumine a considérablement réduit la taille de la tumeur et amélioré l’expression de miR-22 dans les tumeurs, supprimant efficacement la signalisation Wnt/β-caténine. Ces résultats démontrent que la curcumine inhibe la prolifération et l’invasivité des cellules RB tout en favorisant l’apoptose, principalement médiée par la régulation positive de miR-22 et l’inhibition ultérieure de la voie Wnt/β-caténine.
Introduction
Le rétinoblastome (RB), une tumeur maligne pédiatrique avec une forte agressivité apparaissant dans les tissus rétiniens, constitue une menace importante pour la santé, en particulier chez les enfants de moins de cinq ans. Les mutations génétiques, en particulier celles affectant le gène RB1, sont étroitement associées au développement de cette maladie1. Compte tenu de la prévalence importante du rétinoblastome (RB) chez les nourrissons et les enfants, associée au fait qu’environ 9000 nouveaux cas sont signalés chaque année, principalement dans les pays à faible revenu et en développement, une compréhension complète des mécanismes de la maladie est impérative pour développer des stratégies thérapeutiques efficaces et améliorer les résultats pour les patients2. Au fil des ans, la recherche sur le RB s’est principalement concentrée sur les altérations génomiques, en particulier dansl’expression 3 des miARN. Certes, miR-34a et miR-22 sont apparus comme des acteurs essentiels dans la tumorigenèse de RB 4,5. Parmi ces miARN, miR-22 a démontré son implication dans la tumorigenèse de différents cancers 6,7,8, influençant la prolifération, l’invasion et la migration 6,9. De plus, des recherches antérieures ont indiqué une réduction de l’expression de miR-22 dans les lignées cellulaires RB de souris et d’homme, soulignant ainsi son rôle potentiel dans cette maladie10.
La curcumine, l’un des principaux curcuminoïdes bioactifs présents dans les rhizomesde Curcuma longa, est un ingrédient fondamental de la médecine traditionnelle et des cuisines asiatiques. Son riche profil pharmacologique, englobant des effets antitumoraux, antimicrobiens, anti-inflammatoires, antioxydants et neuroprotecteurs, a suscité une attention considérable dans la recherche biomédicale 12,13,14. De nombreuses études ont exploré son rôle antitumoral dans RB, mettant en évidence son influence sur différentes voies de signalisation, notamment NF-κB15, JAK/STAT16 et MRP117. Par rapport à ces voies précédemment étudiées, l’axe curcumine-miR-22/Wnt/β-caténine peut offrir une approche plus ciblée et spécifique, améliorant potentiellement l’efficacité thérapeutique et réduisant les effets hors cible.
Des études antérieures ont suggéré que la curcumine a des effets antitumoraux en modulant l’axe de la voie de signalisation TET1/Wnt/β-caténine dans le carcinome hépatocellulaire18 et les cellules cancéreuses du côlon19. Cependant, on ne sait pas si la curcumine peut supprimer la progression tumorale dans les cellules RB en affectant la voie de signalisation Wnt/β-caténine. Des études récentes ont rapporté une diminution de l’expression de miR-22 dans les cellules de rétinoblastome et le carcinome épidermoïde buccal lié à des altérations de l’activité de la voie de signalisation Wnt/β-caténine20,21. Compte tenu de l’applicabilité pratique, la curcumine présente une activité antitumorale efficace dans une plage de concentration définie (10-40 μM in vitro)15,22 et peut être administrée in vivo avec des propriétés pharmacocinétiques gérables, facilitant la recherche translationnelle. Par conséquent, cette étude vise à établir un modèle RB pour déterminer si la curcumine augmente les niveaux de miR-22 et diminue par la suite l’activité de signalisation Wnt/β-caténine, fournissant une stratégie thérapeutique potentiellement plus efficace et cliniquement pertinente par rapport aux approches conventionnelles de modulation NF-κB, JAK/STAT ou MRP1.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Toutes les procédures impliquant des animaux ont été examinées et approuvées par le Comité d’éthique et de bien-être des animaux (AEWC) de l’hôpital ophtalmologique de Tianjin (n° d’approbation. NKYY-DWLL-2023-054). Les réactifs et l’équipement utilisés sont répertoriés dans la table des matériaux.
1. Culture cellulaire
Des cellules des lignées de rétinoblastome humain WERI-Rb-1 et SO-RB50 ont été cultivées dans un milieu Eagle modifié à haute teneur en glucose de Dulbecco, complété par 10 % de sérum fœtal de bovin et 1 % de pénicilline-streptomycine. Les cellules ont été ensemencées à une densité appropriée dans des flacons de culture et maintenues à 37 °C dans une atmosphère humidifiée contenant %CO2. Le milieu a été remplacé tous les 2 à 3 jours, et les cellules ont été évacuées à 70 % à 80 % de confluence à l’aide de la trypsinisation standard.
2. Expériences sur les animaux
Au total, 48 souris nues Balb/c exemptes d’agents pathogènes spécifiques (âgées de 4 semaines, 16-18 g) ont été utilisées. Les animaux ont été logés dans des cages stériles, ventilées individuellement, sous un flux d’air laminaire dans des conditions environnementales contrôlées de 26 à 28 °C et de 40 à 60 % d’humidité relative. Les aliments, l’eau et la litière ont été stérilisés avant d’être utilisés. Les souris ont eu libre accès à la nourriture et à l’eau et ont été acclimatées pendant une semaine avant les expériences.
3. Groupage et traitement des animaux
Les cellules WERI-Rb-1 et SO-RB50 transfectées de manière stable avec un mimique miR-22 ou une séquence de contrôle négative ont été utilisées pour l’inoculation de la tumeur. Les cellules en phase de croissance logarithmique ont été récoltées, remises en suspension dans une solution saline stérile tamponnée au phosphate et ajustées à une densité de 5 × 10⁷ cellules/mL. Chaque souris a reçu une injection sous-cutanée de 0,1 mL de la suspension dans le membre antérieur droit. Les souris ont été divisées au hasard en six groupes (n = 6 par groupe) : groupe modèle, groupe curcumine, groupe miR-22 mimic, miR-22 mimic + curcumine groupe, miR-22 groupe témoin négatif et miR-22 témoin négatif + groupe curcumine. Dans les groupes recevant de la curcumine, des souris ont reçu des injections intrapéritonéales de 15 mg / kg de curcumine une fois par jour en commençant immédiatement après l’inoculation des cellules tumorales. Les autres groupes ont reçu des volumes égaux de DMSO et de contrôle du véhicule.
4. Mesure du poids et du volume de la tumeur
Le taux d’absorption tumorale était d’environ 80 % à 90 % chez les souris nues xénogreffées. La taille de la tumeur a été mesurée chaque semaine à l’aide d’un pied à coulisse numérique, le diamètre le plus long étant enregistré en longueur (L) et le diamètre le plus court en largeur (W). Le volume tumoral a été calculé à l’aide de la formule V = (L × W2)/2. Des souris ont été surveillées régulièrement pour la croissance tumorale et l’état de santé, et des critères d’évaluation sans cruauté ont été appliqués si les tumeurs dépassaient 1 500 mm3 ou si les animaux montraient des signes de détresse ou de perte de poids. À la fin de la semaine 4, les souris ont été euthanasiées par inhalation de CO2 suivie d’une luxation cervicale pour assurer la mort. Les tumeurs ont été disséquées et pesées immédiatement après l’ablation.
5. Transfection de microARN
Des oligonucléotides synthétiques, y compris l’imitation miR-22, le contrôle négatif, l’anti-miR-22 (20-méthoxy-modifié), le contrôle négatif anti-miR, les siRNA spécifiques de Wnt1 et les siRNA de contrôle, ont été utilisés pour la transfection. Les cellules à 70 %-80 % de confluence ont été ensemencées dans des plaques à 6 puits un jour avant la transfection. La transfection a été effectuée à l’aide d’un réactif à base de lipides conformément aux instructions du fabricant. Pour chaque puits, les acides nucléiques ont été dilués dans un milieu sans sérum et combinés avec le réactif de transfection dans le rapport recommandé pour former des complexes, qui ont été incubés pendant 15 à 20 minutes à température ambiante avant d’être ajoutés goutte à goutte aux cellules dans un milieu complet. Le volume final par puits était de 2 ml. Après 6 h d’incubation à 37 °C avec 5 % de CO2, le milieu a été remplacé par un milieu complet frais. Les cellules ont été maintenues pendant 48 h avant les analyses subséquentes. L’efficacité de la transfection a été évaluée par PCR quantitative en temps réel. Trois ARNi différents ciblant Wnt1 (si-Wnt1-1 : 5'-CCAAGAGTCTGCAACTGGTACTCGA-3' ; si-Wnt1-2 : 5'-CGAGAAACGGCGTTTATCTTCGCTA-3' ; si-Wnt1-3 : 5'-GCTTCCTCATGAACCTTCACAACAA-3') ont été utilisés individuellement ou en mélange équimolaire afin de minimiser les effets hors cible.
6. Test du kit de comptage cellulaire-8 (CCK-8)
Les cellules ont été ensemencées dans des plaques de 96 puits à une densité de 5 × 10³ cellules par puits dans 100 μL de milieu complet et laissées adhérer pendant la nuit. Après un traitement avec les concentrations indiquées de curcumine pendant la durée spécifiée, 10 μL de solution de travail CCK-8 ont été ajoutés directement dans chaque puits. Les puits contenant uniquement du fluide servaient de témoins à blanc. Les plaques ont été incubées à 37 °C avec 5 % de CO2 pendant 4 h, après quoi l’absorbance a été mesurée à 490 nm à l’aide d’un lecteur de microplaques. La viabilité cellulaire a été calculée comme suit :
Viabilité ( %) = 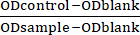 x 100
Des courbes dose-réponse ont été générées, et la concentration inhibitrice demi-maximale (CI50) de la curcumine a été déterminée en conséquence.
7. Dosage transpuits
Pour l’essai de migration, les cellules ont été suspendues dans un milieu exempt de sérum et ensemencées dans les chambres supérieures des inserts Transwell (taille des pores de 8 μm) à 3 × 10⁵ cellules dans 200 μL par insert. Les chambres inférieures ont été remplies de 600 μL de milieu complet contenant 10 % de sérum de bovin fœtal comme agent chimioattractant. Les plaques ont été incubées à 37 °C avec 5 % de CO2 pendant 24 h. Après l’incubation, les cellules non migratrices sur la surface supérieure de la membrane ont été délicatement retirées à l’aide d’un coton-tige stérile. Les inserts ont été rincés deux fois avec une solution saline tamponnée au phosphate, fixés dans du glutaraldéhyde à 5 % à 4 °C pendant 30 min, rincés à nouveau et colorés avec du violet cristallin à 0,1 % pendant 30 min à température ambiante. L’excès de colorant a été éliminé par lavage au PBS. Les membranes ont été laissées sécher à l’air libre et les cellules migrées ont été visualisées sous un microscope inversé à un grossissement de 400×. Pour la quantification, trois champs aléatoires par insert ont été imagés et le nombre moyen de cellules a été calculé.
8. Dosage de l’annexine V-APC-PI
Les cellules de chaque groupe ont été récoltées, lavées deux fois avec une solution saline tamponnée au phosphate (PBS) pré-refroidie et centrifugées à 300 × g pendant 5 minutes à 4 °C. La pastille a été remise en suspension dans 300 μL de tampon de liaison 1× à une densité d’environ 1 × 10⁶ cellules/mL. De l’annexine V-APC (5 μL) a été ajoutée et les échantillons ont été incubés pendant 15 minutes à température ambiante dans l’obscurité. Immédiatement avant la cytométrie en flux, 5 μL d’iodure de propidium ont été ajoutés à 200 μL de suspension cellulaire et incubés pendant 5 min à température ambiante. Les échantillons ont été analysés sur un cytomètre en flux à l’aide des canaux appropriés (APC et PI), et les données ont été traitées avec des stratégies de contrôle standard pour distinguer les cellules vivantes, apoptotiques précoces, apoptotiques tardives et nécrotiques.
9. Profilage qRT-PCR
L’ARN total a été extrait à l’aide d’une méthode phénol-chloroforme, et la concentration et la pureté ont été déterminées par spectrophotométrie ultraviolette. Pour la transcription inverse, 1 μg d’ARN total a été utilisé dans une réaction de 20 μL avec un mélange maître de transcription inverse selon le protocole du fabricant. La PCR quantitative a été réalisée dans des réactions de 20 μL contenant 2 μL d’ADNc, 10 μL de mélange maître SYBR Green et 0,4 μM de chaque amorce. Les réactions ont été exécutées sur un système de PCR en temps réel avec le programme de cycles suivant : 95 °C pendant 1 min, suivi de 40 cycles de 95 °C pendant 15 s et 63 °C pendant 25 s, avec acquisition de fluorescence à la fin de chaque cycle. Une analyse de la courbe de fusion a été effectuée de 55 °C à 95 °C pour vérifier la spécificité du produit. Chaque échantillon a été analysé en trois exemplaires, et l’expression relative a été quantifiée à l’aide de la méthode 2-ΔΔCt. U6 a servi de gène de référence pour la quantification des microARN, et la β-actine a été utilisée pour la normalisation de l’ARNm.
Les séquences d’amorces étaient les suivantes : U6 : 5'-CTCGCTTCGGCAGCACA-3' en avant, 5'-AACGCTTCACGAATTTGCGT-3' ; miR-22 : 5'-GCCTGAAGCTGCCAGTTGA-3' avant, 5'-GTGCAGGGTCGAGGT-3' ; Wnt1 : 5'-CGATGGTGGGGTATTGTGAAC-3', 5'-CCGGATTTTGGCGTATCAGAC-3' ; β-actine : 5'-AGTGTGACGTGGACATCCGCAAAG-3', 5'-ATCCACATCTGCTGGAAGGTGGAC-3' en marche arrière. Les données d’amplification ont été traitées à l’aide du logiciel système. Toutes les amorces ont été obtenues auprès d’un fournisseur commercial.
10. Transfert Western
Les protéines ont été extraites de cellules ou de tissus cultivés à l’aide d’un tampon de lyse contenant des inhibiteurs de protéase, et les concentrations en protéines ont été déterminées par la méthode de l’acide bicinchoninique. Des quantités égales de protéines (40 μg par voie) ont été séparées par 10 % de SDS-PAGE sous tension constante (80 V pour le gel d’empilage et 120 V pour le gel de résolution) et transférées vers des membranes de difluorure de polyvinylidène à l’aide d’un système de transfert humide à 100 V pendant 90 min. Les membranes ont été bloquées dans du lait écrémé à 5 % préparé dans une solution saline tamponnée au Tris avec 0,1 % de Tween-20 (TBST) pendant 1 h à température ambiante. Les anticorps primaires dirigés contre Wnt1, la β-caténine et la β-actine ont été dilués à 1:1000 dans du TBST contenant 1 % de lait écrémé et incubés avec les membranes pendant la nuit à 4 °C. Après trois lavages au TBST (10 min chacun), les membranes ont été incubées avec un anticorps secondaire conjugué à la peroxydase de raifort (dilution 1:5000) pendant 1 h à température ambiante. Après trois autres lavages avec TBST, les bandes de protéines ont été visualisées à l’aide d’un réactif de détection de chimiluminescence amélioré, et les signaux ont été capturés avec un système d’imagerie numérique. Les intensités de bande ont été quantifiées à l’aide du logiciel ImageJ.
11. Dosage de la luciférase
Un plasmide rapporteur de type sauvage (Wnt1-WT) contenant le 3'UTR de Wnt1 avec des sites de liaison miR-22 prédits et un rapporteur mutant (Wnt1-MUT) avec des sites de liaison perturbés ont été construits. Les cellules de rétinoblastome humain ont été ensemencées dans des plaques de 24 puits à une densité de 1 × 10 à5 cellules par puits et co-transfectées avec des plasmides rapporteurs Wnt1-WT ou Wnt1-MUT avec un mimique miR-22 ou un contrôle négatif à l’aide d’un réactif de transfection à base de lipides. Pour chaque puits, 500 ng de plasmide rapporteur et 50 nM de miARN ou de contrôle ont été utilisés. Après 48 h d’incubation à 37 °C avec 5 % de CO2, les cellules ont été lysées dans 100 μL de tampon de lyse passive. Les activités de Firefly et de Renilla luciferase ont été mesurées séquentiellement à l’aide d’un système de dosage à double rapporteur de luciférase selon le protocole du fabricant. L’activité de la luciférase a été normalisée à l’activité de la Renilla luciferase pour contrôler l’efficacité de la transfection. Chaque condition a été testée dans des puits triples et répétée dans trois répétitions biologiques indépendantes.
12. Analyse statistique
Toutes les données sont présentées sous forme de moyenne ±écart-type (ET) d’au moins trois réplicats biologiques indépendants. Les analyses statistiques ont été effectuées à l’aide d’un logiciel statistique. Les comparaisons entre plusieurs groupes ont été effectuées par analyse de variance à un facteur (ANOVA) suivie du test post hoc de Tukey. Une valeur p de <0,05 a été considérée comme statistiquement significative.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Effets anti-prolifératifs et anti-invasifs dose-dépendants de la curcumine sur les cellules de rétinoblastome humain, accompagnés de désactivation de la voie Wnt/β-caténine
Les cellules RB humaines ont été traitées avec des doses variables de curcumine sur une période de 24 heures. Les résultats ont révélé une baisse dose-dépendante de la viabilité et de l’invasion cellulaires, associée à une augmentation de l’apoptose. Plus précisément, à mesure que la concentration de curcumine augmentait de 10 à 50...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
La curcumine, un polyphénol dérivé des rhizomes de Curcuma longa, est réputée pour ses propriétés anti-inflammatoires, antiangiogéniques, anti-prolifératives et antioxydantes 23,24. De plus, il a des propriétés antitumorales, en particulier sa capacité à induire l’apoptose dans les cellules malignes25. Bien que des recherches antérieures aient mis l’accent sur les effets suppresseurs de croissance de la cu...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à déclarer.
Remerciements
la Fondation nationale des sciences naturelles de Chine (82271218) ; Fonds pour la science de l’hôpital ophtalmologique de Tianjin (Projet général ykyb1908).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Kit de coloration double Annexin V-APC/PI | Solarbio | Réf. CA1020 | évaluer quantitativement l’apoptose dans les cellules RB par cytométrie en flux |
| Kit de dosage CCK-8 | Beyotime | Réf. C0038 | Mesurer l’absorbance à 490 nm pour évaluer la capacité de prolifération cellulaire |
| Incubateur CO2 | Eppendorf | maintenir des conditions de culture optimales (37 ° ; C, 5 % de CO2 et humidité saturée) pour la propagation des cellules RB | |
| Curcumine | Sigma | Réf. C1386 | Étude des effets antitumoraux de la curcumine sur le rétinoblastome (RB) |
| Substrat chimiluminescent ECL | Bioss | Réf. C05-07004 | ; visualiser les bandes protéiques dans l’analyse par transfert Western |
| Sérum fœtal bovin (FBS) | VivaCell | C04001-500 C04002-500 | Culture cellulaire |
| Cytométrie en flux | Beckman Coulter | Gallios | Analyser quantitativement le taux d’apoptose des cellules |
| Logiciel ImageJ | Instituts nationaux de la santé | Version 6 | Analyse de la bande Western blot, évaluation des niveaux d’expression des protéines |
| Microscope inversé | Olympe | CKX53 | observer et compter les cellules invasives à 400 fois ; grossissement dans le test Transwell |
| Lipofectamine 3000 | Invitrogen | L3000015 | Transfection cellulaire |
| Lecteur de microplaques ; | Thermo | K3 | dosage immuno-enzymatique (ELISA) |
| miR-22 mimime Lentivirus | Biotechnologie Hanheng | has-miR-22 | établir une lignée cellulaire transfectée de manière stable pour l’expérimentation animale |
| Système PCR multiplex en temps réel | Bio-Rad | Le CFX384 | effectuer une RT-PCR quantitative (qRT-PCR) pour une analyse précise de l’expression des gènes |
| Pénicilline-streptomycine (PS) | Abbkine | BMC1030 | Ajouté aux milieux de culture cellulaire pour prévenir la contamination bactérienne |
| Kit d’extraction de protéines | Solarbio | BC3640-50T | isolement de protéines à partir d’échantillons cellulaires et tissulaires |
| Vecteur psiCHECK-2 | Promega | JR20110328 | construire des plasmides rapporteurs Wnt1-WT (de type sauvage) et Wnt1-MUT (mutant) pour étudier l’interaction entre miR-22 et Wnt1 3'UTR |
| Membrane PVDF | Merck | ISEQ00010 | Transfert de protéines |
| Anticorps secondaires IgG de lapin | Technologies de signalisation cellulaire | 14708 | Détection par transfert Western par liaison à l’anticorps primaire |
| Logiciel statistique SPSS | IBM | SPSS 20.0 | effectuer une analyse statistique des données expérimentales |
| SuperScript III Kit de synthèse premier brin SuperMix | Invitrogen | 11752-050 | ; transcription inverse de l’ARN en ADNc pour l’analyse ultérieure par RT-PCR |
| SYBR Premix Ex Taq II Kit | Biographie de TaKaRa | RR820A | Pour que la RT-PCR détecte quantitativement l’expression de Wnt1, &beta ;-actine et d’autres gènes cibles |
| Réactif TRIzol | Invitrogen | 12183-555 | Extraction d’ARN à partir d’échantillons cellulaires et tissulaires |
| Spectrophotomètre UV | Beckman | DU800 | déterminer la concentration et la pureté des échantillons d’ARN |
| Anticorps Wnt1 | Abcam | AB15251 | Analyse par transfert Western pour détecter l’expression de la protéine Wnt1 |
| Anticorps anti-bêta-actine | Abcam | AB8227 | utilisé comme référence interne pour normaliser la charge protéique dans l’analyse par transfert Western |
| Anticorps anti-bêta-caténine | Technologies de signalisation cellulaire | 37447 | Analyse par transfert Western pour détecter l’expression de la protéine &bêta-caténine |
Références
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.