Ce protocole décrit l'utilisation d'un système miniaturisé de bicouche lipidique planaire de Montal–Mueller avec amplification intégrée pour effectuer des enregistrements stables de canaux unitaires. La méthode est illustrée par la reconstitution d'un canal K2P synthétique purifié afin de valider les performances du système.
Article de méthode
Électrophysiologie à canal unique à l'aide d'un système miniaturisé de bicouche lipidique planaire Montal-Mueller pour l'enregistrement d'un canal K2P synthétique
Dans cet article
Résumé
Résumé
La reconstitution fonctionnelle de canaux ioniques dans des bicouches lipidiques planes offre une stratégie pour étudier l'activité des canaux au niveau de la molécule unique. Toutefois, les systèmes conventionnels de bicouche de Montal–Mueller nécessitent généralement des dispositifs expérimentaux encombrants, un assemblage manuel de la chambre et des volumes d'enregistrement relativement importants, ce qui augmente la consommation de réactifs et peut introduire des sources supplémentaires de bruit électrique dues aux câblages prolongés et aux étages d'entrée externes. Ici, nous présentons une plateforme de bicouche miniaturisée et prête à l'emploi (BLMchipMM), intégrée à un amplificateur compact, qui permet des enregistrements stables de canaux uniques avec une consommation réduite de réactifs et une manipulation simplifiée. Ce protocole décrit l'utilisation de ce système pour effectuer des mesures d'électrophysiologie sur des canaux uniques. À l'aide de ce système, nous avons reconstitué un canal K2P synthétique (ancTREK1) et l'avons utilisé comme protéine-test de principe afin de valider la reconstitution et l'enregistrement de canaux uniques. Les enregistrements de canaux uniques montrent une relation courant-tension dans des solutions symétriques de K+ sans Mg2+, avec des valeurs de conductance compatibles avec celles rapportées pour les canaux TREK1. La reconstitution réussie de ce canal de type K2P démontre l'utilité de ce système pour l'analyse de canaux uniques dans des membranes artificielles.
Introduction
La reconstitution de canaux ioniques dans des membranes bicouches lipidiques artificielles, également appelées membranes lipidiques noires (BLM), constitue l'une des techniques établies pour réaliser la caractérisation électrophysiologique de canaux ioniques au niveau de la molécule unique1. Les avantages des BLM proviennent de leur structure. En effet, une bicouche lipidique plane (PLB) est formée au sein d'un pore présent dans une surface non polaire, séparant deux solutions liquides. Ainsi, en imitant une membrane biologique, cette configuration permet l'enregistrement de l'activité des canaux ioniques dans des conditions hautement contrôlées, notamment en ce qui concerne la composition lipidique de la membrane ou les concentrations en électrolytes ou en composés chimiques, tout en restant accessible des deux côtés. Cette accessibilité permet également d'insérer directement les canaux ioniques, par exemple à partir d'une solution micellaire ou par fusion induite par des liposomes2,3.
Le premier système de membrane artificielle décrit a été créé à l’aide de la technique d’enduction4, où une goutte de lipides dissous dans un solvant organique non volatil est appliquée à une petite ouverture à l’aide d’un pinceau. L’ajout d’une solution aqueuse des deux côtés de l’ouverture conduit alors à la formation spontanée d’un double couche lipidique. Toutefois, un inconvénient majeur de cette méthode est la rétention de traces de solvant, qui peuvent affecter les propriétés de la membrane. Pour réduire la quantité de solvant organique résiduel dans les bicouches lipidiques, la méthode du repliement5 a été développée, permettant la formation de membranes lipidiques bimoléculaires (BLM) « sans solvant ». Dans cette approche, une solution lipidique dans un solvant volatil est étalée à la surface de l’eau pour former deux monocouches, puis, en élevant progressivement le niveau de la phase aqueuse au-dessus de l’ouverture, ces monocouches lipidiques se replient sur l’ouverture pour former une bicouche. Toutefois, bien que la BLM obtenue soit qualifiée de sans solvant, la formation réussie de la bicouche nécessite un prétraitement de l’ouverture par une fine couche de solvant non volatil. L’élément central requis pour ces expériences consiste en une chambre d’enregistrement comportant deux compartiments aqueux (généralement appelés cis et trans) séparés par un septum lipophile percé d’une petite ouverture (de 50 à 250 µm de diamètre) (Figure 1). Des électrodes en argent/chlorure d’argent (Ag/AgCl) sont insérées dans chacun des compartiments. Une fois immergées dans la solution électrolytique, ces électrodes établissent la connexion électrochimique entre la bicouche lipidique et l’appareil d’enregistrement. Ce dernier comprend un amplificateur à blocage de potentiel, qui permet un contrôle précis du potentiel transmembranaire et la mesure simultanée des courants ioniques traversant les protéines formant des pores intégrées dans la membrane.
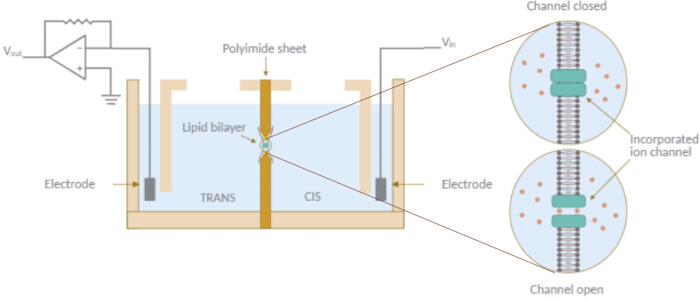
Figure 1 : Schéma du dispositif d'électrophysiologie de bicouche lipidique planaire (PLB). Schéma des composants essentiels nécessaires aux expériences de bicouche lipidique planaire (PLB). La chambre d'enregistrement est constituée de deux compartiments aqueux (cis et trans) séparés par un septum lipophile contenant une ouverture où une bicouche lipidique est formée. Des électrodes en argent/chlorure d'argent (Ag/AgCl) sont immergées dans la solution électrolytique de chaque compartiment. Une électrode applique des stimuli de tension (par exemple, des formes d'onde sinusoïdales, carrées ou triangulaires), tandis que l'autre, mise à la masse, est reliée à un convertisseur courant-tension qui transforme le courant ionique en un signal de tension proportionnel. Le signal est amplifié, éventuellement filtré, numérisé et enregistré pour une surveillance et une analyse en temps réel. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
D'autres méthodes ont également été mises au point pour former des BLM. Parmi celles-ci, une approche courante consiste à créer des bicouches lipidiques suspendues à l'extrémité d'une pipette de patch-clamp. Ainsi, la méthode d'immersion de l'extrémité6 permet la formation d'une bicouche lipidique sans solvant suspendue sur l'ouverture d'une micropipette en verre d'un diamètre d'environ 4 µm, en plongeant répétitivement l'extrémité à travers une monocouche lipidique à l'interface air-eau, capturant ainsi une monocouche unique à chaque passage. La technique de patch-clamp a également été utilisée pour des mesures unitaires dans des bicouches lipidiques. Par exemple, dans la méthode d'excision7, une pipette en verre de diamètre compris entre 10 et 80 µm est utilisée pour sceller une membrane étendue initialement sur une ouverture dans une chambre d'enregistrement. Alternativement, la méthode liposome-patch implique l'utilisation d'une vésicule préformée de taille nano- à microscopique comme BLM sans solvant8,9. En particulier, les vésicules unilamellaires géantes ont été largement utilisées pour des enregistrements unitaires selon différentes configurations de patch-clamp, incluant les modes attaché à la cellule et membrane excisée10,11.
Plusieurs plates-formes ont également émergé pour la formation parallèle et automatisée de plusieurs bicouches. L'une de ces approches est la technique de la bicouche d'interface entre gouttelettes (DIB, pour droplet interface bilayer)12, dans laquelle des gouttelettes aqueuses sont placées dans un mélange lipide-solvant. Dans cette méthode, des monocouches lipidiques s'assemblent spontanément autour des gouttelettes, et la formation d'une bicouche se produit lorsque deux gouttelettes entrent en contact. Dans certains dispositifs, les DIB peuvent être formés sur des hydrogels afin d'améliorer la stabilité de la membrane13. Une approche alternative, basée sur la formation de DIB à l'extrémité d'une pipette en verre, est la méthode de la bicouche à bulles de contact (CBB, pour contact bubble bilayer)14, où des bulles aqueuses sont introduites dans une phase huileuse à l'aide de deux micropipettes. Comme dans l'approche DIB, une bicouche lipidique se forme spontanément lorsque deux bulles recouvertes de lipides sont mises en contact. Une autre plate-forme est constituée des systèmes de BLM en réseau, qui comprennent des réseaux de pores bien définis, à l'échelle microscopique à nanoscopique, disposés selon un motif en grille. Dans ces systèmes, des bicouches lipidiques suspendues peuvent être formées manuellement — par des techniques de peinture ou de repliement, ou par rupture de vésicules liposomales15,16,17 — ou automatiquement par injection séquentielle de solutions lipidiques et tampons, lorsqu'ils sont couplés à des structures de canaux microfluidiques18,19.
Bien que de nombreuses méthodes aient été développées pour former des membranes lipidiques bilaminaires (BLM) sans solvant, cette étude se concentre sur la méthode de pliage mise en œuvre dans une plateforme miniaturisée et intégrée afin d'analyser le comportement de canaux uniques de protéines membranaires intégrées dans une bicouche lipidique artificielle. Les expériences ont été réalisées à l'aide du dispositif Elements, composé de deux éléments : l'amplificateur Nanopore Reader Elements (eNPR) et la puce BLMchipMM (Figure 2A et Figure 2B). Le premier est un amplificateur compact à faible bruit, fonctionnant en régime de potentiel imposé, qui simplifie l'espace de travail en constituant une unité complète et indépendante, éliminant ainsi la nécessité de dispositifs externes supplémentaires. La BLMchipMM est un système préassemblé et miniaturisé conçu pour la technique de Montal–Mueller et servant d'interface expérimentale. Elle comprend une chambre d'enregistrement en polyméthacrylate de méthyle (PMMA) transparent intégrée à une carte de circuit imprimé (PCB), qui comporte deux douilles destinées à accueillir des fils Ag/AgCl agissant comme électrodes pour une connexion directe à l'amplificateur. La structure centrale de la chambre est constituée d'un septum en polyimide scellé entre deux composants PMMA transparents. Le septum a une épaisseur de 50 µm, sauf dans une petite région centrale (3,78 mm2), où son épaisseur est réduite à 25 µm afin de faciliter la formation de la bicouche. Au centre de cette zone plus mince, une ouverture conique est réalisée par perçage laser, ce qui améliore la stabilité mécanique de la bicouche lipidique20,21. Quatre diamètres d'ouverture sont disponibles (50, 75, 100 et 140 µm), permettant d'ajuster la capacité membranaire (Tableau 1). Chaque composant PMMA présente une cavité en forme de C d'un volume de 110 µL, formant deux compartiments fluidiques de part et d'autre du septum en polyimide afin de contenir la solution électrolytique. Deux canaux fluidiques inclinés sont percés dans chaque bloc PMMA, sur des côtés opposés : l'un sert à insérer l'électrode Ag/AgCl, tandis que l'autre permet d'ajuster manuellement le niveau de tampon dans le réservoir à l'aide d'une pipette.
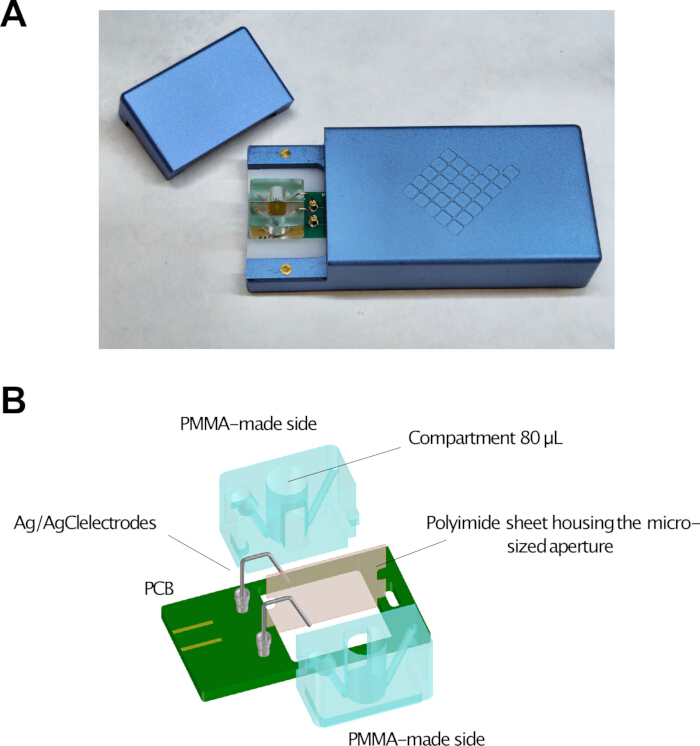
Figure 2 : Système intégré de lecture par nanopores Elements et BLMchipMM. (A) Photographie montrant le BLMchipMM inséré dans la fente dédiée de l'amplificateur Elements Nanopore Reader (eNPR). (B) Représentation schématique des composants du BLMchipMM, incluant la chambre d'enregistrement en polyméthacrylate de méthyle (PMMA), le septum en polyimide contenant l'ouverture microscopique et la carte de circuit imprimé (PCB) équipée de douilles pour les électrodes Ag/AgCl et d'une fente pour l'alignement de la chambre. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Diamètre du trou (µm) | 50 | 75 | 100 | 140 |
| Épaisseur du trou (µm) | 25 | 25 | 25 | 25 |
| Capacité typique de la membrane (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tableau 1 : Caractéristiques des formats d'ouverture disponibles pour la BLMchipMM. Diamètre des orifices, épaisseur de la septum au niveau de la région d'ouverture et valeurs typiques de la capacité membranaire pour les dispositifs BLMchipMM avec des ouvertures de 50, 75, 100 et 140 µm. Les valeurs de capacité membranaire sont indiquées pour des bicouches formées à partir de lipides 1,2-diphytanoyl-sn-glycero-3-phosphocholine.
Généralement, les chambres d'enregistrement utilisées dans les laboratoires sont soit des dispositifs fabriqués en interne, soit des appareils disponibles commercialement. Dans le premier cas, la construction du système implique l'assemblage de divers composants et le développement d'une méthode fiable pour créer l'ouverture dans le septum, ce qui peut limiter l'accessibilité pour de nombreux laboratoires. Même lorsqu'on utilise des dispositifs commerciaux, il est souvent nécessaire d'intégrer manuellement plusieurs composants avant chaque expérience. En revanche, le BLMchipMM est préassemblé et ne nécessite pas de démontage entre les expériences pour les procédures de nettoyage courantes. La même unité peut être lavée et réutilisée pour plusieurs expériences sans compromettre la qualité de la formation de la membrane, à condition que les solvants utilisés soient compatibles avec les matériaux du dispositif. Cela réduit la variabilité dépendant de l'utilisateur et minimise le risque de fuite associé aux éléments d'étanchéité manipulés manuellement. L'utilisation d'électrodes en fil d'argent externes, remplaçables et reconditionnables prolonge davantage la durée de vie utile du système, en particulier dans des conditions expérimentales qui accélèrent la consommation des électrodes.
De plus, les dispositifs fabriqués maison comportent souvent des compartiments de grand volume, ce qui augmente la quantité de composants biologiques et chimiques nécessaires aux expériences. En revanche, la miniaturisation du BLMchipMM permet de réduire au minimum les volumes expérimentaux, réduisant ainsi significativement la consommation de réactifs, de protéines et d'autres composés. Cela est particulièrement avantageux lorsqu'on travaille avec des protéines membranaires difficiles à exprimer ou à rendement faible, ou lorsque le coût élevé de la synthèse des composés testés augmente le coût global des expériences. Importamment, le BLMchipMM permet la formation de bicouches avec un minimum de solvant et supporte des configurations membranaires asymétriques, où chaque feuillet peut être composé d'espèces lipidiques différentes5,22, facilitant ainsi l'étude de la fonction des protéines membranaires dans des conditions contrôlées.
Traditionnellement, les mesures de courant sont effectuées à l'aide d'amplificateurs conçus pour les expériences de patch-clamp, qui nécessitent souvent une connexion à un numériseur séparé pour l'acquisition des données et la commande via des interfaces graphiques. Ces systèmes sont non seulement encombrants et coûteux, mais impliquent également fréquemment des procédures de configuration peu intuitives pour les utilisateurs non spécialisés. De plus, en raison de la taille de la chambre d'enregistrement et de la conception des amplificateurs standards — qui manquent généralement d'un blindage intégré pour protéger l'entrée du préamplificateur contre les interférences électrostatiques — l'utilisation d'une cage de Faraday externe est souvent nécessaire. La qualité et la mise à la terre d'une telle cage peuvent influencer considérablement le bruit du système. Le BLMchipMM, utilisé avec un amplificateur intégré compact, simplifie cette configuration en réduisant le besoin de composants externes. La numérisation du signal s'effectue à l'intérieur de l'appareil, et le boîtier du système assure un blindage qui diminue la sensibilité aux interférences électromagnétiques ambiantes.
Pour démontrer l'applicabilité de cette plateforme, le canal de type K2P ancTREK1, un membre ancestral de la sous-famille TREK déduit par analyse informatique (Figure supplémentaire 1), a été utilisé comme protéine témoin pour valider le rétablissement fonctionnel et l'enregistrement en mode de canal unitaire.2P les canaux forment des canaux de fuite potassiques dimériques qui régulent le potentiel de membrane au repos et l'excitabilité cellulaire, les canaux TREK représentant une sous-famille bien caractérisée.
Protocole
Cette étude n'a pas impliqué de participants humains, de matériaux d'origine humaine ou de sujets animaux. Par conséquent, aucune approbation éthique n'était requise conformément aux directives institutionnelles et nationales.
1. Préparer le dispositif d'électrophysiologie
- Étalonnage de l'instrument
Bien qu'un étalonnage formel ne soit pas requis car le système est préconfiguré en usine, vérifiez le bon fonctionnement du système avant la formation de la membrane.- Mesurez la résistance d'entrée dans des conditions de circuit ouvert (c'est-à-dire sans insertion du BLMchipMM). La résistance mesurée doit être ≥1 TΩ, ce qui confirme l'intégrité du signal d'entrée de l'amplificateur.
- Vérifiez la réponse du système à l'aide d'une cellule modèle contenant une résistance de 1 GΩ. La résistance mesurée doit être de 1 GΩ à ±30 % près, conformément à la tolérance de la résistance intégrée.
- Mesurez le bruit de fond dans des conditions de circuit ouvert à tension constante (0 mV). Le bruit RMS doit être ≤300 fA à une fréquence d'échantillonnage de 10 kHz et une bande passante de 5 kHz, confirmant ainsi un fonctionnement du système à faible bruit.
- Préparer les électrodes Ag/AgCl
- Pour une première utilisation, rincez les fils d'argent avec de l'éthanol puis de l'eau doublement distillée.
- Pour les fils déjà utilisés, utilisez du papier de verre très fin afin d'éliminer la couche Ag/AgCl ancienne de la surface du fil jusqu'à ce que celle-ci apparaisse uniformément argentée, brillante et sans résidu visible. Rincez ensuite avec de l'éthanol et de l'eau doublement distillée.
- Chlorurez la partie terminale des fils d'argent en les plongeant dans une solution d'hypochlorite de sodium (NaOCl) à 1 %–5 % (Figure 3A) jusqu'à ce qu'ils deviennent gris clair, généralement pendant 15 à 30 min. Surveillez au fil du temps la dégradation des fils chlorurés pendant l'utilisation, qui se manifeste par un changement de couleur, une dérive du courant de base, ou les deux.
NOTE : La chloruration peut être réalisée à l'aide d'eau de Javel ménagère courante (1 %–5 % NaOCl).
AVERTISSEMENT : N'effectuez pas la chloruration sur toute la longueur des fils. Laissez la partie terminale destinée à être insérée dans la douille du PCB non chlorurée afin d'assurer une connexion électrique adéquate.
AVERTISSEMENT : Les douilles présentes sur le PCB sont conçues pour des fils d'argent de 0,5 mm de diamètre. D'autres diamètres peuvent ne pas s'ajuster correctement ou entraîner des connexions instables.
- Assembler le BLMchipMM
- Insérez la partie terminale non chlorurée des deux fils d'argent dans les douilles du PCB. Utilisez des pinces si nécessaire pour les positionner correctement (Figure 3B).
- Placez les extrémités chlorurées des fils dans les canaux fluidiques percés dans la pièce en PMMA (Figure 3C).
- Faites doucement pivoter le BLMchipMM et fixez-le sur le PCB en insérant la dent inférieure de la chambre d'enregistrement en PMMA dans l'encoche prévue à cet effet (Figure 3D).
- Vérifiez la position des fils et assurez-vous qu'ils atteignent l'extrémité des canaux fluidiques. Si nécessaire, poussez délicatement les fils jusqu'à ce que leurs extrémités apparaissent au fond des compartiments (Figure 3E).
AVERTISSEMENT : Positionnez les fils aussi près que possible de la pièce en PMMA. Une courbure excessive pourrait entraîner un contact avec le couvercle de l'amplificateur, provoquant un court-circuit et une saturation du signal.
- Préparer les lipides et la solution d'enregistrement
- Préparez 100 µL d'une solution d'hexadécane à 1 % (v/v) dans du n-hexane à 100 % pour le traitement préalable de l'ouverture du septum. Conservez cette solution à −20 °C pendant une semaine au maximum.
- Redissolvez les lipides 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) dans du n-pentane à 100 % pour obtenir une concentration finale de 15 mg/mL. Conservez cette solution à −20 °C pendant 24 h au maximum.
- Préparez la solution électrolytique d'enregistrement à température ambiante (TA ; 20 °C–25 °C) en mélangeant 3 mL d'une solution mère de KCl à 1 M avec 150 µL d'une solution mère d'acide 4-(2-hydroxyéthyl)-1-pipérazineéthanesulfonique (HEPES) à 1 M (pH ajusté à 7,4 à l'aide de KOH à l'aide d'un pH-mètre). Ajoutez de l'eau doublement distillée pour obtenir un volume final de 15 mL. Conservez la solution à 4 °C pendant une semaine au maximum (Table 2).
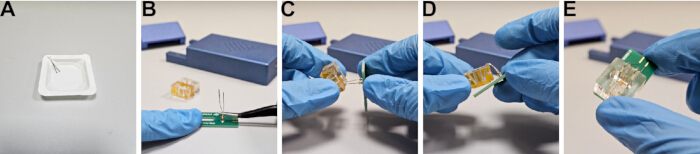
Figure 3 : Assemblage du dispositif BLMchipMM. (A) Chlorination des fils d'argent par immersion dans de l'eau de Javel. (B) Insertion des fils d'argent dans les douilles du circuit imprimé (PCB). (C) Positionnement des fils d'argent dans les canaux microfluidiques. (D) Mise en place de la chambre d'enregistrement sur le circuit imprimé. (E) Vérification du positionnement correct des électrodes dans les canaux fluidiques. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Réactif | Concentration finale | Volume |
| Eau doublement distillée | — | Compléter à 15 mL |
| Chlorure de potassium (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tableau 2 : Solution électrolytique d'enregistrement. Composition de la solution électrolytique utilisée pour les enregistrements PLB, incluant les concentrations des réactifs et les volumes de préparation. Le volume final est ajusté à 15 mL avec de l'eau doublement distillée. La solution d'enregistrement doit être filtrée à l'aide d'un filtre à seringue de 0,2 µm avant utilisation.
REMARQUE : Filtrer la solution d'enregistrement à l'aide d'un filtre à seringue de 0,2 µm avant utilisation. Les lipides DPhPC peuvent être fournis sous forme de poudre sèche ou dissous dans du chloroforme. Conserver les deux formes à −20 °C dans des vials en verre scellés sous atmosphère inerte afin d'éviter l'oxydation. Laisser la poudre sèche équilibrer à température ambiante (RT) avant ouverture. Préparer des solutions fraîches à partir de la poudre sèche et les utiliser dans les 24 heures. Si des stocks en chloroforme sont utilisés, évaporer complètement le solvant sous azote avant la resuspension, car le chloroforme résiduel peut déstabiliser la membrane.
2. Former la bicouche lipidique planaire par la méthode de Montal–Mueller
Les étapes suivantes décrivent la formation d'une membrane artificielle par la méthode du repliement, également appelée technique de Montal–Mueller5 (Figure 4). Cette approche consiste à prétraiter l'ouverture du septum avec une fine couche d'hexadécane à 1 % (v/v) dans l'hexane, à déposer une solution lipidique afin de former des monocouches à l'interface air–eau, puis à replier les monocouches au-dessus de l'ouverture lorsque le niveau de la solution électrolytique est progressivement augmenté dans les compartiments de la chambre.
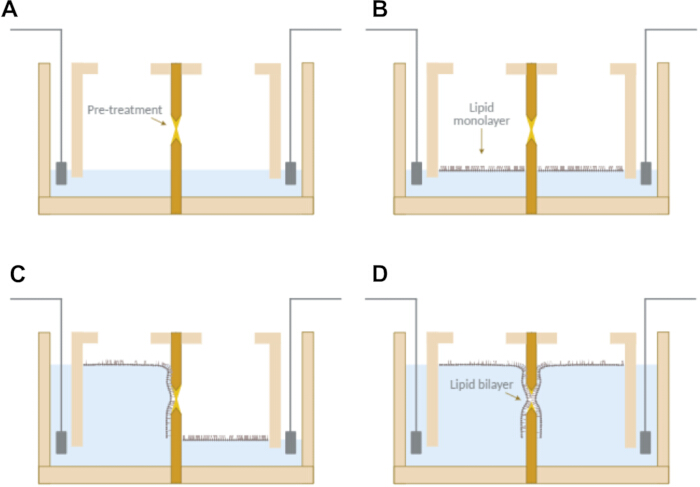
Figure 4 : Formation de BLM par la méthode de Montal–Mueller. (A) Prétraitement de l'ouverture avec 1 % d'hexadécane dans l'hexane et remplissage des compartiments jusqu'au niveau de l'ouverture. (B) Formation de monocouches lipidiques à l'interface air–eau. (C et D) Augmentation séquentielle du niveau de tampon dans chaque compartiment, entraînant le repliement des monocouches et la formation d'une bicouche lipidique sans solvant à travers l'ouverture. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
- Former la membrane
- Prétraitez l'ouverture du septum avec une solution d'hexadécane à 1 % (v/v) dans l'hexane n à l'aide d'une pipette. Appliquez environ 2 µL par côté (Figure 4A).
- Laissez le solvant s'évaporer pendant 5 min à 23 °C–25 °C et à une humidité relative de 45 %–50 %.
- Insérez le BLMchipMM assemblé dans l'amplificateur.
- Connectez l'amplificateur à l'ordinateur à l'aide d'un câble USB et ouvrez le logiciel d'acquisition.
- Réglez la plage de courant sur 2 nA et activez l'outil d'estimation RC pour surveiller la capacité et la résistance de la membrane.
NOTE : Les paramètres d'estimation RC sont configurés par défaut, mais peuvent être ajustés si nécessaire. - Remplissez chaque compartiment avec 30 ± 2 µL de solution d'enregistrement jusqu'à la marge inférieure de l'ouverture (Figure 4A).
ATTENTION : N'autorisez pas la solution d'enregistrement à mouiller la région entourant l'ouverture. - Déposez goutte à goutte 2,5 ± 0,1 µL de solution lipidique sur la surface de la phase aqueuse dans chaque compartiment (Figure 4B).
- Laissez le solvant s'évaporer pendant 2 min.
- Placez une pointe de pipette au fond d'un compartiment selon un angle d'environ 90° et ajoutez 80 ± 2 µL de solution d'enregistrement. Répétez pour le second compartiment (Figure 4C et Figure 4D).
NOTE : Les durées d'évaporation du solvant se réfèrent à des conditions de 23 °C–25 °C, d'air statique et d'humidité relative de 45 %–50 %. - Fermez le couvercle de la cage de Faraday et surveillez le signal de courant. Des valeurs de résistance de membrane supérieures à 200 GΩ indiquent une formation réussie de la bicouche et une bonne intégrité de la membrane.
NOTE : Une formation réussie de la membrane est indiquée par un signal de courant en onde carrée fluctuant autour de zéro, dont l'amplitude est proportionnelle à la capacité de la membrane (Figure 5A).
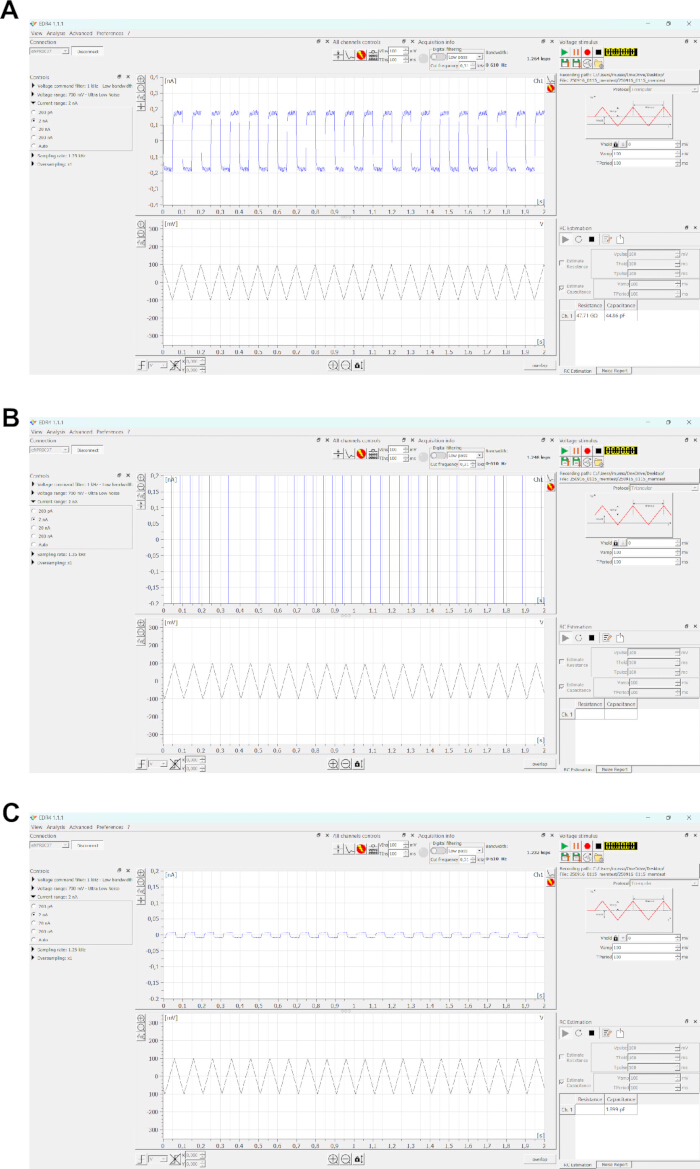
Figure 5 : Surveillance de la formation de la membrane à l’aide de l’interface du logiciel d’acquisition. (A) Tracé représentatif montrant une formation réussie de la membrane. Une forme d’onde de tension triangulaire (100 mV crête à crête, 10 Hz) produit un courant capacitif en créneau proportionnel à la capacité membranaire (~45 pF). (B) Tracé représentatif indiquant l’absence de formation de membrane, caractérisée par la saturation du signal de courant. (C) Signal capacitif correspondant à la capacité parasite en l’absence de bicouche, par exemple lorsque l’ouverture est exposée. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
REMARQUE : Un signal qui commute entre les limites de plage de courant indique une rupture de la membrane (Figure 5B).
REMARQUE : Le bruit RMS augmente avec la capacité membranaire et, par conséquent, avec la taille de l'ouverture. Les plages typiques de bruit mesurées en conditions de tension constante (0 mV), à une fréquence d'échantillonnage de 5 kHz et une largeur de bande de 2,5 kHz, sont : 0,48–2,00 pA (50 µm) ; 0,74–2,62 pA (75 µm) ; 1,00–3,52 pA (100 µm) ; et 1,59–5,27 pA (140 µm).
REMARQUE : Abaisser puis relever le niveau du tampon dans un compartiment peut favoriser la formation de la membrane si les tentatives initiales échouent.
REMARQUE : Appliquez une bulle d'air au-dessus de l'ouverture pendant environ 5 s à l'aide d'une pipette pour faciliter la formation du bicouche, si nécessaire.
REMARQUE : Abaisser le niveau du tampon en dessous de l'ouverture ou appliquer une bulle d'air peut produire un signal correspondant à une capacité parasite (Figure 5C). Si le signal obtenu ressemble à la Figure 5B, le prétraitement peut s'être révélé inefficace. Réappliquez la solution de prétraitement et les lipides, ou nettoyez le dispositif et répétez la procédure.
PRÉCAUTION : Effectuez la compensation du décalage de tension uniquement en l'absence de membrane. Si une membrane est présente, rompez-la à l'aide de la fonction ZAP avant de procéder à la compensation.
REMARQUE : Les expériences peuvent être réalisées sur un établi de laboratoire standard ; toutefois, une table anti-vibrations peut être utilisée si nécessaire.
3. Nettoyer le BLMchipMM
- Retirer la chambre d'enregistrement de la carte PCB.
- Laver les deux compartiments et les canaux fluidiques avec de l'alcool isopropylique (IPA) à 100 %.
ATTENTION : Ne pas dépasser 1 minute d'exposition à l'IPA.
ATTENTION : Ne pas utiliser de l'acétone ni de l'éthanol à 100 %, car ces solvants pourraient endommager le matériau d'étanchéité de la chambre.
REMARQUE : Vérifier la compatibilité de tout solvant supplémentaire avec le PMMA avant utilisation. - Rincer abondamment avec de l'eau doublement distillée.
- Sécher complètement la chambre d'enregistrement à l'aide d'un flux doux d'air comprimé jusqu'à ce qu'aucune goutte d'eau visible ne subsiste.
REMARQUE : Examiner la chambre à l'aide d'une loupe éclairée afin de s'assurer qu'aucun film gras résiduel n'est présent. Si nécessaire, répéter la procédure de nettoyage et de séchage.
REMARQUE : S'assurer que la chambre est parfaitement propre et sèche avant de commencer une nouvelle expérience.
4. Exprimer et purifier le canal ionique synthétique (ancTREK1)
- Préparer le construit d'expression
Les étapes suivantes décrivent les stratégies de clonage, l'expression hétérologue dans des cellules Freestyle-293F et la purification de la protéine ancTREK1.
Construire le vecteur d'expression par amplification par PCR, digestion par enzymes de restriction, ligature et transformation dans des cellules d'Escherichia coli chimiquement compétentes23,24. Exprimer la séquence ancTREK1 (Figure supplémentaire 1) à l’aide d’un vecteur mammalien contenant une étiquette GFP en position C-terminale et une étiquette His₈, permettant la détection basée sur la fluorescence25,26 et une purification par affinité en deux étapes utilisant de la résine au nickel–nitrilotriacétique (Ni2⁺-NTA)27,28,29, suivie d’une résine au nanocorps anti-GFP30,31,32. - Amplifier l'ADN ancTREK1 par PCR
- Diluer les amorces de PCR et le modèle d'ADN à des concentrations finales de 10 µM et ~20 ng/µL à l’aide d’eau doublement distillée stérile.
- Dégeler tous les réactifs sur de la glace.
- Préparer une réaction de PCR de 50 µL contenant 10 µL de tampon 5×, 2,5 µL de chaque amorce 10 µM, 2 µL de modèle d'ADN, 1 µL de dNTPs 10 mM, 0,5 µL de polymérase ADN haute fidélité et de l’eau doublement distillée stérile pour compléter le volume (Tableau 3). Mélanger doucement et centrifuger brièvement.
- Réaliser la PCR selon les conditions suivantes : dénaturation initiale à 98°C pendant 3 min ; 30 cycles de 98°C pendant 30 s, 68°C pendant 30 s et 72°C pendant 30 s ; extension finale à 72°C pendant 3 min (Tableau 4).
- Faire migrer le produit de PCR sur un gel d'agarose à 1 % (p/v) dans un tampon TAE 1× à 60 V pendant 90 min et exciser la bande correcte.
REMARQUE : Purifier les produits de PCR par une méthode d'extraction sur gel, mesurer la concentration d'ADN à 260 nm et conserver les produits de PCR purifiés à −20°C si nécessaire.
- Réaliser la digestion par enzymes de restriction
- Préparer des réactions de digestion contenant 2 µg de produit de PCR et 2 µg d'ADN plasmidique dans des tubes séparés. Ajouter 5 µL de tampon 10×, 0,5 µL d'enzyme de restriction EcoRI et 0,5 µL d'enzyme de restriction NotI, puis ajuster à 50 µL avec de l’eau doublement distillée (Tableau 5).
- Mélanger doucement et incuber à 37°C pendant 3 h.
- Inactiver les enzymes par chaleur à 65°C pendant 20 min.
- Ajouter 1 µL de phosphatase alcaline à la digestion du vecteur et incuber à 37°C pendant 1 h.
- Faire migrer les produits digérés sur un gel d'agarose à 1 % et extraire les bandes souhaitées.
REMARQUE : Purifier les fragments d'ADN par des méthodes de purification appropriées et conserver l'ADN purifié à −20°C si nécessaire.
- Réaliser la ligature et la transformation
- Préparer une réaction de ligature de 20 µL contenant le vecteur et l'insert (rapport molaire 3:1), 2 µL de tampon 10× pour la ligase et 1 µL d'enzyme ligase (Tableau 6).
- Incuber à température ambiante (TA) pendant 1 h.
- Dégeler des cellules d'E. coli chimiquement compétentes sur de la glace.
- Ajouter 5 µL du mélange de ligature à 50 µL de cellules et incuber sur de la glice pendant 20 min.
- Chauffer brièvement à 42°C pendant 1 min, puis replacer sur la glace pendant 2 min.
- Ajouter 450 µL de milieu LB et incuber à 37°C sous agitation pendant 1 h.
- Centrifuger à 3 000 × g pendant 1 min et resuspendre le culot dans 50 µL.
- Étaler sur un milieu gélosé sélectif et incuber toute la nuit à 37°C.
REMARQUE : Confirmer le clonage réussi par séquençage.
- Transfecter des cellules HEK293F
- Ensemencer 250 mL de cellules 293F à 0,5 × 10⁶ cellules/mL dans un milieu en suspension sans sérum et incuber à 37°C avec 6 % de CO₂.
- Préparer 250 µg d'ADN dans un volume final de 3 mL de milieu à faible teneur en sérum.
- Préparer 750 µg de polyéthylènimine (PEI) dans de l’eau à 1 mg/mL, ajuster le pH à 6,9–7,1 avec de la NaOH, filtrer stérilement la solution, puis ajuster le volume final à 3 mL avec du milieu à faible teneur en sérum.
- Combiner les solutions d'ADN et de PEI, mélanger doucement et incuber pendant 10 min à température ambiante.
- Ajouter le mélange goutte à goutte aux cellules.
- Ajouter du butyrate de sodium à une concentration finale de 10 mM après 4 h.
- Récupérer les cellules après 48 h par centrifugation à 500 × g pendant 15 min.
- Conserver les culots cellulaires à −80°C.
- Solubiliser les protéines membranaires
- Dégeler les culots cellulaires provenant de 100 mL de culture HEK293 sur de la glace.
- Resuspendre le culot cellulaire dans du tampon de lyse selon un rapport 1:10 (p/v) (Tableau 7).
Ajouter un détergent aux concentrations finales de 1 % de n-dodécyl-β-D-maltoside (DDM) et de 0,1 % d’hémisuccinate de cholestérol (CHS). - Incuber sous agitation rotative à 4°C pendant 2 h.
- Centrifuger à 100 000 × g pendant 1 h à 4°C.
- Récupérer le surnageant.
ATTENTION : Effectuer toutes les étapes à 4°C en utilisant des tampons prérefroidis.
- Réaliser la purification par IMAC
- Emballer 500 µL de résine Ni2⁺-NTA dans une colonne par gravité.
- Équilibrer la résine avec deux volumes de colonne (VC) de tampon d’équilibrage (Tableau 8).
- Charger l’échantillon et incuber avec un mélange doux à 10 tr/min et à 4°C pendant 3 h.
- Placer la colonne verticalement et recueillir le passage direct par écoulement gravitationnel.
- Laver la résine avec 10 VC de tampon de lavage contenant 30 mM d’imidazole.
- Éluer la protéine avec 10 VC de tampon d’élution contenant 300 mM d’imidazole.
REMARQUE : Analyser les fractions par SDS-PAGE (Figure 6). Conserver les fractions de passage direct et de lavage pour analyse. Conserver la protéine à 4°C toute la nuit si nécessaire.
- Réaliser la purification anti-GFP
- Emballer 1 mL de résine anti-GFP dans une colonne par gravité.
- Équilibrer la résine avec 2 VC de tampon 1 (Tableau 9). Charger l’éluat IMAC et incuber avec un mélange doux à 10 tr/min et à 4°C pendant 3 h.
- Placer la colonne verticalement et recueillir le passage direct par écoulement gravitationnel.
- Laver la résine successivement avec 10 VC de tampon 1, 10 VC de tampon 2 et 10 VC de tampon 1.
- Diluer la protéase HRV-3C dans 2 mL de tampon 1 selon un rapport protéase:protéine de 1:50.
- Ajouter le tampon 1 supplémenté en protéase HRV-3C à la résine, mélanger doucement et incuber toute la nuit à 4°C en position statique verticale.
- Récupérer la protéine clivée dans la fraction d’élution.
- Concentrer l’échantillon à l’aide d’un concentrateur centrifuge avec une coupure à 50 kDa à 3 000 × g et à 4°C jusqu’à atteindre un volume final d’environ 500 µL.
REMARQUE : Analyser les fractions par SDS-PAGE (Figure 7). Resuspendre périodiquement la protéine pendant la concentration pour éviter l’agrégation. Conserver la protéine purifiée à −80°C après congélation rapide. Environ 60 µg de protéine peuvent être obtenus à partir de 100 mL de culture.
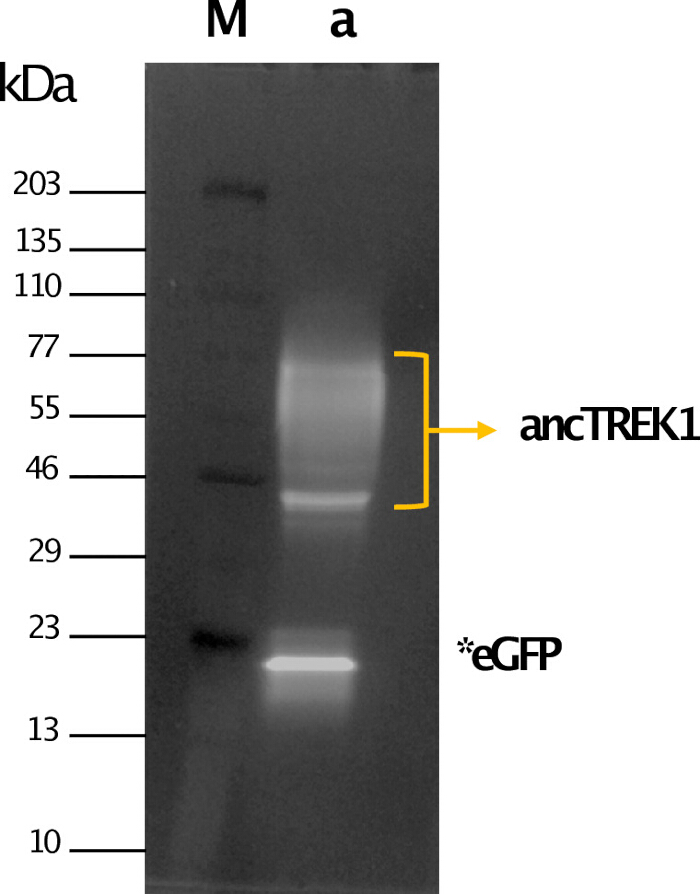
Figure 6 : purification de ancTREK1 par chromatographie d'affinité aux ions métalliques immobilisés (IMAC). Analyse par électrophorèse en gel de polyacrylamide en présence de dodécylsulfate de sodium (SDS-PAGE) des fractions élutionnées par IMAC, avec détection de la fluorescence. Piste M : marqueur de poids moléculaire. Piste a : fraction élutionnée par IMAC montrant ancTREK1 marqué par la protéine fluorescente verte (GFP) (flèche jaune). La GFP libre résultant d'un clivage autonome est indiquée (*eGFP). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
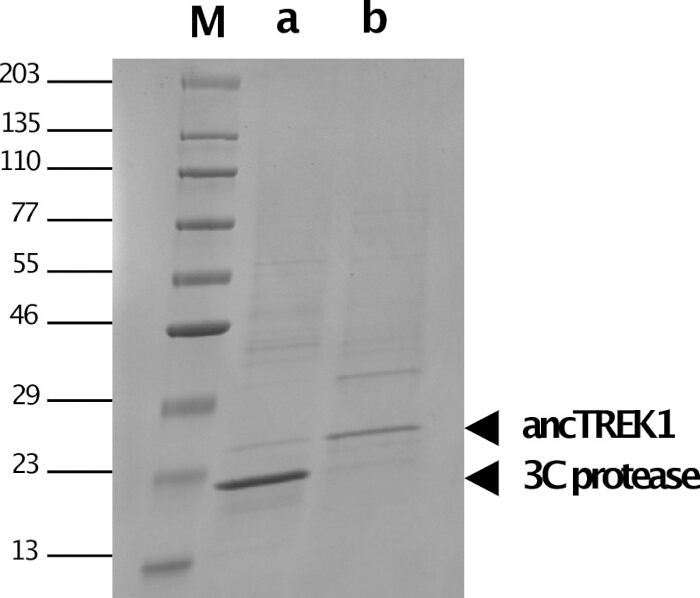
Figure 7 : purification de ancTREK1 par chromatographie d'affinité à base de nanocorps anti-GFP. Analyse par électrophorèse SDS-PAGE de fractions élutées colorées au bleu de Coomassie. Piste M : marqueur de poids moléculaire. Piste a : fraction élution anti-GFP montrant la présence de la protéase 3C. Piste b : ancTREK1 purifié après concentration. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Réactif | Volume pour une réaction de 50 µL | Concentration finale |
| Eau doublement distillée | Compléter à 50 µL | — |
| 5× PhusionTM GC buffer | 10 µL | 1× |
| dNTPs (10 mM chacun) | 1 µL | 200 µM chacun |
| Amorce sens (10 µM) | 2,5 µL | 0,5 µM |
| Amorce antisens (10 µM) | 2,5 µL | 0,5 µM |
| ADN matrice (20 ng/µL) | 2 µL | 0,8 ng/µL |
| PhusionTM High-Fidelity DNA polymérase | 0,5 µL | 0,02 U/µL |
Tableau 3 : Mise en place de la réaction de polymérisation en chaîne (PCR) pour l'amplification de ancTREK1. Composition des réactifs, volumes et concentrations finales utilisés pour l'amplification par PCR de la séquence ADN ancTREK1 à l'aide d'un système de polymérase ADN haute fidélité.
| Étape | Température | Durée | Cycles |
| Dénaturation initiale | 98°C | 3 min | 1 |
| Dénaturation | 98°C | 30 s | 30 |
| Recuit | 68°C | 30 s | 30 |
| Extension | 72°C | 30 s | 30 |
| Extension finale | 72°C | 3 min | 1 |
| Conservation | 12°C | Conservation | — |
Tableau 4 : Conditions de cyclage PCR pour l'amplification de ancTREK1. Paramètres de cyclage thermique utilisés pour l'amplification de la séquence d'ADN ancTREK1, incluant les étapes de dénaturation, d'hybridation, d'élongation et d'extension finale.
| Composant | Digestion de l'insert (50 µL) | Digestion du vecteur et déphosphorylation (50 µL) |
| ddH₂O | Qsp 50 µL | Qsp 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| ADN | Produit de PCR ancTREK1 (2 µg) | ADN du vecteur pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0,5 µL | 0,5 µL |
| Anza™ NotI | 0,5 µL | 0,5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
Tableau 5 : Digestion par enzymes de restriction de l'insert et du vecteur pour le clonage de ancTREK1. Conditions de réaction pour la digestion par restriction du produit de PCR de ancTREK1 et du vecteur d'expression à l'aide des enzymes EcoRI et NotI. La digestion du vecteur comprend une étape supplémentaire de déphosphorylation à l'aide de phosphatase alcaline afin d'empêcher l'autoligation.
| Composant | Quantité (réaction de 20 µL) |
| ddH₂O | Qsp à 20 µL |
| 10× Tampon de ligase T4 ADN | 2 µL |
| ADN du fragment ancTREK1 (843 pb) | 10 ng |
| ADN du vecteur pEG BacMam C-term 3C eGFP His8 (7673 pb) | 30 ng |
| Ligase T4 ADN | 1 µL |
Tableau 6 : Conditions de ligation vecteur-insert pour le clonage de ancTREK1. Mélange réactionnel pour la ligation de l'insert ancTREK1 dans le vecteur d'expression pEG BacMam selon un rapport molaire de 1:3 à l'aide de la ligase T4 ADN.
| Composant | Concentration finale | Quantité (jusqu'à 5 mL) |
| ddH₂O | — | Compléter à 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| Inhibiteur de protéase PMSF (100 mM) | 1 mM | 50 µL |
| Inhibiteur de protéase leupeptine (1 mg/mL) | 1 µg/mL | 5 µL |
| Inhibiteur de protéase aprotinine (1 mg/mL) | 1 µg/mL | 5 µL |
| Inhibiteur de protéase pepstatine A (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2,5 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 1 % | 500 µL |
| Hémisuccinate de cholestérol (CHS, 2 %) | 0,10 % | 250 µL |
Tableau 7 : Composition du tampon de lyse pour l'extraction des protéines membranaires. Formulation du tampon de lyse utilisée pour la solubilisation des protéines membranaires, comprenant des sels, des agents tampons, des inhibiteurs de protéases, une nucléase et des détergents. Remarque : les tampons doivent être préparés fraîchement avant utilisation.
| Solution d'équilibrage (volume total de 10 mL) | ||
| Composant | Concentration finale | Quantité |
| ddH₂O | — | Qsp 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 0,05 % | 50 µL |
| Hémisuccinate de cholestérol (CHS, 2 %) | 0,01 % | 50 µL |
| Solution de lavage (volume total de 10 mL) | ||
| Composant | Concentration finale | Quantité |
| ddH₂O | — | Qsp 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 0,05 % | 50 µL |
| Hémisuccinate de cholestérol (CHS, 2 %) | 0,01 % | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| Solution d'élution (volume total de 10 mL) | ||
| Composant | Concentration finale | Quantité |
| ddH₂O | — | Qsp 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 0,05 % | 50 µL |
| Hémisuccinate de cholestérol (CHS, 2 %) | 0,01 % | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
Tableau 8 : Compositions des tampons IMAC pour la purification de ancTREK1. Formulations des tampons d'équilibrage, de lavage et d'élution utilisés pour la purification par chromatographie d'affinité aux ions métalliques immobilisés de ancTREK1. Remarque : les solutions peuvent être conservées à 4 °C pendant jusqu'à six mois.
| Tampon 1 (volume total de 10 mL) | ||
| Composant | Concentration finale | Quantité |
| ddH₂O | — | Qsp 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 0,05 % | 50 µL |
| Hémisuccinate de cholestéryle (CHS, 2 %) | 0,01 % | 50 µL |
| Tampon 2 (volume total de 10 mL) | ||
| Composant | Concentration finale | Quantité |
| ddH₂O | — | Qsp 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodécyl-β-D-maltoside (DDM, 10 %) | 0,05 % | 50 µL |
| Hémisuccinate de cholestéryle (CHS, 2 %) | 0,01 % | 50 µL |
Tableau 9 : Compositions des tampons pour la chromatographie d'affinité par nanocorps anti-GFP. Formulations des tampons utilisés pour la purification de ancTREK1 par chromatographie d'affinité utilisant un nanocorps anti-GFP. Remarque : les solutions peuvent être conservées à 4 °C pendant jusqu'à six mois.
5. Enregistrer l'activité des canaux ioniques
- Évaluer la qualité de la membrane
- Fermer le couvercle de la cage de Faraday.
- Appliquer une forme d'onde de tension triangulaire (100 mV, 10 Hz) pour évaluer la capacité membranaire.
- Appliquer des paliers de tension (par incréments de ±20 mV jusqu'à ±200 mV) pour évaluer la résistance membranaire.
- Surveiller les valeurs de courant et de bruit.
REMARQUE : Utiliser une fréquence d'échantillonnage de 5 kHz et un filtrage passe-bas à 2,5 kHz, sauf indication contraire.
- Enregistrer l'activité de ancTREK1
- Diluer la protéine ancTREK1 dans la solution d'enregistrement à environ 2 µg/mL.
REMARQUE : Pendant la dilution, effectuer des dilutions intermédiaires dans le tampon 1 selon les besoins afin de maintenir la concentration en détergent au-dessus de sa concentration micellaire critique (CMC) avant la dilution finale dans la solution d'enregistrement. - Ajouter 1 µL de la solution protéique diluée dans la chambre cis près de l'ouverture de la septum.
REMARQUE : Le potentiel membranaire est défini comme Vcis − Vtrans. L'orientation des canaux n'a pas été directement déterminée dans cette étude ; par conséquent, les enregistrements sont décrits par rapport à la polarité de la tension appliquée plutôt qu'en fonction d'un côté membranaire attribué. - Appliquer des paliers de tension par incréments de ±20 mV jusqu'à ±120 mV.
- Surveiller les événements d'insertion des canaux.
REMARQUE : L'insertion des canaux se manifeste par des transitions discrètes du courant entre les états fermé et ouvert. En l'absence d'insertion, ajouter davantage de protéine ou reformer la membrane. Si plusieurs canaux s'insèrent, rompre la membrane et réduire la concentration en protéine.
- Diluer la protéine ancTREK1 dans la solution d'enregistrement à environ 2 µg/mL.
Résultats
Caractéristiques courant-tension (I–V) des membranes PLB
La nature hydrophobe intrinsèque des membranes bicouches les rend imperméables aux espèces chargées. Toutefois, l'application d'un champ électrique externe peut induire la formation de pores transitoires de taille nanométrique, modifiant ainsi la perméabilité et la conductance membranaires33. Afin d'évaluer la qualité des bicouches artificielles formées à partir de lipides de 1,2-diphytanoyl-sn-glycero-3-phosphocholine, la capacité, la résistance et les caractéristiques courant-tension (I–V) de la membrane ont été mesurées en l'absence de protéines insérées. Une série de paliers de tension allant de ±20 à ±200 mV (par incréments de ±20 mV) a été appliquée, et les courants transmembranaires résultants ont été enregistrés. Les données ont été échantillonnées à 5 kHz et filtrées passe-bas à 2,5 kHz.
La capacité membranaire (Cm) et la résistance membranaire (Rm) représentent des paramètres clés pour évaluer la qualité d'une bicouche. Le PLB peut être décrit par un circuit équivalent résistance-condensateur (RC), dans lequel la membrane se comporte comme un condensateur en parallèle avec une résistance34. La composante capacitive reflète la capacité de la membrane à stocker des charges, tandis que la composante résistive reflète la perméabilité aux ions. L'application d'une forme d'onde de tension triangulaire génère une réponse en courant capacitive de forme carrée, proportionnelle à la capacité membranaire selon l'équation suivante :
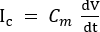 (1)
Ici, Cm est la capacité membranaire, V est la tension appliquée et t est le temps. Après la formation de la membrane, les valeurs de capacité peuvent augmenter au fil du temps en raison de l'amincissement progressif de la bicouche35. En considérant la membrane comme un condensateur plan parallèle, la capacité est liée à la surface et à l'épaisseur de la membrane selon l'équation suivante :
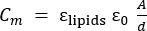 (2)
Ici, εlipids est la constante diélectrique du noyau lipidique (~2), ε0 est la permittivité du vide, A est la surface de la membrane, et d est l'épaisseur de la membrane36,37.
La résistance membranaire a été déterminée à l'aide de la loi d'Ohm33 :
 (3)
Ici, V est la tension appliquée et Rm est la résistance membranaire. En l'absence de canaux ioniques, le courant membranaire reste proche de 0 pA, ce qui correspond à des valeurs de résistance dans la gamme du gigaohm (GΩ)33.
La relation I–V présentait un comportement linéaire (ohmique) entre 0 et ±200 mV pour les dispositifs BLMchipMM à ouverture de 75 et 100 µm. Un ajustement linéaire des données a donné des valeurs de résistance membranaire de 847 ± 16 GΩ (n = 6) pour l'ouverture de 75 µm (Figure 8A, cercles) et de 980 ± 32 GΩ (n = 7) pour l'ouverture de 100 µm (Figure 8A, carrés). Les valeurs de bruit RMS, mesurées sur des segments de 3 s de l'enregistrement du courant, étaient de 3,1 ± 2 pA (n = 7) pour l'ouverture de 100 µm et de 2,6 ± 0,1 pA (n = 6) pour celle de 75 µm. La stabilité de la membrane a été évaluée en mesurant la résistance à des intervalles d'environ 2 min sur une durée totale de 1 h (Figure 8B). Les membranes bien formées sont restées stables pendant plus d'une heure, ce qui est suffisant pour la plupart des expériences électrophysiologiques. Les membranes toléraient généralement des potentiels appliqués allant jusqu'à ±200 mV sans signe d'instabilité, tandis qu'une rupture survenait entre ±220 et ±300 mV selon la bicouche individuelle. Les membranes étaient considérées comme adaptées à l'insertion de protéines lorsque les valeurs de capacité se situaient entre 40 et 60 pF pour les ouvertures de 75 µm et entre 60 et 90 pF pour celles de 100 µm, avec des valeurs de courant inférieures ou égales à 0,5 pA à 100 mV.
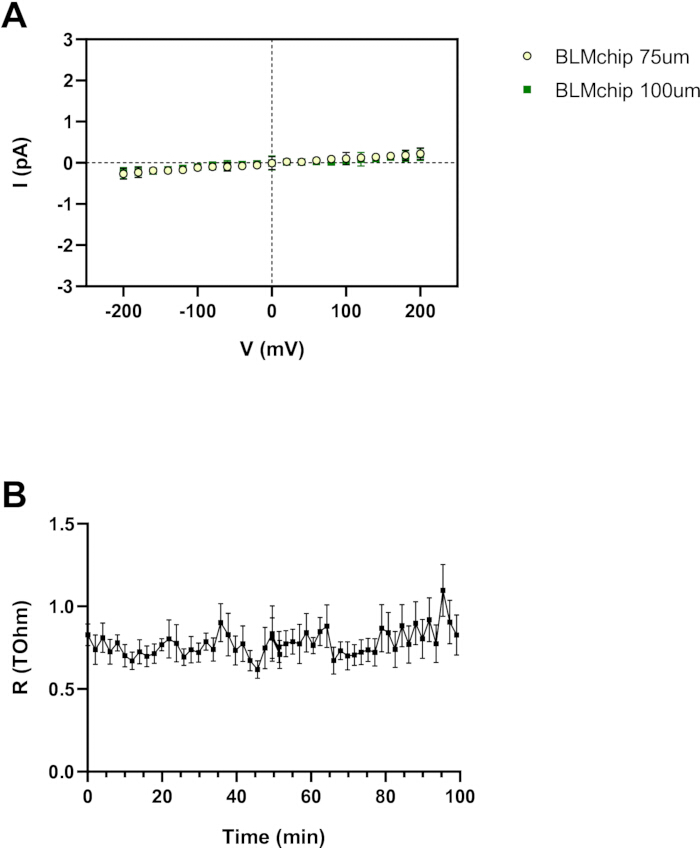
Figure 8 : Caractérisation électrique des BLP. (A) Relations courant-tension (I–V) de bicouches formées sur des ouvertures de 75 µm et 100 µm, montrant un comportement linéaire (ohmique) entre ±200 mV. Une régression linéaire fournit des valeurs de résistance membranaire de 847 ± 16 GΩ (n = 6) et 980 ± 32 GΩ (n = 7), respectivement. (B) Stabilité de la membrane évaluée en surveillant la résistance pendant 1 h à des intervalles de 2 min. Les membranes restent stables jusqu'à ±200 mV et se rompent à des tensions comprises entre ±220 et ±300 mV. Les données sont présentées comme moyenne ± erreur standard de la moyenne (ESM). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Caractérisation initiale du comportement du canal unitaire ancTREK1
L'ancTREK1 synthétique a été purifié et réintégré dans des bicouches lipidiques planaires (PLB), et l'activité unitaire a été surveillée à l'aide de protocoles de paliers de tension allant de −120 à 120 mV par incréments de 20 mV. Les enregistrements unitaires (Figure 9A et Figure 9B) ont révélé le comportement caractéristique de clignotement des canaux K2P38. À 80 mV, l'amplitude moyenne du courant était de 13,02 ± 0,78 pA (n = 5), tandis qu'à −80 mV, l'amplitude du courant augmentait à −18,72 ± 0,25 pA (n = 5) (Figure 9C). La relation courant-tension (I–V) obtenue a montré des courants unitaires mesurables à la fois aux potentiels positifs et négatifs dans des conditions symétriques de potassium à 200 mM sans Mg2+ (Figure 9D). Étant donné que les amplitudes des courants ont été estimées à partir d'histogrammes de tous les points des enregistrements acquis à 5 kHz et filtrés passe-bas à 2,5 kHz, cette relation I–V est présentée comme une preuve de principe descriptive plutôt que comme une caractérisation biophysique exhaustive.
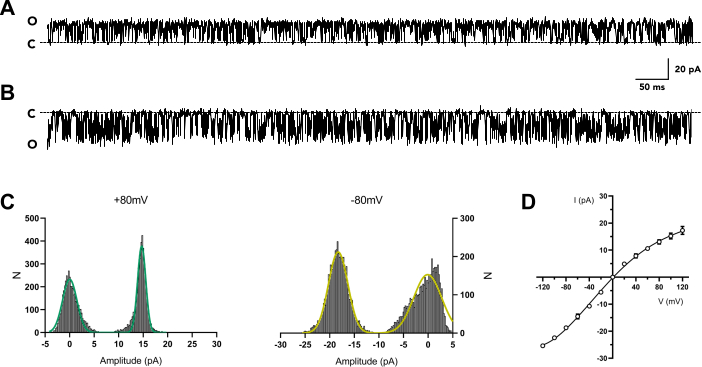
Figure 9 : Activité unitaire de l'ancTREK1 synthétique. (A et B) Tracés représentatifs des courants unitaires enregistrés à 80 mV et −80 mV, respectivement. Les lignes pointillées indiquent le niveau du canal fermé. (C) Histogrammes d'amplitude cumulés pour les potentiels positifs (à gauche) et négatifs (à droite). (D) Relation courant-tension (I–V) de l'ancTREK1 dans des conditions symétriques de 200 mM de potassium (K+), en l'absence de cations divalents. La courbe est ajustée à l'aide d'un polynôme du quatrième ordre, et les valeurs de conductance sont dérivées de la pente à ±80 mV. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
Bien que ancTREK1 ne possède pas de régions N- et C-terminales étendues comparé aux canaux TREK1 de mammifères, il est resté fonctionnellement actif après réconstitution. Contrairement au TREK1 de mammifères, qui présente des modes de conductance élevée et faible (132 ± 5 pS et 41 ± 5 pS à des potentiels positifs, respectivement)39, ancTREK1 n'affiche que le mode de grande conductance. La conductance unitaire à des potentiels positifs était de 112,8 ± 10,8 pS (80 mV, n = 5), en accord avec les valeurs rapportées pour les canaux TREK (85–130 pS dans des conditions de potassium symétriques)38,39,40,41. À des potentiels négatifs, la conductance augmente jusqu'à 205,6 ± 2,05 pS (−80 mV, n = 5), ce qui est conforme au comportement précédemment décrit pour TREK139. Notamment, ancTREK1 présente une probabilité d'ouverture normalisée (NPo) plus élevée par rapport aux mesures de TREK1 obtenues à l'aide de configurations par excision de membrane42. La relation NPo–tension montre une activité accrue du canal à des potentiels positifs, atteignant 0,78 ± 0,02 (n = 5) à 80 mV. En revanche, la NPo diminue à des potentiels négatifs, avec des valeurs de 0,53 ± 0,04 à −80 mV et de 0,28 ± 0,03 à −120 mV (Figure 10).
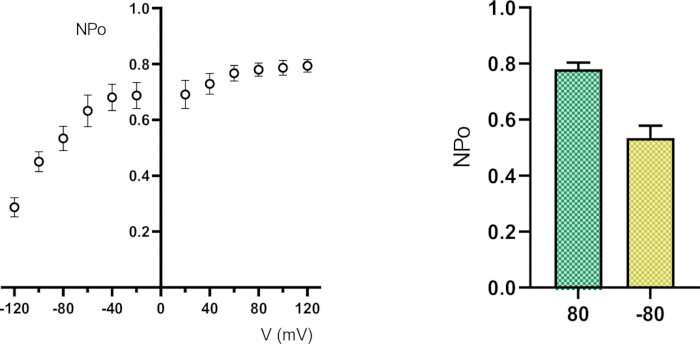
Figure 10 : Analyse de la dépendance au voltage de l'activité unitaire de ancTREK1. Probabilité d'ouverture normalisée (NPo) en fonction du potentiel membranaire (à gauche) et comparaison de la NPo à 80 mV et −80 mV (à droite), montrant une augmentation de l'ouverture du canal aux potentiels positifs. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Figure supplémentaire 1. Séquence en acides aminés du canal potassique synthétique ancestral à deux domaines poreux (K2P) (ancTREK1). La séquence en acides aminés complète d'ancTREK1 utilisée pour les enregistrements électrophysiologiques. Cette séquence a été reconstruite par inférence de séquence ancestrale à partir d'un jeu de données soigneusement sélectionné de membres de la famille TREK/TRAAK, incluant des séquences orthologues recueillies à partir des bases de données UniProt et NCBI, filtrées pour les motifs de pore conservés, alignées et analysées à l'aide de la phylogénétique par maximum de vraisemblance.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Dans cette étude, nous avons utilisé la technique PLB pour évaluer les propriétés électrophysiologiques d'un canal K2P synthétique au niveau de la molécule unique. Parmi les divers modèles lipidiques plans décrits dans la littérature scientifique, nous nous sommes concentrés sur la formation de membranes lipidiques bilamellaires (BLM), qui sont formées par étalage sur une ouverture de diamètre compris entre 50 et 140 µm, percée dans une surface verticale non polaire séparant deux compartiments aqueux. Cette configuration permet de simuler l'environnement de la membrane cellulaire tout en conservant le contrôle des paramètres expérimentaux, notamment la préparation de la membrane lipidique et la composition de l'électrolyte (par exemple, la force ionique et le pH)3. Nous avons reconstitué les BLM selon la méthode de Montal–Mueller (méthode dite de « folding »)5, dans laquelle la membrane s'assemble spontanément lorsque deux monocouches lipidiques, préalablement étendues à l'interface air–eau des deux solutions aqueuses, se rejoignent au-dessus de l'ouverture par élévation du niveau d'eau.
Le protocole présenté ici pour la formation de la membrane est très intuitif ; toutefois, plusieurs étapes critiques influencent fortement la réussite expérimentale. Pour assurer une connexion électrique correcte entre le BLMchipMM et l'amplificateur, il est essentiel d'éviter la chloration des extrémités du fil Ag/AgCl insérées dans les connecteurs du circuit imprimé. Lors du montage du BLMchipMM, un positionnement incorrect des fils peut entraîner un contact avec le boîtier de l'amplificateur, provoquant des courts-circuits et une saturation du signal. La procédure de prétraitement de l'ouverture constitue un autre facteur critique : une pression excessive lors de l'application de la solution de prétraitement peut endommager la septum en polyimide, tandis qu'une manipulation inadéquate de la solution électrolytique—en particulier l'imbibition de la zone de l'ouverture—peut compromettre la formation de la membrane. En outre, un nettoyage soigneux de la chambre d'enregistrement du BLMchipMM est essentiel pour assurer la reproductibilité. L'utilisation d'alcool isopropylique à 100 %, suivie d'un rinçage complet et d'un séchage total, garantit que les résidus n'interfèrent pas avec les expériences ultérieures.
Plusieurs modifications du protocole sont possibles. Bien que la chlorination par trempage dans l’eau de Javel représente une méthode pratique et largement utilisée, d'autres approches telles que le placage électrolytique peuvent également être employées43. De même, des variations concernant le prétraitement et la préparation des lipides sont envisageables. Les solutions de prétraitement standard se composent généralement d’alcanes à chaîne longue dissous dans des solvants hydrocarbonés volatils36 ; bien qu'une solution de 1 % d’hexadécane dans l’hexane soit couramment utilisée, d'autres solvants peuvent convenir. La composition lipidique peut également être adaptée selon les besoins expérimentaux. Bien que les lipides DPhPC offrent une stabilité membranaire optimale, d'autres mélanges lipidiques, y compris des compositions naturelles ou synthétiques, peuvent être utilisés36. Un avantage majeur des bicouches lipidiques verticales formées par la méthode de repliement réside dans la possibilité de générer des membranes asymétriques, dans lesquelles chaque feuillet est constitué d’espèces lipidiques différentes5,22, une caractéristique connue pour influencer la fonction des protéines membranaires.
Le dépannage de la formation de la membrane implique généralement des ajustements des niveaux de la phase aqueuse. Si la formation de la membrane ne se produit pas initialement, abaisser et relever à plusieurs reprises le niveau du tampon dans un compartiment peut faciliter l'assemblage de la bicouche. En cas d'échec, appliquer une bulle d'air au-dessus de l'ouverture peut favoriser la redistribution des lipides et la formation de la membrane. Un échec persistant indique généralement des problèmes liés au prétraitement ou à une contamination, auquel cas il est recommandé de nettoyer la chambre d'enregistrement et de recommencer l'expérience.
Les composants principaux de ce dispositif comprennent l'amplificateur compact eNPR 100 kHz et la BLMchipMM. L'amplificateur est un système compact de voltage-clamp à faible bruit qui élimine la nécessité d'utiliser des dispositifs externes supplémentaires, tels que des cages de Faraday externes, car le boîtier de l'amplificateur lui-même assure un blindage électromagnétique efficace. La BLMchipMM est une chambre d'enregistrement miniaturisée préassemblée, intégrée à un circuit imprimé (PCB) permettant une connexion directe à l'amplificateur. Elle se compose de deux compartiments en forme de C séparés par un septum en polyimide comportant une ouverture conique réalisée au laser, là où la membrane artificielle est formée. Les dimensions réduites du système, avec des volumes de compartiment d'environ 110 µL, diminuent considérablement la consommation de réactifs et réduisent la capacité intrinsèque, améliorant ainsi la qualité du signal. En outre, l'appareil peut être réutilisé plusieurs fois sans démontage, à condition de suivre des procédures de nettoyage appropriées, ce qui réduit la variabilité et améliore la reproductibilité expérimentale.
Malgré ces avantages, certaines limitations doivent être prises en compte. La configuration actuelle ne comprend pas de modules intégrés pour le contrôle de la température, de la pression ou de la perfusion. On a signalé que la tension membranaire intrinsèque pouvait influencer les canaux mécanosensibles tels que TREK144,45,46 ; toutefois, la configuration actuelle ne permet pas une manipulation contrôlée de la tension membranaire, et aucune conclusion mécanistique n'est tirée ici. Dans l'ensemble, cette plateforme offre un système robuste et accessible pour l'enregistrement de l'activité des canaux ioniques dans des membranes artificielles. Dans cette étude, nous avons examiné le canal K2P synthétique ancTREK1, un canal ancestral dérivé par calcul informatique appartenant à la sous-famille TREK. Les données enregistrées démontrent que ancTREK1 purifié, réinséré dans des bicouches lipidiques planaires (PLB), présente un comportement unitaire conforme aux propriétés de conductance rapportées pour les canaux de type TREK1. Dans des conditions symétriques de potassium à 200 mM sans Mg2+, le canal présente une relation courant-tension (I–V) mesurable, avec des amplitudes d'environ 13 pA à 80 mV et −19 pA à −80 mV. De plus, ancTREK1 montre le mode de grande conductance caractéristique observé dans les canaux TREK1, avec une conductance plus élevée aux potentiels négatifs (~205,6 pS) par rapport aux potentiels positifs (~112,8 pS). Notamment, ancTREK1 présente un NPo accru aux potentiels positifs (0,78 à 80 mV) et un NPo réduit aux potentiels négatifs (0,53 à −80 mV et 0,28 à −120 mV), ce qui diffère des observations réalisées en configuration de patch excisé42. Ces résultats soutiennent l'utilisation de ce système pour la démonstration de principe de l'enregistrement unitaire de protéines membranaires réconstituées.
Déclarations de divulgation
F.T. et A.P. sont respectivement PDG et employé d'Elements S.r.l. Tous les autres auteurs déclarent n'avoir aucun intérêt concurrent.
Remerciements
Nous remercions Sofia Diletta Guzzeloni pour son aide lors de la procédure de transfection cellulaire. Nous sommes reconnaissants aux employés d'Elements, le Dr Leon Juarez et le Dr Michelangelo Paci. Ce travail a été soutenu par le Département de Médecine Moléculaire de l'Université de Pavie, en Italie, dans le cadre de l'initiative Dipartimenti di Eccellenza (2023–2027), par la Fondation Cariplo (#2019-1809) et par le programme de recherche PNRR CN00000013 « National Centre for HPC, Big Data and Quantum Computing » attribué à M.L.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycéro-3-phosphocholine (DPhPC) | Avanti Polar Lipids | 850356P | Formation de bicouches lipidiques artificielles |
| 2-Propanol (≥99,5 %) | Honeywell | 24137-5L | Nettoyage du dispositif BLMchipMM |
| Agarose | Fisher BioReagents | BP160-500 | Préparation de gels d'agarose |
| Système d'électrophorèse horizontale sur gel d'agarose | BTLabSystems | BT102 | Séparation des fragments d'ADN |
| Ampicilline | Fisher BioReagents | BP1760-25 | Sélection des bactéries transformées |
| Résine Sepharose au nanocorps anti-GFP (fabriquée en laboratoire) | — | — | Purification par affinité des protéines marquées GFP |
| Anza phosphatase alcaline | Invitrogen | IVGN2208 | Déphosphorylation du vecteur |
| Anza EcoRI | Invitrogen | IVGN0116 | Digestion par enzyme de restriction |
| Anza NotI | Invitrogen | IVGN0014 | Digestion par enzyme de restriction |
| Anza Red Buffer (10×) | Invitrogen | IVGN2008 | Buffer de digestion par enzyme de restriction |
| Inhibiteur de protéase aprotinine | Fisher Scientific | 15996008 | Prévention de la dégradation des protéines |
| Centrifugeuse de table | Eppendorf | EP5420000164 | Formation de culots cellulaires et préparation des échantillons |
| BLMchipMM | Elements s.r.l. | — | Formation de bicouches lipidiques planes |
| Hémisuccinate de cholestérol (CHS) | Anatrace | CH210 | Stabilisation des protéines membranaires |
| Bleu brillant de Coomassie | Sigma-Aldrich | 1125530025 | Coloration des protéines |
| Eau de javel ménagère | — | — | Chloration des fils d'argent |
| DNase I | Sigma-Aldrich | 11284932001 | Réduction de la viscosité du lysat |
| Eau doublement distillée | — | — | Préparation des tampons et solutions |
| Éthanol (pur, 99,9 %) | Girelli Alcool s.r.l. | — | Nettoyage des fils Ag/AgCl |
| Bromure d'éthidium | Sigma-Aldrich | 1116080030 | Coloration de l'ADN |
| Papier de verre très fin | — | — | Élimination du revêtement Ag/AgCl des fils |
| Amplificateur eNPR 100 kHz | Elements s.r.l. | — | Enregistrements électrophysiologiques |
| Kits Gel-Out pour l'extraction de l'ADN à partir d'agarose | A&A Biotechnology | 023-250 | Purification de l'ADN |
| Marqueur d'ADN GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | Référence de taille d'ADN |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Expression de la protéine ancTREK1 |
| HEPES (≥99,5 %) | Sigma-Aldrich | H3375-500G | Agent tampon |
| Hexadécane (≥99 %) | Sigma-Aldrich | H6703-100ML | Prétraitement des ouvertures |
| Hexane (≥99 %) | Sigma-Aldrich | 139386-100ML | Solvant lipidique |
| Colorant de charge d'ADN 5× (fabriqué en laboratoire) | — | — | Préparation des échantillons d'ADN |
| Buffer de Laemmli SDS 6× (réducteur, fabriqué en laboratoire) | — | — | Préparation des échantillons protéiques |
| Solution de décoloration maison | — | — | Décoloration des gels SDS-PAGE |
| Protéase HRV-3C maison | — | — | Coupure des protéines de fusion |
| Buffer de migration SDS-PAGE maison (10×) | — | — | Buffer d'électrophorèse SDS-PAGE |
| Imidazole | Alfa Aesar | A10221 | Élution des protéines marquées His |
| Colonnes de purification par lots | — | — | Protocoles de purification des protéines |
| Incubateur agitateur Innova44 | New Brunswick Innova | M1282 | Culture cellulaire |
| KCl | Honeywell | 31248-1KG | Préparation d'électrolytes et de tampons |
| Bouillon LB (Lennox) | Condalab | 1231 | Culture bactérienne |
| Inhibiteur de protéase leupeptine | Thermo Scientific | 78435 | Prévention de la dégradation des protéines |
| Chlorure de magnésium hexahydraté | Acros Organics | 447700010 | Constituant du tampon |
| Spectrophotomètre Nanodrop | DeNovix | DS-11 | Quantification de l'ADN et des protéines |
| n-Dodécyl-β-D-maltoside (DDM) | NeoBiotech | NB-19-0056-25G | Solubilisation des protéines membranaires |
| Résine Ni Sepharose Haute Performance | Cytiva | 17526801 | Purification IMAC |
| Ordinateur portable | — | — | Commande des instruments et acquisition des données |
| Ultracentrifugeuse Optima LE-80K | Beckman | 365668 | Isolation des fractions membranaires |
| Pentane (≥99 %) | Sigma-Aldrich | 236705-100ML | Solvant lipidique |
| Inhibiteur de protéase pepstatine A | Thermo Scientific | 78436 | Prévention de la dégradation des protéines |
| Phusion GC Buffer (5×) | Thermo Fisher Scientific | F519 | Buffer de PCR |
| Phusion ADN polymérase haute fidélité | Thermo Fisher Scientific | F530S | Amplification par PCR |
| Inhibiteur de protéase PMSF | Thermo Scientific | 36978 | Protection des protéines pendant la lyse |
| Polyéthylènimine (PEI) | Clinisciences | 24765-100 | Réactif de transfection |
| Gel préfabriqué Tris-Glycine ProteinEle (4–20 %) | TransGen Biotech | DG101-01-V2 | Séparation des protéines |
| Système d'électrophorèse sur gel SDS-PAGE | Bio-Rad | 1658002FC | Électrophorèse des protéines |
| Butyrate de sodium | Fisher Scientific | A11079 | Amplificateur d'expression protéique |
| Ligase T4 de l'ADN | Thermo Fisher Scientific | EL0011 | Ligation de l'ADN |
| Buffer de la ligase T4 de l'ADN (10×) | Thermo Fisher Scientific | B69 | Buffer de ligation |
| Cycleur thermique (Mastercycler Nexus) | Eppendorf | 6331000025 | Amplification par PCR |
| Base Tris | Sigma-Aldrich | T1503-1KG | Préparation de tampons |
| Agar tryptone SOYA avec lécithine et polysorbate 80 | HiMedia | M449-5KG | Étalage bactérien |
| Deux fils d'argent | Elements s.r.l. | — | Électrodes pour électrophysiologie |
| Concentrateur à ultrafiltration (coupure à 50 kDa) | Merck Amicon | UFC8050 | Concentration des protéines |
| Vecteur d'expression pEG BacMam | Addgene | 160687 | Expression protéique |
| Câble USB | — | — | Connexion entre l'amplificateur et l'ordinateur |
Références
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible