Cette étude a identifié des gènes communs, des voies biologiques, des associations immunitaires et des cibles thérapeutiques potentielles sous-jacentes au diabète de type 2 et aux maladies cardiovasculaires athéroscléreuses grâce à une bioinformatique intégrée et une validation expérimentale.
Article de recherche
Mécanismes moléculaires courants et cibles de médicaments candidats dans le diabète sucré de type 2 et les maladies cardiovasculaires athéroscléreuses
Dans cet article
Résumé
Résumé
Cette étude a examiné les mécanismes sous-jacents à la comorbidité entre le diabète sucré de type 2 (DT2DM) et la maladie cardiovasculaire athéroscléreuse (MCCV), tout en identifiant des cibles thérapeutiques potentielles. Des gènes communs exprimés différemment (C-DEG) entre le T2DM et l’ASCVD ont été extraits des ensembles de données GSE78721 et GSE12288. Des analyses d’enrichissement des voies par l’Ontologie Génique (GO) et la Kyoto Encyclopedia of Genes and Genomes (KEGG), la construction de réseaux d’interaction protéine-protéine (PPI), l’identification des gènes centraux et l’analyse de la base de données d’interaction médicamente-gène (DGIdb) ont été réalisées. L’association entre les C-DEG centrales et les cellules immunoinfiltrantes a été analysée à l’aide de la méthode CIBERSORT. Les niveaux d’expression des C-DEG hubs ont été quantifiés par qRT-PCR et analyses Western blot. Un total de 32 C-DEG ont été identifiés, comprenant 20 gènes à la hausse et 12 à la baisse. Les C-DEG étaient principalement enrichis dans des voies clés, notamment la myocardite virale, la cardiomyopathie ventriculaire droite arythmogène, la cardiomyopathie hypertrophique et la cardiomyopathie dilatée. L’analyse PPI a révélé 29 nœuds et 39 arêtes, permettant l’identification de huit C-DEG hub (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C et CS) dans les deux ensembles de données. De plus, les C-DEG hubs (TOP3A, SLPI, NCF4, PRF1 et PLAU) ont montré des corrélations significatives avec les niveaux de cellules immunoinfiltrantes. Les médicaments ciblant spécifiquement ces C-DEG centraux présentent des candidats prometteurs pour le traitement du DT2 et de l’ASCVD. De plus, l’expression des C-DEG hubs aux niveaux d’ARNm et de protéines a été validée chez les patients atteints de DT2DM et d’ASCVD. Une analyse bioinformatique intégrée a facilité le dépistage des cibles thérapeutiques candidates, des mécanismes et des médicaments pour le DT2 et l’ASCVD, offrant de nouvelles perspectives sur les thérapies moléculaires pour ces affections.
Introduction
Le diabète sucré (DM) est une maladie chronique à l’étiologie complexe influencée par divers facteurs génétiques et environnementaux, affectant actuellement environ 463 millions de personnes dans le monde, dont la population devrait atteindre 700 millions d’ici 2045 1,2. Le diabète sucré de type 2 (DT2DM) est une affection multifactorielle caractérisée par une résistance à l’insuline et une carence relative en insuline résultant d’une défaillance des cellules bêta, entraînant une hyperglycémie et une dyslipidémie, représentant 90 % des cas de DM 3,4,5. La résistance à l’insuline constitue un précurseur clé à de nombreuses anomalies métaboliques cardiovasculaires qui facilitent collectivement le développement de la maladie cardiovasculaire athéroscléreuse (MCSV) et peuvent influencer sonpronostic 6,7. La maladie coronarienne (DAC) provient principalement de l’accumulation progressive de matière athéroscléreuse, entraînant un rétrécissement luminal et une obstruction du fluxsanguin 8. L’athérosclérose est causée par plusieurs facteurs, dont l’hypercholestérolémie et lediabète 9,10. Les lourds fardeaux humains et financiers associés à la DMT 2 et à la CAO, ainsi que les défis liés à leur gestion à long terme, soulignent l’urgence de stratégies préventives efficaces.
Les patients atteints de maladie coronatique et de diapositives de type 2 concomitants présentent un risque nettement plus élevé d’événementscardiaques 11. La maladie cardiovasculaire (MCV) est une complication courante de la DT2 et représente la principale cause de mortalité chez les patients atteints de DT2, avec environ 32,2 % d’entre eux affectés par laMCV 12. La sous-étude sur LoDoCo2 confirme que le DT2DM concomitant est corrélé à un risque accru d’événements cardiovasculaires indésirables majeurs dans les populations de CAOchronique 13. Les personnes atteintes de diabète type 2 présentent un risque accru de DMS14,15, et celles atteintes de maladie coronatique diabétique présentent également un risque significativement plus élevé d’événements cardiovasculairesultérieurs 16, soulignant un besoin crucial non satisfait d’options thérapeutiques innovantes.
Un nombre croissant de groupes de recherche dépistent de nouveaux gènes différenciellement exprimés (DEG) dans les DT2DM et ASCVD grâce à des analyses complètes de données transcriptomiques issues de diverses bases de données. Les efforts sont axés sur l’élucidation du lien entre ces maladies et l’identification de fonctions biologiques efficaces. Des études récentes en bioinformatique ont exploré la DT2DM en relation avec d’autres affections ; par exemple, Song et al. ont identifié des DEG partagés entre le DT2DM et l’arthrose17, Castillo-Velázquez et al. ont prédit la relation entre la maladie d’Alzheimer et la DM18, et des gènes et voies importants dans le DT2DM et le syndrome des ovaires polykystiques ont été identifiés par analysebioinformatique 19. Cependant, les mécanismes moléculaires reliant le DT2 et l’ASCVD restent mal compris, soulignant l’importance d’identifier de nouvelles cibles thérapeutiques potentielles pour traiter la progression des deux affections.
Cette étude vise à identifier systématiquement les voies moléculaires partagées et les cibles thérapeutiques potentielles entre la DT2DM et l’ASCVD en réalisant une analyse bioinformatique intégrée des données transcriptomiques issues des ensembles de données GSE78721 (T2DM) et GSE12288 (ASCVD). Ces ensembles de données ont été choisis pour fournir des échantillons patients et témoins appariés pour chaque maladie, en utilisant des plateformes micro-arrays comparables permettant une analyse comparative robuste. L’approche actuelle consistait à identifier les DEG courants (C-DEG), à réaliser des analyses d’enrichissement fonctionnel et d’interaction protéique, à évaluer les associations avec l’infiltration immunitaire et à prédire des médicaments interactifs. De plus, une validation expérimentale préliminaire a été réalisée. Ce travail fournit de nouvelles perspectives et cibles candidates pour comprendre la comorbidité du DT2 et de l’ASCVD.
Protocole
Ce protocole d’étude a été examiné et approuvé par le comité d’éthique institutionnel de l’Université médicale de Ningxia (Numéro de référence du comité d’éthique interne : Éthique [2023]-YCSKT-002) et conforme aux principes énoncés dans la Déclaration d’Helsinki. Un consentement écrit a été obtenu de tous les patients impliqués dans l’étude avant leur participation.
Sources des données d’expression pour la DT2DM et l’ASCVD
Les données d’expression génique pour la T2DM et l’ASCVD ont été obtenues respectivement à partir des ensembles de données GSE78721 et GSE12288, provenant de la base de données GEO. Les deux ensembles de données utilisaient des données de microarrays provenant de l’array d’expression génique humaine [PrimeView] Affymetrix et des plateformes [HG-U133A] Affymetrix Human Genome U133A. Le jeu de données GSE78721 comprenait des données d’expression de 68 patients atteints de DT2 et 62 échantillons normaux (détails dans le Tableau Supplémentaire 1), tandis que le jeu de données GSE12288 comprenait des données d’expression provenant de 110 échantillons d’ASCVD et 112 témoins normaux (détails dans le Tableau Supplémentaire 2). Les sondes génétiques étaient converties en leurs symboles génétiques correspondants en fonction des informations d’annotation de la plateforme.
Identification de gènes différenciellement exprimés dans les DT2DM et les ASCVD
Après téléchargement des données de la base de données GEO, les matrices d’expression brutes pour T2DM et ASCVD ont été corrigées et normalisées à l’aide du logiciel « limma » pour identifier les DEG. Un seuil de P < 0,05 a été appliqué pour le dépistage DEG. Les résultats d’expression différentielle ont été visualisés à l’aide des packages R « heatmap » et « ggplot2 » pour générer respectivement une heatmap et un graphique volcanique. Les C-DEG entre le DT2DM et l’ASCVD ont été identifiés via un diagramme de Venn.
Analyses fonctionnelles de l’ontologie génique (GO) et des analyses d’enrichissement des voies des C-DEG par la Kyoto Encyclopedia of Genes and Genomes (KEGG)
Les fonctions et voies biologiques ont été déterminées grâce à des analyses d’enrichissement des voies GO et KEGG. L’organisation du package R. Hs.eg.db a été utilisé pour convertir les noms C-DEG en identifiants géniques, et une analyse d’enrichissement GO a été réalisée à l’aide des packages R clusterProfiler, enrichplot, ggplot2 et GOplot pour explorer les fonctions biologiques communes des C-DEG. Par la suite, une analyse KEGG a été réalisée pour identifier des voies significatives partagées impliquées dans les mécanismes moléculaires sous-jacents à la comorbidité du DT2DM et de l’ASCVD. Les résultats d’enrichissement GO et KEGG ont été présentés dans des graphiques à barres illustrant le nombre de gènes, les descriptions fonctionnelles et les valeurs P , avec une signification statistique définie comme P < 0,05.
Analyse du réseau d’interaction protéine-protéine (IPP) des C-DEG
Les C-DEG et les gènes hub ont été définis comme des gènes partagés dans cette étude. Pour évaluer les associations fonctionnelles entre ces gènes partagés, un réseau PPI a été construit à l’aide de la base de données STRING (https://string-db.org). L’analyse a commencé par sélectionner « Multiple proteins » sous la fonction « SEARCH » et en saisissant les noms C-DEG tout en spécifiant l’espèce comme « Homo sapiens ». Les paramètres de base des C-DEG étaient configurés pour afficher le réseau réglementaire PPI. La visualisation du réseau PPI a été réalisée à l’aide du logiciel Cytoscape (version 3.9.1) (https://apps.cytoscape.org/), fournissant une représentation graphique des interactions entre les C-DEG. Les C-DEG du hub ont été identifiés au sein du réseau PPI en utilisant le plugin CytoHubba dans Cytoscape, sur la base de l’algorithme de classement des degrés.
Analyse de l’infiltration des cellules immunitaires
Pour examiner les différences d’infiltration des cellules immunitaires entre le groupe T2DM et le groupe témoin normal, la méthode CIBERSORT a été utilisée pour évaluer l’abondance de divers types cellulaires immuno-infiltrants. L’algorithme du test de Wilcoxon a ensuite été appliqué pour comparer les proportions de ces cellules immunitaires infiltrantes entre les échantillons de DT2DM et témoins, facilitant ainsi l’évaluation des différences observées. La visualisation des données s’est faite à l’aide de graphiques de violon. Pour valider la corrélation entre les C-DEG et les cellules immunoinfiltrantes, des paquets R tels que limma, scales, tidyverse et ggplot2 ont été utilisés pour calculer les coefficients de corrélation de Spearman. Cette étape a quantifié la relation entre l’expression du C-DEG et les niveaux d’infiltration des cellules immunitaires, avec des résultats affichés sous forme de cartes thermiques. Une valeur P inférieure à 0,05 était considérée comme statistiquement significative.
Analyse d’interaction des C-DEG du hub avec des médicaments potentiellement ciblés
La base de données d’interaction médicamenteuse-gène (DGIdb) fournit un catalogue complet des interactions médicament-gène ainsi que des profils génétiques d’agents thérapeutiques approuvés et potentiels. Dans cette étude, la liste des C-DEG centrales a été saisie dans la base de données afin de récupérer les informations d’interaction entre les C-DEG centrales et leurs médicaments ciblés potentiels, qui ont ensuite été visualisées à l’aide du logiciel Cytoscape.
Validation expérimentale des gènes de base par échantillons cliniques
Pour valider expérimentalement les gènes centraux, des échantillons de sang périphérique ont été prélevés sur des sujets cliniques. La cohorte de l’étude comprenait un groupe expérimental et un groupe témoin. Le groupe expérimental comprenait 15 patients diagnostiqués à la fois avec un DT2 et un MCSCV, représentant une affection comorbide. Le groupe témoin comprenait 10 volontaires en bonne santé, appariés selon leur âge et leur sexe, sans antécédents de diabète, de maladies cardiovasculaires ou d’autres maladies systémiques majeures. Tous les patients du groupe expérimental ont été diagnostiqués de manière définitive selon les recommandations cliniques établies pour le DT2 et l’ASCVD.
Réaction en chaîne quantitative en temps réel de la polymérase (qRT-PCR)
L’ARN total a été isolé à l’aide d’un réactif TRIzol, et l’ADNc de première brin a été synthétisé avec un kit de système de transcription inverse. L’ADNc a ensuite été dilué pour la qRT-PCR à l’aide du mélange maître PCR SYBR-green, avec le GAPDH servant de contrôle interne. Les variations relatives de l’expression ont été calculées via la méthode 2−ΔΔCt . Les amorces utilisées pour l’analyse étaient les suivantes : TUBA1C-avant : 5′-GACCTCGTGTTGGACCGAAT-3′ et arrière : 5′-CGAGGTGAACCCAACCAG-3′ ; NCF4 avant : 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′ et arrière : 5′-GAATTCCTGAAAGGGCTCCTG-3′ ; PRF1-avant : 5′-CCCAGTGGACACACAAAGGTT-3′ et arrière : 5′-TCGTTGCGGATGCTACGAG-3′ ; SLPI-avant : 5′-CCCTTCCTGTGCTGCTT-3′ et arrière : 5′-CCTCCTTGTTGGTTGGTTGG-3′ ; HSP90B1 avant : 5′-CCGAAGAAGAACCTGAAGAG-3′ et arrière : 5′-CATCTGTTCCCACATCCATT-3′ ; PLAU-avant : 5′-GGGGAGATGAAGTGTGTG-3′ et arrière : 5′-GCAATGTGTTGTGGTGGTGG-3′ ; GAPDH-avant : 5′-CAGGGCTGCTTTTAACTCTGG-3′ et arrière : 5′-GGGTGGAATCATATTGGAACA-3′.
Test Western blot
La protéine totale a été isolée, diluée dans un tampon de chargement, puis séparée par 10 % de SDS-PAGE, suivie d’un transfert vers les membranes PVDF. Les membranes ont été bloquées et sondées avec des anticorps primaires spécifiques, notamment anti-TUBA1C (1:1000, ab222849), anti-HSP90B1 (1:1000, ab238126), anti-NCF4 (1:1000, 14648-1-AP), anti-PRF1 (1:1000, ab256453), anti-SLPI (1:1000, ab46763), anti-PLAU (1:1000, 17968-1-AP) et anti-GAPDH (1:5000, 10494-1-AP). Des anticorps secondaires conjugués avec de la peroxydase de raifort (HRP) (1:2000, ab6721) ont été appliqués, et les bandes ont été visualisées à l’aide d’un substrat chimioluminescent amélioré (ECL).
Analyse statistique
L’analyse statistique a été réalisée à l’aide du logiciel GraphPad Prism, les données étant présentées en moyenne ± SD. Les différences entre les groupes ont été évaluées à l’aide du test t de Student, et une valeur P inférieure à 0,05 a été considérée comme statistiquement significative.
Résultats
Identification des DEG
Deux ensembles de données, GSE78721 et GSE12288, ont été utilisés pour l’analyse bioinformatique dans cette étude. En GSE78721, un total de 2 266 DEG ont été identifiés entre des patients atteints de diabète de type 2 et des échantillons normaux, comprenant 1 209 gènes à la hausse et 1 057 à la baisse (Figure 1A). En GSE12288, 924 DEG ont été vérifiés entre les patients atteints de MCSCV et les témoins, incluant 403 gènes surexprimés et 521 sous-régulés (Figure 1C). Les 50 principaux DEG identifiés dans les deux ensembles de données sont représentés dans les cartes thermiques montrées à la Figure 1B,D. En croisant ces deux ensembles de données, 32 C-DEG ont été identifiés, comprenant 20 gènes à la hausse et 12 à la baisse (Figure 2A, B).
Enrichissement des C-DEG par GO et KEGG
Pour élucider les fonctions biologiques et les voies clés associées aux 32 C-DEG, des analyses GO et KEGG ont été réalisées. Les dix principaux termes liés au processus biologique (BP), au composant cellulaire (CC) et à la fonction moléculaire (MF) parmi les C-DEG sont présentés dans la Figure 3A. Les fonctions de la BP incluent principalement la régulation de l’activation du plasminogène, la régulation de la fibrinolyse, la régulation positive de la différenciation des cardiocytes, la régulation négative de la liaison des protéines et la différenciation des cardioblastes. Les fonctions CC concernent le complexe endopeptidase de type sérine, les complexes protéiques impliqués dans l’adhésion de la matrice cellulaire, le chromosome condensé, la membrane granulaire spécifique et le corps PML. La MF englobe les constituants structurels du cytosquelette, l’activité activatrice de la NADPH oxydase générant des superoxydes, l’activité intramoléculaire de la transferase (phosphotransférases), l’activité exopeptidase de type sérine et la liaison à l’IgG (Figure 3A). En ce qui concerne l’analyse KEGG, les C-DEG étaient principalement impliqués dans des voies critiques, notamment la myocardite virale, la cardiomyopathie du ventricule droit arrythmogène, les cascades de complément et de coagulation, le cancer de la prostate, la cardiomyopathie hypertrophique, la cardiomyopathie dilatée, l’apoptose, le phagosome et le traitement des protéines dans le réticulum endoplasmique (Figure 3B).
Construction de réseaux IPP et criblage génique central
Parmi les 32 C-DEG, trois gènes n’ont montré aucune interaction connue avec d’autres C-DEG dans la base de données STRING et ont donc été exclus de la construction du réseau PPI. La plateforme STRING a été utilisée pour l’analyse PPI des 29 C-DEG restants, révélant un réseau composé de 29 nœuds et 39 arêtes, visualisé à l’aide de Cytoscape (Figure 4A). Par la suite, huit C-DEG de hub (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C et CS) ont été identifiés en fonction de leur degré de connectivité (Figure 4B).
Différences dans l’infiltration des cellules immunitaires et leur corrélation avec les C-DEG du hub
Cette analyse s’est concentrée exclusivement sur le jeu de données T2DM (GSE78721) afin d’étudier préliminairement les changements dans le microenvironnement immunitaire dans le contexte du DT2DM et leur relation avec les gènes centrals. Des graphiques de violon ont été utilisés pour visualiser la relation entre le jeu de données T2DM et les niveaux d’infiltration de 22 types de cellules immunitaires (Figure 5A ; détails dans le Tableau Supplémentaire 3). L’analyse d’infiltration des cellules immunitaires a indiqué une proportion plus élevée de cellules dendritiques activées dans le groupe T2DM par rapport au groupe témoin (P = 0,049), tandis que la proportion de cellules dendritiques au repos était significativement plus faible dans le groupe T2DM (P = 0,023). De plus, la relation entre les niveaux d’expression des huit C-DEG centraux et les niveaux d’infiltration des 22 différents types de cellules immunitaires a été visualisée à l’aide d’une carte thermique (Figure 5B). Notamment, l’expression de TOP3A a montré une forte corrélation positive avec le niveau d’infiltration des lymphocytes T régulateurs (Tregs) (P < 0,001), tandis que l’expression du SLPI était fortement corrélée positivement avec l’infiltration des lymphocytes T gamma delta (P < 0,001). Inversement, l’expression de NCF4 a montré une forte corrélation négative avec le niveau d’infiltration des cellules NK activées (P < 0,001), l’expression de PRF1 était fortement corrélée négativement avec le niveau d’infiltration des macrophages M2 (P < 0,001), et l’expression de PLAU était fortement négativement liée au niveau d’infiltration des cellules B naïves (P < 0,001).
Réseau candidat de médicaments cibles pour les C-DEG concentrées
Parmi les huit C-DEG du hub identifiés, CS et TOP3A n’étaient pas listés comme cibles médicamenteuses connues dans la base de données DGIdb et ont donc été exclus de l’analyse suivante du réseau candidat-cible. Pour identifier des médicaments ayant un rôle thérapeutique potentiel dans le DT2DM et l’ASCVD, les six C-DEG du hub restants ont été soumis à la base de données DGIdb (détails dans le Tableau Supplémentaire 4). Par la suite, Cytoscape a été utilisé pour construire un réseau candidat-médicament cible illustrant les associations entre les C-DEG centraux et les médicaments ciblés candidats (Figure 6). Ce réseau comprenait six C-DEG centrales, 136 médicaments moléculaires et 137 arêtes. Plus précisément, 82, 5, 3, 4, 1 et 42 médicaments cibles candidats ont été identifiés pour TUBA1C, NCF4, PRF1, SLPI, HSP90B1 et PLAU, respectivement, la majorité étant classés comme agents antinéoplasiques, anti-inflammatoires et antithrombotiques.
Validation de l’expression des C-DEG du hub
En raison de l’absence de CS et TOP3A comme cibles médicamenteuses candidates dans la base de données DGIdb et de leurs fonctions biologiques étant moins directement liées aux stratégies thérapeutiques dans le contexte de la recherche sur le DT2 et l’ASCVD, l’étude s’est concentrée sur les six C-DEG centraux restants (HSP90B1, PLAU, SLPI, NCF4, PRF1 et TUBA1C) pour une validation expérimentale. Pour approfondir les rôles de ces C-DEG hub, des tests qRT-PCR et western blot ont été réalisés afin d’évaluer les niveaux d’expression des gènes centraux entre différents groupes (Figure 7 et Figure 8). Les niveaux d’expression de TUBA1C, NCF4, SLPI, HSP90B1 et PLAU étaient significativement augmentés chez les patients atteints de DT2 et ASCVD par rapport aux groupes témoins sains correspondants, tandis que l’expression de PRF1 était à la baisse. Ces résultats suggèrent que ces gènes fondamentaux pourraient jouer un rôle significatif dans la progression des patients atteints de DT2 et d’ASCVD.
DISPONIBILITÉ DES DONNÉES :Les ensembles de données d’expression génique GSE78721 et GSE12288 utilisés pour l’analyse bioinformatique dans cette étude sont disponibles dans la base de données publique GEO du NCBI. Les données brutes issues de la partie validation expérimentale générées dans cette étude sont fournies dans le Fichier Supplémentaire 1.
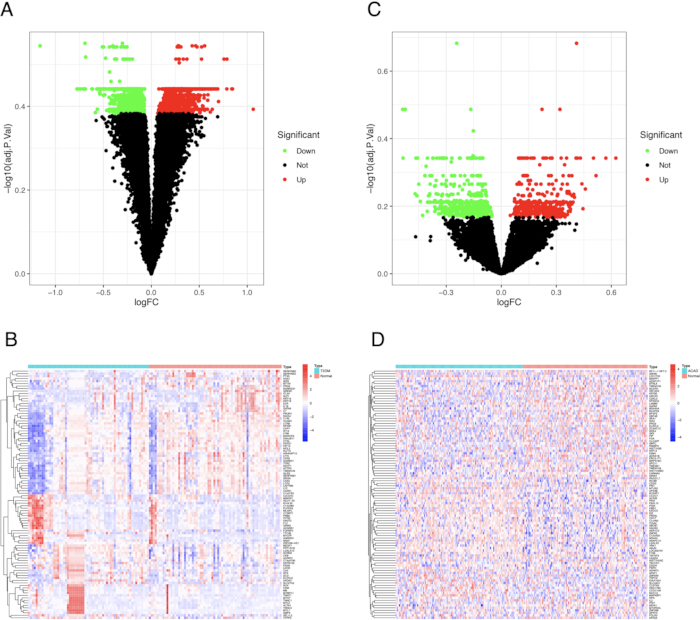
Figure 1 : Identification des DEG dans les ensembles de données GSE78721 et GSE12288. (A,C) Les graphiques volcaniques des DEG dans GSE78721 et GSE12288, respectivement. |logFC|≥ 0,5 et P < 0,05 ont été établis comme seuil de dépistage ; Les gènes à la hausse étaient marqués comme rouges, et ceux à la baisse étaient marqués comme verts. (B,D) Cartes thermiques des 50 meilleurs DEG de GSE78721 et GSE12288, respectivement. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
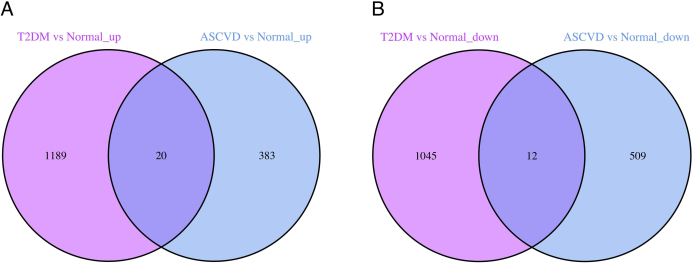
Figure 2 : Diagramme de Venn des C-DEG à partir de deux jeux de données. (A) Diagramme de Venn des C-DEG à la hausse provenant de T2DM et ASCVD dans les ensembles de données GSE78721 et GSE12288. (B) Diagramme de Venn des C-DEG à la baisse à partir de T2DM et ASCVD dans les ensembles de données GSE78721 et GSE12288. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
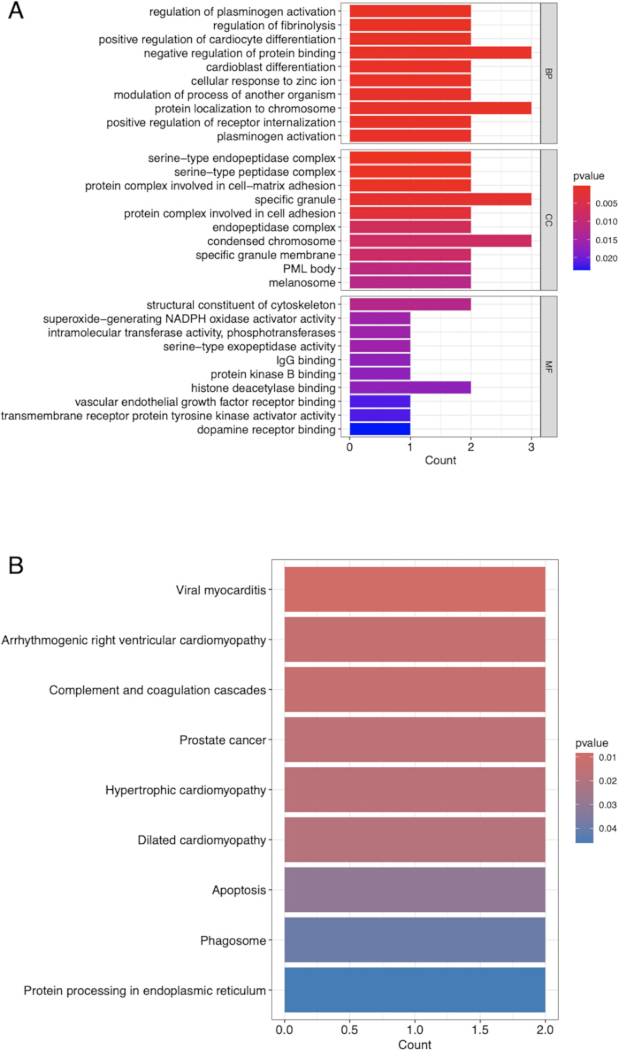
Figure 3 : Analyse fonctionnelle et d’enrichissement des voies des C-DEG. Graphiques à barres des analyses d’enrichissement GO (A) et KEGG (B). Les coordonnées verticales indiquent la description de différents items GO ou des voies KEGG, et les coordonnées horizontales indiquent le nombre de C-DEG enrichis. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
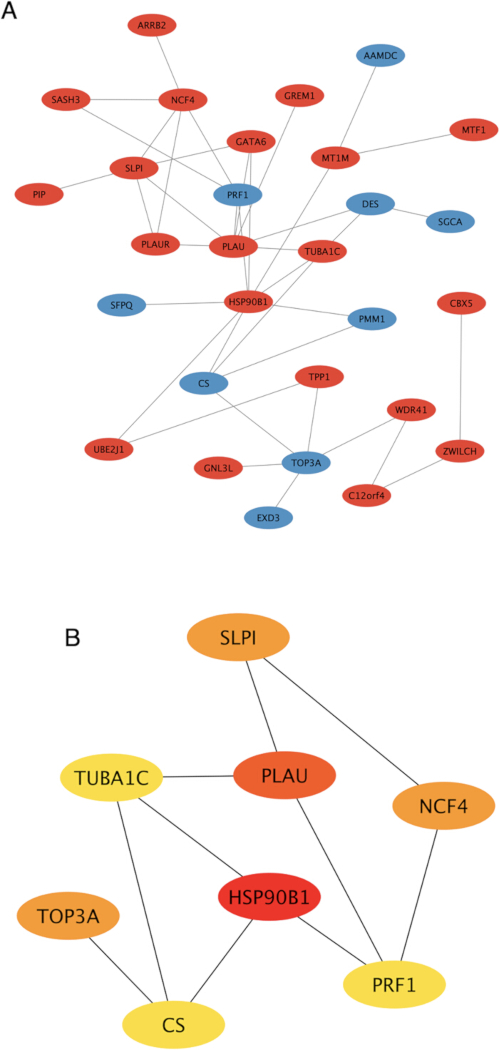
Figure 4 : Dépistage génique du réseau et central des C-DEG. (A) Le réseau PPI des C-DEG. Le rouge et le bleu représentent respectivement les C-DEG à la hausse et à la baisse. (B) Huit gènes hubs ont été identifiés parmi les C-DEG. Les nœuds représentent un C-DEG, et les arêtes représentent l’interaction entre les C-DEG. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
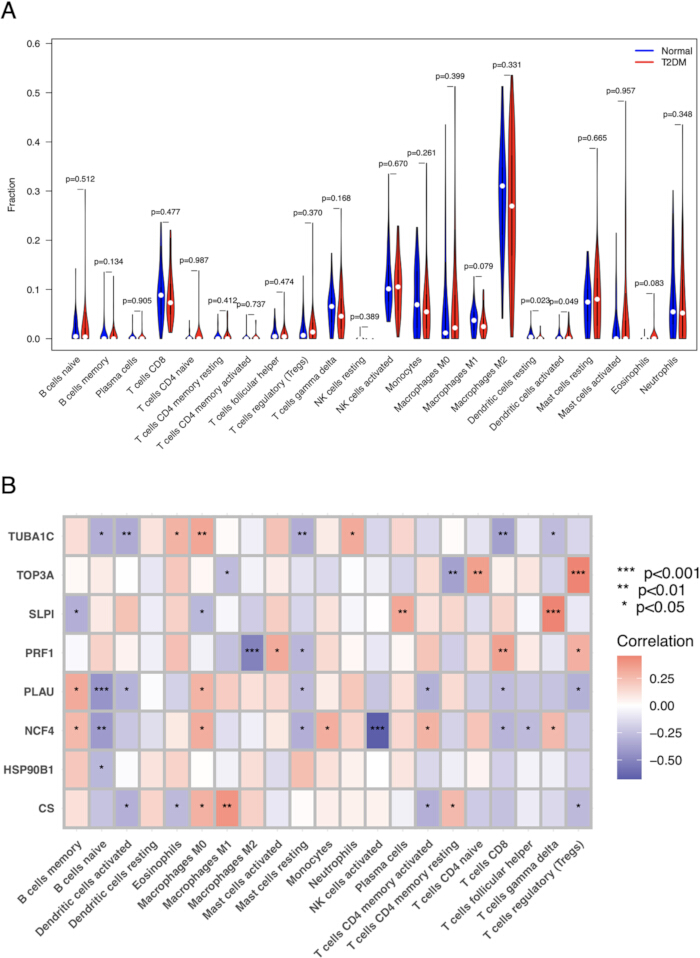
Figure 5 : Analyse de l’infiltration des cellules immunitaires. (A) Différences dans l’infiltration de 22 types de cellules immunitaires entre le groupe T2DM et le groupe témoin. Axe horizontal : sous-types de cellules immunitaires ; Axe vertical : niveau relatif d’infiltration des cellules immunitaires. (B) Carte thermique de corrélation de l’expression de 8 C-DEG hubs et des niveaux d’infiltration de 22 types de cellules immunitaires. Carrés rouges : corrélation positive ; Carrés bleus : corrélation négative. Des couleurs plus foncées indiquent des corrélations plus fortes. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
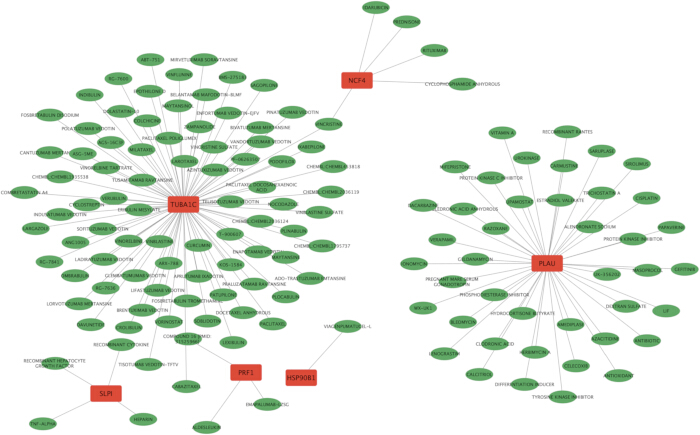
Figure 6 : Réseau cible de médicaments candidats pour six C-DEG centrales. Les nœuds rouges représentent les C-DEG du hub, les nœuds verts représentent les médicaments cibles candidates, et les arêtes entre eux représentent les paires d’interactions. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
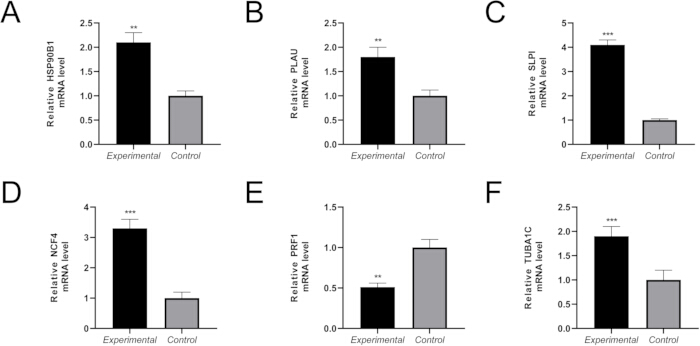
Figure 7 : Validation de l’expression génique centrale chez les patients atteints de DT2DM et ASCVD par qRT-PCR. Les niveaux d’expression de l’ARNm HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) et TUBA1C (F) ont été détectés par qRT-PCR. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
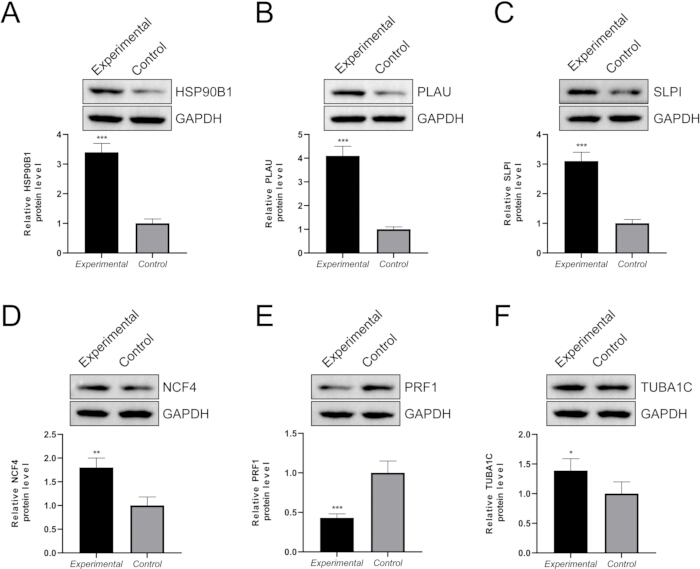
Figure 8 : Validation de l’expression génique centrale chez les patients atteints de DT2DM et d’ASCVD par Western blot. Les niveaux d’expression protéique HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) et TUBA1C (F) ont été détectés par des tests Western blot. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Tableau supplémentaire 1. Matrice d’expression génique pour le jeu de données GSE78721, utilisé pour l’analyse transcriptomique T2DM dans cette étude. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2. Matrice d’expression génique pour le jeu de données GSE12288, utilisée pour l’analyse transcriptomique de l’ASCVD dans cette étude. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 3 : Analyse de l’infiltration des cellules immunitaires dans le jeu de données GSE78721. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 4 : Interactions candidates-cibles pour les gènes communs exprimés différemment. Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Les données brutes issues de la validation expérimentale générées dans cette étude. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Le DT2 et l’ASCVD sont des maladies complexes, avec des preuves émergentes suggérant une association significative entre les deux. La résistance à l’insuline agit comme un précurseur clé de diverses anomalies métaboliques cardiovasculaires, y compris la DT2DM, qui contribuent collectivement au développement de l’ASCVD et peuvent influencer sonpronostic 6,7. De plus, la DM est un facteur moteur dans la progression del’athérosclérose 20. Les personnes atteintes de DT2 présentent un risque accru de CAD21, mais des questions subsistent quant aux mécanismes sous-jacents de la comorbidité. Cette étude vise à explorer la relation et les mécanismes reliant ces deux maladies, tout en identifiant des biomarqueurs potentiels grâce à l’analyse bioinformatique et à la validation expérimentale.
Dans cette étude, un total de 32 C-DEG ont été identifiés entre le DT2DM et l’ASCVD, comprenant 20 gènes à la hausse et 12 gènes à la baisse. Les analyses d’enrichissement GO et KEGG ont révélé que ces C-DEG étaient principalement enrichis dans des voies métaboliques critiques étroitement liées à la CAD et à la T2DM22,23. Huit C-DEG du moyeu (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C et CS) ont été tamisés dans les deux conditions. Notamment, les C-DEG du hub (TOP3A, SLPI, NCF4, PRF1 et PLAU) étaient significativement associés aux niveaux d’infiltration des cellules immunitaires. HSP90B1 a été impliqué dans la progression du cancer24 et pourrait également être associé auDT2DM 25. Il a été démontré que la PLAU joue un rôle dans la prévention du vieillissement vasculaire prématuré associé auDT2DM 26 et est essentielle à la progression de la plaque athéroscléreuse, fournissant des informations pour les biomarqueurs d’alerte précoce et élucidant les mécanismes sous-jacents à la progression de laCAO 27. L’expression de SLPI augmente avec un dysfonctionnement métaboliqueprogressif 28 et a été identifiée comme un C-DEG associé à une tolérance au glucose altérée et à unDT2DM 29. NCF4 a établi des liens avec CAD30 et contribue à la régulation de l’activité de la NADPH oxydase et à l’activationde l’inflammasome 31. En raison du rôle clé de la PRF1 dans la surveillance immunitaire et la régulation32, elle présente un potentiel diagnostique, distinguant l’infarctus du myocarde d’un CADstable 33. De plus, PRF1 agit comme un acteur régulateur immunitaire critique dans la résistance à l’insulineliée à l’obésité 34. TUBA1C a également été associé à des cancers et est lié à une infiltration immunitaire dans le microenvironnementtumoral 35. Il a été identifié comme un gène de susceptibilité aux maladiescoronariennes 36. Cependant, la relation entre l’ASCVD et le DT2DM reste peu explorée.
L’analyse KEGG a révélé l’implication de ces gènes candidats dans des voies telles que les « Cascades de Complémentaire et de Coagulation » et le « Traitement des protéines dans le réticulum endoplasmique ». La validation expérimentale de gènes clés au sein de ces voies, en particulier PLAU (une protéase à sérine impliquée dans la fibrinolyse et la coagulation) et HSP90B1 (un chaperon du réticulum endoplasmique), a confirmé leur dysrégulation dans notre modèle de DT2. Ces résultats situent nos recherches dans un cadre moléculaire spécifique, suggérant que des déséquilibres dans la réponse au stress du réticulum endoplasmique et des voies thrombolytiques pourraient être essentielles à la pathologie du diabète, allant au-delà des processus inflammatoires largement reconnus.
De nombreuses recherches ont documenté des réponses immunitaires dysfonctionnelles chez des patientsdiabétiques 37. L’activation anormale des cellules immunitaires joue un rôle central dans la progression de laDT2DM 38,39. L’analyse d’infiltration immunitaire a révélé une altération significative du compartiment cellulaire dendritique en DT2DM, caractérisée par une proportion accrue de cellules dendritiques activées et une diminution de la proportion de cellules dendritiques au repos (Figure 5A). Cela indique un état de présentation antigénique accrue et d’activation immunitaire dans le DT2, pouvant contribuer à des lésions inflammatoires chroniques dans les tissus cibles. De plus, de fortes corrélations observées entre des gènes hub spécifiques (par exemple, NCF4 avec des cellules NK activées, PRF1 avec des macrophages M2) (Figure 5B) suggèrent des liens mécanistiques entre l’expression génique dans les tissus métaboliques et la composition du microenvironnement immunitaire local, identifiant ainsi de nouvelles cibles pour des interventions immunomodulatrices.
De plus, une analyse du réseau médicament-cible a été réalisée pour prédire les cibles thérapeutiques potentielles, les mécanismes sous-jacents et les médicaments pour le DT2 et l’ASCVD. Ce réseau candidat-médicament-cible comprenait six C-DEG hub, 136 médicaments moléculaires et 137 arêtes. L’analyse a révélé 82, 5, 3, 4, 1 et 42 médicaments cibles candidats pour TUBA1C, NCF4, PRF1, SLPI, HSP90B1 et PLAU, respectivement. La majorité de ces médicaments sont classés comme agents antinéoplasiques, anti-inflammatoires et antithrombotiques. Notamment, certains médicaments, dont le Rituximab, la Prednisone, les antioxydants, le vérapamil, les antibiotiques, la colchicine et l’héparine, ont démontré des fonctions thérapeutiques dans lesDT2DM 15,40,41,42,43,44,45,46 et CAD 15,47,48,49,50. 51,52,53,54,55, indiquant leurs effets thérapeutiques potentiels chez les patients atteints de DT2 et de DCO. De plus, plusieurs médicaments tels que l’alendronate sodique, le calcitriol, le célectoxib, le masoprocol, la mifépristone et la curcumine ont montré des fonctions thérapeutiques spécifiquement dans leDT2DM 56,57,58,59,60,61,62,63 , ce qui peut aussi être bénéfique pour l’ASCVD. La validation de l’expression de ces C-DEG hub en T2DM et ASCVD a également été réalisée.
Cette étude présente plusieurs limites. Premièrement, la taille des échantillons cliniques dans l’expérience de validation était insuffisante et devrait être élargie. Deuxièmement, des recherches expérimentales supplémentaires sont nécessaires pour fournir des informations précieuses sur le lien entre la DT2DM et l’ASCVD. Les travaux futurs consisteront à valider les résultats auprès de cohortes cliniques plus larges et à mener des études expérimentales plus complètes pour élucider les mécanismes moléculaires et les voies pathologiques reliant ces deux maladies. Dans la section de validation expérimentale, les échantillons de patients atteints de DT2DM et ASCVD ont été regroupés en un seul « groupe expérimental » pour comparaison avec des témoins sains. Bien que ce plan ait facilité la validation des variations globales d’expression des C-DEG identifiés dans la condition comorbide, il ne différencie pas si ces modifications d’expression sont spécifiques au DT2DM, à l’ASCVD, ou partagées par les deux. Les études ultérieures devraient comparer des groupes distincts de patients atteints de DT2, des patients atteints de DMSC, et des individus présentant une comorbidité de DMD 2 avec l’ASCVD afin de mieux délimiter les rôles spécifiques de ces gènes dans les maladies individuelles par rapport à l’état comorbide. De plus, l’analyse d’infiltration des cellules immunitaires a été réalisée exclusivement sur le jeu de données T2DM (GSE78721) et non réalisée en parallèle pour le jeu de données ASCVD (GSE12288). Ainsi, les corrélations rapportées entre les C-DEG du hub et les niveaux d’infiltration des cellules immunitaires (par exemple, TOP3A avec Tregs, SLPI avec les lymphocytes T gamma delta) ne reflètent que leurs rôles immunomodulateurs potentiels dans le contexte pathologique du T2DM. Une autre limitation est l’absence de validation fonctionnelle des interactions médicament-cible prédites. Les futures recherches devraient intégrer des simulations d’amarrage moléculaire pour évaluer l’affinité de liaison, ainsi que des expériences in vivo utilisant des modèles animaux pour évaluer l’efficacité thérapeutique de ces médicaments candidats.
En conclusion, cette analyse bioinformatique intégrée, complétée par une validation expérimentale préliminaire, a identifié plusieurs gènes et voies centrales partagées entre le DT2DM et l’ASCVD et propose des candidats médicament potentiels ciblant ces gènes. Ces résultats proposent de nouvelles hypothèses et cibles candidates pour une exploration mécanistique et thérapeutique approfondie de l’interaction complexe entre la DT2 et l’ASCVD.
Déclarations de divulgation
Les auteurs ne déclarent aucun intérêt concurrent.
Remerciements
Les auteurs reconnaissent chaleureusement le soutien financier apporté par le programme de la Fondation des sciences naturelles de Ningxia (Subvention n° 2023AAC03498) et le Projet d’Innovation en Science et Technologie de Yinchuan (Subvention n° 2024SF005). Les auteurs remercient également tous les participants et chercheurs dont les contributions ont rendu cette étude possible.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Références
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.