Cette revue délimite l’axe immunométabolique intestin–foie dans la maladie hépatique stéatotique associée à la dysfonction métabolique et son phénotype inflammatoire-fibrotique (MASH), couvrant l’échec de la barrière à l’activation de l’inflammasome, et évalue les produits naturels multi-cibles ainsi que les stratégies stratifiées par biomarqueurs pour une intervention précise.
Article de revue
Modulation de l’axe intestin-foie en médecine traditionnelle chinoise : de la perturbation de la barrière à l’activation de l’inflammasome dans le MASLD/MASH
Dans cet article
Résumé
Résumé
La maladie hépatique stéatotique associée à la dysfonction métabolique (MASLD) et son phénotype inflammatoire-fibrosique (MASH) présentent un couplage immunométabolique prononcé. Cette revue synthétise les preuves selon l’axe intestin-foie, allant de la jonction étroite épithéliale et de la barrière vasculaire intestinale (GVB) à l’amplification TLR4–MyD88/TRIF–NF-κB et à l’activation de l’inflammasome NLRP3, et expose la logique du spectre d’exposition dérivé de l’intestin — lipopolysaccharide (LPS), éthanol endogène, acides biliaires (BA), acides gras à chaîne courte (SCFA) et triméthylamine N-oxyde (TMAO). Nous positionnons BA-FXR/TGR5, SCFAs-GPR41/43 et AMPK/Nrf2 comme modulateurs en amont/aval qui réinitialisent les seuils inflammatoires et confèrent une médication dépendante du stade. Sur la base de la cartographie nœud-voie, nous résumons les mécanismes et les signaux translationnels pour la berbérine (BBR), le Qushihuayu (QSHY), la décoction Da-Chai-Hu (DCHD) et les polysaccharides (par exemple, Astragalus, Ganoderma), en mettant l’accent sur les contraintes pharmacokinétiques et du site d’exposition qui soutiennent des actions « intestin-d’abord ». Nous proposons un ensemble minimal de biomarqueurs compagnons — LBP/sCD14, profils BA avec dynamique FGF19–C4, et IL-1β/GSDMD-N — associé à des portes d’imagerie hiérarchique (≥ 30 % de déclin relatif IRM-PDFF ; MRE/ELF) pour soutenir la saisie de la réponse et les décisions go/no-go. Enfin, nous mettons en lumière les lacunes critiques (lectures directes de la GVB humaine ; multi-omiques longitudinales reliées aux résultats cliniques) et traçons une voie multi-bras multi-étapes (MAMS) pilotée par biomarqueurs pour le développement adaptatif et stratifié d’interventions de médecine traditionnelle multi-cibles dans le MASLD/MASH.
Introduction
La maladie hépatique stéatotique associée à la dysfonction métabolique (MASLD) et son phénotype inflammatoire-fibrotique, le MASH, sont de plus en plus présentés non pas comme des troubles métaboliques isolés mais comme des conditions systémiques causées par un couplage immunométabolique déréglé. Les preuves convergentes placent l’axe intestin-foie au centre de l’évolution de la maladie : lorsque l’intégrité de la barrière intestinale se relâche, les motifs moléculaires et les signaux métaboliques associés au pathogène luminal accèdent plus facilement à la circulation portale, initiant et amplifiant les réponses immunitaires innéesintrahépatiques 1. Sur le plan mécanistique, la dysfonction de la barrière englobe le remodelage des jonctions étroites épithéliales et la perturbation de la barrière vasculaire intestinale (GVB), augmentant ensemble la délivrance par voie de porte des signaux dérivés des microbes et de l’alimentation qui abaissent le seuil d’activation de l’immunité innée hépatique.
Sous l’épithélium, la barrière vasculaire intestinale (BVV) fonctionne comme un second point de contrôle avec des principes de sélectivité analogues à la barrière hémato-encéphalique. Les données expérimentales et translationnelles indiquent que la déstabilisation de la GVB peut précéder une stéatohépatite manifeste, et que la stabilisation de la barrière est liée mécaniquement à une réduction de la charge inflammatoire portale.
L’endotoxine circulante (lipopolysaccharide, LPS) présente l’association positive la plus constante avec la progression du MASLD au MASH et une fibrose avancée, ancrant un lien au niveau de la population entre la charge moléculaire dérivée de l’intestin et la lésionhépatique 1. Une voie « autobrassage » est également causée : Klebsiella pneumoniae , forte production d’alcool, s’associe à la MASLD, et la colonisation expérimentale induit le foie gras en l’absence d’éthanolexogène 2. D’autres métabolites d’origine intestinale (par exemple, acides biliaires, SCFAs et TMAO) façonnent le tonus immunométabolique de l’hôte et peuvent contribuer à l’hétérogénéité interindividuelle dans les trajectoires de la maladie et la réponse au traitement.
Au niveau du récepteur et de la voie, les entrées portales sont détectées dans la sinusoïde par TLR4/MD-2, qui signale via MyD88/TRIF→IKK d’activer NF-κB, régulant à la hausse TNF-α, IL-1β et CCL2, provoquant l’infiltration leucocytaire et la lésionparenchymatose 3. TLR4 régule également à la baisse le pseudorécepteur TGF-β BAMBI dans les cellules étoilées hépatiques, sensibilisant la signalisation fibrogénique, et recrute des monocytes via l’axe CCL2/CCR2, reliant ainsi l’inflammation à lafibrose 4,5. En aval, l’inflammasome NLRP3 nécessite un amorçage médié par NF-κB (signal 1) accompagné d’indices d’activation provenant de ROS mitochondrial, d’ATP–P2X7 ou de cristaux de cholestérol (signal 2) pour activer la caspase-1, libérer IL-1β/IL-18 et exécuter la pyroptose ; L’inhibition pharmacologique (par exemple, MCC950) est efficace sur plusieurs modèles, mais le bénéfice histologique n’est pas uniforme dans les contextes riches en graisses/cholestérol, ce qui indique que la « drogueabilité » est contrainte par la composition et le timing du DAMP 6,7,8. Parallèlement, les voies BA–FXR/TGR5, SCFA–GPR41/43 et AMPK/Nrf2 modulent la colonne vertébrale à plusieurs niveaux, réajustant les seuils inflammatoires et conférant une réactivité dépendantede l’étape 9,10,11.
Ce cadre délimite les nœuds exploitables pour l’intervention multi-cible. La berbérine (BBR) illustre une stratégie d’exposition systémique faible qui inhibe la BSH bactérienne, remodele le pool BA et active l’axe iléal FXR–FGF15 pour recalibrer « à distance » les données immunométaboliquesintrahépatiques 12,13 ; son complexe ionique BUDCA/HTD1801 a réduit l’IRM-PDFF lors d’un essai contrôlé randomisé de phase 2 (ECR)14. Des formules, telles que Qushihuayu (QSHY), ont montré des réponses coordonnées microbiome–métabolite avec des améliorations des enzymes hépatiques et des substituts de fibrose dans la randomisationmulticentrique 15. La décoction Da-Chai-Hu (DCHD) et les polysaccharides (par exemple, Astragalus, Ganoderma) correspondent respectivement à la stabilisation de la GVB et à la plasticité de l’immunité muqueuse/inflammasome,respectivement 16,17,18. Cependant, le paysage probatorial de la médecine traditionnelle chinoise (MTC) dans le MASLD/MASH reste inégal, couvrant un petit nombre d’essais randomisés avec des critères hétérogènes et une qualité de rapport variable, ainsi qu’un plus large corpus de travaux précliniques et générateurs d’hypothèses.
En conséquence, un objectif central de cette revue est de fournir une synthèse structurée et critique des preuves de la MTC, en séparant les données humaines robustes de l’inférence préclinique, et en évaluant la conception de l’essai, le risque de biais, la taille des effets, les signaux de sécurité et la durabilité de la réponse. Nous mettons également l’accent sur les contraintes translationnelles pratiques particulièrement importantes pour les interventions en MTC, notamment la normalisation des produits, la cohérence batch à lot et les cadres Q-markers, ainsi que les considérations réglementaires qui régissent les seuils de preuve pour le développement et l’adoption clinique.
Dans ce contexte, la critique poursuit trois lignes. Tout d’abord, nous retraçons le continuum depuis l’échec épithélial/GVB jusqu’à l’activation de TLR4–NF-κB et NLRP3, intégrant des preuves clés à travers les niveaux humain, animal et cellulaire. Deuxièmement, nous synthétisons la pharmacologie des systèmes et des données cliniques/translationnelles représentatives sur des agents dérivés de la MTC et d’autres agents naturels ciblant la colonne barrière–récepteur–inflammasome et sa diaphonie immunométabolique, avec un alignement explicite de la pharmacocinétique, de l’exposition et du mécanisme. Troisièmement, nous décrivons des biomarqueurs mesurables et des schémas de typage de réponse qui s’associent à ces voies pour améliorer l’interprétabilité et la reproductibilité externe dans des cohortes MASLD/MASH hétérogènes. En reliant le mécanisme à l’intervention et à des relevés quantifiables, l’axe immunitaire intestin–foie est transformé en un cadre translationnel testable qui peut orienter les futures thérapies stratifiées (Figure 1). Les synthèses récentes positionnent davantage les stratégies centrées sur le microbiome comme un axe translationnel majeur dans MASLD/MASH, couvrant la modulation basée sur l’alimentation, les pré/pro/synbiotiques, la transplantation de microbiote fécal, et les approches émergentes telles que les bactéries et bactériophages modifiés, renforçant la pertinence clinique des interventions ciblant l’intestin19.
Revue et perspective
L’axe intestin-foie : de la rupture de la barrière à l’activation de l’inflammasome
Déséquilibre de la barrière épithéliale et fuite paracellulaire accrue
La barrière épithéliale intestinale est maintenue par une couche luminale de mucus à base de MUC2 ainsi que par des complexes de jonction étroite apicale (TJ) ; ZO-1, occludin et plusieurs claudins définissent la sélectivité paracellulaire et limitent ainsi les rencontres directes entre les motifs moléculaires associés aux microbes luminaux et les récepteurs immunitaires innés épithéliaux. Dans les états métaboliquement inflammatoires, le facteur de nécrose tumorale α (TNF-α) engage un programme dépendant de NF-κB qui augmente la myosine à chaîne légère kinase (MLCK), entraînant l’endocytose de l’occludine et la réorganisation périjonctionnelle de l’actomyosine pour créer une voie de « fuite » — un effet démontré à la fois dans les modèles in vivo et in vitro 20,21.
Ces observations mécanistes correspondent aux phénotypes cliniques. Des études humaines démontrent systématiquement une perméabilité intestinale accrue dans le MASLD, ce qui est corrélé à la stéatose et à la gravité inflammatoire. Dans des études physiologiques liées à la biopsie, les patients atteints de stéatose hépatique non alcoolique (désormais dans le cadre du MASLD) présentent une perméabilité accrue au 51Cr-EDTA ainsi que des anomalies de la JT et une prolifération bactérienne de l’intestin grêle, la perméabilité étant positivement corrélée à la stéatose et à l’activité inflammatoire. Une revue systématique ultérieure des tests de perméabilité à double sucre a confirmé une perméabilité intestinale grêle significativement plus élevée chez le MASLD par rapport aux témoins sains, consolidant ainsi la lésion de la barrière épithéliale comme une caractéristique reproductible au niveau de la population. Dans ce contexte, les PAMPs luminaux et les signaux métaboliques accèdent plus facilement à la circulation portale, fournissant des entrées en amont qui activent la signalisation hépatique TLR4–NF-κB et permettent l’activation de l’inflammasome NLRP3.
Couplage microbiote intestinal–barrière en homéostasie et MASLD/MASH
Dans les conditions physiologiques, le microbiote intestinal contribue au maintien des barrières grâce à des effets coordonnés sur le mucus, les jonctions serrées et l’immunité muqueuse. La structure de la communauté comensale influence les propriétés de barrière muqueuse, tandis que les interactions épithélio-microbiennes façonnent le remodelage des jonctions étroites et la perméabilité trans-épithéliale, limitant ainsi la translocation microbienne des produits sous homéostasie 22,23,24. Les SCFA produites par la fermentation microbienne agissent comme des métabolites de signalisation qui peuvent soutenir les programmes de barrière épithéliale et tamponner les réponses transcriptionnelles inflammatoires, offrant une résilience fonctionnelle face à la perturbation desbarrières 23,25.
Dans le MASLD/MASH, la dysbiose et une altération de la production microbienne peuvent éroder ces programmes de stabilisation et amplifier la dysfonction de la barrière. La perméabilité altérée et la translocation microbienne augmentent l’exposition aux portales et abaissent le seuil d’activation immunitaire innée hépatique, créant un axe d’avance de la dysbiose à la défaillance de la barrière et à l’amplificationinflammatoire 23. Une illustration mécaniste directe est la production endogène d’éthanol par Klebsiella pneumoniae, produisant un taux élevé d’alcool, qui peut entraîner des phénotypes hépatiques sans alcool exogène, liant une fonction microbienne spécifique à une lésion métabolique de l’hôte et une susceptibilité inflammatoire enaval 2.
Cette sous-section consolide le lien « microbiote → ton de barrière → exposition au portail » afin de fournir un point d’entrée explicite pour interpréter les interventions de MTC intestin-proximale qui prétendent restaurer la barrière ou remodeler le microbiote.
Perturbation de la barrière vasculaire intestinale et exposition précoce au portail
Située sous l’épithélium, la barrière vasculaire intestinale (BVG) est formée par les cellules endothéliales capillaires sous-muqueuses et leurs complexes jonctionnels ; Fonctionnellement analogue à la barrière hémato-encéphalique, elle restreint la translocation de bactéries et de macromolécules à travers la paroi intestinale vers la circulationporte 26. Les modèles expérimentaux de stéatohépatite démontrent que la perturbation de la GVB précède l’inflammation hépatique, tandis que le renforcement pharmacologique de la signalisation endothéliale FXR–β-caténine atténue la charge inflammatoireportale 27.
Ensemble, ces résultats mettent en œuvre un modèle d’interception stratifié — « barrière épithéliale → GVB →exposition portale » — et nomment le GVB comme un nœud pathologique précoce traitable dans MASLD/MASH 28. Mécaniquement, l’intégrité GVB reflète la diaphonie entre les voies Wnt/β-caténine et FXR ; la régulation à la hausse de la protéine associée à la vésicule plasmaléléme (PLVAP/PV-1) marque l’ouverture fenestrale et est corrélée à unefuite 26,27. La compromission combinée de la barrière épithéliale et vasculaire augmente la délivrance effective par voie porte des signaux inflammatoires, abaissant ainsi le seuil de détection et d’amplification intrahépatiques27.
Flux de molécules d’origine intestinale et paysage d’exposition sinusoïdale hépatique
Au niveau de la population, l’endotoxine circulante (LPS) est le signal moléculaire le plus constamment associé à la progression du MASLD. Une méta-analyse récente montre des niveaux de LPS plus élevés dans le MASLD que chez les témoins, corrélés au stade de la maladie et aux résultats inflammatoires, soutenant ainsi une chaîne de preuve de « défaillance de la barrière → endotoxémie → inflammation hépatique» 1. L’éthanol endogène représente un second élément clé : Klebsiella pneumoniae, une forte production d’alcool, est enrichi dans une cohorte chinoise de MASLD, et la colonisation orale est suffisante pour induire un foie gras en l’absence d’éthanol exogène, établissant un lien causal entre une souche spécifique, son métabolite et une lésionhépatique 2. D’autres métabolites d’origine intestinale (par exemple, les acides biliaires et les SCFA) modulent les seuils inflammatoires mais sont ici traités comme des régulateurs contextuels plutôt que comme des facteurs d’expositionprimaires 29,30,31.
Activation et programmes effecteurs de la cascade hépatique TLR4–MyD88/TRIF–NF-κB
Une fois que les entrées portales atteignent les sinusoïdes hépatiques, les complexes TLR4/MD-2 sur les cellules de Kupffer, les hépatocytes et les cellules endothéliales sinusoïdes hépatiques détectent les ligands LPS et lipidiques, recrutent des adaptateurs MyD88 ou TRIF pour engager le complexe IKK, et entraînent la translocation nucléaire NF-κB, induisant ainsi le TNF-α, l’IL-1β et le CCL2, culminant avec une infiltration monocyte-macrophage et une lésion parenchymatose 3,32.
La signalisation TLR4 amplifie également les blessures via des axes chimiotactiques et fibrogéniques. La voie CCL2/CCR2 recrute des monocytes dérivés de la moelle osseuse dans le foie, et le blocage pharmacologique ou génétique du CCR2 réduit l’infiltration des monocytes Ly6C⁺ et atténue l’inflammation et la fibrose dans les modèles MASHalimentaires 4. Dans les cellules étoilées hépatiques, TLR4 régule à la baisse le pseudorécepteur TGF-β BAMBI, sensibilisant les cellules au TGF-β et couplant l’activation immunitaire innée à la programmation fibrogénique à travers lesvoies 5. Ainsi, lors de l’évaluation des interventions MTC, les preuves d’atténuation de l’axe TLR4–NF-κB–CCL2 (et de sensibilisation fibrogénique en aval) sont considérées comme mécaniquement plus importantes que les changements isolés des marqueurs inflammatoires généraux.
Activation à double signal de l’inflammasome NLRP3 et pyroptose
La signalisation TLR–NF-κB fournit l’étape d’amorçage (signal 1) pour NLRP3 et pro-IL-1β/IL-18, tandis que les roses mitochondriales, l’activation d’ATP–P2X7 et le cholestérol libre ou cristallin agissent comme des signaux d’activation (signal 2) qui assemblent le complexe NLRP3–ASC–caspase-1, produisant la formation mature d’IL-1β/IL-18 et de gasdermine-D (GSDMD) pour exécuter la pyroptose et propulser la progression inflammatoire-fibrotique33. À travers les modèles MASH et les tissus humains, l’hyperactivation de NLRP3 suit des traces inflammatoire et fibrotiques, et les cristaux de cholestérol constituent un DAMP clé et une source de signal 2 dans la stéatohépatite 6,34.
Le stade de la maladie et le contexte du modèle sont des qualificatifs essentiels. Dans les contextes riches en graisses et en cholestérol élevé (HFHC), soit la carence en Nlrp3 ni le traitement MCC950 n’ont pas réussi à améliorer les critères histologiques, indiquant que la composition et la fenêtre de dosage du DAMP déterminent la médicationabilité de l’inflammasome ; dans l’histoire naturelle de MASLD/MASH, NLRP3 est donc mieux considéré comme un amplificateur clé plutôt qu’une étape universelle limitant le débit, avec des implications directes pour les interventions stratifiées etcombinées 8,35. Cette dépendance au stade motive une séparation explicite de (i) les revendications précliniques de ciblage de l’inflammasome de (ii) les preuves humaines reliant les lectures d’inflammasome (par exemple, IL-1β/IL-18, GSDMD-N) à des critères cliniquement pertinents.
Voies de diaphonie modulatrice
Les voies BA–FXR/TGR5, SCFA–GPR41/43 et AMPK/Nrf2 modulent les seuils inflammatoires à travers cette cascade. Plutôt que d’étendre ces voies en détail, nous les conservons comme des niveaux modulateurs qui influencent la médicationabilité dépendante du stade de la colonne vertébrale barrière– TLR4–NLRP3 9,27.
Lorsque les défenses épithéliales et vasculaires échouent séquentiellement, les molécules dérivées de l’intestin amplifient la signalisation immunitaire intrahépatique innée, aboutissant à la pyroptose provoquée par l’inflammasome et à une progressionfibreuse 6,27,36. Cet échafaudage mécanistique rationalisé sert de base à laquelle les interventions de MTC sont évaluées dans les sections suivantes (voir Tableau 1).
| Nœud d’axe (niveau anatomique) | Événement mécanistique central | Contribution à l’activation et à l’inflammation de l’inflammasome | Relevés translationnels | Études représentatives |
| Écologie du microbiote intestinal | La dysbiose modifie les produits microbiens (charge d’endotoxines, production d’éthanol, transformation des acides biliaires, sortie de SCFA) | Augmente la charge inflammatoire portale et réduit le seuil d’activation du système immunitaire inné hépatique | Microbiome des selles (16S/métagénomique) ; métabolome de tabouret ; LBP/sCD14 circulant | Yuan et al., 20192 ; Tilg et al., 201637 |
| Couche muqueuse et jonctions étroites épithéliales | Remodelage TJ dépendant du TNF–NF-κB ; endocytose occludinienne ; Formation des pores de Claudin-2 | La perméabilité paracellulaire accrue facilite la translocation PAMP (amorçage du signal 1) | expression de ZO-1/occludine ; des tests de perméabilité à double sucre ; 51Cr-EDTA ; LBP/sCD14 | Ye et al., 2006: 38 ; Marchiando et al., 201021 |
| Barrière vasculaire intestinale (GVB) | Fuite endothéliale via Wnt/β-caténine et voies dépendantes de la FXR ; Régulation à la hausse du PLVAP/PV-1 | Amplifie la délivrance par le portal des signaux inflammatoires microbiens et métaboliques | Coloration PLVAP ; marqueurs portail/inflammatoires appariés ; Indices d’imagerie liés à l’exposition | Mouries et al., 201927 |
| Exposition moléculaire portale | Élévation circulante des endotoxines ; éthanol endogène ; milieu modifié du BA/SCFA | Renforce l’amorçage TLR4 ; module la permissivité de l’inflammasome | LPS (dépendant de la méthode) ; LBP ; sCD14 ; Profil BA ; Quantification SCFA | Farhadi et al., 200839 ; Yuan et al., 20192 |
| Signalisation hépatique TLR4 | TLR4–Activation MyD88/TRIF–NF-κB ; BAMBI à la baisse ; Induction CCL2 | Amorçage du signal 1 du NLRP3 ; chimiotaxie ; sensibilisation des cellules stellées au TGF-β | Cibles hépatiques TLR4/NF-κB ; CCL2 ; α-SMA ; Transcriptions en collagène | Seki et al., 20075 ; Sharifnia et al., 20153 |
| Activation de l’inflammasome NLRP3 | Amorçage NF-κB (signal 1) + déclencheurs DAMP (ROS, ATP–P2X7, cristaux de cholestérol) (signal 2) | activation de la Caspase-1 ; libération d’IL-1β/IL-18 ; Amplification pyroptotique | IL-1β ; IL-18 ; activité de caspase-1 ; Clivage GSDMD | Wree et al., 201440 ; Mridha et al., 20177 |
| Ganglions métabolique-immunitaires de diaphonie croisée | BA–FXR/TGR5 ; SCFA–GPR41/43 ; Voies AMPK/Nrf2 | Réinitialisez les seuils inflammatoires et la médication dépendante du stade | FGF19–C4 ; Signatures BA ; Niveaux SCFA ; Cibles AMPK/Nrf2 | Neuschwander-Tetri et al., 20159 ; Kimura et al., 201325 |
Tableau 1 : Points de contrôle mécanistes reliant la défaillance de la barrière à l’activation de l’inflammasome hépatique dans MASLD/MASH.
Pharmacologie des systèmes et mécanismes moléculaires des interventions de MTC
Un cadre de pharmacologie des systèmes avec validation multi-omiques
Utiliser la pharmacologie systèmes/réseaux comme générateur d’hypothèses — projeter des relations « composé–cible–voie » sur la pathobiologie de MASLD/MASH puis refermer la boucle avec des multi-omiques et des expérimentations à plusieurs échelles — offre une voie accessible vers des revendications mécanistesreproductibles 41.
Cependant, dans cette revue, la pharmacologie des systèmes est explicitement traitée comme génératrice d’hypothèses plutôt que comme confirmatrice. Les inférences dérivées du réseau sont considérées comme ancrées translationnellement uniquement lorsqu’elles sont alignées avec (i) les données cliniques humaines, (ii) la plausibilité dose-exposition, (iii) un site d’action anatomiquement cohérent, et (iv) des lectures de voies reproductibles.
Le dépistage et l’enrichissement basés sur des bases de données seuls sont sujets à des taux de faux positifs gonflés ; Les réseaux proposés doivent donc être testés par rapport aux contraintes dose–exposition, au site et au temps d’action, ainsi qu’aux liens cliniques avant d’être avancés comme modèlesexplicatifs 42.
Ce flux de travail bénéficie déjà d’un support paradigmatique pour la berbérine (BBR). Le BBR administré par voie orale inhibe l’hydrolase microbienne des sels biliaires (BSH), augmente les acides biliaires conjugués luminaux tels que l’acide taurocholique (TCA), active l’axe iléal FXR–FGF15, et régule à la baisse les programmes d’absorption lipidique hépatique (par exemple, Cd36), améliorant collectivement la gestion des lipides hépatiques et réduisant la charge inflammatoire intestin-foie enaval 12,13. Dans les études intégrées animal–omiques, la cascade inférée BSH→TCA→FXR/FGF15 correspond aux réponses transcriptionnelles hépatiques, ce qui indique un lieu d’action intestinal plutôt qu’une efficacité due à une exposition systémique élevée 12,43,44.
Des preuves au niveau des formules émergent. Dans un essai randomisé en double aveugle, Qushihuayu (QSHY) a amélioré les enzymes hépatiques et les indices de fibrose de substitution, accompagnés de changements coordonnés dans le microbiome intestinal et les profils de métabolites, soutenant la faisabilité d’une triade de validation « rețe→multi-omique→endpoints cliniques» 15,45. Cependant, dans les interventions MTC dans MASLD/MASH, le nombre d’ECR suffisamment puissants reste limité, les critères d’évaluation sont souvent basés sur des substitutions, et le rapport de dissimulation/aveuglement et de thérapie concomitante varie, nécessitant une évaluation structurée de la solidité des preuves.
Dimension de la gradation des preuves et risque de biais. Pour répondre à l’hétérogénéité et permettre une synthèse structurée, nous classons les preuves en quatre niveaux : Niveau 1, essais contrôlés randomisés avec des critères d’évaluation prédéfinis ; Niveau 2, études contrôlées non randomisées ou observationnelles sur l’humain ; Niveau 3, modèles animaux ; et Niveau 4, inférence in vitro, computationnelle ou basée sur réseau46,47. Les dimensions de risque de biais prises en compte incluent la randomisation et la dissimulation de l’allocation, l’aveuglement, la hiérarchie et la multiplicité des points d’extrémité, la durée du suivi, la pré-inscription, l’attrition, l’adhésion et le contrôle de la thérapie de fond. Au-delà du type d’étude seul, la force des preuves dans cette revue est interprétée comme un ensemble composé de (i) la hiérarchie du plan d’étude, (ii) la validité interne et les domaines de risque de biais, (iii) la cohérence entre les études indépendantes, (iv) l’alignement entre l’engagement mécanistique des nœuds et les critères cliniques, et (v) la plausibilité pharmacocinétique de l’exposition à la cible. La cohérence mécanistique sans alignement des points d’arrivée humains est considérée comme génératrice d’hypothèses, tandis que les signaux cliniques sans concordance de voies sont interprétés avec prudence comme des effets potentiellement non spécifiques. Cette évaluation intégrative est appliquée à toutes les interventions de MTC discutées ci-dessous.
Cartographie interventionnelle le long de la colonne immunitaire intestin–foie
Au niveau de la barrière, le MASLD/MASH précoce présente une perturbation de l’épithélium intestinal et de la barrière vasculaire intestinale (GVB), augmentant la charge porte des PAMP. L’agonisme du FXR stabilise la GVB via la signalisation endothéliale Wnt/β-caténine, réduisant ainsi l’exposition hépatique en aval et l’activation inflammatoire — un axe validé dans les modèles alimentairesMASH 27,48. Dans les interventions de médecine traditionnelle chinoise (MTC), les polysaccharides augmentent l’expression de ZO-1/occludine, réduisent la perméabilité et diminuent l’afflux d’endotoxines portales, constituant une stratégie de « dé-exposition » enamont 49. La plupart des revendications de protection des barrières restent des preuves de niveau 3, sauf si elles sont étayées par des mesures de perméabilité humaine ou des proxys portail/exposition associés à des critères cliniques.
Le module TLR4–MyD88–NF-κB agit comme amplificateur initiateur pour les programmes pro-inflammatoires et chimiotactiques hépatiques. Dans les cellules stellées hépatiques, la signalisation TLR4 régule à la baisse le pseudorécepteur TGF-β BAMBI, sensibilisant les cellules au TGF-β et facilitant la transition de l’inflammation à lafibrose 5,50. Conformément à la cible de ce nœud, les polysaccharides d’astragalus (APS) suppriment TLR4 et phospho-NF-κB dans l’intestin et le foie, et diminuent les sorties en aval de TNF-α/IL-6, indiquant une inhibition couplée le long du continuum49 « barrière →TLR4 ». Pour l’inférence translationnelle, les lectures cohérentes par la voie (par exemple, atténuation des axes TLR4–NF-κB–CCL2 avec des substituts de fibrose) sont plus pondérées que les changements isolés des marqueurs inflammatoiresgénéraux 51,52,53.
En tant que plateforme de second impact, l’inflammasome NLRP3 nécessite un amorçage dépendant de NF-κB (régulation à la hausse de la NLRP3 et pro-IL-1β) ainsi que des indices d’activation issus de la lipotoxicité, des cristaux de ROS ou de cholestérol. Dans des échantillons cliniques et plusieurs modèles murins MASH, l’inhibition ou le blocage de son activation par NLRP3 réduit l’inflammation hépatique et la fibrose, bien que les tailles d’effet varient selon les régimes et les contextes métaboliques — ce qui implique la composition et le moment du DAMP comme déterminants de lamédicationabilité 7,40. Dans les études orientées MTC, l’APS diminue la signalisation NLRP3 et la maturation/libération d’IL-1β/IL-18, ce qui équivaut à une double contrainte lors de l’amorçage et de l’activation ; Les polysaccharides dérivés de la ganodermie remodelent le microbiote et atténuent l’endotoxémie de bas grade, diminuant indirectement la propension à déclencher laNLRP3 49,54. Ces résultats sont principalement des preuves de niveau 3 ; Le lien avec les critères de dépistage de la fibrose humaine ou les mesures d’imagerie reste clairsemé et doit être interprété avec prudence. Au niveau de la diaphonie des voies, BA–FXR/TGR5 et SCFA–GPR41/43 accordent conjointement le couplage immunométabolique ; Les SCFA engagent leurs récepteurs pour stabiliser l’énergie et l’homéostasie immunitaire, modulant ainsi la vulnérabilitéhépatique 25. Intégration de ces ganglions, des relevés de barrières (ZO-1/occludine, perméabilité, LBP/EAA), des sorties pro-inflammatoires (TNF-α, IL-6 et axes chimiotaxis associés), des sorties d’inflammasome (IL-1β/IL-18, caspase-1/GSDMD) et des relevés récepteurs nucléaires/métaboliques (profils BA avec cibles FXR/TGR5 ; Les SCFA avec GPR41/43) peuvent être co-enregistrées à travers des couches multi-omiques afin de renforcer la validité externe de l’inférencemécanistique 25,27,49. Dans cette revue, cette co-enregistrement est utilisée pour évaluer la cohérence mécanistique, mais l’alignement des critères humains, reste le principal déterminant de la force de la preuve.
Contraintes pharmacocinétiques et du site d’exposition sur l’inférence mécanistique
Chez les rats, la biodisponibilité orale absolue de la berbérine (BBR) est de ~0,36 % à 0,68 %, limitée par le dégagement intestinal au premier passage et l’efflux de P-gp ; La distribution tissulaire révèle une forte partition hépatique malgré de faibles niveauxplasmatiques 55,56,57. Ces caractéristiques définissent le BBR comme un modulateur local de l’axe intestin–foie dont l’exposition luminale est suffisante pour engager la cascade BSH→BA→FXR/FGF1555,57. Les stratégies de formulation qui augmentent nettement l’exposition systémique peuvent déplacer le principal site d’action et la fenêtre de sécurité ; Les revendications mécanistes doivent donc rapporter les concentrations portales et systémiques parallèlement aux relations exposition–réponse 57.
Une faible exposition systémique n’empêche pas le BBR de réduire l’entrée de PAMP portale via un axe microbiote–acide biliaire–récepteur nucléaire et de diminuer la propension hépatique à l’activation du TLR4/NLRP3 — résultats maintes fois confirmés par des expériences multi-omiques etsegmentaires 12,13,58. En revanche, les polysaccharides/oligosaccharides restent en grande partie luminaux après l’accouchement oral, l’efficacité étant déterminée par la réparation de barrières et les produits de fermentation microbienne (SCFA). Leur efficacité dépend de la dose luminale atteignable, de la cinétique de fermentation et des fenêtres temporelles des acides biliaires secondaires et des SCFAs ; en conséquence, les métabolomiques BA/SCFA en séries temporelles couplées aux protéines barrières et aux métriques de perméabilité fournissent des lectures appropriées pour l’attribution 25,59,60. L’incapacité à intégrer la plausibilité pharmacocinétique (exposition luminale, cinétique de fermentation, fenêtres temporelles des métabolites) est une faiblesse récurrente dans l’attribution mécanistique dans les études de MTC et contribue à une reproductibilité limitée.
Hiérarchie des preuves, biomarqueurs compagnons et contrôle qualité
Les signaux de translation ont émergé à plusieurs niveaux. Dans un essai contrôlé randomisé de phase 2 du complexe ionique berbérine–ursodésoxycholate (HTD1801/BUDCA), l’IRM-PDFF a diminué de manière significative parallèlement à des améliorations des paramètres métaboliques, cohérentes avec la translatabilité au niveau de la population de la modulation immunométabolique liée à BA–FXR 14,61. Au niveau de la formule, un ECR multicentrique en double aveugle de Qushihuayu (QSHY) a démontré des changements concordants dans le microbiome intestinal et les profils de métabolites, ainsi que des améliorations des enzymes hépatiques et de la FIB-4, soulignant comment les biomarqueurs compagnons renforcent l’interprétabilité causale des lecturescliniques 15. Lorsque cela est possible, les critères de niveau 1 (graisses ou substituts pour la fibrose basés sur l’imagerie) sont prioritaires par rapport aux résultats biochimiques uniquement.
Les constats neutres et négatifs doivent être intégrés pour atténuer les rapports sélectifs. Dans les sous-ensembles de MASLD, la berbérine n’a pas surpassé le contrôle des enzymes hépatiques ou lipides, l’hétérogénéité étant plausiblement déterminée par le phénotype métabolique de base, le statut de perméabilité, les médicaments concomitants et les différences de dose/exposition — ce qui prévoit un typage de réponse prédéfini et une stratification menée par biomarqueurs dans les essaisfuturs 62. Une méta-analyse clinique mise à jour en 2024 rapporte des améliorations globales des enzymes hépatiques, des lipides et de la sensibilité à l’insuline avec la berbérine, mais met en lumière l’hétérogénéité des études et la nécessité de RCT de meilleure qualité pour définir les limites des populations63. Entre les interventions, la variabilité dans la conception de l’étude, la sélection des critères de substitution, la durée du suivi et la thérapie de fond compliquent la comparabilité entre essais. Les tailles d’effet sont souvent modestes, et la déclaration des domaines à risque de biais est incohérente.
Pour la reproductibilité, des marqueurs de qualité (Q-markers) et le contrôle qualité de bout en bout — reliant la base du matériel et l’exposition in vivo aux lectures pharmacodynamiques — ont été proposés comme éléments fondamentaux pour la normalisation des études sur la MTC ; Associé aux avancées en pharmacologie système/réseau et à la validation multi-omiciques, ce cadre peut améliorer la reproductibilité externe et la traductabilitéclinique 41. La standardisation, la cohérence batch à lot et l’alignement réglementaire sont des déterminants critiques de la scalabilité et de la comparabilité croisée, et sont ici considérées comme des éléments essentiels de la crédibilité translationnelle plutôt que comme des considérations accessoires. Pris ensemble, les preuves actuelles soutiennent la plausibilité biologique de multiples interventions MTC le long de la colonne vertébrale barrière TLR4–NLRP3. Cependant, seul un sous-ensemble (par exemple, les formulations à base de berbérine et certains essais de formules) répond aux critères de niveau 1 avec des critères humains soutenus par imagerie, et même ceux-ci sont contraints par des tailles d’effet modestes et une hétérogénéité. La majorité des revendications au niveau des voies — en particulier celles impliquant la modulation de l’inflammasome ou la stabilisation du GVB — restent principalement soutenues par des données précliniques de niveau 3 et doivent être considérées comme mécanistiquement cohérentes mais cliniquement provisoires.
Interventions représentatives : preuves translationnelles le long de l’axe barrière TLR4–NLRP3
La berbérine restaure la fonction de la barrière intestinale et atténue la signalisation de l’inflammasome NLRP3
La berbérine administrée par voie orale présente une faible exposition systémique avec une forte disponibilité luminale : chez les rongeurs, la biodisponibilité orale absolue est de ~0,36 % à 0,68 %, limitée par le dégagement intestinal au premier passage et l’efflux de laP-glycoprotéine 55,57. Le microbiote intestinal peut réduire la BBR à la dihydroberbérie, une forme plus absorbable, compatible avec une trajectoire d’exposition « intestin d’abord, foie ensuite »64. Ces caractéristiques pharmacocinétiques et biotransformationnelles positionnent la BBR pour moduler les processus intestin-foie en amont qui façonnent la transduction inflammatoire hépatique en aval.
À l’interface de la barrière, la BBR atténue la mauvaise localisation induite par les endotoxines/cytokines pro-inflammatoires de ZO-1/occludine/claudins et réduit la fuite paracellulaire, en partie via l’inhibition de l’axe NF-κB–MLCK ; cela réduit indirectement la charge de LPS portale et l’exposition hépatiquesinusoïdale à 65. La BBR supprime également l’activité de NF-κB dans la muqueuse du côlon et les macrophages de la lamine proprie, diminuant le TNF-α et l’IL-6 et atténuant encore la cascade TLR4–MyD88–NF-κB66,67. Ces effets de barrière et d’axe TLR4 sont principalement soutenus par des preuves de niveau 3 (animales), avec une quantification directe de perméabilité limitée dans les cohortes humaines de MASLD.
Au niveau du nœud inflammasome, le BBR limite l’activation de NLRP3 et la pyroptose dans les modèles de stress nutritionnel/lipotoxique, en partie en modulant à la baisse l’axe ROS–TXNIP qui intègre les indices d’amorçage et d’activation, réduisant ainsi l’activation de la caspase-1 et la libération68 de l’IL-1β/IL-18. Bien que cohérents sur le plan mécanistique, ces résultats inflammasomiques restent largement précliniques et nécessitent une validation par rapport à la fibrose humaine ou aux critères d’imagerie.
La BBR agit également via l’axe endocrinien des acides biliaires (BA) : l’inhibition de l’hydrolase microbienne des sels biliaires (BSH) augmente les BA conjugués luminaux, notamment l’acide taurocholique, active la voie iléale FXR–FGF15, et régule à la baisse les programmes d’absorption lipidique hépatique tels que Cd36 — reliant la reprogrammation métabolique à une susceptibilité réduite àl’inflammasome 12. Ce mécanisme BA–FXR offre une plausibilité biologique pour des effets à l’échelle transversale mais n’établit pas, à lui seul, une efficacité clinique.
Dans des études cliniques, un ECR de phase 2 du complexe ionique berbérine–ursodésoxycholate (BUDCA/HTD1801) a montré des réductions significatives de l’IRM-PDFF avec des bénéfices métaboliques concomitants par rapport au placebo, cohérent avec une translarcabilité croisée de l’axe intestin–BA–FXR vers les lectures lipotoxiques/inflammatoireshépatiques 14. Les méta-analyses récentes rapportent des tailles d’effet globalement modérées pour l’ALT/AST et la stéatose hépatique, tout en notant l’hétérogénéité entre les ECR dans les profils de dose, de formulation et d’enrôlement — soulignant le besoin de biomarqueurs compagnons et de stratification par typede réponse 63,69. Les considérations liées au risque de biais incluent l’aveuglement variable, la durée limitée du suivi et la dépendance au point d’arrivée de substitution. Les données de sécurité sont généralement favorables, mais la surveillance à long terme de l’hépatotoxicité et le profilage des interactions médicamenteuse (par exemple, modulation CYP/P-gp) restent incomplètement caractérisés.
Pour la conception translationnelle, les indices de perméabilité, la LBP et l’IRM-PDFF fournissent des marqueurs compagnons rationnels. Les essais futurs bénéficieraient d’un typage de réponse prédéfini et d’un rapport sur la taille de l’effet stratifié selon la perméabilité de base ou le statut d’activation de l’inflammasome. Dans l’ensemble, la berbérine représente l’une des rares interventions dérivées de la MTC soutenues par des preuves basées sur l’imagerie de niveau 1, bien que présente des tailles d’effet modérées, une hétérogénéité entre les formulations et une confirmation histologique limitée. Les affirmations mécanistes au-delà de la modulation des acides biliaires/FXR — en particulier la suppression de l’inflammasome — restent largement précliniques et doivent être considérées comme plausibles sur le plan translationnel mais pas encore établies cliniquement.
Qushihuayu (QSHY) : Preuves cliniques et multi-omiques multicentriques le long de l’axe barrière acide biliaire–TLR4
Dans des études précliniques, QSHY et sa formule précursrice QHD rétablissent les jonctions serrées du côlon et limitent la translocation LPS ; le profilage phosphoprotéomique du côlon pointe vers la signalisation MAPK comme régulateur en amont, cohérent avec la séquence « réparation de barrière → réduction de la charge PAMP portale → signalisation hépatique TLR atténuée »70. Au niveau hépatocellulaire, la QHD active l’AMPK, améliore l’oxydation de la β dépendante du CPT-1A, et réduit ainsi le drive lipotoxique et les entrées inflammatoiressecondaires 71,72. Les analyses multi-omiques montrent également un remodelage concomitant du microbiote intestinal et des profils lipidiques/métabolites sériques, indiquant que l’intervention couvre plusieurs nœuds de l’interface métabolique intestin–foie 73. Collectivement, ces résultats constituent principalement des preuves mécanistiques de niveau 3 qui soutiennent la plausibilité biologique, mais ils ne définissent pas la taille ou la durabilité de l’effet clinique chez l’humain.
Cliniquement, un ECR multicentrique, double aveugle et double faux (n=246) de 2024, utilisant VCTE-LFC et ALT comme critères co-primaires, a trouvé QSHY supérieur au contrôle pour ALT, AST et FIB-4, avec des signatures microbiotiques et métabolitiques suivant la réponse clinique — reliant les déplacements « microbiote–métabolites » aux lectures transaminases etélastographiques 15, mais l’interprétation est limitée par la dépendance aux critères de substitution de substitution, la durée de 24 semaines, et les risques de confusion résiduelle liés aux co-interventions liées au mode de vie. Les effets sur plusieurs critères secondaires d’imagerie étaient limités, et l’hétérogénéité entre sujets (y compris la perméabilité de base et le statut inflammatoire) diluait probablement le signal, soutenant la stratification basée sur la perméabilité/inflammation dans les essais ultérieurs. Lorsque cela est possible, la déclaration de la dissimulation de l’allocation, de l’adhésion et des écarts de protocole est cruciale pour contextualiser le risque de biais pour les tailles d’effet observées.
Deux priorités translationnelles suivent. Premièrement, biomarqueurs compagnons et strates prédéfinies : les patients avec une lombalgie basale élevée, des proportions anormales d’acides biliaires secondaires fécales ou une IL-1β plus élevée sont théoriquement plus susceptibles de bénéficier d’une inhibition coordonnée le long de l’axe barrière BA–TLR4 15. Deuxièmement, la qualité et la traçabilité de l’exposition : adopter des marqueurs Q basés sur l’empreinte digitale (flavonoïdes/acides phénoliques représentatifs) et les associer à l’exposition in vivo et aux effets pharmacodynamiques. Étant donné la nature basée sur les formules du QSHY, la cohérence batch à lot et la caractérisation transparente des fractions actives sont des prérequis pour la comparabilité croisée et le développement de qualité réglementaire74,75. Les stratégies combinées sont complémentaires sur le plan anatomique et mécanistique — le resmétirom vise principalement les critères de gestion des lipides hépatocellulaires et les objectifs de fibrose, tandis que les agonistes des récepteurs GLP-1 agissent sur le poids et la résistance à l’insuline — faisant du co-développement avec QSHY une voie rationnelle vers une couverture de réponse pluslarge 76,77. De telles combinaisons doivent être évaluées avec un suivi de sécurité prédéfini et une documentation thérapeutique de fond consciente de l’interaction, en particulier lorsque les médicaments métaboliques concomitants sont courants dans les cohortes MASLD/MASH. En résumé, QSHY est soutenu par des preuves de niveau 1 concernant des résultats biochimiques et élastographiques, mais son ampleur et sa durabilité d’effet restent à confirmer dans des essais plus longs, centrés sur l’imagerie ou histologiques. La plupart des revendications de cartographie mécanistique des nœuds restent de niveau 3, et l’avancement réglementaire dépendra de la standardisation et de la réplication entre cohortes indépendantes.
Décoction Da-Chai-Hu (DCHD) : Maintien de la barrière vasculaire intestinale et réajustement de la diaphonie PPARα/AMPK–NF-κB
La DCHD améliore les lipides, la résistance à l’insuline et l’histologie hépatique dans les modèles HFD-MASLD, accompagnée d’un remodelage du microbiote intestinal et du métabolome sérique, cohérent avec une action coordonnée à la barrière en amont et aux ganglions immunométaboliques intrahépatiques16,78. À la « seconde barrière », la barrière vasculaire intestinale (GVB), la DCHD préserve l’intégrité endothéliale sous surcharge nutritive dans les modèles d’interaction intestin-foie, réduit le flux portail de molécules pathogènes et réduit les événements de translocation hépatique, mettant en lumière la plasticité du PLVAP/PV-1 et des jonctions endothéliales ; bien qu’ils soient dérivés dans un contexte de métastases intestin-foie, ces résultats fournissent un soutien mécanistique de niveau 3 pour la stabilisation de la GVB et motivent les tests dans des contextes pertinents pour la MASLD avec des critères liés à la perméabilité/endotoxines. Au centre de signalisation hépatique, les effets de DCHD s’alignent avec la modulation à l’intersection PPARα/AMPK–NF-κB, indiquant une influence au niveau du système sur le couplageimmunométabolique 79. Dans l’ensemble, les preuves actuelles de la DCHD restent principalement précliniques et génératrices d’hypothèses, avec des données humaines limitées de niveau 1–2 directement ancrées sur des résultats concordants par les voies.
Sur le plan des preuves, une revue systématique de 2024 suggère un bénéfice global de la DCHD sur les transaminases, les lipides et certaines mesures d’imagerie, tout en soulignant les limites liées à la qualité de l’étude et à l’hétérogénéité des critères d’évaluation ; les études cliniques disponibles sont hétérogènes dans leur conception, reposent fréquemment sur des critères de référence substitutifs et fournissent un rapport de résultats par paliers limité (MRI-PDFF/ELF/MRE), limitant l’inférence sur la taille de l’effet et la durabilité80. Les préoccupations liées au risque de biais incluent l’aveuglement/dissimulation variable de l’allocation, le contrôle de la thérapie de fond et la déclaration incomplète de l’adhésion et de l’attrition, qui compliquent la comparabilité entre essais. Une étape translationnelle suivante est un ECR enrichi par mécanismes qui cible doublement le GVB et les critères de barrière épithéliale — par exemple, la perméabilité fécale/sérique — marqueurs d’endotoxines plus PDFF/ELF — et enrichit prospectivement les participants ayant une forte charge de PAMP portale, afin d’augmenter la probabilité de détecter un bénéfice clinique concordant avecla voie 80. Étant donné la probabilité de médicaments métaboliques concomitants (par exemple, statines, metformine) dans les cohortes MASLD/MASH, une documentation consciente de l’interaction et un suivi de sécurité prédéfini doivent être intégrés dans la conception de l’essai. Pris ensemble, la DCHD repose actuellement principalement sur des données mécanistiques de niveau 3 et des signaux cliniques hétérogènes. Son positionnement comme intervention modulant la GVB est biologiquement cohérent mais reste cliniquement provisoire en attendant la validation de l’endpoint humain concordant sur les voies.
Polysaccharides issus de la médecine traditionnelle chinoise (Astragalus, Ganoderma) : Renforcement de l’immunité muqueuse et suppression coordonnée de TLR4–NF-κB–NLRP3
Les polysaccharides de la MTC sont principalement exposés à la lumière lumineuse et sont donc bien positionnés pour agir sur les programmes immunitaires muqueux et sur la communication entre microbiotes et métabolites. Les polysaccharides d’astragalus (APS) remodèlent l’homéostasie des acides biliaires et le couplage microbiote–BA dans les modèles HFD-MASLD, améliorant la stéatose hépatique et les résultats inflammatoires, et indiquant l’activité à travers le pont « barrière – BA–foie » 18,81. Les polysaccharides de ganoderma augmentent l’IgA sécrétoire, restaurent les cellules gobelets et les jonctions serrées, et augmentent les transcripts TLR2/4/6 dans des contextes immunosuppressifs, conformément à une « réduction du bruit » en amont de l’immunité muqueuse–barrière–TLRtonalité 82. Au sein du foie, les polysaccharides de Ganoderma suppriment l’inflammasome NLRP3 et réduisent la sortie d’IL-1β/IL-18, soutenant l’interruption du relaispyroptose-fibrose 17. Une synthèse récente a catalogué des mécanismes multidimensionnels par lesquels les polysaccharides améliorent la MASLD via l’axe intestin-foie et a proposé des normes pour la définition des marqueurs Q et la cartographieexposition-effet 83. Collectivement, ces données sont principalement des preuves de niveau 3 (précliniques) ; Les études humaines robustes de niveau 1–2 avec des critères centrés sur l’imagerie ou la fibrose restent limitées.
Plusieurs contraintes méritent d’être clarifiées. La plupart des études sur les polysaccharides restent précliniques ou en phase précoce ; L’hétérogénéité de fabrication et la répartition des poids moléculaires varient largement, et les concentrations atteignables in vivo avec une consistance batch à lot sont des goulets d’étranglement récurrents. Cette hétérogénéité complique la reproductibilité, car « polysaccharide » désigne souvent un mélange avec des spectres de poids moléculaire, une pureté et une bioactivité variables selon les préparations. Des résultats neutres sur les résultats d’imagerie ou d’inflammation sont possiblement motivés par des différences de formulation, une durée sous-optimale et des médicaments concomitants. En conséquence, des résultats négatifs ou neutres doivent être rapportés et intégrés afin de réduire le biais de publication et la surestimation de l’efficacité. Pour la traduction clinique, un schéma de réponse à dominante barrière — perméabilité élevée, lésbie liblaire élevée et faible sIgA au départ — associé à des points de départ en niveaux (sIgA/microbiote/SCFAs → LBP/16S rDNA → IRM-pdff/ELF) fournit une chaîne d’attribution auditable, tandis que les empreintes digitales de polysaccharides et les spectres de poids moléculaire peuvent servir de primitives de marqueurs Q alignées sur l’exposition et les effetspharmacodynamiques 84,85. De plus, la caractérisation chimique/structurale (par exemple, composition monosaccharidique, profilage de liaison glycosidique, et répartition moléculaire du poids) peut renforcer la traçabilité et la standardisation de qualité réglementaire au-delà des mesures grossières de « contenu en polysaccharides» 86,87. Les stratégies combinées avec des agonistes du resmétirom ou des récepteurs GLP-1 sont mécanistiquement complémentaires, les premières mettant l’accent sur la manipulation des lipides hépatocellulaires et les relevés de fibrose, les secondes mettant l’accent sur le poids et la résistance à l’insuline 74,88,89. De telles combinaisons doivent être évaluées avec un suivi de sécurité préalablement spécifié et une documentation rigoureuse de la thérapie de fond, en particulier chez les populations recevant plusieurs agents métaboliques.
Sur quatre classes d’intervention, les nœuds d’ancrage le long de la colonne vertébrale TLR4–NLRP3 sont distincts mais convergents dans le flux de preuves—de la pharmacocinétique et du site d’action en passant par les lectures multi-omiques jusqu’aux critères de la population. La berbérine agit par une forte exposition intestinale et une signalisation BA–FXR ; QSHY assure un contrôle coordonné sur l’axe barrière – acide biliaire – TLR4 ; La DCHD établit une double défense au niveau du BVB et de la barrière épithéliale grâce à un réajustement immunométabolique ; Les polysaccharides réduisent le bruit en amont à travers les circuits immunité-barrière-inflammasome muqueuse. Élever les marqueurs mécanistiques (perméabilité/LBP, sIgA, profils BA, IL-1β/IL-18) ainsi que des points d’épingle d’imagerie en paliers (IRM-PDFF et ELF/MRE lorsque possible) vers des stratifiateurs prédéfinis peut améliorer l’interprétabilité et réduire l’hétérogénéité ; Intégrer ces éléments dans le contrôle qualité piloté par les marqueurs Q et la liaison exposition-effet est essentiel pour la reproductibilité et la traductivité de qualité réglementaire. Les futurs essais devraient verrouiller des critères hiérarchiques associant les indices barrière/GVB avec IRM-PDFF/ELF/MRE et enrichissant a priori les sous-groupes « haute perméabilité–inflammation » afin d’affiner la voie signal-issue. Ainsi, bien que les polysaccharides démontrent une cohérence immunomodulatrice convaincante à travers les ganglions barrières et inflammasomes, la base actuelle de preuves reste largement préclinique. La validation clinique avec des préparations standardisées, des Q-markers reproductibles et des critères d’imagerie par paliers est nécessaire avant de pouvoir tirer des conclusions fermes sur l’efficacité.
Entre les interventions, la force probante est inégale. Les formulations à base de berbérine disposent actuellement des données les plus solides supportées par l’imagerie humaine, tandis que QSHY démontre un support émergent des RCT multicentriques principalement pour les critères de substitution. La DCHD et les polysaccharides restent mécanistiquement cohérents mais majoritairement soutenus par des preuves précliniques ou hétérogènes. Cette asymétrie souligne l’importance d’une classification structurée, de la réplication et des formulations standardisées avant que les revendications translationnelles larges ne soient avancées ( voir Tableau 2).
| Classe d’intervention | Node(s) primaire(s) sur la colonne vertébrale | Principales affirmations mécanistes | Résultats translationnels rapportés dans les études originales | Statut des preuves humaines | Niveau de preuve | Études représentatives |
| Formulation à base de berbérine / berbérine (HTD1801/BUDCA) | Barrier/BA–FXR ; TLR4/NLRP3 en aval (principalement préclinique) | Inhibition microbienne de la BSH → BA conjuguée ↑tauro (par exemple, TCA) → activation iléale FXR–FGF15 → ↓hépatique Cd36 ; Atténuation de la barrière/axe TLR4 et de retenue inflammasome proposées | Imagerie : IRM-PDFF ; Biochimique : ALT/AST, paramètres métaboliques ; Mécanistique : cibles FXR/FGF15 iléales, profils BA | ECR contrôlé par placebo de phase 2 avec réduction IRM-PDFF (plus résultats métaboliques) | Niveaux 1–2 pour les critères d’imagerie/biochimiques ; Niveau 3 pour les revendications sur l’inflammasome | Harrison, et.al, 202114 ; Dimanche et.al 201712 ; Nejati, et.al, 202262 ; Nie, et.al, 202463 |
| Qushihuayu (QSHY) / ancêtre QHD | Barrière ; l’accordage métabolique lié au BA/AMPK ; Axe TLR4 (mécanistique) | restauration de TJ et réduction de la translocation LPS ; Régulation en amont liée au MACK (préclinique) ; FAO lié à AMPK/CPT-1A et reprogrammation métabolique ; Remodelage microbiote–lipidome | Humain : ALT/AST, FIB-4 ; VCTE-LFC (co-primaire avec ALT) ; le suivi de la réponse du microbiome/métabolite ; Préclinique : lectures AMPK/CPT-1A/FAO ; Variations microbiome + lipidomiques | ECR multicentre, double invisible, double factice avec extrémités co-primaires (VCTE-LFC + ALT), substituts de fibrose secondaire | Niveau 1 pour les critères cliniques de substitution + association omique ; Niveau 3 pour les revendications de nœuds mécanistes | Liu, et.al, 202415 ; Feng, et.al, 201371 ; Dimanche, et.al 202272 |
| Décoction Da-Chai-Hu (DCHD) | GVB ; barrière en amont ; PPAR/AMPK–NF-κB (préclinique) | Préserve l’intégrité du GVB (lié à PLVAP/PV-1) sous hypernutrition ; réduit les événements de flux de portail/translocation ; améliore le phénotype métabolique et inflammatoire dans les modèles de NAFLD | Préclinique : histologie, lipides/mesures RI ; microbiote intestinal + métabolomique sérique ; Marqueurs d’intégrité GVB (PLVAP/PV-1) | Preuves cliniques principalement issues d’études hétérogènes résumées dans une revue systématique ; Points d’extrémité à niveaux d’imagerie limités | Principalement niveau 3 ; signaux cliniques hétérogènes | Cui, et.al, 202016 ; Wang, et.al, 202378 ; Mou, et.al, 202480 |
| Polysaccharides de la MTC (Astragalus, Ganoderma) | immunité/barrière muqueuse ; TLR4–NF-κB ; NLRP3 (principalement préclinique) | Renforcement de barrière (protéines TJ), modulation immunitaire muqueuse (sIgA) ; réduction de l’endotoxémie ; Une retenue inflammasome signalée ; Couplage microbiote/BA dans les modèles NAFLD | Préclinique : protéines TJ (ZO-1/occludine), sIgA, cytokines ; composition du microbiote intestinal ; l’homéostasie de l’AB (y compris les relevés axés sur la voie de l’Abaissement) ; Foie : marqueurs inflammasomes (IL-1β/IL-18/NLRP3 dans les modèles de blessure) | Essais robustes centrés sur l’imagerie et la fibrose humaine limités ; Preuves principalement mécanistiques/précliniques | Principalement niveau 3 | Zheng, et.al, 202418 ; Ying, et.al, 202082 ; Zhong, et.al, 202249 |
Tableau 2 : Interventions représentatives cartographiées sur l’axe barrière–TLR4–NLRP3 et rapportées des lectures translationnelles.
Biomarqueurs et typage de réponse ancrés à la colonne immunitaire intestin-foie
Définitions minimales de panel de biomarqueurs et seuils
L’opérationnalisation de la colonne vertébrale « barrière – TLR4–NLRP3 » nécessite un panel minimal, in vivo, répétable, qui suit les résultats d’imagerie et cliniques. Pour la charge moléculaire dérivée de l’intestin, une revue systématique et une méta-analyse indiquent que le lipopolysaccharide circulant s’élève sur tout le spectre, allant de MASLD à MASH et à la fibrose avancée, ce qui soutient son utilisation pour la stratification et comme lecture d’expositionproximale 1,90,91. Parce que la quantification du LPS est méthodologiquement hétérogène, les études utilisent couramment la protéine liant au LPS et le CD14 soluble (sCD14) comme substituts ; tous deux corrélés à l’activité LPS mais manquent de spécificité et sont sensibles aux fluctuations postprandiales, plaidant pour un jeûne associé et un échantillonnage postprandial standardisé avec un rapport explicite du timing et des mises en gardeinterprétatives 1,92. De plus, la diversité structurelle des lipides A modifie les seuils de déclenchement de TLR4, donc les comparaisons croisées doivent spécifier la source et le format du test LPS afin d’éviter le biais « même nom, molécule différente »93.
En conséquence, dans les essais cliniques orientés MTC, la sélection des biomarqueurs doit privilégier la reproductibilité des essais et la comparabilité intercohorte plutôt que la complétude théorique, et la transparence méthodologique doit accompagner toutes les lectures d’exposition.
Le profilage des acides biliaires offre une fenêtre sur la dysrégulation BA–FXR/TGR5. Dans le MASH, les totaux de BA fécal et plasmatique ainsi que des espèces spécifiques (par exemple, acide cholique, acide chénodésoxycholique) sont fréquemment élevés et associés à un stade de fibrose et à une résistance à l’insuline, soutenant un sous-type « dominant BA–FXR» 94. En plasma, le 7α-hydroxy-4-cholestène-3-one (C4) réfléchit la synthèse BA et suit généralement inversement la rétroaction iléale FXR–FGF19 ; Les relevés qui intègrent FGF19 avec C4 aident à résoudre l’état dynamique des FXR et peuvent être utilisés pour évaluer la réactivité aux interventions ciblant BA–FXR 95,96,97. Pour les acides gras à chaîne courte (SCFA), les associations avec la stéatose et la fibrose dépendent directionnellement de l’alimentation et de l’écologie ; l’appariement des SCFA fécales ou plasmatiques avec la capacité fonctionnelle métagénomique (voies biosynthétiques des SCFA) et les lectures des récepteurs (GPR41/43) améliore la validité externe98.
Parce que les mesures de BA et SCFA sont sensibles à l’apport alimentaire, à l’écologie du microbiome et à la variabilité des plateformes LC-MS, des protocoles d’échantillonnage prédéfinis et des pipelines analytiques sont essentiels si ces marqueurs doivent servir de biomarqueurs compagnons dans les essais de MTC.
Les mesures directes de « perméabilité » restent incertaines. La zonuline humaine correspond à la pré-haptoglobine-2, mais les ELISA couramment utilisés manquent de spécificité et peuvent réagir en croisement avec le properdin ou d’autres membres de la famille de la « zonuline », donnant des résultats instables entre les cohortes ; La zonuline est préférable être traitée de manière exploratoire et validée par des tests de perméabilité fonctionnelle ou des signatures transcriptionnelles barrières afin de minimiser la guidance de faux positifs99 100. Les preuves moléculaires de translocation bactérienne (ADNr 16S circulant ou hépatique) sont intrinsèquement faibles en biomasse et sujettes à la contamination par réactifs et lots ; Des contrôles négatifs rigoureux et des pipelines de décontamination sont obligatoires, et l’interprétation causale doit être prudente même lorsque des différences sont rapportées dans le tissu hépatique métabolique/obèse 101.
L’imagerie par seuil et les relevés de fibrose fournissent des barrières standardisées « go/no-go ». Une réduction relative de ≥ 30 % de l’IRM-PDFF est corrélée à la réponse histologique (amélioration NAS/résolution MASH) et convient à une prise de décision intermédiaire de 4 à 12 semaines ainsi qu’à la planification par tailled’échantillon 102 103. Des seuils accrus de fibrose hépatique (ELF) de 9,8 et 11,3 soutiennent la stratification du risque à long terme et les déclencheurs de surveillance. La raideur hépatique par résonance magnétique (MRE) d’environ 3,3 kPa, combinée à la FIB-4 ≥ 1,6 selon la règle MEFIB, enrichit la fibrose ≥F2 avec une grande confiance entre les cohortes, permettant une identification rapide des populations à haut risque et guidant l’inscription104. Pour le développement de la MTC, le couplage des marqueurs immunitaires proximaux (par exemple, LBP, IL-1β) avec des seuils d’imagerie par paliers fournit un cadre hiérarchique qui réduit la dépendance uniquement aux substituts biochimiques.
Typage de réponse ancré à la colonne vertébrale immunitaire
En utilisant la séquence « epithelium/GVB → LPS–TLR4–NF-κB → NLRP3 » comme échafaudage organisateur, MASLD/MASH peut être opérationnellement partitionné en trois sous-types appariables par intervention. Un phénotype dominant par la barrière se caractérise par un jeûne élevé ou une LBP/sCD14 postprandiale standardisée, un déplacement vers des rapports plus élevés entre acides biliaires primaires et secondaires, et un déséquilibre immunitaire muqueus. L’imagerie montre généralement une forte IRM-PDFF avec une IRM/ELF toujours dans des niveaux de risque faibles à intermédiaires, favorisant des stratégies de première intention qui renforcent l’intégrité épithéliale et du GVB, remodèlent le microbiote et normalisent le réservoir d’acides biliaires ; la réponse précoce se juge mieux par des baisses couplées de LBP/sCD14 accompagnées d’une réductionPDFF 1,92.
Ce sous-type est particulièrement pertinent pour les stratégies de MTC mettant l’accent sur la stabilisation de la barrière et le remodelage du microbiote (par exemple, les polysaccharides ou les formules de type QSHY), et fournit une base rationnelle pour l’enrichissement dans les essais ciblant la barrière. Un phénotype dominant par l’inflammasome présente une élévation d’IL-1β dans le sang ou le foie, des signatures positives de NLRP3 et de pyroptose (GSDMD-N) au niveau du transcript/protéine, ainsi qu’une aggravation concordante des résultats de fibrose. Les tissus humains et les modèles animaux montrent que la GSDMD-N augmente avec l’activité de la maladie et la fibrose, et que l’inhibition sélective de la NLRP3 réduit l’inflammation hépatique et la fibrose tout en exerçant des effets limités sur la stéatose — mettant en lumière un risque de désadaptation où la réduction de la graisse ne correspond pas à une amélioration inflammatoire/fibreuse. Dans ce sous-type, associer le blocage NLRP3–caspase-1–IL-1β avec une reprogrammation métabolique guidée par AMPK/Nrf2 peut augmenter la probabilité de réponse 7,36.
Dans les contextes de MTC, ce phénotype s’aligne mécaniquement avec les agents rapportés pour moduler la signalisation de l’inflammasome (par exemple, BBR, APS) et met en lumière le risque que les critères « uniquement gras » ne capturent pas le bénéfice concordant sur les voies. Un phénotype déréglé BA–FXR est indiqué par une composition anormale de BA fécale/plasma et une dynamique perturbée de FGF19/C4, impliquant un état non physiologique du circuit intestin–foie BA–FXR/TGR5. Au-delà des mesures de barrière/microbiote, ce sous-type nécessite une évaluation explicite de la réactivité et des marges de sécurité des FXR/TGR5 ; L’efficacité doit être évaluée par un réalignement physiologique des profils d’AB ainsi que par des améliorations concordantes dans le PDFF etl’ERM 94,95. Pour les interventions de MTC qui influencent les pools d’acides biliaires ou l’activité du FXR, ce sous-type offre une stratégie d’enrichissement biologiquement cohérente, à condition que les marges de sécurité et les effets des acides biliaires hors cible soient surveillés.
Alignement stratifié et suivi longitudinal
Pour traduire le mécanisme → les biomarqueurs → les résultats au niveau individuel, un cadre à trois points temporels est recommandé : la référence de base → les résultats intermédiaires (4–12 semaines) → (≥24–48 semaines). L’évaluation de base doit inclure le panel minimal (LBP/sCD14, profilage BA, et — lorsque c’est informatif — SCFA et ADNr 16S rigoureusement décontaminé), l’imagerie avec IRM-PDFF/MRE et la classification des risques (par exemple, MEFIB), avec des critères secondaires communs et spécifiques au sous-type prédéfinis dérivés du schémaà trois classes 105. En intérim, l’IRM-PDFF fonctionne comme un signal de départ/non-départ : une réduction relative de ≥ 30 % en 4 à 12 semaines, accompagnée de baisses synchrones de LBP/sCD14, indique que le bras barrière a été efficacement engagé. Si le PDFF diminue mais que l’IL-1β/GSDMD-N ou l’ELF/MRE ne s’améliorent pas, le schéma suggère un désaccord dominant inflammasome et devrait déclencher l’addition ou le passage à des stratégies dirigées par NLRP3–caspase-1102,103.
La fenêtre de résultats privilégie la MRE/ELF et les critères cliniques sur ≥24 à 48 semaines pour capturer la dynamique de la fibrose ; Des seuils ELF de 9,8/11,3 et une porte MRE d’environ 3,3 kPa—combinés à la FIB-4 ≥1,6 dans la règle MEFIB—soutiennent la re-stratification du risque et l’adjudicationd’événements 104. Soutenant la faisabilité de la stratification du risque ancrée dans les multi-omiques, une étude récente sur le microbiome-métabolome fécal en cirrhose a identifié des signatures microbiennes et métaboliques dépendantes des complications avec de bonnes performances diagnostiques et des corrélations avec des marqueurs cliniques, illustrant comment les omiques dérivées de l’intestin peuvent être couplées à des résultats cliniquementsignificatifs 78. Pour les tests intrinsèquement faibles en biomasse, les contrôles négatifs et les canalisations de décontamination doivent être divulgués ; La zonuline doit rester exploratoire et être validée par des tests de perméabilité fonctionnelle ou des signatures de barrière épithéliale afin d’éviter la formation101 de faux positifs.
Dans ce cadre, le panel minimal de biomarqueurs et les seuils d’imagerie par paliers sous-tendent un système cohérent de typage et de suivi de la réponse. Les classes dominantes par la barrière, dominantes en inflammasome et dérégulées BA–FXR correspondent à des stratégies concrètes — protection épithéliale/GVB avec remodelage microbiote–BA ; Inhibition de la NLRP3–caspase-1 avec réajustement métabolique ; et modulation FXR/TGR5, respectivement — avec validation par des modifications coordonnées de LBP/sCD14, profils BA, IL-1β/GSDMD-N et MRI-PDFF/MRE/ELF. De cette manière, la colonne immunitaire est transformée en critères testables de « qui bénéficie » qui informent les règles d’arrêt provisoire, l’enrichissement et la surveillance au sein des essais1 103. En liant explicitement les critères de référence sous-type, classe d’intervention et hiérarchiques, la colonne vertébrale immunitaire est convertie en critères testables de « qui bénéficie » qui peuvent améliorer l’efficacité des essais, réduire l’hétérogénéité et renforcer l’attribution causale dans les études sur la MTC.
Exemples illustratifs, au niveau protocolaire, utilisés pour des conceptions guidées par biomarqueurs
Pour améliorer la mise en œuvre des concepts proposés de biomarqueurs et de conception adaptative, nous fournissons deux exemples travaillés au niveau du protocole, ancrés dans des conceptions d’essais publiés et des seuils d’imagerie/biomarqueurs validés, plutôt que des choix hypothétiques de paramètres. L’objectif est de démontrer comment le sous-typage mécaniste peut être opérationnellisé avec des points d’extrémité prédéfinis, des règles de décision intermédiaires et des tests reproductibles.
Exemple résolu 1 : essai de formule enrichie par barrière (QSHY) avec porte d’imagerie et affichage de fibrose.
Une mise en œuvre pratique du schéma dominant de la barrière peut tirer parti du plan d’essai randomisé multicentre, double aveugle et double dummy existant de Qushi Huayu (QSHY) dans des populations atteintes de NAFLD, qui utilisait des critères co-principaux alignés avec la teneur en graisse hépatique par élastographie transitoire contrôlée par vibration et ALT à 24 semaines. Un protocole enrichi pourrait prédéfinir les critères d’entrée de la stéatose de base par IRM-PDFF (par exemple, ≥10 %) et une exposition associée à la barrière élevée (LBP et/ou sCD14 au-dessus du tertile/quartile supérieur de la cohorte criblée), tout en conservant la même structure d’aveuglement et de comparateur pour la faisabilité etl’interprétabilité 15. Une décision provisoire à la semaine 12 utiliserait l’IRM-PDFF comme porte : un déclin relatif de ≥ 30 % serait défini comme un signal de réponse précoce basé sur des preuves méta-analytiques reliant ce seuil à la réponse histologique et à la résolutionNASH 102 ainsi qu’aux chances de régression de fibrose103. Les participants poursuivraient jusqu’à la semaine 24 à 48 avec des résultats axés sur la fibrose prioritaires (ELF et/ou IRM), en utilisant des strates pronostiques établies de l’ELF (par exemple, <9,8 vs ≥11,3) pour la reclassification des risques et l’interprétation desrésultats 104. Lorsque l’enrichissement de la fibrose est souhaité, la règle MEFIB (MRE ≥3,3 kPa plus FIB-4 ≥1,6) peut être pré-spécifiée au départ, soit comme strate d’éligibilité, soit comme sous-groupe clé pour renforcer la puissance de l’inférence pertinente sur lafibrose 105. Des biomarqueurs compagnons (LBP/sCD14, IL-1β/GSDMD-N exploratoire) seraient collectés au départ et à la semaine 12 afin de tester l’engagement des voies et de soutenir l’interprétation mécaniste des trajectoires d’imagerie discordante/biochimiques.
Exemple 2 résolu : essai d’intervention enrichi en BA–FXR (formulation à base de berbérine) avec portails PDFF et co-critères métaboliques.
Une mise en œuvre dérégulée de la BA et du FXR peut être ancrée dans l’essai de phase 2, contrôlé par placebo, sur l’ursodésoxycholate de berbérine (HTD1801/BUDCA), qui a démontré une réduction significative de l’IRM-PDFF ainsi que des améliorations métaboliques de la NASH présumée avec diabètede type 2 14. Un protocole réalisable préspécifierait l’enrichissement de l’axe BA en utilisant des profils BA de référence et/ou la dynamique FGF19–C4 (comme décrit dans le manuscrit), tout en conservant l’IRM-PDFF comme point d’arrivée principal pour l’imagerie précoce. Une porte intermédiaire de 12 à 18 semaines pourrait à nouveau adopter le seuil de déclin relatif de ≥30 % du PDFF pour soutenir les décisions go-out/no et la planification de la taille de l’échantillon, conformément aux preuvesen phase précoce 102. Parce que les signaux cliniques avec les produits à base de berbérine montrent une hétérogénéité — y compris les ECR rapportant des effets neutres sur les enzymes hépatiques et les mesures métaboliques dans des sous-ensembles de la NAFLD — les protocoles devraient pré-spécifier le typage de réponse et les analyses d’hétérogénéité planifiées plutôt que de traiter les signaux nul comme des surprises post-hoc62. Une méta-analyse récente met également en lumière la variabilité selon les essais sur la berbérine en termes de formulation, de dose et de profils de patients, soutenant la nécessité de biomarqueurs compagnons et d’interprétationstratifiée 63. La surveillance de la sécurité doit être définie prospectivement avec une attention particulière à la tolérabilité gastro-intestinale et au potentiel d’interaction médicamenteuse dans les cohortes traitées métaboliquement, en accord avec les schémas d’événements indésirables rapportés dans l’essaiHTD1801 14.
Modèle de mise en œuvre : MAMS simplifié piloté par biomarqueurs
Une approche pragmatique multi-bras multi-étapes peut être présentée comme trois portes prédéfinies et cliniquement familières, plutôt qu’une plateforme adaptative hautement paramétrée : la phase 1 sélectionne les interventions par réponse précoce de la graisse hépatique (IRM-PDFF ≥déclin relatif de 30 %) en utilisant des portes102 fondées sur des preuves ; Le stade 2 évalue la dynamique de la fibrose à l’aide d’ELF et/ou d’ERM (avec enrichissement optionnel de la MEFIB) sur 24 à 48 semaines104,105 ; L’étape 3 confirme la durabilité avec un résultat composite prédéfini et un profil de sécurité. Le rapport doit suivre l’extension CONSORT (ACE) des conceptions adaptatives afin d’assurer la transparence des adaptations préplanifiées, des règles d’arrêt et du contrôle des erreursde type I 106. Ce « modèle d’exécution » permet de mettre en œuvre le cadre tout en préservant l’enrichissement mécanistique via des biomarqueurs compagnons (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N).
Conclusions
À travers la séquence contiguë de l’échec de la barrière vasculaire épithéliale et intestinale, de l’afflux moléculaire portale, de l’amplification TLR4–NF-κB et de la pyroptose médiée par NLRP3, les preuves actuelles délinent une architecture immunométabolique de la maladie pour MASLD/MASH. La réorganisation des jonctions étroites épithéliales associée à la fuite de GVB abaisse le seuil d’activation de l’immunité innée sinusoïdale ; les entrées dérivées de l’intestin — LPS, éthanol endogène et profils d’acides biliaires désordonnés — sont ensuite détectées par TLR4 hépatique et propagées à travers des cascades inflammatoires, convergeant finalement vers la signalisation NLRP3–caspase-1–IL-1β/IL-18 pour provoquer l’inflammation et lafibrose 26,27,33. Cette colonne vertébrale est hiérarchiquement couplée aux circuits BA–FXR/TGR5, SCFA–GPR41/43 et AMPK/Nrf2, permettant un réglage bidirectionnel entre métabolisme etimmunité 9,10. Dans ce contexte biologique, les agents naturels multi-cibles permettent une intervention « coaxiale » sur les barrières, les nœuds récepteurs-signalisation et les seuils métaboliques : la berbérine, en inhibant la BSH bactérienne, en remodelant le pool d’acides biliaires et en activant l’axe iléal FXR–FGF15, exerce un contrôle à faible exposition systémique sur les données immunométaboliques intrahépatiques et réduit l’IRM-PDFF dans un essai de phase 2 de son complexeionique 12,13. Les thérapies à base de formule et les polysaccharides ajoutent des signaux translationnels pour la réparation des barrières et la retenue de l’inflammasome15,17. Ensemble, l’axe intestin-foie fournit une base pratique pour aligner les mécanismes, biomarqueurs et objectifs cliniques au sein d’un seul système de coordonnées.
Traduire ces connaissances en résultats nécessite trois développements clés. Tout d’abord, des preuves humaines directes pour le GVB et des relevés fonctionnels reproductibles sont nécessaires. Des mesures composites capturant la brèche épithéliale-endothéliale coordonnée — profilage en série temporelle du jeûne et la LBP/sCD14 postprandiale standardisée liée à la dynamique FGF19/C4 de synthèse des acides biliaires et de rétroaction iléale — intégrées dans l’imagerie longitudinale et le suivi clinique établiraient une chaîne vérifiable de « barrière →exposition → organe» 26,27. Deuxièmement, les ponts entre multi-omiques et extrémités à niveaux doivent être explicites : métagénomique/transcriptomique prospective avec spectres plasma et BA fécales et SCFA alignés sur des seuils d’imagerie — ≥ 30 % de déclin relatif IRM-PDFF à 12–24 semaines comme porte intermédiaire, et MRE (~3,3–3,5 kPa) avec ELF (9,8/11,3) à 24–48 semaines pour la fibrose et la stratification pronostique — afin que les signaux mécanistiques occupent le même référentiel que les lectures structurelles et issues102, 105. Troisièmement, les hypothèses de stratification doivent être pré-spécifiées et falsifiables : les individus dans le quartile supérieur du jeûne ou de la LBP/sCD14 postprandiale standardisée devraient être plus susceptibles d’atteindre une réduction de ≥ 30 % du PDFF grâce à une protection coordonnée contre la barrière/GVB et une normalisation microbiote–BA, accompagnée de déclins concordants de LBP/sCD14 ; ceux avec des signatures IL-1β élevées ou NLRP3/pyroptose (GSDMD-N) devraient présenter préférentiellement une amélioration ELF/MRE lorsque le blocus NLRP3–caspase-1 est couplé à un réajustement AMPK/Nrf2 ; La dépendance à des stratégies uniquement de barrière en biologie dominante par l’inflammasome risque de présenter le décalage familier de réduction de la stéatose sans bénéficede fibrose 1,7,102.
Méthodologiquement, les conceptions adaptatives multi-bras, multi-étapes et pilotées par biomarqueurs peuvent augmenter l’efficacité et la reproductibilité dans les programmes multi-mécanismes. Un stade initial verrouillé par un déclin IRM-PDFF de ≥ 30 % peut trier les bras à faible probabilité ; un second stade incorporant ELF/MRE peut mettre à jour la randomisation au sein des strates dominantes de barrière, dominantes d’inflammasome et dérégulées BA–FXR ; Une troisième étape peut évaluer les résultats cliniques et d’imagerie composites à 48 semaines. Les seuils de porte, les règles d’arrêt et l’allocation α doivent être préenregistrés et déclarés de manière transparente ; les tests à faible biomasse (par exemple, ADNr 16S circulant ou tissulaire) nécessitent des contrôles négatifs rigoureux et des pipelines de décontamination, et les marqueurs Q doivent garantir la cohérence et la traçabilité des lots selon les bases, l’exposition in vivo et les lecturespharmacodynamiques 101,106. L’intégration de la colonne vertébrale barrière–immunité innée–métabolique avec des strates prédéfinies, des critères hiérarchiques et des essais adaptatifs peut faire passer des interventions multi-cibles de la preuve de concept à un bénéfice durable dans des populations définies, mettant en lumière l’hétérogénéité biologique dans MASLD/MASH et fournissant un cadre opérationnel pour une thérapie combinée précise et transposable.
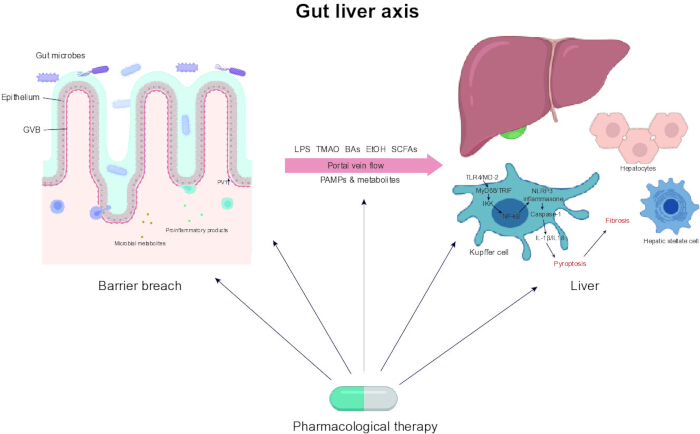
Figure 1 : Résumé graphique de l’axe intestin–foie dans MASLD/MASH. Ce schéma résume les principaux mécanismes et implications thérapeutiques de l’axe intestin-foie dans le MASLD et sa progression vers le MASH. Il illustre comment les substances d’origine intestinale (par exemple, LPS, BS, SCFA, TMAO) se transloquent au foie via la veine porte lors d’une altération de la barrière intestinale, activant ainsi des réponses immunitaires (par exemple, TLR4–NF-κB, inflammasome NLRP3) qui entraînent l’inflammation, les lésions hépatocytaires et la fibrose. Le cadre met également en lumière des thérapies multi-cibles, qui sous-tendent une stratégie d’intervention stratifiée guidée par biomarqueurs dans le MASLD/MASH. Abréviations : MASLD = maladie hépatique stéatotique associée à la dysfonction métabolique ; MASH = stéatohépatite associée à un dysfonctionnement métabolique ; LPS = lipopolysaccharide ; BA = acides biliaires ; SCFAs = acides gras à chaîne courte ; TMAO = triméthylamine N-oxyde ; TLR4 = Récepteur type Toll 4 ; NF-κB = facteur nucléaire kappa B ; NLRP3 = Protéine contenant les domaines NOD, LRR et pyrine 3. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à divulguer.
Remerciements
Ce travail a été soutenu par le Programme provincial de science et technologie de la médecine traditionnelle chinoise du Zhejiang (n° 2024ZL1181) et par le programme municipal de science et technologie de Jinhua, projet clé pour le développement social (n° 2024-3-071).
Références
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).