La capacité à exprimer des vecteurs viraux dans le cerveau prépubertal est fondamentale pour étudier les mécanismes cellulaires et circuitaires du développement cérébral. Ici, nous décrivons un protocole pour réaliser une chirurgie virale stéréotaxique chez la souris nourrisson aux jours postnataux 11 ou 12 (P11-P12) et fournissons des recommandations pour les soins postopératoires.
Article de méthode
Chirurgie stéréotaxique chez la souris infantile et soins postopératoires
Dans cet article
Résumé
Résumé
Comprendre les processus développementaux, cellulaires et circuitaires tout au long de la période postnatale est crucial pour éclaircir les complexités du développement cérébral et son impact sur la maturation comportementale et sociale. La transition du nourrisson à l’âge adulte implique des changements neurobiologiques importants, notamment la taille synaptique et la myélinisation, qui sont fondamentales pour les capacités cognitives, la régulation émotionnelle et les interactions sociales. L’étude du développement cérébral chez les souris prépubères permet aux chercheurs d’identifier des périodes critiques favorisant une croissance cérébrale saine et d’établir des interventions opportunes pour les troubles neurodéveloppementaux. Pour disséquer précisément les fonctions cérébrales, la chirurgie stéréotaxique a été une technique clé dans la recherche en neurosciences, offrant une précision inégalée pour cibler les régions cérébrales d’intérêt et permettre l’administration d’agents viraux. Bien que les chirurgies stéréotaxiques chez les souris adultes soient largement appliquées dans les laboratoires de neurobiologie, il existe très peu de directives pour réaliser des chirurgies stéréotaxiques chez les souris prépubertaires, ainsi que pour des soins postopératoires cruciaux afin de garantir que le nourrisson puisse être réintroduit avec succès auprès de sa mère et de sa portée. Nous décrivons ici un protocole pour la chirurgie stéréotaxique et l’injection virale chez les souris infantiles (P11-P12), mettant en avant l’anesthésie et l’administration d’analgésique, les considérations pour les soins postopératoires, ainsi que les différences par rapport à la chirurgie stéréotaxique chez l’adulte. Ce protocole peut être mis en œuvre dans n’importe quelle région cérébrale d’intérêt en mettant à jour les coordonnées cibles souhaitées et peut être modifié pour le ciblage cérébral à des stades ultérieurs du développement postnatal, comme durant la période juvénile (P15-P30). Dans l’ensemble, ce protocole constitue une porte d’entrée pour l’étude du développement et de la fonction cérébrale postnatale.
Introduction
La petite enfance et l’adolescence sont des périodes postnatales cruciales pour le développement cérébral, caractérisées par la myélinisation, la synaptogenèse et la taille synaptique, qui facilitent le raffinement descircuits 1,2. L’émergence de comportements sociaux, notamment l’accouplement, l’agressivité et le jeu social, survient pendant la période péripubertale (P28-40)3, et est étroitement régulée par la circulation des hormones stéroïdes 4,5. Malgré des avancées significatives dans les outils pour disséquer les fondements cellulaires des comportements sociaux chez les adultes, on sait peu de choses sur les mécanismes neuronaux sous-jacents à l’émergence des comportements sociaux tout au long du développement postnatal. Les raisons du manque de compréhension des circuits sociaux en développement incluent 1) les difficultés liées à la réalisation de chirurgies chez des souris nourrissons, y compris les dispositifs stéréotaxiques non installés pour les jeunes souris, 2) l’équilibre entre sécurité et efficacité de l’analgésie et de l’anesthésie pendant la chirurgie6) et 3) l’acceptation des nourrissons par la digue après l’opération. De plus, les méthodes actuelles utilisées pour délivrer des constructions génétiques aux premiers moments postnatals, telles que l’électroporationin utero 7, l’injection virale intracébroventriculaire dansle cerveau 8 de la souris néonatale, ou les croisements génétiques de la lignée réactive et de la lignéeréactive 9, ne sont pas idéales, car elles manquent de ciblage précis et de focalisation sur le ciblage embryonnaire ou P0.
Ici, nous proposons un protocole simple pour la chirurgie stéréotaxique chez les souris nourrissons (P11-P12) et les soins postopératoires afin de soutenir une réintégration réussie avec la mère et les frères et sœurs de la portée. Ce protocole exploite le protocole stéréotaxique actuel pour la sourisadulte 10 et ne nécessite que des modifications mineures de la configuration stéréotaxique. Nous fournissons également des conseils détaillés sur les soins postopératoires ainsi que sur la réussite de l’anesthésie et de l’analgésie chez les souris nourrissons. Nous avons choisi le moment P11-12 pour la chirurgie car il existe une période d’incubation de 2 semaines pour l’expression virale, permettant ainsi aux souris d’être testées in vivo à partir de P24, avant la période péripubertale (P28-40)3. Cependant, ce même protocole peut être utilisé pour la chirurgie stéréotaxique à des moments ultérieurs. Nous nous concentrons sur l’amygdale médiale en développement (MeA), une subdivision amygdale caractérisée par son rôle dans un ensemble diversifié de comportementssociaux 11,12. Nous étudions spécifiquement la sous-population de MeA exprimant Foxp2 (MeA Foxp2)13, un facteur de transcription forkhead box, car nous l’avons déjà découvert que ces cellules sont câblées de manière unique pour le traitement in vivo des signaux sensoriels mâles chez les souris mâles tout au long du développementpostnatal 14. De plus, la sous-population MeAFoxp2 doit moduler dans le sens bidirectionnel l’agressivité territoriale chez lesmâles 14. Dans l’ensemble, le protocole actuel permet aux neuroscientifiques d’administrer précisément des agents viraux dans des régions cérébrales ciblées à des étapes clés du développement postnatal afin d’étudier les fondements cellulaires et circuitaires des comportements sociaux et affiliés à l’adolescence et à l’âge adulte.
Protocole
Cette procédure a été approuvée par le Comité de soins et d’utilisation des animaux du NIEHS et était conforme aux directives des National Institutes of Health pour l’utilisation et le soin des animaux. Des équipements de protection individuelle appropriés, comprenant des gants, un masque facial, une blouse jetable, un filet à cheveux et des couvre-chaussures, ont été utilisés tout au long de l’opération et en présence d’animaux.
1. Préparation et ajustements des appareils stéréotaxiques pour la souris (Figure 1)
- Préparez l’appareil stéréotaxique avec des accessoires stéréotaxis pour les souris bébés, incluant une paire de bracelets d’oreilles non rapture, un porte-tête anesthésiant au gaz modifié, et une barre pour le palais des nourrissons P12.
- Désinfectez tous les instruments chirurgicaux avec un stérilisateur à billes de verre (250 °C, 30 s pour les petits outils et 1 min pour les plus gros). Placez des outils stériles sur un drap stérile après la stérilisation. Les outils stériles doivent rester sur le champ stérile tout au long de l’opération.
- Placez un autre drap stérile sur une bouillotte à une température de ~37 °C sur le dispositif stéréotaxique pour maintenir le nourrisson à une température contrôlée tout au long de la chirurgie. Surveillez la température du coussin chauffant tout au long de l’opération.
2. Préparation chirurgicale de la souris, placement stéréotaxique, nivellement et craniotomie
- Mesurez le poids corporel pour fournir la dose appropriée d’analgésie.
- Placez la souris dans une chambre d’induction remplie à 3 % d’isoflurane avec un débit d’oxygène de 0,9 L/min. Vérifiez que la respiration de la souris a diminué à ~1 souffle/s et qu’il n’y a pas de réponse après avoir testé le réflexe de retrait de la pédale. Transférez le flux d’isoflurane/oxygène vers le référentiel stéréotaxique et réduisez la concentration d’isoflurane à 2 %.
REMARQUE : Une anesthésie adéquate doit être confirmée par l’absence de réponses au réflexe de retrait pédalier toutes les 5 minutes pendant toute la durée de l’intervention chirurgicale. Observez attentivement la respiration de la souris tout au long de l’opération. Ajustez la concentration d’isoflurane tout au long de l’opération afin que le pourcentage le plus bas soit utilisé pour maintenir une anesthésie profonde et éviter un surdosage anesthésiant. - Montez la souris sur l’appareil stéréotaxique modifié avec des accessoires stéréotaxis pour les souris pour bébés. Placez des barres d’oreilles non perforantes sur le côté de la tête de la souris et alignez la règle de la barre d’oreille pour qu’elle soit équidistante des deux côtés par rapport à la règle de cadre stéréotaxique. Pour les nourrissons P11, réglez la règle stéréotaxique à 5 mm.
REMARQUE : Les nourrissons à P11 n’ont généralement pas encore les yeux ouverts, donc aucun lubrifiant oculaire n’est nécessaire. À P12, certains nourrissons ont les yeux ouverts. Si les yeux du nourrisson sont ouverts, une pommade ophtalmique doit être appliquée et réappliquée selon les besoins tout au long de l’opération. - Injectez 5 mg/kg de Meloxicam par voie intrascapulaire sous-cutanée (c.-C.) à l’aide d’une seringue de 1 mL avec une aiguille de 27 G.
- Diluez 0,5 % de bupivacaïne (5 mg/mL) avec du sérum à 0,5 mg/mL (1:10) et injectez du s.c. sous la peau de la tête (c’est-à-dire 0,05 mL pour un nourrisson de 5 g).
REMARQUE : Les étapes 2.6 à 3.15 doivent être effectuées avec des gants stériles. - Effectuer une incision de 1,5 cm avec de petits ciseaux le long de la ligne médiane de la tête.
- Utilisez un coton tige-coton stérile pour retirer délicatement les tissus mous de la surface du crâne avec de la bétadine.
- Placez un capillaire en verre tiré (~0,8 mm de long) dans un porte-pipette en verre. Montez le support sur le bras stéréotaxique vertical.
REMARQUE : Les étapes 2.9 à 3.10 doivent être effectuées au microscope disséqueur. - Niveler l’angle antérior-postérieur de la surface du crâne :
- Déplacez le capillaire vers la confluence rostrale des sinus dorsaux (RCS) (Figure 2) comme décrit dans Chan et al.15.
- Sous un microscope à grossissement 2x, zérez les coordonnées X (médial-latéral), Y (antérieur-postérieur) et Z (dorsale-ventral) lorsque le capillaire touche légèrement le crâne dans le point RCS à l’aide de la console d’affichage numérique de l’instrument stéréotaxique.
- Déplacez le capillaire vers le lambda (à Y = -7,30 mm) et abaissez le capillaire pour toucher légèrement le crâne (Figure 2).
- Vérifiez la valeur des coordonnées Z et nivelez l’angle antérieur-postérieur dans le rig stéréotaxique pour modifier l’angle d’inclinaison de la tête. Répétez les étapes 2.9.1 à 2.9.3 jusqu’à ce que la différence de valeur de la coordonnée Z entre RCS et lambda soit de <0,02 mm.
- Niveler l’angle médial-latéral de la surface du crâne :
- Déplacez le capillaire vers le point RCS.
- Zéro les coordonnées X (médial-latérale) et Y (antérieur-postérieur) lorsque le capillaire touche légèrement le crâne au point RCS.
- Pour niveler la tête en utilisant les coordonnées MeA postérodorsales (MeApd), déplacer le capillaire à X = +2,50 mm, Y = -4,20 mm, et zéro Z (dorsal-ventral) lorsque le capillaire touche légèrement le crâne.
- Déplacez le capillaire vers X = -2,50 mm, Y = -4,20 mm dans l’autre hémisphère et abaissez légèrement le capillaire pour toucher le crâne.
- Vérifiez la valeur de Z et ajustez l’axe médial-latéral dans le rig stéréotaxique pour modifier l’angle d’inclinaison de la tête. Répétez les étapes 2.10.1 à 2.10.4 jusqu’à ce que la différence de la valeur Z entre les hémisphères droit et gauche soit de <0,03 mm.
- Retirez le support capillaire et montez une micro-perceuse avec un foret #75 dans un support stéréotaxique sur le bras stéréotaxi vertical.
- Placez la pointe du foret au-dessus du point RCS, zérez les coordonnées X (médial-latérale) et Y (antérieur-postérieur). Déplacer vers X = ±2,03 mm, Y = -4,20 mm pour cibler le MeApd des nourrissons P11.
- Percer une craniotomie de 0,5 mm de diamètre à travers le crâne.
- Nettoyez soigneusement la surface du crâne avec un sérum physiologique stérile à l’aide de lingettes délicates et de coton-tigeons.
REMARQUE : Appliquer régulièrement du sérum physiologique stérile pour garder la surface du crâne hydratée.
3. Injection virale
- Remplissez un nouveau capillaire d’huile minérale à l’aide d’une aiguille flexible microfil.
- Fixez et resserrez le capillaire à l’injecteur de nanolitre.
- Retirez la micro-perceuse et montez l’injecteur nanolitre sur le bras stéréotaxi vertical.
- Retirez au moins le double de la quantité de virus nécessaire pour la chirurgie (ici, 400 nL) à un taux de 10 nL/s.
REMARQUE : Tout virus AAV d’intérêt peut être utilisé pour injection virale après approbation institutionnelle. Dans ce protocole, nous avons utilisé AAV2-DIO-mCherry (BSL-1, 2,5 E+13 vg/mL, 3 μl/tube, stocké à -80 °C puis transféré sur glace pour la chirurgie). - Déplacez le capillaire vers le point RCS et zérez les coordonnées X et Y.
- Déplacez le capillaire vers la zone cérébrale cible d’intérêt, ici le MeApd (coordonnées : X = ±2,03 mm, Y = -4,20 mm, Z = -5,08 mm à partir du RCS).
- Abaissez le capillaire à la surface du crâne, puis zérez la coordonnée Z.
- Tracez un chemin en abaissant le capillaire à la profondeur désirée et en retirant le capillaire du cerveau.
- Injectez ~8 nL de virus pour vous assurer que le capillaire n’est pas obstrué avant de le réinsérer dans le cerveau. Si c’est bouché, ajoutez du sérum physiologique stérile à un essuie-glace et essuyez doucement les côtés et le bas du capillaire pour dégager l’obstruction.
- Abaissez le capillaire une fois de plus jusqu’à la profondeur désirée et injectez la quantité virale désirée (dans ce cas, 150 nL de virus) à un taux de 20 nL/min.
- Une fois terminé, attendez 5 minutes avant de retirer lentement le capillaire.
- Si nécessaire, répétez les étapes 3.4-3.11 pour injecter le virus dans l’hémisphère controlatéral.
- Retirez le capillaire de l’injecteur de nanolitres. Jetez les capillaires et tubes viraux utilisés dans un tube conique de 50 mL avec de l’eau de Javel à 10 %.
REMARQUE : Chaque laboratoire doit suivre toutes les directives de gestion des déchets, de gestion des déversements et de conformité à la biosécurité émanant de leur Branche Institutionnelle de Biologie et Biosécurité. - Suture la peau avec une suture 7-0 non absorbable. Essayez de soulever les cheveux lors de la suture pour que les points restent cachés.
REMARQUE : En général, 3 à 4 points suffisent. Entre nos mains, une suture 7-0 fonctionne le mieux pour éviter que la mère ne déchire les points une fois le bébé ramené dans la cage à domicile. - Essuyez la zone de suture avec du peroxyde d’hydrogène à 3 %, puis une solution de sérum physiologique à l’aide de cotons-tiges stériles.
REMARQUE : La chirurgie dure généralement entre 1 et 2 heures, selon le nombre de virus injectés. Les virus nécessitent généralement un minimum de 2 semaines pour une expression complète.
4. Soins postopératoires
- Retirez le nourrisson du cadre stéréotaxique et placez-le dans une cage propre sur un coussin chauffant. Pour prévenir la déshydratation, l’injection d’une solution saline stérile est recommandée.
- Surveillez le nourrisson jusqu’à ce qu’il soit mobile.
- Une fois que le bébé peut se déplacer dans la cage, placez la digue dans une nouvelle cage propre pendant ~2 minutes.
- Placez le bébé dans sa cage d’origine aux côtés de ses frères et sœurs. Essuyez soigneusement tous les bébés avec le nid et la literie de leur cage à domicile, puis replacez-les à l’intérieur du nid. On remettrait le barrage dans la cage.
- Surveillez de près la mère et les nourrissons. Confirmez que la mère revient au nid et toilette le nourrisson chirurgical mais ne retire pas les points de suture.
- Si après 1 h, la mère n’accepte pas le nourrisson chirurgical, utilisez une mère d’accueil. Si une mère a déjà montré qu’elle acceptait les nourrissons, utilisez cette digue pour les portées suivantes (l’acceptation après avoir accepté les nourrissons dans la première portée a été de 100 %).
- Vingt-quatre heures après l’opération, vérifiez le site de l’incision et administrez du Meloxicam (5 mg/kg, s.c.).
- Après des soins postopératoires réussis, laissez la souris chirurgicale avec la mère et les frères et sœurs jusqu’à ce qu’elle soit sevrée à P21. Retirez tous les points visibles dans les 10 à 14 jours suivant l’opération.
REMARQUE : Aucune différence significative n’est attendue en matière d’apport alimentaire, de poids corporel ou de comportement de locomotion chez les souris chirurgicales par rapport aux témoins de la portée de la portée.
Les nourrissons seront surveillés quotidiennement pendant au moins 2 jours après l’opération, puis au moins deux fois par semaine. Critères d’évaluation humaine : Si le nourrisson n’est pas ambulatoire après 2 heures après l’opération, il sera euthanasié de manière humaine. Si le nourrisson montre une diminution du poids corporel et/ou de la locomotion après l’opération, il sera euthanasié de manière humaine.
Résultats
Sécurité de la combinaison isoflurane, bupivacaïne et méloxicam pour les interventions infantiles
La sécurité de l’utilisation de l’anesthésie et des analgésies chez les souris bébés resteincertaine 6. Nous avons donc testé l’utilisation d’une combinaison d’anesthésie et d’analgésie chez des souris nourrissons afin de déterminer le taux de survie. Les souris nourrissons à P11 (poids corporel = 6,09 ± 0,90 g, le poids corporel le plus bas était de 3,9 g ; n=13) ont été placés dans la chambre d’induction pour une anesthésie initiale avec 3 % d’isoflurane dans 0,9 L/min d’oxygène. Une fois les nourrissons anesthésés et non réactifs au réflexe de retrait des pédales, ils ont été transférés dans l’appareil stéréotaxique, et l’anesthésie à l’isoflurane a été réduite à 1,5-2 % d’isoflurane dans 0,9 L/min d’oxygène à l’aide d’un coussin chauffant (41,23 ± 2,28 °C). Après la mise des nourrissons dans l’appareil stéréotaxique, une analgésie a été administrée par s.c. interscapulaire (5 mg/kg de Meloxicam) ainsi qu’une anesthésie topique administrée s.c. sous la peau de la tête (0,05 mg/mL de bupivacaïne). Trente minutes plus tard, nous avons retiré les bébés du dispositif stéréo-taxi et placés dans une cage propre. Nous avons observé un taux de survie de 100 % (13/13) 30 minutes après l’administration de l’analgésie. De plus, nous n’avons observé aucune complication 24 et 72 heures après l’opération, ni à l’âge adulte. Ces résultats démontrent que combiner une anesthésie locale avec un anti-inflammatoire non stéroïdien est sans danger pour les souris et réduit la douleur et la détresse.
Livraison virale précise et précise dans le MeA
Pour confirmer la précision et la précision de la délivrance virale lors des chirurgies stéréotaxiques du nourrisson, nous avons administré l’AAV2-hSyn-DIO-mCherry bilatéralement dans le MeApd de souris mâles Foxp2cre+/- à P11 (Figure 3A). Les souris ont ensuite été sevrées à P21. Au niveau P45, des cerveaux de souris ont été prélevés pour l’immunohistochimie et l’analyse d’image, comme décrit précédemment par notre groupe14 et les autres16 (Figure 3B,C). Les souris ont été anesthésiées et perfusées avec 30 mL de 1× PBS, suivies de 30 mL de PFA à 4 % à 10 mL/min. Les cerveaux ont été post-fixés toute la nuit à 4 °C en 4 % de PFA, cryoprotégés à 30 % de saccharose, intégrés dans un O.C.T., et sectionnés à 50 μm sur un cryostat. Une section sur trois a été traitée pour l’immunohistochimie comme décrit précédemment14. Les sections flottantes libres ont été bloquées dans un sérum d’âne normal à 10 %, incubées avec l’anticorps primaire pendant la nuit, lavées, incubées avec l’anticorps secondaire pendant 4 heures, lavées à nouveau, puis montées avec un milieu contenant DAPI avant de se couvrir. Les sections cérébrales ont été colorées avec l’anticorps Foxp2 et Alexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG (H+L).
Pour confirmer l’efficacité de la cible, nous avons déterminé la co-expression des cellules mCherry+ et Foxp2+ dans le MeA et observé un chevauchement de 90,2 % ± 2,1 entre les populations, indiquant que l’expression de mCherry est restreinte aux cellules Foxp2+ de manière dépendante du cre (Figure 3D). Ce résultat met en lumière la grande efficacité de l’injection virale utilisant ce protocole. De plus, nous avons étudié la précision des injections virales en analysant le pourcentage de cellules de mCherry+ dans le MeApd par rapport au pourcentage total de mCherry dans toutes les régions. Nous avons observé que 93,7 % ± 1,4 des cellules mCherry+ étaient situées dans le MeApd, ce qui indique que l’expression spatiale du virus est limitée à notre région d’intérêt (Figure 3E).

Figure 1 : Préparation pour la chirurgie stéréotaxique du nourrisson. (A) Appareil stéréotaxique. (B) Barres d’oreilles anti-rupture. (C) Porte-tête et barre pour le palais pour anesthésie gazeuse pour nourrissons P12. (D) Stérilisateur de perles. (E) Contrôleur de coussinet chauffant. (F) Bras stéréotaxique. (G) Injecteur nanolitre. Veuillez cliquer ici pour voir une version agrandie de cette figurine.

Figure 2 : Principaux repères dans le crâne de souris P11. (A) Illustration schématique des principaux repères dans le crâne du nourrisson. (B) La tête du nourrisson est sécurisée par des accessoires stéréotaxis spécialisés comprenant des barrettes d’oreilles anti-rupture, un porte-tête de gaz modifié et une barre à granules pour souris P12. Abréviation : RCS = confluence rostrale des sinus, SSS = sinus sagittal supérieur, RRV = veines rostral-rhinales, SOS = sinus olfactif supérieur. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
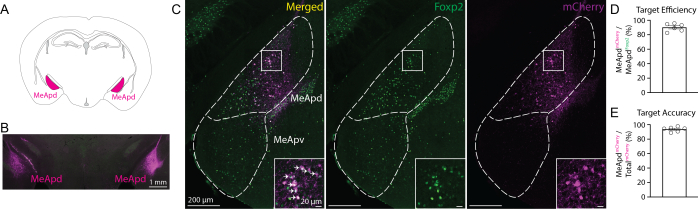
Figure 3 : Expression virale bilatérale ciblée chez le MeApd après une chirurgie stéréotaxique infantile. (A) Illustration schématique du MeApd (vue coronale). (B) Image histologique représentative de l’expression bilatérale de l’anticorps Foxp2 (vert) et des cellules mCherry+ (magenta) chez des souris adultes mâles Foxp2cre+/- adultes. (C) Vue élargie du MeA depuis les canaux fusionnés et individuels. Les flèches blanches indiquent l’anticorps Foxp2 co-marqué et les cellules mCherry+. (D) Efficacité d’injection. (E) Précision de l’injection. (D,E) n=3 souris, hémisphères gauche et droit/souris. Abréviations : MeApd = amygdale médiale postérodorsale ; MeApv = amygdale médiale posteroventrale. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
| Méthodes | Avantages | Inconvénients | Référence |
| Électroporation in utero | Transfection de plasmides plus importants | Manque de ciblage précis, toxicité, il faut être très compétent | Wang, et al., Methods Mol Biol. (2013). |
| Injection virale intracérébroventriculaire | Rapide, facile, économique | Manque de ciblage précis, risque d’infanticide | Kim, et al., J Vis Exp. (2014). |
| Microinjection stéréotaxique à P0 | Ciblage précis, risque réduit de rejet maternel | Toxicité cellulaire due au virus, pas idéal pour étudier les moments post-pubertaires | Chen, et al., J Vis Exp. (2018). |
| Croisement génétique de la lignée de recombinase | Non invasive | Manque de ciblage précis, coûteux | Robertson et al., Nat Neurosci. (2013). |
Tableau 1 : Résumé des méthodes précédentes utilisées pour étudier le développement embryonnaire et postnatal cellulaire et circuituel chez les rongeurs.
Discussion
Étudier les mécanismes neuronaux sous-jacents aux comportements sociaux tout au long du développement postnatal est essentiel pour comprendre non seulement leur apparition, mais aussi la manière dont ces mécanismes peuvent être perturbés par des facteurs environnementaux ou dans les troubles neurodéveloppementaux. Notre étude décrit un protocole détaillé pour la chirurgie stéréotaxique afin d’injecter le virus de manière précise et efficace dans le cerveau de souris nourrissons P11-12. Par conséquent, ce protocole permet la manipulation, l’enregistrement et l’étude des circuits de sous-populations neuronales moléculaires définies avant et après la puberté en utilisant une stratégie virale. Nous mettons en avant les modifications et soins pré- et postopératoires, ainsi qu’une combinaison sûre d’agents anesthésiques et analgésiques bien tolérés par les souris bébés.
Un aspect clé et difficile de la chirurgie stéréotaxique chez le nourrisson est de réintroduire avec succès le nourrisson dans sa cage d’origine avec sa mère et ses frères et sœurs. Pour garantir des soins appropriés au nourrisson lors de la réintroduction dans la cage, la mère doit récupérer et toiletter le nourrisson (sans trop de toilettage), et tout signe de négligence potentielle doit être étroitement surveillé. En raison de l’incision et des points de suture du nourrisson, la mère pourrait trop toiletter la zone de la tête, ce qui pourrait entraîner la déchirure et le retrait des points de suture. Cela serait préjudiciable et, d’où la nécessité de surveiller le comportement de la mère envers le nourrisson après l’opération pour assurer sa survie. Pour augmenter l’acceptation du bébé après l’opération, nous recommandons d’utiliser du peroxyde d’hydrogène et de la solution saline après suture pour éliminer tout résidu sanguin résiduel sur la peau et la fourrure, ainsi que l’utilisation de sutures plus fines (7-0) que celles utilisées chez les adultes (5-0). Ces deux stratégies ont permis à la mère d’accepter des souris nourrissons post-opératoires.
De plus, notre étude fournit des conseils sur l’utilisation sûre de l’anesthésie et de l’analgésique lors des interventions chirurgicales chez les nourrissons. Cela est crucial car les nouveau-nés et les souris nourrissons ne supportent pas aussi bien les doses d’analgésique et d’anesthésie que les adultes, ce qui peut entraîner des effets secondaires respiratoires et cardiaquesnéfastes 6. Nous avons observé que l’isoflurane, un anesthésiant oral, et la combinaison d’analgésie de méloxicam et de bupivacaïne, administrées par voie sous-cutanée (intracuspulaire et sous la peau de la tête, respectivement), étaient bien tolérés par les nourrissons et favorisaient une survie à long terme. De plus, nous avons déjà montré que la procédure chirurgicale stéréotaxique chez les souris nourrissons entraînait des temps d’investigation similaires chez les souris juvéniles 2 semaines après l’opération, par rapport aux témoins appariés par âge qui n’ont pas subi l’opération14. Par conséquent, ces résultats indiquent une récupération suffisante et aucun déficit moteur évident après l’opération chez les souris nourrissons. À noter, nous n’avons pas mesuré l’oxygénation sanguine pendant toute la chirurgie. Les niveaux d’oxygène dans le sang doivent être surveillés à l’aide d’un oxymètre de pouls pour prévenir l’hypoxie17.
Un autre élément critique de ce protocole est l’utilisation du système de coordonnées stéréotaxique basé sur la lambda et le RCS à la ligne médianesagittale 15. Le RCS est un repère défini par la jonction du sinus sagittal supérieur et de la jonction olfactive supérieure le long de la ligne médiane sagittale. Ce repère a montré une variabilité positionnelle systématiquement plus faible que les autres repères dorsaux après l’alignement global de la tête. C’est le cas car la distance de séparation accrue entre RCS/lambda, comparée à bregma/lambda, améliore la stabilité et la reproductibilité de l’angulation horizontaleinter-animaux 15.
Les méthodes précédentes d’étude du développement neuronal se sont concentrées sur les stratégies virales aux points embryonnaires et P0, ou sur les croisements génétiques pour les cellules de cartographie du destin d’intérêt (Tableau 1). Des techniques telles que l’électroporation in utero et les injections virales intra-cérébroventriculaires manquent de ciblage précis. Effectuer des injections virales ciblées à P018 permet de résoudre ce problème en injectant précisément une structure virale dans une zone d’intérêt. Cependant, les structures virales peuvent devenir cytotoxiques après plusieurs semaines, entraînant la mort cellulaire. Par conséquent, injecter un construct viral dans le cerveau du nouveau-né pour des études pubertaires longitudinales pouvant se poursuivre à l’âge adulte pourrait ne pas être idéal. Ainsi, notre approche, dans laquelle l’injection virale a lieu une semaine et demie après la naissance, réduit le risque de toxicité cellulaire pendant la puberté.
Malgré les avantages de notre approche, plusieurs considérations subsistent. Tout d’abord, les coordonnées cérébrales utilisées chez les souris nourrissons doivent être modifiées par rapport à celles utilisées chez les adultes. Par exemple, chez les souris nourrissons P11, nous utilisons les coordonnées suivantes pour cibler le MeApd : X = +2,03 mm, Y = -4,20 mm, Z = -5,08 mm ; tandis que les coordonnées utilisées chez les adultes sont X = +2,15 mm, Y = -5,00 mm, Z = -5,10 mm. Malheureusement, il existe moins de références à l’atlas cérébral pour les sourisprépubères 19 que pour les souris adultes (Allen Mouse Brain Atlas, mouse.brain-map.org et atlas.brain-map.org)20,21. Par conséquent, pour obtenir avec succès un ciblage viral correct dans d’autres régions cérébrales au-delà du MeA, les chercheurs devront obtenir une estimation éclairée des coordonnées et effectuer des tests de coordonnées. Deuxièmement, il faut prendre en compte le temps d’incubation des AAV. Le temps d’incubation optimal pour l’expression in vivo de l’AAV est d’au moins 2 à 3 semaines. Étant donné que, dans notre protocole, la chirurgie stéréotaxique est pratiquée chez des souris nourrissons au niveau P11, les chercheurs ne pourront commencer à tester les souris après l’opération qu’à P25, après la période optimale d’incubation de l’AAV.
Dans l’ensemble, ce protocole fournit des directives détaillées permettant aux chercheurs de cibler avec grande précision les régions cérébrales d’intérêt chez les souris nourrissons utilisant des vecteurs viraux. Cette approche est très avantageuse, car elle est extrêmement flexible : toute construction AAV commerciale ou sur mesure peut être injectée. Ainsi, il permet d’étudier les sous-populations cellulaires d’intérêt définies moléculairement ainsi que leur circuit anatomique, leur dynamique neuronale et leur rôle cellulaire avant et après la puberté durant une fenêtre temporelle critique liée à l’émergence des comportements sociaux. De plus, cette approche est efficace pour cibler non seulement l’amygdale, comme montré ici, mais aussi d’autres structures sous-corticales, telles que l’hypothalamus et les régions corticales.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à déclarer.
Remerciements
Nous remercions le Dr Andrew Gorman, le Dr Donna Webb et David Goulding de la Comparative Medicine Branch (CMB) du National Institute of Environmental Health Sciences (NIEHS/NIH) pour leurs précieuses discussions sur les meilleures pratiques en anesthésie et analgésie pour les interventions chirurgicales des rongeurs. Nous remercions également tous les membres du CMB au NIEHS pour leur soin exceptionnel envers les sujets animaux ainsi que tous les membres du groupe des circuits neurocomportementaux. Ce travail a été soutenu par le Programme de recherche intramuros de l’Institut national des sciences de la santé environnementale, des National Institutes of Health (NIEHS/NIH) (ZIA ES103403) (J.E.L.). Les contributions des auteurs des NIH sont considérées comme des œuvres du gouvernement des États-Unis. Les conclusions et conclusions présentées dans cet article sont celles des auteurs et ne reflètent pas nécessairement les vues des NIH ou du Département américain de la Santé et des Services sociaux.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Mèche de foret #75 | Ville de la Mèche de Forage | 10WS75-850FL | |
| Aiguille 27 G | Covetrus | 60757 | |
| Peroxyde d’hydrogène à 3 % | Swan | NDC 0809-0871-43 | |
| 32 % de paraformoldéhyde | Sciences de la microscopie électronique | 15714 | |
| AAV2-hSyn-DIO-mCherry | Addgene | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Donkey (1:1000) Anti-Rabbit IgG (H+L) | Jackson Immuno Research | 711-545-152 | |
| Balance analytique | Sartorius | 1102--15 | |
| Betadine | Pharmacie Avrio | NDC 67618-155-15 | |
| Bupivacaïne | Hospira | NDC 0409-1163-18 | |
| Cryostat | Leica | CM1950 | |
| Microscope disséquant | Zeiss | 2149-629 | |
| Pommade oculaire | Vétérinaire de Dechra | Puralube | |
| Supports de montage Fluoromount avec DAPI | Thermo Fisher Scientific | 00-4959-52 | |
| Anticorps Foxp2 (1:1000) | Anticorps Atlas/Bio Cosmo | HPA000382 | |
| Souris Foxp2cre+/- | Le laboratoire Jackson | 30541 | |
| Porte-tête et barre pour le palais pour anesthésie gazeuse pour chiots P12 | David Kopf Instruments | 1934-C | |
| Stérilisateur de billes de verre | Fisher Scientific | 10-000-632 | |
| Capillaire en verre | Instruments de précision mondiaux | 504949 | |
| Porte-pipette en verre | David Kopf Instruments | 1975-1.2-A | |
| Bouillotte | Kent Scientific & nbsp ; Corporation | RT-0520 | |
| Isoflurane | Piramal Soins Intensifs | NDC 66794-017-10 | |
| Méloxicam | Approvisionnement vétérinaire en pivetal | NDC 46066-937-13 | |
| Micro forage | David Kopf Instruments | Perceuse modèle 1911 | |
| Aiguille flexible Microfil | Instruments de précision mondiaux | MF28G67-5 | |
| Lames de microscope | Thermo Fisher Scientific | 12-550-15 | |
| Huile minérale | Sigma-Aldrich | M5904-500ML | |
| Injecteur à nanolitres | Instruments de précision mondiaux | NANOLITER2020 | |
| Suture non absorbable | Chirurgie AD | S-N718SP13 | |
| Barres auriculaires non-Rapture | David Kopf Instruments | 1921-A | |
| Sérum d’âne normal | Jackson ImmunoResearch | 017-000-121 | |
| Complexe O.C.T. | Sakura | 4583 | |
| Équipement stéréotaxique | David Kopf Instruments | 1900 | |
| Coton-tige stérile | ULINE | S-21102 | |
| Drape stérile | Appareils jetables de l’hôpital Busse | 696 | |
| Solution saline stérile | Hospira | NDC 0409-1966-02 | |
| Eau stérile | Hospira | NDC 0409-4887-24 | |
| Saccharose | Fisher Chemical | S5-500 | |
| Seringue | Fisher Scientific | 50-252-2568 |
Références
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible