Cette étude visait à étudier la relation entre le moment de l’application du pesticide et l’activité des abeilles, mesurée par bioacoustique, dans le soja. L’analyse a montré que l’application de pesticides, quel que soit le moment, n’avait aucun effet sur l’activité des abeilles, la défoliation ou le rendement. Cependant, l’activité des abeilles était plus élevée plus tard dans la journée et pendant le pic de floraison du soja.
Article de recherche
Évaluation de la répulsion d’une combinaison insecticide-fongicide pour les abeilles à l’aide de la bioacoustique
Dans cet article
Résumé
Résumé
Le soja (Glycine max (L.) Merr.) et les abeilles entretiennent une relation mutuellement bénéfique où le nectar est échangé contre un service de pollinisation, ce qui peut améliorer la production de graines. Cependant, l’utilisation de pesticides sur le soja pendant la floraison pourrait perturber cette relation en nuisant aux abeilles et réduisant ainsi les bénéfices de rendement des pollinisateurs. Cette étude a examiné comment les applications de pesticides pendant la floraison affectent la recherche de nourriture des abeilles et le rendement du soja, en se concentrant sur le moment de l’application (milieu de matinée vs. mid journée) et le stade de floraison (R3 — floraison complète vs. R5 — fin de floraison), comparé à un témoin non traité. Pour ce faire, une expérience a été menée dans le centre de l’Ohio en 2023 et 2024, où des parcelles de soja ont été pulvérisées avec un mélange toxique pour les abeilles composé d’un insecticide pyréthroïde (0,9 % d’alpha-cypermethrine) et d’un fongicide inhibiteur de la biosynthèse stérol (41,8 % propiconazole) à l’aide d’un pulvérisateur à dos à dos. L’activité des abeilles a été surveillée à l’aide d’enregistreurs audio placés dans chaque graphique et analysée avec l’outil d’apprentissage automatique buzzDetect. L’analyse bioacoustique n’a montré aucun effet de l’application de pesticides sur l’activité des abeilles, quel que soit le moment choisi. L’activité des abeilles était significativement plus élevée pendant le stade de croissance R3, lorsque le soja était à son apogée de floraison, comparé au stade R5, où les fleurs étaient moins abondantes. L’activité des abeilles était significativement plus élevée en milieu de journée qu’en milieu de matinée. Aucune différence significative de défoliation ou de rendement du soja n’a été détectée entre les traitements aux pesticides. Ces résultats fournissent un aperçu de la variation de la recherche de nourriture des abeilles au cours de la saison de croissance et tout au long de la journée, ce qui peut éclairer les recommandations d’application des pesticides pour minimiser l’exposition des abeilles.
Introduction
L’application de pesticides peut affecter les pollinisateurs qui se nourrissent dans les systèmesagricoles 1,2,3. Il est possible d’atténuer l’effet des pesticides, au moins en partie, en synchronisant les applications pour minimiser l’exposition des pollinisateurs. Les pesticides connus pour être toxiques pour les pollinisateurs portent des étiquettes interdisant l’application lorsque les abeilles sont actives ou lorsque les fleurs sont en fleurs. Cette directive est conforme aux directives de l’EPA des États-Unis et aux fiches d’informationuniversitaires 4,5. Si elles sont respectées, ces directives peuvent réduire le risque d’application de pesticides aux abeilles, mais ne fournissent pas de conseils plus spécifiques sur les stades de croissance des plantes et les moments précis où l’activité des abeilles est la plus forte. De plus, les tests réglementaires qui informent le langage de l’étiquette ont été réalisés avec un seul pesticide et ne prennent pas en compte les interactions synergiques entre les pesticides6.
Un « mélange en cuve » est la combinaison de deux pesticides ou plus dans une seuleapplication 7 et est largement pratiqué pour réduire le coût des applications de pesticides et diminuer la compactation du sol en minimisant le déplacement des équipements lourds à travers lechamp 8. Cependant, cela représente une pratique potentiellement risquée pour les abeilles, car la plupart des combinaisons de pesticides n’ont pas été évaluées quant à leurs effets potentiels sur les organismes nonciblés 9. Malgré cela, le mélange en cuve est largement utilisé dans de nombreux systèmes de culture, notamment le poischiche 10, le citrouille11,l’amande 12 et le soja13,14.
Le soja est une culture où l’application de pesticides mélangés en aquarium peut être particulièrement importante pour la santé des abeilles. Les abeilles se nourrissent fréquemment des fleurs de soja pour le nectar, et le soja peut constituer une source majeure de nectar pour la productionde miel 15, 16, 17, 18. Bien que le soja soit autopollinisant, la pollinisation par les insectes a été maintes fois démontrée comme augmentantle rendement 19, 20, 21. Une enquête auprès des producteurs de soja a révélé qu’environ un tiers des applications de fongicides foliaires étaient mélangées en aquarium avec des insecticidesfoliaires 22. Il est recommandé d’appliquer des fongicides foliaires autour de la période où le soja est en pleine floraison pour contrôler des maladies courantes telles que l’anthracnose, le mildiou foliaire de Cercospora, la tache feuillaire œil de grenouille et la rouille dusoja 23,24,25. L’ajout d’un insecticide à une application de fongicide est considéré par de nombreux agriculteurs comme un moyen rentable de protéger leur culture en réduisant le risque de problèmes de parasites arthropodes plus tard dans la saison26. Cependant, une diversité d’abeilles et d’autres organismes non ciblés est à risque lorsqu’un insecticide est inclus dans les applications de fongicides lors de la floraisondu soja 15, 17, 27.
Un mélange fongicide-insecticide particulièrement préoccupant est la combinaison de fongicides inhibiteurs de biosynthèse stérolienne (SBI) et d’insecticides pyréthroïdes. Les insecticides pyréthroïdes sont des modulateurs des canaux sodium qui perturbent les impulsions nerveuses chezles insectes 28. De nombreux pyréthroïdes sont hautement toxiques pour lesabeilles 29,30. Les fongicides SBI inhibent les enzymes monooxygénases cytochrome P450 (P450) importantes pour la formation des membranes cellulaires fongiques, mais peuvent aussi inhiber les P450 détoxifiques qui métabolisent les pyréthroïdes et autres xénobiotiques chez lesabeilles 31. La combinaison des fongicides SBI et des insecticides pyréthroïdes s’est révélée plus toxique pour les abeilles domestiques et les bourdons que les pesticides seuls32,33. Pour cette raison, les applications impliquant des insecticides pyréthroïdes en mélange en aquarium et des fongicides SBI peuvent présenter un risque pour les abeilles et autres pollinisateurs.
Des travaux antérieurs ont rapporté que certaines abeilles peuvent être repoussées par certains insecticides pyréthroïdes34 et que l’exposition à certains pyréthroïdes peut diminuer l’activité desabeilles 35. Cependant, il a également été documenté que les fongicides, lorsqu’ils sont combinés à des insecticides, peuvent masquer l’effet derépulsion 36.
La bioacoustique, l’étude des organismes à travers les sons qu’ils produisent, offre une approche prometteuse pour évaluer les changements d’activité des abeilles au cours d’une journée ou d’une saison de croissance en réponse aux applications de pesticides. En utilisant le bruit distinct que produisent les abeilles en vol — le bourdonnement — comme indicateur de l’activité des abeilles, la bioacoustique peut être efficacement combinée à l’apprentissage automatique pour évaluer l’activité des abeilles dans une zone donnée sur une période désirée. Les données audio collectées offrent une meilleure résolution de l’activité des abeilles et permettent d’examiner les schémas quotidiens de recherche de nourriture des abeilles. De plus, ces données audio peuvent être examinées sur de plus longues périodes afin de détecter les tendances d’activité au cours d’une saison de croissance. Les décisions concernant le moment d’appliquer les pesticides prennent sur les deux échelles. La bioacoustique offre un moyen riche en informations de surveiller l’activité des abeilles et de répondre à des questions sur l’activité des abeilles dans des fenêtres temporelles étroites. Comparée aux méthodes traditionnelles comme le filet de balayage et le piège de pan, une approche bioacoustique nécessite moins de travail, permet un échantillonnage continu sur de longues périodes et est très évolutive sur de plus grands sites d’étude. L’une de ces applications de la bioacoustique concerne l’étude des effets des pesticides sur l’activité des abeilles dans les champs agricoles.
Ici, des recherches sont menées pour déterminer les effets qu’une application « dans le pire des cas » d’un mélange fongicide-insecticide en aquarium, appliqué sur le soja pendant la floraison, pourrait avoir sur l’activité des abeilles et le rendement du soja. Les pesticides utilisés étaient des formulations contenant du propiconazole, un fongicide SBI, et de l’alpha-cyperméthrine, un insecticide pyréthroïde. Ces deux pesticides peuvent être appliqués sur le soja pendant la floraison pour contrôler les maladies fongiques et les pucerons du soja (Aphis glycines)37,38. Une approche bioacoustique a été utilisée pour déterminer si l’application de cette combinaison de pesticides à différents moments de la journée (en milieu de matinée ou midi) et lors de différents stades de croissance du soja (pic de floraison [R3] ou floraison tardive [R5]) affectait l’activité des abeilles. On s’attendait à ce que les abeilles cherchent en grand nombre et soient les plus sensibles aux effets négatifs de l’application de pesticides en milieu de journée et pendant la phase de croissance R3.
Protocole
Conception expérimentale et préparation du graphique
L’expérience a été menée en juillet et début août 2023 et 2024. En général, la saison de culture du soja dans l’Ohio se déroule approximativement d’avril à novembre. Les sites utilisés pendant la saison de croissance 2023 étaient situés dans le comté de Clinton (39,488, -83,769) et le comté d’Union (40,296, -83,283), Ohio. Les sites utilisés lors de la saison de croissance 2024 étaient situés dans le comté de Clinton (39,489, -83,762), le comté de Preble (39,893, -84,611) et le comté de Licking (39,948, -82,501), Ohio.
L’expérience a utilisé un design randomisé de blocs complets pour contrôler les effets spatiaux dans le champ de soja. Dans chaque bloc, 5 parcelles étaient désignées pour un traitement spécifique. Les traitements comprenaient deux stades de croissance (R3 et R5) et deux périodes d’application (en milieu de matinée et en milieu de journée), ainsi qu’un groupe témoin non traité. Cela a conduit aux 4 applications suivantes de pesticides sur les parcelles de chaque bloc : R3 en milieu de matinée, R3 en milieu de journée, R5 en milieu de matinée, R5 en milieu de journée. Les applications en milieu de matinée ou en milieu de journée se faisaient dans une fenêtre de ~2 heures, les applications en milieu de matinée étant environ centrées autour de 10h00 et celles de midi autour de 12h30. En plus des 5 parcelles de traitement de chaque bloc, 3 parcelles étaient désignées comme pièces de rechange pouvant être transférées dans les parcelles de traitement en cas de mauvaise croissance ou d’établissement du soja. Les stades des plants de soja ont été déterminés à l’aide de guides de stade tels que celui publié par l’Université du Minnesota,Extension 39.
Des blocs de parcelles de soja étaient espacés d’environ 1,016 m (40 in) pour permettre aux chercheurs de marcher facilement entre eux. Les parcelles de soja mesuraient 1,9 m sur 8,5 m (0,0016 ha ; 6,25 ft sur 28 ft), et la variété de soja utilisée pour tous les sites était Pioneer P35T155E (Corteva, Indianapolis, IN). 6 rangées ont été plantées dans chaque parcelle et espacées de 38 cm (15 pouces). Un taux de semis de 370 658 graines par hectare (150 000 graines par acre) a été utilisé. Les abeilles impliquées dans l’expérience provenaient toutes de populations locales. Aucune abeille supplémentaire n’a été ajoutée par les chercheurs. Les auteurs ne connaissaient aucune connaissance des ruchers stationnaires ou migrateurs près des sites expérimentaux. Tous les matériaux utilisés pour l’expérience sont listés dans le tableau des matériaux.
Préparation des pesticides
Les pesticides utilisés étaient le fongicide Fitness (principe actif de propiconazole à 41,8 %) et l’insecticide Fastac EC (ingrédient actif à 10,9 % d’alpha-cyperméthrine). Les taux d’application du pesticide étaient de 6 fl oz/ac (438,47 mL/ha) pour le fongicide SBI et 3,8 fl oz/ac (277,70 mL/ha) pour l’insecticide pyréthroïde. Pour préparer les pesticides à l’application, 9,375 mL de fongicide SBI et 5,937 mL d’insecticide pyréthroïde ont été mélangés à de l’eau pour obtenir un volume final de 3 L en tant que mélange en cuve. Des gants résistants aux produits chimiques étaient portés lors de la préparation du mélange. La concentration finale de fongicide SBI dans le réservoir était de 3,125 mL par litro. La concentration finale d’insecticide pyréthroïde dans le bac était de 1,979 mL par L.
Application de pesticides
Ce mélange a été appliqué sur des parcelles individuelles de soja dans chaque bloc à l’aide d’un pulvérisateur portatif sur mesure. Le mélange de pesticides était appliqué au sommet de la canopée du soja, à une vitesse de ~5 km par heure. Après avoir commencé le processus d’application du pesticide pour un traitement donné, il a fallu ~10 minutes pour que toutes les parcelles reçoivent l’application. Pour chaque aquarium de 3 L, une surface de ~0,027 ha peut être couverte avec le mélange de pesticides. Le volume de pulvérisation consommé par hectare est d’environ 113 L. Cela signifie que ~0,18 L du mélange du réservoir a été appliqué par parcelle. Pour éviter la dérive des pesticides vers d’autres parcelles causée par le vent, les applications étaient évitées lors des jours venteux. Un équipement de protection individuelle complet (chemise à manches longues et pantalon long, gants résistants aux produits chimiques, chaussures ainsi que chaussettes, et lunettes de protection) était porté lors de l’application du pesticide. S’il y avait un excès de mélange de pesticides après la fin d’une application, il était éliminé conformément aux recommandations de l’agence de contrôle environnemental de l’État.
Installation/utilisation de l’enregistreur
La configuration générale et l’utilisation des enregistreurs audio sont similaires à un protocole décrit par d’autresauteurs 40. Des enregistreurs audio portatifs (Sony ICD-PX370) étaient fixés à des piquets en plastique à contre-pied avec un ruban adhésif à crochet, et de la mousse à cellules ouvertes était placée sur le microphone comme pare-brise. Une housse imperméable imprimée en 3D en forme de cône était fixée sur le pieu à ~3 cm au-dessus de l’enregistreur pour le protéger des intempéries.
Des enregistreurs audio étaient ensuite placés au centre de chaque parcelle ~24 heures avant la première application de pesticide et laissés en marche pendant au moins 24 heures après chaque application. Douze enregistreurs ont été déployés pour chaque jour d’application, quatre pour chaque groupe à l’heure de la journée (milieu de matinée, midi, contrôle) dans R3 et R5.
Traitement des données audio
Tous les enregistrements audio étaient traités via l’outil d’apprentissage automatique « buzzdetect » 41 , disponible à l’adresse : https://github.com/OSU-Bee-Lab/buzzdetect. Cet outil a été entraîné à distinguer les bruits de bourdonnement des insectes d’autres sons fréquemment présents dans l’environnement expérimental, comme les voitures, les moissonneuses-batteuses ou les avions. Le programme n’est pas capable de distinguer le bourdonnement d’Apis mellifera des autres espèces d’abeilles. Cependant, buzzDetect est capable de distinguer les bruits de bourdonnement de certains autres bruits d’insectes non bourdonnants, bien que des bruits spécifiques (comme les criquets, principalement la nuit) restent difficiles à distinguer. Des instructions plus précises pour faire fonctionner buzzDetect se trouvent à l’adresse suivante : https://buzzdetect.readthedocs.io/en/latest/gui/. Après analyse audio, R42 a été utilisé pour calculer le taux de détection dans des intervalles de 1 heure et 8 heures.
Données sur la défoliation
Les évaluations de la défoliation ont été réalisées en évaluant visuellement les feuilles de la canopée supérieure du soja sur 10 plantes de chaque parcelle impliquée dans l’expérience, incluant tous les traitements et les parcelles témoins non traitées comme recommandé par l’Extension43 de l’Université du Nebraska. Ces évaluations ont été réalisées 24 heures après l’application du pesticide durant la phase de croissance R5.
Données de rendement
Le soja était récolté, et le rendement mesuré en boisseaux par acre à l’aide d’une moissonneuse-batteuse et d’un système de pesée à grains. Les mesures de rendement ont été ajustées à 13 % d’humidité. Les parcelles avaient chacune 6 rangées ; seules les 4 rangées centrales ont été récoltées pour mesurer le rendement.
Analyse statistique
Toutes les statistiques ont été réalisées en R42. Les données ont été analysées soit avec des modèles linéaires à effets mixtes via le packagelme4 44 , soit une régression bêta via le packageglmmTMB 45. Les données brutes de BuzzDetect sont disponibles dans les documents complémentaires. Trois principaux types de données ont été analysés pour cette étude. Données moyennes d’activité des abeilles sur 1 h et 8 h suivant l’application d’un pesticide, le rendement de chaque parcelle de soja et la défoliation observée au stade de croissance R5.
L’activité moyenne des abeilles a été obtenue en calculant la proportion de temps positifs pour le bourdonnement des abeilles dans une fenêtre de 8 ou 1 heure. La fenêtre d’une heure vise à estimer les effets aigus de l’application de pesticides sur l’activité des abeilles, tandis que la fenêtre de 8 heures vise à estimer les effets aigus et résiduels. Les données de toxicité résiduelle ne sont pas disponibles pour l’alpha-cyperméthrine, mais la toxicité résiduelle pour d’autres pyréthroïdes a été rapportée à ~8 h aprèsl’application initiale 46. Comme le calcul de l’activité des abeilles est proportionnel, les différences d’activité ont été analysées à l’aide de la régression bêta réalisée avec le package R « glmmTMB ». Les modèles ont examiné les taux moyens de détection pour 1 h ou 8 h après l’application d’un pesticide et leur variation lors de la comparaison des parcelles traitées aux parcelles témoins (la condition « pulvérisée »), le stade de croissance du soja, l’heure de la journée d’application du pesticide, ou un stade de croissance et un terme d’interaction à l’heure de la journée. La comparaison entre les graphiques traités et témoins est référencée par la variable « pulvérisée » dans les formules du modèle à 1 heure et à 8 heures.
Dans le modèle de fenêtre d’une heure, les effets fixes étaient la condition « pulvérisée », le stade de croissance, l’heure de la journée, ainsi qu’un stade de croissance et un terme d’interaction à l’heure de la journée. Le modèle avait à la fois un terme d’interaction d’un an et un terme d’interaction par site ajusté comme effets aléatoires. La formule complète du modèle était la suivante :
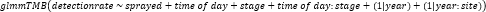 (1)
Le taux de détection variable reflète la moyenne des détections d’abeilles observées par rapport à la fenêtre totale d’observation — dans ce cas, 1 h. La variable pulvérisée correspond à la question de savoir si une parcelle a reçu une application de pesticide ou s’il s’agissait d’une parcelle témoin non traitée. La variable time_of_day correspond au fait que les détections aient été capturées après l’application de pesticides en milieu de matinée ou en milieu de journée pour la période souhaitée. Le stade variable correspond au stade de croissance dans lequel les détections ont été capturées.
Dans le modèle à fenêtre de 8 heures, les effets fixes étaient le stade de croissance et la condition « pulvérisée ». Le modèle de 8 heures inclut les horaires de pulvérisation nocturnes à midi, ce qui rend la comparaison injuste entre les horaires de mi-matinée et de midi. Cela s’explique par le fait que les heures d’application en milieu de journée ne permettent pas de détecter l’intégralité des 8 heures de toxicité résiduelle dues à l’inactivité des abeilles en soirée, une grande partie de ces fenêtres de 8 heures. Par conséquent, les applications de midi ont été exclues du modèle, tout comme les termes « heure de la journée » et « heure de la journée : étape ». La formule complète de ce modèle était la suivante :
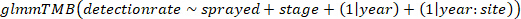 (2)
Les variables taux de détection, pulvérisation et étape ont les mêmes significations dans cette formule que dans la formule utilisée pour les fenêtres d’une heure. La seule différence est que le taux de détection variable est calculé pour une fenêtre de 8 heures. Les données de rendement ont été analysées à l’aide d’un modèle linéaire à effets mixtes. Le modèle a examiné les boisseaux par acre pour chaque parcelle et comment le rendement variait selon le traitement. L’effet fixe dans le modèle était le traitement, ainsi que le site et l’année étaient adaptés comme effets aléatoires. La formule complète du modèle s’écrit comme suit :
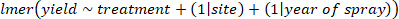 (3)
La défoliation des feuilles de soja a été mesurée en pourcentage moyen de surface foliaire manquante par parcelle. Un modèle linéaire à effets mixtes a été utilisé pour comparer l’effet de l’heure de la journée d’application du pesticide sur le pourcentage de défoliation. L’effet fixe dans le modèle était l’heure de la journée à laquelle les parcelles étaient pulvérisées. Le site et l’année ont été ajustés comme effets aléatoires. La formule complète du modèle est la suivante :
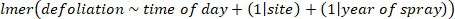 (4)
Tous les protocoles utilisés dans cette étude sont compilés dans le Fichier Supplémentaire 1.
Résultats
Activité
Le modèle de fenêtre de 8 heures (Figures 1A–B) a révélé des différences significatives entre l’activité des abeilles selon le stade de croissance du soja (Chi carré = 74,35, P < 0,001, df = 1), avec des taux moyens de détection significativement plus élevés au stade R3 comparé au stade R5 pour les 8 h suivant l’application du pesticide. Aucune différence significative d’activité des abeilles n’a été observée entre les parcelles témoins et celles recevant le mélange du bac (Chi carré = 0,053, P = 0,82, df = 1). Pour cette analyse, l’erreur quadratique moyenne était de 0,00094. Les variances pour les paramètres impliqués dans l’expérience étaient : pulvérisé = 0,021 et stade = 0,041.
L’analyse des données audio pour 1 h suivant l’application du pesticide (Figures 2A–B) a révélé des différences significatives entre l’activité des abeilles selon le stade du soja (Chi carré = 12,72, P < 0,001, df = 1) et l’heure de la journée (Chi carré = 9,97, P = 0,0016, df = 1). Le taux moyen de détection était plus élevé pendant l’étape R3 que lors de la phase de croissance R5. Le taux moyen de détection était plus élevé durant l’heure suivant la pulvérisation de midi que durant l’heure suivant la pulvérisation de mi-matinée. Aucune différence significative dans l’activité des abeilles n’a été observée lors de l’application du mélange de pesticides en réservoir (Chi carré = 0,62, P = 0,43, df = 1). Aucune différence significative n’a été observée entre l’heure de la journée et le terme d’interaction au stade de croissance (Chi carré = 2,52, P = 0,11, df = 1). Pour cette analyse, l’erreur quadratique moyenne était de 0,00094. Les estimations de variance pour les paramètres impliqués dans l’analyse étaient : pulvérisé = 0,027, heure de la journée = 0,040, étage = 0,090, heure de la journée : étape = 0,14.
Lorsqu’on fait la moyenne sur toutes les journées de l’expérience, les détections audio révèlent une tendance quotidienne des taux de détection qui présente des différences lorsqu’elles sont séparées par stade de croissance du soja (Figure 3). Pour les deux étages, les taux de détection commencent à augmenter rapidement vers ~10:00 et à diminuer rapidement vers ~17:00. Cependant, cette tendance est beaucoup plus marquée au stade de croissance du R3. De plus, les taux de détection atteignent un pic beaucoup plus élevé à ~14:00 dans R3 qu’à R5.
Données de rendement
L’analyse des données de rendement (Figure 4) n’a pas indiqué de différences dans le rendement du soja entre les traitements. Aucune différence significative n’a été trouvée pour le rendement du soja sur un type de traitement (F = 0,16, df = 4, 90,86 ; P = 0,96).
Défoliation
L’analyse des données de défoliation (Figure 5) n’a pas indiqué de différences significatives de défoliation en fonction de l’heure du jour des applications du pesticide (F = 3,046, df = 2,56 ; P = 0,055). La défoliation était généralement faible (<5 % dans la plupart des cas).
DISPONIBILITÉ DES DONNÉES :
Toutes les données brutes utilisées pour créer des graphiques et réaliser des analyses statistiques sont incluses dans la section matériaux supplémentaires.
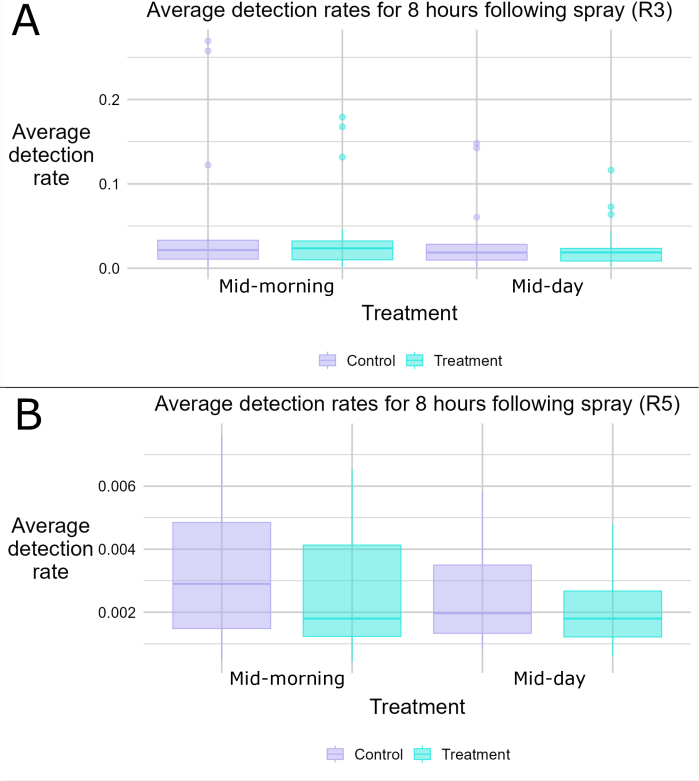
Figure 1 : Répartition des taux moyens de détection pour les 8 h suivant l’application du pesticide. (A) Distribution des taux moyens de détection (réduits de 10 min) pour les 8 h suivant l’application du pesticide durant la phase de croissance R3. (B) Répartition des taux moyens de détection (réduits de 10 minutes) pour les 8 h suivant l’application du pesticide durant la phase de croissance R5. Les groupes témoins n’ont reçu aucune application de pesticide. Il n’y a aucune différence statistiquement significative entre les groupes. Tous les boîtes affichent une droite médiane, des quartiles supérieur et inférieur (haut et bas des boîtes), ainsi que des moustaches (minimum et maximum). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
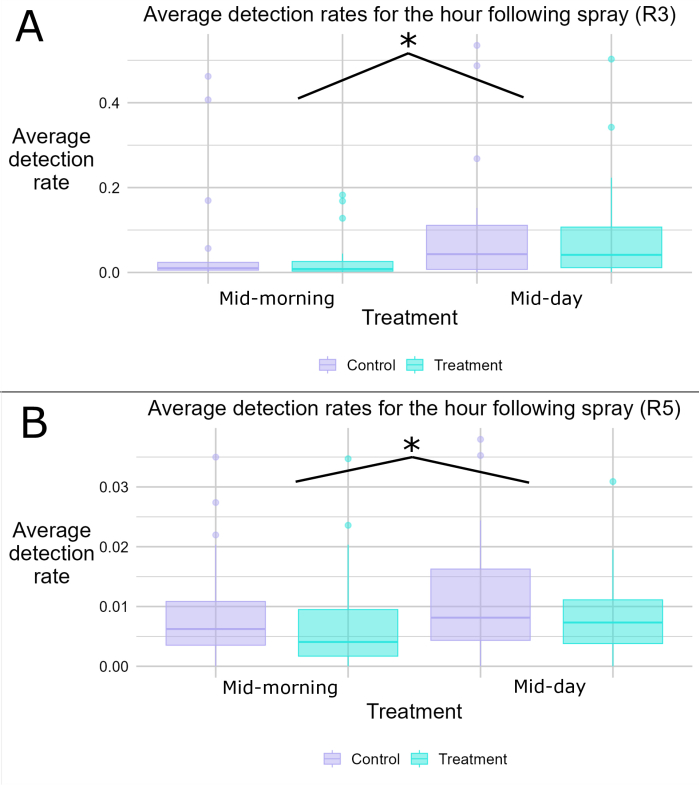
Figure 2 : Répartition des taux moyens de détection pour la 1 h suivant l’application du pesticide. (A) Distribution des taux moyens de détection des abeilles (réduits en bin-in de 10 minutes) pendant 1 h suivant l’application du pesticide durant la phase de croissance R3. Les groupes témoins n’ont reçu aucune application de pesticide. (B) Distribution des taux moyens de détection des abeilles (réduits de 10 minutes) pendant 1 h suivant l’application du pesticide durant la phase de croissance R5. Les groupes témoins n’ont reçu aucune application de pesticide. Pour R3 et R5, il y a eu une différence statistiquement significative dans les taux moyens de détection entre les groupes de milieu de matinée et de milieu de journée. Tous les boîtes affichent une droite médiane, des quartiles supérieur et inférieur (haut et bas des boîtes), ainsi que des moustaches (minimum et maximum). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
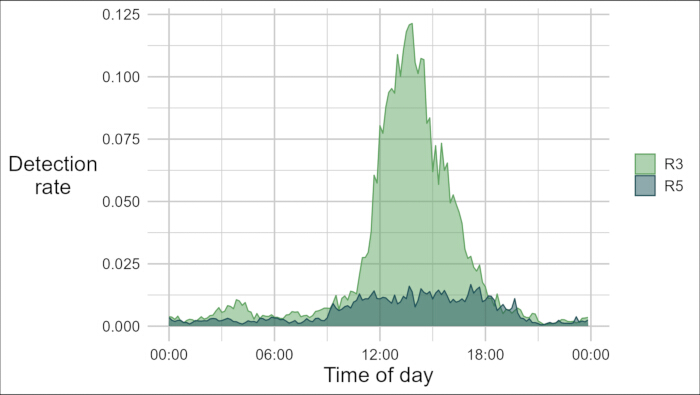
Figure 3 : Taux moyens de détection de tous les enregistreurs audio aux stades de croissance R3 ou R5. Les taux de détection (réduits de 10 minutes) étaient moyennés sur tous les enregistreurs audio utilisés dans l’expérience et séparés par stade de croissance. Des faux positifs dans les détections de bourdonnement dus aux appels de grillons ont été observés pendant la nuit, notamment vers ~4h30 du matin. Les courbes pour chaque stade de croissance ne sont pas empilées les unes sur les autres. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
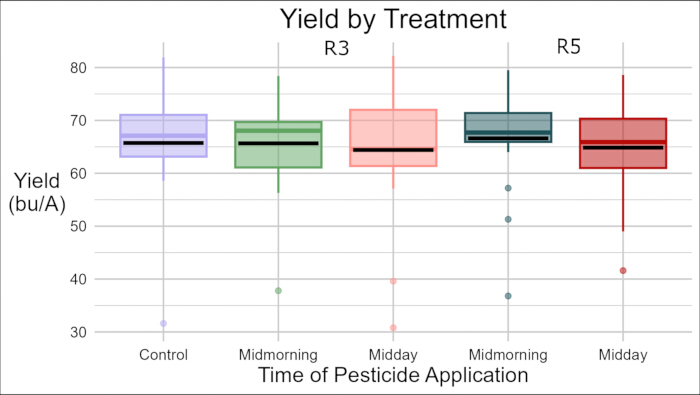
Figure 4 : Rendement en boisseaux par acre de soja pour chaque traitement. Le groupe témoin n’a reçu aucune application de pesticide. Il n’y a aucune différence statistiquement significative entre les groupes. Tous les boîtes affichent une droite moyenne (barres noires), une droite médiane, des quartiles supérieur et inférieur (haut et bas des boîtes), et des moustaches (minimum et maximum). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
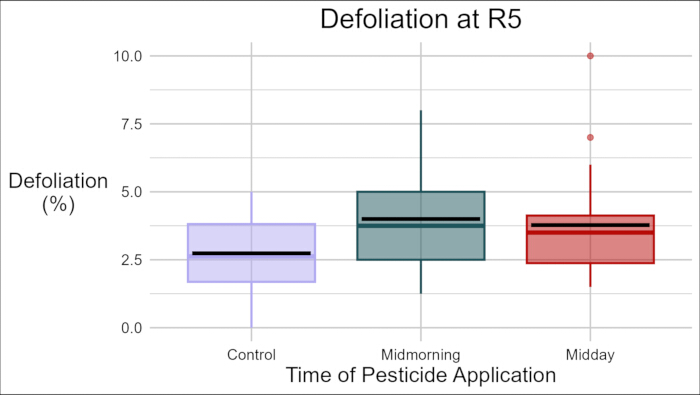
Figure 5 : Niveaux de défoliation évalués au stade de croissance R5. La défoliation, exprimée comme le pourcentage de surface foliaire manquante pour les feuilles de soja, a été regroupée selon le moment d’application du pesticide durant la phase de croissance R5. Le groupe témoin n’a reçu aucune application de pesticide. Il n’y a aucune différence statistiquement significative entre les groupes. Tous les boîtes affichent une droite moyenne (barres noires), une droite médiane, des quartiles supérieur et inférieur (haut et bas des boîtes), et des moustaches (minimum et maximum). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Fichier supplémentaire 1 : Les protocoles nécessaires pour reproduire les expériences sont listés dans ce document. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Bien qu’il soit recommandé de repérer les nuisibles et d’appliquer des pesticides selon un cadre de gestion de la protection des nuisibles, les applications de pesticides dans l’expérience étaient prophylactiques, réalisées à des moments précis de la saison de croissance selon un calendrier prédéterminé plutôt que sur la base de la pression des nuisibles. Il est possible que le rendement et la défoliation n’aient pas été affectés dans cette étude après l’application du pesticide, car la pression des ravageurs était inférieure au seuil économique. La défoliation était de <5 % dans la plupart des cas, ce qui est inférieur au seuil de 15 % de dommages économiques pour les phases reproductrices dusoja 47. Il n’y a eu aucun effet apparent de l’application de l’insecticide prophylactique-fongicide sur le rendement du soja ni sur la quantité de défoliation observée durant le stade de croissance R5. Cela suggère que l’application du pesticide n’a pas préservé le rendement du soja ni empêché l’herbivorie des insectes. Cependant, aucun repérage des nuisibles n’a été effectué, et les résultats de la défoliation suggèrent qu’il y avait peu de ravageurs à contrôler dans ces champs, ce qui est cohérent avec les résultats d’autresauteurs 48. De même, d’autresauteurs 22 ont constaté des résultats similaires lorsque les applications de pesticides en aquarium n’augmentaient pas le rendement du soja lorsqu’il y avait peu ou pas de pression d’insectes. Ces résultats suggèrent qu’ajouter un insecticide à une application de fongicide est limité lorsqu’une pression antiparasitaire est faible. Par conséquent, ajouter un insecticide peut être une dépense inutile, surtout pour les applications prophylactiques.
Les cas de bourdonnement des abeilles, utilisés comme indicateur de l’activité des abeilles dans le soja, n’ont pas été affectés par l’application du mélange insecticide-fongicide en cuve ni en milieu de matinée, ni en milieu de journée, ni lors des phases R3 ou R5. De plus, aucune réduction de l’activité des abeilles n’a été observée ni pour les fenêtres d’observation de 1 heure ni de 8 heures après l’application du pesticide. C’est surprenant, car des travaux antérieurs ont documenté un effet répulsif des insecticides pyréthroïdes34. Cela peut s’expliquer par le fait que l’insecticide pyréthroïde a été combiné à un fongicide. La combinaison de ces deux classes de pesticides a déjà montré qu’elle diminuaitla répulsion 36.
Il convient de noter que cette expérience n’a pas mesuré les effets potentiels hors site de l’application du pesticide sur les abeilles domestiques (Apis mellifera) rencontrées sur le terrain. L’absence d’effet du pesticide sur l’activité des abeilles n’indique pas nécessairement que les abeilles mellifères qui cherchaient dans ces parcelles n’aient pas été affectées par l’exposition au pesticide. Il est possible que les abeilles domestiques en quête de nourriture dans le champ aient rencontré le pesticide, continué à chercher leur nourriture, et aient ensuite subi des effets négatifs. Des études ont documenté les effets négatifs des applications de mélanges en aquarium49 et des insecticides pyréthroïdes30 sur les abeilles domestiques. Il est possible que les abeilles domestiques aient été affectées négativement, mais cet effet ne s’est pas traduit par une diminution de l’activité sur le terrain. Cela suggère que les abeilles domestiques peuvent ne pas manifester de comportement d’évitement face à certains pesticides/combinaisons qu’elles rencontrent sur le terrain. D’autres abeilles peuvent être trouvées dans les champs de soja, comme les bourdons ou les abeillessolitaires 15,17. Ces abeilles sont susceptibles d’être touchées de manière disproportionnée par les applications de pesticides qui se produisent lorsqu’elles cherchent leur nourriture sur des fleurs desoja 1.
Cette expérience a permis de clarifier les moments où les abeilles sont actives dans les champs de soja. Les abeilles étaient plus actives lors du pic de floraison du soja au stade R3 qu’au stade R5, ce qui correspond aux résultats d’autresauteurs 40. De plus, les données suggèrent que les abeilles sont plus actives dans le soja en milieu de journée que le matin. Grâce à cette expérience, une image haute résolution de l’activité des abeilles sur une journée et tout au long de la saison de croissance a été générée. Cela révèle des schémas importants d’activité des abeilles dans les champs de soja, ce qui sera essentiel pour l’élaboration de l’étiquetage des pesticides et des recommandations d’application. Ces résultats suggèrent que les applicateurs de pesticides devraient éviter de pulvériser pendant R3 et en milieu de journée afin de réduire l’exposition aux pesticides pour les abeilles. Cependant, les producteurs de soja devraient appliquer des insecticides foliaires uniquement lorsque cela est nécessaire, en fonction de l’activité des insectes nuisibles et des seuils économiques.
Déclarations de divulgation
Tous les auteurs déclarent ne pas avoir de conflit d’intérêts.
Remerciements
Les auteurs remercient Allen Geyer de l’Université d’État de l’Ohio pour la plantation, la gestion et la récolte des champs, ainsi que Arthur Rodrigues de Souza, James Underwood et Allison Davis pour leur aide dans les travaux de terrain. Ce travail a été financé par l’Agriculture and Food Research Initiative du National Institute of Food and Agriculture du Département de l’Agriculture des États-Unis dans le cadre de la subvention 2022-67019-36437 et par le programme de subventions internes du College of Food, Agricultural, and Environmental Science de l’Ohio State University (Projet # 2023-013). Le soutien à la recherche a été fourni par des fonds étatiques et fédéraux alloués à la Facultat des sciences alimentaires, agricoles et environnementales de l’Ohio State University, Ohio Experiment Station (OHO01277 ; OHO01355-MRF).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| ½ in. (1 cm) soft packing foam | Uline | S-8350 | Housse de microphone servant de pare-vent, coupée à 8 x 5 cm |
| 1,75 mm PETG+ Filament pour imprimante 3D - Rouge Vif | Inland (Microcenter) | PETG+175FR1 | Filament pour la fabrication de la housse de l'enregistreur, imprimé en mode vase, en utilisant https://www.thingiverse.com/thing:7319146/files |
| 4 pi. (1,2 m) poteau de clôture pour fil de clôture | Fi-Shock (Tractor Supply Co.) | 3600956 | Pieu pour tenir l'enregistreur audio |
| 15 cm (6 po) de serre-câbles réutilisables | VELCRO | NA | Pour fixer l'enregistreur au pieu |
| Piles AAA | Procell | NA | Pour alimenter les enregistreurs audio portables |
| Insecticide Fastac EC | BASF Ag Products | EPA: 7969-298 | Insecticide pyréthrinoïde utilisé tout au long de l'expérience. |
| Fongicide Fitness | Loveland products, Inc. | EPA: 34704-1031 | Fongicide inhibiteur de la biosynthèse des stérols (SBI) utilisé tout au long de l'expérience. |
| Système de pesage Grain Gauge H2 | HarvestMaster | NA | Pour recueillir les données de rendement des parcelles de recherche |
| Enregistreur audio portable | Sony | ICD-PX370 | Enregistreurs audio utilisés tout au long de l'expérience. Utilisés spécifiquement pour capturer des données audio dans les champs de soja. |
| Pioneer P35T155E | Corteva | P35T155E | Variété de soja utilisée tout au long de l'expérience. |
| Moissonneuse-batteuse Quantum Core plot | Wintersteiger | NA | Moissonneuse-batteuse utilisée pour récolter le soja pendant l'expérience. |
| Housse de pluie | N/A | NA | Pour protéger les enregistreurs audio de la pluie. Peut être trouvée à : https://www.thingiverse.com/thing:7319146 |
| Élastiques en caoutchouc - 2 x 1⁄16 po. (127 x 1,6 mm), #14 | Uline | S-14723 | Pour fixer l'écran anti-vent en mousse à l'enregistreur |
| SeedPro 360 | ALMACO | NA | Pour planter des graines de soja dans les parcelles de recherche |
Références
- Raine, N. E., Rundlöf, M. Pesticide Exposure and Effects on Non-Apis Bees. Annual Review of Entomology. , (2024).
- Vanbergen, A. J. Initiative the IP. Threats to an ecosystem service: pressures on pollinators. Frontiers in Ecology and the Environment. , (2013).
- Zhao, G. P., Yang, F. W., Li, J. W., Xing, H. Z., Ren, F. Z., et al. Toxicities of Neonicotinoid-Containing Pesticide Mixtures on Nontarget Organisms. Environmental Toxicology and Chemistry. , (2020).
- Andrews, H., Rose, M. A. Ohio State University Extension. Protecting Pollinators While Using Pesticides. , (2018).
- U.S. Environmental Protection Agency’s Policy to Mitigate the Acute Risk to Bees from Pesticide Products. , United States Environmental Protection Agency. (2017).
- Lydy, M., Belden, J., Wheelock, C., Hammock, B., Denton, D. Challenges in Regulating Pesticide Mixtures. Ecology and Society. , (2004).
- Gandini, E. M. M., Costa, E. S. P., dos Santos, J. B., Soares, M. A., Barroso, G. M., et al. Compatibility of pesticides and/or fertilizers in tank mixtures. Journal of Cleaner Production. , (2020).
- Fishel, F. M. Tank-Mixing Pesticides without Disasters. EDIS. , (2020).
- Tosi, S., Sfeir, C., Carnesecchi, E., vanEngelsdorp, D., Chauzat, M. P. Lethal, sublethal, and combined effects of pesticides on bees: a meta-analysis and new risk assessment tools. Science of The Total Environment. , (2022).
- Pal, V., Singh, G., Dhaliwal, S. S. Effects of Sequential and Tank Mix Applications of Zinc, Iron and Nitrogen on Symbiotic Parameters, Productivity and Economics of Chickpea (Cicer arietinum L.) Under Field Conditions. J Soil Sci Plant Nutr. , (2023).
- Kammler, K. J., Walters, S. A., Young, B. G. Halosulfuron Tank Mixtures and Adjuvants for Weed Control in Pumpkin Production. , (2008).
- Shannon, B., Walker, E., Johnson, R. M. Toxicity of spray adjuvants and tank mix combinations used in almond orchards to adult honey bees (Apis mellifera). Journal of Economic Entomology. , (2023).
- Younesabadi, M., Das, T. K., Sharma, A. R. Effect of tillage and tank-mix herbicide application on weed management in soybean (Glycine max.). IJA. , (2013).
- Bruff, S. A., Shaw, D. R. Tank-mix Combinations for Weed Control in Stale Seedbed Soybean (Glycine max.). Weed Technology. , (2017).
- Gill, K. A., O’Neal, M. E. Survey of Soybean Insect Pollinators: Community Identification and Sampling Method Analysis. Environ Entomol. , (2015).
- Lin, C. H., Suresh, S., Matcham, E., Monagan, P., Curtis, H., et al. Soybean is a Common Nectar Source for Honey Bees (Hymenoptera: Apidae) in a Midwestern Agricultural Landscape. Journal of Economic Entomology. , (2022).
- Rondeau, S., Bosanac, L. F., Raine, N. E., Forrest, J. R. K. Wild bees and wasps (Hymenoptera) visiting soybean (Fabaceae) flowers in eastern Canada. The Canadian Entomologist. , (2025).
- Robacker, D. C., Flottum, P. K., Sammataro, D., Erickson, E. H. Effects of climatic and edaphic factors on soybean flowers and on the subsequent attractiveness of the plants to honey bees. Field Crops Research. , (1983).
- Blettler, D. C., Fagúndez, G. A., Caviglia, O. P. Contribution of honeybees to soybean yield. Apidologie. , (2018).
- Kengni, S. B., Tchuenguem Fohouo, F. N., Ngakou, A. Impact of the foraging activity of Apis mellifera adansonii Latreille (Hymenoptera: Apidae) and Bradyrhizobium fertilizer on pollination and yield components of Glycine max L. (Fabaceae) in the field. IJBR. , (2015).
- De O. Milfont, M., Rocha, E. E. M., Lima, A. O. N., Freitas, B. M. Higher soybean production using honeybee and wild pollinators, a sustainable alternative to pesticides and autopollination. Environ Chem Lett. , (2013).
- Ng, S. J., Lindsey, L. E., Michel, A. P., Dorrance, A. E. Effect of Mid-Season Foliar Fungicide and Foliar Insecticide Applied Alone and In-Combination on Soybean Yield. Crop, Forage & Turfgrass Management. , (2018).
- Hershman, D. E., Sikora, E. J., Giesler, L. J. Soybean Rust PIPE: Past, Present, and Future. Journal of Integrated Pest Management. , (2011).
- Swoboda, C., Pedersen, P. Effect of Fungicide on Soybean Growth and Yield. Agronomy Journal. , (2009).
- Akem, C. N. The effect of timing of fungicide applications on control of frogeye leaf spot and grain yield of soybeans. Eur J Plant Pathol. , (1995).
- Bueno, A. F., Panizzi, A. R., Hunt, T. E., Dourado, P. M., Pitta, R. M., et al. Challenges for Adoption of Integrated Pest Management (IPM): the Soybean Example. Neotrop Entomol. , (2021).
- St Clair, A. L., Dolezal, A. G., Cass, R. P., Hendriksma, H. P., Stein, D. S., et al. Insecticide application prevents honey bees from realizing benefits of native forage in an agricultural landscape. Sci Total Environ. , (2025).
- Mode of Action Classification. , Insecticide Resistance Action Committee. (2024).
- Kumar, G., Singh, S., Nagarajaiah, R. P. K. Detailed Review on Pesticidal Toxicity to Honey Bees and Its Management. Modern Beekeeping - Bases for Sustainable Production. , (2020).
- Liu, Q., He, Q., Zhang, S., Chai, Y., Gao, Q., et al. Toxic effects of detected pyrethroid pesticides on honeybee (Apis mellifera ligustica). Sci Rep. , (2022).
- Haas, J., Nauen, R. Pesticide risk assessment at the molecular level using honey bee cytochrome P450 enzymes: a complementary approach. Environ Int. , (2021).
- Iverson, A., Hale, C., Richardson, L., Miller, O., McArt, S. Synergistic effects of three sterol biosynthesis inhibiting fungicides on the toxicity of a pyrethroid and neonicotinoid insecticide to bumble bees. Apidologie. , (2019).
- Schuhmann, A., Schmid, A. P., Manzer, S., Schulte, J., Scheiner, R. Interaction of Insecticides and Fungicides in Bees. Frontiers in Insect Science. , (2022).
- Rieth, J. P., Levin, M. D. The repellent effect of two pyrethroid insecticides on the honey bee. Physiological Entomology. , (1988).
- Rieth, J. P., Levin, M. D. Repellency of Two Phenylacetate-Ester Pyrethroids to the Honeybee. Journal of Apicultural Research. , (1989).
- Thompson, H., Wilkins, S. Assessment of the synergy and repellency of pyrethroid/fungicide mixtures. Bulletin of Insectology. , (2003).
- Ekabote, S., Raj, P., Divyajyothi, U. In Vivo Bio-efficacy and Phytotoxicity of Propiconazole + Difenoconazole on Soybean. Chemical Science Review and Letters. , (2020).
- Hodgson, E. W., McCornack, B. P., Tilmon, K., Knodel, J. J. Management Recommendations for Soybean Aphid. J Integr Pest Manag. , (2012).
- Naeve, S. L. Soybean growth stage. , (2018).
- Forrester, K. C., Lin, C. H., Johnson, R. M. Measuring factors affecting honey bee attraction to soybeans using bioacoustics monitoring. Journal of Insect Science. , (2024).
- Hearon, L. E., Johnson, L. H. P., Underwood, J., Lin, C. H., Johnson, R. M. buzzdetect: an open-source deep learning tool for automated bioacoustic pollinator monitoring. J Insect Sci. , (2025).
- R Core Team. R: A Language and Environment for Statistical Computing. , (2024).
- Wright, R., McMechan, J. Estimating Soybean Leaf Defoliation. , (2017).
- Bates, D., Mächler, M., Bolker, B., Walker, S. Fitting Linear Mixed-Effects Models Using lme4. Journal of Statistical Software. , (2015).
- Brooks, M. E., Kristensen, K., Benthem, K. J. van, Magnusson, A., Berg, C. W., et al. glmmTMB Balances Speed and Flexibility Among Packages. The R Journal. , (2017).
- US EPA. Residual Time to 25% Bee Mortality (RT25) Data. , (2014).
- Hayashida, R., Hoback, W. W., de Freitas Bueno, A. A test of economic thresholds for soybeans exposed to stink bugs and defoliation. Crop Protection. , (2023).
- Zelaya Mejia, W. D., Tilmon, K., Ortez, O., Lindsey, L. E. Soybean yield was not influenced by foliar insecticide application. Crop, Forage & Turfgrass Management. , (2024).
- Wernecke, A., Frommberger, M., Forster, R., Pistorius, J. Lethal effects of various tank mixtures on honey bees. J Consum Prot Food Saf. , (2019).
Réimpressions et autorisations
