La fonction du cristallin oculaire pour focaliser la lumière sur la rétine dépend de la transparence tissulaire, de la biomécanique et de l’indice de réfraction. Cette revue met en lumière l’architecture tridimensionnelle du cristallin et discute des mécanismes complexes qui maintiennent l’homéostasie tissulaire.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de revue
Le cristallin oculaire des mammifères en focus : développement, anatomie, physiologie, transparence, biomécanique et défis liés à l’âge
Dans cet article
Résumé
Résumé
Le cristallin est un organe ellipsoïdien transparent situé dans la chambre antérieure de l’œil qui concentre la lumière sur la rétine. Composé de cellules épithéliales et de cellules de fibres, ce tissu tridimensionnel est très organisé pour garantir un chemin clair de la lumière et utilise plusieurs stratégies pour établir et maintenir un indice de réfraction élevé et une transparence. Chez l’humain, le cristallin subit des changements de forme pour focaliser la lumière à différentes distances dans un processus appelé accommodation, et ces propriétés élastiques et biomécaniques du cristallin reposent sur des mécanismes tissulaires, cellulaires et moléculaires. Les cataractes, définies comme toute opacité dans la lentille normalement transparente, restent la principale cause de cécité dans le monde. La presbytie, due aux changements liés à l’âge de la rigidité du cristallin, a été associée à un déclin accommodant et à la nécessité de porter des lunettes de lecture. Cette revue explorera le développement et la croissance du cristallin chez les mammifères, les protéines cristallines et cytosquelettiques, la communication et la microcirculation cellulaire-cellule, la biomécanique du cristallin, ainsi que les défis et méthodes innovantes pour étudier ce tissu unique.
Introduction
Le cristallin oculaire est, à première vue, un tissu relativement simple composé de deux types cellulaires : les cellules épithéliales et les cellules fibreuses. La masse globale du cristallin est composée de cellules fibreuses, et il existe une monocouche de cellules épithéliales recouvre l’hémisphèreantérieur 1 (Figure 1A). L’ensemble du tissu est enfermé dans une fine membrane basale, appelée capsule du cristallin, principalement composée de collagène IV et de laminine, comme décrit dans une revueprécédente 2. Faute d’apport sanguin et de nerfs, le cristallin est suspendu dans la chambre antérieure de l’œil par des fibres zonulaires élastiques (appelées zonules) reliant la capsule du cristallin au corpsciliaire 1. Les cellules épithéliales du cristallin antérieur ou central sont cuboïdes et disposées selon un motifpavé 3,4,5 (Figure 1A, cellules bleu clair, haut). Ces cellules sont quiescentes et ne prolifèrentpas 6. Juste devant l’équateur du cristallin, les cellules épithéliales se divisent dans la zone germinative (Figure 1A, cellules orange, en haut à droite), et ces cellules équatoriales migrent vers l’équateur où elles deviennent très ordonnées en rangées méridiales avec une forme hexagonale 7,8,9,10 (Figure 1A, cellules vertes, en haut à droite). Les cellules méridiales ancrent leurs extrémités apicales au point d’appui du cristallin ou modiol et commencent à s’allonger et à se différencier en nouvelles cellules fibreuses secondaires (Figure 1A, en bas à gauche). Les extrémités apicales des fibres secondaires migrent vers le pôle antérieur en interagissant avec le côté apical des cellules épithéliales, formant une jonctionapical-apicale inhabituelle 3 (Figure 1A, ligne rouge). Les extrémités basales postérieures des fibres nouvellement formées s’étendent vers le pôle postérieur en se déplaçant le long de la capsule du cristallin (Figure 1A, en bas à gauche). Une fois que les extrémités des cellules fibreuses allongées atteignent le pôle antérieur ou postérieur, les cellules se détachent des cellules épithéliales antérieures ou de la capsule postérieure et rejoignent les extrémités des cellules s’étendant du côté opposé du tissu pour former la suture11, 12, 13 (Figure 1A, en haut à gauche). Les cellules à fibres de lentilles sont une forme hexagonale allongée en section transversale avec 2 côtés longs/larges, 4 côtés courts et 6 jonctions tricellulaires (Figure 1A, en bas à droite)14. Un espace intercellulaire minimal entre les cellules à fibres voisines réduit la diffusionde la lumière 14. L’ajout continu de cellules de fibres corticales à la périphérie, superposées aux générations précédentes de fibres, facilite la croissance à vie ducristallin 14,15. Le centre du cristallin est appelé noyau, et cette région du cristallin présente une raideur accrue par rapport à la périphérie ou au cortex, comme décrit dans une revueprécédente 16.
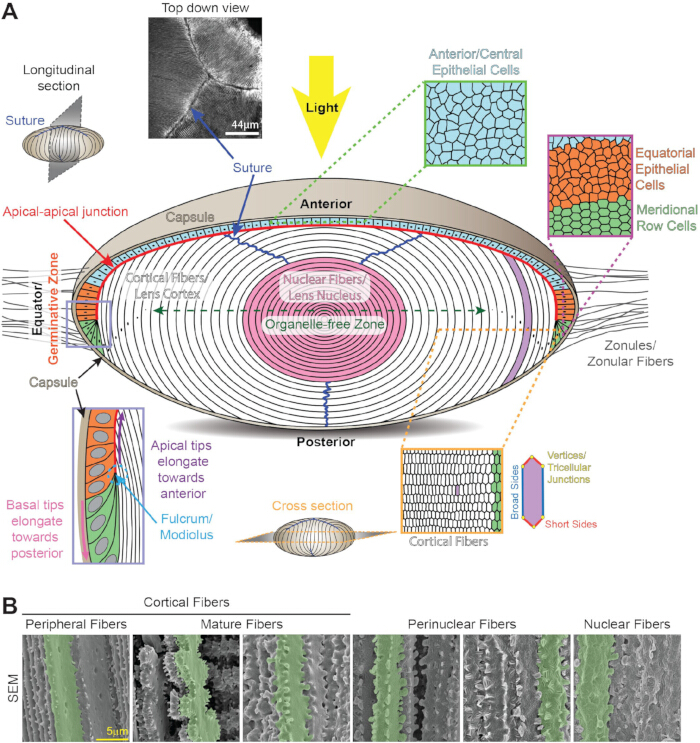
Figure 1 : Anatomie et structure du cristallin. (A) Le cristallin est composé d’une monocouche de cellules épithéliales (bleu clair, orange et vert clair) recouvrant l’hémisphère antérieur et d’une masse volumineuse de fibres du cristallin (blanc et rose). Une fine membrane collagénique, appelée capsule du cristallin (bronzage), encapsule le tissu. Le cristallin est suspendu dans la chambre antérieure de l’œil par des fibres zonulaires (zonules) insérées dans la capsule autour de l’équateur du cristallin. Les cellules épithéliales antérieures/centrales (bleu clair, en haut) sont cuboïdes et en section transversale en pavés. Les cellules épithéliales équatoriales (orange) dans la zone germinative se transforment de cellules emballées aléatoirement (orange) en rangées méridiales organisées de cellules hexagonales (verte). Les cellules méridiales s’allongent pour devenir de nouvelles couches de fibres secondaires corticales (blanches) à la périphérie du cristallin. Les extrémités apicales des fibres secondaires nouvellement formées s’ancrent au point d’appui/modiol (boîte à pervenche, en bas à gauche). Les extrémités apicales des fibres secondaires allongées migrent vers le pôle antérieur le long du côté apical des cellules épithéliales du cristallin et forment une jonction apical-apicale inhabituelle (ligne rouge). Les extrémités basales des fibres allongées migrent vers le pôle postérieur le long de la capsule postérieure. Lorsque les fibres secondaires sont complètement allongées, les extrémités se détachent de l’épithélium antérieur ou de la capsule postérieure pour former la suture du cristallin (lignes bleu foncé et image en haut à gauche). Les cellules de fibres de cristallin sont des hexagones allongés en section transversale (en bas à droite) avec 2 côtés longs/larges, 4 côtés courts et 6 jonctions tricellulaires. Lors de la maturation des cellules fibreuses, tous les organites cellulaires sont retirés pour former la zone sans organites (flèche à double tête vert foncé) et minimiser la diffusion de la lumière. Les cellules fibreuses du cristallin les plus anciennes sont compactées au centre du tissu pour former le noyau du cristallin (rose). Les dessins animés ne sont pas dessinés à l’échelle. (B) Les images au microscope électronique à balayage des cellules fibreuses à différentes profondeurs du cristallin montrent l’évolution de la morphologie cellulaire lors de la différenciation et de la maturation. Les cases individuelles sont mises en évidence en vert pour emphaser. Les fibres périphériques corticales présentent des interdigitations en boule et cavité le long des côtés longs et de petites protubérances le long des côtés courts. Lors de la maturation des cellules fibreuses, de grandes palettes décorées de petites protubérances et de grandes protubérances décorent les côtés courts des cellules matures. Les fibres périnucléaires présentent des inter-dixitions languette et rainures le long de toute la membrane et de grandes protubérances le long des côtés courts. Les fibres nucléaires présentent de grandes protubérances le long des côtés courts et une morphologie de membrane globulaire. Barre, 5 μm. Modifié à partir de 16 328. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
La complexité du cristallin réside dans l’organisation cellulaire tridimensionnelle (3D) très ordonnée, la maturation spécialisée des fibres qui dégrade et élimine tous les organites cellulaires, ainsi que dans les mécanismes moléculaires et cellulaires permettant d’établir et de maintenir la transparence et un indice de réfraction élevé du tissu. L’absence d’organites cellulaires dans la plupart des cellules de fibres du cristallin aggrave les difficultés à maintenir la santé et la longévité de chaque cellule du cristallin jamais créée tout au long de la vie d’un organisme. Le cristallin est un excellent tissu pour étudier le vieillissement et les changements liés à l’âge, car les cellules les plus centrales ont été formées lors du développement embryonnaire précoce, et le cristallin continue de générer de nouvelles cellules à la périphérie du tissu tout au long de la vie, permettant d’étudier les cellules anciennes chronologiquement par rapport à celles formées à l’âge avancé. La fonction de mise au point fine du cristallin permet de former une image claire sur la rétine à partir d’objets situés à différentes distances et dépend de la capacité du cristallin à changer de forme ou à s’adapter. Le cristallin est un tissu non conjonctif et non musculaire où des propriétés biomécaniques sont nécessaires au fonctionnement normal.
La principale cause de déficience visuelle estl’âge de 17 ans. Les changements liés à l’âge entraînent deux pathologies majeures du cristallin, la cataracte et lapresbytie 18. Les cataractes ou toute opacité du cristallin restent la principale cause de cécité dans le monde19 et sont causées par des facteurs génétiques et environnementaux, notamment les rayons UV, le tabagisme, le diabète et le stress oxydatif, qui entraînent l’agrégation des protéines et/ou des défauts cellulaires, comme décrit dans les revuesprécédentes 18,20,21,22,23,24,25 . La presbytie, une diminution de l’accommodement liée à l’âge, est causée par une diminution de la capacité du cristallin à changer de forme lorsqu’elle met au point des objets proches et, par extension, par le besoin de lunettes de lecture 26,27,28. L’Organisation mondiale de la santé estime qu’il y a au moins 1 milliard de personnes dans le monde avec une déficience visuelle non traitée, dont 65,2 millions de personnes atteintes de cataractes et 826 millions de personnes atteintes depresbytie 17. Avec une population vieillissante, il est urgent de mieux comprendre la physiologie et la biologie du prisme.
Cette revue aborde l’architecture tissulaire, l’organisation cellulaire et les mécanismes moléculaires importants pour la fonction et l’homéostasie des lentilles des mammifères, avec quelques informations sur les lentilles d’autres vertébrés. L’objectif est de donner un aperçu général de la biologie et de la physiologie du cristallin, avec des références à des revues détaillées supplémentaires. Les sujets abordés incluent le développement du cristallin embryonnaire, la croissance postnatale des cristallins, l’agencement des cellules et tissus 3D, les propriétés biomécaniques du tissu et la microcirculation. Les principales protéines du cristallin, à savoir les cristallins, les réseaux cytosquelettiques et la communication cellule-cellule, sont abordées ci-dessous. La revue se conclura avec les défis actuels et les méthodes innovantes pour étudier ce tissu unique.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Revue et perspective
Développement du cristallin embryonnaire et croissance postnatale du cristallin
Chez les vertébrés, le cristallin se développe à partir de cellules ectodermiques de surface, et le cristallin futur commence par un épaississement de l’ectoderme de surface au-dessus de la vésicule optique 6,29,30 (Figure 2A). En conjonction avec la formation de la coupe optique, l’ectoderme épaissi ou placode du cristallin s’invaginait dans la fossedu cristallin 6,29,30 (Figure 2B). Les filaments d’actine (F-actine) fixent la fosse postérieure du cristallin à la surface antérieure de la coupe optique en développement pour coordonner le mouvement et les changements de forme de ces tissusen développement 31,32,33,34, et la constriction apicale des cellules épithéliales du cristallin est nécessaire pour l’invagination du cristallin 35,36,37,38,39,40 (Figure 2C). L’ouverture de la fosse du cristallin continue de se rétrécir jusqu’à ce que le trou soit fermé, alors que les cellules de la tige du cristallin subissent l’apoptose41, 42, 43. La vésicule du cristallin est séparée du futur ectoderme cornéen pour former la vésicule du cristallin, une sphère creuse de cellulesépithéliales 6,29,30 (Figure 2D). Les cellules épithéliales postérieures dans la vésicule du cristallin s’allongent vers l’épithélium antérieur et se différencient en cellules fibreuses primaires pour remplir la cavité et former le cristallin embryonnaire (Figure 2E). La monocouche de cellules épithéliales recouvrant l’hémisphère antérieur est maintenue alors qu’il n’y a pas de cellules épithéliales postérieures dans le cristallin embryonnaire entièrement formé (Figure 2F). Les cellules fibreuses primaires forment la partie la plus centrale du noyau du cristallin et sont entourées de nouvelles générations de fibres secondaires du cristallin ajoutées à partir de la périphérie ou du cortex du cristallin tout au long de lavie 6,29,30. Alors que la plupart des lentilles vertébrées se forment par invagination, chez le poisson-zèbre, la placode s’épaissit puis se délamine pour former lecristallin 44.
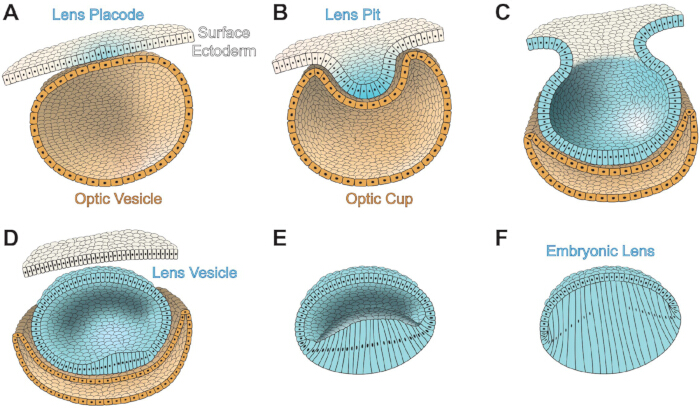
Figure 2 : Développement du cristallin embryonnaire dans les yeux des mammifères. Les cellules ectodermiques de surface sont blanches, les cellules du cristallin sont bleu clair, et celles de la coupe optique/vésicule sont couleur sable. (A) La placode du cristallin embryonnaire (bleu clair) se développe à partir de l’ectoderme de surface. Derrière l’ectoderme de surface et la placode du cristallin se trouve la vésicule optique. (B) L’invagination de la placode du cristallin forme la fosse du cristallin, et l’invagination de la vésicule optique forme la coupe optique. La coupe optique antérieure se développera en iris et en corps ciliaire, tandis que la coupe optique postérieure formera la rétine et l’épithélium pigmenté rétinien. (C) L’ouverture de la placode de la lentille se rétrécit jusqu’à ce que l’ouverture soit fermée. (D) La vésicule du cristallin se sépare de l’ectoderme de surface et est une sphère creuse tapissée de cellules épithéliales du cristallin. (E) Les cellules épithéliales postérieures du cristallin dans la vésicule du cristallin commencent à s’allonger et à se différencier en fibres du cristallin primaires. (F) Les fibres du cristallin primaires remplissent la cavité de la vésicule du cristallin pour former le cristallin embryonnaire. Les dessins animés ne sont pas dessinés à l’échelle. Modélisé d’après 411. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Pendant le développement embryonnaire, le cristallin est entouré d’un réseau en forme de panier de vaisseauxsanguins 6,45,46. Ces vaisseaux prennent naissance dans l’artère hyaloïde de la rétine et commencent à former un réseau à l’arrière de la fosse du cristallin, créant finalement un réseau ordonné de la tunica vasculosa lentis pour nourrir le cristallin embryonnaire jusqu’à ce que la chambre antérieure et la production d’humeur aqueuse soient pleinementdéveloppées 6,45. Ces vaisseaux régressent et disparaissent pour assurer un chemin lumineux clair avant la naissance ou avant l’ouverture des yeux, selon l’espèce 6,45,46,47.
Pax6 est nécessaire au développement précoce de l’œil 48,49,50,51,52 et est essentiel et suffisant pour le développement des lentilles 53,54,55,56. La phosphorylation et la SUMOylation de Pax6 régulent la fonction de ce facteur de transcription lors du développement du cerveau, du système nerveux central etdes yeux 57,58,59,60. D’autres voies de signalisation importantes nécessaires au développement embryonnaire des yeux et des lentilles croisent la signalisation Pax6, notamment les amplificateurs [Meis, protéines morphogéniques osseuses (Bmp) et facteur de croissance fibroblastique (FGF)] ainsi que les protéines aval [Foxe3 et acide rétinoïque (AR)], comme décrit dans une revueprécédente 61. Meis1 et Meis2 se lient à la région d’amplification du gène Pax6 et sont nécessaires à l’induction par cristallin chez lesvertébrés 62. Des études génétiques montrent que Bmp7 est nécessaire au développement de la placode du cristallin en régulant l’expressionde Pax6 63,64. Foxe3 est en aval de la signalisation Pax6 et est nécessaire pour le développement ducristallin 65,66, en particulier pour la séparation nette de la tige du cristallin de l’ectoderme de surface lors de la formation de la vésicule du cristallino. La perte de Foxe3 entraîne des malformations oculaires congénitales connues sous le nom d’anomaliede Peters 67. La signalisation du récepteur FGF (FGFR) coopère avec Bmp7 pour réguler l’expression de Pax6, ce qui affecte à son tour les niveaux de Foxe3 dans le cristallinde développement 68. L’expression d’une forme inhibitrice de FGFR entraîne un retard dans la formation de la placode du cristallin, une séparation incomplète du pédoncule du cristallino, et une petite vésiculedu cristallin 68. La perturbation de la signalisation de la PR entraîne des défauts de formationoculaire 69, et lorsque Pax6 est perturbé, l’expression de la PR diminue, suggérant une certaine diaphonie entre les deux voies de signalisation70.
Une fois le cristallin embryonnaire complètement formé, la croissance continue du cristallin par la prolifération et la différenciation des cellules épithéliales équatoriales en fibres secondaires du cristallin est considérée comme étant stimulée par la signalisation des facteurs de croissance, principalement via la FGF dans les lentilles de mammifères, comme décrit dans une revueprécédente 71. Les FGF sont plus abondants dans le vitré que l’humeur aqueuse, créant un gradient de signaux croissants de croissance et de différenciation près de l’équateurdu cristallin 72,73. Le cristallin exprime 3 des 4 FGFR, FGFR1, FGFR2 et FGFR3, avec une expression croissante à l’équateur du cristallinet après le cristallin, 74,75. La surexpression des FGF induit une élongation anormale et une différenciation des cellules épithéliales antérieures normalement quiescentes en cellulesfibreuses 76,77,78. En plus de la signalisation FGF, des tests inhibiteurs ont indiqué que la voie Bmp joue un rôle dans l’allongement desfibres 79,80, et qu’un récepteur anormal du facteur de croissance transformant bêta (TGFβ) perturbe la maturation normale desfibres 81.
Transparence du cristallin et indice de réfraction
Les cellules de fibres du cristallin subissent un processus spécialisé pour retirer tous les organites cellulaires pendant la maturation, éliminer les objets diffusant la lumière sur le chemin de la lumière et créer la zone sans organites (OFZ)82 (Figure 1A). La perte coordonnée de tous les organites cellulaires se produit rapidement une fois que les cellules fibreuses atteignent un stade spécifique de leur programmationde maturation 83,84,85,86,87,88. Une dégradation anormale des organites conduit à la cataracte, et plusieurs modèles de poisson-zèbre knockout (KO) et de souris ont identifié des gènes pour la dégradation de la chromatineet de l’ADN 89,90,91,92,93, les kinases dépendantes de la cycline 94,95, le facteur de choc thermique 4,91,96,97,98, et la phospholipasePLATT 99 qui sont importantes pour la formation de l’OFZ. Une expression ou mutation anormale dans les protéines de membranes cellulaires et du cytosquelet, 100,101,102,103,104, cristallines 105,106,107 et oncogènes108,109 peuvent également affecter l’ablation des organites et la transparence du cristallin. Cependant, le signal exact qui déclenche la dégradation des organites dans les cellules fibreuses reste incertain. Des travaux récents ont révélé l’importance des protéines liant l’ARN dans le développement du cristallin et la cataractogenèse, comme décrit dans une revue précédente110. La perturbation des protéines de liaison à l’ARN, notamment Tdrd7111, caprin2112, Rbm24113 etCelf114, 115, 116, entraîne un développement anormal des cristallins, une dégradation des organites perturbée et des cataractes.
Comparées à la plupart des types cellulaires du corps, les cellules de fibres du cristallin des mammifères présentent une concentration de protéines extrêmement élevée (200–450 mg/ml)117,118,119,120. Les protéines représentent 30 % à 35 % du poids total du cristallino, et par conséquent, le cristallin a une teneur en eau relativement faible, soit environ 65 % à 70 %. Quatre-vingt-dix pour cent des protéines du cristallin, en masse, sont descristallines 123, et il existe trois familles de protéines cristallines dans les lentilles des mammifères : α, β et γ, comme décrit dans des revuesprécédentes 124 125. Une teneur en protéines élevée augmenterait normalement le risque d’agrégats supérieurs à la moitié de la longueur d’onde de la lumière, entraînant une diffusionde la lumière 126, mais les protéines cristallines sont organisées dans le cytoplasme des cellules fibreuses avec un ordre à courte portée pour favoriser un indice de réfraction élevé et unetransparence 117,127. L’agrégation protéique est atténuée par les fonctions chaperoniques des α-cristallins, discutées ci-dessous. L’indice de réfraction du gradient (GRIN) à travers le cristallin favorise la mise au point de la lumière, comme décrit dans les revuesprécédentes 128 129, et l’indice de réfraction maximal au centre du cristallin est corrélé à la compactation des cellules à fibresnucléaires 130 131, 132. Dans les lentilles de poisson, les données suggèrent qu’un indice de réfraction élevé dans le noyau résulte du transport de protéines vers le centre dutissu 133. La distribution uniforme des protéines cristallines à travers les cellules et entre les coques de fibres est supposée être facilitée par une voie de transport macromoléculaire via des fusions membranaires le long des membranescellulaires de fibres 134,135. Cependant, les fusions membranaires n’ont pas été clairement observées dans les lentillesde souris 136,137,138, et les études d’impédance sur des lentilles de plusieurs espèces ne détectent pas de fusionsmembranaires 139,140,141,142. Les données issues de modèles murins perturbant la communication par jonction à gap suggèrent que la communication cellule à cellule et l’allongement des fibres cellulaires contribuent également à la voie de transportmacromoléculaire 143.
Les cristallins ont un poids moléculaire de ~20 à 30 kDa et jouent un rôle structurel et réfractif dans le cristallin. Les alpha-cristallins sont composés de sous-unités αA et αB, qui partagent 55 % à 60 % d’homologie144 145 146, et tandis que αB est omniprésent dans la plupart des cellules, αA-cristalline est principalement exprimée dans le cristallin et a été détectée à faibles niveaux dans d’autres tissus, notamment la rate et le thymus147 148. Des travaux récents ont également montré que les cellules épithéliales pigmentées de la rétine et les cellules ganglionnaires rétiniennes peuvent exprimer l’αA-cristalline lors du stress ou de la maladie, vraisemblablement pour fournir un effet neuroprotecteur 149,150,151. Les alpha-cristallins s’associent généralement en grands hétéromultimères de 30 à 35 sous-unités mixtes αA etαB 123. Dans l’épithélium du cristallin de la souris, du bovin et de l’humain, seul αB est détecté dans les cellules antérieures, tandis que αA et αB existent dans un rapport de 1:3 dans les cellules équatoriales ; Ce ratio passe à 3:1 lors de la différenciation et de l’élongation des cellules fibreusessecondaires 123 152 153. Les alpha-cristallins appartiennent à la famille des petites protéines des chocs thermiques et possèdent des fonctions similaires àdes chaperones 154, permettant à ces protéines de se lier et de séquestrer des protéines anormales ou non repliées afin d’empêcher une agrégation protéique supplémentaire. De petits peptides α-cristallins ont été explorés pour prévenir les maladies induites par l’agrégation des protéines, y compris la cataracte, comme décrit dans une revueprécédente 155. Cependant, une activité accrue ou diminuée des α-cristallins de type chaperonne dans les modèles murins démontre que l’un ou l’autre scénario conduit à une sévérité accrue de la cataracte et suggère qu’une activité appropriée de type chaperon des α-cristallins est cruciale pour la transparence du cristallin156. Les bêta- et γ-cristallins appartiennent à leur propre famille de protéines β/γ-cristallines et sont spécifiques aux cellules fibreuses ; Chez les mammifères, il existe 7 isoformes de β-cristallins qui existent sous forme de dimères, tétramères ou oligomères d’ordre supérieur, et il existe 7 isoformes de γ-cristallins qui sont des monomères, comme décrit dans une revueprécédente 125. En plus des fonctions structurales, les β et γ-cristallins lient les ions calcium et régulent la disponibilité et les réserves d’ions calcium dans les fibresdu cristallin 157,158,159,160,161.
Protéines cytosquelettiques et membranaires du cristallin
Les cellules épithéliales et fibreuses du cristallin possèdent des réseaux de filaments intermédiaires F-actine, kératine ou vimentine, filaments intermédiaires perlés spécialisés et microtubules, comme décrit dans des revues précédentes. 162 163 164 165 166. En plus des fonctions dans le développement des yeux et descristallins 31,32,33,34, divers réseaux F-actine dans les cellules épithéliales et fibreuses du cristallin sont importants pour la transparencedu cristallin 167,168,169,170,171,172. Des travaux récents ont montré que l’altération du réseau F-actine affecte la biomécanique ducristallin 173,174,175,176. Les filaments intermédiaires composés de vimentine ou de kératine ne sont présents qu’aux premiers stades de différenciation des cellules des fibres du cristallin ou lors du développement embryonnaire, respectivement 177 178 179 180 ; en revanche, toutes les fibres du cristallin possèdent des filaments intermédiaires perlés composés d’hétérodimères de filensine (alias CP95/CP115 et codés par Bsfp1) et CP49 (aussi appelés phakinine et codés par Bsfp2)182,183,184. L’apparence perlée de ces hétérodimères est due aux oligomères composés de CP49 et de filensine décorant le noyau de filament185,186 et à la liaison de α-cristallins le long de ces filaments intermédiairesspécialisés 187,188,189,190,191. La perte de filensin ou de CP49 entraîne la perte totale de ce réseau192, 193, 194, 195. La perturbation des filaments intermédiaires de vimentine ou des filaments intermédiaires perlés provoque des cataractes chez l’homme et les modèles animaux 192,193,196,197,198,199,200,201,202,203,204, montrant l’importance de ces réseaux cytosquelettiques pour la transparence du cristall. Des travaux récents suggèrent que les microtubules sont importants pour l’allongement des cellules des fibresdu cristallin 205,206 et la formation de la zone sansorganites 177.
Les jonctions adhésives qui interagissent avec le cytosquelette de l’actine sont importantes pour la formation ducristallin 207 et la différenciation des cellules fibreuses. L’E-cadherine et la N-cadherine sont toutes deux exprimées dans les cellules épithélialesdu cristallin 208, 209, 210, 211, et l’E-cadherine est désactivée au début de la différenciation des cellulesfibreuses 212. La N-cadherine est fortement exprimée dans les cellules de fibres du cristallin et est enrichie au milieu du pied hexagonal basal des cellules fibreusesallongées 8,209. La perte de N-cadherine après la formation des cellules primaires des fibres provoque une rupture de l’allongement des fibres secondaires due à une migration anormale des extrémités apicales des fibres différenciées le long de la surface apicale des cellules épithélialesantérieures 213. La perturbation de la signalisation bidirectionnelle Eph-Ephhrin dans le cristallin provoque des défauts dans les jonctionsadhésives 4,7,214,215,216.
D’autres protéines majeures de la membrane du cristallin incluent les aquaporines ; connexins ; MP20, comme décrit dans une critiqueprécédente 217 ; galectine 3 ; la protéine interfibreuse liée à la galectine (GRIFIN) ; les intégrines, comme décrit dans une revueprécédente 218 ; et sécrétait des protéines acides et riches en cystéine (SPARC). Les aquaporines et connexines sont abordées dans la section suivante. MP20 (également appelé MP17 ou Lim2) est une protéine membranaire spécifique au cristallin avec des fonctions d’adhésioncellule-cellule 85 219, abondante dans les cellulesfibreuses 220 221 ; les mutations de MP20 conduisent à descataractes 222 223 224 225 226 227 228 229 230. Des travaux récents ont montré des interactions entre MP20 et la galectine 3, une autre molécule importante d’adhésioncellule-cellule 231,232,233. GRIFIN, une isoforme spécifique à un cristallin de la galectine, est localisée dans les membranes cellulaires fibreuses et interagit avec Pax6, les cristallins et les cadherines 234,235,236,237. Les intégrines sont des liaisons importantes, entre la matrice extracellulaire (MEC) et le cytosquelette, nécessaires au développement normal du cristallin. Les isoformes d’intégrine exprimées dans le cristallin servent de récepteurs pour les composants de capsules comme la laminine, le collagène ou la fibronectine 8,238,239,240,241,242,243,244,245. Chaque composant matriciel peut interagir avec plusieurs intégrines, entraînant une signalisation diversifiée via l’expression spatio-temporelle des intégrines lors du développement et de la croissancedu cristallin 218. Un intérêt particulier est suscité pour comprendre les changements dans le TGFβ, les intégrines et les composants ECM lors de la transition épithéliale-mésenchymatose dans les cellules épithéliales résiduelles du cristallin après une chirurgie de la cataracte, conduisant à l’opacification de la capsule postérieure, comme décrit dans une revueprécédente 218. SPARC, une molécule d’adhésion et de prolifération cellule-cellule, est localisée dans l’épithélium du cristallin et est absente dans les fibresdifférenciantes 246. La perte de SPARC entraîne des cataractes 246,247,248, et des études récentes ont montré que SPARC peut avoir des fonctions similaires à celles deschaperonnes 249, affecte les intégrines et les protéines ECM 250,251,252, et influence la voie de microcirculation 253.
La voie microcirculatoire d’un tissu vasculaire
En raison d’un manque d’apport sanguin, le cristallin entièrement formé génère sa propre voie de microcirculation pour délivrer les nutriments et éliminer les déchets, comme décrit dans les revuesprécédentes 254 255 256 257. Un courant ionique pénètre dans le cristallin aux pôles antérieur et postérieur et en sort à l’équateur258. Le courant entrant dépend du déplacement du sodium dans les espaces extracellulaires entre les cellules du cristallin à chaque pôle le long d’un gradient de concentration généré par le transport actif, et le courant vers l’extérieur est facilité par des canaux de jonction à gap sur les membranes cellulaires des fibres concentrées près de l’équateur du cristallin pour permettre aux ions sodium de sortir à l’équateurdu cristallin 259. Les cellules épithéliales équatoriales et les cellules de fibres périphériques présentent une forte expression de pompes d’ATPase Na+/K+ qui échangent activement 3 ions sodium hors des cellules contre 2 ions potassium provenant de l’environnement extralenticulaire 260,261,262. Le cristallin maintient une concentration élevée de potassium (135 mM) et une faible concentration de sodium (16 mM) afin de créer des conditions permettant au sodium de rentrer dans le cristallin aux pôles, sur le gradientde concentration de 259 263. En plus de l’ATPase Na+/K+, le cotransporteur ionique Na-K-2Cl cotransporter 1 (NKCC1) aide également à réguler les concentrations d’ions lentilles par activation par des canaux mécanosensibles, comme décrit dans une revueprécédente 264.
Les jonctions d’écart dans le cristallin sont composées de trois connexines : connexine 43 (Cx43 ou α1), Cx46 (ou α3) et Cx50 (ou α8)265,266. Cx43 est principalement exprimé dans les cellules épithélialesdu cristallin 267, et bien que l’initiation de la formation des cellules fibreuses soit normale dans les lentilles KO Cx43, l’interface entre les cellules épithéliales et fibroses a élargi l’espace extracellulaire et les vacuoles intracellulaires, suggérant une fonction de Cx43 dans l’équilibreosmotique 268. Cx46 est concentré dans les cellules de fibres du cristallin, et Cx50 est présent à la fois dans les cellules épithéliales etfibreuses 269. Cx23 est également exprimé dans les cellules fibreuses des lentilles de souris, mais pas dans les lentilles humaines270,271,272,273. Une mutation dominante chez Cx23 provoque des défauts des cellules fibreuses chezla souris 270, mais les lentilles Cx23 KO ne présentent aucun défautnotable 274. Six sous-unités de connexine forment un connexon ou hémicanaux, et un connexon sur une cellule s’amarre à un connexon sur la cellule voisine pour former une jonction de brèche, créant un pore de ~10 angström entre les cellules voisines, permettant l’échange de petites molécules, d’ions etd’eau 275,276. Les hémicanaux connexines permettent le passage de matériaux entre le cytoplasme intracellulaire et l’environnement extracellulaire, comme décrit dans des revuesprécédentes 277 278, et les hémicanaux sont importants pour la microcirculation279, le transport mécanosensible des nutriments etantioxydants 280 281 282 283, et la réponse au stressoxydatif 284 285,286,287,288. Les jonctions gap se rassemblent en de grandes plaques sur la membrane cellulaire des fibres ; Dans le cristallin, les plaques peuvent avoir un diamètre de taille micron et sont alignées le long des longs côtés des cellules fibreusesvoisines 289. La perte de Cx46 dans les lentilles de souris entraîne une densité de cataractes nucléaires dues à l’obstruction de la voie d’écoulement de la microcirculationdu cristallin 290,291. L’assemblage et/ou la stabilité de grandes plaques Cx46 sur la membrane cellulaire de fibres nécessite les réseaux de filaments intermédiaires F-actine etperles 289. Cx50 KO entraîne une microphtalmie, des cataractes nucléaires légères et de petits cristallins en raison d’une prolifération anormale des cellulesépithéliales 292,293. La perte de Cx50 affecte le verrouillage des plaques restantes de jonction Cx46 dans les cellules de fibres decristallin 139. Le remplacement de Cx50 par un Cx46 knock-in exprimé sous le locus endogène Cx50 (4 copies de Cx46) sauve la cataracte due à la perte de Cx50 et augmente le couplage de jonction entre fibres, mais ces lentilles transparentes à effet knock-in restentpetites 142 294. Ainsi, Cx46 ne peut pas remplacer la fonction de croissance de la lentille de Cx50. La stratégie knock-in a également été utilisée pour sauver les cataractes nucléaires causées par les protéines mutantes γB-cristallines, suggérant qu’un couplage accru des jonctions à gap peut être une stratégie pour améliorer l’homéostasie des lentilles et la préventionde la cataracte 295.
Le flux ionique généré par les ions sodium est accompagné d’un flux d’eau dans les cellules cristallines via les canauxaquaporines 259. Les canaux aquaporiniques sont composés d’Aqp1 dans les cellules épithéliales, tandis que dans les cellules de fibres, Aqp0 (aussi appelé MIP) et Aqp5 forment des canaux d’eau, selon la maturité des cellules, comme décrit dans les revuesprécédentes 264,296,297. Le déplacement de l’eau à travers des canaux de jonction à ouverture génère un gradient de pression hydrostatique à travers lalentille 298,299, et ce gradient maintient la pression osmotique de la lentille via les canaux mécanosensibles transitoires du potentiel récepteur 1 (TRPV1) et TRPV4 qui augmentent et diminuent respectivement la pression hydrostatiquede la lentille 299,300,301,302. La diminution de la tension zonulaire sur la lentille diminue la pression hydrostatique, activant TRPV1 puis NKCC1 pour augmenter la concentration d’ions dans la lentille et entraînant un écoulement d’eau vers la lentille pour rétablir la pression hydrostatiquenormale 300,301. Inversement, une augmentation de la tension zonulaire et du volume du cristallin active TRPV4 puis Na+/K+ ATPase pour diminuer la concentration d’ions lentilles et donc diminuer la pression hydrostatique 300,301,302.
Les nutriments essentiels et les acides aminés sont transportés dans le cristallin via la voie de microcirculation303, ce qui est particulièrement important pour les fibres d’OFZ. Les transporteurs de glucose facilitateurs (GLUT) se trouvent dans les cellules épithéliales et fibreuses du cristallin ; GLUT1 est exprimé dans les deux types cellulaires, et GLUT3 dans les cellulesépithéliales 304,305,306,307. Les souris KO GLUT1 développent des cataractes, ce qui suggère que l’absorption du glucose est nécessaire pour la transparencedu cristallin 308. Le glutathion (GSH), un antioxydant important pour la transparence ducristallin 309,310, est produit dans le cristallin et peut être transporté dans le cristallin à partir de l’humeur aqueuse311,312,313,314,315. La cystéine, le glutamate et la glycine sont des acides aminés essentiels à la synthèse du GSH, et l’accumulation de ces acides aminés est présente dans le cortex et les régions nucléaires ducristallin 314,315. Une diminution de la synthèse de GSH liée à l’âge ou une augmentation de leur utilisation peuvent entraîner une diminution de la disponibilité de GSH dans le cristallin, en particulier dans lenoyau 316,317,318,319,320,321. Les peroxydases glutathion (GPX) utilisent le GSH comme coenzyme pour neutraliser l’hydroperoxyde, et des travaux récents montrent que la ferroptose due à des peroxydes lipidiques toxiques peut entraîner des cataractes dues à la perturbation de GPX4322,323.
Architecture de lentille 3D et biomécanique
Le motif des fibres du cristallin en rangées organisées de cellules hexagonales provient du motif des cellules épithéliales équatoriales en rangées méridiales (Figure 1A). Les mécanismes qui orientent l’organisation des cellules épithéliales équatoriales aléatoirement empaquetées et en forme de pavés en cellules de rangée méridianelle en hexagones tournent autour du cytosquelette d’actine. La signalisation de la réceptrice tyrosine kinase EphA2 est nécessaire pour entraîner l’accumulation de F-actine aux sommets des cellules hexagonales méridiales afin de favoriser l’organisation cellulaire 7,324. La myosine IIA, une protéine contractile qui se lie à la F-actine, est également importante pour favoriser la forme de la cellulehexagonale 8,325,326. Il a longtemps été théorisé que ce remplissage très ordonné des cellules fibreuses est nécessaire pour la transparence du cristallin, mais un mauvais emballage dû à la perte d’EphA2 7,324, des mutations dans la myosineIIA 325,326, ou des cellules difformes produites à l’âgeavancé 130 suggèrent que le regroupement cellulaire hexagonal n’est pas nécessaire pour la transparence.
Les cellules fibreuses qui s’étendent des pôles antérieur vers postérieur peuvent mesurer plusieurs millimètres de long selon l’espèce animale et la taille ducristallin 327. Typiquement, les cellules fibreuses ne mesurent que 4 à 7 μm en sectionefficace 327, et ces cellules longues et fines sont maintenues ensemble par des interdigitations dynamiques cellule-cellule qui forment une fermeture éclair 3D entre les cellules fibreuses voisines, comme décrit dans une revueprécédente 328. Les interdigitations des cellules des fibres du cristallin présentent des motifs complexes qui changent à mesure que les cellules se différencient et mûrissent : : 1) les fibres périphériques nouvellement formées avec de petites protubérances le long des côtés courts et des protubérances en boule et alvéole le long des côtés longs, 2) les cellules fibreuses matures subissant une perte d’organites qui possèdent de grandes palettes avec de petites protubérances imbriquées le long des côtés courts, 3) fibres périnucléaires avec de grandes protubérances imbriquées le long des côtés courts et des interdécodillages en languette et rainure sur toute la membrane, et 4) des fibres nucléaires avec de grandes protubérances le long des côtés courts et une morphologie de membrane globulaire sur toute lamembrane 137 328 329 330 331 332 333 334 335, 336 337 338 339 (Figure 1B). Des travaux récents ont fourni des preuves directes que les interdigitations entre cellules de fibres du cristallin dépendant des réseaux de F-actine sont importantes pour la raideurtissulaire 174, soutenant une hypothèse longtemps établie. La perte d’ARVCF, un composant des jonctions adhérentes, entraîne des interdigitations anormales des fibres, un élargissement de l’espace extracellulaire et une apparition précoce de cataractescorticales 340. Les défauts de rigidité, de rigidité et de taille du noyau du cristallin sont corrélés à des changements dans les interdigitations de la langue et à la rainure et à une transition retardée vers la morphologie de la membraneglobulaire 131.
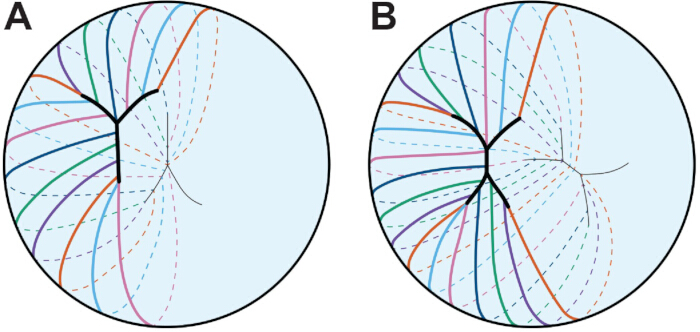
Figure 3 : Motifs de suture du cristallin. Chaque ligne colorée représente une seule cellule de fibre. (A) Les cellules fibreuses du cristallin embryonnaire humain forment une suture en Y. La suture en Y est miroiteuse aux pôles antérieur et postérieur. (B) À mesure que le cristallin humain continue de se développer et de grandir, la suture deviendra plus ramifiée. Une suture à quatre branches est représentée ici pour simplifier. Le motif de suture est décalé entre les deux pôles. Les dessins animés ne sont pas dessinés à l’échelle. Modelé d’après 45. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
La forme globale du cristallin varie selon l’espèce, et la courbure des fibres cellulaires ainsi que le type de suture sont théorisés pour déterminerla forme du cristallin 341 342. La suture est formée par la rencontre des extrémités des cellules fibreuses allongées aux pôles antérieur et postérieur, et la suture est miroitement entre les deux pôles11, 12, 13, 343 (Figure 3). Chez les lentilles de souris, la suture a une forme de Y, et chez les lentilles de primates et humaines, la suture commence en forme de Y et devient plus ramifiée à partir de11, 12, 45 ans. Fait intéressant, la suture en Y dans les lentilles de souris limite l’élasticité ou la résilience du cristallin après le retrait d’une charge mécanique, et les sutures ramifiées dans les lentilles KO perturbant la signalisation de l’éphrine Éph sont corrélées à une résilienceaccrue 344. La formation normale de la suture du cristallin nécessite une communication par jonction gap345, et les cataractes antérieures liées à l’âge dans les lentilles de souris résultent d’une formation incomplète de lasuture 130.
Les propriétés biomécaniques du cristallin peuvent être influencées par une variété de facteurs moléculaires, cellulaires et tissulaires, comme décrit dans une revue précédente16. L’augmentation de la raideur du cristallin liée à l’âge serait un facteur principal de la presbytie346. Chez l’humain, lorsqu’on observe des objets lointains, la relaxation des muscles ciliaires étire les fibres zonulaires attachées à la capsule, entraînant l’aplatissement ducristallin. Lorsqu’on focalise quelque chose de proche, le muscle ciliaire se contracte, permettant aux zonules de se détendre, et le cristallin s’arrondi pour focaliser la lumière de l’objetproche 1. Ce processus d’accommodation nécessite des propriétés biomécaniques du cristallin, la contraction du muscle ciliaire et la tension zonulaire. Avec l’âge, les études ont montré peu ou pas de changement dans la contractilité des muscles ciliaires ainsi que dans la flexibilité et la tension zonulaires 347,348,349,350. Plusieurs études ont suggéré que l’augmentation de la taille du cristallin, du noyau et de la rigidité contribue au raidissement global du cristallin à l’âgede 26 351 352 353 354. Cependant, des études sur la raideur du cristallin avec l’âge chez la souris suggèrent qu’il existe peu de corrélation entre la taille du cristallin et celle du noyau, avec une rigidité totaledu cristallin de 130 132, ce qui indique que d’autres facteurs influencent le raidissement du cristallin lié à l’âge. Des travaux récents ont montré que les modifications des réseaux cytosquelettiques affectent la rigidité du cristallin ; La perte de tropomyosine 3,5, une protéine stabilisatrice de F-actine, affecte la composition et l’organisation des réseaux F-actine à la membrane des cellules fibreuses et diminue la rigidité ducristallin 173. De même, des mutations spontanées dans plusieurs lignées de souris sauvages consanguines conduisent à un KO spontané de CP49192 355 et à des lentilles plusdouces 356 357. Les membranes cellulaires des fibres du cristallin ont une teneur en cholestérol exceptionnellement élevée 358,359,360,361,362,363, ce qui peut réguler l’élasticité de la membrane 364. Les changements dans la teneur en cholestérol de la membrane et la liaison des α-cristallins à la membrane cellulaire des fibres avec l’âge sont théorisés comme augmentant la rigidité du cristallin 365,366,367,368,369,370,371,372.
Défis et méthodes novatrices pour étudier la lentille
La structure 3D du cristallin pose des défis pour comprendre l’agencement cellule-cellule et pour créer des modèles in vitro adaptés qui reproduisent l’architecture tissulaire. Bien que des informations précieuses sur la signalisation et la localisation des protéines mutantes aient été éclairées à l’aide de cellules immortalisées ou de culture primaire, les cellules épithéliales à lentille isolée ne présentent pas la morphologie cuboïdale caractéristique ni la même expression génique ou structure cytosquelettique que les cellules épithéliales à lentillenative 373. In vitro lentoid, comme décrit dans une revue précédente,les modèles 374 etLenslet 375 créent respectivement des cellules fibreuses et des boules de cellules ressemblant à une mini lentille. Ces modèles créent une structure transparente semblable à une lentille, utile pour des tests rapides de dépistage, mais aucun modèle ne reproduit l’organisation normale des cellules fibreuses ni la structure 3D du cristallin. De nombreux protocoles ont été développés pour localiser les protéines dans les sections de tissu du cristallin et l’immunocoloration, et cette méthode reste la méthode la plus efficace pour comprendre si les protéines sont exprimées dans des compartiments cellulaires spécifiques. Cependant, la coupe tissulaire pour l’histologie et l’immunocoloration peut être difficile, notamment sur des échantillons de mammifères adultes plus âgés, en raison d’une fixation incomplète ducristallin 137 ; et l’étude de la structure 3D dans des sections 2D élimine des détails importants pour comprendre la forme des cellules, les interactions entre cellules et la localisation des protéines. Alors que la microscopie électronique (EM) reste la référence pour étudier la forme des cellules fibreuses, localiser les protéines dans les échantillons EM reste un défi: 376 377 378. Travaux récents avec des montures plates de la monocouche cellulaireépithéliale 4,7,324,373, la coloration des cellules à fibre unique 85,173,174,379, et l’imagerie à lentilleentière 4,7,324,344,380,381 ont révélé des informations importantes sur les adhérences cellule-cellule, la biomécanique du cristallin et les réseaux cytosquelettiques changeants dans les fibres du cristallin.
Les cellules épithéliales et fibrostiques du cristallin ont des fonctions, des transcriptomes et des protéomes différents, et les études antérieures comparant les différents compartiments cellulaires étaient difficiles car il n’y a qu’une monocouche de cellules épithéliales recouvrant l’hémisphère antérieur, limitant la quantité d’ARN ou de protéine pouvant être collectée sans regrouper de nombreux échantillons. Les avancées dans les techniques d’extraction d’ARN, la PCR en temps réel et l’électrophorèse capillaire automatisée ont permis l’analyse génétique et protéique d’échantillons de cellules épithéliales du cristallin collectés sur une paire d’yeuxde souris 130,132,373,382 ou de régions microdisséquées de l’épithélium du cristallin, des fibres corticales et des fibresnucléaires 383. La transcriptomique unicellulaire permet un profilage approfondi des cellules du cristallin provenant d’embryons de poisson-zèbre et des embryons de larves et depoussins 384,385. Ces nouvelles méthodes ouvrent la porte à la révélation des mécanismes moléculaires qui maintiennent chaque compartiment cellulaire du cristallin pendant le vieillissement normal et la pathologie.
À mesure que le domaine progresse, il est important de se rappeler que le background génétique de la souris peut jouer un rôle important dans la pathologie du cristallin386 387 et la biomécanique355 356 357, et ainsi, les contrôles de la portée pour les expériences sont cruciaux pour l’analyse des données. Les modèles de souris mutants et KO fournissent un système pour étudier la cataracte liée à l’âge et une augmentation de la rigidité du cristallin 130 356 357 388 389 390 391 392 393 394 395 396 397, et en raison de la durée de vie relativement courte des souris, des études sur le vieillissement devraient être réalisées sur des animaux âgés plutôt que d’extrapoler des données à partir de jeunes animaux.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Conclusions
Les avancées technologiques en transcriptomique, protéomique, imagerie et tests biomécaniques ont amélioré notre compréhension de la biologie du cristallin, de la physiologie et de la pathologie. Notre connaissance croissante des différences entre différentes populations de cellules épithéliales et de cellules fibreuses sera importante pour comprendre les changements au cours du vieillissement ainsi que les mécanismes de longévité des protéines et des cellules. L’intérêt pour le développ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Ce travail a été financé par la subvention R01 EY032056 (à CC) du National Eye Institute. Les auteurs remercient Isaiah J. Innis et Gryffin M. Flowers pour leurs commentaires utiles.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Références
- Freddo, T. F., Chaum, E. Anatomy of the Eye and Orbit: The Clinical Essentials, 1e. , Lippincott Williams & Wilkins, a Wolters Kluwer business. (2018).
- Danysh, B. P., Duncan, M. K. The lens capsule. Exp Eye Res. 88 (2), 151-164 (2009).
- Zampighi, G. A., Eskandari, S., Kreman, M. Epithelial organization of the mammalian lens. Exp Eye Res. 71 (4), 415-435 (2000).
- Cheng, C., Gong, X. Diverse roles of Eph/ephrin signaling in the mouse lens. PLoS One. 6 (11), e28147(2011).
- Parreno, J., Cheng, C., Nowak, R. B., Fowler, V. M. The effects of mechanical strain on mouse eye lens capsule and cellular microstructure. Mol Biol Cell. 29 (16), 1963-1974 (2018).
- Lovicu, F. J., Robinson, M. L. Development of the Ocular Lens. , Cambridge University Press. (2011).
- Cheng, C., Ansari, M. M., Cooper, J. A., Gong, X. EphA2 and Src regulate equatorial cell morphogenesis during lens development. Development. 140 (20), 4237-4245 (2013).
- Bassnett, S., Missey, H., Vucemilo, I. Molecular architecture of the lens fiber cell basal membrane complex. J Cell Sci. 112 (Pt 13), 2155-2165 (1999).
- Bassnett, S., Sikic, H. The lens growth process. Prog Retin Eye Res. 60, 181-200 (2017).
- Sikic, H., Shi, Y., Lubura, S., Bassnett, S. A full lifespan model of vertebrate lens growth. R Soc Open Sci. 4 (1), 160695(2017).
- Kuszak, J. R. The development of lens sutures. Progress in Retinal and Eye Research. 14 (2), 567-591 (1995).
- Kuszak, J. R., Mazurkiewicz, M., Zoltoski, R. Computer modeling of secondary fiber development and growth: I. Nonprimate lenses. Mol Vis. 12, 251-270 (2006).
- Kuszak, J. R., Zoltoski, R. K., Tiedemann, C. E. Development of lens sutures. Int J Dev Biol. 48 (8-9), 889-902 (2004).
- Kuszak, J. R. The ultrastructure of epithelial and fiber cells in the crystalline lens. Int Rev Cytol. 163, 305-350 (1995).
- Kuszak, J. R., Macsai, M. S., Rae, J. L. Stereo scanning electron microscopy of the crystalline lens. Scan Electron Microsc. (Pt 3), 1415-1426 (1983).
- Cheng, C. Tissue, cellular, and molecular level determinants for eye lens stiffness and elasticity. Front Ophthalmol (Lausanne). 4, 1456474(2024).
- World Health Organization. World report on vision. , (2019).
- Michael, R., Bron, A. J. The ageing lens and cataract: a model of normal and pathological ageing. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1278-1292 (2011).
- Asbell, P. A., et al. Age-related cataract. Lancet. 365 (9459), 599-609 (2005).
- Hejtmancik, J. F. Oxidative Stress in Genetic Cataract Formation. Antioxidants (Basel). 13 (11), (2024).
- Shiels, A., Hejtmancik, J. F. Biology of Inherited Cataracts and Opportunities for Treatment. Annu Rev Vis Sci. 5, 123-149 (2019).
- Truscott, R. J. W., Friedrich, M. G. Molecular Processes Implicated in Human Age-related Nuclear Cataract. Invest Ophthalmol Vis Sci. 60 (15), 5007-5021 (2019).
- Fan, X., Monnier, V. M. Protein posttranslational modification (PTM) by glycation: Role in lens aging and age-related cataractogenesis. Exp Eye Res. 210, 108705(2021).
- Budnar, P., Tangirala, R., Bakthisaran, R., Rao, C. M. Protein Aggregation and Cataract: Role of Age-related Modifications and Mutations in alpha Crystallins. Biochemistry (Mosc). 87 (3), 225-241 (2022).
- Shiels, A., Hejtmancik, J. F. Inherited cataracts: Genetic mechanisms and pathways new and old. Exp Eye Res. 209, 108662(2021).
- Heys, K. R., Cram, S. L., Truscott, R. J. Massive increase in the stiffness of the human lens nucleus with age: the basis for presbyopia? Mol Vis. 10, 956-963 (2004).
- Glasser, A., Campbell, M. C. Biometric, optical and physical changes in the isolated human crystalline lens with age in relation to presbyopia. Vision Res. 39 (11), 1991-2015 (1999).
- Weeber, H. A., et al. Dynamic mechanical properties of human lenses. Exp Eye Res. 80 (3), 425-434 (2005).
- Piatigorsky, J. Lens differentiation in vertebrates. A review of cellular and molecular features. Differentiation. 19 (3), 134-153 (1981).
- Gunhaga, L. The lens: a classical model of embryonic induction providing new insights into cell determination in early development. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1193-1203 (2011).
- Chauhan, B. K., et al. Cdc42 and IRSp53 dependent contractile filopodia tether presumptive lens and retina to coordinate epithelial invagination. Development. 136 (21), 3657-3667 (2009).
- McAvoy, J. W. Cytoplasmic processes interconnect lens placode and optic vesicle during eye morphogenesis. Exp Eye Res. 31 (5), 527-534 (1980).
- Mann, I. The development of the human eye. , 3d, Grune & Stratton. (1964).
- Eiraku, M., et al. Self organizing optic cup morphogenesis in three dimensional culture. Nature. 472 (7341), 51-56 (2011).
- Lang, R. A., Herman, K., Reynolds, A. B., Hildebrand, J. D., Plageman, T. F. Jr p120 catenin dependent junctional recruitment of Shroom3 is required for apical constriction during lens pit morphogenesis. Development. 141 (16), 3177-3187 (2014).
- Plageman, T. F. Jr, et al. A Trio RhoA Shroom3 pathway is required for apical constriction and epithelial invagination. Development. 138 (23), 5177-5188 (2011).
- Borges, R. M., Lamers, M. L., Forti, F. L., Santos, M. F., Yan, C. Y. Rho signaling pathway and apical constriction in the early lens placode. Genesis. 49 (5), 368-379 (2011).
- Quintin, S., Gally, C., Labouesse, M. Epithelial morphogenesis in embryos: asymmetries, motors and brakes. Trends Genet. 24 (5), 221-230 (2008).
- Muccioli, M., Qaisi, D., Herman, K., Plageman, T. F. Jr Lens placode planar cell polarity is dependent on Cdc42 mediated junctional contraction inhibition. Dev Biol. 412 (1), 32-43 (2016).
- Houssin, N. S., Martin, J. B., Coppola, V., Yoon, S. O., Plageman, T. F. Jr Formation and contraction of multicellular actomyosin cables facilitate lens placode invagination. Dev Biol. 462 (1), 36-49 (2020).
- Glucksmann, A. Cell deaths in normal vertebrate ontogeny. Biol Rev Camb Philos Soc. 26 (1), 59-86 (1951).
- Ozeki, H., Ogura, Y., Hirabayashi, Y., Shimada, S. Suppression of lens stalk cell apoptosis by hyaluronic acid leads to faulty separation of the lens vesicle. Exp Eye Res. 72 (1), 63-70 (2001).
- Yan, Q., Liu, J. P., Li, D. W. Apoptosis in lens development and pathology. Differentiation. 74 (5), 195-211 (2006).
- Easter, S. S. Jr, Nicola, G. N. The development of vision in the zebrafish (Danio rerio). Dev Biol. 180 (2), 646-663 (1996).
- Mann, I. The development of the human eye. , The University Press. (1928).
- Darche, M., et al. Three dimensional characterization of developing and adult ocular vasculature in mice using in toto clearing. Communications Biology. 5 (1), 1135(2022).
- Wang, Z., Liu, C. H., Huang, S., Chen, J. Assessment and Characterization of Hyaloid Vessels in Mice. J Vis Exp. (147), e59222(2019).
- Hill, R. E., et al. Mouse small eye results from mutations in a paired like homeobox containing gene. Nature. 354 (6354), 522-525 (1991).
- Jordan, T., et al. The human PAX6 gene is mutated in two patients with aniridia. Nat Genet. 1 (5), 328-332 (1992).
- Hogan, B. L., et al. Small eyes (Sey): a homozygous lethal mutation on chromosome 2 which affects the differentiation of both lens and nasal placodes in the mouse. J Embryol Exp Morphol. 97, 95-110 (1986).
- Hanson, I. M., et al. Mutations at the PAX6 locus are found in heterogeneous anterior segment malformations including Peters' anomaly. Nat Genet. 6 (2), 168-173 (1994).
- Grindley, J. C., Davidson, D. R., Hill, R. E. The role of Pax 6 in eye and nasal development. Development. 121 (5), 1433-1442 (1995).
- Fujiwara, M., Uchida, T., Osumi Yamashita, N., Eto, K. Uchida rat (rSey): a new mutant rat with craniofacial abnormalities resembling those of the mouse Sey mutant. Differentiation. 57 (1), 31-38 (1994).
- Collinson, J. M., Hill, R. E., West, J. D. Different roles for Pax6 in the optic vesicle and facial epithelium mediate early morphogenesis of the murine eye. Development. 127 (5), 945-956 (2000).
- Quinn, J. C., West, J. D., Hill, R. E. Multiple functions for Pax6 in mouse eye and nasal development. Genes Dev. 10 (4), 435-446 (1996).
- Ashery Padan, R., Marquardt, T., Zhou, X., Gruss, P. Pax6 activity in the lens primordium is required for lens formation and for correct placement of a single retina in the eye. Genes Dev. 14 (21), 2701-2711 (2000).
- Kim, E. A., et al. Phosphorylation and transactivation of Pax6 by homeodomain interacting protein kinase 2. J Biol Chem. 281 (11), 7489-7497 (2006).
- Mikkola, I., Bruun, J. A., Bjorkoy, G., Holm, T., Johansen, T. Phosphorylation of the transactivation domain of Pax6 by extracellular signal regulated kinase and p38 mitogen activated protein kinase. J Biol Chem. 274 (21), 15115-15126 (1999).
- Yan, Q., et al. Sumoylation activates the transcriptional activity of Pax 6, an important transcription factor for eye and brain development. Proc Natl Acad Sci U S A. 107 (49), 21034-21039 (2010).
- Yan, Q., et al. Protein phosphatase 1 modulates the function of Pax 6, a transcription factor controlling brain and eye development. J Biol Chem. 282 (19), 13954-13965 (2007).
- Cvekl, A., Zhang, X. Signaling and Gene Regulatory Networks in Mammalian Lens Development. Trends Genet. 33 (10), 677-702 (2017).
- Zhang, X., Friedman, A., Heaney, S., Purcell, P., Maas, R. L. Meis homeoproteins directly regulate Pax6 during vertebrate lens morphogenesis. Genes Dev. 16 (16), 2097-2107 (2002).
- Dudley, A. T., Lyons, K. M., Robertson, E. J. A requirement for bone morphogenetic protein 7 during development of the mammalian kidney and eye. Genes Dev. 9 (22), 2795-2807 (1995).
- Wawersik, S., et al. BMP7 acts in murine lens placode development. Dev Biol. 207 (1), 176-188 (1999).
- Blixt, A., et al. A forkhead gene, FoxE3, is essential for lens epithelial proliferation and closure of the lens vesicle. Genes Dev. 14 (2), 245-254 (2000).
- Brownell, I., Dirksen, M., Jamrich, M. Forkhead Foxe3 maps to the dysgenetic lens locus and is critical in lens development and differentiation. Genesis. 27 (2), 81-93 (2000).
- Dimanlig, P. V., Faber, S. C., Auerbach, W., Makarenkova, H. P., Lang, R. A. The upstream ectoderm enhancer in Pax6 has an important role in lens induction. Development. 128 (22), 4415-4424 (2001).
- Faber, S. C., et al. Fgf receptor signaling plays a role in lens induction. Development. 128 (22), 4425-4438 (2001).
- Bavik, C., Ward, S. J., Chambon, P. Developmental abnormalities in cultured mouse embryos deprived of retinoic by inhibition of yolk sac retinol binding protein synthesis. Proc Natl Acad Sci U S A. 93 (7), 3110-3114 (1996).
- Enwright, J. F. 3rd, Grainger, R. M. Altered retinoid signaling in the heads of small eye mouse embryos. Dev Biol. 221 (1), 10-22 (2000).
- Lovicu, F. J., McAvoy, J. W. Growth factor regulation of lens development. Dev Biol. 280 (1), 1-14 (2005).
- Schulz, M. W., Chamberlain, C. G., de Iongh, R. U., McAvoy, J. W. Acidic and basic FGF in ocular media and lens: implications for lens polarity and growth patterns. Development. 118 (1), 117-126 (1993).
- Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential effects of aqueous and vitreous on fiber differentiation and extracellular matrix accumulation in lens epithelial explants. Invest Ophthalmol Vis Sci. 36 (7), 1459-1469 (1995).
- de Iongh, R. U., Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential expression of fibroblast growth factor receptors during rat lens morphogenesis and growth. Invest Ophthalmol Vis Sci. 38 (9), 1688-1699 (1997).
- de Iongh, R. U., Lovicu, F. J., Hanneken, A., Baird, A., McAvoy, J. W. FGF receptor 1 (flg) expression is correlated with fibre differentiation during rat lens morphogenesis and growth. Dev Dyn. 206 (4), 412-426 (1996).
- Lovicu, F. J., Overbeek, P. A. Overlapping effects of different members of the FGF family on lens fiber differentiation in transgenic mice. Development. 125 (17), 3365-3377 (1998).
- Robinson, M. L., et al. Extracellular FGF 1 acts as a lens differentiation factor in transgenic mice. Development. 121 (2), 505-514 (1995).
- Robinson, M. L., et al. Disregulation of ocular morphogenesis by lens specific expression of FGF 3/int 2 in transgenic mice. Dev Biol. 198 (1), 13-31 (1998).
- Faber, S. C., Robinson, M. L., Makarenkova, H. P., Lang, R. A. Bmp signaling is required for development of primary lens fiber cells. Development. 129 (15), 3727-3737 (2002).
- Belecky Adams, T., et al. Pax 6, Prox 1, and Chx10 homeobox gene expression correlates with phenotypic fate of retinal precursor cells. Invest Ophthalmol Vis Sci. 38 (7), 1293-1303 (1997).
- de Iongh, R. U., et al. Requirement for TGFbeta receptor signaling during terminal lens fiber differentiation. Development. 128 (20), 3995-4010 (2001).
- Bassnett, S. Lens organelle degradation. Exp Eye Res. 74 (1), 1-6 (2002).
- Bassnett, S. The fate of the Golgi apparatus and the endoplasmic reticulum during lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 36 (9), 1793-1803 (1995).
- Bassnett, S., Beebe, D. C. Coincident loss of mitochondria and nuclei during lens fiber cell differentiation. Dev Dyn. 194 (2), 85-93 (1992).
- Bassnett, S., Shi, Y., Vrensen, G. F. Biological glass: structural determinants of eye lens transparency. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1250-1264 (2011).
- Counis, M. F., et al. Analysis of nuclear degradation during lens cell differentiation. Cell Death Differ. 5 (4), 251-261 (1998).
- Vrensen, G. F., Graw, J., De Wolf, A. Nuclear breakdown during terminal differentiation of primary lens fibres in mice: a transmission electron microscopic study. Exp Eye Res. 52 (6), 647-659 (1991).
- Costello, M. J., et al. Autophagy and mitophagy participate in ocular lens organelle degradation. Exp Eye Res. 116, 141-150 (2013).
- De Maria, A., Bassnett, S. DNase IIbeta distribution and activity in the mouse lens. Invest Ophthalmol Vis Sci. 48 (12), 5638-5646 (2007).
- He, S., et al. Chromatin remodeling enzyme Brg1 is required for mouse lens fiber cell terminal differentiation and its denucleation. Epigenetics Chromatin. 3 (1), 21(2010).
- Cui, X., et al. HSF4 regulates DLAD expression and promotes lens de nucleation. Biochim Biophys Acta. 1832 (8), 1167-1172 (2013).
- Nakahara, M., et al. Degradation of nuclear DNA by DNase II like acid DNase in cortical fiber cells of mouse eye lens. FEBS J. 274 (12), 3055-3064 (2007).
- Nishimoto, S., et al. Nuclear cataract caused by a lack of DNA degradation in the mouse eye lens. Nature. 424 (6952), 1071-1074 (2003).
- Chaffee, B. R., et al. Nuclear removal during terminal lens fiber cell differentiation requires CDK1 activity: appropriating mitosis related nuclear disassembly. Development. 141 (17), 3388-3398 (2014).
- Lyu, L., et al. Unfolded protein response associated stabilization of p27(Cdkn1b) interferes with lens fiber cell denucleation, leading to cataract. FASEB J. 30 (3), 1087-1095 (2016).
- Gao, M., et al. HSF4 regulates lens fiber cell differentiation by activating p53 and its downstream regulators. Cell Death Dis. 8 (10), e3082(2017).
- Fujimoto, M., et al. HSF4 is required for normal cell growth and differentiation during mouse lens development. EMBO J. 23 (21), 4297-4306 (2004).
- Min, J. N., Zhang, Y., Moskophidis, D., Mivechi, N. F. Unique contribution of heat shock transcription factor 4 in ocular lens development and fiber cell differentiation. Genesis. 40 (4), 205-217 (2004).
- Morishita, H., et al. Organelle degradation in the lens by PLAAT phospholipases. Nature. 592 (7855), 634-638 (2021).
- Capetanaki, Y., Smith, S., Heath, J. P. Overexpression of the vimentin gene in transgenic mice inhibits normal lens cell differentiation. J Cell Biol. 109 (4 Pt 1), 1653-1664 (1989).
- Hamai, Y., Kuwabara, T. Early cytologic changes of Fraser cataract. An electron microscopic study. Invest Ophthalmol. 14 (7), 517-527 (1975).
- Muggleton Harris, A. L., Festing, M. F., Hall, M. A gene location for the inheritance of the cataract Fraser (CatFr) mouse congenital cataract. Genet Res. 49 (3), 235-238 (1987).
- Hamai, Y., Fukui, H. N., Kuwabara, T. Morphology of hereditary mouse cataract. Exp Eye Res. 18 (6), 537-546 (1974).
- Takehana, M. Hereditary cataract of the Nakano mouse. Exp Eye Res. 50 (6), 671-676 (1990).
- Uga, S., Kador, P. F., Kuwabara, T. Cytological study of Philly mouse cataract. Exp Eye Res. 30 (1), 79-92 (1980).
- Nakamura, M., Russell, P., Carper, D. A., Inana, G., Kinoshita, J. H. Alteration of a developmentally regulated, heat stable polypeptide in the lens of the Philly mouse. Implications for cataract formation. J Biol Chem. 263 (35), 19218-19221 (1988).
- Wang, K., et al. GammaD crystallin associated protein aggregation and lens fiber cell denucleation. Invest Ophthalmol Vis Sci. 48 (8), 3719-3728 (2007).
- Cavalheiro, G. R., et al. N myc regulates growth and fiber cell differentiation in lens development. Dev Biol. 429 (1), 105-117 (2017).
- Khillan, J. S., et al. Defects in lens fiber differentiation are linked to c mos overexpression in transgenic mice. Genes Dev. 1 (10), 1327-1335 (1987).
- Lachke, S. A. RNA binding proteins and post transcriptional regulation in lens biology and cataract: Mediating spatiotemporal expression of key factors that control the cell cycle, transcription, cytoskeleton and transparency. Exp Eye Res. 214, 108889(2022).
- Lachke, S. A., et al. Mutations in the RNA granule component TDRD7 cause cataract and glaucoma. Science. 331 (6024), 1571-1576 (2011).
- Dash, S., Dang, C. A., Beebe, D. C., Lachke, S. A. Deficiency of the RNA binding protein caprin2 causes lens defects and features of Peters anomaly. Dev Dyn. 244 (10), 1313-1327 (2015).
- Dash, S., et al. The master transcription factor SOX2, mutated in anophthalmia/microphthalmia, is post transcriptionally regulated by the conserved RNA binding protein RBM24 in vertebrate eye development. Hum Mol Genet. 29 (4), 591-604 (2020).
- Siddam, A. D., et al. The RNA binding protein Celf1 post transcriptionally regulates p27Kip1 and Dnase2b to control fiber cell nuclear degradation in lens development. PLoS Genet. 14 (3), e1007278(2018).
- Siddam, A. D., et al. High Throughput Transcriptomics of Celf1 Conditional Knockout Lens Identifies Downstream Networks Linked to Cataract Pathology. Cells. 12 (7), (2023).
- Aryal, S., et al. The cataract linked RNA binding protein Celf1 post transcriptionally controls the spatiotemporal expression of the key homeodomain transcription factors Pax6 and Prox1 in lens development. Hum Genet. 139 (12), 1541-1554 (2020).
- Takemoto, L., Sorensen, C. M. Protein protein interactions and lens transparency. Exp Eye Res. 87 (6), 496-501 (2008).
- Oyster, C. W. The human eye : structure and function. , Sinauer Associates, Inc.. (1999).
- Flaugh, S. L., Kosinski Collins, M. S., King, J. Contributions of hydrophobic domain interface interactions to the folding and stability of human gammaD crystallin. Protein Sci. 14 (3), 569-581 (2005).
- Papanikolopoulou, K., et al. Formation of amyloid fibrils in vitro by human gammaD crystallin and its isolated domains. Mol Vis. 14, 81-89 (2008).
- Graw, J. Genetics of crystallins: cataract and beyond. Exp Eye Res. 88 (2), 173-189 (2009).
- Kosinski Collins, M. S., King, J. In vitro unfolding, refolding, and polymerization of human gammaD crystallin, a protein involved in cataract formation. Protein Sci. 12 (3), 480-490 (2003).
- Horwitz, J., Bova, M. P., Ding, L. L., Haley, D. A., Stewart, P. L. Lens alpha crystallin: function and structure. Eye (Lond). 13 (Pt 3b), 403-408 (1999).
- Hejtmancik, J. F., et al. Progress in Molecular Biology and Translational Science. Hejtmancik, J. F., Nickerson, J. M. 134, Academic Press. 169-201 (2015).
- Bloemendal, H., et al. Ageing and vision: structure, stability and function of lens crystallins. Prog Biophys Mol Biol. 86 (3), 407-485 (2004).
- Benedek, G. B. Theory of transparency of the eye. Appl Opt. 10 (3), 459-473 (1971).
- Delaye, M., Tardieu, A. Short range order of crystallin proteins accounts for eye lens transparency. Nature. 302 (5907), 415-417 (1983).
- Bassnett, S., Costello, M. J. The cause and consequence of fiber cell compaction in the vertebrate lens. Exp Eye Res. 156, 50-57 (2017).
- Pierscionek, B. K., Regini, J. W. The gradient index lens of the eye: an opto biological synchrony. Prog Retin Eye Res. 31 (4), 332-349 (2012).
- Cheng, C., et al. Age-related changes in eye lens biomechanics, morphology, refractive index and transparency. Aging (Albany NY). 11 (24), 12497-12531 (2019).
- Cheng, C., et al. EphA2 Affects Development of the Eye Lens Nucleus and the Gradient of Refractive Index. Invest Ophthalmol Vis Sci. 63 (1), 2(2022).
- Flowers, G. M., et al. Eph ephrin signaling affects lens growth and shape, nucleus size, and gradient refractive index in adult mice. Frontiers in Ophthalmology. 5, (2025).
- Kozlowski, T. M., Kroger, R. H. H. Constant lens fiber cell thickness in fish suggests crystallin transport to denucleated cells. Vision Res. 162, 29-34 (2019).
- Shestopalov, V. I., Bassnett, S. Expression of autofluorescent proteins reveals a novel protein permeable pathway between cells in the lens core. J Cell Sci. 113 (Pt 11), 1913-1921 (2000).
- Shestopalov, V. I., Bassnett, S. Development of a macromolecular diffusion pathway in the lens. J Cell Sci. 116 (Pt 20), 4191-4199 (2003).
- Dunia, I., et al. Structural and immunocytochemical alterations in eye lens fiber cells from Cx46 and Cx50 knockout mice. Eur J Cell Biol. 85 (8), 729-752 (2006).
- Blankenship, T., Bradshaw, L., Shibata, B., Fitzgerald, P. Structural specializations emerging late in mouse lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 48 (7), 3269-3276 (2007).
- Lo, W. K., Reese, T. S. Multiple structural types of gap junctions in mouse lens. J Cell Sci. 106 (Pt 1), 227-235 (1993).
- Baldo, G. J., et al. Gap junctional coupling in lenses from alpha(8) connexin knockout mice. J Gen Physiol. 118 (5), 447-456 (2001).
- Baldo, G. J., Mathias, R. T. Spatial variations in membrane properties in the intact rat lens. Biophys J. 63 (2), 518-529 (1992).
- Duncan, G., Patmore, L., Pynsent, P. B. Impedance of the amphibian lens. J Physiol. 312, 17-27 (1981).
- Martinez Wittinghan, F. J., et al. Lens gap junctional coupling is modulated by connexin identity and the locus of gene expression. Invest Ophthalmol Vis Sci. 45 (10), 3629-3637 (2004).
- Cheng, C., et al. Gap junction communication influences intercellular protein distribution in the lens. Exp Eye Res. 86 (6), 966-974 (2008).
- Bloemendal, H. The vertebrate eye lens. Science. 197 (4299), 127-138 (1977).
- van der Ouderaa, F. J., de Jong, W. W., Bloemendal, H. The amino acid sequence of the alphaA2 chain of bovine alpha crystallin. Eur J Biochem. 39 (1), 207-222 (1973).
- Bloemendal, H., de Jong, W. W. Lens proteins and their genes. Prog Nucleic Acid Res Mol Biol. 41, 259-281 (1991).
- Kato, K., et al. Immunoreactive alpha A crystallin in rat non lenticular tissues detected with a sensitive immunoassay method. Biochim Biophys Acta. 1080 (2), 173-180 (1991).
- Srinivasan, A. N., Nagineni, C. N., Bhat, S. P. alpha A crystallin is expressed in non ocular tissues. J Biol Chem. 267 (32), 23337-23341 (1992).
- Nath, M., Fort, P. E. alphaA Crystallin Mediated Neuroprotection in the Retinal Neurons Is Independent of Protein Kinase B. Front Neurosci. 16, 912757(2022).
- Skeie, J. M., Mahajan, V. B. Proteomic interactions in the mouse vitreous retina complex. PLoS One. 8 (11), e82140(2013).
- Ruebsam, A., et al. A specific phosphorylation regulates the protective role of alphaA crystallin in diabetes. JCI Insight. 3 (4), (2018).
- Vermorken, A. J., Hilderink, J. M., van de Ven, W. J., Bloemendal, H. Lens differentiation. Crystallin synthesis in isolated epithelia from calf lenses. J Cell Biol. 76 (1), 175-183 (1978).
- Boyle, D. L., Takemoto, L., Brady, J. P., Wawrousek, E. F. Morphological characterization of the Alpha A and Alpha B crystallin double knockout mouse lens. BMC Ophthalmol. 3, 3(2003).
- Horwitz, J. Alpha crystallin. Exp Eye Res. 76 (2), 145-153 (2003).
- Raju, M., Santhoshkumar, P., Krishna Sharma, K. Alpha crystallin derived peptides as therapeutic chaperones. Biochim Biophys Acta. 1860 (1 Pt B), 246-251 (2016).
- Cheng, C., et al. Altered chaperone like activity of alpha crystallins promotes cataractogenesis. J Biol Chem. 285 (52), 41187-41193 (2010).
- Aravind, P., et al. The betagamma crystallin superfamily contains a universal motif for binding calcium. Biochemistry. 48 (51), 12180-12190 (2009).
- Srivastava, S. S., Mishra, A., Krishnan, B., Sharma, Y. Ca2+ binding motif of betagamma crystallins. J Biol Chem. 289 (16), 10958-10966 (2014).
- Vanmarle, J., Jonges, R., Vrensen, G. F., Dewolf, A. Calcium and its localization in human lens fibres: an electron tomographic study. Exp Eye Res. 65 (1), 83-88 (1997).
- Jobby, M. K., Sharma, Y. Calcium binding to lens betaB2 and betaA3 crystallins suggests that all beta crystallins are calcium binding proteins. FEBS J. 274 (16), 4135-4147 (2007).
- Bergman, M. R., Deravi, L. F. Manipulating polydispersity of lens beta crystallins using divalent cations demonstrates evidence of calcium regulation. Proc Natl Acad Sci U S A. 119 (48), e2212051119(2022).
- Cheng, C., Nowak, R. B., Fowler, V. M. The lens actin filament cytoskeleton: Diverse structures for complex functions. Exp Eye Res. 156, 58-71 (2017).
- Quinlan, R. A., Clark, J. I. Insights into the biochemical and biophysical mechanisms mediating the longevity of the transparent optics of the eye lens. J Biol Chem. 298 (11), 102537(2022).
- Song, S., et al. Functions of the intermediate filament cytoskeleton in the eye lens. J Clin Invest. 119 (7), 1837-1848 (2009).
- FitzGerald, P. G. Lens intermediate filaments. Exp Eye Res. 88 (2), 165-172 (2009).
- Logan, C. M., Menko, A. S. Microtubules: Evolving roles and critical cellular interactions. Exp Biol Med (Maywood). 244 (15), 1240-1254 (2019).
- More, M. I., Kirsch, F. P., Rathjen, F. G. Targeted ablation of NrCAM or ankyrin B results in disorganized lens fibers leading to cataract formation. J Cell Biol. 154 (1), 187-196 (2001).
- Lin, Q., et al. Genetic variations and polymorphisms in the ezrin gene are associated with age-related cataract. Mol Vis. 19, 1572-1579 (2013).
- Hao, J., Kunishima, S., Guo, X., Hu, R., Gao, W. A large family with MYH9 disorder caused by E1841K mutation suffering from serious kidney and hearing impairment and cataracts. Ann Hematol. 91 (7), 1147-1148 (2012).
- De Rocco, D., et al. MYH9 related disease: five novel mutations expanding the spectrum of causative mutations and confirming genotype/phenotype correlations. Eur J Med Genet. 56 (1), 7-12 (2013).
- Economou, M., et al. MYH9 related disorders: report on a patient of Greek origin presenting with macroscopic hematuria and presenile cataract, caused by an R1165C mutation. J Pediatr Hematol Oncol. 34 (6), 412-415 (2012).
- Saposnik, B., et al. Mutation spectrum and genotype phenotype correlations in a large French cohort of MYH9 Related Disorders. Mol Genet Genomic Med. 2 (4), 297-312 (2014).
- Cheng, C., et al. Tropomyosin 3.5 protects the F-actin networks required for tissue biomechanical properties. J Cell Sci. 131 (23), (2018).
- Cheng, C., et al. Tropomodulin 1 Regulation oF-actin Is Required for the Formation of Large Paddle Protrusions Between Mature Lens Fiber Cells. Invest Ophthalmol Vis Sci. 57 (10), 4084-4099 (2016).
- Maddala, R., Walters, M., Brophy, P. J., Bennett, V., Rao, P. V. Ankyrin B directs membrane tethering of periaxin and is required for maintenance of lens fiber cell hexagonal shape and mechanics. Am J Physiol Cell Physiol. 310 (2), C115-C126 (2016).
- Won, G. J., Fudge, D. S., Choh, V. The effects of actomyosin disruptors on the mechanical integrity of the avian crystalline lens. Mol Vis. 21, 98-109 (2015).
- Kasper, M., Moll, R., Stosiek, P., Karsten, U. Patterns of cytokeratin and vimentin expression in the human eye. Histochemistry. 89 (4), 369-377 (1988).
- Kasper, M., Viebahn, C. Cytokeratin expression and early lens development. Anat Embryol (Berl). 186 (3), 285-290 (1992).
- Ellis, M., Alousi, S., Lawniczak, J., Maisel, H., Welsh, M. Studies on lens vimentin. Exp Eye Res. 38 (2), 195-202 (1984).
- Ramaekers, F. C., Dunia, I., Dodemont, H. J., Benedetti, E. L., Bloemendal, H. Lenticular intermediate sized filaments: biosynthesis and interaction with plasma membrane. Proc Natl Acad Sci U S A. 79 (10), 3208-3212 (1982).
- Ramaekers, F. C., et al. Identification of the cytoskeletal proteins in lens forming cells, a special epitheloid cell type. Exp Cell Res. 127 (2), 309-327 (1980).
- FitzGerald, P. G. Immunochemical characterization of a Mr 115 lens fiber cell specific extrinsic membrane protein. Curr Eye Res. 7 (12), 1243-1253 (1988).
- Ireland, M. E., et al. Up regulation of novel intermediate filament proteins in primary fiber cells: an indicator of all vertebrate lens fiber differentiation? Anat Rec. 258 (1), 25-33 (2000).
- Quinlan, R. A., Stewart, M. Molecular interactions in intermediate filaments. Bioessays. 13 (11), 597-600 (1991).
- Goulielmos, G., et al. Filensin and phakinin form a novel type of beaded intermediate filaments and coassemble de novo in cultured cells. J Cell Biol. 132 (4), 643-655 (1996).
- Georgatos, S. D., Gounari, F., Goulielmos, G., Aebi, U. To bead or not to bead? Lens specific intermediate filaments revisited. J Cell Sci. 110 (Pt 21), 2629-2634 (1997).
- Ireland, M., Maisel, H. A cytoskeletal protein unique to lens fiber cell differentiation. Exp Eye Res. 38 (6), 637-645 (1984).
- Bloemendal, H., et al. Interaction of crystallins with the cytoskeletal plasma membrane complex of the bovine lens. Ciba Found Symp. 106, 177-190 (1984).
- Carter, J. M., Hutcheson, A. M., Quinlan, R. A. In vitro studies on the assembly properties of the lens proteins CP49, CP115: coassembly with alpha crystallin but not with vimentin. Exp Eye Res. 60 (2), 181-192 (1995).
- Chaves, J. M., Gupta, R., Srivastava, K., Srivastava, O. Human alpha A crystallin missing N terminal domain poorly complexes with filensin and phakinin. Biochem Biophys Res Commun. 494 (1-2), 402-408 (2017).
- FitzGerald, P. G., Graham, D. Ultrastructural localization of alpha A crystallin to the bovine lens fiber cell cytoskeleton. Curr Eye Res. 10 (5), 417-436 (1991).
- Sandilands, A., et al. Bfsp2 mutation found in mouse 129 strains causes the loss of CP49' and induces vimentin dependent changes in the lens fibre cell cytoskeleton. Exp Eye Res. 78 (4), 875-889 (2004).
- Sandilands, A., et al. Knockout of the intermediate filament protein CP49 destabilises the lens fibre cell cytoskeleton and decreases lens optical quality, but does not induce cataract. Exp Eye Res. 76 (3), 385-391 (2003).
- Alizadeh, A., et al. Targeted deletion of the lens fiber cell specific intermediate filament protein filensin. Invest Ophthalmol Vis Sci. 44 (12), 5252-5258 (2003).
- Alizadeh, A., et al. Targeted genomic deletion of the lens specific intermediate filament protein CP49. Invest Ophthalmol Vis Sci. 43 (12), 3722-3727 (2002).
- Perng, M. D., Zhang, Q., Quinlan, R. A. Insights into the beaded filament of the eye lens. Exp Cell Res. 313 (10), 2180-2188 (2007).
- Muller, M., et al. Dominant cataract formation in association with a vimentin assembly disrupting mutation. Hum Mol Genet. 18 (6), 1052-1057 (2009).
- Bornheim, R., et al. A dominant vimentin mutant upregulates Hsp70 and the activity of the ubiquitin proteasome system, and causes posterior cataracts in transgenic mice. J Cell Sci. 121 (Pt 22), 3737-3746 (2008).
- Jakobs, P. M., et al. Autosomal dominant congenital cataract associated with a deletion mutation in the human beaded filament protein gene BFSP2. Am J Hum Genet. 66 (4), 1432-1436 (2000).
- Conley, Y. P., et al. A juvenile onset, progressive cataract locus on chromosome 3q21 q22 is associated with a missense mutation in the beaded filament structural protein 2. Am J Hum Genet. 66 (4), 1426-1431 (2000).
- Zhang, Q., et al. Clinical description and genome wide linkage study of Y sutural cataract and myopia in a Chinese family. Mol Vis. 10, 890-900 (2004).
- Cui, X., et al. The E233del mutation in BFSP2 causes a progressive autosomal dominant congenital cataract in a Chinese family. Mol Vis. 13, 2023-2029 (2007).
- Ma, X., et al. A new mutation in BFSP2 (G1091A) causes autosomal dominant congenital lamellar cataracts. Mol Vis. 14, 1906-1911 (2008).
- Ramachandran, R. D., Perumalsamy, V., Hejtmancik, J. F. Autosomal recessive juvenile onset cataract associated with mutation in BFSP1. Hum Genet. 121 (3-4), 475-482 (2007).
- Logan, C. M., Bowen, C. J., Menko, A. S. Functional role for stable microtubules in lens fiber cell elongation. Exp Cell Res. 362 (2), 477-488 (2018).
- Basu, S., Rajakaruna, S., Reyes, B., Van Bockstaele, E., Menko, A. S. Suppression of MAPK/JNK MTORC1 signaling leads to premature loss of organelles and nuclei by autophagy during terminal differentiation of lens fiber cells. Autophagy. 10 (7), 1193-1211 (2014).
- Pontoriero, G. F., et al. Co operative roles for E-cadherin and N-cadherin during lens vesicle separation and lens epithelial cell survival. Dev Biol. 326 (2), 403-417 (2009).
- Leonard, M., Zhang, L., Bleaken, B. M., Menko, A. S. Distinct roles for N-cadherin linked c Src and fyn kinases in lens development. Dev Dyn. 242 (5), 469-484 (2013).
- Leonard, M., et al. Modulation of N-cadherin junctions and their role as epicenters of differentiation specific actin regulation in the developing lens. Dev Biol. 349 (2), 363-377 (2011).
- Maddala, R., Nagendran, T., Lang, R. A., Morozov, A., Rao, P. V. Rap1 GTPase is required for mouse lens epithelial maintenance and morphogenesis. Dev Biol. 406 (1), 74-91 (2015).
- Wigle, J. T., Chowdhury, K., Gruss, P., Oliver, G. Prox1 function is crucial for mouse lens fibre elongation. Nat Genet. 21 (3), 318-322 (1999).
- Xu, L., Overbeek, P. A., Reneker, L. W. Systematic analysis of E , N and P cadherin expression in mouse eye development. Exp Eye Res. 74 (6), 753-760 (2002).
- Logan, C. M., et al. N-cadherin regulates signaling mechanisms required for lens fiber cell elongation and lens morphogenesis. Dev Biol. 428 (1), 118-134 (2017).
- Cooper, M. A., et al. Loss of ephrin A5 function disrupts lens fiber cell packing and leads to cataract. Proc Natl Acad Sci U S A. 105 (43), 16620-16625 (2008).
- Son, A. I., et al. Further analysis of the lens of ephrin A5 / mice: development of postnatal defects. Mol Vis. 19, 254-266 (2013).
- Biswas, S., Son, A. I., Yu, Q., Zhou, R., Lo, W. K. Breakdown of interlocking domains may contribute to formation of membranous globules and lens opacity in ephrin A5( / ) mice. Exp Eye Res. 145, 130-139 (2016).
- Maher, G. J., Black, G. C., Manson, F. D. Focus on molecules: lens intrinsic membrane protein (LIM2/MP20). Exp Eye Res. 103, 115-116 (2012).
- Walker, J., Menko, A. S. Integrins in lens development and disease. Exp Eye Res. 88 (2), 216-225 (2009).
- Shi, Y., et al. Further analysis of the lens phenotype in Lim2 deficient mice. Invest Ophthalmol Vis Sci. 52 (10), 7332-7339 (2011).
- Mulders, J. W., et al. MP17, a fiber specific intrinsic membrane protein from mammalian eye lens. Curr Eye Res. 7 (2), 207-219 (1988).
- Voorter, C. E., et al. Distribution of MP17 in isolated lens fibre membranes. Curr Eye Res. 8 (7), 697-706 (1989).
- Steele, E. C. Jr, et al. Identification of a mutation in the MP19 gene, Lim2, in the cataractous mouse mutant To3. Mol Vis. 3, 5(1997).
- Irum, B., et al. Mutation in LIM2 Is Responsible for Autosomal Recessive Congenital Cataracts. PLoS One. 11 (11), e0162620(2016).
- Wang, X., et al. Elongated axial length and myopia related fundus changes associated with the Arg130Cys mutation in the LIM2 gene in four Chinese families with congenital cataracts. Ann Transl Med. 9 (3), 235(2021).
- Berry, V., et al. A recurrent variant in LIM2 causes an isolated congenital sutural/lamellar cataract in a Japanese family. Ophthalmic Genet. 43 (5), 622-626 (2022).
- Pei, R., et al. A novel mutation of LIM2 causes autosomal dominant membranous cataract in a Chinese family. Int J Ophthalmol. 13 (10), 1512-1520 (2020).
- Ponnam, S. P., Ramesha, K., Tejwani, S., Matalia, J., Kannabiran, C. A missense mutation in LIM2 causes autosomal recessive congenital cataract. Mol Vis. 14, 1204-1208 (2008).
- Pras, E., et al. A missense mutation in the LIM2 gene is associated with autosomal recessive presenile cataract in an inbred Iraqi Jewish family. Am J Hum Genet. 70 (5), 1363-1367 (2002).
- Goyal, S., Singh, R., Singh, J. R., Vanita, V. Novel and known variants in GJA3 and LIM2 in congenital cataract families from North India. BMC Genomics. 25 (1), 31(2024).
- Puk, O., Ahmad, N., Wagner, S., de Angelis, M. H., Graw, J. Microphakia and congenital cataract formation in a novel Lim2(C51R) mutant mouse. Mol Vis. 17, 1164-1171 (2011).
- Dahm, R., Bramke, S., Dawczynski, J., Nagaraj, R. H., Kasper, M. Developmental aspects of galectin 3 expression in the lens. Histochem Cell Biol. 119 (3), 219-226 (2003).
- Gonen, T., Donaldson, P., Kistler, J. Galectin 3 is associated with the plasma membrane of lens fiber cells. Invest Ophthalmol Vis Sci. 41 (1), 199-203 (2000).
- Gonen, T., Grey, A. C., Jacobs, M. D., Donaldson, P. J., Kistler, J. MP20, the second most abundant lens membrane protein and member of the tetraspanin superfamily, joins the list of ligands of galectin 3. BMC Cell Biol. 2, 17(2001).
- Barton, K. A., Hsu, C. D., Petrash, J. M. Interactions between small heat shock protein alpha crystallin and galectin related interfiber protein (GRIFIN) in the ocular lens. Biochemistry. 48 (18), 3956-3966 (2009).
- Garcia Caballero, G., et al. Chicken lens development: complete signature of expression of galectins during embryogenesis and evidence for their complex formation with alpha , beta , delta , and tau crystallins, N CAM, and N-cadherin obtained by affinity chromatography. Cell Tissue Res. 379 (1), 13-35 (2020).
- Garcia Caballero, G., et al. Chicken GRIFIN: binding partners, developmental course of localization and activation of its lens specific gene expression by L Maf/Pax6. Cell Tissue Res. 375 (3), 665-683 (2019).
- Ogden, A. T., et al. GRIFIN, a novel lens specific protein related to the galectin family. J Biol Chem. 273 (44), 28889-28896 (1998).
- Menko, A. S., Philip, N. J. Beta 1 integrins in epithelial tissues: a unique distribution in the lens. Exp Cell Res. 218 (2), 516-521 (1995).
- Menko, S., Philp, N., Veneziale, B., Walker, J. Integrins and development: how might these receptors regulate differentiation of the lens. Ann N Y Acad Sci. 842, 36-41 (1998).
- Walker, J. L., Menko, A. S. alpha6 Integrin is regulated with lens cell differentiation by linkage to the cytoskeleton and isoform switching. Dev Biol. 210 (2), 497-511 (1999).
- Walker, J. L., Zhang, L., Zhou, J., Woolkalis, M. J., Menko, A. S. Role for alpha 6 integrin during lens development: Evidence for signaling through IGF 1R and ERK. Dev Dyn. 223 (2), 273-284 (2002).
- Wederell, E. D., et al. Laminin binding integrins in rat lens morphogenesis and their regulation during fibre differentiation. Exp Eye Res. 81 (3), 326-339 (2005).
- Barbour, W., et al. Expression patterns of beta1 related alpha integrin subunits in murine lens during embryonic development and wound healing. Curr Eye Res. 29 (1), 1-10 (2004).
- Wu, J. E., Santoro, S. A. Complex patterns of expression suggest extensive roles for the alpha 2 beta 1 integrin in murine development. Dev Dyn. 199 (4), 292-314 (1994).
- Duncan, M. K., Kozmik, Z., Cveklova, K., Piatigorsky, J., Cvekl, A. Overexpression of PAX6(5a) in lens fiber cells results in cataract and upregulation of (alpha)5(beta)1 integrin expression. J Cell Sci. 113 (Pt 18), 3173-3185 (2000).
- Bassuk, J. A., et al. Disruption of the Sparc locus in mice alters the differentiation of lenticular epithelial cells and leads to cataract formation. Exp Eye Res. 68 (3), 321-331 (1999).
- Gilmour, D. T., et al. Mice deficient for the secreted glycoprotein SPARC/osteonectin/BM40 develop normally but show severe age onset cataract formation and disruption of the lens. EMBO J. 17 (7), 1860-1870 (1998).
- Kantorow, M., Horwitz, J., Carper, D. Up regulation of osteonectin/SPARC in age-related cataractous human lens epithelia. Mol Vis. 4, 17(1998).
- Emerson, R. O., Sage, E. H., Ghosh, J. G., Clark, J. I. Chaperone like activity revealed in the matricellular protein SPARC. J Cell Biochem. 98 (4), 701-705 (2006).
- Weaver, M. S., Sage, E. H., Yan, Q. Absence of SPARC in lens epithelial cells results in altered adhesion and extracellular matrix production in vitro. J Cell Biochem. 97 (2), 423-432 (2006).
- Weaver, M. S., Workman, G., Sage, E. H. The copper binding domain of SPARC mediates cell survival in vitro via interaction with integrin beta1 and activation of integrin linked kinase. J Biol Chem. 283 (33), 22826-22837 (2008).
- Yan, Q., Perdue, N., Blake, D., Sage, E. H. Absence of SPARC in murine lens epithelium leads to increased deposition of laminin 1 in lens capsule. Invest Ophthalmol Vis Sci. 46 (12), 4652-4660 (2005).
- Greiling, T. M., Stone, B., Clark, J. I. Absence of SPARC leads to impaired lens circulation. Exp Eye Res. 89 (3), 416-425 (2009).
- Giannone, A. A., Li, L., Sellitto, C., White, T. W. Physiological Mechanisms Regulating Lens Transport. Front Physiol. 12, 818649(2021).
- Donaldson, P. J., Chen, Y., Petrova, R. S., Grey, A. C., Lim, J. C. Regulation of lens water content: Effects on the physiological optics of the lens. Prog Retin Eye Res. 95, 101152(2023).
- Donaldson, P. J., Grey, A. C., Maceo Heilman, B., Lim, J. C., Vaghefi, E. The physiological optics of the lens. Prog Retin Eye Res. 56, e1-e24 (2017).
- Mathias, R. T., Kistler, J., Donaldson, P. The lens circulation. J Membr Biol. 216 (1), 1-16 (2007).
- Robinson, K. R., Patterson, J. W. Localization of steady currents in the lens. Curr Eye Res. 2 (12), 843-847 (1982).
- Mathias, R. T., Rae, J. L., Baldo, G. J. Physiological properties of the normal lens. Physiol Rev. 77 (1), 21-50 (1997).
- Gao, J., Sun, X., Yatsula, V., Wymore, R. S., Mathias, R. T. Isoform specific function and distribution of Na/K pumps in the frog lens epithelium. J Membr Biol. 178 (2), 89-101 (2000).
- Alvarez, L. J., Candia, O. A., Grillone, L. R. Na+ K+ ATPase distribution in frog and bovine lenses. Curr Eye Res. 4 (2), 143-152 (1985).
- Delamere, N. A., Dean, W. L. Distribution of lens sodium potassium adenosine triphosphatase. Invest Ophthalmol Vis Sci. 34 (7), 2159-2163 (1993).
- Paterson, C. A. Distribution and movement of ions in the ocular lens. Doc Ophthalmol. 31 (1), 1-28 (1972).
- Donaldson, P. J., Petrova, R. S., Nair, N., Chen, Y., Schey, K. L. Regulation of water flow in the ocular lens: new roles for aquaporins. J Physiol. 602 (13), 3041-3056 (2024).
- Goodenough, D. A. The crystalline lens. A system networked by gap junctional intercellular communication. Semin Cell Biol. 3 (1), 49-58 (1992).
- Mathias, R. T., White, T. W., Gong, X. Lens gap junctions in growth, differentiation, and homeostasis. Physiol Rev. 90 (1), 179-206 (2010).
- Beyer, E. C., Kistler, J., Paul, D. L., Goodenough, D. A. Antisera directed against connexin43 peptides react with a 43 kD protein localized to gap junctions in myocardium and other tissues. J Cell Biol. 108 (2), 595-605 (1989).
- Gao, Y., Spray, D. C. Structural changes in lenses of mice lacking the gap junction protein connexin43. Invest Ophthalmol Vis Sci. 39 (7), 1198-1209 (1998).
- Rong, P., et al. Disruption of Gja8 (alpha8 connexin) in mice leads to microphthalmia associated with retardation of lens growth and lens fiber maturation. Development. 129 (1), 167-174 (2002).
- Puk, O., et al. Mutation in a novel connexin like gene (Gjf1) in the mouse affects early lens development and causes a variable small eye phenotype. Invest Ophthalmol Vis Sci. 49 (4), 1525-1532 (2008).
- Sonntag, S., et al. Mouse lens connexin23 (Gje1) does not form functional gap junction channels but causes enhanced ATP release from HeLa cells. Eur J Cell Biol. 88 (2), 65-77 (2009).
- Bassnett, S., Wilmarth, P. A., David, L. L. The membrane proteome of the mouse lens fiber cell. Mol Vis. 15, 2448-2463 (2009).
- Wang, Z., Han, J., David, L. L., Schey, K. L. Proteomics and phosphoproteomics analysis of human lens fiber cell membranes. Invest Ophthalmol Vis Sci. 54 (2), 1135-1143 (2013).
- Berthoud, V. M., et al. Connexin23 deletion does not affect lens transparency. Exp Eye Res. 146, 283-288 (2016).
- Fleishman, S. J., Unger, V. M., Yeager, M., Ben Tal, N. A Calpha model for the transmembrane alpha helices of gap junction intercellular channels. Mol Cell. 15 (6), 879-888 (2004).
- Unger, V. M., Kumar, N. M., Gilula, N. B., Yeager, M. Three dimensional structure of a recombinant gap junction membrane channel. Science. 283 (5405), 1176-1180 (1999).
- Hu, Z., Riquelme, M. A., Gu, S., Jiang, J. X. Regulation of Connexin Gap Junctions and Hemichannels by Calcium and Calcium Binding Protein Calmodulin. Int J Mol Sci. 21 (21), (2020).
- Quan, Y., Du, Y., Tong, Y., Gu, S., Jiang, J. X. Connexin Gap Junctions and Hemichannels in Modulating Lens Redox Homeostasis and Oxidative Stress in Cataractogenesis. Antioxidants (Basel). 10 (9), (2021).
- Ebihara, L., Korzyukov, Y., Kothari, S., Tong, J. J. Cx46 hemichannels contribute to the sodium leak conductance in lens fiber cells. Am J Physiol Cell Physiol. 306 (5), C506-C513 (2014).
- Liu, J., et al. Mechanosensitive collaboration between integrins and connexins allows nutrient and antioxidant transport into the lens. J Cell Biol. 219 (12), (2020).
- Tong, Y., et al. Mechano activated connexin hemichannels and glutathione transport protect lens fiber cells against oxidative insults. Redox Biol. 73, 103216(2024).
- Wang, G., Quan, Y., Ma, B., Gu, S., Jiang, J. X. Mechano activated connexin hemichannels mediate intercellular glutathione transport and support lens redox homeostasis. Redox Biol. 85, 103767(2025).
- Shi, W., Riquelme, M. A., Gu, S., Jiang, J. X. Connexin hemichannels mediate glutathione transport and protect lens fiber cells from oxidative stress. J Cell Sci. 131 (6), (2018).
- Ramachandran, S., Xie, L. H., John, S. A., Subramaniam, S., Lal, R. A novel role for connexin hemichannel in oxidative stress and smoking induced cell injury. PLoS One. 2 (8), e712(2007).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Connexin hemichannels regulate redox potential via metabolite exchange and protect lens against cellular oxidative damage. Redox Biol. 46, 102102(2021).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Data on Connexin 43 hemichannels regulation of cellular redox in lens. Data Brief. 39, 107572(2021).
- Ren, Q., et al. Cataract causing mutation of human connexin 46 impairs gap junction, but increases hemichannel function and cell death. PLoS One. 8 (9), e74732(2013).
- Siller Jackson, A. J., et al. Adaptation of connexin 43 hemichannel prostaglandin release to mechanical loading. J Biol Chem. 283 (39), 26374-26382 (2008).
- Cheng, C., et al. Lens ion homeostasis relies on the assembly and/or stability of large connexin 46 gap junction plaques on the broad sides of differentiating fiber cells. Am J Physiol Cell Physiol. 308 (10), C835-C847 (2015).
- Gong, X., et al. Disruption of alpha3 connexin gene leads to proteolysis and cataractogenesis in mice. Cell. 91 (6), 833-843 (1997).
- Gong, X., Baldo, G. J., Kumar, N. M., Gilula, N. B., Mathias, R. T. Gap junctional coupling in lenses lacking alpha3 connexin. Proc Natl Acad Sci U S A. 95 (26), 15303-15308 (1998).
- White, T. W., Goodenough, D. A., Paul, D. L. Targeted ablation of connexin50 in mice results in microphthalmia and zonular pulverulent cataracts. J Cell Biol. 143 (3), 815-825 (1998).
- Sellitto, C., Li, L., White, T. W. Connexin50 is essential for normal postnatal lens cell proliferation. Invest Ophthalmol Vis Sci. 45 (9), 3196-3202 (2004).
- White, T. W. Unique and redundant connexin contributions to lens development. Science. 295 (5553), 319-320 (2002).
- Li, L., et al. Connexin mediated cataract prevention in mice. PLoS One. 5 (9), (2010).
- Schey, K. L., et al. Lens Aquaporins in Health and Disease: Location is Everything! Front Physiol. 13, 882550(2022).
- Schey, K. L., Petrova, R. S., Gletten, R. B., Donaldson, P. J. The Role of Aquaporins in Ocular Lens Homeostasis. Int J Mol Sci. 18 (12), (2017).
- Gao, J., et al. Lens intracellular hydrostatic pressure is generated by the circulation of sodium and modulated by gap junction coupling. J Gen Physiol. 137 (6), 507-520 (2011).
- Gao, J., Sun, X., White, T. W., Delamere, N. A., Mathias, R. T. Feedback Regulation of Intracellular Hydrostatic Pressure in Surface Cells of the Lens. Biophys J. 109 (9), 1830-1839 (2015).
- Shahidullah, M., et al. TRPV1 activation stimulates NKCC1 and increases hydrostatic pressure in the mouse lens. Am J Physiol Cell Physiol. 318 (5), C969-C980 (2020).
- Petrova, R. S., et al. Modulation of Membrane Trafficking of AQP5 in the Lens in Response to Changes in Zonular Tension Is Mediated by the Mechanosensitive Channel TRPV1. Int J Mol Sci. 24 (10), (2023).
- Chen, Y., Petrova, R. S., Qiu, C., Donaldson, P. J. Intracellular hydrostatic pressure regulation in the bovine lens: a role in the regulation of lens optics? Am J Physiol Regul Integr Comp Physiol. 322 (3), R263-R279 (2022).
- Donaldson, P. J., Musil, L. S., Mathias, R. T. Point: A critical appraisal of the lens circulation model an experimental paradigm for understanding the maintenance of lens transparency? Invest Ophthalmol Vis Sci. 51 (5), 2303-2306 (2010).
- Merriman Smith, B. R., Krushinsky, A., Kistler, J., Donaldson, P. J. Expression patterns for glucose transporters GLUT1 and GLUT3 in the normal rat lens and in models of diabetic cataract. Invest Ophthalmol Vis Sci. 44 (8), 3458-3466 (2003).
- Merriman Smith, R., Donaldson, P., Kistler, J. Differential expression of facilitative glucose transporters GLUT1 and GLUT3 in the lens. Invest Ophthalmol Vis Sci. 40 (13), 3224-3230 (1999).
- Zahraei, A., et al. Mapping Glucose Uptake, Transport and Metabolism in the Bovine Lens Cortex. Front Physiol. 13, 901407(2022).
- Lim, J. C., Perwick, R. D., Li, B., Donaldson, P. J. Comparison of the expression and spatial localization of glucose transporters in the rat, bovine and human lens. Exp Eye Res. 161, 193-204 (2017).
- Swarup, A., et al. Deletion of GLUT1 in mouse lens epithelium leads to cataract formation. Exp Eye Res. 172, 45-53 (2018).
- Reddy, V. N. Metabolism of glutathione in the lens. Exp Eye Res. 11 (3), 310-328 (1971).
- Truscott, R. J. Age-related nuclear cataract oxidation is the key. Exp Eye Res. 80 (5), 709-725 (2005).
- Kannan, R., Yi, J. R., Zlokovic, B. V., Kaplowitz, N. Molecular characterization of a reduced glutathione transporter in the lens. Invest Ophthalmol Vis Sci. 36 (9), 1785-1792 (1995).
- Mackic, J. B., et al. Transport of circulating reduced glutathione at the basolateral side of the anterior lens epithelium: physiologic importance and manipulations. Exp Eye Res. 62 (1), 29-37 (1996).
- Li, B., Li, L., Donaldson, P. J., Lim, J. C. Dynamic regulation of GSH synthesis and uptake pathways in the rat lens epithelium. Exp Eye Res. 90 (2), 300-307 (2010).
- Lim, J., Li, L., Jacobs, M. D., Kistler, J., Donaldson, P. J. Mapping of glutathione and its precursor amino acids reveals a role for GLYT2 in glycine uptake in the lens core. Invest Ophthalmol Vis Sci. 48 (11), 5142-5151 (2007).
- Li, L., Lim, J., Jacobs, M. D., Kistler, J., Donaldson, P. J. Regional differences in cystine accumulation point to a sutural delivery pathway to the lens core. Invest Ophthalmol Vis Sci. 48 (3), 1253-1260 (2007).
- Rathbun, W. B. Activity of glutathione synthesis enzymes in the rhesus monkey lens related to age: a model for the human lens. Curr Eye Res. 5 (2), 161-166 (1986).
- Sethna, S. S., Holleschau, A. M., Rathbun, W. B. Activity of glutathione synthesis enzymes in human lens related to age. Curr Eye Res. 2 (11), 735-742 (1982).
- Giblin, F. J., et al. Nuclear light scattering, disulfide formation and membrane damage in lenses of older guinea pigs treated with hyperbaric oxygen. Exp Eye Res. 60 (3), 219-235 (1995).
- Padgaonkar, V. A., et al. Hyperbaric oxygen in vivo accelerates the loss of cytoskeletal proteins and MIP26 in guinea pig lens nucleus. Exp Eye Res. 68 (4), 493-504 (1999).
- Padgaonkar, V., Giblin, F. J., Reddy, V. N. Disulfide cross linking of urea insoluble proteins in rabbit lenses treated with hyperbaric oxygen. Exp Eye Res. 49 (5), 887-899 (1989).
- Lou, M. F., Dickerson, J. E. Jr Protein thiol mixed disulfides in human lens. Exp Eye Res. 55 (6), 889-896 (1992).
- Wei, Z., et al. Aging lens epithelium is susceptible to ferroptosis. Free Radic Biol Med. 167, 94-108 (2021).
- Wei, Z., et al. Deficiency in glutathione peroxidase 4 (GPX4) results in abnormal lens development and newborn cataract. Proc Natl Acad Sci U S A. 121 (48), e2407842121(2024).
- Cheng, C., Fowler, V. M., Gong, X. EphA2 and ephrin A5 are not a receptor ligand pair in the ocular lens. Exp Eye Res. 162, 9-17 (2017).
- Islam, S. T., Cheheltani, S., Cheng, C., Fowler, V. M. Disease related non muscle myosin IIA D1424N rod domain mutation, but not R702C motor domain mutation, disrupts mouse ocular lens fiber cell alignment and hexagonal packing. Cytoskeleton (Hoboken). 81 (12), 789-805 (2024).
- Islam, S. T., Cheng, C., Parreno, J., Fowler, V. M. Nonmuscle Myosin IIA Regulates the Precise Alignment of Hexagonal Eye Lens Epithelial Cells During Fiber Cell Formation and Differentiation. Invest Ophthalmol Vis Sci. 64 (4), 20(2023).
- Forrester, J. V., Dick, A. D., McMenamin, P. G., Roberts, F., Pearlman, E. The Eye (Fourth Edition). Forrester, J. V. , W.B. Saunders. 1-102.e102 (2016).
- D’Amore, P. A. Encyclopedia of the Eye (Second Edition). , Elsevier. 514-520 (2025).
- Vrensen, G. F. Aging of the human eye lens a morphological point of view. Comp Biochem Physiol A Physiol. 111 (4), 519-532 (1995).
- Vrensen, G. F., Duindam, H. J. Maturation of fiber membranes in the human eye lens. Ultrastructural and Raman microspectroscopic observations. Ophthalmic Res. 27 Suppl 1, 78-85 (1995).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rabbit. A scanning electron microscopic reinvestigation. Albrecht Von Graefes Arch Klin Exp Ophthalmol. 216 (4), 275-289 (1981).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rhesus monkey. Graefes Arch Clin Exp Ophthalmol. 219 (3), 112-120 (1982).
- Willekens, B., Vrensen, G. Lens fiber organization in four avian species: a scanning electron microscopic study. Tissue Cell. 17 (3), 359-377 (1985).
- Lo, W. K., et al. Aquaporin 0 targets interlocking domains to control the integrity and transparency of the eye lens. Invest Ophthalmol Vis Sci. 55 (3), 1202-1212 (2014).
- Lo, W. K., Harding, C. V. Square arrays and their role in ridge formation in human lens fibers. J Ultrastruct Res. 86 (3), 228-245 (1984).
- Kistler, J., et al. Membrane interlocking domains in the lens. Invest Ophthalmol Vis Sci. 27 (10), 1527-1534 (1986).
- Dickson, D. H., Crock, G. W. Interlocking patterns on primate lens fibers. Invest Ophthalmol. 11 (10), 809-815 (1972).
- Kuszak, J., Alcala, J., Maisel, H. The surface morphology of embryonic and adult chick lens fiber cells. Am J Anat. 159 (4), 395-410 (1980).
- Kuwabara, T. The maturation of the lens cell: a morphologic study. Exp Eye Res. 20 (5), 427-443 (1975).
- Martin, J. B., et al. Arvcf Dependent Adherens Junction Stability is Required to Prevent Age-related Cortical Cataracts. Front Cell Dev Biol. 10, 840129(2022).
- Chen, Y., Stump, R. J., Lovicu, F. J., Shimono, A., McAvoy, J. W. Wnt signaling is required for organization of the lens fiber cell cytoskeleton and development of lens three dimensional architecture. Dev Biol. 324 (1), 161-176 (2008).
- Sugiyama, Y., et al. Concave to convex curve conversion of fiber cells correlates with Y shaped suture formation at the poles of the rodent lens. Exp Eye Res. 248, 110066(2024).
- Kuszak, J. R., Sivak, J. G., Weerheim, J. A. Lens optical quality is a direct function of lens sutural architecture. Invest Ophthalmol Vis Sci. 32 (7), 2119-2129 (1991).
- Cheng, C. EphA2 and Ephrin A5 Guide Eye Lens Suture Alignment and Influence Whole Lens Resilience. Invest Ophthalmol Vis Sci. 62 (15), 3(2021).
- Xia, C. H., et al. Absence of alpha3 (Cx46) and alpha8 (Cx50) connexins leads to cataracts by affecting lens inner fiber cells. Exp Eye Res. 83 (3), 688-696 (2006).
- BEERS, A. P. A., van der HEIJDE, G. L. Age-related Changes in the Accommodation Mechanism. Optometry and Vision Science. 73 (4), 235-242 (1996).
- van Alphen, G. W., Graebel, W. P. Elasticity of tissues involved in accommodation. Vision Res. 31 (7-8), 1417-1438 (1991).
- Fisher, R. F. The ciliary body in accommodation. Trans Ophthalmol Soc U K (1962). 105 (Pt 2), 208-219 (1986).
- Graebel, W. P., van Alphen, G. W. H. M. The Elasticity of Sclera and Choroid of the Human Eye, and Its Implications on Scleral Rigidity and Accommodation. Journal of Biomechanical Engineering. 99 (4), 203-208 (1977).
- Tamm, S., Tamm, E., Rohen, J. W. Age-related changes of the human ciliary muscle. A quantitative morphometric study. Mech Ageing Dev. 62 (2), 209-221 (1992).
- Scarcelli, G., Kim, P., Yun, S. H. In vivo measurement of age-related stiffening in the crystalline lens by Brillouin optical microscopy. Biophys J. 101 (6), 1539-1545 (2011).
- Zhou, H., Yan, H., Yan, W., Wang, X., Li, Q. In vivo ultraosound elastographic evaluation of the age-related change of human lens nuclear stiffness. BMC Ophthalmol. 20 (1), 135(2020).
- Hermans, E., Dubbelman, M., van der Heijde, R., Heethaar, R. The shape of the human lens nucleus with accommodation. J Vis. 7 (10), 16.1-10 (2007).
- Fisher, R. F., Pettet, B. E. Presbyopia and the water content of the human crystalline lens. J Physiol. 234 (2), 443-447 (1973).
- Alizadeh, A., et al. Characterization of a mutation in the lens specific CP49 in the 129 strain of mouse. Invest Ophthalmol Vis Sci. 45 (3), 884-891 (2004).
- Fudge, D. S., et al. Intermediate filaments regulate tissue size and stiffness in the murine lens. Invest Ophthalmol Vis Sci. 52 (6), 3860-3867 (2011).
- Gokhin, D. S., et al. Tmod1 and CP49 synergize to control the fiber cell geometry, transparency, and mechanical stiffness of the mouse lens. PLoS One. 7 (11), e48734(2012).
- Duindam, J. J., Vrensen, G. F., Otto, C., Greve, J. Aging affects the conformation of cholesterol in the human eye lens. Ophthalmic Res. 28 Suppl 1, 86-91 (1996).
- Li, L. K., So, L., Spector, A. Age dependent changes in the distribution and concentration of human lens cholesterol and phospholipids. Biochim Biophys Acta. 917 (1), 112-120 (1987).
- Mainali, L., Raguz, M., O'Brien, W. J., Subczynski, W. K. Changes in the Properties and Organization of Human Lens Lipid Membranes Occurring with Age. Curr Eye Res. 42 (5), 721-731 (2017).
- Truscott, R. J. Age-related nuclear cataract: a lens transport problem. Ophthalmic Res. 32 (5), 185-194 (2000).
- Subczynski, W. K., Raguz, M., Widomska, J., Mainali, L., Konovalov, A. Functions of cholesterol and the cholesterol bilayer domain specific to the fiber cell plasma membrane of the eye lens. J Membr Biol. 245 (1), 51-68 (2012).
- Widomska, J., Subczynski, W. K. Why Is Very High Cholesterol Content Beneficial for the Eye Lens but Negative for Other Organs? Nutrients. 11 (5), (2019).
- Khadka, N. K., Mortimer, M. F., Marosvari, M., Timsina, R., Mainali, L. Membrane elasticity modulated by cholesterol in model of porcine eye lens lipid membrane. Exp Eye Res. 220, 109131(2022).
- Bracchi, P. G., Carta, F., Fasella, P., Maraini, G. Selective binding of aged alpha crystallin to lens fibre ghosts. Exp Eye Res. 12 (1), 151-154 (1971).
- Maraini, G., Fasella, P. Reversible binding of soluble lens proteins to lens fibre ghosts. Exp Eye Res. 10 (1), 133-139 (1970).
- Broekhuyse, R. M., Kuhlmann, E. D. Lens membranes. IV. Preparative isolation and characterization of membranes and various membrane proteins from calf lens. Exp Eye Res. 26 (3), 305-320 (1978).
- Friedrich, M. G., Truscott, R. J. Large scale binding of alpha crystallin to cell membranes of aged normal human lenses: a phenomenon that can be induced by mild thermal stress. Invest Ophthalmol Vis Sci. 51 (10), 5145-5152 (2010).
- Khadka, N. K., Timsina, R., Mainali, L. An AFM Approach Applied in a Study of alpha Crystallin Membrane Association: New Insights into Lens Hardening and Presbyopia Development. Membranes (Basel). 12 (5), (2022).
- Timsina, R., Khadka, N. K., Maldonado, D., Mainali, L. Interaction of alpha crystallin with four major phospholipids of eye lens membranes. Exp Eye Res. 202, 108337(2021).
- Timsina, R., Mainali, L. Association of Alpha Crystallin with Fiber Cell Plasma Membrane of the Eye Lens Accompanied by Light Scattering and Cataract Formation. Membranes (Basel). 11 (6), (2021).
- Timsina, R., Trossi Torres, G., O'Dell, M., Khadka, N. K., Mainali, L. Cholesterol and cholesterol bilayer domains inhibit binding of alpha crystallin to the membranes made of the major phospholipids of eye lens fiber cell plasma membranes. Exp Eye Res. 206, 108544(2021).
- Parreno, J., et al. Methodologies to unlock the molecular expression and cellular structure of ocular lens epithelial cells. Front Cell Dev Biol. 10, 983178(2022).
- Cvekl, A., Camerino, M. J. Generation of Lens Progenitor Cells and Lentoid Bodies from Pluripotent Stem Cells: Novel Tools for Human Lens Development and Ocular Disease Etiology. Cells. 11 (21), (2022).
- Murphy, P., et al. Light focusing human micro lenses generated from pluripotent stem cells model lens development and drug induced cataract in vitro. Development. 145 (1), (2018).
- Goldberg, M. W. High Resolution Scanning Electron Microscopy and Immuno Gold Labeling of the Nuclear Lamina and Nuclear Pore Complex. Methods Mol Biol. 1411, 441-459 (2016).
- Goldberg, M. W., Fiserova, J. Immunogold Labeling for Scanning Electron Microscopy. Methods Mol Biol. 1474, 309-325 (2016).
- Hermann, R., Walther, P., Muller, M. Immunogold labeling in scanning electron microscopy. Histochem Cell Biol. 106 (1), 31-39 (1996).
- Vu, M. P., Cheng, C. Preparation and Immunofluorescence Staining of Bundles and Single Fiber Cells from the Cortex and Nucleus of the Eye Lens. J Vis Exp. (196), e65638(2023).
- Emin, G., et al. Whole Mount Imaging to Visualize and Quantify Peripheral Lens Structure, Cell Morphology, and Organization. J Vis Exp. (203), e66017(2024).
- Zhou, Y., Shiels, A. Epha2 and Efna5 participate in lens cell pattern formation. Differentiation. 102, 1-9 (2018).
- Huynh, P. N., Cheng, C. Spatial temporal comparison of Eph/Ephrin gene expression in ocular lenses from aging and knockout mice. Front Ophthalmol (Lausanne). 4, 1410860(2024).
- Disatham, J., et al. Lens differentiation is characterized by stage specific changes in chromatin accessibility correlating with differentiation state specific gene expression. Dev Biol. 453 (1), 86-104 (2019).
- Farnsworth, D. R., Posner, M., Miller, A. C. Single cell transcriptomics of the developing zebrafish lens and identification of putative controllers of lens development. Exp Eye Res. 206, 108535(2021).
- Tangeman, J. A., et al. Integrated single cell multiomics uncovers foundational regulatory mechanisms of lens development and pathology. Development. 151 (1), (2024).
- Xia, C. H., et al. Periaxin gene variants are linked to age-related cataracts in Cx46 deficient lenses. Commun Biol. 8 (1), 1356(2025).
- Gong, X., Agopian, K., Kumar, N. M., Gilula, N. B. Genetic factors influence cataract formation in alpha 3 connexin knockout mice. Dev Genet. 24 (1-2), 27-32 (1999).
- Baradia, H., Nikahd, N., Glasser, A. Mouse lens stiffness measurements. Exp Eye Res. 91 (2), 300-307 (2010).
- Sindhu Kumari, S., et al. Role of Aquaporin 0 in lens biomechanics. Biochem Biophys Res Commun. 462 (4), 339-345 (2015).
- Cheng, C., Gokhin, D. S., Nowak, R. B., Fowler, V. M. Sequential Application of Glass Coverslips to Assess the Compressive Stiffness of the Mouse Lens: Strain and Morphometric Analyses. J Vis Exp. (111), e53986(2016).
- Wolf, N. S., Li, Y., Pendergrass, W., Schmeider, C., Turturro, A. Normal mouse and rat strains as models for age-related cataract and the effect of caloric restriction on its development. Exp Eye Res. 70 (5), 683-692 (2000).
- Martin Montalvo, A., et al. Metformin improves healthspan and lifespan in mice. Nat Commun. 4, 2192(2013).
- Pearson, K. J., et al. Resveratrol delays age-related deterioration and mimics transcriptional aspects of dietary restriction without extending life span. Cell Metab. 8 (2), 157-168 (2008).
- Pendergrass, W., Penn, P., Possin, D., Wolf, N. Accumulation of DNA, nuclear and mitochondrial debris, and ROS at sites of age-related cortical cataract in mice. Invest Ophthalmol Vis Sci. 46 (12), 4661-4670 (2005).
- Pendergrass, W. R., Penn, P. E., Li, J., Wolf, N. S. Age-related telomere shortening occurs in lens epithelium from old rats and is slowed by caloric restriction. Exp Eye Res. 73 (2), 221-228 (2001).
- Schriner, S. E., et al. Extension of murine life span by overexpression of catalase targeted to mitochondria. Science. 308 (5730), 1909-1911 (2005).
- Wolf, N., et al. Age-related cataract progression in five mouse models for anti oxidant protection or hormonal influence. Exp Eye Res. 81 (3), 276-285 (2005).
- Panja, S., et al. Aggrelyte 2 promotes protein solubility and decreases lens stiffness through lysine acetylation and disulfide reduction: Implications for treating presbyopia. Aging Cell. 22 (4), e13797(2023).
- Panja, S., Nam, M. H., Gaikwad, H., Rankenberg, J., Nagaraj, R. H. Topical ocular application of aggrelyte 2A reduces lens stiffness in mice. Frontiers in Ophthalmology. 3, (2023).
- Kador, P. F., Guo, C., Kawada, H., Randazzo, J., Blessing, K. Topical nutraceutical Optixcare EH ameliorates experimental ocular oxidative stress in rats. J Ocul Pharmacol Ther. 30 (7), 593-602 (2014).
- Kador, P. F., Webb, T. R., Bras, D., Ketring, K., Wyman, M. Topical KINOSTAT ameliorates the clinical development and progression of cataracts in dogs with diabetes mellitus. Vet Ophthalmol. 13 (6), 363-368 (2010).
- Kador, P. F., Wyman, M., Oates, P. J. Aldose reductase, ocular diabetic complications and the development of topical Kinostat((R)). Prog Retin Eye Res. 54, 1-29 (2016).
- Maden, M. Salamanders as Key Models for Development and Regeneration Research. Methods Mol Biol. 2562, 1-23 (2023).
- Grogg, M. W., Call, M. K., Tsonis, P. A. Signaling during lens regeneration. Semin Cell Dev Biol. 17 (6), 753-758 (2006).
- Tsonis, P. A., Makarev, E. On dorsal/ventral specific genes in the iris during lens regeneration. Cell Mol Life Sci. 65 (1), 41-44 (2008).
- Kha, C. X., Son, P. H., Lauper, J., Tseng, K. A. A model for investigating developmental eye repair in Xenopus laevis. Exp Eye Res. 169, 38-47 (2018).
- Gwon, A. E., Gruber, L. J., Mundwiler, K. E. A histologic study of lens regeneration in aphakic rabbits. Invest Ophthalmol Vis Sci. 31 (3), 540-547 (1990).
- Gwon, A., Gruber, L. J., Mantras, C. Restoring lens capsule integrity enhances lens regeneration in New Zealand albino rabbits and cats. J Cataract Refract Surg. 19 (6), 735-746 (1993).
- Medvedovic, M., Tomlinson, C. R., Call, M. K., Grogg, M., Tsonis, P. A. Gene expression and discovery during lens regeneration in mouse: regulation of epithelial to mesenchymal transition and lens differentiation. Mol Vis. 12, 422-440 (2006).
- Call, M. K., Grogg, M. W., Del Rio Tsonis, K., Tsonis, P. A. Lens regeneration in mice: implications in cataracts. Exp Eye Res. 78 (2), 297-299 (2004).
- Kuszak, J. R., Brown, H. G. Embryology and anatomy of the crystallin lens. , W.B. Saunders. 82-96 (1994).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible