Ce protocole présente une méthode détaillée pour isoler des suspensions unicellulaires de haute qualité à partir de tissu pulmonaire murin sain et porteur de tumeurs. Ce protocole peut être appliqué au scRNA-seq, à l’analyse de cytométrie en flux et à l’isolation des cellules primaires.
Article de méthode
Préparation optimisée du tissu pulmonaire entier contenant une tumeur murinée pour la cytométrie en flux et le séquençage de l’ARN unicellulaire
Dans cet article
Résumé
Résumé
Le NSCLC représente environ 85 % des cancers du poumon, et le sarcome de rat de Kirsten (KRAS) est le gène le plus fréquemment muté dans le NSCLC. Bien que la gestion des CPNPC ait nettement progressé ces dernières années, son hétérogénéité et sa plasticité restent incomplètement comprises. Le séquençage de l’ARN unicellulaire (scRNA-seq) est devenu un outil essentiel pour disséquer l’hétérogénéité cellulaire dans des tissus complexes tels que le poumon. Cependant, la production de suspensions unicellulaires de haute qualité à partir de tissu pulmonaire contenant des tumeurs est difficile, notamment lors de la formation tumorale lorsque le tissu devient fibreux et hétérogène. Une exigence clé pour réussir le scRNA-seq est la préparation de cellules uniques viables avec un stress ou un dommage induit par le traitement minimal. Ici, un protocole détaillé étape par étape est présenté pour isoler des suspensions unicellulaires de haute qualité à partir de tissu pulmonaire de souris sain et porteur de tumeurs dans un KrasG12D ; Modèle souris reporter de tdTomate. La procédure comprend la perfusion tissulaire, la digestion enzymatique contrôlée, la dissociation mécanique douce, la lyse des globules rouges, la filtration et l’évaluation de la viabilité, et permet d’atteindre >85 % de cellules viables avant le scRNA-seq. Enfin, les cellules tumorales tdTomato+ sont efficacement isolées par FACS et peuvent être détectées comme des groupes distincts par scRNA-seq à l’aide de ce protocole.
Introduction
Le cancer du poumon est l’une des principales causes de décès liés au cancer dans le monde. Il peut être globalement classé en deux sous-types majeurs : le cancer du poumon à petites cellules (SCLC) et le cancer du poumon non à petites cellules (NSCLC)1. Le CPNPC représente environ 85 % de tous les cas de cancer du poumon, l’adénocarcinome étant le sous-typehistologique 2 le plus courant. Bien que les stratégies thérapeutiques pour les CPNPC se soient nettement améliorées au cours des dernières décennies, le taux de mortalité du cancer du poumon resteélevé. La chimiothérapie et l’immunothérapie sont les deux principales modalités de traitement utilisées en pratique clinique ; Cependant, de nombreux patients présentent une résistance aux médicaments ou ne répondent pas àl’immunothérapie 4,5.
Le microenvironnement tumoral (EMT) joue un rôle central dans l’initiation, la progression et la résistance thérapeutiquede la tumeur 6. De plus en plus de preuves suggèrent que la composition de l’EMT évolue dynamiquement aufil du temps 7,8. Les cellules immunitaires antitumorales sont généralement enrichies dans le TME lors des premiers stades de la tumorigenèse, tandis que les populations immunosuppressives et associées au cancer deviennent prédominantes à mesure que la tumeur se développe. Par conséquent, comprendre l’hétérogénéité et la plasticité de la TME au cours de la progression du cancer du poumon est essentiel pour élucider les mécanismes de la maladie et améliorer les résultats thérapeutiques.
Le séquençage de l’ARN unicellulaire (scRNA-seq) permet un profilage à haute résolution de l’expression génique au niveau de la cellule individuelle, permettant une caractérisation complète des transcriptomes tissulairescomplexes 10. Cette technique est devenue indispensable pour étudier l’hétérogénéité cellulaire et identifier les mécanismes sous-jacents à la progression tumorale et à la résistance aux médicaments dans le cancer dupoumon. La préparation d’une suspension unicellulaire de haute qualité est un élément critique du succès du scRNA-seq, car le stress ou les dommages cellulaires lors de la dissociation peuvent conduire à des résultatsinexacts 12,13.
Ce protocole permet de séquençar l’ARN de toutes les cellules uniques purifiées de poumons entiers porteurs de tumeurs, sans distinction de la taille cellulaire et sans écarter de sous-populations cellulaires vivantes. De nombreuses études antérieures ont rapporté un séquençage unicellulaire de poumons tumoraux qui se concentrait soit sur les cellules tumorales et les cellules CD45+rejetées 14, 15, 16, soit sur les cellules immunitaires ou d’autres types cellulaires spécifiques17 et les cellules tumorales rejetées. Ce protocole vise à dissocier efficacement tous les types cellulaires du tissu pulmonaire murin entier porteur de tumeurs, tout en assurant la libération des cellules malignes et en préservant la viabilité des cellules normales. En incluant toutes les cellules uniques vivantes, ce protocole permet d’étudier tous les types cellulaires pertinents dans le microenvironnement pulmonaire tumeur, y compris les cellules macrophages associées au cancer (CAML)18. Des étapes optionnelles de tri cellulaire activé par fluorescence (FACS) sont incluses pour le contrôle de la qualité et l’enrichissement de populations cellulaires spécifiques. Des directives supplémentaires sont fournies pour la coloration par anticorps, le marquage 4',6-diamidino-2-phénylindole (DAPI), et les procédures de fixation à court terme lorsque le tri immédiat n’est pas envisageable.
Une limitation potentielle de ce protocole est qu’il a été optimisé et validé pour les tissus pulmonaires présentant des tumeurs à un stade précoce et avec une charge tumorale inférieure à 40 %. Pour les poumons contenant des tumeurs de grade supérieur ou dont la charge tumorale dépasse 50 %, l’efficacité de la dissociation peut être compromise par la présence de composants stromales denses et une fibroseétendue 19,20, qui pourrait bloquer la libération complète des cellules malignes.
Protocole
Toutes les expériences liées aux animaux ont été réalisées conformément aux directives de Scripps Research pour le soin et l’utilisation des animaux et approuvées par le comité de soins et d’utilisation des animaux de l’institution Scripps Research selon le protocole #10-0019. Le KrasLSL-G12D/+ ; Des souris TdTomato+/- ont été générées en croisant des souris Kras LSL-G12D/+ avec des souris rapporteures TdTomato. Kras,LSL-G12D/+ âgé de neuf ou dix semaines ; Des souris TdTomato+/- ont été utilisées comme modèles pour le cancer du poumon. Ils sont infectés intratrachéalement par un lentivirus exprimant la Cre recombinase, à un titre viral de 5 × 10⁵ unités formant des plaques par souris. Des tissus pulmonaires porteurs de tumeurs ont été prélevés après 25 semaines. Les problèmes digératifs potentiels et le dépannage sont listés dans le Tableau Supplémentaire 1. Les réactifs et l’équipement utilisés sont listés dans le tableau des matériaux.
1. Préparation des tampons
- Milieu DMEM/F12 : Préparez un FBS inactivé à 2 % (v/v) dans un milieu DMEM/F12.
- Tampon de lavage cellulaire : Préparez un FBS inactivé thermiquement à 2 % (v/v) dans un PBS sans Ca+/Mg+ (pH 7,4).
- Tampon de perfusion : PBS sans Ca+/Mg+ pré-refroidi (pH 7,4).
- Solutions enzymatiques stock : dissoudre 10 mg (1600 U/mg) de collagénase IV dans 1 mL de milieu DMEM/F12 pour obtenir une solution stock IV de collagénase IV à 16000 U/mL ; Dissoudre 42 mg (1,19 U/mg) de Dispase II dans 1 mL de milieu DMEM/F12 pour obtenir une solution d’origine de Dispase II à 50 U/mL ; Dissoudre 5 mg de DNase I dans 1 mL de milieu DMEM/F12 pour obtenir une solution d’origine de 5 mg/mL de DNase I.
- Milieu digestif : Mélangez 250 μL de collagénase IV, 200 μL de Dispase II et 100 μL de solutions stock de DNase I dans un milieu DMEM/F12 de 5 mL pour obtenir une concentration finale de 800 U/mL de collagénase IV, 2 U/mL de Dispase II et 0,1 mg/mL de DNase I.
- Tampon de resuspension : Mélangez 1 μL de 0,5 M EDTA (10 μM), 1 mL de FBS inactivé thermiquement (2 % v/v) dans 50 mL PBS libres de Ca+/Mg+ (pH 7,4).
- Solution d’origine BSA : dissoudre 0,5 g de BSA dans 100 mL de PBS sans Ca+/Mg+ pour obtenir une solution d’origine BSA à 0,5 % (p/v).
- Tampon FACS : Mélangez 2,5 mL de 1 M HEPES, 200 μL de 0,5 M EDTA dans une solution d’origine BSA de 100 mL pour obtenir une concentration finale de 25 mM HEPES et 1 mM d’EDTA.
2. Collecte de tissu pulmonaire murin
REMARQUE : Tous les instruments chirurgicaux sont désinfectés avec 70 % d’éthanol entre les échantillons. Les échantillons sont conservés sur glace entre chaque étape, et tous les plastiques sont certifiés sans DNase/RNase.
- Euthanasiez la souris dans une chambre deCO2 (selon des protocoles approuvés par l’institution). Posez la souris sur le dos sur un tapis de dissection et immobilisez les pieds. Vaporisez généreusement à 70 % d’éthanol.
- Réalisez une incision médiane de 2 à 3 cm de large à travers la peau et les muscles du bas de l’abdomen. Ouvrez délicatement le thorax et évitez de couper les poumons ou le cœur.
- Fixez une aiguille multifly de sécurité de 21 G à une seringue de 50 mL et aspirez un tampon de perfusion de 30 mL.
- Insérez l’aiguille dans le ventricule gauche et découpez une petite incision dans l’oreillette droite à l’aide de ciseaux droits et tranchants.
- Perfusezun 21 corps entier avec un tampon de perfusion de 15 mL.
REMARQUE : Le blanchiment du foie indique que la perfusion corporelle est terminée. - Retirez les poumons du thorax et coupez l’excès de tissu attaché auxpoumons 22. Placez les poumons dans un PBS 10 mL pré-refroidi sans Ca+/Mg+ pour laver l’excès de sang.
- Transférez les poumons dans un tube de 1,5 mL contenant 500 μL de DMEM/F12 glacé.
3. Préparation de la suspension monocellulaire pulmonaire
- Découpez le tissu pulmonaire en petits morceaux (1–2 mm3) avec un ciseau droit très étroit pendant 2 à 3 minutes.
- Transférez le tissu pulmonaire haché dans un plat de 6 cm contenant un milieu digestif de 5 mL.
- Placez une antenne de 6 cm sur un shaker thermostatique à 50 tr/min pendant 25 minutes à 37 °C. Mélangez la suspension avec une pipette de 1 mL toutes les 8 minutes.
- Placez une passoire en maille de 100 μm dans un plat de 10 cm. Humidifier d’avance la passoire avec 1 mL de DMEM/F12 medium.
- Transférez la suspension digérée dans la passoire. Faites passer le tissu à travers la passoire avec l’extrémité en caoutchouc d’un piston à seringue stérile.
- Placez une tamoire en maille de 70 μm sur un tube centrifugeuse de 50 mL. Humidifier d’avance la passoire avec 1 mL de DMEM/F12 medium.
- Filtrez la suspension à cellules à travers un filtre et rincez la passoire avec un médium DMEM/F12 de 5 mL.
- Centrifugeuse en suspension à cellules filtrées à 400 g pendant 10 minutes à 4 °C et retirez soigneusement le surnageant. Resuspendez le pellet cellulaire dans 1 mL de tampon lysant des globules rouges pendant 2 minutes à température ambiante.
- Ajoutez un tampon de lavage de cellules de 14 mL et centrifugez à 400 g pendant 10 minutes à 4 °C.
REMARQUE : Si la granule est encore rouge après le lavage, répétez les étapes 8 et 9. - Jetez le surnageant et resuspendez les cellules dans un tampon de resuspension de 20 mL.
- Mélangez 10 μL de suspension monocellulaire avec un volume égal de bleu de trypan et ajoutez 10 μL du mélange à la lame de la chambre de comptage cellulaire. Vérifiez la viabilité des cellules vivantes, le numéro de cellule et le statut de cellule unique à l’aide d’un compteur de cellule.
4. Analyse de cytométrie en flux
- Resuspendez les cellules dans un tampon FACS glacé et transférez 100 μL de suspension cellulaire dans des tubes de 1,5 mL contenant un anticorps Fc block de 1 μL (1:100). Incubez les échantillons pendant 15 minutes sur la glace.
- Centrifugez à 500 g pendant 5 minutes et jetez le surnageant. Resuspendez les cellules dans 200 μL d’anticorps CD326-APC (1:100) et incubez pendant 45 minutes dans le noir à 4 °C.
- Centrifugez à 500 g pendant 5 minutes et jetez le surnageant. Resuspendez les cellules dans 500 μL de tampon FACS contenant la coloration DAPI (1:5000).
- Transférez tous les échantillons dans des tubes FACS et protégez-les de la lumière.
- Analysez les échantillons à l’aide du cytomètre en flux. Les fluorophores suivants ont été utilisés : DAPI-V450, Tdtomato-YG585, CD326-APC. La stratégie de barrage est illustrée à la Figure 1.
Résultats
Une viabilité élevée de la cellule a été atteinte grâce à la suspension monocellule préparée selon ce protocole optimisé. Les changements ayant amélioré la viabilité cellulaire des poumons tumoraux comprenaient l’optimisation de la concentration des enzymes (Tableau supplémentaire 2), le secouage et le mélange des échantillons pendant l’incubation à 37 °C. De plus, l’utilisation d’un filtre de maillage supplémentaire de 40 μm à l’étape 6 a été éliminée afin de réduire les contraintes de cisaillement mécanique qui augmente la probabilité de dommages cellulaires ; Inclure le filtre supplémentaire peut réduire la formation de multiplets. En moyenne, la viabilité cellulaire dépassait 85 %, contre moins de 80 % avant optimisation (Tableau 1). Les variations de concentration cellulaire étaient principalement attribuées à des différences de taille pulmonaire et de milieu de suspension utilisé entre les réplications.
Dans ce modèle murien de l’adénocarcinome pulmonaire pilotépar Kras G12D, des nodules tumoraux sont présents, et les charges tumorales varient entre 10 % et 40 % vingt-cinq semaines après l’initiation de latumeur 23. Deux suspensions monocellulaires entièrement pulmonaires ont été soumises à scRNA-seq sur la plateforme 10x Genomics. L’évaluation de la qualité Cell Ranger a identifié respectivement 23 488 et 21 436 cellules estimées dans les deux échantillons (Tableau 2). Le diagramme de codes-barres a indiqué une contamination à l’ARN ambiant minimale, ce qui reflète probablement la forte viabilité cellulaire (Figure 2A, B).
L’analyse en composantes principales (PCA) et l’approximation et projection uniformes de la variété (UMAP) ont révélé des groupes bien définis, avec tous les principaux types cellulaires pulmonaires représentés (Figure 3A). Des graphiques en points de gènes marqueurs représentatifs ont confirmé que les biomarqueurs canoniques étaient fortement exprimés dans leurs types cellulaires correspondants (Figure 3B). De plus, les cellules TdTomato+ ont été enrichies en grappes liées à l’épithélium, et les cellules TdTomato+/EpCAM+ ont été isolées avec succès par FACS (Figure 1).
En résumé, ce protocole optimisé permet une dissociation efficace du tissu pulmonaire porteur de tumeurs murines, ce qui permet une viabilité cellulaire élevée, une faible contamination à l’ARN et une représentation cellulaire globale.
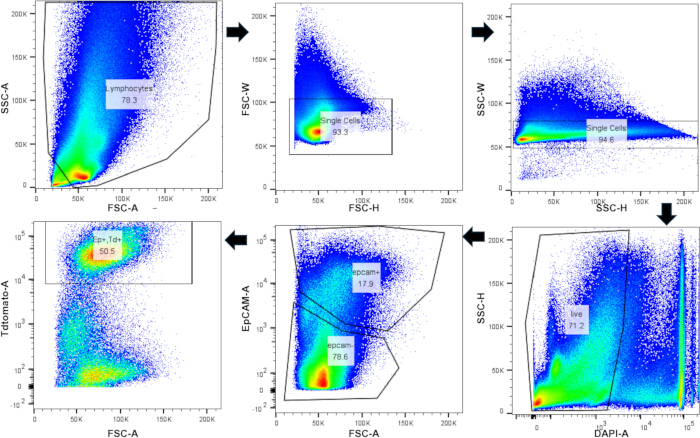
Figure 1 : Isolement des cellules TdTomato+/CD326 (EpCAM+) par cytométrie en flux. Stratégie de guidage par cytométrie en flux pour suspension monocellulaire pulmonaire murin. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
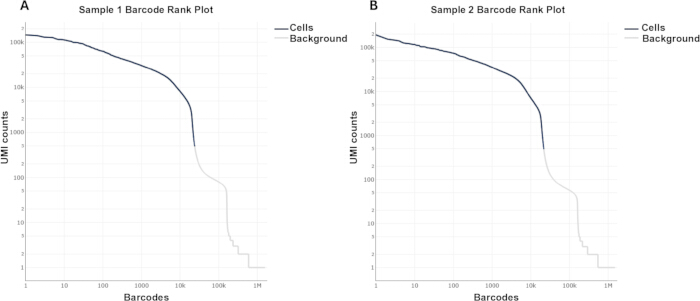
Figure 2 : Graphique de rang du code à barres ScRNA-seq des poumons porteurs de tumeurs murines. KrasLSL-G12D/+ ; Les poumons de souris TdTomato+/- ont été prélevés 25 semaines après l’infection au lentivirus-Cre. (A,B) Graphique de rang du poumon porteur de tumeurs à partir de l’analyse Cellranger Veuillez cliquer ici pour voir une version agrandie de cette figure.
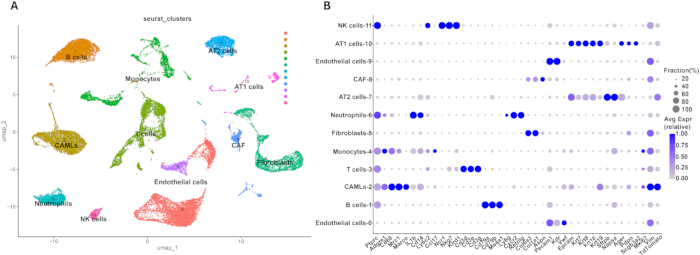
Figure 3 : Analyse transcriptomique unicellulaire des poumons porteurs de tumeurs murines. (A) Projection UMAP des ensembles de données sur des poumons porteurs de tumeurs entières. (B) Diagramme de points des gènes classiques utilisés pour les annotations de groupes. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
| Avant l’optimisation | Après optimisation | |||
| Répétez 1 | Répétez 2 | Répétez 1 | Répétez 2 | |
| Nombre total de cellules | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Cellules vivantes | 9,8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Pourcentage de cellules vivantes | 76% | 77% | 83% | 89% |
Tableau 1 : Viabilité des cellules en suspension unicellulaire des poumons porteurs de tumeurs avant et après optimisation. La concentration cellulaire et le pourcentage de cellules vivantes sont déterminés avant et après l’utilisation de ce protocole.
| Exemple 1 | Exemple 2 | |
| Nombre estimé de cellules | 23,488 | 21,436 |
| Lectures moyennes par cellule | 18,354 | 20,542 |
| Gènes médians par cellule | 2,565 | 2,513 |
| Total des gènes détectés | 30,893 | 30,556 |
| Comptage médian d’UMI par cellule | 6,864 | 6,583 |
| Codes-barres valides | 95.90% | 95.80% |
| Saturation du séquençage | 26.10% | 28.20% |
| Relevés de fractions dans les cellules | 94.10% | 95.40% |
Tableau 2 : Analyse du contrôle qualité ScRNA-seq par Cell Ranger. Les estimations clés des données monocellulaires obtenues à partir de Cell Ranger
Tableau complémentaire 1 : Solutions de dépannage. Des solutions sont suggérées pour résoudre les problèmes pouvant survenir pendant le processus digestif. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 2 : Composants du cocktail enzymatique avant et après optimisation. Les concentrations finales du cocktail enzymatique utilisées avant et après l’optimisation. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Ce protocole propose une procédure détaillée étape par étape pour préparer des suspensions unicellulaires de haute qualité à partir de tissu pulmonaire murin. Plusieurs étapes critiques sont nécessaires pour obtenir des résultats optimaux.
Avant la digestion enzymatique, une perfusion corporelle complète doit être réalisée pour retirer le sang des poumons. Cela garantit que les cellules immunitaires détectées par l’ARNsc-seq proviennent du tissu pulmonaire plutôt que du sang circulant. Lors de la perfusion, il est essentiel d’insérer l’aiguille dans le ventricule gauche afin d’empêcher la perfusion d’entrer dans la circulation pulmonaire et d’endommager les cellules pulmonaires. Pour préserver la viabilité cellulaire, tous les tampons, y compris les solutions de lavage, de resuspension et de perfusion, doivent être pré-refroidis sur glace. Compte tenu de l’hétérogénéité inhérente du tissupulmonaire 24, les échantillons doivent être maintenus dans un milieu DMEM/F12 avant et pendant la digestion, car ce milieu fournit des nutriments essentiels qui soutiennent la viabilité cellulaire.
La viabilité cellulaire élevée et les clusters cellulaires bien définis observés dans ce protocole confirment que la combinaison enzymatique est à la fois douce et efficace. Les ions calcium et magnésium sont connus pour favoriser l’agglutinement cellulaire et renforcer l’activité enzymatique25,26. Par conséquent, le PBS sans Ca+/Mg+ est utilisé pour préparer la plupart des tampons afin de minimiser les agglutinements, tandis que le DMEM/F12 contenant ces ions est utilisé comme milieu basal pour le tampon de digestion afin de maintenir une efficacité enzymatique équilibrée.
Bien que des études antérieures aient décrit des poumons murins ou des tissus tumoraux dissociants, ils présentent souvent une variabilité significative ou une description incomplète de la sélection et de la concentration deprotéases 11,15,27. Par exemple, Han et al.11 ont utilisé des cocktails enzymatiques sans indiquer la concentration, ce qui rend la réplication difficile. Inversement, une méthode hautement spécialisée décrite par Chen et al.28 est efficace pour la dissociation des cellules alvéolaires de type II (AT2) mais implique un flux de travail complexe, ce qui est impraticable si plusieurs souris doivent être collectées simultanément.
Un défi crucial en oncologie pulmonaire est l’hétérogénéité structurelle du poumon porteur de tumeurs, qui se compose à la fois de cellules normales fragiles et de cellules tumorales malignes. Les protocoles standards ou les kits commerciaux sont souvent conçus pour des échantillons de tissus normaux ou de tumeurs spécifiquement. Ils entraînent soit une digestion incomplète, l’incapacité à libérer les cellules cancéreuses du noyau tumoral, soit une surdigestion, ce qui induit un stress important et une mort cellulaire dans les tissus normaux plus sensibles des échantillons pulmonaires tumoraux.
Ce protocole répond à cela en affinant le cocktail enzymatique (collagénase IV, dispase II et DNase I) afin d’obtenir une dissociation équilibrée. Cette optimisation assure la libération des cellules malignes tout en préservant la viabilité des cellules normales. Cela est confirmé par l’analyse par cytométrie en flux, où nous avons réussi à identifier et résoudre deux cellules épithéliales distinctes. Les cellules épithéliales sont bien séparées en cellules TdTomato+ ou TdTomato-. Ce niveau de résolution démontre que cette méthode est adaptée à l’étude de l’ensemble du microenvironnement pulmonaire porteur de tumeurs sans sacrifier l’intégrité du tissu hôte. En incluant toutes les cellules vivantes dans l’analyse, ce protocole permet d’étudier tous les types cellulaires pertinents dans le microenvironnement pulmonaire tumeur, y compris les cellules macrophages associées au cancer (CAML) (Figure 3), qui n’avaient pas été largement rapportées dans les étudesprécédentes 15, 16, 17.
Après la digestion, des analyses scRNA-seq ont démontré que cette procédure isole avec succès divers types cellulaires. Les solutions enzymatiques doivent être fraîchement préparées le jour de l’expérience. Tous les paramètres digestifs sont optimisés pour un seul poumon murin entier. Lorsqu’on utilise seulement un seul lobe ou plusieurs poumons, le temps de digestion doit être ajusté pour garantir une viabilité cellulaire élevée et une dissociation complète des tissus. La contamination à l’ARN ambiant et la formation de multiplets sont deux facteurs majeurs qui affectent la qualité duscRNA-seq 29. Bien que des kits d’élimination des cellules mortes soient souvent utilisés pour améliorer la viabilité, ce protocole produit systématiquement plus de 80 % des cellules vivantes après la digestion, rendant cette étape optionnelle. Le graphique de rang par code-barres a confirmé une contamination minimale à l’ARN ambiant même sans extraction des cellules mortes.
L’étude actuelle valide cette méthodologie dans le contexte de l’ensemble du poumon murin porteur de tumeurs. Cette digestion enzymatique optimisée fournit un modèle pour étudier divers autres tissus tumoraux caractérisés par des microenvironnements similaires. De plus, la haute viabilité cellulaire et la préservation de tous les types cellulaires obtenues par ce protocole le rendent adapté aux technologies de séquençage avancées, telles que CITE-seq pour la cartographie des protéines de surface et ATAC-seq pour le profilage épigénétique.
Bien que ce protocole produise des suspensions monocellulaires de haute qualité à faible coût, un stress cellulaire induit par le processus peut néanmoins survenir lors de la digestion enzymatique. Pour minimiser les artefacts d’expression génique liés au stress, un seul opérateur ne doit pas traiter plus de quatre échantillons simultanément.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêts concurrents.
Remerciements
Ce travail a été soutenu par le National Institute of Health, le National Eye Institute (NEI), États-Unis, avec des subventions 5R01EY026202, R01EY035333 ; les subventions du National Institute of Dental and Craniofacial Research (NIDCR) R01DE031044, 2R01DE014756, et les subventions du National Cancer Institute (NCI) R01CA271500 et 2R01CA211187.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Culture cellulaire |
| Colagnase de type IV | Sigma Aldich | C5138 | Enzymes digestives |
| Dispase II | Sigma Aldich | D4693 | Enzymes digestives |
| DNase I | Roche | 11284931001 | Retirer l’ADN |
| Filtre Falcon 70 Cell | Faucon | 352350 | Retirer les tissus non digérés |
| Ciseaux stériles | FST | 14088-10 | Tissus découpés |
| Tampon de lyse des globules rouges | Sigma Aldich | R7757 | Retirer les cellules sanguines |
| FBS inactif par la chaleur | Phoenix Scientific | PS100 | Protection des cellules |
| PBS sans Ca+/Mg+ | Thermo Fisher | 10010023 | Enzymes dissoutes/cellules de lavage |
| Aiguille de sécurité multifly 21G ; | Sarstedt | 3051524 | Perfusion corporelle entière |
| 50 mL seringue & nbsp ; | BD | 300866 | Perfusion corporelle entière |
| Antenne de 6 cm | Corning | 430116 | Tissus digestifs |
| Antenne de 10 cm | Corning | 430167 | Tissus digestifs |
| Anticorps de blocage Fc | BD | 553141; RRID : AB_394655 | Cytométrie en flux |
| DAPI | BD | 564907; RRID : AB_2869624 | Cytométrie en flux |
| CD326 | BD | 563478; RRID : AB_2738234 | Cytométrie en flux |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U de l’Iowa-7556 | Lentivirous |
| Cytomètre en flux ZE5 (Yeti) | Bio-Rad | Analyse de cytométrie en flux | |
| Souris KrasLSL-G12D/+ | Laboratoire Jackson | 008179; RRID : IMSR_JAX : 008179 | |
| Souris reporter de TdTomato | Laboratoire Jackson | 007909; RRID : IMSR_JAX : 007909 & nbsp ; |
Références
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Réimpressions et autorisations
