L’étude présente une méthode d’investigation in vitro des infections bactériennes à l’aide d’organoïdes intestinaux dérivés des cellules souches tissulaires. Le protocole décrit comment cultiver et différencier les organoïdes en deux dimensions, les infecter avec des Escherichia coli invasives par adhérents, et évaluer les données clés, notamment la rupture de la barrière épithéliale, l’imagerie d’infection et la réponse de l’ARN épithélial.
Article de méthode
Une culture organoïde bidimensionnelle sur un extrait d’invasine ou de membrane basale pour étudier les interactions hôte-bactérie
Dans cet article
Résumé
Résumé
La technologie organoïde offre une plateforme expérimentale in vitro pour étudier la physiologie humaine en santé et en maladie. Comparés à d’autres systèmes in vitro , tels que les lignées cellulaires ou explants dérivés du cancer, les organoïdes issus des cellules souches tissulaires (TSC) présentent des avantages clés : ils peuvent être étendus indéfiniment tout en maintenant la stabilité génomique et sont susceptibles de la modification CRISPR. Puisque ces organoïdes sont générés à partir de TSC normaux, ils contiennent les types cellulaires de leur tissu d’origine. Cela rend les organoïdes particulièrement précieux pour étudier les interactions entre les bactéries et les cellules humaines différenciées et non tumorales. Les organoïdes intestinaux sont cultivés sous forme de monocouches polarisées bidimensionnelles sur des inserts de culture cellulaire recouverts d’extrait de membrane basale (BME) ou d’invasine, une alternative économique et sans animaux, et peuvent être différenciés en principaux types cellulaires épithéliales intestinaux pour une infection par E. coli pathogène envahissant et adhérent. Les indicateurs clés de l’infection incluent la surveillance de l’expression génique épithéliale par PCR quantitative par transcription inverse (RT-qPCR), la visualisation des interactions bactérie-épithélium par microscopie confocale, et la quantification des ruptures de barrière épithéliale. Le protocole peut être facilement adapté pour étudier d’autres organes et espèces bactériennes, offrant une plateforme polyvalente pour étudier les interactions hôte-microbe chez les organoïdes.
Introduction
L’épithélium intestinal constitue la première ligne de défense contre les bactéries pathogènes présentes dans la lumière de l’intestin. Les modèles in vitro de l’épithélium intestinal ont été largement utilisés pour étudier comment les bactéries interagissent avec les cellules épithéliales, comment ces cellules réagissent à l’infection, et comment les bactéries percent la barrièreépithéliale 1. Ces modèles sont particulièrement précieux pour étudier des agents pathogènes spécifiques à l’humain dans un contexte contrôlé et réductionniste. Historiquement, la biologie de l’infection in vitro s’est appuyée sur des lignées cellulaires dérivées de tumeurs, par exemple les cellules Caco-2, ou sur des explants dérivés du patient maintenus exvivo 2,3. Plus récemment, les organoïdes intestinaux générés à partir de cellules souches des tissus humains sont apparus comme un outil puissant combinant les avantages des deux approches : comme les lignées cellulaires, les organoïdes peuvent être transmis, étendus, cryopréservés, décongelés et génétiquement manipulés ; et comme les explants, ils proviennent de cellules souches non tumorales capables de se différencier en tous les principaux types cellulairesépithéliaux 4,5.
Lorsqu’ils sont intégrés dans une matrice telle que le Matrigel ou l’Extrait de Membrane Basale (EMB), les organoïdes intestinaux humains s’auto-organisent généralement en structures sphériques et polarisées, avec une surface apicale orientée vers l’intérieur et une surface basale orientée vers l’extérieur. Comme la plupart des agents pathogènes intestinaux accèdent aux cellules épithéliales par le côté apical, plusieurs stratégies ont été développées pour exposer cette surface aux bactéries présentes dans lesorganoïdes 4. Une approche consiste à micro-injecter directement des bactéries dans la lumièreorganoïde 6. Un autre consiste à inverser la polarité des organoïdes en les libérant de la matrice extracellulaire, produisant ainsi des organoïdes « apical-hors » ensuspension 7. Une troisième stratégie consiste à dissocier les organoïdes en cellules uniques et à les ensemencer sur des inserts de culture cellulaire pour former des monocouches polarisées bidimensionnelles (feuilles organoïdes 2D) avec le côté apical orienté vers le compartimentsupérieur 8. Les deux premières méthodes présentent des limites importantes : la micro-injection est longue et laborieux, limitant le débit, et les organoïdes à sortie apical ne survivent que quelques jours sans support matriciel et ne peuvent pas êtredifférenciés 1. En revanche, les feuilles organoïdes 2D permettent une expérimentation à haut débit (les bactéries peuvent simplement être ajoutées au compartiment supérieur) et peuvent être maintenues pendant plusieurs semaines tout en se différenciant en principaux types cellulaires épithélialesintestinaux 9.
Contrairement aux lignées cellulaires immortalisées qui s’attachent facilement aux surfaces plastiques, les cellules issues des organoïdes nécessitent un revêtement de plaques pour une adhésion efficace. Le revêtement peut être réalisé à l’aide de la BME10 diluée, ou alternativement à l’aide d’invasine, une protéine bactérienne qui se lie aux inténènes sur les cellulesorganoïdes 11. L’invasine est facile à produire en laboratoire, nettement plus économique que la BME ou le Matrigel, et entièrement sans produits animaux.
Ce protocole décrit l’établissement et la différenciation des organoïdes intestinaux sous forme de monocouches polarisées bidimensionnelles sur des inserts de culture cellulaire recouverts d’invasine ou d’extrait de membrane basale (BME). Les feuilles organoïdes différenciées sont ensuite infectées par l’Escherichia coli adhérente-invasive (AIEC), une souche pathogène associée à la maladie inflammatoire del’intestin 12. Plusieurs relevés d’infection en aval sont présentés pour évaluer les réponses épithéliales et la translocation bactérienne. Étant donné que l’AIEC envahit les cellules épithéliales et perçoit l’épithélium intestinal — un mécanisme censé contribuer à sa pathogenicité — la rupture épithéliale est quantifiée en mesurant les bactéries atteignant la chambre basolatérale de l’insert de culture cellulaire après confirmation de l’intégrité de la barrière par mesure de résistance électrique transépithéliale/transendothéliale (TEER) 13. Des procédures sont également proposées pour fixer et imager les monocouches infectées afin de visualiser l’AIEC intra et extracellulaire, ainsi que pour l’extraction d’ARN afin d’évaluer les réponses transcriptionnelles épithéliales à l’infection. Le protocole complet peut être réalisé en moins de deux semaines et ne nécessite que du matériel de laboratoire couramment disponible, incluant une armoire BSL-2, un microscope confocal et un instrument de PCR quantitative.
Dans l’ensemble, ce protocole offre une méthode rentable, polyvalente et accessible pour étudier l’infection bactérienne de l’épithélium intestinal humain différencié in vitro. Il peut être facilement adapté à d’autres systèmes organoïdes et à d’autres espèces microbiennes, ce qui en fait un modèle utile pour les études de biologie des infections in vitro .
Protocole
Les organoïdes intestinaux humains ont été générés à partir des déchets de patients subissant une chirurgie du cancer colorectal au Centre médical universitaire d’Utrecht (UMCU). Les patients ont donné leur consentement éclairé pour la production de leurs organoïdes, conformément au protocole UPORT Cancer Biobank 21-042, approuvé par le comité d’éthique local pour la biobanque. La figure 1A illustre les 8 sections du protocole. Les détails sur les réactifs et équipements sont listés dans le tableau des matériaux.
1. Revêtement de l’insert de culture cellulaire
- Revêtement avec l’invasine
- Effectuer toutes les interventions à l’intérieur d’une hotte de culture tissulaire dans des conditions stériles.
- Préparez une solution de 5 μg/mL d’invasine dans une solution saline stérile tamponnée phosphate (PBS).
- Ajouter 100 μL de cette solution dans le compartiment supérieur de chaque insert de culture cellulaire polyester de 3 μm placé dans une plaque à 24 puits.
- Assurez-vous que la membrane est entièrement recouverte.
- Couver toute la nuit à 4 °C.
REMARQUE : Évitez de générer des bulles lors de la distribution, car les bulles empêchent un revêtement uniforme.
- Revêtement avec extrait de membrane de socle (alternative)
- Extrait de membrane de dégel sur glace.
- Préparez une solution à 10 % dans du DMEM glacé.
REMARQUE : Gardez la solution froide pour éviter une polymérisation prématurée. - Ajoutez 100 μL de la solution diluée dans le compartiment supérieur de chaque insert de culture cellulaire pore de 3 μm.
- Assurez-vous de couvrir complètement la surface de la membrane.
- Incubez pendant 1 heure à température ambiante.
2. Ensemencement des cellules organoïdes
- Préparation des organoïdes
- Retirer le milieu de culture des plaques organoïdes maintenues en conditions d’expansion (3 à 5 jours après la scission).
- Resuspendez les organoïdes dans 1 mL de DMEM14 glacé.
- Transférez la suspension dans un tube conique de 15 mL contenant 4 mL de DMEM glacé.
REMARQUE : Utiliser environ 1 puits complet d’une plaque à 12 puits pour semer 4 inserts de culture cellulaire.
- Organoïdes de pelletage
- Centrifugez pendant 5 minutes à 500 × g à 4 °C.
- Enlève complètement le surnageant.
- Organoïdes dissociants
- Résuspendez le comprimé dans 3 mL de substitut de trypsine recombinante.
- Pipeter en haut et en bas à l’aide d’une pipette P1000 pour perturber mécaniquement les organoïdes.
- Incubez à 37 °C pendant 15-20 minutes jusqu’à obtenir des cellules individuelles ou de petits groupes (3-4 cellules).
REMARQUE : Ne pas dépasser 20 minutes d’incubation. Pipette toutes les 5 minutes pour faciliter la dissociation. Insérez une pointe P10 à l’intérieur d’une pointe P1000 si une force mécanique supplémentaire est nécessaire.
- Cellules de lavage
- Ajoutez 5 mL de DMEM glacé.
- Centrifugez pendant 5 minutes à 500 × g à 4 °C.
- Retirez le surnageant.
- Préparer la suspension de la cellule
- Resuspendez les cellules dans un milieu d’expansion (100 μL par insertion de culture cellulaire ; voir le tableau 1 pour la composition du milieu d’expansion).
REMARQUE : N’incluez pas d’antibiotiques. Inclure un inhibiteur de la rho kinase pour prévenir l’anoikis. - Comptez les cellules à l’aide d’un compteur cellulaire ou d’un hémocytomètre.
- Ajustez à environ 2 × 10⁶ cellules/mL.
- Resuspendez les cellules dans un milieu d’expansion (100 μL par insertion de culture cellulaire ; voir le tableau 1 pour la composition du milieu d’expansion).
- Ensemencement des inserts de culture cellulaire
- Retirez la solution de revêtement des inserts.
- Ajoutez 100 μL de suspension cellulaire (2 × 10⁵ cellules) dans le compartiment supérieur.
- Ajoutez 500 μL de milieu d’expansion dans le compartiment inférieur.
3. Culture cellulaire, insertion et différenciation
- Incubez à 37 °C avec 5 % deCO2 jusqu’à ce que la confluence soit atteinte (environ 3 jours).
REMARQUE : Rafraîchir le médium dans les deux compartiments tous les 4-5 jours si nécessaire. - Une fois en confluent, lavez les deux compartiments avec du DMEM préchauffé.
- Ajouter un milieu de différenciation de 500 μL (Tableau 2) dans le compartiment inférieur.
- Ajouter 100 μL de DMEM/F12 avancé complété par HEPES et Glutamax (AdvDMEM++) (Tableau 3) dans le compartiment supérieur.
- Incuber pendant 5 jours à 37 °C avec 5 % de CO2.
- Remplacez le média dans les deux compartiments tous les deux jours.
4. Mesure de la résistance électrique transépithéliale/transendothéliale (TEER)
- Stériliser les électrodes TEER à 70 % d’éthanol pendant 15 minutes.
- Rincez les électrodes dans un PBS stérile.
- Insérez l’électrode courte dans le compartiment supérieur et l’électrode longue dans le compartiment inférieur.
REMARQUE : Ne touchez pas la monocouche avec la pointe de l’électrode. - Enregistrez les valeurs de résistance.
- Mesurez la résistance de blank à l’aide d’un insert sans cellules contenant du PBS (100 μL supérieur, 500 μL en dessous).
- Calculer TEER : TEER = (R_cell insertion de culture − R_blank) × surface (cm²)
REMARQUE : Pour les inserts à 24 puits, surface = 0,33 cm².
5. Infection par AIEC
- Préparez la culture bactérienne
- Inoculez l’AIEC fluorescent dans un milieu de 3 mLLB 15.
- Incubez toute la nuit à 37 °C avec des secousses.
ATTENTION : Effectuez toutes les procédures bactériennes dans une hotte BSL-2.
- Préparer l’inoculum
- Centrifugeuse 500 μL de culture pendant 5 minutes à 1500 × g.
- Resuspendre en 1 mL d’AdvDMEM++.
- Mesurer la densité optique (OD).
- Diluez à environ 1 × 10⁸ CFU/mL dans AdvDMEM++.
REMARQUE : OD = 1 correspond à environ 1 × 10⁹ UFC/mL.
- Infection des monocouches
- Remplacez le support dans les deux compartiments.
- Ajouter un milieu de différenciation de 500 μL dans le compartiment inférieur.
- Ajoutez 100 μL de suspension bactérienne dans le compartiment supérieur pour la maladie infectée.
- Ajoutez 100 μL d’AdvDMEM++ dans le compartiment supérieur pour la condition non infectée.
- Incuber à 37 °C, 5 % de CO₂.
6. Évaluation de la rupture de l’épithélium
- À 2,5 h après l’infection, prélever 100 μL dans le compartiment inférieur.
- Diluer dans du PBS et plaquer sur un LB d’agar.
- Ajouter 100 μL de milieu de différenciation frais dans le compartiment inférieur.
- Incubez les plaques toute la nuit à 37 °C.
- Répétez le prélèvement 5 h après l’infection.
- Compter l’unité de formation de colonies (CFU) le lendemain.
- Calculer les UFC par insertion de culture cellulaire : UFC/insertion de culture cellulaire = colonies × 5 facteur de dilution ×
7. Infection par image
- À 5 heures après l’infection, retirez le substrat et fixez avec 4 % de paraformaldéhyde.
ATTENTION : Le paraformoldéhyde est toxique et volatile. Manipulez à l’intérieur d’une hotte en portant des gants. - Fixe pendant 30 minutes.
- Laver trois fois avec du PBS.
- Retirez l’insert membranaire et placez les cellules orientées vers le haut dans une plaque de puits.
- Colorez avec de la phalloïdine fluorescente pendant 1 à 2 heures.
- Laver trois fois avec du PBS.
- Teindre les noyaux avec du DAPI pendant 10 minutes.
- Laver trois fois avec du PBS.
- Montez sur une glissière en verre avec un support de montage et appliquez une gaine de protection.
- Scellez avec du vernis à ongles.
- Acquérir des images confocales de DAPI, d’actine et de canaux bactériens.
- Acquérir une pile z couvrant les surfaces basales à apicales avec des intervalles de 1 μm.
- Images ouvertes aux Fidji.
- Sélectionnez l’image → z projetez → intensité moyenne.
- Sélectionnez les piles d’images → → les vues orthogonales pour visualiser les coupes transversales.
8. Analyse de la réponse épithéliale
- À 5 heures après l’infection, retirez le substrat.
- Ajoutez un tampon de lyse de 350 μL dans le compartiment supérieur.
- Pipette pour lyser les cellules et transférer dans un tube sans RNase sur glace.
- Effectuez l’extraction d’ARN selon les instructions du kit.
- Mesurer la concentration d’ARN et normaliser les échantillons.
- Effectuer la transcription inverse.
- Effectuer la PCR quantitative en suivant les instructions du fabricant (les séquences d’amorce pour le TNFα et le gène de référence β-actine sont fournies dans le tableau 4).
Résultats
Après avoir atteint la confluence, les cellules intestinales sur l’insert de culture cellulaire présentaient un motif en mosaïque (Figure 1B) sans espaces visibles dans la monocouche. Après différentiation, la tension épithéliale a été évaluée en mesurant la résistance électrique transépithéliale (TEER) (Figure 1C). Des valeurs TEER supérieures à 500 Ω·cm² étaient compatibles avec la formation d’une monocouche épithéliale serrée¹⁶.
La quantité d’AIEC détectée dans le compartiment basolatéral a augmenté au fil du temps, reflétant la brèche bactérienne de la barrière épithéliale (Figure 2A,B). L’absence d’AIEC dans le compartiment inférieur indiquerait un échec de la translocation bactérienne.
Le flux de travail pour visualiser l’infection est résumé à la Figure 3A. L’imagerie confocale a démontré la formation d’une monocouche polarisée, avec des noyaux localisés à la base et un enrichissement apical du réseau d’actine (Figure 3B). Un grossissement plus élevé a révélé à la fois l’AIEC intracellulaire et des bactéries extracellulaires attachées à la membrane apicale (Figure 3C).
L’analyse RT-qPCR a montré une régulation à la hausse de l’expression de TNFα en réponse à l’infection par AIEC (Figure 4A,B), confirmant l’activation d’une réponse inflammatoire épithéliale.
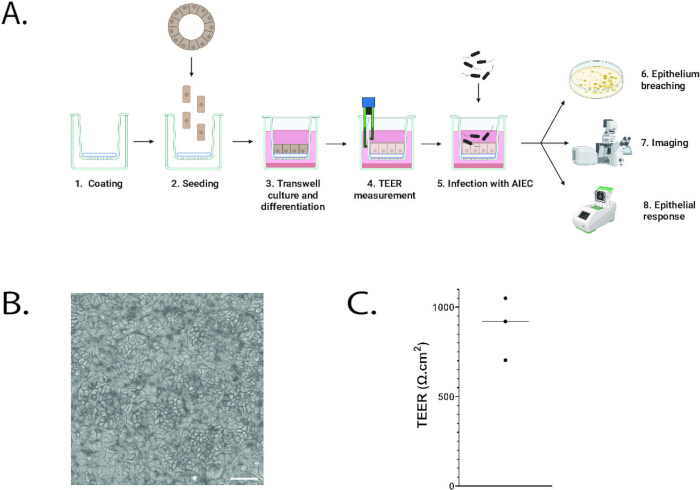
Figure 1 : Aperçu du protocole. (A) Schémas du protocole. (B) Image en champ clair des cellules organoïdes intestinales cultivées et différenciées sur un insert de culture cellulaire recouvert d’invasion. Barre d’échelle : 50 μm. (C) Résistance électrique transépithéliale/transendothéliale (TEER) des organoïdes intestinaux cultivés et différenciés sur des inserts de culture cellulaire recouverts d’invasion. Chaque point montre une expérience indépendante. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
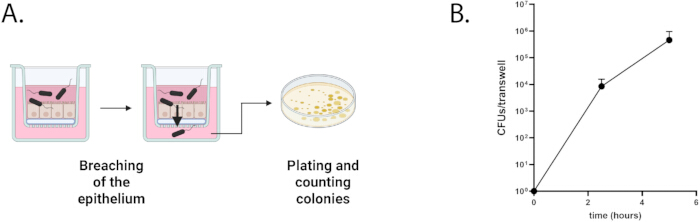
Figure 2 : Évaluation des schémas de rupture de l’épithélium (A) du protocole. (B) Quantification des unités formant des colonies (UFC) de l’AIEC au fil du temps dans le compartiment inférieur de l’insert de culture cellulaire. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
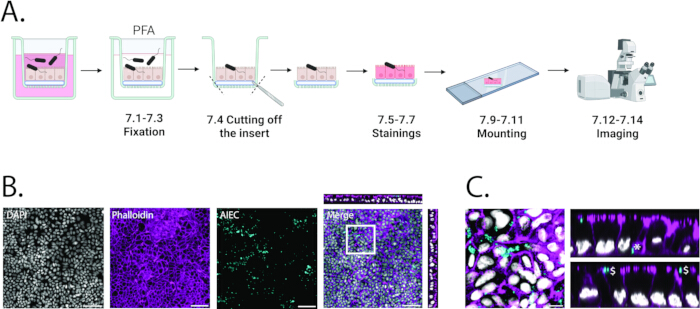
Figure 3 : Imagerie de l’infection. (A) Schémas du protocole. (B) Imagerie confocale des organoïdes intestinaux infectés par l’AIEC fluorescente pendant 5 heures. Gris : DAPI. Magenta : phalloïde. Cyan : AIEC. Barre d’échelle : 50 μm. Des vues orthogonales de l’image fusionnée sont affichées en haut et à droite. (C) Grossissement élevé du carré blanc en B. Gris : DAPI. Magenta : phalloïde. Cyan : AIEC. Barre-échelle : 10 μm. Les vues orthogonales sont affichées à droite. L’AIEC intracellulaire (*) et l’AIEC extracellulaire attachés à la membrane apicale des cellules épithéliales ($) sont mis en évidence. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
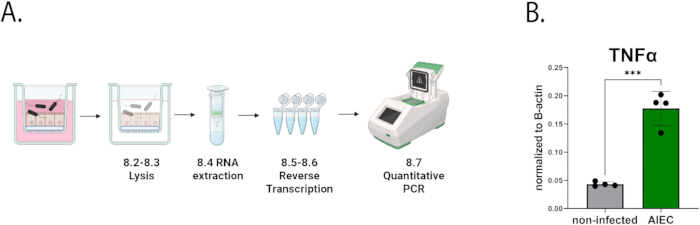
Figure 4 : Analyse de la réponse épithéliale. (A) Schémas du protocole. (B) Expression de TNFα par les organoïdes intestinaux après 5 heures d’infection par AIEC (vert) versus témoin non infecté (gris). L’expression de TNFα a été normalisée en expression de B-actine en utilisant la formule 2-(Cq(TNFα)-Cq(β-actine)). n=4 se réplique. L’analyse statistique a été réalisée à l’aide d’un test t de Student non apparié. P < 0,001. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
| Composant | Concentration |
| DMEM avancé | 1X finale |
| HEPES | 1 % en valeur |
| Glutamax | 1 % en valeur |
| Porteuse Wnt | 0,5 nM |
| R-spo1 UPE | 2 % en valeur |
| Noggin UPE | 1 % en valeur |
| B27 sans vitamine A | 2 % en valeur |
| N-acétylcystéine | 1,25 mM |
| Nicotinamide | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (inhibiteur TGF-β) | 0,5 μM |
| SB202190 (inhibiteur de p38) | 3 μM |
| Prostaglandine E2 | 1 μM |
| Inhibiteur de la rho kinase | 10 μM |
Tableau 1 : Milieu d’expansion pour organoïdes intestinaux humains. Composition du milieu d’expansion utilisé pour le maintien et la prolifération des organoïdes intestinaux humains.
| Composant | Concentration |
| DMEM avancé | 1X finale |
| HEPES | 1 % en valeur |
| Glutamax | 1 % en valeur |
| R-spo1 UPE | 2 % en valeur |
| Noggin UPE | 1 % en valeur |
| B27 sans vitamine A | 2 % en valeur |
| NAC | 1,25 mM |
| hEGF | 50 ng/mL |
Tableau 2 : Milieu de différenciation pour les organoïdes intestinaux humains. Composition du milieu de différenciation utilisé pour favoriser la maturation épithéliale des monocouches organoïdes intestinales humaines.
| Composant | Concentration |
| DMEM avancé | 1X finale |
| HEPES | 1 % en valeur |
| Glutamax | 1 % en valeur |
Tableau 3 : ADV DMEM++ pour l’infection. Composition d’un milieu avancé DMEM/F12 complété en HEPES et Glutamax (ADV DMEM++) utilisés lors des tests d’infection bactérienne.
| Nom | Séquence |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-actine F | TGACGTTGACATCCGTAAAG |
| β-actine R | GAGGAGCAATGATCTCTCT |
Tableau 4 : Amorces pour qPCR de TNFα. Montre les séquences d’amorce utilisées pour l’analyse quantitative par PCR du TNFα en utilisant β-actine comme gène de référence.
Discussion
Cette étude a établi un protocole pour étudier l’infection bactérienne des cellules épithéliales intestinales humaines à l’aide d’organoïdes dérivés de TSC cultivés sur des inserts en culture cellulaire. Les inserts avec des pores de 3 μm permettaient une attache cellulaire efficace et une translocation bactérienne, tandis que des pores de 0,4 μm ne permettent pas le passage par AIEC, ce qui correspond à la taille approximative de 1 μm d’E. coli. Aucune translocation de cellules organoïdes à travers des pores de 3 μm n’a été observée, probablement en raison de leur phénotype épithélial et non invasif.
Plusieurs variables expérimentales étaient cruciales pour la reproductibilité, notamment l’attachement cellulaire efficace, la densité d’ensemencement appropriée et la confluence complète avant l’infection. Les cellules épithéliales issues des organoïdes n’adhèrent pas au plastique non revêtu, ce qui rend le revêtement essentiel. L’EMB a offert une efficacité d’attachement constamment élevée. Le revêtement invasin a donné des résultats comparables et représente une alternativerentable 11, bien qu’il doive être produit en interne. Le revêtement au collagène a également été proposé comme alternative17.
Les conditions de croissance bactérienne influencent fortement l’efficacité des infections. Les souches d’E. coli poussent bien en DMEM ; cependant, les antibiotiques résiduels peuvent inhiber la prolifération. Dans des conditions optimales, les cultures infectées présentent généralement une turbidité accrue par rapport aux témoins, et la croissance bactérienne peut être confirmée en regroupant le contenu du compartiment apical.
La stratégie d’imagerie a permis de visualiser à la fois des bactéries intracellulaires et extracellulaires en ciblant l’AIEC exprimant un fluorophore sous un promoteur constitutif (par exemple, en utilisant le plasmide pMB1-spect-PthrC-eGFP). Des méthodes alternatives permettent la détection sélective des bactéries intracellulaires, notamment la coloration par immunofluorescencedifférentielle 18 ou les rapporteurs exprimés à des stades définis de l’invasion19. Les tests de protection contre la gentamicine offrent une approche quantitative supplémentaire20.
Ce modèle est intentionnellement réducteur et se concentre sur les interactions directes entre les bactéries et l’épithélium intestinal. Il permet d’étudier l’infection dans une monocouche épithéliale différenciée sans types cellulaires in vivo supplémentaires. Le milieu de différenciation induisait principalement la différenciation des entérocytes et des cellulesgobelets 21, mais peut être modifié pour modifier la composition épithéliale22,23. La complexité du système peut être augmentée par la co-culture de cellules immunitaires ou stromales dans le compartimentbasal 24.
Le système ne reproduit pas l’architecture tridimensionnelle de la muqueuse intestinale. Les plateformes organ-on-chip surpassent certaines limitations structurelles25 mais nécessitent une complexité technique et des ressources plus importantes. De plus, le modèle est mieux adapté aux infections aiguës, car la prolifération bactérienne limite les expériences à environ 8 heures. Des systèmes plus complexes, tels que les plateformes microfluidiques permettant un échange continu de milieux, sont nécessaires pour étudier les infections chroniques invitro 26.
Des systèmes d’infection organoïdes similaires basés sur des cultures cellulaires par insertion ont été appliqués sur plusieurs tissus et agents pathogènes, notamment des organoïdes stomacaux infectés par Helicobacter pylori27,28, des organoïdes intestinaux infectés par Shigella29, des organoïdes des voies respiratoires infectés par Pseudomonas aeruginosa10, et des organoïdes urothéliaux infectés par Enterococcus faecalis30. Ce protocole offre donc un cadre polyvalent pour étudier les interactions épithéliales-bactériennes entre les systèmes d’organes, à condition que les besoins spécifiques de croissance aux agents pathogènes soient pris en compte.
La technologie organoïde fournit des modèles humains physiologiquement pertinents pour étudier les interactions hôte-pathogène dans les cellules épithéliales nontransformées 4,5. Compte tenu du fardeau croissant des infections résistantes aux antibiotiques et de leur association avec les maladies inflammatoires chroniques et le cancer, de tels systèmes in vitro représentent des outils précieux pour la recherche mécanistique et translationnelle.
Déclarations de divulgation
H.C. est l’inventeur de plusieurs brevets liés à la technologie organoïde. La divulgation complète de H.C. est donnée à https://www.uu.nl/staff/JCClevers/.
Remerciements
Les auteurs remercient Utrecht Portal for Organoid Technology (UPORT), en particulier Anneta Brousali, Jorieke Salij et Arnold Binda, ainsi que les patients et chirurgiens du University Medical Center Utrecht pour la fourniture de tissus du côlon. Les auteurs remercient également Nicolas Barnich d’avoir partagé la souche AIEC LF82. Ce travail a été soutenu par une subvention CRUK OPTIMISTIC (C10674/A27140). TG a été financé par le programme de recherche et d’innovation Horizon 2020 de l’Union européenne dans le cadre de l’accord de subvention Marie Sklodowska-Curie 101107988. Les schémas étaient créés à l’aide de BioRender (https://www.biorender.com/).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| A83-01 (inhibiteur TGF-& bêta) | Tocris | 2939 | |
| Escherichia coli LF82 envahissante par adhérence | cadeau généreux de Nicolas Barnich | ||
| DMEM avancé/F12 | Invitrogen | 12634-010 | |
| B27 sans vitamine A | Invitrogen | 12587010 | |
| Kit cDNA | Biosystèmes appliqués | 4387406 | Le manuel est disponible ici : https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Compteur cellulaire | DeNovix | H2796 | |
| Compteur cellulaire | Leica | Stellaris | |
| Gaines de couverture 24 mm x 50 mm | Menzel-Glä ; Zer | BB024050S1 | |
| Extrait de membrane du socle Cultrex (BME) | R& D Systems, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| Scalpel jetable stérile N° ; 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fidji | Fidji | Les Fidji sont en libre accès et peuvent être téléchargées ici : https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasine | sur mesure selon Wijnakker et al. PNAS 2024 | ||
| LB | Thermofisher | CM0996 | |
| LB Agar | Thermofisher | CM1116 | |
| Chambre de Malassez | KOVA | 87144E | |
| Lames de microscope | Skycraft | 18901 | |
| Voltohmphmètre à cellules de Milli (mesure TEER) | Merck | MERS00002 | |
| Milieu de montage | Laboratoires Vectors | Vectashield H-1000-10 | |
| N-Acétylcystéine | Sigma-Aldrich | A9165 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| Noggin UPE | IPA Therapeutics | N002 | |
| Solution de paraFormaldéhyde 4 % | Sigma-Aldrich | 1.00496 | |
| Phalloidine 647 | Sigma-Aldrich | 65906-10NMOL | |
| plasmide pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| Prostaglandine E2 | Tocris | 2296 | |
| Machine qPCR | Biorad | C1000-Touch | |
| Inhibiteur de la rho kinase | AbMole | M1817 | |
| Kit d’extraction d’ARN | Qiagen | 74534 | Le manuel est disponible ici : https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA Therapeutics | R001 | |
| SB202190 (inhibiteur de p38) | Sigma-Aldrich | S7076 | |
| Spectinomycine | Sigma-Aldrich | S9007 | |
| Plaque de suspension pour la culture organoïde | Greiner | 665102 | |
| SYBR vert | Biorad | 170-8887 | Le manuel est disponible ici : https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Thermocycleur | Biorad | T100 | |
| Insertion en culture cellulaire | Transwells 24w 3 & micro ; m pores, Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Porteuse Wnt | U-Protein Express | Ordre personnalisé | ; https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Références
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Réimpressions et autorisations
