SNRNP70 montre un potentiel comme marqueur diagnostique de l’arthrose (OA), avec une expression systématiquement plus faible dans les tissus OA que chez les témoins. Il peut également exercer des effets anti-inflammatoires, suggérant une voie thérapeutique. De futures études mécanistes pourraient contribuer à faire progresser la gestion de l’OA.
Article de recherche
SNRNP70 est associée aux signatures focales liées aux adhérences et à l’inflammation des chondrocytes dans l’arthrose
* These authors contributed equally
Dans cet article
Résumé
Résumé
L’arthrose (OA) est une maladie dégénérative des articulations caractérisée par une dégradation progressive du cartilage et une inflammation synoviale, mais les principaux facteurs moléculaires de sa pathogenèse restent incomplètement compris. Ici, l’examen a été mené pour déterminer si SNRNP70 — un composant central du complexe snRNP U1 essentiel au pré-sépissage d’ARNm — contribue à la progression de l’ARO. L’analyse de dix ensembles de données transcriptomiques publics a montré que SNRNP70 était systématiquement sous-régulée dans le cartilage de l’arthrose par rapport aux témoins normaux. Une méta-analyse a également indiqué une bonne précision diagnostique pour l’arthrose, avec un AUC regroupé de 0,92. Dans les chondrocytes primaires de rat stimulés par l’interleukine-1β (IL-1β), SNRNP70'expression était supprimée dans des conditions inflammatoires. L’expression forcée de SNRNP70 a non seulement réduit la production de médiateurs pro-inflammatoires (IL-6 et MMP-13), mais a également restauré des composants clés de la matrice extracellulaire (ECM) (ACAN et COL2A1) et favorisé la migration des chondrocytes et la cicatrisation des plaies. La corrélation de Pearson, suivie de l’enrichissement KEGG, indiquait que la signalisation focale d’adhésion était une voie associée à la régulation SNRNP70 . Les expériences de sauvetage ont soutenu l’idée que SNRNP70 améliore la capacité réparatrice des chondrocytes, du moins en partie, en activant cette voie. Ensemble, ces résultats suggèrent que SNRNP70 pourrait servir de régulateur jusque-là inconnu de la fonction inflammatoire des chondrocytes et de l’homéostasie du cartilage. Ils évoquent également la possibilité d’un lien mécanistique entre l’activité des spliceosomes et la synthèse matricielle médiatisée par adhésion focale, justifiant une évaluation approfondie de SNRNP70 comme marqueur diagnostique candidat ou cible thérapeutique dans l’OA.
Introduction
L’arthrose (ARO) représente une affection articulaire répandue qui touche principalement les personnes âgées de 65 ans et plus, touchant environ 7 % de la population mondiale 1,2. De manière étonnante, entre 1990 et 2019, la prévalence mondiale de l’arthrose a explosé de 113,25 %, passant de 247,51 millions de cas à 527,81millions 3. L’arthrope se caractérise principalement par la progression insidieuse de modifications dégénératives dans les tissus articulaires, avec une dégradation du cartilage et une inflammationsynoviale 4,5,6. Notamment, la surcharge mécanique et le passage inexorable du temps ont été établis comme les deux facteurs de risque les plus marqués contribuant à sapathogenèse 7,8. De plus, un nombre croissant d’études soulignent le rôle central joué par la dégénérescence ménisscale en tant qu’élément intégral de la pathologie complexe del’OA 9. Des études antérieures ont démontré de manière convaincante que les lésions méniscales touchent 68 % à 90 % des patients atteints d’artrose10,11.
Au niveau moléculaire, un nombre croissant de preuves indique que l’arthrope n’est pas seulement une conséquence du stress biomécanique et du vieillissement, mais aussi une maladie provoquée par des altérations complexes de la régulation des gènes et du contrôlepost-transcriptionnel 12,13,14. Parmi ces mécanismes de travail, le spliceosome a suscité une attention croissante dans divers contextes pathologiques. Fait intriguant, bien qu’il ait fait l’objet de recherches approfondies sur la pathogenèse de l’inflammation, le rôle du spliceosome dans l’arthrose est resté notablement peuétudié 15,16,17. En essence, le spliceosome peut être conceptualisé comme un ribozyme métallique dirigé parune protéine 18,19. Parmi ces mécanismes, le splicing de l’ARN est devenu un déterminant critique du phénotype des chondrocytes et de l’homéostasie de la MEC. Un épissage précis garantit l’expression correcte des protéines structurelles et de signalisation essentielles à l’intégrité du cartilage, tandis que le splicing aberrant peut perturber le renouvellement des ECM, favoriser les voies cataboliques et accélérer la dégénérescencecartilagineuse 20,21,22.
Des études récentes ont mis en avant les protéines spliceosomais comme régulateurs clés de l’homéostasie des tissus articulaires, pourtant le rôle de ces protéines dans la pathogenèse de l’AO reste largementinexploré 23. En particulier, SNRNP70, un composant central du petit complexe ribonucléoprotéique nucléaire U1, régit la reconnaissance des sites de sépissage 5′ lors du prétraitement de l’ARNm et influence ainsi l’inclusion ou l’exclusion d’exonsspécifiques 24,25. La dysrégulation de la SNRNP70 a été impliquée dans diverses pathologies, mais sa contribution à la dégénérescence du cartilage n’a pas été caractérisée auparavant. Une cible potentielle de la régulation médiée par les spliceosomes est la quinase d’adhésion focale (FAK), une molécule centrale de signalisation qui intègre des indices mécaniques et biochimiques pour contrôler l’adhésion des chondrocytes, la dynamique du cytosquelette, la survie et la méchantransduction26. L’activité accrue des FAK a été associée à une signalisation focale accrue, ce qui favorise la synthèse de la ME et la régulation à la hausse des protéines clés spécifiques au cartilage, notamment l’aggrecan (ACAN) et le collagène de type II alpha1 (COL2A1)27,28. Ces protéines sont indispensables pour maintenir la structure et la fonction du cartilage, et leur régulation à la baisse est une caractéristique de la progression de l’arthrose.
Malgré les avancées dans la recherche transcriptionnelle et épigénétique en OA, le rôle de la régulation FAK médiée par les spliceosomes dans le contrôle de la signalisation focale par adhésion et du métabolisme de la MCE reste peu défini. Sur la base de ces observations, il a été raisonné que SNRNP70 pouvait influencer le comportement des chondrocytes et l’homéostasie de la CUM en modulant le splicing alternatif FAK et, en aval, la signalisation focale d’adhésion. Pour tester cette idée, la première question était de savoir si SNRNP70'expression est modifiée dans l’OA ; Son potentiel en tant que marqueur diagnostique a été évalué, et ses liens possibles avec les réponses inflammatoires et les voies focales liées aux adhérences dans les chondrocytes ont été explorés.
Protocole
Le protocole d’étude animale a été approuvé par le Comité d’éthique de l’Université médicale du Guangxi et du premier hôpital affilié à l’Université médicale du Guangxi (code de protocole 202109001, NO.2022-KY-E-252).
ATTENTION : Toutes les procédures doivent respecter les directives institutionnelles et nationales de soins aux animaux. Le personnel formé doit porter des EPI (gants, masques, blouses de laboratoire) lors de la manipulation d’animaux ou d’échantillons. Les interventions chirurgicales nécessitent une anesthésie adéquate et une surveillance postopératoire. Signalez rapidement les événements indésirables (saignements, infections, changements de comportement). Éliminez correctement les carcasses et les matériaux contaminés. Effectuez des inspections régulières des installations pour garantir la conformité. Les détails commerciaux des animaux, réactifs et équipements utilisés dans cette étude sont listés dans le tableau des matériaux.
Patients et ensembles de données sur l’expression génique
Pour étudier les schémas d’expression de SNRNP70 dans l’OA, des ensembles de données de séquençage ARN (RNA-seq) et de microarrays accessibles publiquement ont été systématiquement récupérés depuis la base de données Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. La stratégie de recherche incorporait les mots-clés suivants : « SNRNP70 OR RPU1 OU SNP1 OU U1AP OU U170K OU U1RNP OU RNPU1Z OU SNRP70 OU U1-70K » combiné avec « OA ». Les critères d’inclusion ont été définis comme suit : (i) ensembles de données dérivés d’échantillons humains ; (ii) des études spécifiquement axées sur l’arthrose, excluant la polyarthrite rhumatoïde et d’autres maladies inflammatoires des articulations ; (iii) la disponibilité d’au moins trois réplications biologiques indépendantes dans les groupes OA et contrôles normaux (NC), permettant ainsi le calcul des différences moyennes standardisées (DMS). Flux de traitement des données : Après identification des ensembles de données éligibles, les données brutes d’expression et les métadonnées cliniques correspondantes ont été téléchargées. Pour les ensembles de données microarray, les données au niveau de la sonde étaient normalisées à l’aide de l’algorithme robuste multi-array average (RMA), et les sondes étaient annotées en symboles officiels de gènes à l’aide des fichiers d’annotation de la plateforme. Pour les ensembles de données RNA-seq, les comptages bruts ont été convertis en valeurs de transcripts par million (TPM), puis transformés en log2 pour assurer la comparabilité entre ensembles de données. Lorsque plusieurs sondes correspondaient au même gène, la sonde avec la plus grande variance d’expression entre les échantillons était conservée. Contrôle qualité et harmonisation : Pour minimiser les effets de lot entre différentes études, la fonction ComBat du package « sva » R a été appliquée. L’analyse en composantes principales (ACP) a été réalisée avant et après la correction afin d’évaluer l’efficacité de l’élimination par effet de lot. Les ensembles de données présentant une qualité médiocre, des annotations incomplètes ou ne distinguant pas les groupes OA et NC ont été exclus de l’analyse ultérieure.
Identification de SNRNP70 exprimées différemment dans l’arthrose et les tissus cartilagineux normaux
Pour évaluer l’expression différentielle de la SNRNP70 entre l’OA et les tissus cartilagineux (NC) normaux, une approche analytique en plusieurs étapes a été employée. Premièrement, les données d’expression pour SNRNP70 ont été extraites des ensembles de données disponibles. Des comparaisons statistiques entre les groupes OA et NC ont été réalisées à l’aide du test t de Student afin de déterminer si les niveaux d’expression moyens différaient significativement. Pour évaluer davantage la puissance discriminatoire de la SNRNP70, des courbes de caractéristique de fonctionnement du récepteur (ROC) ont été générées à l’aide de GraphPad Prism 8.0 et de la plateforme Sangerbox (http://vip.sangerbox.com/). La surface sous la courbe (AUC) a été calculée pour quantifier l’efficacité diagnostique des niveaux d’expression SNRNP70 .
Ensuite, une méta-analyse a été réalisée à l’aide de Stata 14.0 pour intégrer les résultats à travers plusieurs ensembles de données. L’hétérogénéité statistique a été évaluée à l’aide du test Q de Cochran et de la statistique I2 . Lorsque l’hétérogénéité était faible (p > 0,01 et I2 < 50 %), un modèle à effets fixes était appliqué ; sinon, un modèle à effets aléatoires a été adopté. La différence moyenne standardisée (DMS) avec son intervalle de confiance (IC) correspondant à 95 % a été calculée pour quantifier l’expression différentielle SNRNP70 entre les tissus OA et NC. Pour des raisons de précision diagnostique, une méta-analyse diagnostique a été réalisée à l’aide du module Midas dans Stata. Cette analyse a estimé la sensibilité et la spécificité, le rapport de vraisemblance positive (PLR), le rapport de vraisemblance négatif (NLR) et le rapport des chances diagnostiques (DOR) pour SNRNP70. De plus, une courbe de caractéristique de fonctionnement du récepteur (sROC) a été construite pour fournir une évaluation globale des performances diagnostiques. Enfin, des analyses de sensibilité ont été réalisées en excluant séquentiellement les ensembles de données individuels afin d’évaluer la robustesse et la stabilité des résultats regroupés. Le biais potentiel de publication a été évalué à l’aide du test d’asymétrie du diagramme d’entonnoir de Deeks. Grâce à ce cadre analytique intégré, les schémas d’expression et le potentiel diagnostique de la SNRNP70 dans les tissus OA par rapport aux tissus NC ont été systématiquement évalués.
Isolement cellulaire et culture
Les chondrocytes primaires ont été isolés du cartilage articulaire des rats de Sprague–Dawley postnatals du jour 2. Un total de six rats nouveau-nés ont été utilisés pour chaque isolation. Comme les animaux ont été prélevés à un stade postnatal précoce, le sexe n’a pas été déterminé. Pour chaque préparation cellulaire indépendante, les tissus cartilagineux des six rats ont été prélevés et regroupés avant la culture. Chaque préparation de chondrocytes isolée indépendamment — dérivée d’un ensemble distinct d’animaux — était traitée comme une seule réplique biologique. Les réplications techniques, y compris les puits répétés ou les réactions qRT-PCR répétées à partir de la même préparation cellulaire, n’étaient pas considérées comme des réplications biologiques indépendantes.
En résumé, les rats nouveau-nés ont été euthanasiés dans des conditions stériles, et les articulations du genou ont été disséquées pour exposer le cartilage articulaire. Le tissu cartilage était soigneusement séparé de l’os sous-chondral à l’aide de ciseaux microchirurgicaux, réduit en fragments d’environ 1 mm³, puis digéré séquentiellement avec des enzymes. Les fragments de tissu ont d’abord été incubés avec 0,25 % de trypsine–EDTA pendant 30 minutes à 37 °C afin d’éliminer le tissu conjonctif résiduel. Après lavage avec du sérum physiologique tamponné phosphate, les fragments restants ont été digérés avec 0,2 % de collagénase de type II dans du DMEM sans sérum pendant 4 à 6 heures à 37 °C avec une légère agitation. La suspension cellulaire résultante a été filtrée à travers une tamoire cellulaire de 70 μm, centrifugée à 300 × g pendant 5 minutes, puis resuspendue dans du DMEM complet complété par 10 % de sérum fœtal bovin, 100 U/mL de pénicilline et 100 μg/mL de streptomycine. Les cellules ont été ensemencées dans des fioles de culture et maintenues à 37 °C dans un incubateur humidifié avec 5 % de CO₂. Le médium était changé tous les 2 à 3 jours. Seuls des chondrocytes de passage 1 ou 2 ont été utilisés pour les expériences ultérieures afin de minimiser la dédifférenciation.
L’identité et la pureté des chondrocytes ont été confirmées avant utilisation expérimentale. Morphologiquement, les cellules primaires montraient une apparence typique de chondrocytes polygonals ou de type pavé sous microscopie à contraste de phase. Au niveau moléculaire, l’identité des chondrocytes a été vérifiée par l’expression de marqueurs associés au cartilage, dont COL2A1 et ACAN, à l’aide d’un Western blot. Pour le modèle inflammatoire in vitro , les chondrocytes primaires ont été stimulés avec de l’interleukine-1β (IL-1β) recombinante de rat à 10 ng/mL pendant 48 heures. Des cellules non traitées cultivées dans des conditions identiques servaient de groupe témoin normal. Pour SNRNP70 expériences de surexpression, les chondrocytes issus de préparations biologiques indépendantes ont été transfectés séparément, et chaque réplication biologique a été traitée indépendamment lors de la transfection, de la stimulation de l’IL-1β, de l’extraction ARN/protéine et de l’analyse statistique.
PCR quantitative en temps réel (qRT-PCR)
L’ARN total a été isolé à partir de cultures de chondrocytes subconfluentes (~80 % de confluence) à l’aide du kit RNAfast200. La pureté de l’ARN a été évaluée sur un NanoDrop 2000, acceptant uniquement des échantillons avec un rapport A260/280 de 1,8–2,0, et l’intégrité a été confirmée par électrophorèse en gel d’agarose à 1 %. L’ADNc de première brin a été transcrit en revers à partir de 1 μg d’ARN total à l’aide du kit qPCR RT Kit dans une réaction de 20 μL contenant des amorces et dNTP aléatoires. Le profil thermique pour la transcription inverse était de 42 °C pendant 30 minutes, suivi de 95 °C pendant 5 minutes. La qPCR a été réalisée avec un prémix à base de SYBR Green sur un système de PCR en temps réel. Chaque réaction de 20 μL consistait en 10 μL de SYBR Green Master Mix, 0,5 μL de amorces avant et arrière (10 μM), 2 μL d’ADNc, et 7 μL d’eau sans nucléase. Les conditions de vélo étaient : 95 °C pendant 30 s, puis 40 cycles de 95 °C pendant 5 s et 60 °C pendant 30 s. Une analyse de la courbe de fusion a été réalisée après amplification pour vérifier la spécificité d’un seul produit. Le GAPDH servait de référence interne, et l’expression relative était calculée par la méthode 2−ΔΔCt . Des réactions ont été réalisées en triple exemplaire avec trois réplications biologiques indépendantes. Les séquences d’amorces sont listées dans le tableau 1.
Tache occidentale
L’expression protéique d’ACAN, COL2A1 et MMP13 a été évaluée dans les chondrocytes après traitement à IL-1β et SNRNP70 surexpression. Les cellules ont été lavées deux fois avec du sérum tampon phosphate glacé (PBS) et lysées dans un tampon RIPA contenant des inhibiteurs de protéase et de phosphatase. Les lysats ont été incubés sur glace pendant 30 minutes avec des vortex périodiques, puis centrifugés à 12 000 × g pendant 15 minutes à 4 °C. Les concentrations de protéines dans les surnatants éliminés ont été déterminées à l’aide d’un kit de BCA. Des quantités égales de protéines (30 μg par voie) ont été séparées par 10 % de SDS-PAGE et transférées dans les membranes PVDF par transfert humide. Les membranes ont été bloquées avec 5 % de lait écrémé dans TBST à température ambiante pendant 1 heure, puis sondées toute la nuit à 4 °C avec des anticorps primaires contre l’ACAN (1:1000), COL2A1 (1:1000) ou MMP13 (1:1000). Après trois lavages TBST (10 min chacun), les membranes ont été incubées avec des anticorps secondaires conjugués à HRP (1:5000) pendant 1 heure à température ambiante. Le signal a été développé à l’aide d’un réactif ECL et capturé sur un système ChemiDoc XRS+. La densitométrie en bande a été réalisée avec ImageJ, et tous les signaux protéiques cibles ont été normalisés en GAPDH comme contrôle de charge. Les données sont présentées en termes de niveaux relatifs de protéines par rapport au groupe témoin.
Transfection
Les chondrocytes ont été transfectés avec un plasmide de surexpression SNRNP70 (OE-SNRNP70) une fois que les cultures ont atteint environ 80 % de confluence. Pour la transfection, les cellules ont été ensemées en plaques à 6 puits à 2 × cellules 10⁵ par puits et laissées à s’attacher toute la nuit dans un milieu de croissance standard (DMEM complété avec 10 % de sérum bovin fœtal et 1 % de pénicilline/streptomycine) à 37 °C dans 5 % de CO₂. Les transfections ont été effectuées avec LipoFiter 3.0 selon les instructions du fabricant. En résumé, 2 à 3 μg d’ADN plasmidique par puits ont été dilués dans 100 μL de milieu sans sérum et mélangés avec la quantité appropriée de réactif lipidique. Les complexes ADN-lipides ont été incubés pendant 15 à 20 minutes à température ambiante pour permettre la formation des complexes, puis délicatement ajoutés à chaque puits contenant des chondrocytes dans un milieu frais sans sérum. Après 6 heures, le milieu a été remplacé par un milieu de croissance complet afin de réduire la cytotoxicité.
L’efficacité de la transfection et l’expression de SNRNP70 ont été évaluées 48 à 72 heures après la transfection. SNRNP70 niveaux d’ARNm ont été mesurés par PCR quantitative en temps réel (qRT-PCR), avec le GAPDH comme contrôle interne. L’expression des protéines a été évaluée à l’aide du Simple Western Automated Western Blot System selon le protocole du fabricant. En résumé, des lysats cellulaires ont été préparés, les concentrations de protéines mesurées, et les échantillons chargés sur des cartouches capillaires pour une séparation automatisée et une immunodétection avec des anticorps anti-SNRNP70. L’efficacité de la transfection a été calculée en comparant l’expression SNRNP70 dans les cellules transfectées par SNRNP70-oe à celle des cellules témoins transfectées avec le vecteur vide.
Immunofluorescence
L’immunofluorescence a été utilisée pour examiner les niveaux de protéines IL-6 et MMP-13 dans les chondrocytes oe-SNRNP70 après stimulation d’IL-1β. En résumé, les cellules ont été ensemencées sur des bâtons de verre stériles dans des plaques à 24 puits et cultivées dans des conditions standard jusqu’à atteindre une confluence de 70 à 80 %. Ils ont ensuite été fixés avec du paraformoldéhyde à 4 % pendant 15 minutes à température ambiante et lavés trois fois avec du PBS. Pour la perméabilisation, un taux de 0,1 % de Triton X-100 dans PBS a été appliqué pendant 10 minutes à température ambiante. Les sites de liaison non spécifiques ont été bloqués en incubant les cellules dans l’albumine sérique bovine (BSA) à 5 % dans le PBS pendant 1 heure à température ambiante.
Après le blocage, les cellules ont été incubées toute la nuit à 4 °C avec des anticorps primaires contre l’IL-6 et le MMP-13 (dilués à 1:200 dans 1 % de BSA/PBS). Après trois lavages avec PBS pour éliminer les anticorps primaires non liés, les cellules ont été incubées avec des anticorps secondaires conjugués au fluorophore spécifiques à chaque espèce (dilués à 1:500) pendant 1 heure à température ambiante dans l’obscurité. Les noyaux ont été contre-colorés avec 4′,6-diamidino-2-phénylindole (DAPI) pendant 5 minutes. Les gaines de couverture étaient montées sur des lames en verre avec un support antifondu, et des images de fluorescence étaient capturées à l’aide d’un microscope à fluorescence à un grossissement de 20×. Pour l’analyse quantitative, 10 cellules sélectionnées au hasard par échantillon ont été analysées dans ImageJ afin de mesurer l’intensité de fluorescence des protéines cibles. L’intensité moyenne de fluorescence a été calculée pour chaque groupe et utilisée pour la comparaison statistique.
Essai de fermeture de plaie par éraflure cellulaire
Un test de fermeture de la plaie par grattage a été réalisé afin d’évaluer la capacité des chondrocytes à combler un espace artificiel sous différentes conditions de traitement. Les chondrocytes primaires ont été ensemencés dans des plaques à 6 puits à une densité de 1 ×10 5 cellules par puits et cultivés jusqu’à atteindre environ 90 % de confluence. Un scratch linéaire a été généré dans la monocouche cellulaire à l’aide d’une pointe de pipette stérile de 200 μL. Les cellules détachées ont été retirées par lavant deux fois avec PBS, puis un nouveau milieu de culture complet contenant les traitements indiqués a été ajouté. Les cellules ont été réparties dans les groupes suivants : témoins normal, traité à IL-1β, et IL-1β plus surexpression SNRNP70 . Des images de la même zone de la blessure ont été prises aux points temporels de 6 h et 12 h après un grattage à l’aide d’un microscope inversé (Figure supplémentaire 1). La fermeture de la plaie a été calculée comme le pourcentage de réduction de la surface de la plaie par rapport à la surface initiale de la plaie à 0 h selon la formule suivante :
Fermeture de la plaie ( %) = [(Surface de la blessure à 0 h - Surface de la blessure au moment indiqué) / Surface de la blessure à 0 h] × 100. (1)
Analyse statistique
Toutes les données quantitatives sont présentées comme la moyenne ± l’écart-type (DE) de trois réplications biologiques indépendantes (n = 3), sauf indication contraire. Des analyses statistiques ont été réalisées à l’aide de GraphPad Prism 8.0. Pour les comparaisons entre deux groupes, un test t de Student non apparié a été utilisé. La signification statistique était indiquée comme suit : *p < 0,05 et **p < 0,01.
Résultats
SNRNP70 Expression dans les tissus de la cavité articulaire
Pour étudier de manière exhaustive le rôle de la SNRNP70 dans l’OA, un dépistage systématique de 10 ensembles de données ARN-seq et microarrays disponibles publiquement répondant à des critères stricts d’inclusion et d’exclusion a été réalisé (Tableau 2). SNRNP70 niveaux d’expression ont été soigneusement extraits et analysés à travers ces ensembles de données. Fait frappant, dans 6 des 10 cohortes, l’expression de SNRNP70 était significativement régulée à la baisse dans les tissus OA par rapport aux témoins normaux (p < 0,05), suggérant un schéma cohérent de suppression transcriptionnelle (Figure 1).
À noter, trois ensembles de données (GSE114007, GSE169077 et GSE19060) n’ont pas révélé de différences statistiquement significatives entre l’OA et les échantillons témoins. Plutôt que d’ignorer ces divergences, des stratégies de correction par lots et d’intégration des ensembles de données ont été utilisées pour renforcer la robustesse et la fiabilité de l’analyse. Plus précisément, des ensembles de données dérivés de plateformes de séquençage identiques ont été fusionnés pour accroître la puissance statistique. Par exemple, GSE114007 a été combiné avec GSE89408 pour générer GSE114007-89408, tandis que GSE169077, GSE12021 et GSE55457 ont été fusionnés en GSE169077-12021-55457 (Figure 1). Cette approche intégrative a minimisé la variabilité inter-études et renforcé la reproductibilité des résultats. En résumé, les analyses des ensembles de données humaines révèlent une régulation systématique à la baisse de la SNRNP70 dans les tissus articulaires de l’OA, suggérant son potentiel comme biomarqueur diagnostique. Cependant, il n’est pas clair si cette diminution provoque directement la dysrégulation du staling ou la dégénérescence du cartilage chez l’humain et attend une vérification, de préférence dans des modèles tissulaires humains.
Capacité diagnostique clinique de SNRNP70
Pour évaluer rigoureusement la valeur diagnostique de la SNRNP70 dans l’OA, une méta-analyse complète a été réalisée, intégrant les données de 165 échantillons d’OA et 125 témoins normaux. Cela représente, dans la meilleure mesure des connaissances disponibles, l’évaluation systématique de SNRNP70 en tant que biomarqueur diagnostique potentiel dans l’arthrose. L’analyse d’hétérogénéité a révélé une hétérogénéité significative entre les ensembles de données (I2 = 72,9 % ; p = 0,001), nécessitant un modèle à effets aléatoires. L’analyse combinée a démontré une réduction robuste et constante de l’expression de SNRNP70 dans les tissus OA par rapport aux témoins normaux, avec une différence moyenne standardisée (DMS) de -1,07 (IC à 95 % : -1,34 à -0,80) (Figure 2A–B). Au-delà du profilage d’expression, la performance diagnostique de SNRNP70 a été davantage évaluée. Les résultats du test diagnostique combiné ont révélé une sensibilité combinée de 0,82 (IC 95 % : 0,57–0,94) et une spécificité de 0,88 (IC 95 % : 0,73–0,95), soulignant sa forte capacité discriminatoire (Figure 3A). De manière cohérente, la courbe de caractéristique de fonctionnement du récepteur (SROC) a donné une aire sous la courbe (AUC) de 0,92 (IC 95 % : 0,90–0,94), soulignant encore la grande précision de SNRNP70 dans la distinction des patients atteints d’arthrose des individus en bonne santé (Figure 3B).
Pour garantir la robustesse de ces résultats, une analyse de sensibilité a été réalisée, confirmant que l’exclusion séquentielle de jeux de données individuels n’a pas modifié de manière significative la taille globale de l’effet (Figure 4A). Il est important de noter que le test d’asymétrie du diagramme d’entonnoir de Deek (p = 0,41) et le test d’Egger n’ont montré aucun biais significatif de publication, renforçant la crédibilité des résultats (Figure 4B). Ensemble, ces données montrent que l’expression de SNRNP70 est réduite dans l’OA et suggèrent qu’elle pourrait servir de biomarqueur diagnostique. Cela dit, l’hétérogénéité entre les ensembles de données et l’absence d’une cohorte de validation indépendante méritent une prudence. Ces résultats sont donc considérés comme préliminaires, en attendant d’autres études visant à clarifier l’utilité clinique de la SNRNP70 dans le diagnostic et la prise en charge de l’arthrose.
SNRNP70 modulation de l’expression génique inflammatoire dans l’arthrose
Pour délimiter le rôle régulateur de la SNRNP70 dans la signalisation inflammatoire durant la progression de l’OA, un modèle d’AO in vitro a été initialement établi en exposant les chondrocytes à l’IL-1β, une cytokine pro-inflammatoire bien caractérisée. L’analyse qRT-PCR réalisée après 48 heures de stimulation IL-1β a révélé une régulation à la baisse significative des niveaux d’ARNm SNRNP70 par rapport au groupe NC (Figure 5). Cette suppression de l’expression de SNRNP70 dans des conditions inflammatoires était cohérente avec les données transcriptomiques issues de jeux de données d’OA accessibles publiquement, fournissant ainsi des preuves solides que SNRNP70 est constamment refoulée dans l’inflammation associée à l’OA. Pour approfondir l’étude de la possibilité de rétablir l’expression SNRNP70 moduler le phénotype inflammatoire des chondrocytes, les cellules ont été transfectées à l’aide d’un plasmide de surexpression SNRNP70 (oe-SN). Fait remarquable, l’expression forcée de SNRNP70 a considérablement atténué l’inflammation induite par l’IL-1β, comme en témoignent les changements transcriptionnels et translationnels. Plus précisément, la qRT-PCR a montré une réduction robuste des niveaux d’ARNm d’IL-6 et MMP-13 dans le groupe oe-SN par rapport aux témoins traités à l’IL-1β (Figure 5).
En plus de ces découvertes moléculaires, la coloration par immunofluorescence a fourni des preuves cellulaires directes du potentiel anti-inflammatoire de SNRNP70. Dans les cellules traitées à l’IL-1β, l’IL-6 présentait une accumulation cytoplasmatique prononcée, compatible avec un état inflammatoire activé. Fait frappant, la surexpression de SNRNP70 a conduit à une atténuation notable de l’intensité de coloration cytoplasmique de l’IL-6 (Figure 6A), soulignant ainsi sa capacité à inverser la réponse inflammatoire au niveau cellulaire. Un schéma similaire a été observé pour MMP-13, où le traitement par IL-1β a amélioré son expression, mais SNRNP70 surexpression a nettement supprimé la localisation de MMP-13 et l’intensité du signal (Figure 6B).
Contrairement aux études précédentes qui se concentraient principalement sur les lésions structurelles du cartilage, les données in vitro provenant des chondrocytes de rats suggèrent que SNRNP70 agit comme un régulateur de l’expression génétique inflammatoire. Plus précisément, l’expression forcée de SNRNP70 médiateurs pro-inflammatoires atténués par l’IL-1β, incluant l’IL-6 et le MMP-13, dans ce modèle de rat. Il est important de noter que, comme ces expériences ont été menées exclusivement dans un modèle inflammatoire chez les rats, elles ne reprennent pas directement les résultats des ensembles de données humains. Néanmoins, ces résultats offrent un cadre conceptuel, indiquant que SNRNP70 pourrait fonctionner non seulement comme un facteur de splicing mais aussi comme un modulateur potentiel de l’inflammation — une possibilité qui mérite une exploration plus approfondie dans les tissus humains.
Identification des voies liées à la SNRNP70 dans l’arthrose
Pour explorer les voies biologiques associées à l’expression de SNRNP70 dans l’arthrose, une analyse de corrélation de Pearson a été réalisée séparément dans les ensembles de données transcriptomiques publiques GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 et GSE82107-19060. Les gènes avec un coefficient de corrélation absolu (|r|) > 0,8 et p < 0,05 ont été considérés comme significativement corrélés à l’expression de SNRNP70 dans chaque jeu de données. L’union des gènes corrélés à travers tous les ensembles de données a été générée, donnant 929 gènes liés à la SNRNP70.
L’analyse d’enrichissement des voies KEGG a ensuite été réalisée à l’aide du package clusterProfiler, avec des ajustements pour plusieurs tests via la méthode Benjamini–Hochberg. Cette analyse a révélé un enrichissement significatif des gènes identifiés dans plusieurs voies, y compris la voie d’adhésion focale (Figure 7). Cette cascade de signalisation est connue pour réguler l’adhésion des chondrocytes, la mécanotransduction et le remodelage de la MEC, tous des processus clés dans la progression de l’OA. Ensemble, ces résultats suggèrent un lien entre l’expression SNRNP70 et les signatures d’expression génique liées à l’adhésion focale dans les ensembles de données d’OA.
SNRNP70 médie la réparation inflammatoire des chondrocytes via la voie d’adhésion focale
Pour évaluer le rôle de la SNRNP70 dans la capacité de cicatrisation des chondrocytes inflammatoires, un test de fermeture de plaie par grattage a été réalisé à l’aide de chondrocytes primaires. Les cellules ont été réparties en trois groupes : témoins normal, traité par IL-1β et IL-1β plus surexpression SNRNP70. La stimulation de l’IL-1β a réduit l’étendue de la fermeture du gap par rapport au groupe témoin normal, indiquant une capacité de cicatrisation des plaies altérée dans des conditions inflammatoires. En revanche, SNRNP70 surexpression favorisait la fermeture du gap de rayure dans les chondrocytes traités à l’IL-1β par rapport au traitement seul par IL-1β (Figure 8A). Collectivement, ces résultats indiquent que SNRNP70 surexpression renforce la réponse de fermeture des plaies des chondrocytes traités à l’IL-1β.
Au niveau moléculaire, des analyses Western blot ont démontré que le traitement par IL-1β supprimait l’expression des protéines matricielles cartilagineuses ACAN et COL2A1, tout en favorisant la régulation à la hausse de l’enzyme dégradative MMP13. Il est important de noter que SNRNP70 surexpression a non seulement restauré les niveaux d’ACAN et de COL2A1 , mais a également considérablement baissé la MMP13, préservant ainsi l’intégrité de l’ECM (Figure 8B). Sur le plan mécanistique, in vitro, les effets bénéfiques de la SNRNP70 étaient étroitement associés à l’activation de la voie de signalisation focale par adhésion.
Collectivement, les analyses de jeux de données humaines révèlent que SNRNP70 est régulée à la baisse dans l’OA et que son expression est corrélée aux gènes impliqués dans la voie focale d’adhésion. Dans les chondrocytes de rats exposés à la stimulation de l’IL-1β, l’expression forcée de SNRNP70 favorise la réparation des cellules inflammatoires et la synthèse de la MEC, et s’associe également à la signalisation focale par adhésion. Bien que ces observations in vitro issues d’un modèle de rat soient suggestives, elles ne confirment pas directement les résultats issus des ensembles de données humains. Néanmoins, ces lignes convergentes de preuves soutiennent un modèle dans lequel SNRNP70 contribue à la pathogenèse de l’AA humaine via la signalisation focale d’adhésion — une hypothèse qui attend désormais une confirmation définitive dans les tissus humains ou dans des modèles in vivo ayant une pertinence humaine.
DISPONIBILITÉ DES DONNÉES :
Les ensembles de données utilisés et analysés dans cette étude sont disponibles à partir du jeu de données GEO (https://www.ncbi.nlm.nih.gov/geo/). Toutes les données générées ou analysées au cours de cette étude ont été entièrement présentées et discutées dans le manuscrit. Les données brutes de cette étude sont téléchargées sous forme de fichier supplémentaire.
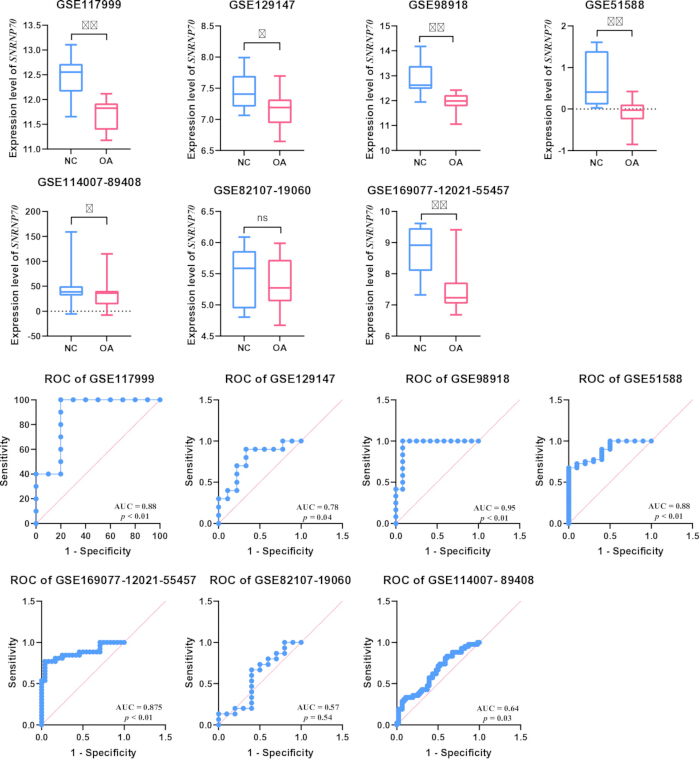
Figure 1 : Le test t des élèves et la courbe ROC pour sept études. Les résultats ont suggéré que l’expression de SNRNP70 était plus faible dans les tissus OA que dans les tissus NC dans GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 et GSE169077-12021-55457 (p < 0,05), et que l’AUC de la ROC indiquait une forte faisabilité. p < 0,05 (*), p < 0,01(**). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
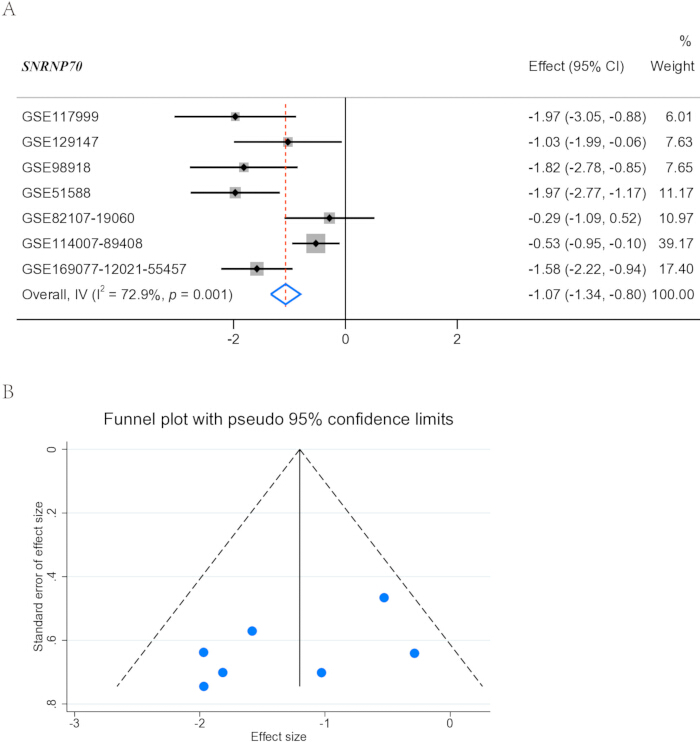
Figure 2 : La méta-analyse pour sept ensembles de données. (A) Les résultats ont montré que I2 = 72,9 %, p = 0,001, et que la DMS globale était de -1,07. (B) Le diagramme de l’entonnoir a été évalué pour le biais de publication dans la méta-analyse. Il a été constaté qu’il était essentiellement symétrique. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
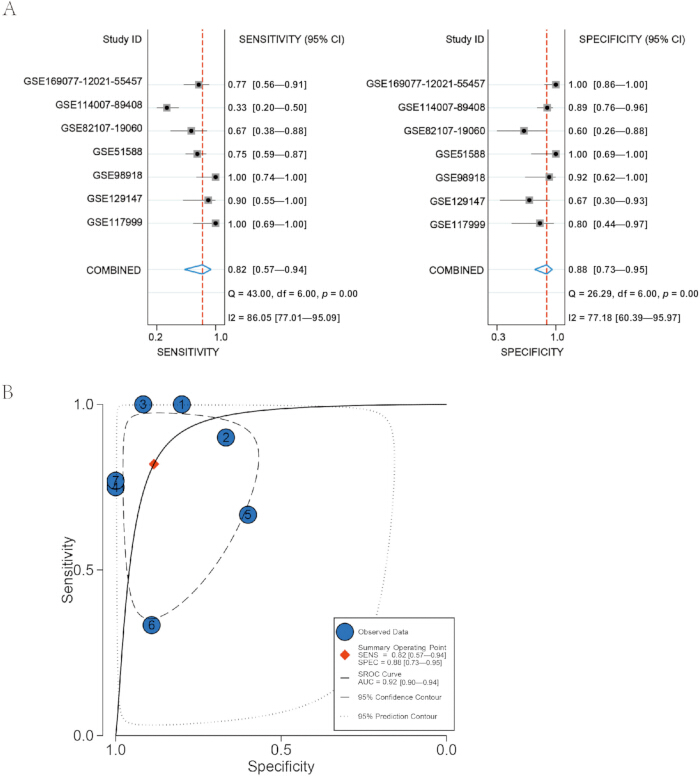
Figure 3 : La performance diagnostique de SNRNP70. (A) Le Q-test a révélé que la sensibilité et la spécificité avaient toutes deux des valeurs p < 0,05, avec des valeurs I2 de 86,05 % et 77,18 %, respectivement, indiquant une hétérogénéité substantielle. L’étude a rapporté une sensibilité de 0,82 et une spécificité de 0,88, mettant en lumière ses performances notables. (B) L’AUC du sROC était de 0,92, indiquant un haut niveau de confiance dans la recherche. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
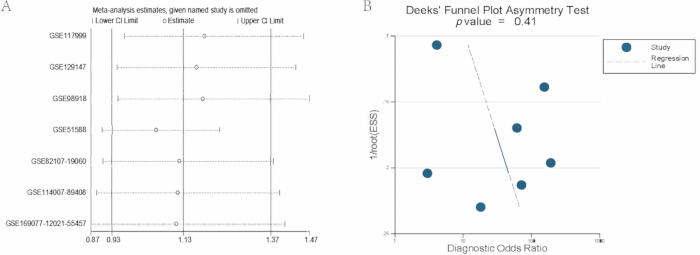
Figure 4 : Analyse d’influence et graphique de l’entonnoir de Deek. (A) L’analyse d’influence a indiqué que l’exclusion d’une étude individuelle n’avait pas d’impact marqué sur les résultats globaux. (B) Dans sept études, tous les résultats n’ont montré aucun biais significatif (p = 0,41). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
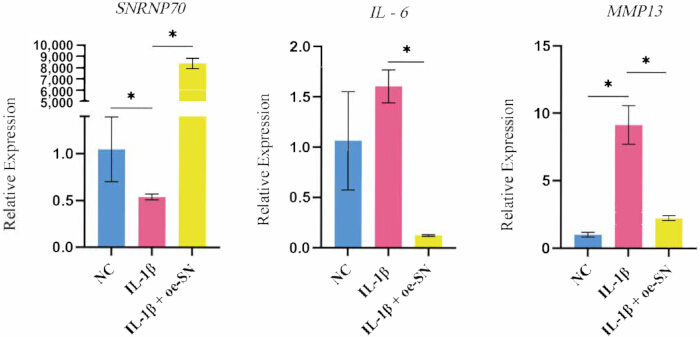
Figure 5 : Les résultats de la qRT-PCR indiquent une réduction significative de l’expression SNRNP70 des chondrocytes après le traitement à l’IL-1β. Dans le groupe oe-SN, on a observé une diminution notable des niveaux d’expression des marqueurs inflammatoires IL-6 et MMP13 par rapport au groupe IL-1, ce qui suggère que la surexpression de SNRNP70 peut inverser les marqueurs inflammatoires des chondrocytes traités avec IL-1β. Les données sont présentées en moyenne ± DE à partir de n = 3 réplications biologiques indépendantes. les valeurs p < 0,05 (*), les valeurs p < 0,01(**). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
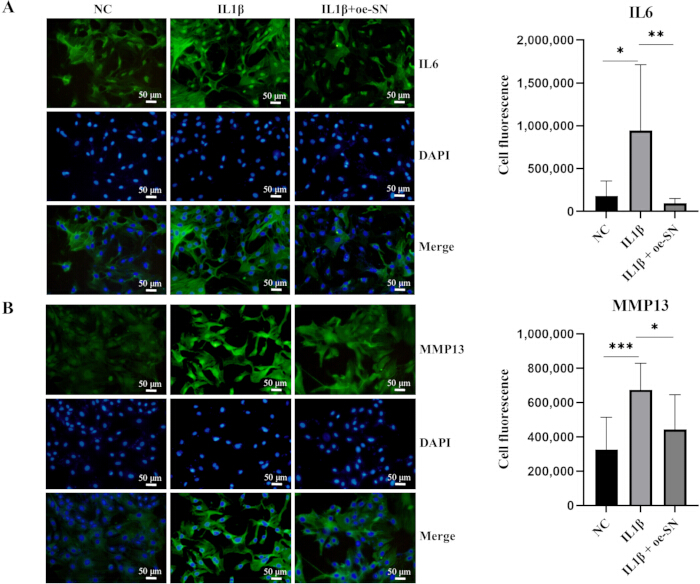
Figure 6 : L’analyse du FI des chondrocytes traités à l’IL-1β après un traitement à l’IL-1β, montrant l’intensité de fluorescence. (A) L’intensité de fluorescence de l’IL-6 et (B) de la MMP13 a significativement augmenté. Cependant, la surexpression de SNRNP70 a conduit à une réduction marquée de l’intensité de fluorescence des marqueurs inflammatoires IL-6 et MMP13. Ces résultats suggèrent que SNRNP70 surexpression pourrait atténuer l’inflammation des chondrocytes traités à l’IL-1β. Toutes les images microscopiques ont été prises à un grossissement de 10x. Les données sont présentées en moyenne ± DE à partir de n = 3 réplications biologiques indépendantes. les valeurs p < 0,05 (*), les valeurs p < 0,01(**). Barre d’échelle = 50 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
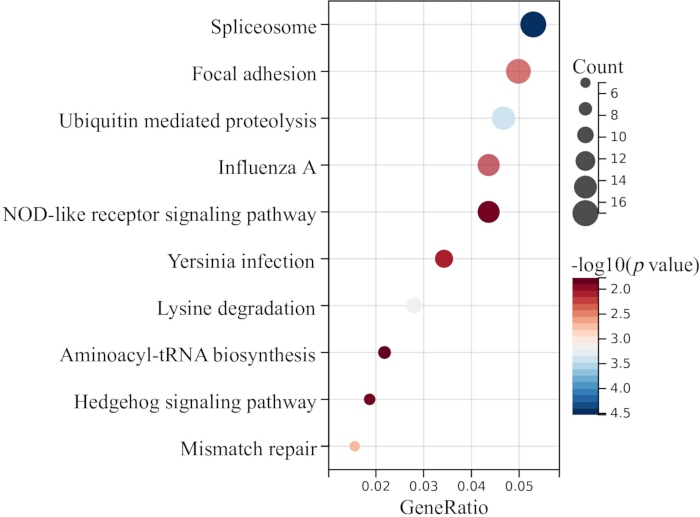
Figure 7 : Analyse d’enrichissement KEGG basée sur la corrélation des gènes associés à la SNRNP70 dans les ensembles de données sur l’arthrose. Les 10 principales voies enrichies identifiées par clusterProfiler (correction de Benjamini–Hochberg). Taille de la bulle = nombre de gènes ; couleur = signification (-log10(valeur p)). La voie d’adhésion focale (mise en évidence) médie l’adhésion des chondrocytes, la mécanotransduction et le remodelage ECM dans l’OA. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
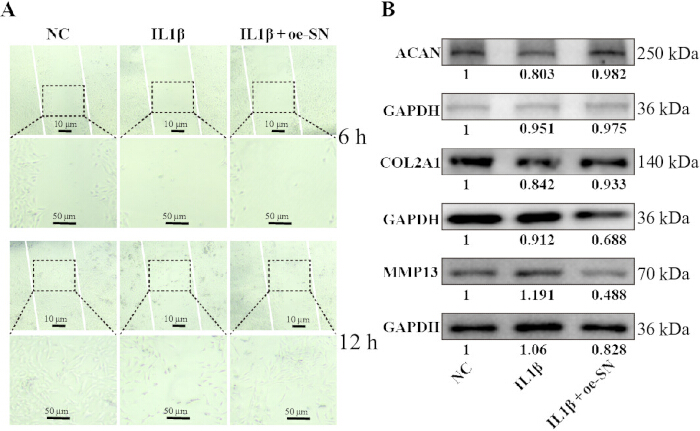
Figure 8 : SNRNP70 surexpression restaure la réparation de la ME dans les chondrocytes traités à l’IL-1β. (A) Images de la fermeture de la plaie par griffure dans le témoin, traité par IL-1β, et IL-1β plus des chondrocytes SNRNP70-surexpression. (B) Des taches occidentales représentatives de la matrice cartilagineuse clé et des protéines cataboliques. Les membranes ont été sondées pour détecter l’ACAN, COL2A1 et MMP13. GAPDH est affiché comme un contrôle de chargement. Les grossissements sont les suivants : groupes NC, IL-1β et IL-1β+oe-SN : À 4x de grossissement : barre d’échelle = 10 μm. À un grossissement de 10x : barre d’échelle = 50 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Figure supplémentaire 1 : Analyse quantitative de la fermeture des plaies et de la densitométrie Western blot. (A) Quantification de la fermeture de la plaque de griffure dans les chondrocytes primaires à partir des groupes NC, IL-1β et IL-1β + oe-SNRNP70 . (B) Quantification densitométrique des bandes occidentales de blot ACAN, COL2A1 et MMP13. Les intensités de bande ont été quantifiées à l’aide d’ImageJ et normalisées en GAPDH. Les données sont présentées en moyenne ± DE à partir de n = 3 réplications biologiques indépendantes. *p < 0,05, **p < 0,01. Veuillez cliquer ici pour télécharger ce fichier.
| Gène cible | Séquence d’amorce avant | Séquence d’amorce avant |
| GAPDH | 5'-TCTCTGCTCCTCCCTCTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCAATGCG-3' |
Tableau 1 : Les amorces pour les gènes cibles. Les séquences d’amorcage avant et arrière pour GAPDH, SNRNP70, IL6 et MMP13 utilisées en qRT-PCR sont montrées, toutes dans l’orientation 5′ > 3′. Le GAPDH était le contrôle interne.
| ID d’étude | Quai | NC (n) | OA (n) | Tissus |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Cartilajes |
| GSE117999 | GPL20844 | 10 | 10 | Cartilajes |
| GSE129147 | GPL15207 | 9 | 10 | Cartilajes |
| GSE169077 | GPL96 | 5 | 6 | Cartilajes |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Ménisque |
| GSE98918 | GPL20844 | 12 | 12 | Ménisque |
| GSE51588 | GPL13497 | 10 | 40 | Os sous-chondral |
Tableau 2 : Les ensembles de données de cette étude provenant de la base de données GEO. Résumé de 11 ensembles de données GEO publiques répondant aux critères d’inclusion. Pour chaque jeu de données, l’identifiant d’accession, la plateforme et le nombre d’échantillons de contrôle normal (NC) et d’arthrose (OA) sont fournis, ainsi que le type de tissu. n = nombre d’échantillons.
Discussion
Les travaux actuels suggèrent que SNRNP70 pourrait fonctionner comme un gène protecteur dans la pathogenèse de l’arthrose, une maladie articulaire multifacette qui pose un défi mondial important en matière de santé29,30. Cette étude est la première à rapporter le rôle de l’SNRNP70 dans l’arthrose. Dans cette étude, nous avons démontré une régulation significative à la baisse de l’expression de SNRNP70 dans les tissus OA, comme en témoigne l’analyse des données GEO (DMS globale = -1,07, IC à 95 % : -1,34, -0,80 ; Figure 2). Il est important de noter que cette découverte a ensuite été validée dans des chondrocytes traités à l’IL-1β. De plus, cette étude a exploré le rôle de la SNRNP70 dans la réponse inflammatoire des chondrocytes traités à l’IL-1β. En tant que gène protecteur associé à l’OA, SNRNP70 a montré la capacité de freiner la progression de l’OA en supprimant l’expression d’IL-1 et de MMP13. À ce jour, il s’agit de la première étude expérimentale à rapporter une disparité perceptible dans les niveaux d’expression de SNRNP70 entre les tissus OA et NC, suggérant un rôle potentiel de SNRNP70 dans la pathogenèse de l’OA. Cette observation intrigante nous invite à envisager les implications diagnostiques possibles de la SNRNP70 dans l’arthrose.
La méta-analyse que nous avons réalisée, intégrant plusieurs ensembles de données et ensembles de données RNA-seq, a apporté des preuves de la pertinence diagnostique potentielle de SNRNP70. La DMS de -1,07 soulignait la régulation systématique à la baisse de la SNRNP70 dans les tissus de l’OA, augmentant la possibilité de son utilité en tant que candidat diagnostique. L’analyse de la courbe ROC a également mis en avant ce potentiel, avec un AUC de 0,92, indiquant un pouvoir discriminatoire robuste. De plus, les valeurs combinées de sensibilité et de spécificité soutenaient l’idée que SNRNP70 pourrait permettre un diagnostic d’OA plus précoce et plus précis. Au-delà de ses promesses diagnostiques, SNRNP70 reste un candidat d’intérêt dans le contexte de la gestion de l’OA. La pathogenèse de l’AO est un processus multifactoriel impliquant une surcharge mécanique, le vieillissement, la prédisposition génétique et l’inflammation31,32. Parmi ces facteurs, l’inflammation a gagné en reconnaissance comme un moteur clé de la progression de l’arthrose33,34. Elle orchestre une cascade d’événements, incluant la dégradation du cartilage, l’inflammation synoviale et une homéostasie articulaire altérée.
Cette étude a exploré le potentiel anti-inflammatoire de la SNRNP70, motivée par son rôle de composantspliceosome 35,36. À l’aide d’un modèle in vitro, les chondrocytes ont été traités avec de l’IL-1β recombinant de rat pour imiter le microenvironnement inflammatoire des articulations OA. Ces résultats suggèrent que SNRNP70 pourrait jouer un rôle dans la modulation de l’inflammation des chondrocytes stimulés par l’IL-1β. Les tests FI ont apporté un soutien supplémentaire aux propriétés anti-inflammatoires de SNRNP70. Les chondrocytes traités à l’IL-1β ont montré une expression accrue de protéines inflammatoires, qui étaient atténuées par l’oe-SN. Cette modulation de l’expression des protéines inflammatoires par SNRNP70 met en lumière un lien potentiel avec la cascade inflammatoire associée à la pathogenèse de l’OA.
Bien que cette étude fournisse des preuves observationnelles du potentiel diagnostique et thérapeutique de la SNRNP70 dans l’artroscope, les mécanismes précis sous-jacents à ses effets restent un sujetd’intrigue 37. SNRNP70 est un composant critique du spliceosome, un complexe impliqué dans le splicing de l’ARN, un processus fondamental de régulation de l’expression génique. Le staling de l’ARN joue un rôle central dans l’expression génique en éliminant les régions non codantes (introns) et en rejoignant les régions codantes (exons) des molécules d’ARNm, façonnant finalement le protéome 38,39,40. Il est plausible que l’implication de SNRNP70 dans le splicing d’ARN puisse influencer l’expression des gènes associés à la pathogenèse de l’ARO. Les cibles ARN spécifiques et les événements de sépissage régulés par SNRNP70 dans les tissus affectés par l’OA restent à élucider. Comprendre ces mécanismes peut offrir des informations précieuses sur les fondements moléculaires de l’OA et les cibles candidates à poursuivre dans l’investigation. De plus, les recherches futures devraient explorer l’interaction de la SNRNP70 avec d’autres molécules impliquées dans la pathogenèse de l’arthrose. Étudier sa diaphonie croisée avec les voies de signalisation impliquées dans l’inflammation, la dégradation du cartilage et le remodelage des tissus articulaires pourrait permettre une compréhension plus complète de ses effets multiples.
Cette étude présente certaines limites qui méritent d’être considérées. Bien que la méta-analyse ait intégré un nombre important de jeux de données, des variations dans la conception de l’étude, la démographie des patients et le traitement des données peuvent introduire une hétérogénéité. De plus, les ensembles de données inclus variaient selon l’origine tissulaire (par exemple, cartilage versus synovium) et selon les plateformes de traitement, ce qui pourrait en partie expliquer l’hétérogénéité observée entre les études (I2 = 73,3 %). De plus, cette analyse intégrative était basée sur des ensembles de données humaines publiques, tandis que les expériences fonctionnelles utilisaient des chondrocytes isolés chez des rats nouveau-nés. Cette divergence entre espèces limite la mesure dans laquelle les résultats in vitro peuvent être directement extrapolés à la physiopathologie de l’arthrose humaine. Une autre mise en garde est la dépendance à un modèle aigu de stimulation IL-1β, qui ne capture que la réponse inflammatoire précoce et ne reflète pas entièrement la nature chronique, progressive et multifactorielle de l’arthrose chez l’humain. De plus, les expériences fonctionnelles étaient limitées aux approches de gain de fonction (SNRNP70 surexpression) ; Les expériences de perte de fonction (par exemple, SNRNP70 knockdown) n’ont pas été réalisées, ce qui constitue une limitation de l’étude en cours. Enfin, bien que les analyses de corrélation impliquent SNRNP70 dans la voie d’adhésion focale, les événements de splicing FAK n’ont pas été directement examinés, et aucune preuve expérimentale que la signalisation focale d’adhésion est modifiée en aval de SNRNP70 n’a été fournie. Par conséquent, une validation dans des cohortes de patients plus larges et des modèles animaux est nécessaire pour renforcer la robustesse de ces résultats. De plus, les expériences in vitro ont utilisé un modèle de culture cellulaire, qui peut ne pas reproduire entièrement le microenvironnement complexe in vivo des articulations OA. De futures études devraient explorer les effets de la SNRNP70 sur les modèles animaux d’OA afin d’évaluer son potentiel thérapeutique dans un contexte physiologiquement plus pertinent.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts.
Remerciements
Cette recherche a été financée par le Guangxi Key Research, Chine (GuiKe AB22035014), le Fonds spécial de l’équipe d’innovation caractéristique du premier hôpital affilié de l’Université médicale du Guangxi (YYZS2022003), ainsi que par le projet conjoint provincial de Hainan en sciences et technologies de la santé (WSJK2026QN087).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Anticorps primaire, dilution 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Anticorps primaire, dilution 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotiques pour la culture cellulaire |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Anticorps primaire, dilution 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Détermination de la concentration totale de protéines |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Système de détection PCR en temps réel |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Système d'imagerie par chimiluminescence |
| Collagenase type II | Sigma-Aldrich | C6885 | Digestion du tissu cartilagineux, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Contro-coloration nucléaire |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Milieu de culture cellulaire de base |
| ECL reagent | Thermo Fisher Scientific | 34580 | Réactif de chimiluminescence amélioré |
| Fetal bovine serum | Gibco | 10082147 | Concentration de 10% comme supplément de culture |
| Fluorescent microscope | Olympus | BX53 | Imagerie par immunofluorescence (agrandissement 20x) |
| GEO database | NCBI | N/A | Ensembles de données RNA-seq et microarray publics |
| GraphPad Prism 8.0 | GraphPad | N/A | Analyse de courbe ROC |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Anticorps secondaire |
| ImageJ software | NIH | N/A | Logiciel d'analyse densitométrique |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Réactif de transfection |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Mesure de la pureté et de la concentration de l'ARN (rapport A260/280) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Plasmidom pour surexpression |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiotique pour la culture cellulaire |
| Primer-BLAST | NCBI | N/A | Conception d'amorces spécifiques aux gènes |
| Primers (synthétisés) | Sangon Biotech | N/A | Synthèse commerciale d'amorces PCR |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail d'inhibiteurs de protéases et de phosphatases |
| PVDF membrane | Millipore | IPVH00010 | Membrane de transfert de protéines |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Synthèse de premier brin de cDNA |
| RIPA buffer | Beyotime | P0013B | Tampon de lyse cellulaire avec inhibiteurs de protéases et de phosphatases |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Induire la réponse inflammatoire dans les chondrocytes |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | Analyse de courbe ROC |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Système automatisé de détection d'expression protéique |
| Stata 14.0 | Stata | N/A | Méta-analyse |
| Streptomycin | Thermo Fisher Scientific | Antibiotique pour la culture cellulaire | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | PCR quantitative en temps réel |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Extraction d'ARN total des chondrocytes |
| Trypsin-EDTA | Gibco | 25200072 | Détachement cellulaire, trypsin-EDTA 0,25% |
Références
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).