Ce protocole établit un système dynamique de co-culture pulmon-sur-puce combinant cellules épithéliales primaires des voies respiratoires humaines et microvasculaires endothéliales pulmonaires pour deux modèles : modèle sain et modèle BPCO. Le système reproduit les interactions voies respiratoires-vasculaires sous l’interface air-liquide et le flux, et fournit une évaluation des barrières, un phénotypage cellulaire et une analyse de l’ARN.
Article de méthode
Établissement d’une co-culture épithéliale-endothéliale poumon sur une puce pour l’investigation dans les conditions saines et atteintes de MPOC
Dans cet article
Résumé
Résumé
Deux modèles dynamiques de co-culture pulmon-sur-puce ont été développés pour recréer l’interface voies respiratoires-vasculaires en incorporant des cellules épithéliales primaires des voies respiratoires et microvasculaires endothéliales pulmonaires. Un modèle utilise des cellules disponibles dans le commerce provenant de donneurs sains, tandis que l’autre utilise des cellules issues de patients atteints de maladie pulmonaire obstructive chronique (MPOC), permettant une comparaison directe de conditions saines et malades sous des cultures identiques. Les deux modèles supportent la différenciation épithéliale sous perfusion continue et en conditions d’interface air-liquide (ALI), ce qui aboutit à une barrière épithéliale physiologiquement pertinente soutenue par une couche endothéliale sous-jacente. Le flux de travail comprend le revêtement de la matrice extracellulaire, l’ensemencement cellulaire, l’établissement de l’ALI, l’évaluation de la fonction de barrière, le phénotypage cellulaire et l’extraction d’ARN spécifique à chaque type cellulaire. Les tests de perméabilité ont démontré une robustesse de la barrière dans les deux systèmes, tandis que l’immunofluorescence a confirmé la localisation continue de Zonula Occludens-1 (ZO-1) et de la cadherine endothéliale vasculaire (VE-cadherine) aux jonctions cellulaires. La différenciation épithéliale a été confirmée par la coloration β-tubuline IV et la visualisation du battement ciliaire. Un ARN de haute qualité a été obtenu séparément de chaque compartiment, soutenant des analyses moléculaires spécifiques à chaque type cellulaire. Le modèle de MPOC a représenté des caractéristiques clés de la maladie, notamment une production accrue de mucus, sans compromettre la fonction de la barrière ni la viabilité cellulaire. L’utilisation de cellules épithéliales et endothéliales dérivées du patient préserve les caractéristiques pathologiques individuelles, permettant l’étude des mécanismes intercellulaires dans la BPCO. Cette approche offre une alternative physiologiquement pertinente aux modèles statiques in vitro et animaux et soutient les études précliniques sur les médicaments inhalés, l’exposition aux agents pathogènes et les interactions épithéliales-endothéliales. Il est important de noter que les modèles sains et les modèles pulmon-sur-puce pour la MPOC peuvent être utilisés soit en combinaison pour des études comparatives directes, soit indépendamment pour des investigations mécanistiques, des tests thérapeutiques et la découverte de médicaments. Le système peut également être adapté à d’autres affections respiratoires impliquant des compartiments épithéliaux ou endothéliaux modifiés, offrant une plateforme polyvalente et translationnelle pour la recherche respiratoire.
Introduction
L’interaction entre les cellules épithéliales des voies respiratoires et les cellules endothéliales microvasculaires pulmonaires est essentielle pour maintenir l’homéostasie pulmonaire et coordonner les réponses aux blessures, infections et inflammations. Ensemble, ces types cellulaires forment une barrière fonctionnelle qui régule l’échange gazeux, la surveillance immunitaire et la perméabilité vasculaire. Leur diaphonie dynamique implique un signalement paracrine, des interactions cellulaire directes et des réponses à des stimuli mécaniques, autant de critiques pour la fonction pulmonaire et l’intégritéstructurelle 1.
Dans la maladie pulmonaire obstructive chronique (MPOC), une maladie pulmonaire progressive caractérisée par une inflammation chronique, un remodelage des voies respiratoires et la destruction de l’interface alvéolaire-capillaire, la fonction barrière de l’épithélium des voies respiratoires et de l’endothélium vasculaire pulmonaire est altérée et s’accompagne d’une libération aberrante de cytokines et de mécanismes de réparation tissulairedérégulés 2,3. Cependant, l’interaction entre les cellules endothéliales des voies respiratoires et microvasculaires pulmonaires reste peu comprise. Cette limitation est en partie due aux lacunes des modèles in vitro et in vivo existants. Bien que les modèles animaux aient apporté des informations importantes sur la physiologie et la pathologie respiratoires, leur pertinence est limitée par des différences interespèces dans la fonction immunitaire, l’architecture pulmonaire, la signalisation cellulaire et le métabolisme des médicaments, ce qui peut entraver la traduction en biologie humaine.
Les systèmes in vitro conventionnels, tels que les cultures bidimensionnelles (2D) de lignées cellulaires épithéliales des voies respiratoires immortalisées, ne parviennent pas à reproduire les caractéristiques clés de l’épithélium des voies respiratoires, notamment la différenciation adéquate et la réactivité biomécanique. Bien que les monocultures d’interface air–liquide (ALI) tridimensionnelles (3D) des cellules épithéliales primaires des voies respiratoires améliorent leur pertinence physiologique, elles restent statiques et manquent d’interactions avec d’autres types cellulaires et stimulimécaniques 4. Le poumon est un organe dynamique continuellement exposé au flux d’air, aux contraintes de cisaillement, à la raideur de la matrice extracellulaire et à l’étirement cyclique généré par la respiration. Ces facteurs influencent fortement le comportement cellulaire et le remodelagetissulaire 5. Par conséquent, les modèles statiques sont insuffisants pour reproduire des processus tels que l’adhésion des leucocytes, le trafic cellulaire immunitaire et les réponses en temps réel à l’exposition aux médicaments.
Pour remédier à ces limitations, des plateformes organe-em-puce sont apparues comme des systèmes avancés pour modéliser des interactions cellulaires complexes. Les modèles poumon sur puce intègrent la technologie microfluidique avec des cellules d’origine humaine pour reproduire des caractéristiques structurelles et mécaniques clés du microenvironnement pulmonaire. Ces plateformes permettent la co-culture de cellules endothéliales épithéliales et pulmonaires dans un environnement dynamique et tridimensionnel qui imite davantage les conditions in vivo 6. L’intégration de mouvements respiratoires physiologiques, de flux de liquides et de surveillance en temps réel améliore l’étude de la communication épithéliale–endothéliale dans des conditions normaleset malades 7–9.
Malgré ces avancées, la plupart des systèmes pulmon-sur-puce existants reposent sur des cellules dérivées de donneurssains 10, limitant leur capacité à modéliser les interactions spécifiques à la maladie. De plus, de nombreuses plateformes manquent de flexibilité pour intégrer des cellules dérivées du patient ou pour recréer le microenvironnement complexe de la BPCO. De plus, les protocoles détaillés pour la co-culture des cellules endothéliales épithéliales primaires des voies respiratoires et microvasculaires pulmonaires — qu’elles proviennent de sources commerciales ou de patients atteints de MPOC — utilisant des revêtements de matrice extracellulaire (ECM) spécifiques à chaque type cellulaire restent limités.
Dans cette étude, une plateforme microfluidique à deux canaux sur puce a été utilisée commercialement pour établir deux modèles de co-culture comprenant des cellules épithéliales primaires des voies respiratoires et des cellules endothéliales microvasculaires pulmonaires. Un modèle sain a été généré à partir de cellules disponibles dans le commerce provenant de différents donneurs, tandis qu’un modèle de MPOC a été établi à partir de cellules épithéliales et endothéliales des voies respiratoires prélevées sur le même patient. Les deux modèles utilisent un revêtement ECM spécifique au type cellulaire pour mieux imiter le microenvironnement pulmonaire in vivo. Ces systèmes permettent d’étudier les interactions épithéliales–endothéliales dans des conditions physiologiques et pathologiques. Les modèles sains et de MPOC peuvent être utilisés soit en combinaison pour des études comparatives directes, soit indépendamment pour des recherches mécanistiques et des tests thérapeutiques.
Ce système de co-culture reflète l’organisation anatomique de l’épithélium des voies respiratoires et de la vasculature pulmonaire, qui fonctionnent comme une unité épithéliale-endothéliale intégrée. L’épithélium des voies respiratoires est une couche pseudostratifiée composée de cellules basales, sécrétoires et ciliées, située au-dessus d’une couche vascularisée de tissu conjonctif (lamina propria) et séparée de l’endothélium par une membrane basale. Dans ce modèle, le revêtement ECM (collagène de type I, fibronectine et laminine) approxime la composition des membranes basales épithéliales et endothéliales. La membrane poreuse séparant les deux canaux imite le tissu conjonctif sous-épithélial, bien qu’elle manque de complexité vasculaire. De multiples mécanismes contribuent à la communication épithéliale–endothéliale, notamment la signalisation paracrine, la régulation coordonnée de la perméabilité, le recrutement des cellules immunitaires et les réponses à des stimuli mécaniques tels que l’étirement induit par la respiration, qui influencent la résistance vasculaire et les voies de mécanotransduction.
Cette étude méthodologique décrit les étapes nécessaires pour établir un épithélium entièrement différencié des voies respiratoires cultivé sous conditions d’interface air-liquide (ALI) avec un endothélium microvasculaire pulmonaire sous-jacent. Le système permet une évaluation qualitative et fonctionnelle de l’intégrité des barrières, en atteignant des valeurs de perméabilité apparente reproductible (Papp) ≤ 1 × 10⁻6 cm/s. De plus, des protocoles sont mis en place pour le phénotypage cellulaire ainsi que pour l’extraction et la quantification de l’ARN de chaque compartiment, produisant systématiquement un ARN de haute qualité (nombre d’intégrité de l’ARN > 7). Cette méthode n’est pas destinée à l’analyse quantitative de l’ARNm ni à l’évaluation détaillée de la production de mucus, ni n’étudie les effets de l’étirement mécanique, bien que de telles applications soient réalisables avec ce système.
Protocole
Toute utilisation des cellules humaines primaires a été approuvée par le Comité local d’éthique Research UZ Leuven (S51577/S57114/S70453). Des cellules épithéliales primaires humaines (HBEC) et des cellules endothéliales microvasculaires pulmonaires (HPMEC) disponibles commercialement ont été obtenues auprès de deux donneurs non fumeurs (Tables supplémentaires 1, 2). Les cellules primaires du modèle de MPOC ont été isolées à partir de tissu pulmonaire explanté de trois patients atteints de BPCO ayant des antécédents de tabagisme (Tableau complémentaire 3), selon un protocole bien établi (approbation éthique S51577) et stockées dans la biobanque BREATHE. HBEC et HPMEC ont tous deux été obtenus auprès du même patient atteint de BPCO.
Pour établir le modèle sain du poumon sur puce, des HBEC et HPMEC commerciaux ont été utilisés. Pour le modèle de BPCO, les cellules endothéliales bronchiques primaires et microvasculaires pulmonaires ont été isolées à partir de tissu pulmonaire explanté prélevés sur le même patient après une transplantation pulmonaire. Le système pulmon-sur-puce utilisé dans cette étude est une plateforme microfluidique à deux canaux comprenant des microcanaux parallèles des voies respiratoires (supérieure) et vasculaires (inférieures), séparés par une membrane poreuse recouverte d’une matrice extracellulaire (Figure 1). Le même protocole a été utilisé pour construire à la fois des modèles sains et des modèles BPCO. Les produits chimiques, réactifs et kits utilisés dans le protocole sont listés dans le tableau des matériaux.
1. Établissement des modèles de co-culture pulmon-sur-puce sous écoulement laminaire
- Préparation des puces
- Placez le berceau à puces dans un plat de culture cellulaire carré de 120 mm, les coins orientés vers le haut, pour assurer la bonne orientation, puis placez les copeaux dans le berceau. Assurez-vous que toutes les puces sont correctement placées avant l’étape d’activation (Figure 2).
- Préparez la solution d’activation en dissolvant la poudre du réactif d’activation dans son tampon correspondant, tous deux fournis par le fabricant, afin d’obtenir une concentration finale de 0,5 mg/mL.
- Activez les surfaces internes des canaux de la puce pour favoriser l’attachement de la matrice extracellulaire (ECM) en introduisant soigneusement environ 35 μL de la solution d’activation par l’entrée du canal inférieur. Pipetez jusqu’à ce que la solution commence à sortir par la sortie du canal inférieur. Répétez la procédure en introduisant environ 50 μL de la solution dans l’entrée du canal supérieur.
REMARQUE : La poudre du réactif d’activation est photosensible. Préparez la solution d’activation immédiatement avant l’utilisation et jetez toute solution restante 1 h après la reconstitution. - Retirez toute solution d’activation excédentaire de la surface de la puce par aspiration douce. Veillez à ne retirer que la solution d’activation de la surface de la puce — ne l’aspirez pas des canaux.
REMARQUE : Avant l’activation des ultraviolets (UV), inspectez les canaux au microscope pour détecter les bulles. S’il y en a, délogez-les en les lavant doucement avec une solution d’activation jusqu’à ce que toutes les bulles soient éliminées. - Exposez les puces à une lampe UV pendant 10 minutes, puis lavez chaque canal deux fois avec 200 μL du tampon correspondant.
- Pipettez une solution d’activation fraîche dans les deux canaux comme décrit ci-dessus et exposez les puces aux UV pendant 5 minutes supplémentaires.
- Aspirez complètement la solution par les deux canaux, lavez chaque canal deux fois avec 200 μL de tampon correspondant, puis lavez chaque canal une fois avec 200 μL de solution stérile tamponnée phosphate froide sans Ca2⁺ ni Mg2⁺ (DPBS -/-).
- Préparez une solution de revêtement ECM dans du DPBS (-/-) contenant du collagène humain de type I (100 μg/mL), de la fibronectine humaine (50 μg/mL) et de la laminine humaine (50 μg/mL). Utilisez 100 μL de solution comme volume de référence par puce.
- Ajoutez 50 μL au canal supérieur et 35 μL au canal inférieur, tout en aspirant simultanément le débit par les orifices de sortie.
REMARQUE : Inspectez les canaux au microscope pour détecter toute bulle. Si elles sont présentes, lavez-les doucement avec la solution ECM pour les éliminer. - Laissez de petites gouttelettes de solution ECM sur les ports d’entrée et de sortie du canal pour éviter l’évaporation lors de l’incubation nocturne (ON).
- Incubez les chips à 37 °C avec 5 % de CO₂. Le lendemain, aspirez la solution ECM et lavez les deux canaux avec 200 μL de DPBS préchauffé (-/-) à 37 °C.
- Ensemencement cellulaire et culture submergée
Étendre l’HBEC dans des flasques T25cm 2 recouvertes de collagène humain de type IV (150 μg/mL en DPBS (-/-)) en utilisant un milieu d’expansion des cellules épithéliales des voies respiratoires jusqu’à atteindre une confluence de 60 % à 70 %.
En parallèle, déployez HPMEC dans T75cm 2 flasques enrobées de gélatine (2 mg/mL dans DPBS (-/-)) en utilisant un milieu de croissance des cellules endothéliales (CE) jusqu’à atteindre une confluence de 90 % à 100 %.
Consultez le tableau supplémentaire 4 pour la composition des principaux réactifs et milieux de culture. - Ensemencement HPMEC
- Aspirez le substrat. Laver les cellules avec 10 mL de DPBS (-/-).
- Ajoutez 3 mL de trypsine-EDTA à 0,25 % (1X). Incubez pendant 30 s à température ambiante (RT).
- Ajoutez 12 mL de milieu de croissance EC (4× le volume de trypsine utilisé) pour inactiver la trypsine. Ajoutez 5 mL de milieu de croissance EC pour collecter les cellules résiduelles (volume final = 20 mL).
- Confirmez un décollement cellulaire complet au microscope.
- Prenez ~20 μL pour compter les cellules vivantes avec du bleu de trypan.
- Centrifugez la suspension à la cellule de repos à 900 × g pendant 5 minutes en RT dans un tube conique de 50 mL.
- Resuspendez la pellete dans un milieu de croissance EC. Ajustez à 7 × 10⁶ cellules/mL.
- Semez le HPMEC (passage 5) dans le canal inférieur (~20 μL ; 1,4 × 10cellules de 5 par canal).
- Inversez immédiatement les copeaux et incubez pendant 2 heures à 37 °C avec 5 % de CO₂ (Figure 3).
- Retour des puces à l’orientation d’origine.
- Laver avec un milieu de croissance EC tiède de 200 μL (37°C).
- Vérifiez l’attache sous le microscope. Prolongez l’incubation si nécessaire.
- Tête de série HBEC
- Aspirez le substrat. Lavez avec 5 mL de DPBS tiède (-/-).
- Ajoutez 1 mL de trypsine. Incubez pendant 5 minutes à 37 °C avec 5 % de CO₂.
- Décollement du moniteur sous le microscope.
- Ajouter 1 mL d’inhibiteur de trypsine défini (DTI) à un ratio 1:1 pour inactiver la trypsine.
- Ajoutez 8 mL de milieu d’expansion des cellules épithéliales des voies respiratoires (volume final = 10 mL).
- Transférez dans un tube de 50 mL.
- Prenez ~20 μL pour le comptage cellulaire avec le bleu de trypan.
- Centrifugez la suspension restante à 200 × g pendant 5 minutes en RT.
- Jetez le surnageant.
- Resuspendez le pellet dans un milieu d’expansion cellulaire épithéliale des voies respiratoires. Ajustez à 3,5 × 10⁶ cellules/mL.
- Compléter le milieu d’expansion des cellules épithéliales des voies respiratoires avec 50 nM d’acide rétinoïque synthétique à la lumière stable et 10 ng/mL de facteur de croissance épidermique humain recombinant (rhEGF).
- Démarrer HBEC (passage 2) dans le canal supérieur (~35 μL ; 1,2 × 10⁵ cellules/canal).
- Incuber pendant 4 heures à 37 °C avec 5 % de CO₂ (Figure 4).
- Remplacez le médium dans les deux canaux.
- Incubez toute la nuit (ON) dans des conditions statiques à 37 °C avec 5 % de CO₂.
REMARQUE : À partir de cette étape, utilisez uniquement le milieu dégazé pour toutes les étapes. Le dégazage doit être effectué à l’aide d’une unité Steriflip reliée à un système à vide afin de minimiser le risque de formation de bulles dans la puce.
- Connexion à l’écoulement
- Ajouter un milieu d’expansion épithéliale des voies respiratoires tiède (37°C) complété avec de l’acide rétinoïque synthétique stable à la lumière et du rhEGF au réservoir supérieur d’entrée.
- Ajoutez un milieu de croissance EC tiède (37°C) au réservoir d’entrée inférieur.
- Remplissez chaque réservoir d’entrée avec un milieu de 3 mL et chaque réservoir de sortie avec 300 μL.
- Placez les modules portables dans le module culture (Figure 5).
- Appuyez sur le cadran pour sélectionner le cycle « Prime » à l’aide du cadran rotatif.
- Appuyez sur le bouton pour lancer le cycle.
- Laissez le cycle s’exécuter (~1 min).
- Inspectez le bas de chaque module à la recherche de gouttelettes sur les quatre ports fluidiques.
- Répétez le cycle « Prime » si les gouttelettes ne sont pas visibles.
- Lavez les deux canaux de puces une fois avec le bon substrat.
- Laissez une gouttelette sur chaque prise d’entrée et de sortie pour éviter la formation de bulles.
- Tiens la puce dans la main dominante et le module portable dans l’autre main.
- Glissez la puce dans les rails jusqu’à ce qu’elle soit complètement en place.
- Placez l’unité assemblée dans le module de culture.
- Réglez le débit à 30 μL/h pour les deux canaux à l’aide du cadran rotatif.
- Maintenir les conditions d’interface liquide-liquide (LLI).
- Maintenez les puces au module sous interface liquide-liquide (LLI) pour permettre une formation uniforme des couches épithéliale et endothéliale
- Remplacez le médium tous les 3 jours. Aspirez le milieu des réservoirs de sortie. Ajoutez 3 mL de médium frais à chaque réservoir d’entrée.
REMARQUE : Surveillez les bulles au microscope. Si elle est présente, déconnectez la puce, nettoyez les canaux avec un médium, puis reconnectez-vous.
- Différenciation des cellules épithéliales et culture d’interface air-liquide
- Surveillez les cellules quotidiennement au microscope.
- Confirmer la formation d’une couche cellulaire épithéliale homogène sans espaces (généralement 3 à 5 jours).
- Établir l’interface air-liquide (ALI).
- Aspirez le milieu à partir des réservoirs d’entrée et de sortie supérieurs.
- Éliminez le milieu résiduel du canal supérieur en augmentant le débit à 600 μL/h à l’aide du cadran rotatif
- Aspirez rapidement le milieu depuis les réservoirs de sortie supérieurs.
- Aspirez le milieu des réservoirs d’entrée inférieurs.
- Ajoutez 3 mL de milieu de différenciation épithéliale complétés par 10 ng/mL de facteur de croissance endothélial vasculaire (VEGF) et 1 μg/mL de vitamine C.
- Réglez le canal supérieur sur « air » avec le cadran rotatif.
- Réglez le débit du canal inférieur à 30 μL/h.
- Maintenez la culture ALI pendant 2 semaines.
- Observez le développement de la différenciation épithéliale au microscope.
- Confirmer la formation d’un épithélium pseudostratifié. Surveillez les battements des cils et la production de mucus.
- Surveillez la morphologie des cellules endothéliales aux régions d’entrée et de sortie.
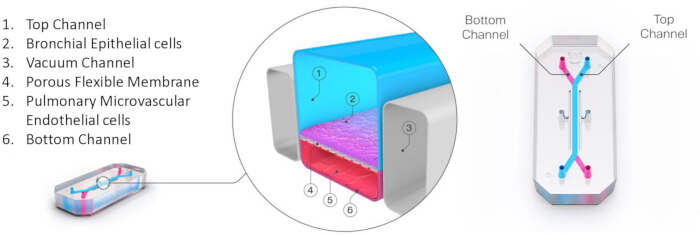
Figure 1 : Plateforme microfluidique pulmon-sur-puce. Coupe transversale (à gauche) et vue de dessus (à droite) du dispositif microfluidique à deux canaux poumon sur puce. Les illustrations schématiques sont fournies à titre illustratif uniquement. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
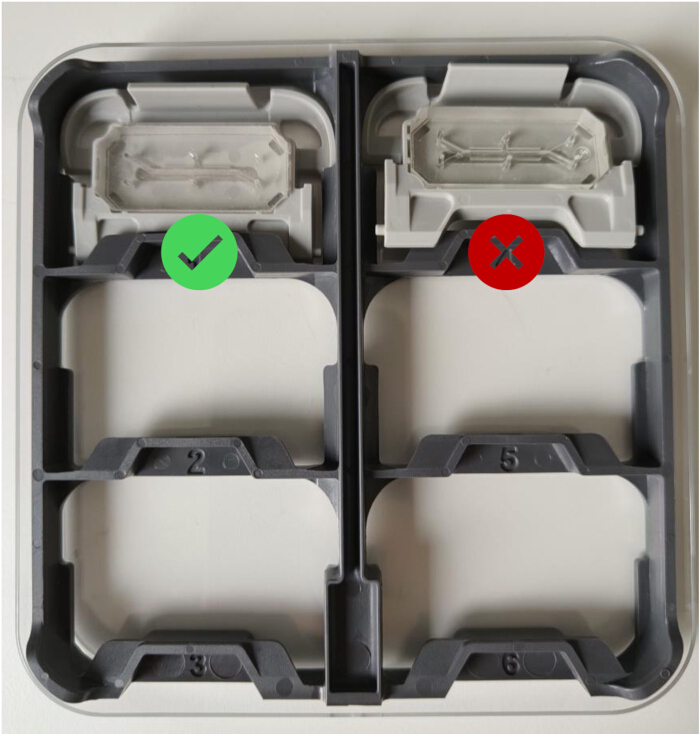
Figure 2 : Positionnement de la puce dans le berceau de puce. Image représentative montrant la bonne orientation du berceau de puce et son emplacement. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
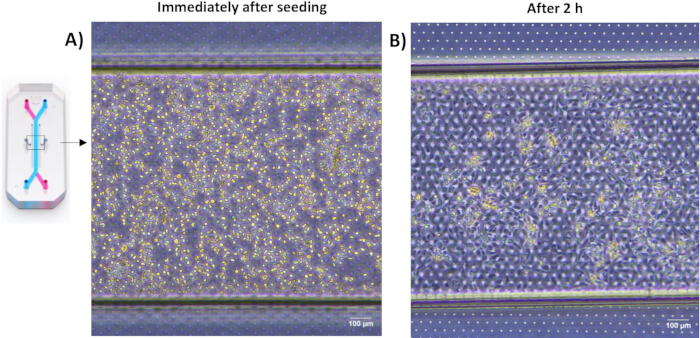
Figure 3 : Ensemencement des cellules endothéliales dans la puce microfluidique. Images représentatives en champ lumineux des cellules endothéliales microvasculaires pulmonaires immédiatement après l’ensemencement (A) et après 2 heures d’incubation (B). Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
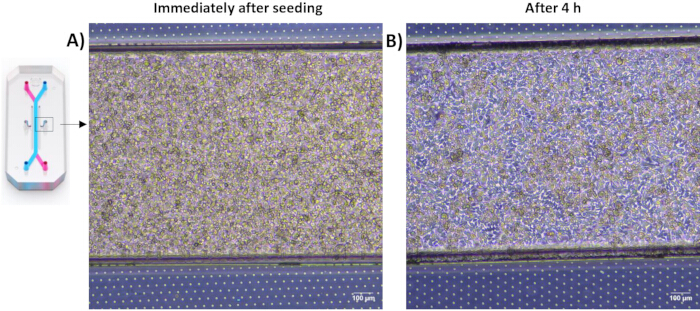
Figure 4 : Ensemencement des cellules épithéliales des voies respiratoires dans la puce microfluidique.
Images représentatives en champ clair des cellules épithéliales des voies respiratoires immédiatement après l’ensemencement (A) et après 4 heures d’incubation (B). Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
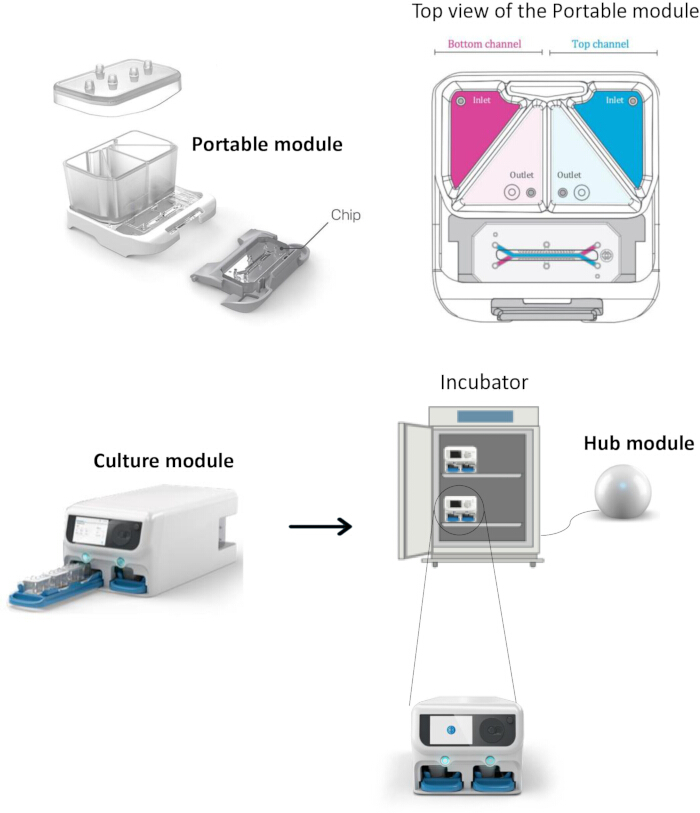
Figure 5 : Configuration du système microfluidique pulmon-sur-puce.
La partie supérieure de la figure montre le module portable avec quatre réservoirs (deux entrées et deux sorties) utilisés pour l’alimentation en milieu et la collecte des effluents. Le dispositif microfluidique est relié à un module de culture qui régule les débits et à un module de moyeu qui fournit gaz, air et énergie. La représentation schématique est fournie à titre illustratif uniquement. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
2. Évaluation de l’intégrité des barrières
L’intégrité de la barrière a été évaluée de deux manières : d’abord, sur le plan fonctionnel, en évaluant la perméabilité au dextran marqué fluorescentement sur le temps (avant l’ALI et après 10 jours d’ALI), et deuxièmement, qualitativement, par immunodétection de Zonula Occludens-1 (ZO-1) dans l’épithélium bronchique et de la cadherine endothéliale vasculaire (VE-cadherine) dans l’endothélium vasculaire pulmonaire.
- Fonction de barrière
- Sous le flux laminaire, ajoutez 1 mL de milieu de différenciation épithéliale complété en VEGF et vitamine C contenant 100 μg/mL de dextran marqué fluorescentement jusqu’au réservoir d’entrée supérieur du canal respiratoire. Simultanément, ajoutez 1 mL de milieu sans traceurs au réservoir d’entrée inférieur du canal vasculaire.
- Introduisez le milieu contenant le tracer dans le canal supérieur. À l’aide du cadran rotatif, réglez le débit dans les deux canaux à 600 μL/h pendant 3 minutes, puis aspirez le milieu à partir des réservoirs de sortie supérieur et inférieur.
- Replacez la puce, connectée au module portable, dans le module de culture. À l’aide du cadran rotatif, réglez les deux canaux à un débit de 45 μL/h et maintenez ce débit pendant 3 h.
- Collectez 100 μL de milieu dans les réservoirs de sortie supérieur et inférieur et mesurez l’intensité de fluorescence à l’aide d’un lecteur de plaques.
- Calculez la perméabilité apparente (Papp) à l’aide de l’équation de perméabilité :
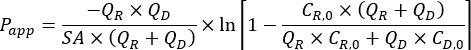
où SA représente la surface du canal de co-culture (0,17 cm2), QR etQ D désignent respectivement les débits de fluide dans les canaux de dosage et de réception (cm3/s) et CR,0 &C D,0 correspondent respectivement aux concentrations récupérées dans les canaux de dosage et de réception.
REMARQUE : Une valeur de Papp inférieure à 1 x 10⁻⁶ cm/s indique une forte intégrité de la barrière, reflétant une faible perméabilité de la couche épithéliale au traceur. Ce seuil est fixé par le fabricant du système comme mesure interne de contrôle qualité.
- Immunodétection des jonctions serrées et adhérentes
- Après 2 semaines d’ALI, retirez soigneusement la puce du module portable.
- Fixez les cellules en ajoutant 50 μL de paraformodéhyde (PFA) à 4 % dans les deux canaux pendant 20 minutes à la RT.
ATTENTION : La PFA est toxique ; Effectuez toutes les étapes dans une hotte chimique certifiée. - Lavez deux fois les deux canaux avec 200 μL de DPBS (-/-) et conservez les copeaux à 4 °C jusqu’à ce qu’ils se tachent.
- Perméabiliser les cellules en ajoutant 50 μL de 0,1 % de Triton X-100 en DPBS (-/-) pendant 5 minutes à RT. Ensuite, bloquez avec 50 μL 0,1 % de Triton X-100 dans un DPBS (-/-) contenant 10 % de sérum de chèvre, par canal pendant 1 heure à RT.
- Incubez le canal supérieur (épithélial bronchique) avec 50 μL d’anticorps primaire ZO-1 monoclonal anti-humain de souris (1:100), et le canal inférieur (endothélial vasculaire pulmonaire) avec 50 μL d’anticorps primaire monoclonal anti-humain VE-cadherine de lapin (1:600).
- Diluez les deux anticorps dans une solution d’anticorps (0,1 % de Triton X-100 dans PBS (-/-) avec 1 % de sérum de chèvre) et incubez l’ON à 4°C dans des conditions statiques.
- Lavez les copeaux trois fois avec 200 μL de DPBS (-/-). Puis incuber chaque canal pendant 1 h à la RT avec 50 μL d’anticorps secondaires conjugués au fluorophore appropriés, dilués dans une solution d’anticorps (1:500) : anticorps secondaire anti-souris de chèvre dans le canal supérieur et anti-lapin de chèvre dans le canal inférieur.
- Laver les deux canaux trois fois avec 200 μL DPBS (-/-). Effectuer une coloration nucléaire avec 50 μL pour chaque canal de 4′,6-diamidino-2-phénylindole (DAPI, 1 μg/mL en DPBS (-/-)) pendant 10 minutes à la RT.
- Effectuer un lavage final avec 200 μL de DPBS (-/-) et stocker la puce dans un DPBS (-/-) à 4°C dans l’obscurité jusqu’à l’imagerie.
- Imagez les puces sur les bâtons de couverture (20x60 mm avec une épaisseur de 0,16 à 0,19 mm) à l’aide d’un microscope à fluorescence inversée équipé d’un module à disque rotatif, d’une caméra à haute sensibilité et d’un objectif 20X (NA 0,8). Utilisez un logiciel approprié d’acquisition et d’analyse d’images pour le post-traitement.
3. Phénotypage
- Préparation des sections de copeaux
- Fixer les puces avec 4 % de PFA comme décrit dans la section 2.2.2.
- Coupez le polydiméthylsiloxane environnant (PDMS) de la puce à l’aide d’une lame de rasoir.
- Remplir les deux canaux avec 50 μL d’agarose à faible fusion à 2 % dans le DPBS (-/-), et laisser l’agarose se solidifier à la RT.
- Coupez la copey transversalement en deux moitiés à l’aide d’une lame de rasoir, plongez chaque moitié dans un milieu d’infiltration à température de coupe optimale (OCT) et conservez à −80 °C jusqu’à la coupe.
- Cryosection
- Préparez un cryostat et découpez des cryosections de 200 μm à partir des moitiés de puce.
- Collectez les sections de puces avec une pince dans des puits d’une plaque à 48 puits remplie de DPBS (-/-) et conservez-les à 4 °C jusqu’à immunocoloration.
- Coloration immunofluorescente
REMARQUE : Effectuer chaque étape de la plaque à 48 puits en utilisant 400 μL comme volume de référence.- Perméabiliser les cellules et bloquer la liaison non spécifique comme décrit précédemment à la section 2.2.4.
- Incubez chaque section ON à 4°C avec des anticorps primaires spécifiques aux cellules ciliées épithéliales (β-tubuline IV, 1:2000) ou aux cellules endothéliales (CD31, 1:25), diluées dans une solution d’anticorps (0,1 % de Triton X-100 en DPBS avec 1 % de sérum de chèvre).
- Lavez les sections trois fois avec du DPBS (-/-).
- Incuber des sections pendant 1 heure à la RT avec des anticorps secondaires anti-souris conjugués au fluorophore appropriés (1:500) pour β-tubuline IV et CD31, dilués dans une solution d’anticorps, protégés de la lumière.
- Lavez les sections trois fois avec du DPBS (-/-), et effectuez une coloration nucléaire avec du DAPI (1 μg/mL dans le DPBS (-/-)) pendant 10 minutes à la RT.
- Lavez les sections une fois avec du DPBS (-/-) avant de les monter.
- À l’aide d’une pince à petit, placez une entretoise sur chaque lame de microscope, puis placez une section au centre. Ajoutez 1 à 2 gouttes de médium de montage et placez une gaine circulaire.
- Laissez-les sécher SUR dans le noir à RT, puis scellez les bords de la couvre-lame avec du vernis à ongles transparent.
- Conservez les lames à 4°C dans le noir jusqu’à l’imagerie.
- Imagez les sections des puces à l’aide d’un microscope à fluorescence inversée, équipé d’un module à disque tournant, d’une caméra à haute sensibilité et d’un objectif 40X (NA 1,25). Traiter les images à l’aide d’un logiciel de microscopie approprié.
4. Extraction et quantification de l’ARN
- Collecte de cellules provenant de puces sous flux laminaire
- Après 2 semaines de culture ALI, déconnectez les puces des modules portables et lavez deux fois les deux canaux avec 200 μL de DPBS (-/-) préchauffés à 37 °C.
- Ajoutez 35 μL de Trypsine-EDTA à 0,25 % (1X) aux cellules endothéliales du canal inférieur et incubez pendant environ 30 secondes au RT.
- Inspectez les cellules au microscope pour confirmer un décollement complet. Ensuite, collectez la suspension de la cellule dans un tube et centrifugez à 900 × g pendant 5 minutes en RT.
- Resuspendez la pastille cellulaire dans 50 μL de réactif d’isolation d’ARN à base de phénol et stockez à -80 °C jusqu’à l’extraction de l’ARN.
- Ajoutez 50 μL de réactif d’isolation à ARN à base de phénol directement dans le canal supérieur pour lyser les cellules épithéliales, sceller les ports avec des extrémités, et incuber sur glace pendant 3 à 4 minutes.
- Pipette doucement pour assurer une lyse complète, collectez le lysat dans un tube et conservez-le à -80 °C jusqu’à l’extraction de l’ARN.
- Inspectez les deux canaux au microscope pour confirmer la collecte complète des cellules.
- Extraction d’ARN
- Ajouter du chloroforme (0,2 volume pour 1 volume de réactif d’isolation d’ARN à base de phénol utilisé pour la lyse ; 10 μL par échantillon), mélanger soigneusement les tubes en secouant et incuber sur glace pendant 2 à 3 minutes.
- Centrifugez à 12 000 × g pendant 15 minutes à 4 °C pour séparer les phases et transférer soigneusement la phase aqueuse supérieure dans un nouveau tube sans perturber l’interphase. Ensuite, ajoutez 5 μg de glycogène sans ARN à la phase aqueuse en tant que vecteur.
- Ajouter de l’isopropanol (0,5 volume pour 1 volume de réactif de lyse ; 25 μL par échantillon), incuber les échantillons à 4 °C pendant 10 minutes, et centrifuger à 12 000 × g pendant 10 minutes à 4 °C.
- Jetez le surnageant tout en conservant la pelote d’ARN.
- Lavage et resuspension de l’ARN
- Lavez le pellet d’ARN avec 75 % d’éthanol (1 volume pour 1 volume de réactif de lyse ; 50 μL par échantillon), un vortex brièvement et centrifugez à 7 500 × g pendant 5 minutes à 4 °C.
- Jetez le surnageant et laissez la pellete sécher à l’air libre pendant 5 à 10 minutes.
- Resuspendez l’ARN dans 30 μL d’eau sans RNase par pipetage doux et stockez l’ARN à -80 °C jusqu’à une utilisation ultérieure.
- Évaluer l’intégrité et la quantification de l’ARN à l’aide d’un système de séparation des acides nucléiques à puce microfluidique.
Résultats
Établissement des modèles de co-culture poumon sur puce
L’imagerie en champ clair a révélé l’adhésion et la croissance cellulaires au fil du temps dans le système de co-culture pulmon-sur-puce. Les cellules épithéliales des voies respiratoires bronchiques se sont proliférées en culture submergée à l’interface liquide-liquide (LLI), formant une couche uniforme le long du canal supérieur (Figure 6A), tandis que les cellules endothéliales vasculaires pulmonaires se sont étendues pour recouvrir tout le canal inférieur, formant une monocouche confluente (Figure 6B).
Une fois la co-culture établie, les cellules endothéliales ont été surveillées aux zones d’entrée et de sortie du canal inférieur, qui sont les seules zones accessibles pour une inspection microscopique. Comme montré à la Figure 7, les cellules endothéliales restaient viables et présentaient une morphologie allongée alignée avec la direction du flux. Après 14 jours de culture ALI, la couche épithéliale dans les modèles sains et BPCO présentait des battements ciliaires visibles (vidéo complémentaire). Comme prévu, le modèle de la MPOC a montré une production de mucus nettement accrue par rapport au modèle sain (Figure 8), reprenant ainsi des caractéristiques clés de la pathologie de la BPCO.
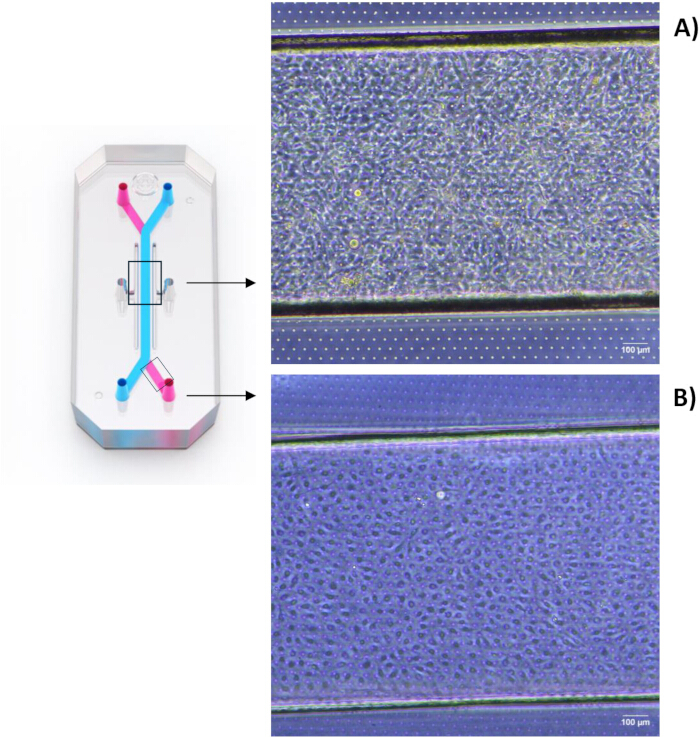
Figure 6 : Co-culture des cellules épithéliales et endothéliales des voies respiratoires dans le dispositif microfluidique.
Images représentatives des cellules épithéliales bronchiques primaires sur la surface supérieure (A) et des cellules endothéliales microvasculaires pulmonaires primaires sur la face inférieure (B) de la membrane poreuse sous conditions d’interface liquide-liquide (LLI). Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
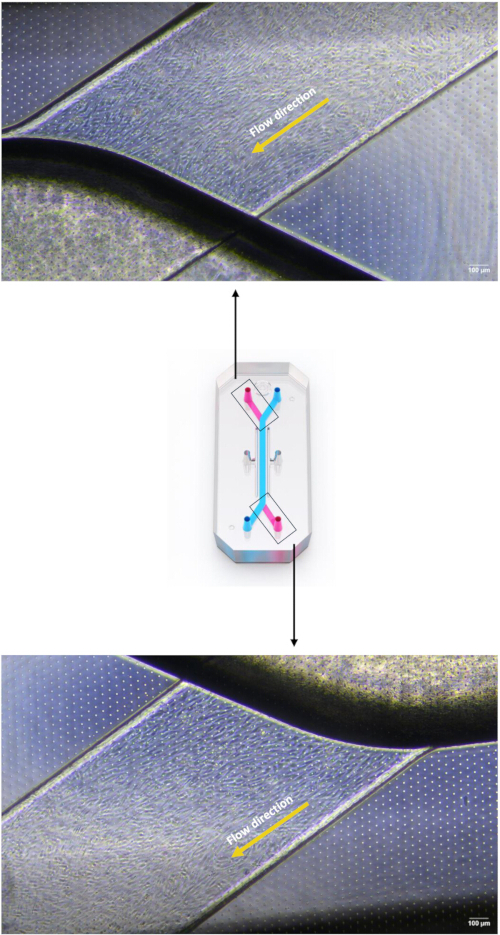
Figure 7 : Cellules endothéliales dans le canal microfluidique inférieur lors de l’interface air-liquide.
Images représentatives en champ lumineux montrant les cellules endothéliales microvasculaires pulmonaires à l’entrée (supérieure) et à la sortie (inférieure) du canal inférieur lors de l’interface air-liquide (ALI). Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
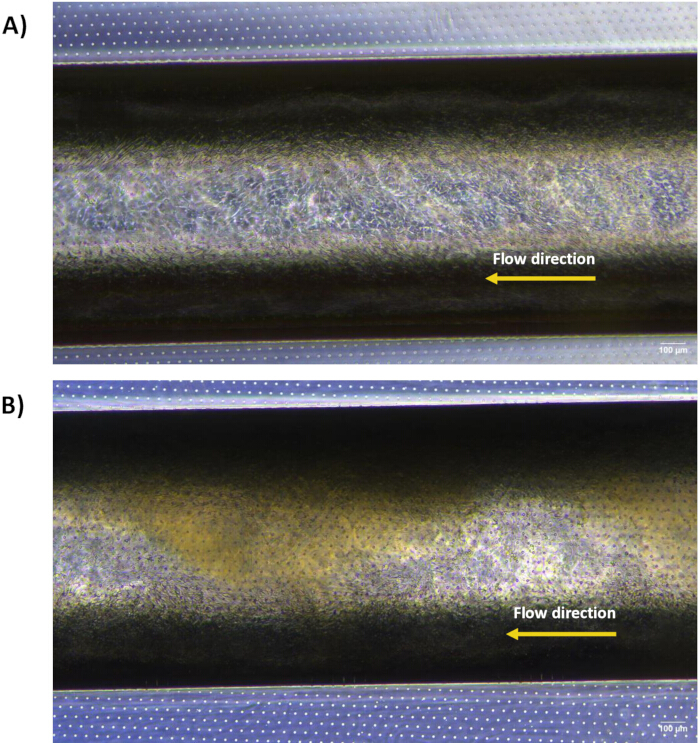
Figure 8 : Accumulation de mucus dans le canal respiratoire.
Images représentatives montrant la production de mucus après 14 jours d’interface air-liquide (ALI) dans des modèles de coculture saines (A) et BPCO (B). La couche brune dans le compartiment des voies respiratoires représente le mucus accumulé. Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Évaluation quantitative de l’intégrité des barrières
L’évaluation fonctionnelle de l’intégrité de la barrière a montré une perméabilité apparente (Papp) plus faible dans les modèles sains et BPCO comparé au témoin positif (puce recouverte de MCE sans cellules) (Figure 9).
En l’absence de cellules, des valeurs élevées de Papp indiquaient une formation minimale de barrières. En revanche, en présence de couches épithéliales et endothéliales, le traceur fluorescent de dextran ne traversait pas la MCE, ce qui entraînait une perméabilité nettement réduite et indiquait une barrière forte. Cet effet a été observé avant et après 10 jours d’ALI, démontrant que la fonction de barrière est établie tôt lors de la différenciation.
Comme le montre la Figure 10, dans le modèle sain, les valeurs moyennes de Papp avant l’ALI étaient déjà inférieures au seuil indicateur d’une intégrité robuste de la barrière (1 × 10⁻6 cm/s) et ont encore diminué lors de la culture de l’IA. Dans le modèle de BPCO, les valeurs moyennes de Papp se situaient également dans la plage de barrières fortes avant l’ALI et, bien que légèrement augmentées après 10 jours d’ALI, l’intégrité de la barrière restait robuste.
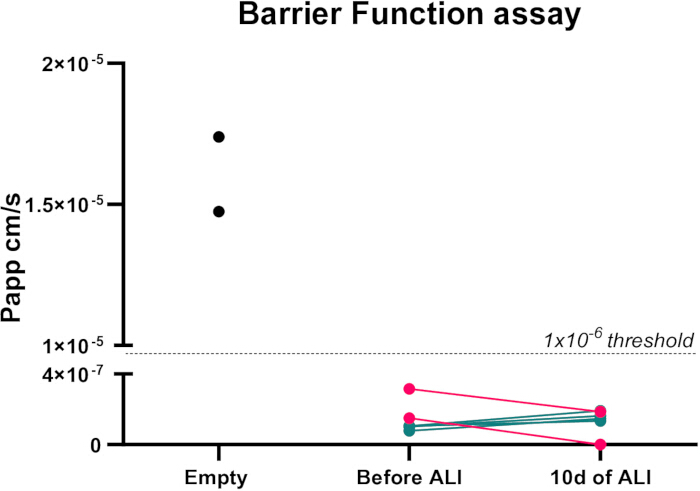
Figure 9 : Évaluation de la fonction de barrière dans le modèle poumon sur puce.
Perméabilité apparente (Papp) mesurée dans des puces recouvertes de MCE sans cellules (contrôle positif pour fuite ; noir), et dans des modèles de coculture saines (rose) et BPCO (vert) avant et après 10 jours d’interface air-liquide (ALI). Chaque point représente une puce individuelle. Le modèle sain inclut des cellules provenant de donneurs distincts, tandis que le modèle de BPCO utilise des cellules dérivées d’un seul patient. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
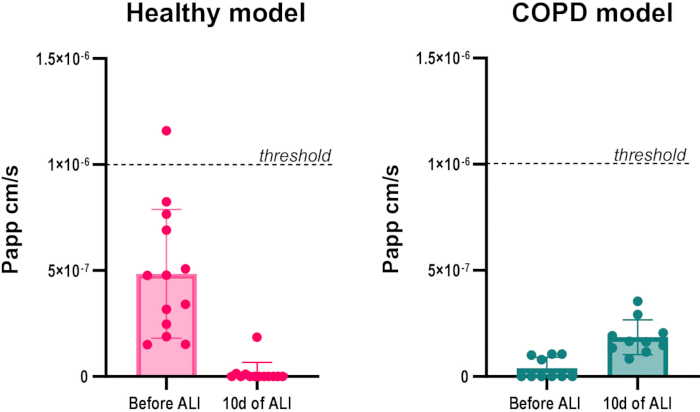
Figure 10 : Comparaison de la fonction barrière dans les modèles sains et les modèles BPCO.
Perméabilité apparente (Papp) mesurée avant et après 10 jours d’interface air-liquide (ALI) dans des modèles de coculture saines (gauche) et de BPCO (droite). Chaque point représente une puce individuelle. Les valeurs sont en moyenne ± SD. Le modèle BPCO inclut des cellules de trois patients, tandis que le modèle sain combine des cellules de différents donneurs. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Immunodétection des jonctions serrées et adhérentes
L’analyse d’immunofluorescence a confirmé l’organisation structurale des protéines jonctionnelles. ZO-1 a montré une localisation continue le long des bordures des cellules épithéliales bronchiques, indiquant une barrière épithéliale intacte (Figure 11A). De même, la coloration VE-cadherine a révélé une distribution uniforme aux jonctions endothéliales, cohérente avec une monocouche endothéliale confluente. Les cellules endothéliales présentaient une morphologie allongée alignée avec la direction du flux (Figure 11B).
Aucune différence n’a été observée entre les modèles sains et BPCO dans la localisation des protéines de jonction serrée et adhérente. Ces résultats sont cohérents avec les données sur la barrière fonctionnelle, soutenant la présence d’une interface épithéliale-endothéliale physiologiquement pertinente avec une intégrité jonctionnelle préservée dans les deux modèles.
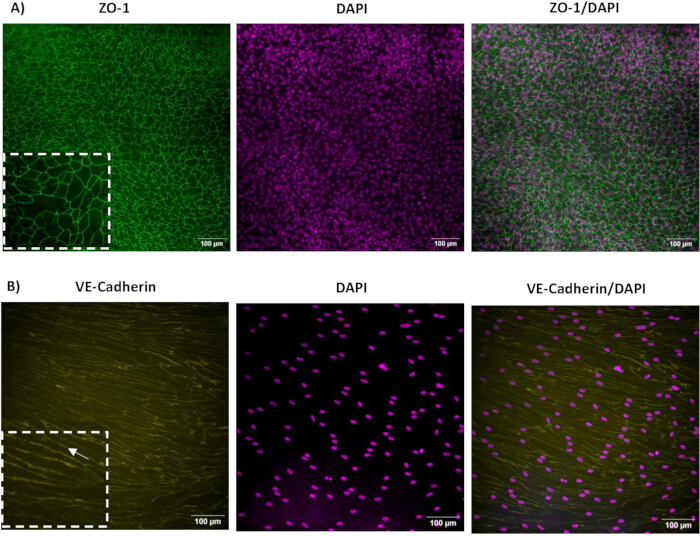
Figure 11 : Expression protéique jonctionnelle dans le modèle de co-culture pulmon-sur-puce.
Images d’immunofluorescence en vue de dessus obtenues après 14 jours d’interface air-liquide (ALI) montrant la localisation de ZO-1 dans le compartiment épithélial des voies respiratoires (A) et la localisation de la VE-cadherine dans le compartiment endothélial (B). Les noyaux sont colorés avec du DAPI. La flèche indique la direction du flux. Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Phénotypage
La coloration immunofluorescente des cryosections en puce a révélé des cellules positives à β-tubuline IV sur le côté apical de la membrane, indiquant la différenciation des cellules épithéliales des voies respiratoires en cellules ciliées, une caractéristique définissante de l’épithélium bronchique mature (Figure 12A). La coloration CD31 a confirmé la présence d’une monocouche endothéliale confluente le long du côté basal de la membrane (Figure 12B). Ces résultats démontrent que le système de co-culture permet l’établissement de phénotypes épithéliaux et endothéliaux physiologiquement pertinents dans les deux modèles.
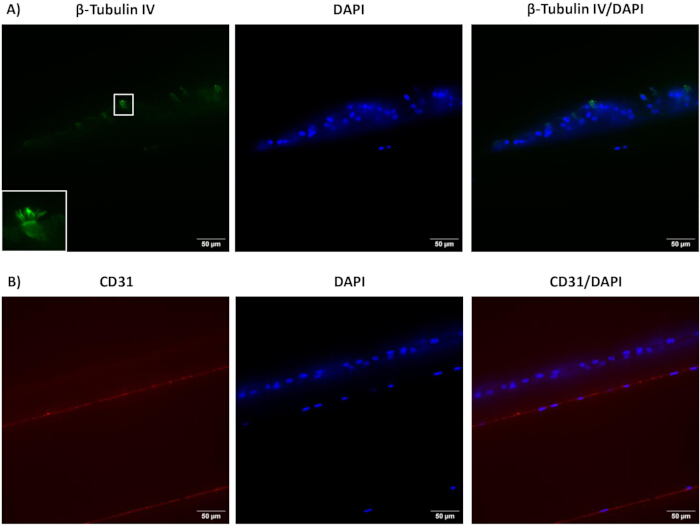
Figure 12 : Images d’immunofluorescence des coupes transversales du poumon sur une puce. Coloration immunofluorescente représentative des sections transversales de la puce après 14 jours d’interface air-liquide (ALI) montrant une expression de β-tubuline IV dans le compartiment épithélial des voies respiratoires (A) et une expression de CD31 dans le compartiment endothélial (B). Les noyaux sont colorés avec du DAPI. Barre d’échelle : 50 μm. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Extraction et quantification de l’ARN
L’ARN isolé à partir de cellules épithéliales des voies respiratoires a donné des concentrations allant de 59 à 135 ng/μL, avec des nombres d’intégrité de l’ARN (RIN)11 de 7,4 à 9,6, tandis que l’ARN des cellules endothéliales microvasculaires variait de 12 à 46 ng/μL, avec des valeurs de RIN de 9,6 à 10, dans les deux modèles. Les données indiquaient que les deux modèles atteignaient des quantités suffisantes d’ARN de haute qualité, adaptées à des analyses moléculaires en aval.
Tableau supplémentaire 1 : Informations sur les donneurs pour les cellules épithéliales des voies respiratoires. Le tableau représente les cellules épithéliales des voies respiratoires bronchiques utilisées dans le modèle sain. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 2 : Informations sur les donneurs pour les cellules endothéliales microvasculaires pulmonaires. Informations sur les donneurs pour les cellules endothéliales microvasculaires pulmonaires utilisées dans le modèle sain. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 3 : Informations sur les patients. Le tableau présente les informations concernant les cellules endothéliales épithéliales des voies respiratoires et microvasculaires pulmonaires utilisées dans le modèle de BPCO. Veuillez cliquer ici pour télécharger ce fichier.
Tableau complémentaire 4 : Aperçu des principaux réactifs et milieux de culture utilisés dans le protocole.Veuillez cliquer ici pour télécharger ce fichier.
Vidéo complémentaire 1 : Batements ciliaires dans le canal des voies respiratoires (modèle sain).
Vidéo représentative montrant le battement ciliaire après 14 jours d’interface air-liquide (ALI). Veuillez cliquer ici pour télécharger ce fichier.
Vidéo complémentaire 2 : Battements ciliaires dans le canal des voies respiratoires (modèle BPCO).
Vidéo représentative montrant le battement ciliaire après 14 jours d’interface air-liquide (ALI). Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Cette étude présente un protocole détaillé pour établir un système de co-culture poumon sur puce afin de générer à la fois un modèle sain, utilisant des cellules endothéliales épithéliales bronchiques et microvasculaires pulmonaires disponibles sur le marché, et un modèle de MPOC utilisant des cellules dérivées du patient provenant de poumons explantés. Dans les deux modèles, les deux types cellulaires sont séparés par une membrane poreuse et extensible, recouverte d’une matrice extracellulaire spécifique à chaque type cellulaire (MEC), créant un microenvironnement qui ressemble davantage au poumon in vivo . Le protocole inclut également des méthodes pour évaluer l’intégrité de la barrière, le phénotypage cellulaire et l’extraction d’ARN de chaque compartiment. Les deux modèles ont été maintenus avec succès dans des conditions de perfusion dynamique et d’interface air-liquide (ALI), aboutissant à une barrière épithéliale-endothéliale physiologiquement pertinente avec un épithélium des voies respiratoires pseudostratifiées entièrement différencié. Des cellules endothéliales alignées dans la direction du flux, comme observé in vivo, et de l’ARN de haute qualité a été obtenu dans les deux compartiments.
Plusieurs étapes cruciales sont essentielles pour établir avec succès ce système de coculture. Un ensemencement précis des cellules épithéliales est nécessaire pour obtenir une couverture uniforme, car une distribution non uniforme peut entraîner une couverture de surface incomplète et une formation de barrière compromise. Dans de tels cas, le compartiment apical doit être légèrement aspiré et les cellules épithéliales re-ensemencées. L’établissement de l’ALI ne doit être effectué qu’une fois que les couches épithéliale et endothéliale forment des monocouches continues, car une exposition prématurée à l’ALI peut entraîner une fuite de milieu vasculaire dans le compartiment des voies respiratoires et une différenciation altérée. Si la conjonction n’est pas atteinte, la création de l’ALI devrait être retardée.
Un retrait incomplet du milieu apical ou une exposition incohérente à l’IA peut conduire à une maturation épithéliale hétérogène. Le milieu résiduel dans le canal supérieur peut être éliminé en augmentant le débit à 600 μL/h pendant 3 à 4 minutes. La formation de bulles, qui perturbe la perfusion et affecte la viabilité cellulaire, peut survenir en raison d’un équilibre insuffisant. Les bulles peuvent être éliminées en augmentant temporairement le débit à 600 μL/h pendant 3 à 4 minutes ou, si elles persistent, en déconnectant la puce et en les délogeant manuellement à l’aide d’une pipette. Dans le modèle de BPCO, une production excessive de mucus peut obstruer les voies respiratoires et nuire à la perfusion ; dans de tels cas, un lavage doux avec le DPBS suivi du rétablissement de l’ALI est recommandé.
La plupart des systèmes de co-culture existants combinant cellules épithéliales des voies respiratoires et cellules endothéliales pulmonaires reposent sur des cellules primaires commercialement disponibles et des revêtements génériques de MEE tels que le collagène ou la fibronectine 10,12. Bien que ces éléments soutiennent l’adhésion, ils ne reproduisent que partiellement les propriétés biochimiques et mécaniques de l’interface voies aériennes-vasculaires. En revanche, le système actuel utilise des revêtements ECM spécifiques à un type cellulaire, créant un microenvironnement qui imite davantage le tissu pulmonairehumain 13.
La fonction de barrière est couramment évaluée à l’aide de résistance électrique transépithéliale/transendothéliale (TEER), bien que cette méthode puisse être influencée par l’organisation épithélialemulticouche 14. Dans cette étude, la perméabilité au dextrane a été utilisée pour évaluer l’intégrité fonctionnelle. Les valeurs observées de Papp étaient inférieures au seuil d’une solidité de barrière (1 × 10⁻6 cm/s), indiquant une interface épithéliale–endothéliale robuste. L’épithélium des voies respiratoires présentait des caractéristiques de différenciation, notamment le battement ciliaire et la production de mucus, ainsi qu’une localisation continue de ZO-1 et VE-cadherine aux jonctions cellulaires. De plus, un ARN de haute qualité a été constamment obtenu dans les deux compartiments, permettant des analyses en aval spécifiques au type cellulaire.
Une avancée clé de ce travail est le développement d’un modèle pulmon-sur-puce pour la BPCO, dans lequel les cellules épithéliales et endothéliales proviennent du même patient. D’après des connaissances récentes, une telle co-culture compatible avec les patients n’a jamais été rapportée auparavant. Des études antérieures ont incorporé des cellules épithéliales dérivées de laMPOC 7,8 mais s’appuyaient sur des cellules endothéliales d’origine commerciale, limitant l’investigation des interactions épithéliaux-endothéliales spécifiques à la maladie. Le modèle actuel surmonte cette limitation en préservant les interactions cellulaires spécifiques au patient.
Le modèle de BPCO a repris les principales caractéristiques de la maladie, notamment une augmentation de la production demucus 3, tout en maintenant l’alignement endothélial et l’intégrité jonctionnelle sous le flux. Il est important de noter que la co-culture de cellules épithéliales et endothéliales dérivées du patient n’a pas compromis la fonction ou la viabilité de la barrière, malgré une production accrue de mucus. Le système est resté stable sous les conditions d’IA et la perfusion continue, soutenant son utilisation pour des études à long terme. De plus, la plateforme permet un étirement mécanique, renforçant encore sa pertinence physiologique.
Une force importante de ce flux de travail est la capacité d’évaluer les conditions saines et les conditions liées à la MPOC au sein d’une même plateforme sous des paramètres expérimentaux comparables. Cela permet une évaluation directe des différences associées à la maladie dans la différenciation épithéliale, la fonction endothéliale et l’intégrité des barrières. Les modèles peuvent également être utilisés indépendamment, selon la question de recherche. Le modèle sain convient aux études mécanistiques et à la modulation des voies, tandis que le modèle BPCO offre une plateforme pour l’évaluation thérapeutique et les tests de drogues. La capacité à extraire de l’ARN de haute qualité de chaque compartiment séparément permet encore un profilage moléculaire spécifique à chaque type cellulaire. L’utilisation de cellules appariées par le patient dans le modèle de MPOC préserve des interactions pertinentes pour la maladie qui seraient autrement perdues en combinant des sources cellulaires non apparentées.
Malgré ces avantages, plusieurs limites doivent être prises en compte. L’utilisation de systèmes poumon sur puce nécessite un équipement spécialisé et une expertise technique, ce qui peut limiter l’accessibilité. De plus, le modèle n’inclut actuellement pas d’autres types cellulaires pulmonaires pertinents, tels que les cellules immunitaires ou stromaliques, qui peuvent influencer les réponses aux agents pathogènes et aux médicaments. Cependant, la plateforme peut être adaptée pour incorporer des cellules immunitaires circulantes, permettant d’étudier leurs interactions avec les compartiments épithéliaux et endothéliaux. L’accès au matériel de MPOC dérivé du patient peut également être limité, et la variabilité entre patients peut affecter la reproductibilité. De plus, une production excessive de mucus peut perturber la perfusion.
L’impact de l’étirement mécanique cyclique n’a pas été étudié dans cette étude mais représente une orientation future importante. La membrane extensible permet de simuler les forces mécaniques associées à la respiration, connues pour influencer la fonction cellulaire, la réparation et l’homéostasie 15,16. Des études antérieures ont montré que la contrainte mécanique peut améliorer l’absorption et le transport des nanoparticules à travers la barrièreépithéliale 10.
En conclusion, les modèles sains et de BPCO pulmons sur puce présentés ici fournissent une plateforme physiologiquement pertinente pour étudier les interactions épithéliales-endothéliales en santé et maladie. La nature dynamique du système permet un contrôle précis des conditions de flux et soutient des applications telles que les tests de médicaments et les études d’exposition aux agents pathogènes. Ce protocole offre une alternative robuste aux modèles traditionnels in vitro et aux modèles animaux et représente un outil précieux pour faire progresser la recherche translationnelle en voie respiratoire.
Déclarations de divulgation
Aucun auteur n’a de conflits d’intérêts.
Remerciements
Ce travail a été financé par une bourse de recherche (G065221N) de la Research Foundation-Flanders.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 0.25% trypsin-EDTA (1X) (pour les cellules endothéliales) | Gibco | 25200-056 | Utilisé pour le détachement enzymatique des cellules endothéliales microvasculaires pulmonaires. |
| Plat de culture cellulaire carré de 120 mm x 120 mm | VWR | 688161 | Utilisé pour maintenir le support de puce pendant la préparation et la manipulation de la puce. |
| 2100 Bioanalyzer | Agilent | G2939A | Utilisé pour évaluer la qualité et l'intégrité de l'ARN. |
| 2-propanol | Sigma-Aldrich | I9516 | Utilisé pour précipiter l'ARN lors de l'extraction. |
| 4',6-diamidino-2-phénylindole (DAPI) | Invitrogen | D1306 | Utilisé pour colorer les noyaux cellulaires lors de l'immunofluorescence. |
| Tubes coniques de 50 mL | Cellstar | 227261 | Utilisés pour la collecte cellulaire, la centrifugation et la préparation des suspensions cellulaires. |
| Kit Agilent RNA 6000 Nano | Agilent | 5067-1511 | Utilisé pour l'analyse de la qualité de l'ARN avec le Bioanalyzer. |
| Amphotericin B | Gibco | 15290-026 | Utilisé pour prévenir la contamination fongique pendant la culture cellulaire. |
| Compteur cellulaire automatique | NanoEntek | EVE PLUS | Utilisé pour déterminer la concentration cellulaire et la viabilité avant l'ensemencement. |
| Plats multipuits de culture cellulaire, 48 puits, stériles | Falcon | 353078 | Utilisés pour maintenir les sections transversales pendant les procédures de coloration. |
| Centrifugeuse | Hettich | 320R | Utilisée pour peler les cellules avant l'ensemencement. |
| Support de puce | Emulate | support@emulatebio.com | Utilisé pour soutenir et maintenir les puces pendant l'activation de surface, le revêtement et l'ensemencement cellulaire. |
| Chloroforme | Sigma-Aldrich | 366927 | Utilisé pour la séparation de phase pendant l'extraction d'ARN. |
| Module de disque tournant Cicero | CrestOptics S.p.A. | Utilisé pour effectuer des images de fluorescence confocale à haute vitesse. | |
| Lamelles de recouvrement | Epredia | BB02400600AC13MNZ0 | Utilisées pour soutenir les puces pendant l'imagerie confocale. Description: 24 x 60 mm, #1.5 |
| Cryostat | Thermo Fisher Scientific | NX70 | Utilisé pour sectionner les échantillons OCT-incorporés. |
| Module de culture (Zoë-CM) | Emulate | support@emulatebio.com | Utilisé pour contrôler les conditions environnementales pour la culture cellulaire au sein du système microfluidique. |
| Inhibiteur de trypsine défini (DTI) | Thermo Fisher | R007100 | Utilisé pour neutraliser l'activité de la trypsine après le détachement des cellules épithéliales. |
| Dextran Cascade Blue 3KDa | Thermo Fisher | D7132 | Utilisé comme traceur fluorescent pour évaluer la perméabilité de la barrière. |
| Kit de milieu de croissance pour cellules endothéliales MV2 | PromoCell | C-22022 | Utilisé pour l'entretien et l'expansion des cellules endothéliales microvasculaires pulmonaires. |
| ER-1 réactif d'activation de surface (réactif de poudre d'activation sensible à la lumière) | Emulate | support@emulatebio.com | Utilisé pour activer les surfaces de puce pour le revêtement ultérieur. |
| ER-2 réactif d'activation de surface (tampon) | Emulate | support@emulatebio.com | Utilisé comme tampon pendant l'activation de surface de la puce. |
| Éthanol absolu | Thermo Fisher Scientific | 437433T | Utilisé pour laver les pellets d'ARN pendant l'extraction. |
| Lecteur de plaques fluorescentes | Agilent | BioTek Sinergy H1 microplate reader | Utilisé pour mesurer l'intensité de fluorescence pour les essais de perméabilité. |
| Gélatine de peau de bovin | Sigma-Aldrich | G9391 | Utilisée pour revêtir les surfaces de culture pour favoriser l'adhésion des cellules endothéliales. |
| Anticorps Anti-Souris Alexa Fluor 488 (pour ZO-1 et β-tubuline IV) | Thermo Fisher | A11001 | Utilisé pour détecter les anticorps primaires de souris avec une fluorescence verte. |
| Anticorps Anti-Souris Alexa Fluor 594 (pour CD31) | Thermo Fisher | A11005 | Utilisé pour détecter les anticorps primaires de souris avec une fluorescence rouge. |
| Anticorps Anti-Lapin Alexa Fluor 555 (pour VE-cadhérine) | Thermo Fisher | A21429 | Utilisé pour détecter les anticorps primaires de lapin avec une fluorescence orange-rouge. |
| Module central (Orb-HM) | Emulate | support@emulatebio.com | Utilisé pour fournir du gaz et de l'énergie au module de culture. |
| Cellules épithéliales bronchiques humaines (HBEC) | Lonza | CC-2540S | Utilisées comme cellules épithéliales des voies respiratoires pour établir le modèle de co-chercher sain. |
| Collagène humain IV | Sigma | C5533 | Utilisé pour revêtir les flacons T25 pour favoriser l'attachement des cellules épithéliales. |
| Collagène humain de type I | Advanced Biomatrix | 5007 | Utilisé comme composant de la solution de matrice extracellulaire pour le revêtement des puces. |
| Fibronectine humaine | Sigma-Aldrich | F0895 | Utilisé comme composant de la solution de matrice extracellulaire pour le revêtement des puces. |
| Laminine humaine | Sigma -Aldrich | L4544 | Utilisé comme composant de la solution de matrice extracellulaire pour le revêtement des puces. |
| Cellules endothéliales microvasculaires pulmonaires humaines (HPMEC) | PromoCell | C-12281 | Utilisé comme cellules endothéliales microvasculaires pulmonaires pour établir le modèle de co-chercher sain. |
| Facteur de croissance épidermique humain recombinant (hrEGF) | PromoCell | C-60182 | Utilisé pour favoriser la prolifération des cellules épithéliales. |
| Solution mère d'hydrocortisone | StemCell Technologies | 7925 | Utilisé comme supplément dans les milieux de culture pour soutenir la différenciation des cellules épithéliales des voies respiratoires. |
| ImageJ | Fiji software | version ImageJ 1.54p | Utilisé pour traiter et analyser les images acquises. |
| Microscope inversé pour culture cellulaire | Leica Microsystems | DMi1 | Utilisé pour surveiller la morphologie cell |
Références
- Blume, C., et al. Cellular crosstalk between airway epithelial and endothelial cells regulates barrier functions during exposure to double-stranded RNA. Immun Inflamm Dis. , (2017).
- Sakao, S., Voelkel, N. F., Tatsumi, K. The vascular bed in COPD: pulmonary hypertension and pulmonary vascular alterations. Eur Respir Rev. , (2014).
- Shaykhiev, R., Crystal, R. G. Early events in the pathogenesis of chronic obstructive pulmonary disease: smoking-induced reprogramming of airway epithelial basal progenitor cells. Ann Am Thorac Soc. , (2014).
- Blume, C., Davies, D. E. In vitro and ex vivo models of human asthma. Eur J Pharm Biopharm. , (2013).
- Lin, C., et al. Mechanotransduction regulates the interplays between alveolar epithelial and vascular endothelial cells in lung. Front Physiol. , (2022).
- Shrestha, J., et al. Lung-on-a-chip: the future of respiratory disease models and pharmacological studies. Crit Rev Biotechnol. , (2020).
- Benam, K. H., et al. Small airway-on-a-chip enables analysis of human lung inflammation and drug responses in vitro. Nat Methods. , (2016).
- Benam, K. H., et al. Matched-comparative modeling of normal and diseased human airway responses using a microengineered breathing lung chip. Cell Syst. , (2016).
- Plebani, R., et al. Modeling pulmonary cystic fibrosis in a human lung airway-on-a-chip. J Cyst Fibros. , (2022).
- Huh, D., et al. Reconstituting organ-level lung functions on a chip. Science. , (2010).
- Schroeder, A., et al. The RIN: an RNA integrity number for assigning integrity values to RNA measurements. BMC Mol Biol. , (2006).
- Stucki, A. O., et al. A lung-on-a-chip array with an integrated bio-inspired respiration mechanism. Lab Chip. , (2015).
- Burgstaller, G., et al. The instructive extracellular matrix of the lung. Eur Respir J. , (2017).
- Srinivasan, B., et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. , (2015).
- Fang, Y., Wu, D., Birukov, K. G. Mechanosensing and mechanoregulation of endothelial cell functions. Compr Physiol. , (2019).
- Santus, P., et al. The airways' mechanical stress in lung disease: implications for COPD pathophysiology and treatment evaluation. Can Respir J. , (2019).