Cette étude a examiné le rôle potentiel de la signalisation JNK1/2 dans les lésions myocardiques induites par l’aconitine, chez les rats. Une augmentation de la phosphorylation de JNK1/2 était associée à des lésions myocardiques, tandis que l’inhibition pharmacologique de la voie JNK a partiellement atténué les lésions myocardiques, suggérant que la signalisation JNK pourrait participer à une cardiotoxicité induite par l’aconitine.
Article de recherche
L’aconitine induit des lésions myocardiques chez les rats associées à l’activation de la voie de signalisation JNK1/2
Dans cet article
Résumé
Résumé
L’empoisonnement aigu à l’aconitine (Acon) peut provoquer des arythmies et des lésions du myocarde ; cependant, les mécanismes sous-jacents restent flous. Cette étude a étudié le mécanisme de la lésion du myocarde induite par une intoxication aiguë à l’Acon. Un modèle de rat (n = 51) d’intoxication aiguë à l’Acon a été établi par administration intragastrique. Des traçages électrocardiographiques ont été utilisés pour enregistrer les changements du rythme cardiaque. Des colorations à l’hématoxyline et à l’éosine (HE) ainsi qu’une coloration de Masson ont été réalisées pour évaluer les lésions pathologiques du myocarde et le dépôt de collagène. Les niveaux d’expression des enzymes et protéines cardiaques dans le sang veineux ont été détectés à l’aide de kits d’immunosorbent liés aux enzymes (ELISA). La relation structure–activité entre Acon et la voie JNK a été étudiée par amarrage moléculaire. Les niveaux d’expression des protéines phosphorylées de la kinase N-terminale c-Jun 1/2 (JNK1/2) ont été détectées par Western blotting. Dans cette étude, des arythmies ventriculaires ont été observées chez les rats après administration intragastrique d’Acon. Le tissu myocardique présentait une disposition désordonnée des fibres et cellules myocardiques, accompagnée d’un dépôt anormal de collagène. Les résultats de l’amarrage moléculaire indiquaient des interactions potentielles entre Acon et JNK1/2. Par contre, les niveaux d’expression des enzymes et protéines cardiaques, ainsi que de JNK1/2 phosphorylés, ont été significativement augmentés. D’autres études ont démontré que le traitement par l’inhibiteur du JNK SP600125 partiellement inversé la lésion myocardique induite par l’Acon chez les rats. Ces résultats indiquent que la phosphorylation de JNK1/2 est impliquée dans le développement de lésions du myocarde induites par une intoxication aiguë à l’aconitine. Les résultats suggèrent que l’activation de la voie de signalisation JNK1/2 contribue aux dommages myocardiques induits par l’aconitine, et que l’inhibition de la voie JNK1/2 pourrait atténuer les lésions myocardiques causées par une intoxication aiguë à l’aconitine.
Introduction
L’acon est un extrait naturel d’alcaloïde diterpène issu de la plante Aconitum de la famille des Ranunculaceae. Il a des effetsanti-inflammatoires 1,2, analgésiques, antitumoraux, antirhumatismal, métaboliques immunitaires et favorisant la circulationsanguine 3,4,5. Cependant, une utilisation inappropriée ou excessive de préparations contenant de l’Acon peut entraîner de graves empoisonnements. Les symptômes causés par l’empoisonnement à l’aconitine incluent les symptômescardiaques 6, les symptômesneurologiques 7 et les symptômesgastro-intestinaux 8. Ces dernières années, il y a eu des rapports fréquents dans le monde entier concernant des cas d’empoisonnement ou de décèsà l’aconite 9,10,11. L’empoisonnement à l’acon se manifeste principalement dans le système cardiovasculaire, nerveux et digestif. Parmi elles, la principale cause de décès par empoisonnement est la cardiotoxicité. Les lésions cardiaques causées par Acon sont très graves ; En particulier, la brève apparition du syndrome rend difficile la réalisation rapide du traitement clinique. Habituellement, une intoxication aiguë à l’Acon provoque nausées, diarrhée, vertiges, douleurs thoraciques, dyspnée et d’autres premiers symptômes enquelques heures. À l’heure actuelle, le mécanisme détaillé des lésions myocardiques causées par une intoxication aiguë à l’Acon reste incertain, et il n’existe aucun médicament cliniquement efficace capable d’atténuer efficacement les lésions myocardiques causées par l’empoisonnement à l’Acon12,13.
Des dommages dans l’empoisonnement aigu à l’Acon qui pourraient permettre d’explorer le mécanisme des lésions myocardiques pourraient constituer un moyen important d’une investigation dépendante du temps. Un tel modèle pourrait avoir un potentiel pour un traitement futur des patients atteints d’intoxication aiguë à l’Acon et pourrait prévenir précocement le développement précoce du syndrome. Des études ont émis l’hypothèse sur le rôle de la voie de signalisation de la kinase n-terminale c-Jun (JNK) dans la réponse immunitaire aux poisons. La voie de signalisation JNK est l’une des voies de signalisation de la protéine kinase activée par les mitogènes (MAPK). La famille JNK possède trois gènes (JNK1/MAPK8, JNK2/MAPK9 et JNK3/MAPK10). JNK1 et JNK2 peuvent être exprimés dans la plupart des tissus, y compris le cœur, tandis que JNK3 se trouve principalement dans lecerveau 14, et est principalement lié au stress oxydatif et à la réponse inflammatoire des cellules15. Des études ont montré que la voie de signalisation médiée par JNK joue un rôle important dans les lésions cérébrales et myocardes/lesions de réperfusion16,17. L’administration de C66 soulage l’inflammation du myocarde induite par un régime riche en graisses en inhibant l’activation du JNK dans les cœurs desouris 18. L’acide chlorogénique soulage les lésions cardiomyocytaires induites par le TNF-α en inhibant la signalisationJNK 19. Pinocembrin soulage les lésions myocardiques induites par le LPS et la réponse inflammatoire en inhibant la voie de signalisation p38/JNK MAPK, et soulage les dysfonctions cardiaques et lesarythmies 20. Ces études indiquent que les changements dans la signalisation JNK, principalement JNK1/2, sont étroitement liés aux lésions du myocarde. Par contre, JNK est également une cible en aval d’Acon pour une série d’activités. Une étude a révélé que de fortes doses d’exposition à Acon peuvent médier la voie d’activation enzymatique JNK, provoquant une toxicité développementale chez les embryons de poisson-zèbre (juvéniles) tels que raccourcir la longueur du corps, une forme corporelle courbée et des défauts du développementcérébral 21. Cette étude suggère qu’Acon pourrait activer la voie de signalisation JNK. Cependant, le rôle de la voie de signalisation JNK dans les lésions myocardiques causées par une intoxication aiguë à l’aconitine reste incertain.
Cette étude a établi un modèle chez le rat d’une intoxication aiguë à l’Acon des lésions myocardiques en fixant différentes doses intragastriques et intervalles de temps. De plus, nous avons exploré l’effet d’Acon sur le niveau de phosphorylation de JNK1/2 dans le myocarde et l’activation de la voie de signalisation JNK dans ce modèle. L’exploration du rôle de la phosphorylation JNK1/2 dans les lésions du myocarde chez les rats induite par une intoxication aiguë à l’Acon fournit une base théorique pour l’étude des lésions myocardiques causées par une intoxication aiguë à l’Acon.
Protocole
La conception expérimentale et le plan de mise en œuvre ont été approuvés par le Comité d’expérimentation animale de l’Université médicale de Kunming pour approbation (numéro d’approbation : Kmmu20220652) le 06/2022. Tous les plans expérimentaux ont été réalisés conformément aux « Directives pour les expériences animales de l’Université médicale de Kunming ». La liste de tous les matériaux utilisés dans cette étude est indiquée dans le Tableau des Matériaux.
ATTENTION : En raison de la forte toxicité de l’Acon, toutes les procédures de préparation et d’administration ont été menées conformément aux réglementations institutionnelles sur la sécurité des laboratoires. Le personnel qui a manipulé l’Acon portait un équipement de protection individuelle approprié, y compris des gants, des blouses de laboratoire et des masques, et les procédures impliquant la préparation de l’Acon ont été réalisées avec les précautions appropriées pour minimiser le risque d’exposition. Les animaux ont été étroitement surveillés pendant et après l’administration d’Acon pour détecter des signes de toxicité sévère et de détresse, et des critères humains ont été appliqués lorsque nécessaire pour minimiser la souffrance. Les déchets biologiques et les matériaux contaminés par l’Acon ont été éliminés conformément aux réglementations institutionnelles sur la biosécurité.
Traitement animal
Des rats mâles adultes Sprague-Dawley (SD) (2 mois, 230 g) ont été élevés dans le bâtiment expérimental animalier SPF, centre expérimental animalier de l’Université médicale de Kunming. Les conditions d’alimentation de tous les rats SD ont été traitées selon les besoins alimentaires des rats SPF. Ils ont été élevés de façon adaptative pendant une semaine et ont jeûné pendant 12 heures avant l’expérience. L’Acon a été dissous dans un tampon acétate de 0,05 M (Acet), et les rats SD ont été divisés en 4 groupes selon le principe du contrôle aléatoire : Groupe 1 (Acon-1 mg) administré 1 mg/kg d’Acon par gavage ; Groupe 2 (Acon-2 mg) administré 2 mg/kg d’Acon par voie intragastrique ; Groupe 3 (acétatis), administré 2 mL d’acétate 0,05 M tamponné par intragastrique ; et Groupe 4 (Témoin, aucun traitement appliqué). Les échantillons ont été prélevés à 1, 3 et 6 heures après l’administration intragastrique. Un total de 36 rats ont été étudiés, dont 3 par groupe à 1h, 3h et 6h. À chaque moment désigné, des enregistrements ECG étaient réalisés pour la première fois. Par la suite, les rats ont été anesthésés et des échantillons de sang prélevés pour une analyse biochimique sérique. Après la prise de sang, les rats étaient sacrifiés et le tissu cardiaque rapidement excisé. Des portions de tissu myocarde ont été fixées pour une analyse histologique (coloration HE et Masson), tandis que les tissus restants ont été stockés pour l’analyse de l’expression protéique par Western blotting. Dans les expériences testant les activateurs et inhibiteurs JNK1/2, les rats SD seront divisés en 5 groupes selon le principe du contrôle aléatoire : le groupe modèle a reçu une administration intragastrique d’Acon de 2 mg/kg, et le groupe inhibiteur a reçu une injection intrapéritonéale de 6 mg/kg SP60012522 initialement, suivie de 2 mg/kg d’Acon par gavage 2 heures plus tard. Le groupe agoniste a d’abord reçu une injection intrapéritonéale de 0,1 mg/kg d’anisomycine (Anis)23,24, suivie de 2 mg/kg d’Acon par gargoule 2 heures plus tard. Le groupe DMSO a reçu une injection intrapéritonéale de 2 mL de solution mixte à cosolvent DMSO à 0,8 %. Le groupe témoin n’a reçu aucun traitement. Un total de 15 rats ont été étudiés. Tous les résultats de coloration ont été analysés de manière aveugle afin de minimiser les biais d’observation. Pendant la période expérimentale, les rats ont été continuellement surveillés pour leur statut de survie et les signes de toxicité sévère après l’administration d’Aconitine. La mortalité a été enregistrée à chaque point d’observation désigné (1h, 3h et 6h). La mort était définie comme l’arrêt complet de la respiration et du battement de cœur. Les animaux présentant une détresse sévère, notamment une dyspnée persistante, une perte du réflexe de redressement, une incapacité à marcher ou un état moribond, ont été considérés comme ayant atteint des objectifs humains et ont été euthanasiés immédiatement sous anesthésie profonde afin de minimiser la souffrance. Le nombre de décès pour chaque groupe de rats (Tableau 1–4).
Traçage par électrocardiogramme de rat (ECG)
Les rats de chaque groupe ont été soumis à des traçages ECG. La méthode spécifique était la suivante : après anesthésie, par injection intrapéritonéale de pentobarbital sodique à une dose de 30 mg/kg. Les rats étaient fixés en position couchée sur la console d’expérimentation animale. L’ordinateur était connecté au système d’acquisition et d’analyse de signaux biologiques BL-420N, et la prise de fil de plomb ECG était insérée dans le port d’entrée à 3 canaux du système BL-420N. Des broches étaient insérées sous-cutanées dans la face interne du membre antérieur droit, du membre postérieur droit et du membre postérieur gauche des rats. Les broches ont été trempées et stérilisées dans 75 % d’alcool avant l’opération, et il a été fait attention à éviter de les insérer dans les muscles. Les clips d’électrodes du fil de plomb ECG étaient alors connectés aux broches de chaque membre. L’interrupteur d’alimentation et le logiciel système du système d’acquisition et d’analyse du signal biologique BL-420N ont été activés. Le canal 3 a été sélectionné pour l’acquisition du signal, et le type de signal a été réglé comme rat ECG. Les paramètres étaient définis comme suit : taux d’échantillonnage, 1 kHz ; portée, 2,0 mV ; constante de temps (filtrage passe-haut), 200 ms (0,80 Hz) ; filtrage passe-bas, 100 Hz ; vitesse de balayage, 200,0 ms/div ; et le filtre à encoche 50 Hz a été désactivé. L’ECG Lead II a été enregistré, et des changements ECG ont été observés. Après la stabilisation de l’ECG, la surveillance et l’enregistrement ont été effectués pendant 3 minutes, et les données ont été enregistrées par groupes pour une analyse ultérieure. Après l’enregistrement ECG, les clips et goupilles d’électrodes ont été retirés, et les rats ont été remis dans leurs cages. Les rats étaient maintenus au chaud et leur respiration surveillée jusqu’à la récupération complète de l’anesthésie afin d’éviter la mort liée à l’asphyxie. Les enregistrements ECG de base ont été réalisés le jour 1 avant tout traitement. Le deuxième jour, les rats ont reçu une Acon par gavage intragastrique, et des enregistrements ECG ont ensuite été réalisés à 1h, 3h et 6 h après l’administration en utilisant la même procédure.
Coloration par hématoxyline et éosine (HE) et coloration de Masson
Les cœurs étaient découpés au niveau du plan horizontal de l’axe court, et le tissu cardiaque de l’apex cardiaque des rats SD était prélevé et fixé dans du polyformaldéhyde à 4 % à température ambiante pendant 24 heures. Les tissus fixés étaient déshydratés, dégagés dans le xylène et incorporés dans de la cire de paraffine. Ensuite, des sections (4 μm d’épaisseur) ont été colorées avec des colorations HE et Masson selon la procédure standard. Lors de la coloration HE, la coloration à l’hématoxyline a été réalisée pendant 2 minutes, puis les échantillons ont été trempés dans de l’eau tiède pendant 1 minute, puis la coloration à l’éosine a été effectuée pendant 30 secondes. Lors de la coloration Masson, colorez avec une solution d’hématoxyline de fer Weigert pendant 5 minutes, puis une solution de bleu Masson pendant 3 à 5 minutes, et enfin une solution bleu d’aniline pendant 1 à 2 minutes. Les lames ont été observées sous un microscope optique ordinaire. Pour chaque section, cinq champs microscopiques non superposés étaient sélectionnés aléatoirement au même grossissement, évitant ainsi les gros récipients et les artefacts évidents. La fraction volumique de collagène (CVF) a été calculée à l’aide d’ImageJ, selon l’équation (1) :
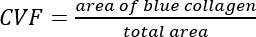 (1)
Dosage immunosorbant lié aux enzymes (ELISA)
Après l’enregistrement de l’ECG, les rats ont été anesthésés avec du pentobarbital sodique, puis une laparotomie médiane a été réalisée pour prélever du sang veineux. Des échantillons de sang ont été prélevés par perforation de la veine cave inférieure à l’aide d’une aiguille jetable de prélèvement veineux. Le sang a été incubé à 4 °C pendant la nuit, et le surnageant a été prélevé après centrifugation à 1000 × g pendant 20 minutes. Les concentrations de CK-MB, AST, LDH, cTn-1 et h-FABP ont été déterminées à l’aide d’un kit de test ELISA. L’ELISA a été réalisé conformément aux instructions du fabricant. Les valeurs de densité optique (OD) de chaque puits ont été déterminées à 450 nm, à l’aide d’un lecteur de microplaques.
Analyse du Western blotting
La protéine totale a été extraite des tissus cardiaques à l’aide d’un kit d’extraction protéique. Un kit de test protéique BCA a été utilisé pour déterminer la concentration en protéines. La protéine totale (le volume échantillon de la protéine à tester était de 10 μL) a été séparée par électrophorèse en gel de dodécyle sulfate-polyacrylamide de sodium à 10 % et transférée dans la membrane PVDF, bloquant le lait écrémé à 5 % pendant 30 minutes. Par la suite, la membrane a été incubée toute la nuit avec les anticorps primaires JNK1/2 (1:500), p-JNK1/2 (1:1000) et GAPDH (1:4000). Le lendemain, toutes les membranes ont été lavées trois fois avec PBST, puis incubées avec l’anticorps secondaire approprié (1:5000) pendant 1 heure. Enfin, des réactifs chimiluminescences améliorés ont été utilisés pour la détection du signal ; la solution de développement a été appliquée uniformément goutte à goutte sur les bandes membranaires PVDF et laissée à incuber pendant 10 secondes, suivie d’exposition, de développement et d’imagerie. Les intensités des bandes Western Blot ont été mesurées à l’aide du logiciel ImageJ.
Validation du docking moléculaire
La structure moléculaire SDF 3D d’Aconitine a été téléchargée depuis la base de données PubChem, et la structure SDF a été convertie en structure mol2 à l’aide du logiciel OpenBabel. Les structures protéiques PDB à la plus haute résolution et les plus longues de JNK1 et JNK2 ont été téléchargées depuis les bases de données Uniprot et Protein Data Bank. L’hydrogénation, le retrait des ligands et l’addition complète d’hydrogène ont été réalisés sur des protéines macromoléculaires, tandis que l’addition complète d’hydrogène et la charge électronique ont été réalisées sur de petits composés moléculaires, et des liaisons de torsion ont été établies. Des expériences d’amarrage moléculaire ont été réalisées via AutoDock Vina, où des affinités de liaison ≤ -7,0 kcal/mol ont été définies comme indicatives d’interactions ligand-protéine fortes. PyMol a été utilisé pour visualiser la structure 3D du complexe d’amarrage, et Discovery Studio a été utilisé pour visualiser la structure 2D du complexe d’amarrage.
Analyse statistique
Toutes les expériences ont été répétées trois fois indépendamment. GraphPad Prism 8 était utilisé pour analyser et représenter toutes les données statistiquement. Les données étaient toutes indiquées en moyenne ± écart-type (DE). Le test t de l’élève a été utilisé pour comparer deux groupes. Pour des comparaisons entre plusieurs groupes au même moment ou des analyses de cours temporel au sein d’un même groupe, une ANOVA unidirectionnelle a été utilisée. P < 0,05 était considéré comme indiquant un25 statistiquement significatif.
Résultats
Résultats ECG des rats suivant une gavage Acon
Des études antérieures ont démontré que les effets toxiques de l’aconitine surviennent au stade précoce, généralement dans les heures suivantl’administration 26,27. Ainsi, afin de capturer la première occurrence et la progression de la cardiotoxicité aiguë dans cette fenêtre de temps, nous avons sélectionné trois points temporels : 1 h, 3 h et 6 h pour les expériences. Les résultats de l’électrocardiogramme ont montré qu’après 1h, 3 h et 6 h d’action Acon, aucune arythmie n’est apparue dans le groupe témoin ni dans le groupe Acet, et que les changements ECG n’étaient pas évidents. Les rats du groupe Acon-1mg présentaient respectivement des contractions ventriculaires prématurées et une bigémine ventriculaire prématurée, un triplet ventriculaire prématuré, une tachycardie ventriculaire courte, une tachycardie ventriculaire monomorphe, une tachycardie ventriculaire bidirectionnelle et une ou plusieurs arythmies ventriculaires. Les rats du groupe Acon-2 mg ont développé des contractions ventriculaires prématurées, une ou plusieurs arythmies ventriculaires, y compris une bigéminie ventriculaire prématurée, une tachycardie ventriculaire à courte explosion et une tachycardie ventriculaire bidirectionnelle (Figure 1, Figures supplémentaires 1–2). L’Acon favorise les lésions pathologiques du myocarde et augmente la coloration du collagène dans le tissu myocardique du rat.
Le tissu myocardique a été évalué par coloration HE. Les résultats ont montré que, comparé au groupe témoin et au groupe Acet, après 1h, 3 h et 6 h de traitement Acon, le tissu myocardique des rats SD du groupe Acon-1 mg présentait une rupture partielle des fibres musculaires myocardiques, un arrangement désordonné des cellules myocardiques, l’élargissement de l’interstitium myocardique, un œdème survient dans l’interstitium myocardique, La plupart des cellules myocardes sont enflées, les noyaux sont profondément colorés et condensés, un grand nombre de cellules myocardes subissent une dégénérescence, et des vacuoles rondes se forment dans le cytoplasme de la fibre myocarde (indiquées par des flèches). Les stries des fibres musculaires dans le tissu myocardique des rats SD du groupe Acon-2 mg étaient floues ou disparaissaient ; L’agencement des faisceaux musculaires était lâche et désordonné, les espaces intermusculaires étaient élargis, un grand nombre de noyaux cellulaires étaient profondément colorés, la pyknose nucléaire, l’œdème intercellulaire, et les cellules myocardes étaient enflées et dégénérées. Le cytoplasme des fibres myocardes présentait des vacuoles rondes (indiquées par des flèches) (Figure 2A, Figure supplémentaire 3A, Figure supplémentaire 4A).
Une coloration de Masson a été réalisée pour évaluer le dépôt de collagène dans le tissu myocardique. Dans les groupes témoin et Acet, les cardiomyocytes présentaient une morphologie normale, avec un dépôt minimal de collagène observé dans l’interstitium myocardique. Dans le groupe Acon-1 mg, de légères augmentations du collagène coloré en bleu ont été observées dans certaines zones interstitielles. Dans le groupe Acon-2 mg, des régions plus étendues colorées en bleu étaient diffusées dans tout le tissu myocardique, accompagnées d’une disposition désorganisée des myofilaments et d’une perturbation de la structure myocardique normale. L’étendue de coloration du collagène dans le groupe Acon-2 mg était supérieure à celle du groupe Acon-1 mg. L’analyse quantitative a montré que la fraction volumique de collagène (CVF) était significativement augmentée dans les groupes Acon-1 mg et Acon-2 mg comparé aux groupes témoin et Acet (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). Notamment, la valeur de CVF a atteint son niveau le plus élevé dans le groupe Acon-2 mg à 6 heures après administration intragastrique (Figure 2B, Figure supplémentaire 3B, Figure supplémentaire 4B). Compte tenu de la courte période d’observation (1–6 h), ces résultats sont plus susceptibles de refléter des changements interstitiels aigus, tels qu’un œdème ou des altérations des schémas de coloration du collagène, plutôt que de mucoviscidosse myocardique établie. De plus, il n’y a pas eu de différence significative de poids cardiaque entre les groupes à 1 h, 3 h et 6 h après un traitement Acon-1 mg ou Acon-2 mg (Tableau 5).
L’acon favorise les enzymes cardiaques et les niveaux de protéines cardiaques dans le sang veineux des rats
Pour évaluer les lésions myocardiques induites par l’Acon, nous avons mesuré les niveaux sériques de marqueurs de lésions cardiaques, notamment CK-MB, AST, LDH, cTn-I et h-FABP. Comparés aux groupes témoin et acet, les groupes Acon-1 mg et Acon-2 mg ont montré des niveaux significativement accrus de CK-MB, AST, LDH, cTn-I et h-FABP à 1h, 3 h et 6 h (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). De plus, à la même époque, les augmentations de ces marqueurs étaient plus marquées dans le groupe Acon-2 mg que dans le groupe Acon-1 mg (p < 0,05) (Figure 3).
Résultats du docking moléculaire
Pour examiner plus en détail l’effet de l’Acon sur la voie de signalisation des lésions myocardiques chez les rats, nous avons utilisé le docking moléculaire pour identifier les protéines de la voie liée à l’Acon. Les résultats d’amarrage ont montré qu’Acon pouvait se lier de manière stable aux poches actives de JNK1 et JNK2 via plusieurs interactions non covalentes. Dans JNK1, l’aconitine formait deux liaisons hydrogène conventionnelles avec ALA267 et SER299, avec des distances de liaison de 2,0 Å et 2,1 Å respectivement, indiquant des interactions directionnelles fortes qui contribuent à l’ancrage des ligands. De plus, d’importantes interactions de van der Waals ont été observées entre l’aconitine et les résidus environnants, facilitant une complémentarité spatiale étroite au sein de la poche de liaison. Les interactions hydrophobes, y compris les interactions Alkyle/π-Alkyl avec ILE304, ont encore stabilisé le ligand dans le microenvironnement hydrophobe. Des liaisons carbone-hydrogène ont également été identifiées, formant un réseau d’interactions coopératives qui soutient la liaison des ligands (Figure 4A–C). Dans JNK2, l’aconitine formait une liaison hydrogène conventionnelle avec LEU302 (2,1 Å), servant d’interaction d’ancrage clé. À l’instar de JNK1, les interactions de van der Waals, les interactions hydrophobes et les liaisons carbone-hydrogène ont collectivement contribué à la stabilisation du complexe ligand–protéine (Figure 4D–F). Les résultats du docking pour les composés testés sont rapportés sous forme de scores de liaison (kcal/mol) et présentés dans le tableau 6. Dans l’ensemble, la liaison hydrogène a apporté spécificité et ancrage, les interactions hydrophobes ont amélioré l’inclusion et l’affinité de liaison des ligands, et les interactions de van der Waals ont contribué à la stabilité globale complexe. Ces résultats indiquent que l’aconitine peut former des complexes stables avec JNK1 et JNK2, ce qui soutient son potentiel en tant qu’agent de ciblage.
Acon suraugmente le niveau de phosphorylation du JNK
Pour approfondir l’effet de l’Acon sur la voie de signalisation JNK dans le tissu myocardique, l’expression de la phosphorylation de JNK1/2 a été évaluée par Western blotting. Comparés aux groupes témoin et Acet, les groupes Acon-1 mg et Acon-2 mg ont montré des niveaux significativement accrus de p-JNK1/2 (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). De plus, le niveau de phosphorylation de JNK1/2 était significativement plus élevé dans le groupe Acon-2 mg que dans le groupe Acon-1 mg (p < 0,05) (Figure 5A). Dans le groupe Acon-2 mg, des comparaisons entre différents moments ont montré que les niveaux de p-JNK1/2 étaient significativement augmentés à 1h, 3h et 6h, avec le niveau le plus élevé observé à 6 h (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05) (Figure 5B). Sur la base de ces résultats, le groupe Acon-2 mg à 6 h a été sélectionné pour les expériences ultérieures.
L’inhibiteur du JNK soulage les lésions pathologiques du myocarde et la coloration du collagène dans le tissu myocardique du rat
Pour évaluer davantage le rôle régulateur de la voie de signalisation JNK, les niveaux d’expression de p-JNK1 et p-JNK2 dans le tissu myocarde ont été évalués par Western blotting. Comparé aux groupes témoin et DMSO, le groupe Acon a montré des niveaux d’expression significativement accrus de p-JNK1 et p-JNK2 (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). Comparé au groupe Acon, le groupe Acon+SP600125 a montré des niveaux significativement réduits de p-JNK1 et p-JNK2 (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). En revanche, comparé au groupe Acon+SP600125, le groupe Acon + Anis a montré des niveaux d’expression significativement accrus de p-JNK1 et p-JNK2 (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05) (Figure 6).
Les effets d’Anis et de SP600125 sur les lésions myocardiques ont été approfondis. Les résultats de coloration HE ont montré que, comparé au groupe Acon, l’œdème interstitiel du tissu myocarde du groupe Acon+SP600125 était réduit, le gonflement de certains cardiomyocytes disparaissait et le cytoplasme cellulaire était uniforme. L’espace musculaire est plein, l’espace intermusculaire devient plus mince, certaines fibres myocardes sont disposées de façon serrée et ordonnée, un petit nombre de noyaux cellulaires sont profondément colorés, et le cytoplasme des fibres myocardes présente de petites vacuoles rondes, ce qui soulage les dommages pathologiques du myocarde. Comparé au groupe Acon+SP600125, le groupe Acon + Anis présentait des fibres myocardiques fracturées, des espaces musculaires élargis, des fibres myocardes disposées de manière lâche et désordonnée, des cellules myocardes gonflées et dégénérées, la chromatine nucléaire était profondément colorée, et un œdème intercellulaire apparaissait (Figure 7A).
La coloration de Masson a été réalisée pour évaluer la coloration du collagène dans le tissu myocardique. Dans le groupe Acon+SP600125, des zones modérément colorées en bleu ont été observées dans l’interstitium myocardique. Comparé au groupe Acon, la fraction volumique de collagène (CVF) dans le groupe Acon+SP600125 était significativement réduite, indiquant une atténuation des changements interstitiels induits par l’Aconitine. En revanche, dans le groupe Acon + Anis, des zones de collagène colorées en bleu plus étendues ont été observées dans l’interstitium myocardique comparées au groupe Acon+SP600125, accompagnées d’une augmentation significative du CVF (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05) (Figure 7B). De plus, il n’y a pas eu de différence significative de poids cardiaque entre les groupes (Tableau 5). Compte tenu de la courte période d’observation (1–6 h), ces changements sont plus susceptibles de refléter des altérations interstitielles aiguës, telles qu’un œdème ou des modifications des schémas de coloration du collagène, plutôt que des fibroses myocardiques établies. Ces résultats suggèrent que SP600125 soulage les lésions myocardies induites par l’aconitine, tandis que l’anisomycine aggrave encore les lésions myocardiques dans ces conditions expérimentales.
L’inhibiteur du JNK atténue l’expression des enzymes cardiaques et des protéines cardiaques dans le sérum de rat
Les résultats de l’ELISA ont montré que, comparés au groupe Acon, les expressions de CK-MB, AST et LDH étaient significativement réduites dans le groupe Acon + SP600125, tandis que les expressions de CK-MB, AST et LDH ont augmenté après l’action d’Anis (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). De plus, comparé au groupe Acon, l’expression de cTn-I et h-FABP a été significativement réduite dans le groupe Acon + SP600125 (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05). Comparé au groupe Acon + SP600125, l’expression de cTn-I et h-FABP a été significativement augmentée dans le groupe Acon + Anis (n = 3 rats par groupe, ANOVA unidirectionnelle, p < 0,05) (Figure 8A–8B).
DISPONIBILITÉ DES DONNÉES :
Toutes les données brutes utilisées dans cette étude sont disponibles dans les fichiers complémentaires joints au manuscrit.
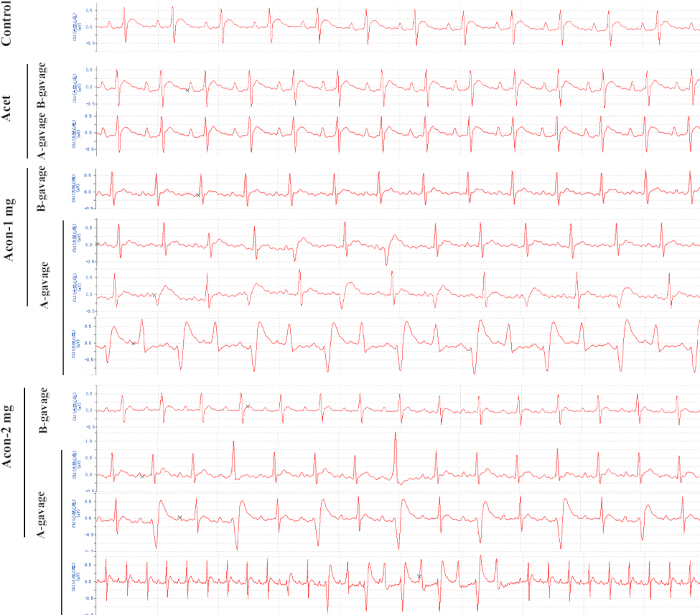
Figure 1 : Illustration électrocardiographique de l’arythmie chez les rats (après 6 heures d’action d’Acon). De haut en bas, le groupe témoin, le groupe Acet, le groupe Acon-1 mg et le groupe Acon-2 mg. Types d’arythmies dans Acon-1mg-A-gavage et Acon-2 mg-A-gavage (par ordre d’apparition des arythmies de haut en bas) : Acon-1mg-A-gavage : contractions ventriculaires prématurées ; bigéminie ventriculaire prématurée ; tachycardie ventriculaire bidirectionnelle. Acon-2 mg-A-gavage : contractions ventriculaires prématurées ; bigéminie ventriculaire prématurée ; Brève poussée de tachycardie ventriculaire. Abréviations ; B-gavage = Avant Acon gavage ; A-gavage = Après Acon gavage. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
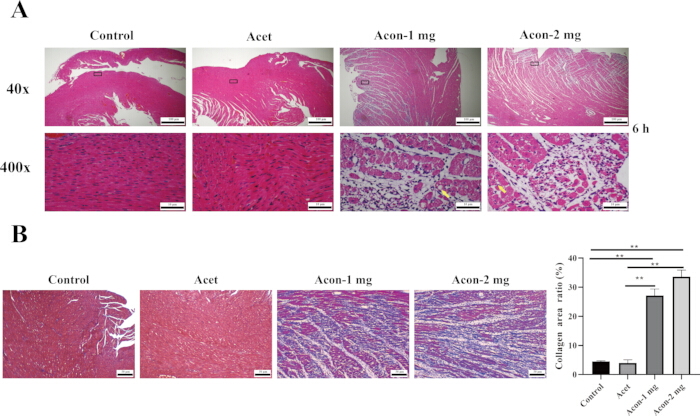
Figure 2 : Lésions myocardiques et coloration au collagène dans le tissu myocardique du rat indiquées par coloration HE et Masson. (A) Les modifications pathologiques du tissu myocardique chez le rat ont été détectées par coloration HE (la flèche jaune indique les vacuoles rondes formées par les cardiomyocytes endommagés) ; barre d’écaille = 100 μm. (B) La coloration au collagène dans le tissu myocardique du rat a été détectée par coloration de Masson ; échelle = 50 μm. Moyenne ± écart, n = 3. Toutes les valeurs P ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01. 40x et 400x. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
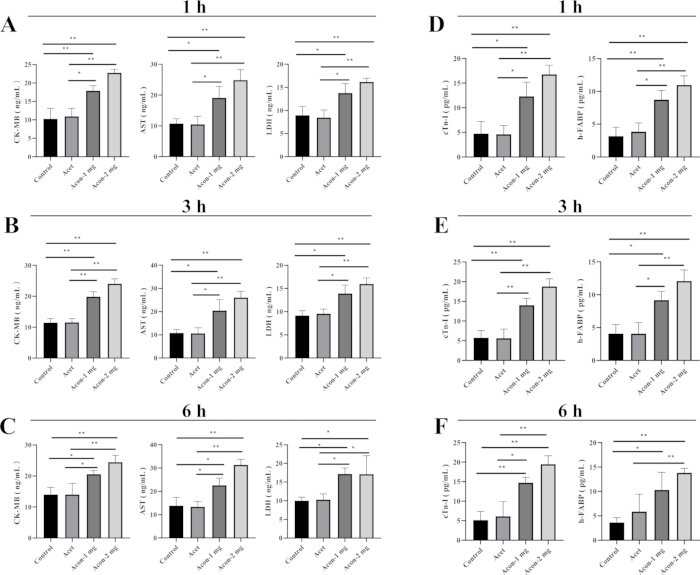
Figure 3 : Les niveaux de CK-MB, AST, LDH, cTn-I et h-FABP dans le sérum de rat indiquaient des lésions myocardiques. (A–F). Les niveaux de CK-MB, AST, LDH, cTn-I et h-FABP ont été mesurés à l’aide de kits ELISA. Moyenne±DE, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01. Abréviations ; CK-MB = Créatine kinase-MB ; AST = Aspartate aminotransférase ; LDH = Lactate déshydrogénase ; cTn-I = Troponine cardiaque I ; H-FABP = protéine liatrice aux acides gras de type cardiaque. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
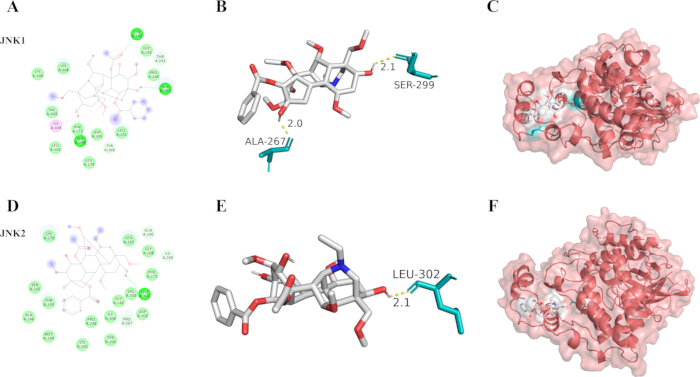
Figure 4 : Résultats du carrelage moléculaire d’Acon avec la voie JNK. (A–B) et (D–E) Les diagrammes d’interaction 2D d’Acon avec la protéine JNK1/2. (C) et (F) Les diagrammes d’interaction 3D d’Acon avec la protéine JNK1/2. Abréviations ; JNK = c-Jun Kinase N-terminale. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
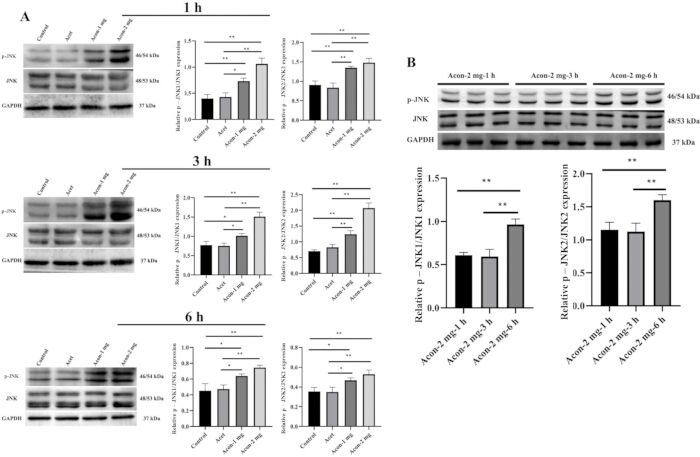
Figure 5 : Acon surrégule le niveau de phosphorylation du JNK. (A–B) Les niveaux d’expression de p-JNK1/2 et JNK1/2 dans les tissus myocardiques du rat ont été détectés par Western blotting. Moyenne ± écart, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, *p < 0,01. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
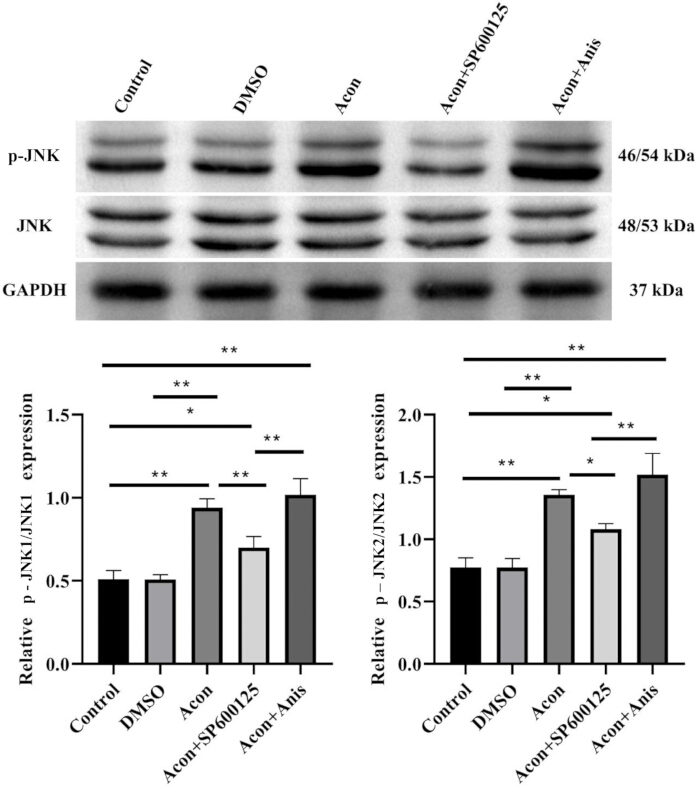
Figure 6 : L’inhibiteur du JNK inhibe la phosphorylation du JNK induite par l’Acon. Les niveaux d’expression de p-JNK1/2 et JNK1/2 dans les tissus myocardiques du rat ont été détectés par Western blotting. Moyenne ± écart, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
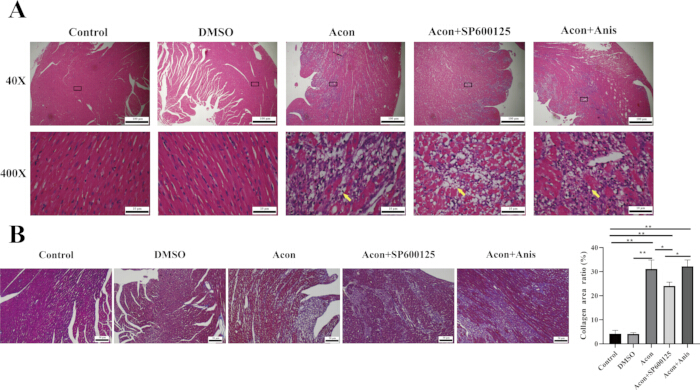
Figure 7 : L’inhibiteur du JNK atténue les lésions pathologiques du myocarde et la coloration du collagène chez les rats. (A) Les modifications pathologiques des tissus myocardes du rat ont été détectées par coloration HE (la flèche jaune montre les vacuoles rondes formées par les cardiomyocytes endommagés) ; échelle = 100 μm. (B) La coloration au collagène dans le tissu myocardique du rat a été détectée par la coloration de Masson ; échelle = 50 μm. Moyenne±DE, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01. 40 et 400x. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
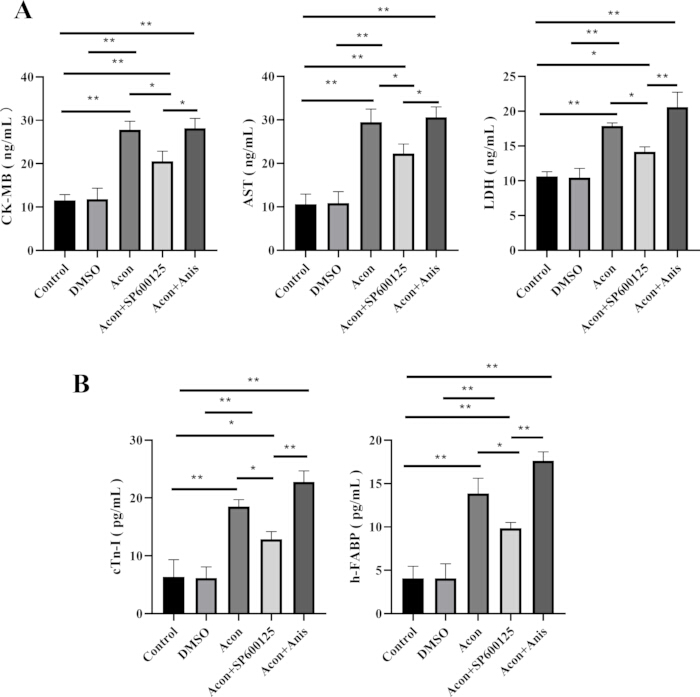
Figure 8 : L’inhibiteur du JNK régule à la baisse les niveaux de CK-MB, AST, LDH, cTn-I et h-FABP dans le sérum de rat. (A–B) Les niveaux d’expression de CK-MB, AST, LDH, cTn-I et h-FABP ont été détectés par les kits d’analyse ELISA. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. Moyenne±DE, n = 3. *p < 0,05, **p < 0,01. Abréviations ; CK-MB = créatine kinase-MB ; AST = aspartate aminotransférase ; LDH = lactate déshydrogénase ; cTn-I = troponine cardiaque I ; H-FABP = protéine liatrice aux acides gras de type cardiaque. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
| Contrôle | Acet | Acon-1 mg | Acon-2 mg | |
| Rats | 9 | 9 | 9 | 9 |
| Nombre de décès de rats | 0 | 0 | 0 | 0 |
Tableau 1 : Nombre de rats morts après 1 h d’action Acon. 1 h après l’administration de l’Acon, aucun rat n’est mort dans le groupe témoin, le groupe Acet, le groupe Acon-1 mg et le groupe Acon-2 mg. (Le nombre d’animaux finalement inclus dans l’analyse par groupe était de 3, et les rats morts n’ont pas été remplacés).
| Contrôle | Acet | Acon-1 mg | Acon-2 mg | |
| Rats | 9 | 9 | 9 | 9 |
| Nombre de décès de rats | 0 | 0 | 0 | 0 |
Tableau 2 : Nombre de morts de rats après 3 h d’action Acon. 3 heures après l’administration de l’Acon, aucun rat n’est mort dans le groupe témoin, le groupe Acet, le groupe Acon-1 mg et le groupe Acon-2 mg. (Le nombre d’animaux finalement inclus dans l’analyse par groupe était de 3, et les rats morts n’ont pas été remplacés).
| Contrôle | Acet | Acon-1 mg | Acon-2 mg | |
| Rats | 9 | 9 | 9 | 9 |
| Nombre de décès de rats | 0 | 0 | 4 | 4 |
Tableau 3 : Nombre de rats morts après 6 heures d’action Acon. 6 heures après l’administration d’Acon, 4 rats sur 9 sont morts dans le groupe Acon-1 mg, et 4 rats sur 9 sont décédés dans le groupe Acon-2 mg. (Le nombre d’animaux finalement inclus dans l’analyse par groupe était de 3, et les rats morts n’ont pas été remplacés).
| Contrôle | DMSO | Acon | Acon + SP600125 | Acon + Anis | |
| Rats | 9 | 9 | 9 | 9 | 9 |
| Nombre de décès de rats | 0 | 0 | 3 | 1 | 3 |
Tableau 4 : Nombre de morts de rats après Anis et SP600125 action. Le nombre de décès de rats variait selon les groupes de traitement : dans le groupe Acon-2 mg, 3 rats sur 9 sont décédés ; dans le groupe Acon+SP600125, 1 rat sur 9 est mort ; et dans le groupe Acon + Anis, 3 rats sur 9 sont morts. (Le nombre d’animaux finalement inclus dans l’analyse par groupe était de 3, et les rats morts n’ont pas été remplacés).
| Groupe | Poids cardiaque (g) |
| Contrôle | 0,71 ± 0,03 |
| Acet | 0,73 ± 0,02 |
| Acon-1mg (1h) | 0,73 ± 0,06 |
| Acon-2 mg (1 h) | 0,75 ± 0,02 |
| Acon-1mg (3 h) | 0,71 ± 0,04 |
| Acon-2 mg (3 h) | 0,77 ± 0,03 |
| Acon-1mg (6 h) | 0,72 ± 0,03 |
| Acon-2mg (6 h) | 0,77 ± 0,02 |
| DMSO | 0,70 ± 0,03 |
| Acon + SP600125 | 0,74 ± 0,03 |
| Acon + Anis | 0,75 ± 0,04 |
Tableau 5 : Le poids du cœur des rats. Il n’y avait pas de différence significative de poids cardiaque entre les groupes.
| Ligand | JNK1 | JNK2 |
| Acon | -7,8 Kcal/mol | -8,41 Kcal/mol |
Tableau 6 : Résultats des études d’amarrage moléculaire. Les scores d’amarrage entre Acon et JNK1 sont de -7,8 Kcal/mol, et les scores d’amarrage entre Acon et JNK2 sont de -8,41 Kcal/mol.
Figure supplémentaire 1 : Illustration électrocardiographique de l’arythmie chez le rat (après 1 heure d’action d’Acon). De haut en bas, le groupe témoin, le groupe Acet, le groupe Acon-1 mg et le groupe Acon-2 mg. Types d’arythmies dans la gavage Acon-1mg-A-gavage et la gavage Acon-2 mg-A-gavage (par ordre d’apparition des arythmies de haut en bas) : contractions ventriculaires prématurées ; bigéminie ventriculaire prématurée ; triplé ventriculaire prématuré ; tachycardie ventriculaire à courte ouverture ; tachycardie du battement ventriculaire monomorphe ; tachycardie ventriculaire bidirectionnelle. Acon-2 mg-A-gavage : Tachycardie ventriculaire bidirectionnelle. Abréviations ; B-gavage = Avant Acon gavage ; A-gavage = Après Acon gavage. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 2 : Illustration électrocardiographique de l’arythmie chez les rats (après 3 heures d’action d’Acon). De haut en bas, le groupe témoin, le groupe Acet, le groupe Acon-1 mg et le groupe Acon-2 mg. Types d’arythmies dans la garde Acon-1mg-A et Acon-2 mg-A-gavage (par ordre d’apparition de l’arythmie de haut en bas) : contractions ventriculaires prématurées ; de courtes poussées de tachycardie ventriculaire ; tachycardie ventriculaire bidirectionnelle. Acon-2 mg-A-gavage : contractions ventriculaires prématurées ; tachycardie ventriculaire bidirectionnelle. Abréviations ; B-gavage = Avant Acon gavage ; A-gavage = Après Acon gavage. Veuillez cliquer ici pour télécharger ce fichier.
Figure complémentaire 3 : L’Acon favorise les lésions myocardiques et la coloration au collagène après 1 heure d’action de l’Acon. (A) Les modifications pathologiques des tissus myocardiques du rat ont été détectées par coloration par HE (Note : la flèche jaune montre les vacuoles rondes formées par les cardiomyocytes endommagés) ; échelle = 100 μm. (B) La fibrose dans le tissu myocardique du rat a été détectée par coloration de Masson ; échelle = 50 μm. Moyenne ± écart, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01, 40x et 400x. Veuillez cliquer ici pour télécharger ce fichier.
Figure complémentaire 4 : L’Acon favorise les lésions du myocardique et la coloration du collagène après 3 heures d’action de l’Acon. (A) Les modifications pathologiques des tissus myocardiques du rat ont été détectées par coloration par HE (la flèche jaune montre les vacuoles rondes formées par les cardiomyocytes endommagés) ; échelle = 100 μm. (B) La coloration au collagène dans le tissu myocardique du rat a été détectée par la coloration de Masson ; échelle = 50 μm. Moyenne ± écart, n = 3. Toutes les valeurs p ont été calculées à l’aide d’une analyse indépendante unidirectionnelle de la variance. *p < 0,05, **p < 0,01. 40x et 400x. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
L’ACe peut induire des arythmies et des lésions du myocarde ; cependant, les mécanismes sous-jacents des lésions myocardiques induites par l’Acon restent flous. Dans cette étude, un modèle chez rat d’intoxication aiguë à l’Acon avec lésion myocardique a été établi avec succès. Ces résultats ont démontré que l’activation de la voie de signalisation JNK pourrait représenter un mécanisme clé en aval dans les lésions myocardiques induites par une intoxication aiguë à l’Acon. Plus précisément, les niveaux de phosphorylation de JNK1/2 étaient significativement élevés chez les rats présentant des arythmies induites par l’Acon et des lésions du myocarde. De plus, l’inhibition de la voie JNK a partiellement inversé les lésions myocardiques causées par une intoxication aiguë à l’Acon. Ces résultats suggèrent que l’activation de la voie JNK joue un rôle important dans la pathogenèse des lésions myocardiques induites par l’aconitine.
La principale cause de décès due à une intoxication aiguë à l’Acon est la cardiotoxicité. Des études antérieures ont montré qu’après un traitement à l’Acon, les fibres myocardiques chez les rats devenaient dégénérées et désordonnées, la coloration nucléaire s’approfondissait, une infiltration de neutrophiles se produisait, et des vacuoles rondesapparaissaient 28. Cela est cohérent avec les résultats de la recherche. La coloration HE a révélé que le tissu myocarde du groupe traité par Acon présentait des modifications pathologiques, notamment un arrangement désordonné du faisceau musculaire, un élargissement des espaces musculaires et la rupture des fibres musculaires. De plus, dans des conditions normales, les enzymes cardiaques CK-MB, AST, LDH et les protéines cardiaques cTn-I et h-FABP se trouvent en très petites quantités dans lesérum 29. Lorsque les cellules myocardes sont endommagées, ces marqueurs seront libérés dans le sang en grandesquantités 30,31,32,33.
Les résultats de cette étude montrent que CK-MB, AST, LDH, cTn-I et h-FABP dans le sérum veineux des rats du groupe Acon Gavage augmentaient à des degrés variables à chaque moment d’observation. Le niveau d’expression est le plus élevé après 6 heures lors de l’administration intragastrique. Ce résultat est cohérent avec les étudesprécédentes 34. Ils ont constaté que l’Acon causait des dommages aux cardiomyocytes H9C2 des rats et augmentait les niveaux d’AST. Par contre, des études antérieures ont utilisé Acon pour induire des lésions myocardiques chez les rats afin d’étudier les effets des antidotes sur les lésionsmyocardiques 35. Ils ont constaté que les niveaux de LDH et de CK-MB dans le sérum des rats atteints de lésions myocardiques étaient élevés. En résumé, les résultats expérimentaux de la détection articulaire des marqueurs de lésions myocardiques montrent que le modèle rat des lésions myocardiques induites par une intoxication aiguë à l’Acon peut être établi avec succès 1, 3 et 6 heures après l’administration intragastrique de 1 à 2 mg/kg d’Acon. L’effet de modélisation de 2 mg/kg d’Acon après administration intragastrique pendant 6 heures est le meilleur, répondant aux exigences des expériences ultérieures.
Des études ont montré que l’effet de l’Acon sur les canaux ioniques Na+ et Ca2+ entraîne une augmentation de la concentration intracellulaire d’ions calcium, ce qui active davantage la voie de signalisation P38-MAPK et déclenche par la suite la réaction en cascadeJNK 36,37,38. L’activation du JNK favorisera des lésionsmyocardiques 39,40. Cela correspond aux résultats de cette expérience. Dans cette étude, nous avons constaté qu’Acon favorisait la phosphorylation de JNK1/2 dans les cardiomyocytes et activait la voie de signalisation JNK. Cela suggère que l’activation de JNK pourrait représenter une réponse de signalisation en aval qui contribue aux lésions myocardiques induites par l’aconitine. Cependant, les mécanismes moléculaires et pharmacocinétiques sous-jacents à la stimulation de la phosphorylation de JNK1/2 par Acon nécessitent des recherches supplémentaires.
Des études ont montré que lorsqu’une grande quantité de JNK1/2 est phosphorylée, la voie de signalisation JNK est activée, ce qui à son tour médiatise l’expression incontrôlée des gènes dans le noyau des cardiomyocytes et perturbe le cycle cellulaire. L’inhibition de la voie de signalisation JNK peut atténuer les lésions myocardiques41,42. Dans les résultats de l’HE, l’inhibiteur de la voie JNK SP600125 peut réduire significativement les modifications pathologiques du tissu myocarde induites par l’Acon. Par contre, des études antérieures ont montré que, dans un modèle de rat d’infarctus aigu induit par la ligature des artères coronaires, les fibres de collagène colorées en bleu et le dépôt de collagène dans le tissu myocarde étaient nettement augmentés, accompagnés d’une activation de la voie de signalisation JNK. Le traitement par granules de médecine traditionnelle chinoise a réduit le dépôt de collagène myocardique par inhibition de la voie de signalisation JNK43,44.
Chez les rats atteints de lésions diabétiques du myocarde, la teneur en fibres de collagène (coloration bleue) et la fraction volumique de collagène (CVF) étaient significativement augmentées. Parallèlement, la voie de signalisation JNK a été activée. Il a été rapporté que l’éthanol à faible dose inhibe l’activation de la voie JNK, atténuant ainsi l’augmentation du dépôt de fibres de collagène et du CVF dans le tissu myocardique du rat45. Dans la présente étude, l’analyse du docking moléculaire a indiqué que l’aconitine pourrait interagir avec JNK1 et JNK2 par de multiples interactions non covalentes ; Cependant, ces résultats doivent être considérés comme des preuves à l’appui et ne constituent pas une preuve directe d’une liaison physiologique. De plus, des expériences in vivo ont démontré qu’Acon, en tant que facteur de stress, augmentait la phosphorylation de JNK1/2, activant ainsi la voie de signalisation JNK. Cette activation était associée à une augmentation du dépôt de collagène (coloration bleue) et à une augmentation du CVF dans le tissu myocardique du rat, conduisant finalement à des lésions du myocarde. Cependant, l’ajout de l’inhibiteur du JNK a SP600125 inhibé significativement les effets toxiques de l’Acon, réduisant l’augmentation de la valeur de la CVF dans le tissu myocarde. Les lésions myocardiques perturbent l’intégrité normale des membranes myocytaires cardiaques et la perte de contenu intracellulaire dans l’espace extracellulaire, ce qui se manifeste par une augmentation des niveaux d’enzymes myocardiques dans le sang46,47. Ces résultats ont montré que l’augmentation des niveaux d’enzymes myocardiques dans le sang des rats indiquait également que l’Acon causait des lésions myocardiques. Parallèlement, les inhibiteurs du JNK inhibaient la sécrétion des enzymes myocardiques, suggérant que les inhibiteurs du JNK pouvaient en partie soulager les dommages myocardiques causés par l’Acon.
Plusieurs limites de cette étude doivent être reconnues. Premièrement, la taille de l’échantillon à chaque moment était relativement petite (n = 3 par groupe), ce qui peut limiter la puissance statistique des analyses, et aucune analyse formelle de puissance n’a été réalisée avant la détermination de la taille de l’échantillon. De plus, une seule plage de doses d’Aconitine et des périodes d’observation relativement courtes (1–6 h) ont été évaluées, ce qui a limité l’évaluation des changements pathologiques à long terme et des relations de réponse à la dose. Deuxièmement, bien qu’une augmentation de la phosphorylation de JNK1/2 et une intervention pharmacologique aient suggéré l’implication de la voie de signalisation JNK dans la lésion myocardique induite par l’aconitine, les mécanismes en amont reliant l’exposition à l’aconitine à l’activation de JNK n’ont pas été entièrement étudiés. L’aconitine est connue pour affecter principalement les canaux Na⁺ voltage-dépendants et l’homéostasie intracellulaire Ca2⁺, ce qui peut contribuer à l’activation en aval du JNK. Cependant, les événements de signalisation liés, y compris le stress oxydatif et les voies de surcharge calcique, n’ont pas été directement examinés dans la présente étude. Troisièmement, l’analyse du docking moléculaire n’a fourni que des preuves de soutien pour des interactions potentielles entre l’aconitine et JNK1/2 et ne représentait pas une liaison physiologique directe. Aucune validation expérimentale supplémentaire, telle que la résonance plasmonique de surface ou les tests pull-down, n’a été réalisée. De plus, seuls JNK1/2 ont été étudiés, tandis que le rôle potentiel de JNK3 dans la cardiotoxicité induite par l’aconitine, reste incertain. Enfin, aucune évaluation électrocardiographique n’a été réalisée après SP600125 ou une intervention à l’anisine. Par conséquent, la régulation de la voie JNK affecte directement les arythmies ventriculaires induites par l’aconitine, nécessite des recherches approfondies.
En résumé, Acon active la voie de signalisation JNK, comme en témoigne une phosphorylation accrue de JNK1/2, qui peut contribuer à des lésions myocardiques, comme l’indiquent un dépôt accru de collagène et une libération accrue d’enzymes cardiaques dans le tissu myocardique du rat. Étant donné que la cardiotoxicité induite par l’aconitine, implique plusieurs événements en amont, notamment l’activation du canal Na⁺, la surcharge de Ca2⁺ et le stress oxydatif, l’activation de la voie JNK pourrait représenter un événement clé de signalisation en aval contribuant aux dommages du myocarde.
Déclarations de divulgation
Ce manuscrit a déjà été publié en prépublication sur Research Square avant l’examen par les pairs et la publication. Le préprint est disponible à : https://doi.org/10.21203/rs.3.rs-4218950/v148. Les auteurs ne déclarent aucun intérêt concurrent.
Remerciements
Ce travail a été soutenu par la Fondation nationale des sciences naturelles de Chine (82260387).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 4 % de paraformaldéhyde | Wuhan Service-bio Co., Ltd. | HJ203501 | Fixation tissulaire |
| Aconitine (Acon) | Chengdu DeSiTe Biological Technology Co., Ltd. | DRK-0335-960330 | Composé toxique pour le modèle de gavage |
| Aniline Blue Solution | Beijing Solarbio Co., Ltd. | G1350 | Coloration en maçon |
| Anisomycine (Anis) | MedChemExpress Co., Ltd. | 153154 | Activateur/contrôle de la voie JNK |
| AST ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E13023r | Détection des enzymes cardiaques |
| AutoDock Vina | Open source | N/A | Amarrage moléculaire |
| Kit de test protéique BCA | Sangon Biotech (Shanghai, Chine) | Non spécifié | Quantification des protéines |
| Centrifugeuse | Dongguan cnzcn Co., Ltd. | TD5M-WS | 1000 et fois ; centrifugation g |
| Logiciel Chem3D | PerkinElmer | N/A | Minimisation de l’énergie des ligands |
| CK-MB ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E14403r | Détection des enzymes cardiaques |
| Kit ELISA cTn-I | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E08594r | Détection des protéines cardiaques |
| Aiguille jetable pour la collecte de sang veineuse | KINDLY Co., Ltd. | https://www.kdlchina.cn/specimen-collection/220.html | Prélèvement de sang |
| Réactif à chimiluminescence améliorée (ECL) | Millipore Co., Ltd. | 21302A4 | Visualisation Western blot |
| Éosine | Beijing Solarbio Co., Ltd. | 20200905 | H& Coloration E |
| GraphPad Prism 8 | GraphPad Software, Inc. | N/A | Analyse statistique |
| Hématoxyline | Wuhan Service-bio Co., Ltd. | CR2203066 | H& Coloration E |
| Kit ELISA H-FABP | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E16184r | Détection des protéines cardiaques |
| Logiciel ImageJ | Instituts nationaux de la santé (NIH) | N/A | Quantification Western blot |
| Anticorps primaire JNK1/2 | HuaAn Biotechnology (Hangzhou, Chine) | ET1609-42 | Anticorps Western blot |
| LDH ELISA Kit | Biotechnologie liée aux enzymes de Shanghai | ml003416 | Détection des enzymes cardiaques |
| Masson Blue Solution | Beijing Solarbio Co., Ltd. | 20220303 | Coloration en maçon |
| Lecteur de microplaques | Thermo Fisher Scientific | ME001000C | Mesure de l’OD ELISA (450 nm) |
| Microscope optique (Olympus C33) | Olympus (Tokyo, Japon) | C33 | Imagerie histologique |
| Cire de paraffine | Leica ; Co., Ltd. | 2110068 | Incrustation tissulaire |
| Tampon PBST | Meilunbio Co., Ltd. | MA0015-Avr-27G2 | Tampon de lavage |
| anticorps primaire p-JNK1/2 | HuaAn Biotechnology (Hangzhou, Chine) | ET1601-28 | Anticorps JNK phosphorylé |
| Banque de données protéiques (PDB) | RCSB | https://www.rcsb.org/ | Source de structure protéique |
| Kit d’extraction de protéines | Sangon Biotech (Shanghai, Chine) | C510003-0050 | Extraction de protéines tissulaires |
| Base de données PubChem | NIH | https://pubchem.ncbi.nlm.nih.gov | Source de structure des ligands |
| PVDF Membrane | Millipore Co., Ltd. | R1PB81493 | Membrane de transfert Western blot |
| PyMOL | Schrö ; dinger, Inc. | https://pymol.org/ | Visualisation de l’amarrage |
| SDS-PAGE Gel (10 %) | Beijing Solarbio Co., Ltd. | 817X031 | Électrophorèse des protéines |
| Lait écrémé en poudre | Beijing Solarbio Co., Ltd. | http://www.solarbio-hd.com/solarbiohd-Products-23261665/ | Réactif blocant (5 %) |
| Pentobarbital sodique | Thermo Fisher Scientific Inc. | 57-33-0 | Anesthésie pour les procédures animales |
| SP600125 (inhibiteur JNK) | MedChemExpress Co., Ltd. | 112518 | Inhibiteur de la voie JNK |
| Établissement d’hébergement pour animaux SPF | Université de médecine de Kunming | N/A | Conditions d’hébergement des animaux |
| Rats Sprague-Dawley (mâle, 2 mois, ~230 g) | Beijing Huafukang Biological Technology Co., Ltd. | http://www.hfkbio.com/ | Animaux expérimentaux (n = 51) |
| Hématoxyline Weigert Iron | Guangzhou Wexis Co., Ltd. | 18092001 | Coloration en maçon |
| Xylène | Tianjin Tjhxsj Co., Ltd. | 20220208 | Défrichement des tissus |