Ce protocole décrit la production et la purification recombinante de l’hydrophobine SC16 à partir d’Escherichia coli et fournit des analyses à base de fluorescence pour surveiller son auto-assemblage.
Article de méthode
Production et purification recombinante de l’hydrophobine SC16 à partir d’Escherichia coli et surveillance de son auto-assemblage à l’aide de tests de fluorescence
Dans cet article
Résumé
Résumé
Les hydrophobines sont de petites protéines amphipathiques qui s’auto-assemblent aux interfaces hydrophobe–hydrophile pour former des revêtements étanches stables sur les spores fongiques. Les hydrophobines de classe I forment des « roguettes » particulièrement stables contenant des structures ordonnées semblables à des amyloïdes qui recouvrent les surfaces. Cette chimie de surface inhabituelle leur offre des applications potentielles dans l’administration de médicaments, la stabilisation de mousse, l’émulsification et la modification de surface. Pour produire des hydrophobines, il est nécessaire de protocoles complets et à haut rendement issus de systèmes d’expression simples. De plus, il est nécessaire de fournir des méthodes faciles pour caractériser la fonction de l’hydrophobine après la production et la purification de la recombinante. Nous décrivons ici des protocoles pour la production et la caractérisation de SC16, une hydrophobine de classe IB produite par le champignon Schizophyllum commune, qui peut être exprimée de façon recombinante dans Escherichia coli puis purifiée dans des conditions non réductrices et natives. Cela implique la transformation d’un plasmide d’expression codant SC16 fusionné à une protéine de fusion N-terminale en E. coli, l’induction de l’expression protéique, la lyse cellulaire dans des conditions natives, la chromatographie d’affinité et le clivage de la protéase pour isoler l’hydrophobine à des rendements de ≥5 mg. L’auto-assemblage de SC16 peut ensuite être surveillé par des tests de fin ou basés sur la fluorescence cinétique à l’aide de la thioflavine T. Les deux tests impliquent l’incubation de SC16 avec un mélange prolongé afin de favoriser l’auto-assemblage aux interfaces air–eau et sont surveillés par des mesures de fluorescence. Ensemble, ces approches fournissent des protocoles simplifiés pour purifier SC16 et surveiller son auto-assemblage, et peuvent être étendus à d’autres systèmes impliquant un auto-assemblage de protéines similaires.
Introduction
Les hydrophobines sont des protéines amphipathiques actives en surface sécrétées par des champignons qui s’auto-assemblent aux interfaces hydrophobe-hydrophiles (par exemple, interfaces air-eau sur les structures fongiques). Dans la nature, leur rôle est de recouvrir les spores et les corpsfructifiers 1,2, les rendant résistants à l’eau, évitant l’engorgement des canaux d’air et facilitant ladispersion 1. En raison de leur chimie de surface inhabituelle, les hydrophobines ont des applications industrielles variées, notamment des revêtements pour augmenter la biocompatibilité des implants et prothèses 3,4,5, des tensioactifs biocompatibles pour l’administration de médicaments et les traitementsmédicaux 6,7,8,9,10, et des candidats pour la capture nanoplastique 11.
Les hydrophobes peuvent être subdivisées en classes I et II, qui s’auto-assemblent toutes deux à des interfaces hydrophobe-hydrophiles, incluant les interfaces air–eau, huile–eau 12,13,14 et plastique–eau 15,16,17. Une caractéristique déterminante des hydrophobines de classe I est qu’elles forment des structures « rodlet » très stables aux interfaces, contenant des caractéristiques ordonnées de type amyloïde (riches en β feuilles)18, ce qui les rend particulièrement adaptées aux applications impliquant la modification ou la protection de surface. En revanche, les hydrophobines de classe II ne forment pas des structures amyloïdes mais forment des films qui peuvent être facilementdissociés 1,18. Fait intéressant, une troisième classe d’hydrophobes existe également, avec des caractéristiques structurelles conservées des classes I et II18, 19. En raison de ces différences, la surveillance de l’auto-assemblage des hydrophobines est importante pour la classification et pour évaluer le bon repliement et la fonction des hydrophobines produites de manière recombinante.
L’auto-assemblage des hydrophobines peut être facilement surveillé par des méthodes fluorométriques utilisant des colorants liant les amyloïdes tels que la thioflavine T (ThT), qui se lie aux structures croisées β présentes dans les amyloïdes20. Le ThT contient une liaison covalente unique séparant deux anneaux aromatiques qui tournent normalement librement. Lors de la liaison à des structures à β croisées, cette rotation devient restreinte, entraînant une fluorescence20. En raison de sa fluorescence sélective, le ThT est largement utilisé pour surveiller l’auto-assemblage de l’hydrophobine aux interfaces air–eau 21,22,23,24,25,26,27,28. Les tests ThT fournissent des informations cinétiques dépendantes du temps sur l’auto-assemblage de l’hydrophobine 23,27,28, offrant des avantages par rapport à des techniques telles que la microscopie à force atomique (AFM) et les mesures d’angle de contact, qui sont à faible débit et moins adaptées à une analyse dépendante du temps. De plus, ThT présente un fort renforcement de fluorescence lors de la liaison des structures croisées β, avec une fluorescence minimale dans sa formelibre 20. Ces propriétés font des essais ThT des méthodes simples et sensibles pour surveiller l’auto-assemblage de l’hydrophobie, qui peuvent être complétées par des techniques structurelles plus intensives.
Compte tenu de la diversité des applications des hydrophobines, il est nécessaire de disposer de protocoles accessibles pour surveiller leur auto-assemblage. Plus précisément, le protocole actuel fournit un cadre pour optimiser la purification et la caractérisation fonctionnelle des hydrophobines recombinantes. Auparavant, Morris et Sunde (2013) avaient présenté des protocoles pour l’expression recombinante d’Escherichia coli, la purification et la surveillance basée sur ThT de l’auto-assemblagede l’hydrophobine 21. Ce travail étend ces méthodes en décrivant une procédure modifiée pour purifier l’hydrophobine SC16. SC16 est une hydrophobine de classe I (issue de Schizophyllum commune) qui peut être facilement purifiée d’E . coli sans nécessiter de dénaturation, de réduction ou de réoxydation des liaisons disulfure. La protéine SC16 résultante est fonctionnelle, comme le démontrent les tests d’auto-assemblage à base de ThT et de points finaux et cinétiques qui surveillent la formation des rodlets. L’objectif de cet article est de détailler un protocole complet et simplifié pour la production, la purification et les tests fonctionnels recombinants basés sur le ThT de l’hydrophobine de classe IB SC16.
Protocole
Cette étude n’implique pas de participants humains, d’animaux vertébrés ou d’échantillonnages tissulaires. Par conséquent, aucune approbation éthique n’était requise.
1. Expression de l’hydrophobine SC16 chez E. coli
- Transformez les cellules d’E. coli Express SHuffle T7 par un choc thermique à 42°C pendant 45 s en utilisant un plasmide d’expression pET-21 codant pour un domaine B1 de la protéine G marqué à l’hexahistidine fusionné à SC16 (H-GB1-SC16).
REMARQUE : Les cellules expresses SHuffle T7 ont été sélectionnées pour leur capacité à favoriser la formation correcte de liaisonsdisulfure 29. Le plasmide H-GB1-SC16 peut être généré par clonage enzymatique de restriction comme décritprécédemment 30. - Inoculez 2 mL de bouillon de lysogenèse (LB) contenant 100 μg mL−1 d’ampicilline avec une seule colonie. Incubez toute la nuit à 37°C avec des secousses.
- Inocular 1 L de LB (dans une flasque à fond rond déflecteur de 2,8 L) avec 1 mL de culture nocturne. Faire pousser la culture à 37°C avec des secouements (~120–135 tr/min, orbite circulaire de 19 mm) jusqu’à ce que la densité optique à 600 nm atteigne 0,6 ± 0,1.
- Ajouter de l’isopropyl-β-D-1-thiogalactopyranoside à une concentration finale de 0,5 mM pour induire l’expression de H-GB1-SC16. Incubez toute la nuit à 20°C avec des secousses.
REMARQUE : Cette température a été choisie pour réduire le risque de formation de corps d’inclusion et de repliage inapproprié31. - Prélever les cellules par centrifugation à 4000 × g pendant 20 minutes. Verse le surnageant.
POINT DE PAUSE : Conservez la granule cellulaire à −20°C pendant jusqu’à 3 semaines avant de procéder à la purification. Évitez les cycles répétés de gel-dégel.
2. Purification de l’hydrophobine SC16
- Resuspendez la pellete cellulaire dans 30 mL de tampon de lyse (20 mM tris(hydroxyméthétil)aminométhane [Tris], pH 8, 250 mM NaCl).
- Lysez les cellules en incubant la suspension dans un bain-marie à 80°C pendant 15 minutes. Mélangez doucement toutes les 5 minutes pendant l’incubation.
REMARQUE : Cette étape repose sur la stabilité thermique de SC16 et peut ne pas convenir à d’autres protéines.
ATTENTION : Utilisez des gants résistants à la chaleur lors de la manipulation de tubes et de bains-marie à 80°C. Évitez d’éclabousser du liquide chaud lors du mélange et du retrait des tubes. - Centrifugez le lysat cellulaire à 25 000 × g pendant 20 minutes à 4°C. Chargez le surnageant sur une colonne gravitationnelle contenant 2 à 3 mL de résine de chromatographie métallique immobiliséeimmobilisée (IMAC) de 2 à 3 mL.
- Lavez la colonne avec un tampon de lyse contenant 30 mM d’imidazole. Élute de protéine à l’aide de 10 mL de tampon de lyse contenant 300 mM d’imidazole.
- Dialyser la fraction éluée contre 1 L de tampon contenant Tris (pH 8 ; 20 mM) et NaCl (50 mM) pendant 3 h à l’aide d’un tube de dialyse de 3500 kDa à limite moléculaire, en agitant à 100 tr/min.
REMARQUE : La vitesse de brassage pendant la dialyse peut varier selon la configuration (par exemple, le volume du tube et la géométrie du bécher). Remuez au régime minimum nécessaire pour induire une rotation douce de la poche de dialyse. - Ajouter la protéase de thrombine (protéine de fusion 20 U mg−1 ) directement dans la poche de dialyse (volume total de réaction de 10 mL) pour cliver la protéine de fusion. Remplacez le tampon.
POINT DE PAUSE : Après ajout de protéase et remplacement du tampon, poursuivre la dialyse toute la nuit à 4°C. Reprenez la purification le lendemain. Vérifiez la complétion du clivage par SDS-PAGE (attendez-vous à la disparition de la bande de ~18 kDa et à l’apparition de bandes à ~10 et ~8 kDa). - Rechargez l’échantillon dialysé sur la colonne IMAC chargéeà Ni 2⁺. Laver et éluser avec environ 12 mL chacun de tampon contenant respectivement 30 mM et 300 mM d’imidazole.
- Analyser les fractions collectées par électrophorèse du gel de dodécyle sulfate de sodium et polyacrylamide (SDS-PAGE) dans des conditions de réduction (en utilisant β-mercaptoéthanol dans le tampon de chargement). Identifier SC16 par la présence d’une bande dans la fraction de lavage au poids moléculaire attendu (~10 kDa). Dialysez la fraction de lavage contenant SC16 dans son intégralité contre 1 L de tampon contenant Tris (pH 8 ; 20 mM) et NaCl (50 mM) pendant 3 heures afin d’éliminer l’imidazole résiduel.
REMARQUE : SC16 est généralement détecté dans la fraction de lavage, tandis que H-GB1 est généralement enrichi dans l’éluat. Une petite quantité de SC16 résiduel peut également être présente dans l’éluat. - Quantifiez SC16 par une méthode de choix (par exemple, analyse des acides aminés par chromatographie liquide haute performance, test de Bradford ou absorbance à 280 nm). Avec cette méthode, des rendements de ≥5 mg de SC16 par litre de culture sont attendus.
REMARQUE : Notre groupe quantifie régulièrement SC16 par absorbance à 280 nm en utilisant un coefficient d’extinction prédit de 3480 M−1 cm−1 32 . C’est la méthode privilégiée de quantification de SC16 en raison de sa simplicité. - Prélever des échantillons tout au long de la purification pour l’analyse SDS-PAGE.
3. Essai de fluorescence au point final de l’auto-assemblage SC16
- Préparez des mélanges réactionnels triplicates contenant 50 μg mL−1 de SC16, 50 mM de NaCl et 20 mM chacun d’acide 2-(N-morpholino)éthanasolique (MES), de Tris et de phosphate de sodium. Préparez à l’avance un tampon d’origine contenant du MES, du Tris et du phosphate de sodium ajusté à un pH final de 6,5 par ajout goutte dans la goutte de HCl concentré ou de 1 M NaOH. Ajoutez des protéines et du NaCl juste avant de commencer le test.
REMARQUE : Les contrôles peuvent être préparés à cette étape. Par exemple, inclure des contrôles positifs contenant SC16 qui ne subissent pas de rotation end-à-end et des contrôles négatifs contenant uniquement du tampon. Des concentrations de SC16 allant de 25 à 100 μg mL−1 ont été testées, avec des résultats les plus constants à 50 μg mL−1. Optimisez ce paramètre si nécessaire. - Transférez les mélanges dans des tubes de 2 à 5 mL.
REMARQUE : Assurez-vous que le tube d’échantillonnage est rempli à 50 % de sa capacité afin de permettre un bon mélange lors de l’inversion. - Faites tourner les tubes de bout en bout à 20 tr/min pendant 2 heures. Transférez 100 μL de chaque échantillon dans une plaque noire à fond opaque à 96 puits avec des puits ronds de type cheminée.
- Ajouter du ThT filtré à une concentration finale de 20 μM à tous les échantillons.
- Réglez le lecteur de microplaques sur des longueurs d’onde d’excitation et d’émission dans la plage appropriée pour la fluorescenceThT 33,34,35,36. Réglez le gain à 55 et le temps d’intégration à 20 μs. Mesurez l’intensité de fluorescence de chaque échantillon immédiatement après la période de rotation de 2 h.
REMARQUE : Les maxima d’excitation et d’émission rapportés de ThT sont respectivement de 450 nm et 490nm 37. Cette expérience a utilisé des valeurs d’excitation et d’émission de 438 et 494 nm, respectivement, basées sur la disponibilité du filtre optique. La rotation de bout en bout était réalisée à l’aide d’un dispositif de rotation fabriqué.
4. Essai de fluorescence cinétique de l’auto-assemblage SC16
- Préparez des mélanges de réaction tripliqué de 100 μL dans une plaque noire à 96 puits.
- Inclure 50 μg mL−1 SC16, 50 mM de NaCl, 20 μM de ThT filtré, et 20 mM chacun de MES, Tris et phosphate de sodium. Préparez des contrôles négatifs contenant uniquement ThT et tampon (sans SC16).
- Ajustez le pH du tampon (contenant Tris, MES et phosphate de sodium) à 5,5, 6,5, 7,5 ou 8,5 en utilisant du HCl concentré ou 1 M NaOH avant l’ajout de SC16 et ThT. Le système de tampon mixte permet d’ajuster le pH sans changer l’identité du tampon.
- Placez la plaque dans le lecteur de microplaques.
- Régler les longueurs d’onde d’excitation et d’émission dans la plage appropriée pour la fluorescenceThT 33,34,35,36.
- Programme le lecteur pour des mesures cycliques tous les 70 s.
- Incluez 60 s de secousses orbitales à 432 tr/min, suivies d’une période de repos de 10 s par cycle.
- Réglez le temps d’intégration à 20 μs et le gain à 55.
- Faites le test pendant 120 cycles pour surveiller les variations de fluorescence sur 2 heures de secousses.
REMARQUE : Assurez-vous que le secouement orbital est sélectionné ; Le secouement linéaire peut donner des résultats d’auto-assemblage incohérents ou sous-optimaux.
Résultats
La Figure 1 présente un gel SDS-PAGE coloré à Coomassie surveillant la purification de SC16. Les codes représentent le marqueur (M), avant induction (B), après induction (A), fraction soluble (S), flux direct (F), lavage (W), éluate (E) et dialysé (D). Dans le premier éluat IMAC, une bande d’un poids moléculaire estimé à ~18 kDa correspond à la protéine H-GB1-SC16 avant le clivage de la thrombine. Après la coupure avec la thrombine, il n’y a pas de protéine dans la deuxième fraction de flux d’IMAC, et une bande de ~10 kDa correspondant à SC16 dans le lavage. Dans la seconde éluate IMAC, il y a un certain résidu de SC16 et une protéine plus petite de ~8 kDa correspondant à H-GB1. Le SC16 purifié a ensuite été utilisé pour les tests d’auto-assemblage des points de fin et cinétiques. Ces résultats confirment une purification réussie de SC16, comme l’indiquent la présence de la bande de poids moléculaire attendue et la séparation du partenaire de fusion H-GB1 après le clivage thrombinique.
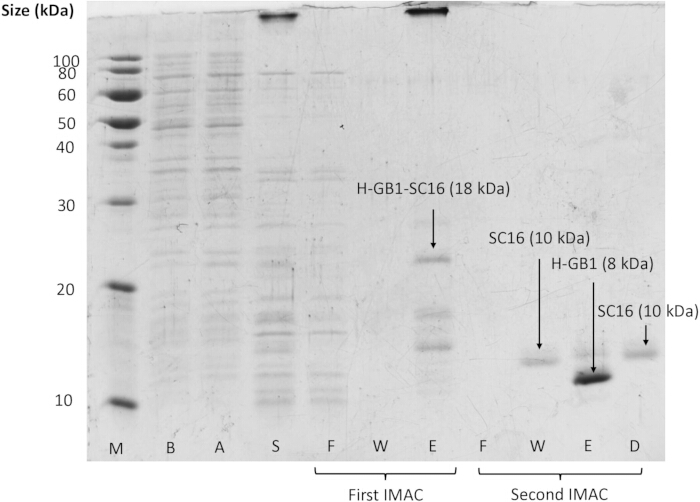
Figure 1. Analyse SDS-PAGE de la purification de SC16 pour la première (avant le clivage thrombinique) et la seconde (après le clivage thrombin) séparations IMAC. Un marqueur de poids moléculaire (M) est montré, ainsi que des échantillons prélevés avant l’induction (B), après l’induction (A), le surnageant de lyse cellulaire (S), le flux direct (F), le wash (W) et les fractions éluées (E), ainsi que l’échantillon dialysé (D). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Le test ThT au point final de l’auto-assemblage SC16 présenté dans le Tableau 1 révèle une augmentation de 11 fois de l’intensité de fluorescence du ThT après 2 heures de rotation sur le laboratoire par rapport aux témoins contenant des protéines qui n’ont pas été tournés. De même, nous n’observons aucun changement significatif de l’intensité de fluorescence lors de la rotation des échantillons tampon. Cette augmentation de la fluorescence de ThT lors de l’agitation de SC16 représente la formation de feuillets de β amyloïdes qui sont indicatifs de l’auto-assemblage deSC16 24,25. Ces résultats démontrent que le test à base de fluorescence décrit surveille efficacement l’auto-assemblage de SC16 dans les conditions testées.
| Exemple | Fluorescence ThT (compte ± SD) |
| SC16 sans rotation | 2679 ± 177 |
| SC16 après la rotation | 30315 ± 2141 |
| Tampon après rotation | 665 ± 888 |
Tableau 1. Des mesures de fluorescence ThT collectées après rotation end-à-end des échantillons SC16. Les échantillons de SC16 (50 μg mL−1) ont été soit incubés sans agitation, soit soumis à une rotation pendant 2 heures. Le ThT (20 μM) a été ajouté avant les mesures de fluorescence. La fluorescence a été mesurée aux longueurs d’onde d’excitation et d’émission de 438 et 494 nm, respectivement, et est rapportée sous forme de comptages bruts. Les valeurs sont présentées en moyenne ± écart-type (SD).
Le test cinétique d’auto-assemblage de SC16, lorsqu’il est agité dans des tampons variables pendant plusieurs heures, est présenté à la Figure 2. Les courbes cinétiques d’auto-assemblage typiques en forme de S pour la fibrillation amyloïde incluent des périodes caractéristiques de décalage, de croissance et de plateau38. Pour le SC16, aucune période de décalage substantielle n’est observée lors des premières lectures, bien que ce comportement ait été documenté pour d’autres hydrophobines, telles que EAS21,23. Les courbes d’auto-assemblage pour chaque pH sont comparables, avec de fortes pentes positives correspondant à la formation des verges. Après environ 20 minutes d’agitation, l’intensité de fluorescence stagne puis diminue lentement. Dans les échantillons témoins dépourvus de SC16, il n’y a pas de changements substantiels de fluorescence tout au long de l’expérience.
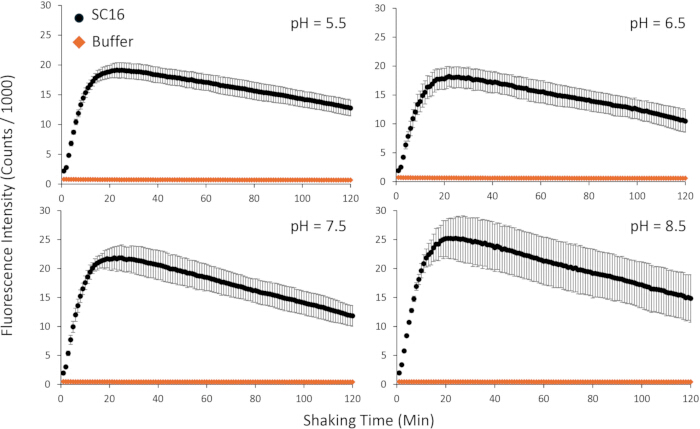
Figure 2. Courbes d’auto-assemblage de SC16 mesurées à l’aide d’un test de fluorescence cinétique ThT. SC16 a été préparé à 50 μg mL−1 dans un tampon multicomposant contenant 20 μM de ThT, 50 mM de NaCl, 20 mM de phosphate de sodium, 20 mM de MES et 20 mM de Tris. Les mesures ont été prises après 60 secondes de secousses orbitales et une période de repos de 10 secondes. L’axe des x représente le temps de secousse (total 2 h). La fluorescence a été mesurée à l’aide de longueurs d’onde d’excitation et d’émission de 438 nm et 494 nm respectivement, et est rapportée sous forme de comptages × 10−3. Les barres d’erreur représentent l’écart-type (n = 3). Les panneaux correspondent à un pH de 5,5 (en haut à gauche), 6,5 (en haut à droite), 7,5 (en bas à gauche) et 8,5 (en bas à droite). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
La figure 3 montre un exemple de résultats sous-optimaux pour l’essai d’auto-assemblage cinétique. Dans ce cas, le test a été réalisé comme décrit dans la section protocole, sauf en utilisant un réglage de secousse « linéaire » plutôt que celui d'« orbital ».
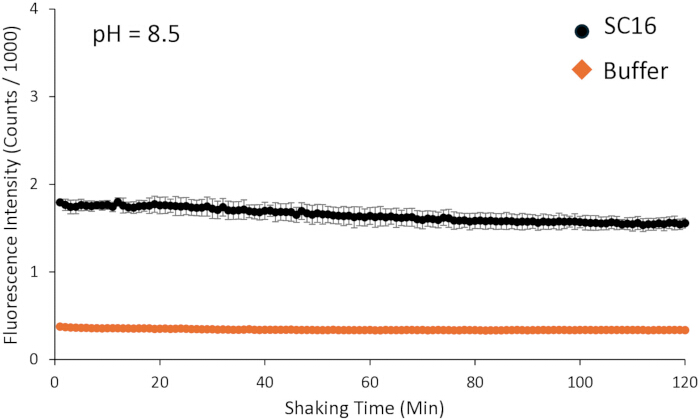
Figure 3. Exemple de données d’autoassemblage cinétique sous-optimales de SC16 obtenues à l’aide du test de fluorescence cinétique ThT. Dans ce cas, le secouement a été effectué en utilisant un réglage linéaire au lieu d’un secouement orbital. Les échantillons ont été préparés comme décrit pour la Figure 2. Les mesures ont été prises après 60 secondes de secouement linéaire et une période de repos de 10 secondes. L’axe des x représente le temps de secousse (total 2 h). La fluorescence a été mesurée à l’aide de longueurs d’onde d’excitation et d’émission de 438 nm et 494 nm respectivement, et est rapportée en comptages × 10−3. Les barres d’erreur représentent l’écart-type (n = 3). Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Discussion
Ici, nous résumons les protocoles pour l’expression et la purification de l’hydrophobine SC16, ainsi que pour les tests de fluorescence à faible et haut débit de l’auto-assemblage SC16, chacun présentant des avantages et des inconvénients distincts. Ces flux de travail peuvent être appliqués à des systèmes apparentés pour surveiller l’auto-assemblage des protéines. Dans ce protocole, la chaleur est utilisée pour lyser les cellules avant la purification de SC16, contrairement à la plupart des protocoles qui utilisent des méthodes plus traditionnelles pour lyser E. coli. Nous avons constaté que H-GB1-SC16 est soluble et stable thermiquement jusqu’à 80°C, et que la lyse thermique sert d’étape initiale de nettoyage de l’échantillon en précipitant des protéases non stables à la chaleur et d’autres protéines contaminantes dans le lysatcellulaire 39. Cependant, SC16 représente un cas particulier, car les hydrophobines sont souvent exprimées de manière insoluble dans les corps d’inclusion 12,21,40. Lorsqu’elles sont exprimées sous forme de corps d’inclusion, des conditions de dénaturation sont généralement requises, suivies d’un repliement en utilisant les protocolesétablis 21, 40, 41.
Dans ce protocole, SDS-PAGE est utilisé pour évaluer la purification de SC16 à chaque étape, y compris la granule cellulaire avant et après l’induction, la fraction soluble après lyse cellulaire, et toutes les fractions colonnes suivantes. Cela est illustré à la Figure 1 ; cependant, comparée à H-GB1, la bande correspondant à SC16 est relativement faible. Nous avons constaté que, pour de nombreuses hydrophobines, y compris SC16, obtenir une coloration Coomassie constante et intense est un défi. SC16 apparaît généralement comme une bande d’intensité moyenne lorsque le β-mercaptoéthanol est utilisé comme agent réducteur (Figure 1). Dans certains cas, une tache argentée peut être nécessaire pour visualiser les hydrophobes plus clairement.
Des tests de fluorescence à extrémité et à fluorescence cinétique peuvent être utilisés pour surveiller l’auto-assemblage du SC16. Le test ThT au point final est avantageux car il permet une évaluation rapide et simple de l’auto-assemblage. En plus d’une fluorescence accrue après 2 heures de rotation sur le banc, l’auto-assemblage s’accompagne souvent d’une opacité blanche visible dans le tube de réaction. Ce test utilise un simple rotateur de laboratoire pour le mélange, ce qui minimise l’usure des composants du lecteur de microplaques. D’après notre expérience, ce test est relativement insensible aux paramètres instrumentaux, tels que les réglages de secousse dans un lecteur de microplaques.
Le test cinétique ThT fournit des informations plus détaillées sur l’auto-assemblage. Par exemple, l’auto-assemblage de SC16 ne dépend pas de manière significative des conditions tampon24, bien que la variation entre les réplications soit observée à des valeurs de pH plus élevées. Cependant, ce comportement n’est pas universel chez les hydrophobines, et des facteurs tels que la concentration en sel, le pH 24,27,42 et les additifs (par exemple, détergents ou alcools) sont connus pour influencer l’auto-assemblage de l’hydrophobine27,28. Par exemple, l’hydrophobine SLH4 montre un auto-assemblage plus efficace à faible force ionique et pHbas à 24, tandis que l’auto-assemblage HFBII a été rapporté indépendant du pH et de la concentrationd’électrolytes 42, similaire à SC16. D’autres études ont corrélé les effets des additifs sur la formation des rogules avec des variations de tensionsuperficielle 27,28. Compte tenu de ces différences, il est important de considérer la composition tampon et le pH de chaque système et de surveiller leur influence sur la courbe d’auto-assemblage, y compris les phases de décalage, la croissance et les régions de plateau.
Une limitation importante est que le test cinétique ThT est très sensible aux paramètres instrumentaux du lecteur de microplaques et peut varier selon les instruments. Par exemple, une différence substantielle dans l’auto-assemblage de SC16 est observée entre les réglages orbitaux (mouvement circulaire) et linéaires (aller-retour) (Figure 2 et Figure 3, respectivement). Bien que les tests basés sur ThT offrent une méthode efficace pour modéliser l’auto-assemblage de l’hydrophobine, ils présentent des limites inhérentes dues à une sélectivité variable, ce qui peut entraîner des signaux faux positifsou faux négatifs 43. De plus, la diffusion de la lumière provenant des agrégats d’hydrophobine peut influencer l’intensité de fluorescencemesurée 44, réduisant la précision des mesures. La dilution de l’échantillon et la réduction de la longueur de chemin peuvent aider à atténuer ces effets.
Les protocoles résumés ici fournissent des méthodes efficaces pour purifier et surveiller l’auto-assemblage de SC16. Le test de fin est simple et moins dépendant de l’instrumentation, tandis que le test cinétique fournit des informations détaillées dans le temps, bien qu’avec une plus grande sensibilité aux paramètres instrumentaux. Ce protocole propose une approche simple pour purifier SC16 et pourrait s’appliquer à d’autres hydrophobines correctement repliées exprimées dans E. coli. Bien que les tests ThT décrits présentent des limites inhérentes, ils fournissent des informations d’auto-assemblage accessibles et temporelles comparées à des techniques telles que l’AFM ou les mesures d’angle de contact seules. Ces flux de travail peuvent être adaptés aux protéines apparentées et sont particulièrement pertinents pour les applications dans le développement de biomatériaux, la délivrance de médicaments et d’autres domaines où la compréhension de l’auto-assemblage des protéines est importante.
Déclarations de divulgation
Les auteurs ne déclarent aucun intérêt financier ou non financier concurrent.
Remerciements
Les auteurs reconnaissent le financement du New Frontiers in Research Fund (Exploration Stream ; NFRFE-2023-00322) et le Conseil de recherches en sciences naturelles et en génie du Canada (CRSNG ; Grant de découverte ; RGPIN-2024-06440). L’IED est soutenu par une bourse d’études supérieures du Canada – Programme de maîtrise (CRSNG). RH est soutenu par les donateurs de Molly Appeal via le programme de bourses supérieures 2024 de la Faculté de médecine de Dalhousie et la bourse de troisième cycle de la Nouvelle-Écosse (niveau doctorat).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | Composant de tampon pour les tests d'auto-assemblage |
| Tube en polystyrène rond de fond de 5 mL | Falcon | 352054 | Utilisé pour les tests d'auto-assemblage à faible débit |
| Microplaque en polystyrène noir de 96 puits | Grenier | 655076 | Utilisé pour les mesures de fluorescence dans un lecteur de microplaques |
| Solution d'acrylamide/Bis-acrylamide (29:1) (40%) | BioShop | ACR004.500 | Utilisé pour préparer les gels SDS-PAGE |
| Agar | BioShop | AGR002.1 | Agar utilisé pour fabriquer des plaques LB résistantes à l'ampicilline |
| Ampicilline | IBI Scientific | IB02040 | Antibiotique utilisé dans les plaques LB-agar |
| Fioles Fernbach 2,8 L à remous | Fisher Scientific | 955239 | Utilisé pour la croissance de cultures bactériennes en grand volume |
| β-mercaptoéthanol | TCI Chemicals | 60-24-2 | Agent réducteur utilisé dans la préparation des échantillons SDS-PAGE |
| Colonne (colonne de gravité de 1,5 cm de diamètre) | Bio-Rad | 7371522 | Utilisé pour la purification par affinité au nickel |
| Tube de dialyse (MWCO de 3500 kDa) | BioDesign | D302 | Utilisé pour l'échange de tampons pendant la purification |
| Filtre d'émission | Edmund Optics | 84080 | Utilisé pour les tests ThT (494 nm, bande passante de 20 nm) |
| Filtre d'excitation | Edmund Optics | 67012 | Utilisé pour les tests ThT (438 nm, bande passante de 24 nm) |
| Lecteur de microplaques à fluorescence | Tecan | Infinite F200 Pro | Utilisé pour mesurer l'intensité de fluorescence ThT |
| Plaque chauffante | Lab Fish | HS5C | Utilisé pour la configuration d'un bain-marie avec surveillance de la température |
| Acide chlorhydrique (HCl) | Fisher Chemical | A144-212 | Utilisé pour l'ajustement du pH des tampons |
| Imidazole | TCI Chemicals | 288-32-4 | Utilisé dans la purification IMAC (tampon de lavage et de élution) |
| Isopropyl β-D-1-thiogalactopyranoside (IPTG) | Sigma-Aldrich | 367-93-1 | Induisant l'expression des protéines dans E. coli |
| Bouillon LB (Lennox) | BioShop | LBL405.5 | Milieu de croissance pour la culture bactérienne |
| Centrifugeuse réfrigérée à basse vitesse | Beckman Coulter | 360291 | Utilisé pour peler les cellules avant le stockage |
| Perles d'agarose NTA au nickel | GoldBio | H-350-50 | Résine utilisée pour la purification par affinité des protéines marquées His |
| Plasmidie SC16 | BioBasic | N/A | Construction d'ADN personnalisée codant pour la protéine de fusion H-GB1-SC16 |
| E. coli SHuffle T7 Express compétent | New England Biolabs | C3029J | Souche hôte utilisée pour l'expression de protéines recombinantes |
| Chlorure de sodium (NaCl) | BioShop | SOD001.5 | Composant de tampon et régulateur de force ionique |
| Hydroxyde de sodium (NaOH) | Fisher Chemical | SS255-1 | Utilisé pour l'ajustement du pH des tampons |
| Phosphate de sodium | BioShop | SPD579.1 | Composant de tampon pour maintenir le pH |
| Spectrophotomètre | Pharmacia Biotech | 5096 | Utilisé pour la quantification de SC16 |
| Thioflavine T (ThT) | Acros Organics | 2390-54-7 | Colorant fluorescent utilisé pour surveiller l'auto-assemblage des protéines |
| Protéase thrombine | Sigma-Aldrich | 04-04-9002 | Utilisé pour la clivage de la protéine de fusion H-GB1-SC16 |
| Tris(hydroxyméthyl)aminométhane (Tris) | BioShop | TRS001.5 | Tampon utilisé dans les solutions de purification et d'essai |
| Centrifugeuse réfrigérée à grande vitesse | Sorvall | 46915 | Utilisé pour clarifier le lysat après la lyse cellulaire |
| Configuration SDS-PAGE | Bio-Rad | 1658000EDU | Utilisé pour préparer et faire fonctionner les gels SDS-PAGE |
Réimpressions et autorisations
