La résistance aux antibiotiques chez les souches invasives d’Escherichia coli adhérente pose des défis pour évaluer l’invasion bactérienne à l’aide du test traditionnel de protection contre la gentamicine. Une méthode améliorée pour évaluer quantitativement l’invasion bactérienne en énumérant les unités formant des colonies et qualitativement par visualisation des cellules infectées par microscopie confocale à immunofluorescence est décrite.
Article de méthode
Test de protection de l’amikacine pour la quantification et la visualisation de l’invasion des cellules d’Escherichia coli
Dans cet article
Résumé
Résumé
L’invasion des cellules épithéliales est un phénotype clé pour de nombreux agents pathogènes entériques, notamment Salmonella, Shigella et Vibrio. Un agent pathogène invasif émergent est Escherichia coli (AIEC), qui est impliqué dans la pathogenèse de la maladie inflammatoire intestinale (MII). Les souches de l’AIEC ne possèdent pas de facteurs de virulence couramment associés à d’autres agents pathogènes invasifs, ce qui rend l’identification génétique difficile. En conséquence, les souches AIEC sont classées phénotypiquement en fonction de leur capacité à envahir les cellules épithéliales à l’aide d’un test de protection contre la gentamicine standard sur le terrain. Cependant, comme les souches AIEC sont souvent isolées chez des patients atteints de MII qui reçoivent divers antibiotiques dans le cadre de leur traitement, la montée des isolats résistants à la gentamicine a rendu ce test moins fiable pour la classification AIEC. Pour contourner ce problème, un test de protection alternatif basé sur l’amikacine a été développé afin de quantifier et visualiser l’invasion cellulaire de l’AIEC. Ce test utilise l’amikacine, un aminoglycoside semi-synthétique à large spectre qui cible efficacement les souches résistantes à d’autres aminoglycosides tout en restant extracellulaire aux cellules hôtes eucaryotes. Ainsi, les bactéries extracellulaires sont tuées lors de l’infection tandis que les bactéries intracellulaires sont « protégées ». Cela constitue la base d’un test quantitatif pour comparer l’invasivité des souches, mesurée par le score d’invasion en pourcentage utilisant les unités formatrices de colonies (UFC) récupérées après infection. Ce test peut également être utilisé comme mesure qualitative de l’invasion par immunocoloration des cellules épithéliales infectées et la visualisation de ces cellules par microscopie confocale. Cette méthode sert d’outil diagnostique pour dépister les patients atteints de MII à la recherche de l’AIEC, qui peut également être appliqué à d’autres agents pathogènes multirésistants afin d’évaluer l’invasion cellulaire, un indicateur de virulence et de pathogénicité.
Introduction
La maladie inflammatoire de l’intestin (MII), qui comprend la maladie de Crohn (MC) et la colite ulcéreuse, est une affection inflammatoire gastro-intestinale chronique qui touche des millions de personnes dans lemonde 1. Malgré l’augmentation mondiale de l’incidence des MII, son étiologie précise reste floue, en raison de l’interaction complexe de facteurs génétiques, environnementaux, microbiens etimmunologiques 2,3. Une caractéristique distinctive de la MII est la composition microbienne intestinale modifiée, souvent influencée par des facteurs environnementaux, tels qu’un régime riche en sucres et en graisses courant dans les paysindustrialisés 4,5. Le microbiote des patients atteints de MII est fréquemment caractérisé par une diminution de la diversité microbienne, l’enrichissement des gammaprotéobactéries pathogènes et l’appauvrissement des Firmicutesprotecteurs 6,7. Chez les patients atteints de MC, Escherichia coli (E. coli) est enrichie dans le microbiote intestinal, s’associe et envahit la muqueuse intestinale, et est positivement corrélée à une maladie active et grave8,9. Ce pathotype émergent d’E. coli associé à la maladie de clos est appelé Escherichia coli invasif par adhérence (AIEC).
L’AIEC est composé de pathogènes opportunistes à gram négatif qui colonisent la muqueuse iléale des patients atteints de MC avec une plus grande propension que les témoins sains10. Les souches AIEC isolées chez des patients atteints de MC sont génétiquement diverses, couvrant souvent tous les phylogroupes d’E. coli incluant à la fois commensal et pathogène E. coli11. Contrairement à des agents pathogènes tels que Shigella et Salmonella, qui reposent sur l’utilisation de systèmes de sécrétion de type III pour faciliter l’invasion des cellules hôtes, l’AIEC ne possède pas ces systèmes de virulenceconservés 12. Ainsi, notre compréhension de la virulence de l’AIEC repose largement sur son phénotype in vitro, caractérisé par sa capacité à adhérer et envahir les cellules épithéliales et à survivre dans les macrophages10.
L’invasion des cellules épithéliales par l’AIEC est médiée par plusieurs facteurs de virulence, dont le pilus de type 1 et les fimbries polaires longues. Le FimH, situé à l’extrémité du pilus de type 1, médie l’adhésion aux résidus de mannose sur le récepteur de l’hôte fortement glycosylé CEACAM613. Cette liaison favorise l’entrée de l’AIEC dans les entérocytes et soutient sa réplicationintracellulaire 14. L’AIEC adhère également aux cellules microfold (M), cellules épithéliales spécialisées situées au-dessus des plaques de Peyer grâce aux interactions entre ses longues fimbries polaires et la glycoprotéine de surface des cellules M 215,16. Cette adhésion permet à l’AIEC de translocer à travers les cellules M, d’atteindre les macrophages sous-jacents et de déclencher l’expression de cytokines pro-inflammatoires telles que le TNF-α, qui favorisent non seulement l’inflammation mais favorisent également la réplication bactérienne dans les macrophages17,18. On suppose que ces mécanismes pathogènes perpétuent une inflammation chronique chez l’hôte, comme observé dans la MC.
L’AIEC est définie par leur phénotype in vitro , rendant le test de protection contre la gentamicine indispensable à la classification des souches et à la découverte des facteursde virulence 8. Cette approche peut être compliquée par les isolats résistants à la gentamicine, ce qui peut entraîner leur mauvaise classification en11 invasives. Pour contourner ce problème, des antibiotiques alternatifs capables de tuer efficacement les isolats résistants à la gentamicine sans pénétrer les membranes des cellules hôtes ont été testés. Grâce à cette approche, l’amikacine a été identifiée comme un substitut approprié à la gentamicine, offrant une efficacité et une compatibilité comparables aux tests d’invasion standards, ainsi qu’une cytotoxicité minimale, comme l’a démontré la coloration au bleu de trypan dans des études antérieures et validé ici par un test de libération de lactate déshydrogénase (Figure supplémentaire 1)11. L’amikacine est un aminoglycoside semi-synthétique dérivé de la kanamycine qui inhibe la croissance bactérienne en perturbant la synthèse des protéines19. L’amikacine est particulièrement efficace contre les bactéries à gram négatif multi-résistantes, notamment Pseudomonas, Acinetobacter et Escherichia species 19. Notamment, les modifications structurelles de la colonne vertébrale de la kanamycine rendent l’amikacine moins sensible aux enzymes bactériennes inactivant lesaminochlorosides 19. En conséquence, l’amikacine représente une alternative robuste à la gentamicine pour cibler des bactéries multi-résistantes aux médicaments dans des tests d’invasion. Les protocoles suivants décrivent comment évaluer le phénotype d’invasion d’E. coli en utilisant à la fois la souche de référence NRG857c et des isolats cliniques avec le test de protection contre l’amikacine.
Protocole
REMARQUE : Ce protocole décrit une méthode pour évaluer la capacité d’invasion des souches AIEC dans les cellules épithéliales Caco-2. La concentration d’amikacine utilisée dans ce protocole (240 μg/mL) correspond à 10 × la concentration inhibitrice minimale (CMI), telle que déterminée à l’aide de bandelettes testeuses pour CMI amikacin sur un panel de 32 isolats cliniques représentatifs de l’AIEC provenant de 13 patients atteints de maladie inflammatoireintestinale 11. Les chercheurs doivent déterminer la CIM pour leurs propres isolats AIEC avant de réaliser le test ( voir Tableau des matériaux), car la susceptibilité aux antibiotiques peut varier selon les isolats. La section 1 détaille le test de protection contre l’amikacine pour la quantification du pourcentage d’invasion, et la section 2 décrit le test de protection contre l’amikacine pour la microscopie confocale.
1. Essai de protection contre l’amikacin pour la quantification du pourcentage d’invasion
- Revêtement au collagène des plaques à 24 puits
- Diluer 35,29 μL d’acide acétique glaciaire stérile (voir Tableau des matériaux) dans 30 mL de 1× PBS (voir Tableau des matériaux) dans un tube conique de 50 mL.
- Pipeter 300 μL de collagène (voir Tableau des matériaux) dans le 1× PBS avec une solution d’acide acétique.
- Solution vortex pendant 10 secondes pour bien mélanger.
- Distribuez 250 μL de la solution diluée de collagène dans chaque puits d’une plaque stérile traitée en culture tissulaire à 24 puits de tissul.
REMARQUE : La solution de collagène de 30 mL suffit à recouvrir environ cinq plaques à 24 puits cadre. - Inclinez la plaque dans toutes les directions pour vous assurer que la solution a uniformément recouvert le fond de chaque puits.
- Incubez les plaques à 37 °C pendant 2 heures afin de permettre au collagène d’adhérer à la surface plastique.
- Après l’incubation, aspirez la solution de collagène de chaque puits.
- Pipeter 1 mL de 1× PBS dans chaque puits pour laver le collagène résiduel et aspirer chaque puits. Répétez cette étape 2 fois de plus (3 lavages au total).
- Séchez les plaques à l’intérieur d’un meuble de sécurité biologique pour s’assurer que toute l’humidité visible s’est évaporée.
REMARQUE : Les plaques peuvent être utilisées immédiatement pour l’ensemencement des cellules ou conservées à température ambiante. Lors du stockage des plaques, scellez le périmètre extérieur avec un parafilm stérile ou placez-les dans un sac ziplock stérile.
- Préparation de solutions de stocks amikacin
- Pèser 240 mg de disulfate d’amikacine (voir Tableau des matériaux) et transférer dans un tube microcentrifuge de 1,5 mL.
- Pipeter 1 mL d’eau stérile et solubiliser l’amikacin par vortex, ce qui donne une concentration finale de 240 mg/mL (1000× stock).
- Fabriquez 20 μL d’aliquotes de la solution amikacine et conservez-les à -20 °C.
REMARQUE : L’amikacine est stable à -20 °C pendant 6 à 12 mois. Préparez des aliquotes à usage unique pour minimiser les cycles répétés de gel-dégel.
- Préparation des cellules Caco-2
- Dégel des cellules Caco-2 à partir de stocks congelés
- Préparez un milieu de croissance complet en complétant le milieu modifié Dulbecco’s Modified Eagle Medium (DMEM, voir Tableau des matériaux) avec un sérum bovin fœtal à 10 % (FBS, voir Tableau des matériaux) et une solution antibiobiotique-antimycotique à 1 % (voir Tableau des matériaux).
- Préchauffez le substrat dans un bain-marie à 37 °C pendant 30 minutes.
- Placez le flacon congelé de cellules Caco-2 dans un bain-marie à 37 °C et incubez pendant 1 à 2 minutes jusqu’à ce que les cellules soient complètement décongelées.
- Retirez le flacon du bain-marie et vaporisez l’extérieur du flacon avec 70 % d’éthanol.
- À l’intérieur d’un cabinet de sécurité biologique, pipettez les cellules dans un tube conique de 15 mL contenant 9 mL de milieu de croissance complet.
- Centrifugez les cellules à 500 × g pendant 5 minutes à température ambiante.
- Aspirez le surnageant et resuspendez la pellete cellulaire dans 5 mL de milieu de croissance complet.
- Transférer les cellules dans un flacon deculture tissulaire de 75 cm ( T75) contenant 10 mL de milieu de croissance complet et chaud.
- Faites tourner la plaque trois fois pour assurer une répartition uniforme des cellules sur le bas de la plaque.
- Incubez les cellules à 37 °C avec 5 % de CO2 jusqu’à ce que les cellules atteignent une confluence de ~90 % (6 à 7 jours).
REMARQUE : La confluence est estimée par approximation de visualisation des cellules à l’aide d’un microscope optique. Remplacez le substrat tous les 3 jours pendant la régénération des cellules.
- Ensemencement des cellules Caco-2
- Un milieu de croissance complet pré-chauffé et 0,25 % (p/v) de trypsine-EDTA (voir Tableau des matériaux) dans un bain-marie à 37 °C.
- Une fois que les cellules Caco-2 atteignent ~90 % de confluence, aspirez un milieu de culture cellulaire et ajoutez 2 mL de trypsine-EDTA. Inclinez la fiole pour permettre à la solution de trypsine de recouvrir toute la surface inférieure afin de s’assurer que toutes les traces de FBS sont inactivées.
- Aspirez la solution de trypsine-EDTA et ajoutez 3 mL de trypsine-EDTA. Incubez les cellules à 37 °C avec 5 % de CO2 pendant 5 à 15 minutes. Visualisez les cellules à l’aide d’un microscope optique à différents moments pendant la période d’incubation pour observer l’arrondissement cellulaire, indiquant que les cellules se sont détachées.
REMARQUE : Évitez de frapper le côté de la fiole pour faciliter le décollement cellulaire, car cela peut provoquer des agglomérations cellulaires. - Pipeter 6 mL de milieu de croissance complet pour désactiver la solution de trypsine-EDTA et mélanger en pipettant doucement de haut en bas pour resuspendre les cellules.
- Pipeter les cellules dans un tube conique de 15 mL et centrifuger à 500 × g pendant 5 minutes pour les pellets.
- Aspirer le milieu et resuspendre les cellules dans 3 mL de milieu de croissance complet.
- Transférez 10 μL des cellules Caco-2 en suspension dans un tube microcentrifuge de 1,5 mL. Ajoutez 10 μL de colorant bleu Trypan (voir Tableau des matériaux) au tube de microcentrifuge de 1,5 mL et mélangez en pipettant plusieurs fois vers le haut et vers le bas.
- Pipeter 10 μL du mélange bleu Caco-2/Trypan vers une contre-lama cellulaire (voir Tableau des matériaux). Énumérez le nombre de cellules vivantes pour calculer la viabilité cellulaire.
REMARQUE : Lors de l’énumération du nombre de cellules Caco-2 présentes, ne considérez que le nombre de cellules vivantes, pas le nombre total de cellules à ensemencer. - Semez les cellules Caco-2 dans une plaque à 24 puits ou dans un flasque T75.
- Pour une plaque à 24 puits, suivez les étapes ci-dessous :
- Semez les cellules Caco-2 à une concentration de 1 x 10⁵ cellules/mL en utilisant l’équation ci-dessous :
[(1 × 10⁵ cellules) (Nombre de puits ensemençant + 2)] / [Concentration de nombre de cellules viables (cellules/mL)] = cellules (mL) - Retirez le volume de cellules calculé ci-dessus des cellules Caco-2 en suspension à l’étape 3.2.6 dans un tube conique de 15 mL. Calculez le volume de milieux de croissance complets à ajouter aux cellules en utilisant l’équation ci-dessous :
(Nombre de puits ensemençant + 2 puits) - cellules (mL) = milieu (mL)
REMARQUE : Les « puits +2 » dans le calcul servent à tenir compte de l’erreur de pipetage. - Pipeter le volume de milieux calculé ci-dessus dans la conique de 15 mL contenant les cellules Caco-2 et mélanger en pipettant plusieurs fois vers le haut et vers le bas.
- Pipeter 1 mL de cellules Caco-2 dans un milieu de croissance complet (concentration finale 1 x 10⁵ cellules/mL) dans chaque puits de la plaque à 24 puits recouverte de collagène.
- Incubez la plaque à 37 °C avec 5 % deCO2 jusqu’à ce que les cellules atteignent une confluence de ~90 % (3–4 jours).
- Semez les cellules Caco-2 à une concentration de 1 x 10⁵ cellules/mL en utilisant l’équation ci-dessous :
- Pour une flasque T75, suivez les étapes ci-dessous :
- Transférez 7,5 x 10 5cellules viables vers une fiole T75 en utilisant l’équation suivante :
[(7,5 × 10⁵ cellules)] / [concentration viable de nombre cellulaire (cellules/mL)] = cellules (mL)
REMARQUE : Le nombre de cellules viables à ajouter à la fiole T75 a été déterminé selon les directives de l’ATCC pour la culture cellulaire Caco-2. - Retirez le volume de cellules calculé ci-dessus et transférez dans une fiole T75. Calculez le volume de milieux de croissance complets à ajouter aux cellules en utilisant l’équation ci-dessous :
15 mL - volume de cellules ajoutées à la fiole = milieu (mL) - Pipettez le volume de milieux calculé ci-dessus vers la fiole T75.
- Faites tourner doucement l’assiette plusieurs fois pour répartir uniformément les cellules sur le fond de la fiole. Incubez à 37 °C avec 5 % de CO2 jusqu’à ce que les cellules atteignent ~90 % de confluence (3 à 4 jours).
- Transférez 7,5 x 10 5cellules viables vers une fiole T75 en utilisant l’équation suivante :
- Dégel des cellules Caco-2 à partir de stocks congelés
- Essai de protection Amikacin
REMARQUE : Assurez-vous que tous les milieux de culture cellulaire sont pré-réchauffés à 37 °C avant le début de l’expérience.- Préparation des bactéries
- À l’aide d’un bâton en bois stérile ou d’une pointe de pipette stérile, grattez doucement les bactéries d’un stock de glycérol bactérien congelé stocké à -80 °C et tracez sur une plaque d’agar de livres pour obtenir des colonies individuelles. Faites couver l’assiette à 37 °C toute la nuit.
- À l’aide d’un bâton en bois stérile ou d’une pointe de pipette stérile, prenez une colonie unique de la plaque d’agar et inoculez dans 3 mL de bouillon LB. Incubez la culture à 37 °C en secouant à 200 tr/min pendant la nuit.
- Effectuez une dilution 1:10 de la culture pendant la nuit dans un bouillon de 1 mL LB et mesurez la densité optique à 600 nm (OD600) de la culture à l’aide d’un spectrophotomètre.
- Calcul de la multiplicité des infections (MOI)
- Transférez 100 μL de la culture nocturne dans un tube microcentrifuge de 1,5 mL et centrifugez à 6000 × g pendant 10 minutes à 4 °C.
- Aspirez le surnageant avec précaution pour ne pas déranger la pastille cellulaire. Résuspendez le pellet dans 1 mL de milieu sérique et sans antibiotiques.
REMARQUE : Il s’agit d’une dilution 1:10 de la culture bactérienne pendant la nuit. Pour le calcul du MOI, utilisez la valeur brute OD600 calculée pour la culture diluée au jour le jour à l’étape 4.1.3, et non la valeur OD600 corrigée pour le facteur de dilution. - Calculez le volume de suspension bactérienne à ajouter à partir de l’étape 4.2.2 pour infecter les cellules Caco-2 à un MOI de 10 en utilisant le calcul suivant :
[1 unité OD/2,4 × 109 bactéries] × [10 bactéries/cellule] × [1 mL × OD 1:10] × 1 ×105 ×103 = volume (uL)
REMARQUE : Notez soigneusement le volume calculé pour chaque échantillon, car cette valeur sera utilisée ultérieurement pour calculer l’UAC/mL de l’inocule. Ce volume de suspension bactérienne ne concerne qu’un puits à l’intérieur de la plaque à 24 puits. - Préparez le milieu infectieux en transférant le volume calculé de suspension bactérienne de l’étape 4.2.3 dans un tube stérile de microcentrifuge de 1,5 mL. Ajoutez 1 mL de sérum et de média sans antibiotiques. Mélangez doucement en pipettant plusieurs fois.
- Infection par cellules Caco-2
- Retirez la plaque à 24 puits contenant les monocouches de cellules Caco-2 de l’incubateur et aspirez le milieu complet.
- Pipeter 1 mL de milieu sérique et sans antibiotiques dans chaque puits et aspirer pour éliminer les traces de milieux contenant du sérum. Répétez cette étape une fois de plus (2 lavages au total).
REMARQUE : Réduisez la pression sous vide lors de l’aspiration afin d’éviter de perturber la monocouche cellulaire. - Pipeter 1 mL du milieu infectieux à partir de l’étape 4.2.4 vers chaque puits de la plaque à 24 puits contenant les cellules Caco-2.
- Centrifugez la plaque de 24 puits à 500 × g pendant 15 minutes à température ambiante pour synchroniser le contact bactérien avec les cellules épithéliales.
- Incubez la plaque de 24 puits à 37 °C avec 5 % de CO2 pendant 3 heures afin de permettre l’invasion bactérienne.
- Pendant la période d’incubation, déterminer le CFU/mL de la culture diluée pendant la nuit à partir de l’étape 4.2.2 en effectuant des dilutions en série 10 fois dans un PBS stérile 1× à l’aide d’une plaque à 96 puits.
- Pour préparer chaque dilution, transférez 200 μL de culture diluée pendant la nuit de l’étape 4.2.2 au premier puits de la plaque.
- Pipeter 20 μL de la culture vers la rangée suivante qui contient 180 μL de 1× PBS. Mélangez en pipettant 10 fois. Répétez jusqu’à ce que les dilutions atteignent 10-6 à chaque fois avec une pointe de pipette neuve pour le transfert.
- La plaque 10 μL de dilutions ponctuelles en triple mesure des dilutions 10-2 à 10-6 sur des plaques d’agar LB. Laissez les taches s’absorber dans l’agar sous une flamme.
- Incubez les plaques toute la nuit à 27–30 °C pour éviter la prolifération des colonies et assurer des colonies individuelles claires et séparées.
REMARQUE : Le plaquage ponctuel en triple exemplaire améliore la précision de la quantification et permet la détection sur une gamme de concentrations bactériennes. Une température d’incubation plus basse ralentit la croissance bactérienne, permettant une estimation plus précise de l’UFC à partir d’échantillons à haute concentration.
- Préparez un milieu contenant des antibiotiques en ajoutant 240 μg/mL d’amikacine à un sérum préchauffé et à un milieu sans antibiotiques.
- Après la fin de l’infection de 3 heures, aspirez le milieu des monocouches de cellules Caco-2. Ajoutez 1 mL de sérum et de substrat antibiotique sans antibiotiques dans chaque puits. Répétez cette étape une fois de plus (2 lavages au total).
- Pipeter 1 mL de milieux contenant 240 μg/mL contenant de l’amikacin dans chaque puits et incuber à 37 °C avec 5 % deCO-2 pendant 1 h afin d’éliminer les bactéries extracellulaires.
- Aspirez le milieu de chaque puits et ajoutez 1 mL de 1× PBS pour éliminer les bactéries adhérentes tuées par l’amikacine. Répétez cette étape une fois de plus (2 lavages au total).
- Pipette 200 μL de 1 % de Triton-X-100 (voir Tableau des matériaux) diluée en 1× PBS dans chaque puits. Incuber sur un shaker orbital à 90 tr/min pendant 10 minutes pour lyser les cellules épithéliales.
- Détacher les cellules de la plaque à 24 puits en pipettant environ 30 fois par puits.
REMARQUE : Puisque revêtir les plaques de collagène améliore l’adhérence cellulaire, il est important de s’assurer que la monocouche s’est détachée de la plaque. Cela peut être confirmé visuellement en comparant un puits lysé par rapport à un puits non lysé et un puits sans cellules Caco-2, qui paraît clair. - Effectuer des dilutions en série 10 fois des lysats cellulaires dans une plaque de 96 puits en utilisant 1× PBS.
REMARQUE : Effectuez des dilutions en série jusqu’à la dilution 10-3 . - Plaque 10 μL de dilutions ponctuelles en tripliqué, allant des dilutions non diluées à 10-3 dilutions, sur des plaques d’agar LB. Laissez les taches s’absorber dans l’agar sous une flamme. Incubez les plaques toute la nuit à 27–30 °C pour éviter la surcroissance des colonies et assurer des colonies individuelles claires et séparées.
- Comptage des colonies et calcul du pourcentage d’invasion
- Après une incubation nocturne, comptez le nombre de colonies dans chaque dilution tache provenant de la culture diluée pendant la nuit et du lysat récupéré. Sélectionnez une dilution dans laquelle chaque endroit contient plus de 7 colonies isolées. Utilisez la même dilution sur les triplicates pour calculer un nombre moyen de colonies bactériennes prélevées pour cette dilution.
REMARQUE : Comptez les dilutions ponctuelles contenant des colonies isolées bien isolées et évitez de compter celles contenant des colonies en contact. - Calculez l’UFC/mL de l’inocule, l’UFC/mL récupéré et le pourcentage d’invasion en utilisant les équations suivantes :
Unculum CFU (CFU/mL) :
Inoculum UFC = (nombre moyen de colonies) (facteur de dilution)(volume provenant du milieu infectieux (μL) x 100
CFU consulté (CFU/mL) :
UFCrécupérée = (nombre moyen de colonies) (facteur de dilution) x 100
Pourcentage d’invasion ( %) :
Invasion ( %) = [(UFC consultée)/(inocule de l’UFC)] × 100
- Après une incubation nocturne, comptez le nombre de colonies dans chaque dilution tache provenant de la culture diluée pendant la nuit et du lysat récupéré. Sélectionnez une dilution dans laquelle chaque endroit contient plus de 7 colonies isolées. Utilisez la même dilution sur les triplicates pour calculer un nombre moyen de colonies bactériennes prélevées pour cette dilution.
- Préparation des bactéries
2. Test de protection contre l’amikacine pour microscopie confocale
- Préparation de couvertures stériles recouvertes de poly-L-lysine
- Dans un cabinet de sécurité biologique, utilisez des pinces stériles pour placer des bâtons de couverture recouverts de poly-L-lysine (voir Tableau des matériaux) sur un essuie-tout imbibé de 70 % d’éthanol.
- Vaporisez les deux lames des couvertures avec 70 % d’éthanol, en utilisant des pinces stériles pour retourner la gaine de chaque côté.
- Laissez les gaines de protection sécher sous la lumière UV de l’armoire de sécurité biologique jusqu’à ce qu’elles soient complètement sèches.
- Ensemencement des cellules Caco-2 dans une plaque à 6 puits
- Dans un armoire de sécurité biologique, placez 1 gouverne de couverture recouverte de poly-L-lysine dans chaque puits d’une plaque à 6 puits.
- Répétez les étapes 3.2.1–3.2.8 de la section « Ensemencement des cellules Caco-2 ».
- Semez les cellules Caco-2 à une concentration de 1 x 10⁵ cellules/mL dans une plaque à 6 puits en utilisant l’équation ci-dessous :
[(1 × 10⁵ cellules) (Nombre de puits ensemençant + 2)] / [Concentration viable de nombre de cellules (cellules/mL)] × 2 = cellules (mL)
REMARQUE : Cette valeur est multipliée par 2 pour compenser l’ajout de 2 mL de média par puits lors de l’utilisation d’une plaque à 6 puits. - Retirez le volume de cellules calculé ci-dessus dans un tube conique de 15 mL. Calculez le volume de milieux de croissance complets à ajouter aux cellules en utilisant l’équation ci-dessous :
(Nombre de puits ensemençant + 2 puits) x 2 - cellules (mL) = milieu (mL) - Pipeter le volume de milieux calculé ci-dessus dans la conique de 15 mL contenant les cellules Caco-2 et mélanger en pipettant plusieurs fois vers le haut et vers le bas.
- Ajoutez 2 mL de cellules Caco-2 dans un milieu de croissance complet à chaque puits de la plaque à 6 puits (concentration finale 1 × 10⁵ cellules/mL).
- Incubez la plaque à 37 °C avec 5 % de CO2 jusqu’à ce que les cellules atteignent une confluence de ~90 % (2 à 3 jours).
- Test de protection contre l’amikacin
- Effectuer le test de protection contre l’amikacine tel qu’indiqué dans la Section 1, Étapes 4.1-4.3.10
- Coloration par immunofluorescence
- Fixation et perméabilisation des cellules Caco-2
- Fixez les cellules en ajoutant 1 mL de paraformel à 4 % dilué dans 1X PBS (voir Tableau des matériaux) à chaque puits. Incubez pendant 10 minutes à température ambiante dans le noir.
- Aspirez chaque puits et ajoutez 1 mL de 1× PBS aux cellules de lavage. Répétez cette étape 2 fois de plus (3 lavages au total).
REMARQUE : Les cellules peuvent être stockées plusieurs jours dans un PBS 1X à 4 °C. - Ajoutez 1 mL de Triton-X-100 à 0,1 % dans chaque puits et incubez pendant 10 minutes à température ambiante pour perméabiliser les cellules.
- Aspirez la solution Triton-X-100 et ajoutez 1 mL de 1× PBS à chaque puits. Incubez les cellules avec 1× de sac de sac pendant 5 minutes. Répétez cette étape 2 fois de plus (3 lavages au total).
- Blocage et coloration par anticorps
- Pour prévenir la liaison des anticorps non spécifiques, préparez une solution bloqueante utilisant 1 % d’albumine sérique bovine (BSA), 22,52 mg/mL de glycine dans 1× PBS + 0,1 % Tween20 (voir Tableau des matériaux).
- Ajoutez 1 mL de solution de blocage à chaque puits et faites couver pendant 1 heure à température ambiante.
REMARQUE : L’étape de blocage peut également être effectuée à 4 °C pendant 16 heures. - Aspirez la solution bloqueante et incubez les cellules avec l’anticorps primaire anti-Rabbit E. coli (voir Tableau des matériaux) dilué (dilution recommandée à 1:500) dans une solution bloqueante pendant 1 h à température ambiante.
REMARQUE : L’incubation avec l’anticorps primaire peut également être effectuée à 4 °C pendant 16 heures. - Aspirez la solution primaire d’anticorps et ajoutez 1 mL de 1× PBS + 0,1 % Tween20. Incuber les cellules en 1× PBS + 0,1 % Tween20 pendant 5 minutes. Répétez cette étape 2 fois de plus (3 lavages au total).
- Incubez les cellules avec l’anticorps secondaire anti-Rabbit Alexa Fluor 488 (voir Tableau des matériaux) dilué (dilution recommandée à 1:1000) dans une solution bloqueante pendant 1 h à température ambiante. Enveloppez la plaque dans du papier aluminium pour protéger le fluorophore de la lumière.
- Aspirez la solution secondaire d’anticorps et ajoutez 1 mL de 1× PBS + 0,1 % Tween20. Incuber les cellules en 1× PBS + 0,1 % Tween20 pendant 5 minutes. Répétez cette étape 2 fois de plus (3 lavages au total).
- Contre-teinture et montage de la gaine de couverture
- Pour colorer l’ADN de l’hôte et de la bactérie ainsi que l’actine de l’hôte, préparez une dilution combinée à l’aide de 10 mg/mL de Hoechst (dilution recommandée 1:2000, voir Tableau des matériaux) et de Rhodamine-phalloïdine (dilution recommandée 1:1000, voir Tableau des matériaux) dans 1× PBS.
- Ajoutez 1 mL de solution de colorant à chaque puits et faites couver pendant 10 minutes.
- Retirez la solution de colorant et ajoutez 1 mL de 1× PBS à chaque puits. Répétez cette étape une fois de plus (2 lavages au total).
- Ajoutez 1 mL de 1× PBS et laissez les cellules immergées dans la solution.
- Placez une goutte de support de montage (voir Tableau des matériaux) sur la diapositive indiquée.
- Soulevez soigneusement la gaine de couverture de la plaque à 6 puits à l’aide d’une aiguille pliée et inversez la gaine de couverture de sorte que le côté contenant les cellules fasse face à la lame contenant le support de montage.
- Placez la gaine de couverture sur le support de fixation. Assurez-vous que le support de montage est bien réparti sur toute la housse de protection.
- Incubez les lames montées à température ambiante toute la nuit, dans le noir.
- Scellez les bords de la gouverne à l’aide d’un vernis à ongles transparent et rangez les coulisses à 4 °C dans une boîte à glissière.
- Imagez les échantillons montés à l’aide des canaux appropriés correspondant aux colorants/fluorophores utilisés avec un microscope confocal.
- Fixation et perméabilisation des cellules Caco-2
Résultats
Pour évaluer l’efficacité du traitement à l’amikacine dans l’élimination des bactéries extracellulaires et visualiser l’invasion intracellulaire, nous avons réalisé des expériences d’infection utilisant des monocouches de cellules Caco-2. Comme montré à la Figure 1, un traitement par gantamicine ou amikacine après infection par E. coli NRG857c (contrôle positif) ou E. coli DH5α (contrôle négatif) a donné des profils d’invasion similaires. Ces résultats indiquent que l’amikacine est aussi efficace que la gentamicine pour éliminer les bactéries extracellulaires et reflète avec précision la charge bactérienne intracellulaire, soutenant son utilisation comme antibiotique alternatif pour les tests d’invasion. Une plage de récupération de ~4 à 10 % de la récupération de NRG857c et de <1 % pour E. coli DH5α est considérée comme acceptable pour une interprétation précise des phénotypes d’invasion par rapport aux souches mutantes ou autres isolats cliniques, conformément aux observationsprécédentes 11. Si les scores d’invasion en pourcentage pour les contrôles positifs et négatifs dépassent cette plage de récupération attendue, les résultats doivent être interprétés avec prudence et le test doit être répété.
Pour démontrer que l’amikacine peut cibler efficacement les isolats cliniques d’E. coli résistants à la gentamicine, des tests de protection contre la gentamicine et l’amikacin ont été réalisés en parallèle, et les profils d’invasion des isolats ont été examinés. Comme montré dans la Figure 2, le traitement des isolats résistants à la gentamicine par la gentamicine a donné des valeurs de récupération très variables, allant de 21,52 % à 2788,50 %. En revanche, le traitement à l’amikacine a considérablement réduit la récupération sur tous les isolats, mettant en lumière son efficacité et permettant des mesures d’invasion plus précises et fiables.
Enfin, pour évaluer le phénotype intracellulaire de l’AIEC lors de l’invasion, les cellules Caco-2 ont été infectées par E. coli NRG857c. La Figure 3 montre une image représentative d’une cellule Caco-2 infectée avec des bactéries (verte) colorées par immunofluorescence, actine hôte (rouge) et ADN (bleu) visualisées respectivement par contre-coloration avec la rhodamine-phalloïdine et le Hoechst. 4 h après l’infection, NRG857c est observé se répliquant dans le cytoplasme, se localisant près du noyau et à l’intérieur des frontières de l’actine, ce qui confirme la nature intracellulaire de ces bactéries.
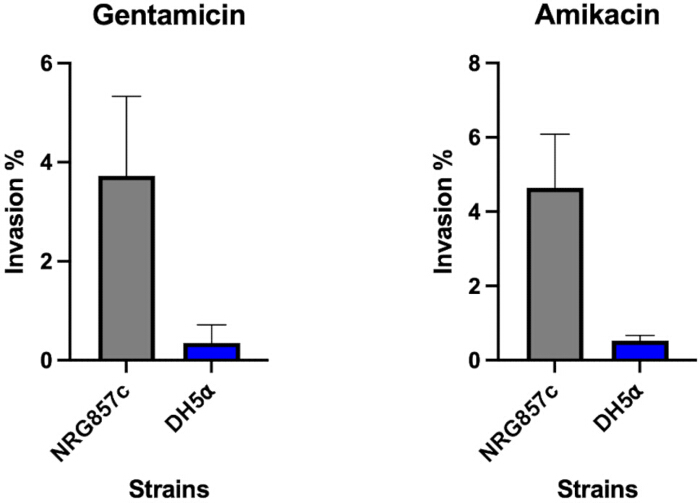
Figure 1 : L’ajout de gentamicine ou amikacine à des cellules Caco-2 infectées par la souche AIEC NRG857c donne des profils d’invasion comparables. Les monocouches de cellules Caco-2 ont été infectées par la souche AIEC NRG857c et E. coli DH5α à un MOI de 10. Après 3 heures d’infection, les cellules ont été traitées pendant 1 heure avec de la gentamicine (100 μg/mL) ou de l’amikacine (240 μg/mL) pour éliminer les bactéries extracellulaires. Les cellules ont ensuite été lysées avec 1 % de Triton-X-100, et les homogénéats ont été dilués en série et plaqués sur de l’agar LB pour l’énumération de l’UFC. L’invasion s’exprimait en pourcentage de bactéries récupérées par rapport à l’inocule initial. Les données représentent trois expériences indépendantes (n = 3) ; Les barres d’erreur indiquent l’écart-type de la moyenne. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
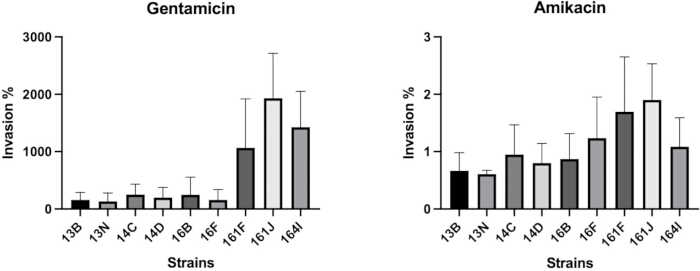
Figure 2 : L’amikacine cible efficacement les souches d’E. coli résistantes à la gentamicine. Les monocouches de cellules Caco-2 ont été infectées par des souches d’E. coli isolées chez des patients atteints de MII avec un MOI de 10. Après 3 heures d’infection, les cellules ont été traitées pendant 1 heure avec de la gentamicine (100 μg/mL) ou de l’amikacine (240 μg/mL) pour éliminer les bactéries extracellulaires. Les cellules ont ensuite été lysées avec 1 % de Triton-X-100, et les homogénéats ont été dilués en série et plaqués sur de l’agar LB pour l’énumération de l’UFC. L’invasion s’exprimait en pourcentage de bactéries récupérées par rapport à l’inocule initial. Les données représentent trois expériences indépendantes (n = 3) ; Les barres d’erreur indiquent l’écart-type de la moyenne. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
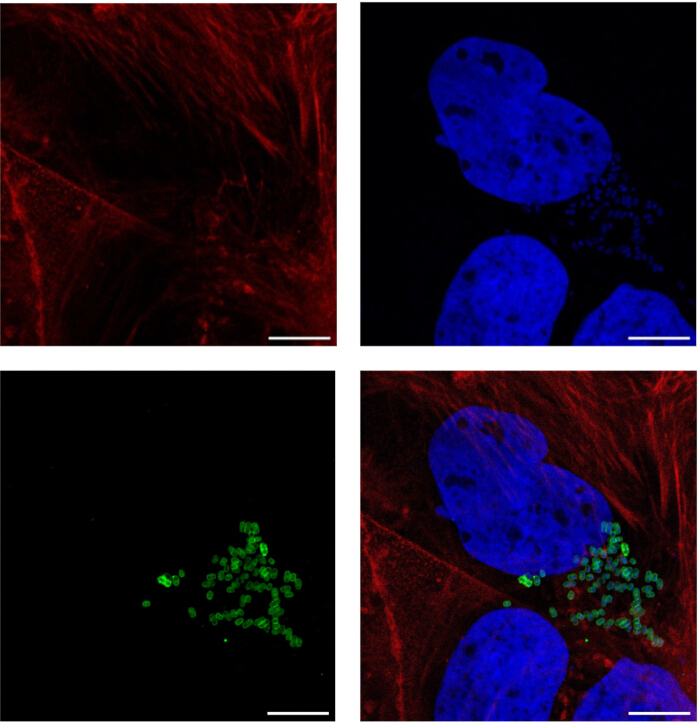
Figure 3 : Visualisation de l’invasion des cellules épithéliales par E. coli. Des micrographies confocales représentatives des cellules Caco-2 ont infecté E. coli NRG857c. Les cellules Caco-2 ont été infectées pendant 3 heures suivies d’une incubation d’une heure avec l’amikacine (240 μg/mL). L’actine hôte a été colorée avec la rhodamine-Phallodin (rouge), et l’ADN de l’hôte et bactérien ont été colorés avec Hoechst (bleu). E. coli (vert) a été détecté à l’aide d’un anticorps primaire anti-lapin E. coli et d’un anticorps secondaire anti-lapin Alexa Fluor 488 contre la chèvre. Les images ont été prises sur un objectif de 63× avec un zoom de 3× à l’aide d’un microscope confocal Leica. Barres d’échelle = 10 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
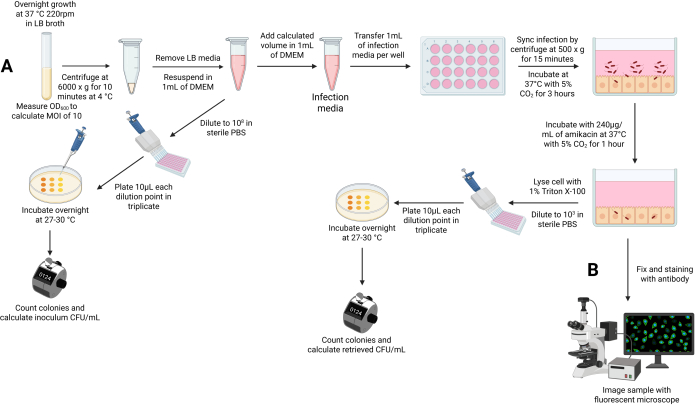
Figure 4 : Organigramme de l’étude. (A)Les souches AIEC ont été cultivées pendant la nuit, lavées et ajoutées aux monocouches Caco-2 avec un MOI de 10. Après 3 heures d’infection et 1 h de traitement à l’amikacine, les bactéries intracellulaires ont été récupérées et quantifiées par plaque de dilutions sérieuses en triple lima. (B) Les monocouches infectées ont été fixées, colorées avec des anticorps et imagées à l’aide de microscopie à fluorescence. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Figure supplémentaire 1 : Le traitement à l’amikacine entraîne une cytotoxicité minimale des cellules épithéliales. Les cellules Caco-2 ont été traitées avec de la gentamicine (100 μg/mL) ou de l’amikacine (240 μg/mL) pendant 1 heure. La cytotoxicité a été déterminée en mesurant la lactate déshydrogénase libérée dans le milieu de culture. Les barres d’erreur indiquent l’écart-type de la moyenne (n = 3). Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Le test de protection contre l’amikacine est une approche modifiée pour évaluer l’invasion d’E. coli dans les cellules épithéliales. Plusieurs étapes sont cruciales pour le succès de ce test, notamment le revêtement au collagène des plaques, le maintien de l’intégrité des monocouches et une lyse cellulaire efficace. Les cellules Caco-2 sont une lignée cellulaire adhérente qui peut s’attacher à un plastique traité en culture tissulaire et former des monocouches20. Cependant, lors de l’infection, l’utilisation de milieux sans sérum et des lavages répétés peuvent influencer le décollement cellulaire, entraînant une sous-représentation de l’invasionbactérienne 21. Pour résoudre ce problème, recouvrir les plaques de composants de matrice extracellulaire, comme le collagène de type IV, peut favoriser l’attachement cellulaire et la formation d’une monocouche stable et confluente lors de l’infection21. C’est important car la déformation AIEC LF82 a été démontrée pour perturber les jonctions serrées lors de l’invasion, et une formation incomplète de monocouches peut contourner cette étape, conduisant à des résultatsdéséquilibrés 22. Enfin, une lyse cellulaire efficace est une autre étape clé qui affecte la récupération bactérienne, car une lyse incomplète pourrait masquer l’invasivité, confondant les résultatsdes essais 23. Pour contourner cela, il est important de resuspendre complètement le lysat cellulaire après l’incubation avec le Triton-X-100.
En plus des défis techniques pouvant contribuer à la variabilité des tests d’invasion, le pourcentage d’inoculum récupéré après infection pour la souche AIEC LF82 a été montré entre 0,61 et 17,25 %8. Cette variabilité pourrait être influencée par l’absence de certains indices environnementaux, tels que les sels biliaires, la mucine et d’autres métabolites intestinaux dans ce test in vitro, connus pour contribuer à la virulence de l’AIEC 24,25,26. Plus précisément, il a été démontré que les sels biliaires induisent l’expression de fimbries polaires longs, qui augmentent l’attachement et la translocation de l’AIEC à travers les cellulesM 27. D’autres agents pathogènes gastro-intestinaux, tels que Vibrio et Shigella, sont connus pour réguler leurs systèmes de sécrétion de type III en réponse à la bile afin de médiatiser l’invasion des cellules épithéliales28,29. La sous-culture avec des sels biliaires pour induire l’expression du facteur de virulence est la norme dans les protocoles de protection contre la gentamicine pour d’autres agents pathogènes, et la culture de l’AIEC avec ces indices environnementaux peut stabiliser l’invasion et produire des profils pluscohérents 30,31.
Une autre limitation de ce test est que l’invasion bactérienne est évaluée à un seul moment donné, ce qui, bien que standard sur le terrain, simplifie probablement à l’excès leprocessus d’invasion 12. L’invasion bactérienne est un processus dynamique impliquant l’adhésion, l’internalisation, la réplication intracellulaire et l’évasion de la cellulehôte 32. Comme les nouveaux gènes contribuant à l’invasion de l’AIEC ont été difficiles à identifier, l’utilisation d’un test unique à un seul point temporel pourrait sous-estimer le nombre de gènes contribuant àce processus 12. Les tests d’invasion temporelle ont donc été utilisés pour évaluer comment certains gènes contribuent à l’invasion et pour étudier la réplication de l’AIEC dans les cellules I-407 etHep-2 8,33. Bien que l’utilisation d’un test d’invasion temporelle soit précieuse pour caractériser la contribution des gènes individuels à l’invasion, elle est laborieuse en particulier, notamment lors du dépistage de nombreux isolats cliniques. Pour cette raison, un seul point temporel est utilisé pour évaluer l’invasion.
De plus, le mode de vie intracellulaire de l’AIEC n’a pas été très bien caractérisé. La plupart des études utilisent l’invasion en pourcentage comme lecture principale pour détecter les modifications de l’UFC de divers mutants de délétion du facteurde virulence 14,34. La visualisation des cellules hôtes infectées peut fournir des perspectives uniques sur la biologie de l’AIEC qui sont manquées lorsqu’on utilise uniquement l’énumération del’UFC 35. Par conséquent, pour évaluer de manière exhaustive le rôle des différents gènes dans l’invasion cellulaire, la microscopie immunofluorescence des cellules infectées doit être réalisée parallèlement à l’énumération des UFC. Cela est important car cela peut permettre d’identifier des gènes qui fonctionnent dans la survie et l’évasion endosomiale, ciblent le cytosquelette de l’hôte ou présentant des différences de charge bactérienne par cellule, ce qui pourrait être négligé uniquement avec la récupération de l’UFC. Il est important de noter que l’utilisation du protocole de coloration par immunofluorescence décrit ici pour détecter les bactéries intracellulaires ne distingue pas les bactéries véritablement intériorisées de celles adhérées à la surface cellulaire. Une approche de coloration différentielle, dans laquelle les bactéries extracellulaires sont marquées avec un anticorps secondaire distinct avant la perméabilisation et les bactéries intracellulaires sont colorées après la perméabilisation, répondrait à cette limitation et pourrait être mise en œuvre dans de futures études pour distinguer ces populations de manière plusdéfinitive 36.
L’importance de cette méthode réside principalement dans la capacité à dépister des isolats d’E. coli multirésistants à des patients atteints de MII qui subissent divers traitementsantibiotiques 11. La gentamicine est utilisée pour traiter les patients atteints de MII à début précoce et peut être administrée pour traiter d’autres infectionsbactériennes 37. L’émergence d’isolats résistants à la gentamicine empêcherait l’utilisation du test standard, faisant de l’amikacine une alternative plusfiable 11. L’utilisation des protocoles décrits dans cet article permettra une caractérisation plus approfondie de la biologie de l’infection par l’AIEC et aidera à identifier de nouveaux gènes pouvant contribuer à l’invasion. Ces méthodes sont importantes dans le contexte de la recherche sur la pathogenèse bactérienne et l’interaction hôte-pathogène, car elles permettent la découverte de nouveaux facteurs de virulence, la caractérisation du cycle de vie intracellulaire bactérien et l’interrogatoire des voies hôtes ciblées lors de l’infection. De plus, ils sont largement applicables à l’étude d’autres agents pathogènes invasifs à l’aide de modèles cellulaires épithéliaux in vitro .
Déclarations de divulgation
Les auteurs déclarent ne pas exister de conflit d’intérêts.
Remerciements
Ce travail a été soutenu par l’Initiative des agents pathogènes émergents de l’Institut médical Howard Hughes (K.O., J.N.), la subvention 1-561 de la Fondation Welch (K.O.), la Fondation Once Upon a Time (K.O.), la subvention NIH R35 GM134945 (K.O.), la subvention NIH NIDDK K08-DK-123316 (J.N.), les Burroughs Wellcome Fund Career Awards for Medical Scientists - 1020904 (J.N.) et NIH T32 AI007520 (S.F.).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 75 cm2 Fiole pour culture tissulaire | Fisher Scientific | FB012937 | |
| Amikacin disulfate | Research Products International | A20540-25.0 | |
| Antibiotique-Antimycotique (100x) | Gibco | 15240062 | |
| Anticorps anti-E.coli | Abcam | ab137967 | |
| Plaque BioLite à micropuits - 6 puits | Fisher Scientific | 12-556-004 | |
| Albumine sérique bovine | Sigma-Aldrich | A7906 | |
| Collagène I, queue de rat, 100 mg | Corning | 354236 | |
| Lame de comptage cellulaire Countess | Invitrogen | C10312 | |
| DMEM, glucose élevé | Gibco | 11965118 | |
| Sérum bovin foetal | Corning | 35-011-CV | |
| Acide acétique glacial | Sigma-Aldrich | A6283 | |
| Glycine ultrapure | USBiological | G8165 | |
| Anticorps secondaire anti-Lapin IgG (H + L) croisé adsorbé, Alexa Fluor 488 | Invitrogen | A-11008 | |
| Hoechst 33342, trihydrochlorure trihydrate | Invitrogen | H3570 | |
| Liofilchem MTS amikacin [AK] 0,016-256 μg/mL | Fisher Scientific | 22-777-704 | Bandelettes de test MIC pour l'amikacine |
| Solution de paraformaldéhyde, 4% en PBS | Fisher Scientific | J19943.K2 | |
| PBS, 1x | Corning | 21-040-CV | |
| Lamelles de verre allemand stériles recouvertes de poly-L-lysine pour la culture cellulaire | Neuvitro | NC1327375 | |
| Montant anti-fading ProLong Gold | Invitrogen | P36934 | |
| Rhodamine-Phalloïdine | Invitrogen | R415 | Rouge-orange 540/565 nm |
| Plaque de culture cellulaire stérile traitée en surface | Fisher Scientific | FB012929 | Plaque à 24 puits |
| Triton X-100 (électrophorèse) | Fisher Scientific | BP151-100 | |
| Bleu de Trypan | Invitrogen | T10282 | |
| Trypsine-EDTA (0,25%), phénol rouge | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
Références
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
Réimpressions et autorisations
