Dans cette étude, grâce à la comparaison des résultats de détection de 24 suspensions bactériennes cultivées de Helicobacter pylori (H. pylori) obtenues par des méthodes de détection d'antigènes et de PCR numérique, nous avons analysé leurs corrélations afin d'évaluer leur importance dans la caractérisation de matériaux de référence de H. pylori et dans l'évaluation diagnostique in vitro.
Article de recherche
Corrélation entre le taux d'antigène de H. pylori et la quantification par réaction en chaîne par polymérase numérique : évaluation analytique d'isolats cultivés et inactivés
Dans cet article
Résumé
Résumé
La standardisation du diagnostic de Helicobacter pylori (H. pylori) reste difficile en raison de la diversité des tests de détection. L'immunochromatographie permet de détecter des antigènes spécifiques à H. pylori, mais fournit uniquement des résultats qualitatifs, sensibles aux interférences dues à des protéines bactériennes solubles non ciblées par liaison non spécifique ou inhibition compétitive. En revanche, la PCR numérique (dPCR) permet une quantification précise des copies d'ADN génomique, identifiant à la fois les bactéries viables et non viables. Cette étude a comparé les titres finaux obtenus par immunochromatographie (valeurs semi-quantitatives calculées comme l'inverse de la plus forte dilution sérielle deux fois plus faible détectable) aux nombres de copies d'acides nucléiques quantifiés par dPCR. Vingt-quatre suspensions bactériennes de H. pylori, cultivées pendant 72 h à 37 °C sur gélose Brucella enrichie avec 5 % de sang de mouton défibriné dans des conditions microaérophiles (85 % N2, 10 % CO2, 5 % O2), ont subi des tests parallèles d'antigène et de mesure par dPCR. Une corrélation de Pearson et une régression linéaire ont été utilisées pour l'évaluation statistique. Nous avons observé une corrélation positive significative entre le titre en antigène et le nombre de copies génomiques (r = 0,536, n = 24, P = 0,007). Toutefois, le faible coefficient de détermination (R2 = 0,287) a montré une puissance prédictive limitée, le titre en antigène expliquant seulement 29 % de la variance mesurée par dPCR et ne pouvant pas permettre une prédiction fiable pour un échantillon unique. Les profils discordants avec une forte valeur dPCR et un faible titre peuvent provenir de débris bactériens non viables ou d'ADN génomique libre. Les tests basés sur les antigènes et ceux basés sur les acides nucléiques quantifient des analytes biologiquement liés mais non interchangeables. Une caractérisation multiparamétrique combinant les unités formant des colonies, les titres en antigènes et les nombres de copies génomiques est recommandée pour le développement de matériaux de référence et la validation des tests diagnostiques. Ce travail souligne la nécessité d'établir des lignes directrices consensuelles spécifiques à H. pylori afin de résoudre les discordances diagnostiques.
Introduction
Helicobacter pylori (H. pylori) est un bacille Gram-négatif microaérophile qui colonise fréquemment le tractus gastro-intestinal humain, en particulier l'antre de l'estomac. Il constitue la cause principale de la gastrite chronique, des ulcères peptiques et du cancer gastrique1,2. La transmission de H. pylori entre les humains s'effectue principalement par voie oro-orale ou féco-orale, et elle est répandue à l'échelle mondiale, avec des taux d'infection variables selon les régions. Dans les pays développés, le taux d'infection est d'environ 50 %, tandis que dans certains pays en développement, il peut atteindre jusqu'à 80 %3. En 1994, l'Organisation mondiale de la Santé (OMS) a classé H. pylori comme un carcinogène de groupe 1 pour le cancer gastrique4. Des facteurs de virulence clés tels que CagA (antigène associé à la cytotoxine A) et VacA (cytotoxine vacuolisante A) provoquent une inflammation chronique et des lésions épithéliales, contribuant ainsi aux mécanismes pathogènes à l'origine de cette classification. En 2018, le nombre de cas de cancer attribuables à l'infection par H. pylori a atteint 810 000, dépassant le nombre combiné des cas de cancer du col de l'utérus et de cancer du foie causés par le virus du papillome humain (VPH), le virus de l'hépatite B (VHB) et le virus de l'hépatite C (VHC)5. Ce chiffre souligne le risque important de cancer associé à H. pylori, qui, s'il n'est pas traité, pourrait conduire à un cancer gastrique avec une probabilité d'environ 1 % à 3 % selon certaines études. La forte prévalence mondiale de l'infection par H. pylori fait de la quantification précise — et non pas seulement la détection — une priorité de santé publique, car une évaluation exacte de la charge bactérienne peut orienter les décisions thérapeutiques et aider à éviter des traitements d'éradication inutiles ou infructueux. Par conséquent, une détection et une quantification précises de H. pylori revêtent une grande importance pour les enquêtes épidémiologiques, le choix des protocoles thérapeutiques et l'évaluation de l'efficacité du traitement.
Étant donné l'importante charge liée au cancer attribuable à H. pylori, une détection et une quantification précises sont essentielles pour la surveillance épidémiologique, le choix du traitement et le suivi thérapeutique. Les méthodes non invasives actuelles comprennent le test antigénique des selles (SAT), le test respiratoire à l'urée et les tests moléculaires. Bien que la PCR numérique (dPCR) offre une grande précision et une quantification absolue, son application clinique est limitée par un coût plus élevé, une complexité technique accrue et des exigences en matière d'instrumentation par rapport au SAT. Cette disparité explique pourquoi la corrélation entre ces deux méthodes doit être étudiée, dans le but d'améliorer la standardisation du SAT en utilisant la dPCR comme référence quantitative.
La PCR numérique (dPCR), une technologie émergente de quantification absolue, permet de détecter directement le nombre absolu de copies de gènes cibles sans avoir recours à une courbe standard. Dans la recherche sur H. pylori, la dPCR a été utilisée pour la quantification bactérienne dans les échantillons de muqueuse gastrique, de salive et de selles6,7.
Dans le développement, l'évaluation de la qualité et la réglementation des réactifs de diagnostic in vitro, la préparation et l'étalonnage des matériaux de référence sont fondamentaux pour garantir l'exactitude, la comparabilité et la traçabilité des résultats. Pour les réactifs bactériens de diagnostic in vitro (tels que les réactifs de détection d'antigènes ou d'anticorps de H. pylori), les matériaux de référence doivent souvent contenir des souches ou des échantillons cliniques dont la concentration ou les unités d'activité sont bien définies. La méthode traditionnelle de quantification bactérienne est l'unité formant des colonies (UFC/mL), qui reflète directement le nombre de bactéries viables dotées d'une capacité de prolifération et qui est fréquemment utilisée pour la détermination de la valeur des substances bactériennes normalisées, l'évaluation de la sensibilité des réactifs et la comparaison méthodologique8. Bien que l'UFC soit encore largement utilisée, elle présente des limites évidentes en termes de temps de détection, de consommation de matériel et de coûts de main-d'œuvre9.
Avec l'utilisation plus large des technologies de diagnostic in vitro, les méthodes moléculaires telles que la dPCR quantifient désormais les agents pathogènes avec une précision et une sensibilité accrues. Parallèlement, les méthodes immunologiques telles que la titration d'antigènes sont de plus en plus appliquées en pratique clinique. Toutefois, dans les opérations pratiques, la plupart des isolats cliniques collectés ou des échantillons standards préparés sont des échantillons inactivés ou conservés à long terme, ce qui rend difficile, voire impossible, la culture bactérienne vivante et le dénombrement des UCF10. Lors de la préparation des matériaux de référence, afin de satisfaire aux exigences de biosécurité et d'assurer la stabilité à long terme des matériaux, une inactivation doit être effectuée. Les méthodes de quantification basées sur les antigènes ou les acides nucléiques deviennent ainsi des moyens essentiels pour la détermination des valeurs8,11.
Cela soulève une question pratique concernant la corrélation et l'équivalence de ces deux approches quantitatives distinctes : lors de l'utilisation de la détection d'antigènes et de la dPCR pour évaluer des substances étalons, existe-t-il une relation stable et quantifiable entre les résultats de ces deux méthodes ? Des expériences préliminaires utilisant un ensemble limité d'échantillons inactivés de H. pylori ont démontré une corrélation positive constante entre l'intensité du signal des tests immunochromatographiques et les nombres de copies d'ADN quantifiés par dPCR. Nous avons émis l'hypothèse qu'il existe une corrélation positive significative et constante entre le titre en antigène de H. pylori, mesuré par des tests immunochromatographiques, et le nombre de copies d'ADN, quantifié par dPCR, dans des échantillons bactériens inactivés. Si une telle corrélation existe, elle permettrait de convertir des résultats qualitatifs basés sur les antigènes en équivalents quantitatifs d'acides nucléiques. Cela fournirait une base importante pour l'évaluation des performances des réactifs, l'établissement de normes, l'attribution de matériaux de référence et l'interprétation des résultats des tests cliniques lorsque la culture traditionnelle n'est pas réalisable.
Actuellement, les recherches sur la relation entre les résultats des antigènes de H. pylori et la teneur en acide nucléique sont insuffisantes, et il existe un manque de données systématiques pour appuyer les travaux de revue, de réglementation et de normalisation. Afin de tester cette hypothèse, cette étude a réalisé des tests parallèles sur 24 suspensions bactériennes cultivées de H. pylori afin d'analyser systématiquement la corrélation entre le titre antigénique détecté par la méthode immunochromatographique colloïdale et le résultat quantitatif absolu de la dPCR. Sur la base de nos résultats, nous formulons des recommandations relatives à l'évaluation des performances des réactifs de détection de H. pylori et à l'attribution des valeurs des matériaux de référence.
Protocole
Tous les isolats de Helicobacter pylori inclus dans cette étude ont été initialement isolés à partir de prélèvements gastriques humains et d'échantillons fécaux par le Cinquième Hôpital Affilié de l'Université de Zhengzhou, qui a fourni des suspensions bactériennes entièrement traitées et anonymisées pour nos expériences in vitro. Toutes les procédures initiales (collecte des échantillons cliniques, isolement bactérien et cryoconservation initiale) ont été approuvées par le Comité d'Éthique du Cinquième Hôpital Affilié de l'Université de Zhengzhou (Numéro d'approbation éthique : KY2026080). Un consentement éclairé a été obtenu auprès de tous les participants avant la collecte des échantillons, et toutes les procédures se sont strictement conformées à la Déclaration d'Helsinki et aux lignes directrices nationales en matière d'éthique de la recherche biomédicale. Toutes les informations permettant d'identifier les patients ont été définitivement supprimées par l'hôpital d'origine avant le transfert des échantillons, et aucune identité de patient ne peut être déduite des matériaux expérimentaux ou des résultats rapportés dans cette étude.
La présente étude ne nécessite pas d'approbation éthique indépendante supplémentaire ni de consentement éclairé. Toutes les expériences se limitent à des essais in vitro utilisant des suspensions bactériennes anonymisées, sans accès à des échantillons humains d'origine, à des dossiers cliniques de patients ou à des informations personnelles privées. Conformément aux réglementations nationales en matière d'éthique de la recherche biomédicale, les recherches in vitro non interventionnelles utilisant des isolats microbiens entièrement anonymisés répondent aux critères d'exemption éthique. L'approbation éthique initiale délivrée par le Cinquième Hôpital Affilié de l'Université de Zhengzhou couvre déjà toutes les utilisations académiques secondaires légitimes de ces souches anonymisées, ce qui a été officiellement confirmé par le comité d'éthique institutionnel.
Tout H. pylori in vitro les expériences ont été réalisées dans des laboratoires disposant d'une certification de biosécurité valide (niveau de biosécurité 2, BSL-2, enregistrement de biosécurité des laboratoires de la Commission sanitaire du district de Dongcheng à Pékin [2020] n° 059), conformément aux procédures opérationnelles standard de l'institution et en respectant toutes les exigences de contrôle et d'autorisation en matière de biosécurité. L'approbation de biosécurité pour cette étude couvre toutes les procédures impliquant l'inactivation thermique H. pylori matériel, y compris des échantillons n’étant pas entièrement inactivés (c’est-à-dire contenant des organismes viables résiduels caractérisés par une PCR de viabilité). Une stricte adhérence aux pratiques microbiologiques standard, aux exigences en matière d’équipements de protection individuelle (EPI) et aux procédures de décontamination des déchets a été maintenue tout au long de l’étude. Tous les échantillons bactériens ont été correctement inactivés avant leur élimination, conformément aux directives institutionnelles relatives à la gestion des déchets biologiquement dangereux. La liste détaillée de tous les réactifs, équipements et logiciels utilisés pour l’analyse statistique est fournie dans les Table des matériels.
Souche et culture
ATTENTION : H. pylori est un agent pathogène humain du groupe de risque 2. Toutes les manipulations de cultures viables (inoculation, incubation et préparation de suspensions) doivent être effectuées dans une hotte de sécurité biologique certifiée, au sein d'installations de niveau de sécurité biologique 2, en portant une blouse de laboratoire, des gants et une protection oculaire.
L'inactivation par chaleur à 56 °C pendant 25 min réduit considérablement, mais n'élimine pas complètement, les organismes viables (voir la section 1) ; les suspensions partiellement inactivées doivent continuer à être manipulées dans des conditions de niveau de sécurité biologique 2 (BSL-2). Tous les déchets biologiques et consommables contaminés doivent être stérilisés en autoclave (121 °C, ≥30 min) ou désinfectés conformément aux procédures institutionnelles de biosécurité avant leur élimination. Les travaux réalisés en BSL-2 décrits ici ont été autorisés dans le cadre du même dossier de biosécurité (Dossier de biosécurité du laboratoire de la Commission sanitaire du district de Dongcheng à Pékin [2020] n° 059).
Le Helicobacter pylori Les souches utilisées dans cette étude étaient 24 suspensions bactériennes cultivées, initialement obtenues à partir d'échantillons biopsiques gastriques et fécaux humains par le Cinquième Hôpital Affilié de l'Université de Zhengzhou, puis transférées sous forme de suspension bactérienne à la collection de souches du In vitro Département diagnostique des maladies infectieuses aux Instituts nationaux de contrôle des médicaments (NIDC), Pékin, Chine, et tous les travaux expérimentaux de cette étude ont été réalisés au NIDC (Pékin, Chine). Ces souches ont été ensemencées sur des boîtes de milieu Brucella enrichi avec 5 % de sang de mouton défibriné et cultivées dans des conditions microaérophiles (85 % N₂, 10 % CO₂, 5 % O₂₂) à 37 °C pendant 72 h. Cette durée de culture correspond à la phase de croissance stationnaire, au cours de laquelle l'expression des antigènes de chaque souche est relativement stable. Les suspensions bactériennes ont ensuite été recueillies.
L'inactivation thermique a été réalisée à l'aide d'un bain-marie numérique à 56 °C pendant 25 min. Ce traitement a été effectué afin de respecter les exigences de biosécurité et d'assurer la stabilité à long terme des matériaux de référence. L'inactivation thermique à 56 °C pendant 25 min réduit considérablement la viabilité bactérienne, mais n'élimine pas complètement tous les organismes viables, comme confirmé par une analyse ultérieure de PCR de viabilité, qui a mesuré une fraction médiane résiduelle viable de 4,6 % (intervalle de 0,00 % à 33,00 %) parmi les 24 suspensions bactériennes cultivées (voir la section Résultats 6 et la Discussion). L'approbation de biosécurité pour cette étude couvre les travaux avec des matériaux qui ne sont pas entièrement inactivés (voir la Déclaration éthique et de biosécurité). L'impact potentiel de l'inactivation thermique sur la détection des antigènes est considéré comme minimal, puisque le traitement thermique se situe en dessous du seuil de dénaturation de la plupart des antigènes de surface de H. pylori ; toutefois, il pourrait affecter l'intégrité de certains antigènes protéiques thermolabiles. Pour la quantification de l'ADN, l'inactivation thermique ne dégrade pas l'ADN génomique et pourrait même améliorer l'efficacité de l'extraction en perturbant les membranes cellulaires.
Détection de l'antigène
Les 24 suspensions bactériennes recueillies ont été diluées 100 fois avec du PBS afin de préparer les échantillons pour la détection de l'antigène. Une dilution initiale au 1/100 ajuste la concentration en antigène dans la plage de détection linéaire des kits commerciaux et réduit au minimum les interférences de la matrice, garantissant ainsi des résultats de détection fiables et précis. Cette dilution permet également de préserver le volume d'échantillon. Ces échantillons ont été testés à l'aide de huit kits approuvés de détection de l'antigène H. pylori (Tableau 1), incluant la méthode au colloïde d'or, la méthode au latex et la méthode immunochromatographique. Si le résultat était positif, l'échantillon dilué était soumis à des dilutions successives (1:2, 1:4, 1:8, etc.) et testé jusqu'à l'obtention d'un résultat négatif. Le rapport de dilution le plus élevé restant positif était noté et défini comme le « rapport de dilution final positif de l'antigène » (par exemple, 1:64). Les dilutions sérielles au double étaient préparées dans une solution saline tamponnée au phosphate (PBS, 0,01 M, pH 7,2–7,4). Après l'application de l'échantillon, chaque bandelette était incubée à température ambiante pendant 15 à 20 minutes avant lecture ; le résultat était lu visuellement par un opérateur qualifié en comparaison avec la ligne de contrôle, et le point final était enregistré comme étant la dilution la plus élevée présentant une ligne de test visible. Étant donné que les bandelettes au colloïde d'or sont lues visuellement, le seuil de détection dépend de l'opérateur.
Pour chaque échantillon testé à l'aide de plusieurs kits commerciaux de détection d'antigènes, le titre final est défini comme la médiane de tous les titres individuels obtenus avec chaque kit. Étant donné que les huit kits utilisés dans cette étude ont été conçus avec des antigènes cibles et des principes de détection hétérogènes, le kappa de Cohen ou le CV % n'ont pas été utilisés pour quantifier la concordance entre les kits, car ces indicateurs supposent l'existence d'une norme de référence commune. Ainsi, la variabilité observée entre les kits reflète l'hétérogénéité biologique et analytique réelle plutôt que des erreurs de mesure. La médiane, en tant que mesure robuste de tendance centrale, permet de résister efficacement aux écarts spécifiques à chaque kit. Parmi les 24 échantillons, l'écart interne à l'échantillon entre les titres les plus élevés et les plus faibles variait de 2 à 16 fois (médiane, 4 fois) : six échantillons différaient de 2 fois, quatorze de 4 fois, trois de 8 fois et un de 16 fois selon les kits. Les titres minimum, médian et maximum par kit pour chaque échantillon sont indiqués dans le Tableau supplémentaire 1.
Détection quantitative par PCR numérique
Les 24 suspensions bactériennes recueillies ont été diluées 500 fois dans du PBS, puis utilisées comme échantillons pour la détection quantitative par dPCR. La quantification absolue de ces échantillons dilués a été réalisée par quatre laboratoires utilisant la dPCR (Tableau 2). La dPCR a été effectuée à l’aide de jeux d’amorces et de sondes spécifiques à chaque plateforme, ciblant des séquences génomiques conservées de H. pylori. Les kits de détection dPCR utilisés dans cette étude sont des kits de réactifs universels applicables à plusieurs pathogènes et cibles multiples. Chaque plateforme a conçu et optimisé indépendamment les séquences spécifiques d’amorces/sondes et les régions géniques ciblées, qui constituent son propriété intellectuelle principale. Ces séquences n’ont pas été divulguées aux utilisateurs finaux. On nous a simplement indiqué que la cible spécifique de détection pour H. pylori est une région génomique conservée dont il a été vérifié qu’elle permet une détection spécifique. Les séquences du gène ARNr 23S de 24 souches de Helicobacter pylori ont été déposées dans NCBI GenBank sous le numéro d’accès au BioProject PRJNA1520048. Ces séquences ont été soumises afin de confirmer l’identité des souches et ne constituent pas la cible de quantification par dPCR. Étant donné que la conception des amorces/sondes, la chimie d’amplification et le comptage des partitions basé sur la loi de Poisson sont des éléments propres à chaque plateforme, ces étapes dépendent de la plateforme et ne peuvent être reproduites sans accès au fabricant ; en revanche, les procédures de dilution des échantillons, de réplication de l’extraction et d’agrégation des données décrites ci-dessus sont indépendantes de la plateforme et entièrement spécifiées. Les nombres absolus de copies ont été calculés à l’aide de l’algorithme de distribution de Poisson intégré dans le logiciel d’analyse propriétaire de l’appareil. Les paramètres de calcul spécifiques et le code source sont la propriété du fabricant et n’ont pas été communiqués aux utilisateurs finaux. Enfin, le nombre absolu de copies (copies/mL) du gène cible dans la solution initiale a été calculé à partir de la distribution de Poisson et du facteur de dilution.
Quatre laboratoires indépendants de dPCR (Sniper, Jiangsu Bioperfectus Technologies Co., Ltd., Ustar Biotechnologies Ltd. et TargetingOne) ont participé à cette étude, chacun utilisant des kits d'extraction et des réactifs de dPCR propriétaires optimisés pour sa plateforme instrumentale, tous ciblant des séquences génomiques conservées de H. pylori. Chaque plateforme a reçu la suspension bactérienne non diluée et a préparé les échantillons selon son propre protocole : Ustar a utilisé la suspension non diluée directement, tandis que Sniper, Jiangsu Bioperfectus Technologies Co., Ltd. et TargetingOne l'ont diluée 500 fois dans du PBS avant l'extraction. Pour chaque isolat sur chaque plateforme, deux extractions indépendantes d'acides nucléiques ont été réalisées à partir de la même suspension bactérienne diluée 500 fois, et chaque extrait a été testé en triple, produisant six mesures par isolat et par plateforme (à l'exception d'un cas sur Ustar où une extraction n'a donné que deux répliques valides). Une réaction était classée comme invalide et exclue si le nombre de gouttelettes positives était inférieur à la limite de détection basse de l'instrument ou si le témoin sans matrice présentait une amplification non spécifique ; les réactions invalides étaient répétées une fois, les échecs persistants entraînant l'exclusion de l'extraction entière. Les données brutes spécifiques à chaque plateforme sont fournies dans le Tableau supplémentaire 1.
L'agrégation des données a suivi une procédure en deux niveaux : premièrement, toutes les mesures brutes valides (copies/µL) pour chaque plateforme ont été moyennées puis converties en concentration de la suspension bactérienne initiale non diluée (copies/mL), à l'aide de formules de conversion spécifiques à chaque plateforme ; deuxièmement, les concentrations obtenues à partir des quatre plateformes pour chaque isolat ont été moyennées (moyenne arithmétique) afin d'obtenir une valeur finale unique de nombre de copies. Ce cadre garantit une contribution égale de chaque plateforme, indépendamment de la variation entre réplicats au sein d'une même plateforme, tout en atténuant les biais systématiques propres aux instruments ou systèmes de réactifs individuels.
Chaque suspension bactérienne cultivée a été quantifiée en parallèle sur quatre plates-formes de PCR numérique, et le coefficient de variation (CV) des nombres de copies transformés en log₁₀ entre les plates-formes a été calculé pour chaque isolat afin d'évaluer la variabilité interlaboratoire. Les résultats correspondants sont présentés dans la section Résultats.
Analyse statistique
Le H. pylori Le titre antigénique a été défini comme l'inverse du facteur de dilution le plus élevé du prélèvement pour lequel un résultat positif a été observé (par exemple, une dilution de 1:64 correspond à un titre de 64). Pour chaque isolat, les huit titres antigéniques spécifiques aux kits ont été agrégés par leur médiane, et les quatre concentrations de dPCR spécifiques aux plateformes ont été agrégées par leur moyenne arithmétique, afin d'obtenir une valeur unique représentative par isolat pour l'analyse de corrélation ultérieure. Cette stratégie de réduction des données est justifiée méthodologiquement parce que : (i) les huit kits antigéniques détectent le même analyte en utilisant des principes d'immunodosage comparables, et la médiane fournit un estimateur robuste résistant aux lectures sporadiques aberrantes ; (ii) chacune des quatre plateformes de dPCR quantifie un analyte conservé H. pylori locus génomique, et la moyenne arithmétique des estimations de concentration distribuées log-normalement fournit une tendance centrale non biaisée ; et (iii) cet agrégat est conforme à l'objectif principal de l'étude — évaluer la concordance entre les modalités de quantification basées sur le titre d'antigène et celles basées sur l'ADN au niveau de l'isolat — plutôt que d'évaluer la performance analytique inter-kits ou inter-plateformes. La corrélation entre le titre d'antigène et la quantification par dPCR (copies/mL) a d'abord été évaluée à l'aide d'une analyse de corrélation de Pearson. Les deux variables sont approximativement normalement distribuées après transformation logarithmique (asymétrie : log10 dPCR = −0,66 ; log2 titre de l'antigène = −0,60 ; asymétrie des résidus de la régression = −0,16), satisfaisant aux hypothèses de la corrélation de Pearson. Le titre de l'antigène a été transformé en log2 afin de refléter la linéarisation d'une dilution sérielle par deux, tandis que les résultats de la dPCR ont été transformés en log10, ce qui correspond également au format de rapport de l'étalon de charge bactérienne. Ensuite, afin d'évaluer l'association linéaire, des analyses de corrélation de Pearson et de régression linéaire ont été réalisées en utilisant le titre de l'antigène transformé en log2 et les résultats de la dPCR transformés en log10. Pour toutes les analyses, un seuil de significativité (α) de 0,05 a été appliqué, avec P < Une valeur de p < 0,05 a été considérée comme statistiquement significative. Toutes les analyses statistiques ont été réalisées à l'aide de la plateforme en ligne d'analyse statistique SPSSPRO.
Résultats
Comparison of H. pylori antigen titer and dPCR absolute quantification results
Among the total of 24 cultured bacterial suspensions, the antigen titer ranged from 8 to 256, with a median of 32 (Table 1). The dPCR quantification results ranged from 2.67 × 10⁷ copies/mL to 2.04 × 10⁹ copies/mL, with a median of log₁₀ = 8.61 (≈4.09 × 10⁸ copies/mL) (Table 2). The relationship exhibited non-linear characteristics in the raw data, suggesting a power-law or exponential association, which justified the subsequent logarithmic transformations applied to both antigen titer and dPCR quantification values.
Linear association between log-transformed antigen titer and dPCR quantitative results
To test whether there is a significant correlation between the results of the two detection methods, we applied logarithmic transformation and performed Pearson correlation analysis, as both variables are approximately normally distributed after log transformation. As shown in Figure 1, after transformation, the antigen titer (log2-transformed) and the absolute quantitative result of dPCR (log10-transformed) exhibited a significant moderate positive linear correlation (r = 0.536, n = 24, P = 0.007).
Quantitative modeling of the relationship between antigen titer and dPCR copy number
To quantify the relationship between the two detection methods and assess the potential for mutual prediction, we applied linear regression analysis to the log-transformed data, so as to utilize the regression model to predict bacterial load through antigen titer in the future. The analysis reveals a linear relationship between log2 (antigen titer) and log10 (dPCR), yielding the equation: log10(dPCR) = 0.1588 × log2(titer) + 7.7988 (R2 = 0.287). The regression coefficients (with standard errors and 95% confidence intervals) were: slope 0.1588 ± 0.053 (95% CI 0.048–0.270) and intercept 7.7988 ± 0.292 (95% CI 7.193–8.404); the residual standard error was 0.318 log10 units, and the overall regression was significant (F(1,22) = 8.84, P = 0.007). This indicates that for every doubling of the antigen titer, the dPCR copy number only increases by 1.441 times (100.1588). However, for a given antigen titer, the 95% prediction interval of the dPCR results can span nearly two orders of magnitude (for example, at a titer of 1:32, the prediction interval is approximately 8.3 × 10⁷ to 1.85 × 10⁹copies/mL). This indicates that in practical applications, the antigen titer alone cannot accurately predict the copy number of nucleic acid in a single sample, but using this model may provide a coarse estimation of the order of magnitude for group-level comparisons, though it is limited for individual sample prediction due to the moderate explanatory power (R2 = 0.287).
Inter-platform variability of dPCR quantification and sensitivity analysis of the correlation
Interlaboratory variability was assessed on log10-transformed concentrations to account for the log-normal distribution of microbial quantification data. The CV% across the four platform-derived log10 concentrations ranged from 0.9% to 8.3% (median 1.8%, mean 2.5%) across 24 isolates. One outlier (Hp06, CV = 8.3%) showed a >30-fold discrepancy between Sniper (5.93 × 10⁸ copies/mL) and TargetingOne (1.50 × 10⁷ copies/mL); excluding this isolate, CVs ranged from 0.9% to 6.4%. To ensure that this outlier did not drive the observed antigen–dPCR correlation, a sensitivity analysis was performed excluding Hp06, which yielded r = 0.479, R2 = 0.230, and P = 0.021 (n = 23) — comparable to the primary analysis including all 24 isolates — confirming that the headline correlation does not depend on this isolate. This dispersion reflects systematic differences among platforms in extraction efficiency, reagent sensitivity, and instrument calibration rather than random measurement error, which supports cross-platform averaging to reduce platform-specific bias.
Defining and classifying results using dual-method thresholds
Based on the analyses above and on exploratory, dataset-specific criteria, this study set the median titer of antigen detection at 1:32 as the threshold for high antigen detection, due to the non-normal distribution of antigen titer data, and selected the actual median log₁₀(dPCR) = 8.61 (≈4.09 × 10⁸ copies/mL) as the threshold for high nucleic acid content. These thresholds are exploratory, dataset-specific cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. Consequently, any application of these cutoffs to other sample collections or analytical contexts would require re-derivation from the corresponding data rather than direct transfer.
Using the exploratory thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), the four-quadrant classification of the 24 cultured bacterial suspensions (Figure 2, Table 3) is as follows: 9 samples (Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25) fall into the high antigen–high nucleic acid category (37.5%); 3 samples (Hp09, Hp26, Hp27) are classified as low antigen–high nucleic acid (12.5%); 8 samples (Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17) exhibit high antigen–low nucleic acid (33.3%); and 4 samples (Hp06, Hp07, Hp12, Hp20) belong to the low antigen–low nucleic acid category (16.7%). Because the 24 isolates were divided into six titer groups with an average of only 4 samples per group, formal inter-group comparison (e.g., Kruskal-Wallis testing) would lack sufficient statistical power; therefore, only descriptive summaries of dPCR quantitative results across titer groups are reported.
Residual viable fraction after heat inactivation (viability PCR)
To quantify residual viable bacteria following heat inactivation, a viability PCR reagent system was used for all 24 isolates. Briefly, each heat-inactivated suspension (200 µL) was incubated with the membrane-impermeable Viability PCR Reagent (10 µM final concentration) at 37 °C for 75 min, with a parallel reagent-omitted control (−VR) processed identically. The reagent was then chemically inactivated by adding Viability PCR Neutralization Buffer (20 µL, 10×) and incubating at room temperature for 15 min. Genomic DNA was extracted from both the +VR and −VR aliquots, and dPCR was performed on each extract; the viable fraction was calculated as the ratio of +VR to −VR copy numbers × 100%. The median viable fraction was 4.6% (range 0.00%–33.00%; full per-isolate results in Supplementary Table 2). The viable percentage did not correlate significantly with antigen titer (r = 0.03, P = 0.90) or with dPCR copy number (r = 0.37, P = 0.08).
DATA AVAILABILITY:
The 23S rRNA gene sequences of 24 Helicobacter pylori strains have been deposited in NCBI GenBank under BioProject accession PRJNA1520048. These sequences were used solely for strain identity confirmation and do not represent the dPCR quantification target, which is a manufacturer-proprietary conserved genomic region, as described in Protocol.
The raw kit-specific antigen titers from eight commercial colloidal gold immunochromatographic kits and the platform-specific dPCR quantitative values from four digital PCR instruments cannot be deposited in a public repository because of commercial sensitivity, manufacturer confidentiality agreements, and regulatory restrictions associated with CE-marked/National Medical Products Administration-approved in vitro diagnostic products.
Additional restricted data may be made available confidentially when necessary, subject to the applicable confidentiality and regulatory restrictions.
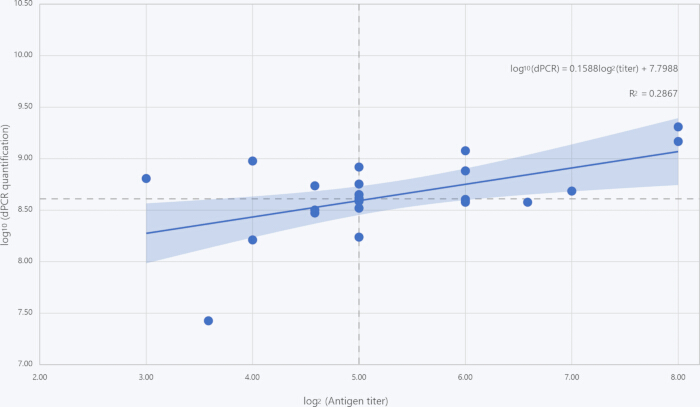
Figure 1: Correlation between Helicobacter pylori antigen titer and digital polymerase chain reaction (dPCR) quantification. A scatter plot with a regression line is presented to illustrate the relationship between antigen titer and DNA copy numbers in 24 cultured bacterial suspensions (n = 24). Antigen titers were ascertained via a colloidal gold immunochromatographic assay with visual reading. Serial dilutions of each sample were examined, and the titer is expressed as the highest dilution factor that yields a positive result (presented on the x-axis as log2-transformed, dimensionless values). DNA copy numbers were quantified through dPCR and are presented on the y-axis as log10-transformed concentrations (log10 copies/mL). Each dot represents an individual bacterial suspension sample. The blue solid line represents the linear regression fit. The shaded band around the regression line represents the 95% confidence interval of the fitted mean response. The dashed vertical and horizontal lines indicate the exploratory classification thresholds (log₂ titer = 5, i.e., 1:32; log₁₀ dPCR = 8.61, i.e., 4.09 × 10⁸ copies/mL) used in Figure 2 and Table 3. Correlation was evaluated using the Pearson correlation coefficient, resulting in r = 0.536, P = 0.007, R2 = 0.287, which indicates a statistically significant positive correlation between the two methods. Please click here to view a larger version of this figure.
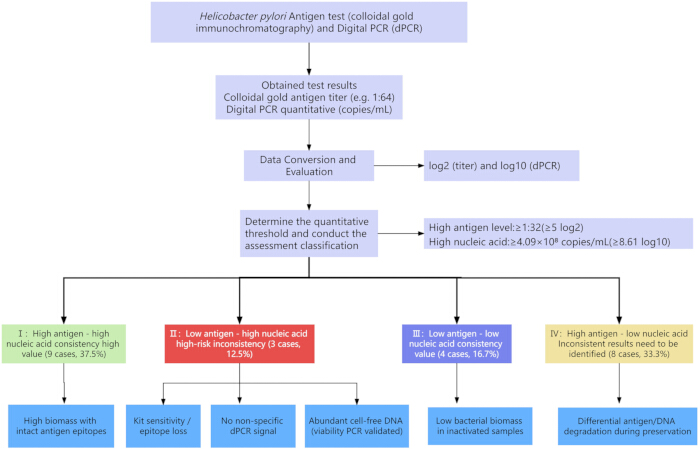
Figure 2: Analytical classification framework for H. pylori testing combining antigen test results with dPCR quantification. This figure depicts the four-quadrant classification of 24 cultured bacterial suspensions (n = 24) based on the concordance between immunochromatographic antigen titer and dPCR quantitative results. Using exploratory, dataset-specific thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), samples are classified into: high antigen–high nucleic acid (n = 9, 37.5%), high antigen–low nucleic acid (n = 8, 33.3%), low antigen–high nucleic acid (n = 3, 12.5%), and low antigen–low nucleic acid (n = 4, 16.7%). These thresholds are exploratory cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. The classification framework illustrates the agreement and discordance between immunological and molecular detection methods. Categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation. This framework is intended for analytical comparison purposes and does not constitute clinical diagnostic or treatment recommendations. Please click here to view a larger version of this figure.
| No. | Detection reagent | Manufacturer |
| 1 | Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd |
| 2 | Gastric Helicobacter pylori (HP) Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron BIOTECH Co., Ltd |
| 3 | Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd |
| 4 | Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetecton & Biocontrol Ltd |
| 5 | Helicobacter pylori antigen detection kit (colloidal gold method) | JIANGSU COWIN BIOTECH CO., LTD |
| 6 | Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | Helicobacter pylori (HP) antigen detection reagent (immunochromatographic method) | GUANGZHOU WONDFO BIOTECH CO., LTD |
| 8 | Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd |
Table 1: List of Helicobacter pylori Antigen Detection Reagents and Their Manufacturers. The table enumerates eight commercially accessible immunochromatographic assays for the detection of H. pylori antigen, which were assessed in this study. For each product, the No. (as supplied by the manufacturer), the commercial designation of the detection reagent, and the manufacturer's name are presented. These kits were chosen on the basis of their extensive utilization in clinical diagnostics and point-of-care testing. All information was retrieved from the manufacturers' product inserts and official websites (accessed in March 2026). The inclusion of these reagents does not signify an endorsement; they are representative of the diversity of available tests.
| No. | Instrument model | Digital PCR Platforms |
| 1 | DQ24 | Sniper |
| 2 | Bio Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 Digital PCR System | TargetingOne |
Table 2: List of Digital PCR (dPCR) Platforms and Instrument Models. This table enumerates four laboratory platforms equipped with dPCR systems, along with the corresponding instrument models employed for testing. These platforms were chosen in consideration of their technological diversity and representativeness of the current implementation of dPCR. All information is provided by each respective platform. The inclusion of these platforms does not signify an endorsement; they simply represent the scope of existing dPCR systems.
| Type | Number of cases | Proportion | Sample number |
| High antigen - High nucleic acid | 9 | 37.5% | Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25 |
| Low antigen - High nucleic acid | 3 | 12.5% | Hp09, Hp26, Hp27 |
| Low antigen - Low nucleic acid | 4 | 16.7% | Hp06, Hp07, Hp12, Hp20 |
| High antigen - Low nucleic acid | 8 | 33.3% | Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17 |
Table 3: Classification and Proportion of Antigen Test and Nucleic Acid Test Results in This Study. This table classifies 24 cultured bacterial suspensions according to the concordance between antigen titer (determined by immunochromatographic assay, expressed as the highest dilution factor resulting in a positive result) and absolute quantitative digital polymerase chain reaction (dPCR) results (expressed as log₁₀ copies/mL). Using an antigen titer cutoff of 1:32 (high ≥ 1:32, low ≤ 1:16) and a dPCR quantification cutoff of 4.09 × 10⁸ copies/mL (log₁₀ = 8.61) as exploratory, dataset-specific thresholds, isolates were classified into four subgroups: High Antigen-High Nucleic Acid, Low Antigen–High Nucleic Acid, High Antigen–Low Nucleic Acid, and Low Antigen-Low Nucleic Acid. Among the 24 samples, 9 were categorized as High Antigen–High Nucleic Acid (37.5%; Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25), 3 as Low Antigen–High Nucleic Acid (12.5%; Hp09, Hp26, Hp27), 8 as High Antigen–Low Nucleic Acid (33.3%; Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17), and 4 as Low Antigen–Low Nucleic Acid (16.7%; Hp06, Hp07, Hp12, Hp20). For each category, the table shows the number of cases (n), the proportion relative to the total sample size (%), and the sample numbers within each category. This classification illustrates the agreement and discordance between immunological and molecular detection methods; categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation, offering insights for the interpretation of analytical test results.
Supplementary Table 1: Aggregated dataset of antigen detection and dPCR quantification for the 24 Helicobacter pylori isolates. Sheet 1 (Antigen Detection): per-kit endpoint titers from the eight commercial colloidal gold immunochromatographic kits for each isolate, with the per-sample minimum, median, and maximum titer and within-sample fold range. Sheet 2 (Digital PCR Quantitative Detection): platform-specific dPCR concentrations (copies/mL) for each isolate, with inter-platform summary statistics (median, minimum, maximum, and CV% of log₁₀-transformed concentrations). Sheet 3 (Correlation and Regression Analysis): strain-level log₂-transformed antigen titers and log₁₀-transformed dPCR concentrations, Pearson correlation and linear regression results (r, R2, regression equation), sensitivity analysis excluding the outlier Hp06, and detailed regression statistics (standard errors, 95% confidence intervals, residual standard error, F-statistic, and P-value). Kit-specific and platform-specific identifiers are anonymized for commercial confidentiality; the dataset contains all values required to reproduce Figures 1–2 and Table 3.Please click here to download this file.
Supplementary Table 2: Viability PCR results for the 24 Helicobacter pylori isolates. Per-isolate dPCR copy numbers of the viability reagent–treated (+VR) and reagent-omitted (−VR) aliquots after heat inactivation at 56 °C for 25 min, with the calculated viable fraction (%) and equivalent ΔCq for each isolate. The median viable fraction across all isolates was 4.6% (range 0.00%–33.00%).Please click here to download this file.
Discussion
Dans cette étude portant sur 24 isolats de H. pylori cultivés, le titre d'antigène immunochromatographique et le nombre de copies génomiques en dPCR ont montré une corrélation positive modérée mais significative (r = 0,536, P = 0,007) ; toutefois, le titre d'antigène expliquait seulement 29 % de la variance du nombre de copies en dPCR (R2 = 0,287), ce qui indique que les deux mesures sont liées mais pas interchangeables. La principale limite de cette étude est sa petite taille d'échantillon (n = 24), qui restreint la puissance statistique et explique le caractère exploratoire des seuils de classification utilisés ci-dessous.
Cette étude a analysé de manière quantitative le titre antigénique dans des cultures de H. pylori et les nombres de copies d'acides nucléiques détectés par la dPCR, révélant une corrélation modérée mais significative entre les résultats obtenus par ces deux méthodes (r = 0,536, P = 0,007). Bien qu'une corrélation significative entre les deux méthodes soit observée au niveau de la population, des divergences au niveau individuel sont fréquemment rencontrées en pratique clinique. Cela s'explique par le fait que les cibles de détection différentes reflètent des caractéristiques biologiques distinctes des agents pathogènes. Plus précisément, les tests antigéniques détectent des protéines qui peuvent persister après l'élimination bactérienne, tandis que les tests d'acides nucléiques détectent de l'ADN qui pourrait subsister à de faibles niveaux même après la disparition des bactéries viables. Ce type de discordance est bien documenté dans diverses maladies infectieuses. Par exemple, dans le diagnostic clinique de l'infection à Clostridioides difficile, certains porteurs présentent un résultat positif à la détection du gène de la toxine mais un résultat négatif à la détection de l'antigène protéique de la toxine, ce qui entraîne un diagnostic erroné d'infection et provoque un surtraitement ainsi que l'émergence de résistances aux médicaments. Par conséquent, la Société des maladies infectieuses d'Amérique (IDSA)12 a clairement distingué, dans ses recommandations, la signification clinique de la « détection de toxine » et de la « détection du gène de la toxine » pour Clostridioides difficile. Il n'est pas suffisant de poser le diagnostic d'infection uniquement par un test d'acide nucléique, et il est recommandé d'utiliser des méthodes capables de détecter directement la protéine toxique active. De plus, dans la pneumonie communautaire après un traitement antibiotique, la charge d'ADN bactérien dans l'expectoration du patient diminue rapidement, tandis que l'antigène urinaire reste positif après la guérison et persiste pendant plusieurs semaines à plusieurs mois13. Des phénomènes similaires sont également observés dans le diagnostic et le traitement de l'infection à H. pylori. En 2022, les laboratoires de la Mayo Clinic ont évalué que, chez 223 patients suivis après un traitement antibiotique, la PCR était relativement sensible à la détection d'ADN résiduel à faible niveau dans les échantillons fécaux. Certains patients, bien que cliniquement guéris et négatifs pour l'antigène, présentaient encore des résultats positifs à la PCR pendant plusieurs semaines14. L'ensemble de ces observations confirme davantage les différences biologiques entre les différentes cibles de détection.
Dans cette étude, l'identification d'une corrélation quantitative et d'une équivalence entre le titre antigénique de H. pylori détecté par méthode immunochromatographique et les valeurs de quantification par dPCR offre des orientations pratiques pour la caractérisation des matériaux de référence H. pylori ainsi que pour l'évaluation des réactifs de diagnostic in vitro. 1) Favoriser la mise à niveau du modèle d'évaluation des performances des produits : actuellement, l'évaluation clinique des réactifs de détection de l'antigène H. pylori repose sur une comparaison aveugle et simultanée avec des « standards or » cliniques tels que l'histologie, la culture ou le test respiratoire à l'uréase15. Cette recherche propose que les organismes de réglementation exigent des entreprises qu'elles fournissent, dans leurs dossiers de demande, des données de corrélation pertinentes entre leurs résultats de test et les méthodes quantitatives d'acides nucléiques, et qu'elles définissent clairement les performances de leurs produits dans la « plage de résultats discordants », afin de refléter plus fidèlement la capacité de détection du produit dans des scénarios cliniques complexes et de définir de manière plus complète la LDC du réactif. 2) Cela fournit une nouvelle approche pour l'attribution de valeurs aux matériaux de référence bactériens : les matériaux de référence destinés au contrôle qualité et à l'étalonnage peuvent évoluer d'une simple unité « UFC » vers des « valeurs caractéristiques multidimensionnelles »8 incluant le titre antigénique et le nombre de copies d'acides nucléiques. Le modèle de régression établi dans cette étude peut fournir une estimation approximative de l'ordre de grandeur de la relation entre ces deux valeurs, offrant ainsi une base quantitative pour l'utilisation des matériaux de référence et pour les comparaisons interlaboratoires.
Nous recommandons que les fabricants indiquent non seulement la limite de détection (LOD) en unités analytiques (par exemple, UFC/mL ou titre d'antigène), mais aussi son équivalence en copies génomiques — déterminée par la PCR numérique (dPCR) — afin que les résultats puissent être comparés et harmonisés entre laboratoires et plateformes. Cette double indication en deux unités est conforme aux exigences de traçabilité métrologique de l'ISO 175118 et au cadre d'évaluation des capacités de détection du CLSI EP17-A216.
Les raisons possibles de l'apparition d'échantillons « faible antigène–fort acide nucléique » sont les suivantes : 1) Variation génétique de la souche : si un acide aminé dans l'épitope antigénique est remplacé, ou si la protéine sécrétée est bloquée pendant son transport et sa sécrétion, un phénomène d'« échappement » dans la détection de l'antigène peut survenir17. 2) La dPCR est conçue pour cibler et amplifier des séquences géniques conservées. Le gène spécifique ciblé par la dPCR dans cette étude n'a pas été divulgué dans la documentation du fabricant. Toutefois, les kits commerciaux de détection d'antigènes peuvent cibler différents antigènes de H. pylori (par exemple, VacA, uréase, protéines flagellaires ou antigènes de cellules entières), et tout désaccord entre le gène ciblé par la dPCR et l'antigène reconnu par un kit donné pourrait se manifester par une discordance quantitative dans les quatre quadrants du graphique de dispersion — forte dPCR/faible antigène, faible dPCR/fort antigène, concordance forte/forte ou concordance faible/faible — plutôt que par des divergences binaires positif/négatif18. 3) Limites de la méthode de détection : la technologie de détection d'antigènes est limitée par des concentrations extrêmement faibles ou extrêmement élevées d'antigènes, ce qui affaiblit le signal en raison d'une affinité insuffisante avec les anticorps ou d'une sur-saturation, et est également influencée par la matrice de l'échantillon. 4) Asymétrie des performances des limites de détection : la limite inférieure de détection (LID) de la dPCR peut atteindre 10–100 copies/mL, tandis que la limite de détection de la méthode immunochromatographique colloïdale pour l'uréase est d'environ 104–105 UFC/mL. Lorsque la quantité bactérienne se situe à la valeur seuil, le phénomène « faible antigène–fort acide nucléique » est susceptible de survenir. 5) L'influence du statut infectieux sur les résultats cliniques est significative, notamment pour distinguer les infections bactériennes des infections virales. Au cours du processus infectieux, le nombre de copies génomiques et le niveau d'expression de l'antigène n'ont pas une relation constante. Après un traitement réussi, les niveaux d'acide nucléique peuvent diminuer rapidement, tandis que l'élimination de l'antigène peut être retardée pendant un certain temps19.
Les suspensions bactériennes utilisées dans cette étude provenaient à la fois de prélèvements biopsiques gastriques et d'échantillons fécaux, représentant des environnements matriciels distincts possédant des profils d'interférence différents. Les isolats dérivés de biopsies gastriques sont largement exempts d'inhibiteurs de la PCR associés aux selles, mais peuvent être exposés à des résidus de pepsine pendant le traitement des échantillons. En revanche, les échantillons fécaux contiennent des inhibiteurs de la PCR (par exemple, sels biliaires, polysaccharides complexes, produits de dégradation de l'hémoglobine) qui peuvent réduire l'efficacité de l'amplification et conduire à une sous-estimation de la quantification par dPCR, ainsi que des protéases intestinales qui peuvent dégrader les antigènes cibles même lorsque l'ADN bactérien reste intact. Ces effets spécifiques à la matrice agissent indépendamment des mécanismes de désappariement au niveau de la région cible décrits ci-dessus et indiquent que les protocoles de préparation et la validation des méthodes doivent être adaptés au type d'échantillon lors de l'interprétation des discordances quantitatives entre différents prélèvements cliniques.
Afin de quantifier expérimentalement le rapport entre bactéries viables et non viables après inactivation thermique, une PCR de viabilité utilisant un système de réactifs pour la PCR de viabilité a été réalisée sur les 24 isolats cultivés. Ce réactif fonctionne de manière analogue au moniazide de propidium (PMA) : il pénètre sélectivement les cellules dont la membrane est altérée et modifie de façon covalente leur ADN génomique, empêchant ainsi son amplification ultérieure. Le pourcentage de bactéries viables a été calculé à l’aide de la formule suivante : Pourcentage de viables = (copies d’ADN/µL traitées avec le réactif de viabilité (VR)) / (copies d’ADN/µL sans VR) × 100. Pour l’ensemble des isolats, la fraction médiane de bactéries viables après inactivation thermique était de 4,6 % (intervalle : 0,00 % à 33,0 %), ce qui confirme que notre procédé d’inactivation thermique à 56 °C pendant 25 minutes réduit fortement la viabilité bactérienne, sans toutefois éliminer complètement les organismes viables. Ces données de viabilité appuient fortement notre interprétation selon laquelle les profils discordants caractérisés par une forte concentration en dPCR et une faible concentration en antigène proviennent principalement d’ADN libre résiduel et d’ADN contenu dans des particules bactériennes non viables, plutôt que de bactéries H. pylori intactes et viables. Les résultats complets de la quantification de la viabilité pour les 24 souches sont résumés dans le Tableau supplémentaire 2.
Dans cette étude, la classification en quatre quadrants (basée sur des seuils exploratoires spécifiques au jeu de données) a révélé que 8 échantillons présentaient un taux élevé d'antigène et faible d'acide nucléique, et que 4 échantillons appartenaient à la catégorie faible en antigène et faible en acide nucléique, aux côtés de 9 catégories concordantes élevée–élevée et 3 faible–élevée. La présence d'échantillons à antigène élevé et acide nucléique faible (n = 8) suggère que l'expression des antigènes et la teneur en acide nucléique ne correspondent pas toujours, même dans des cultures pures. Les 24 isolats ont tous été récoltés en phase stationnaire de croissance (culture de 72 h ; voir section 1 du protocole). En phase stationnaire, la réplication de l'ADN est largement arrêtée tandis que les antigènes structuraux et métaboliques persistent ou continuent même à s'accumuler ; ce découplage lié à la phase de croissance offre une base biologique plausible à l'asymétrie entre la classe abondante à antigène élevé et acide nucléique faible (n = 8) et la classe réduite à antigène faible et acide nucléique élevé (n = 3), bien qu'il ne puisse à lui seul exclure d'autres mécanismes tels que des différences entre souches dans l'expression des antigènes ou une lyse partielle durant l'inactivation thermique. L'existence d'échantillons à faible taux d'antigène et acide nucléique élevé (n = 3) confirme qu'un faible taux d'antigène ne correspond pas inévitablement à une faible charge en acide nucléique, montrant ainsi que le test d'acide nucléique complète le test d'antigène dans certains scénarios spécifiques. Ces seuils sont exploratoires et spécifiques au jeu de données, et ne représentent pas des critères diagnostiques cliniques validés.
Cette étude est limitée par la petite taille de l'échantillon (n = 24), ce qui rend la puissance statistique insuffisante pour soutenir une analyse de sous-groupes robuste. L'échantillon a été divisé en six groupes de titres, avec en moyenne seulement 4 échantillons par groupe, de sorte que les comparaisons formelles entre groupes manquent de puissance statistique suffisante pour détecter des différences significatives. Par conséquent, le test de Kruskal-Wallis n'a pas été appliqué, afin d'éviter de présenter des résultats statistiques inférentiels ayant une puissance insuffisante. De plus, tous les échantillons étaient des isolats cultivés et ne couvraient pas les effets de matrice plus complexes présents dans les échantillons cliniques tels que la muqueuse gastrique, les selles ou la salive.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
Aucun outil d'intelligence artificielle n'a été utilisé lors de la rédaction, de la correction, de l'analyse statistique, du développement de code ou de la préparation des figures de ce manuscrit.
CONTRIBUTIONS DES AUTEURS :
Tous les auteurs ont confirmé leurs contributions respectives à ce travail. Les rôles individuels des auteurs sont indiqués ci-dessous. Tous les auteurs ont lu et approuvé le manuscrit final soumis, et prennent l'entière responsabilité de l'exactitude et de l'intégrité des données de recherche. Wenwen Sun : Investigation, Curation des données, Analyse formelle, Méthodologie, Rédaction du projet, Acquisition de financement ; Xiaona Han : Investigation, Méthodologie ; Jin Zhang : Investigation, Méthodologie ; Xinxin Duan : Investigation, Méthodologie ; Tingting Li : Conceptualisation, Encadrement ; Manyu Li : Conceptualisation, Encadrement, Rédaction – relecture et édition ; Haiwei Zhou : Conceptualisation, Encadrement, Rédaction – relecture et édition.
Remerciements
Cette étude est financée par la Fondation de recherche pour le développement de la jeunesse des Instituts nationaux de contrôle des drogues (NIDC) (subvention no 2025C5).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 2X dPCR Probe Master Mix Plus (Rox) | Sniper | RT021096A | Réactif de détection quantitative par PCR numérique |
| Kits d'extraction d'ADN génomique bactérien | Tiangen Biochemical Technology (Beijing) Co., Ltd. | Y2213/DP302-02 | Extraction d'acides nucléiques bactériens |
| Système Bio-Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | Détection quantitative par PCR numérique |
| Machine intégrée de PCR numérique | Sniper | DQ24 | Détection quantitative par PCR numérique |
| Machine intégrée de PCR numérique | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | Détection quantitative par PCR numérique |
| Bain-marie numérique | Yiheng Scientific Instrument Co., Ltd. | DK-8D | Inactivation thermique des suspensions bactériennes à 56 °C |
| Amorce sens | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplification d'acides nucléiques par PCR numérique |
| Kit de détection de l'antigène gastrique Helicobacter pylori (méthode par or colloïdal) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | Détection de l'antigène H. pylori |
| Milieu de culture solide pour Helicobacter pylori | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | Milieu de culture pour H. pylori |
| Kit de détection de l'antigène Helicobacter pylori (méthode par or colloïdal) | Bioneovan Co., Ltd. | 202403001 | Détection de l'antigène H. pylori |
| Kit de détection de l'antigène Helicobacter pylori (méthode par or colloïdal) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | Détection de l'antigène H. pylori |
| Kit de détection de l'antigène Helicobacter pylori (méthode par or colloïdal) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | Détection de l'antigène H. pylori |
| Kit de détection de l'antigène Helicobacter pylori (méthode par or colloïdal) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | Détection de l'antigène H. pylori |
| Kit de détection de l'antigène Helicobacter pylori (méthode par or colloïdal) | Beijing Core Technology Co., Ltd. | 2415810 | Détection de l'antigène H. pylori |
| Réactif de détection de l'antigène Helicobacter pylori (méthode immunochromatographique) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | Détection de l'antigène H. pylori |
| Réactif de détection de l'antigène Helicobacter pylori (méthode au latex) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | Détection de l'antigène H. pylori |
| Incubateur tri-gaz Heracell | Thermo Fisher Scientific | N/A | Culture microaérobie ; composition du gaz : 5 % O2, 10 % CO2, 85 % N2 |
| Tubes microcentrifuges (1,5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | Dilution des échantillons et extraction des acides nucléiques |
| Réactifs d'extraction ou de purification des acides nucléiques | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | Extraction d'acides nucléiques bactériens |
| Réactif d'extraction d'acides nucléiques | TargetingOne | Pathogens TNA-B1 (11019) | Extraction d'acides nucléiques bactériens |
| PBS, 1X (pH 7,2-7,4, 0,01 M, culture cellulaire) | Solarbio Science & Technology Co., Ltd. | P1020 | Dilution des échantillons |
| Plaques de Pétri (90 mm) | Beekman Biotech | N/A | Plaques de culture stériles pour l'isolement et le sous-culture bactériens |
| Pointes de pipette (10 µL / 200 µL / 1000 µL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | Pointes filtrées stériles pour la dilution des échantillons et la distribution des réactifs |
| Sonde | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplification d'acides nucléiques par PCR numérique |
| Amorce antisens | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplification d'acides nucléiques par PCR numérique |
| Plateforme en ligne d'analyse statistique SPSSPRO | SPSSPRO | Basée sur le web (https://www.spsspro.com/; consulté en août 2026) | Analyse statistique : corrélation de Pearson, régression linéaire |
| Sang de mouton stérile défibriné | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | Supplément pour les plaques de culture de H. pylori |
| Système TD-1 de PCR numérique | TargetingOne | TD-1 | Détection quantitative par PCR numérique |
| Système de réactifs de PCR de viabilité | Promega | A8881 | Évaluation par PCR de viabilité de H. pylori inactivé par la chaleur |
| Agitateur vortex | Scientific Industries Inc. | SI-0256 | Homogénéisation des suspensions bactériennes |
Références
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.