Cet article décrit des protocoles détaillés pour l'entretien d'une colonie de laboratoire de Carausius morosus, incluant des procédures clés d'élevage, de manipulation des œufs, de soins aux jeunes éclos, des indicateurs représentatifs de performance, ainsi qu'un aperçu de la durée de vie de l'espèce et de ses caractéristiques biologiques.
Article de méthode
Un protocole standardisé pour l'élevage de Carausius morosus (Phasmatodea, Insecta) en conditions de laboratoire
Dans cet article
Résumé
Résumé
Carausius morosus, le phasme indien, est un insecte grêle ressemblant à une petite branche, endémique de l'Inde. Bien qu'il ait été largement introduit dans le monde entier en captivité et soit couramment utilisé dans les laboratoires ou élevé comme animal de compagnie domestique, des protocoles standardisés de maintenance animale en laboratoire font défaut. Nous décrivons ici des conditions détaillées de culture en laboratoire pour C. morosus. Nous maintenons les stocks à 23 °C, 70 % d'humidité relative et un photopériode lumineux de 12 h clair/12 h obscur. Cette culture est maintenue avec succès dans ces conditions depuis plus de deux ans, selon des protocoles standardisés concernant l'alimentation et l'aménagement des cages. Nous décrivons également des méthodes de soins aux œufs et aux jeunes éclos pour soutenir les expériences en cours avec C. morosus. Dans nos conditions de culture, 105 lots surveillés d'œufs pondus sur une période de 24 heures ont éclos dans un intervalle régulier de 12 jours, et 13,9 % des nymphes sont parvenues avec succès à l'âge adulte. Ces méthodes standardisées améliorent la reproductibilité et l'accessibilité, permettant une utilisation plus large de C. morosus comme système modèle en laboratoire pour un large éventail d'études, notamment l'analyse du développement, du comportement et de la physiologie.
Introduction
Alors que l'intérêt pour les systèmes modèles non mammaliens augmente, les insectes offrent la possibilité d'explorer une grande diversité biologique tout en fournissant des modèles de recherche moins coûteux, nécessitant des soins plus simples et soumis à moins de contraintes réglementaires que les modèles mammaliens.1. De nouveaux modèles d'insectes émergents permettent d'étudier des phénomènes biologiques uniques, notamment, par exemple, la parthénogenèse chez les insectes bâton tels que Carausius morosus (Sinéty, 1901)2. Bien que la drosophile Drosophile melanogaster a façonné notre compréhension des processus développementaux et génétiques depuis le début du XXe siècle3, d'autres modèles insectes tels que C. morosus offrent une opportunité unique non seulement pour la biologie du développement, mais également pour l'étude du contrôle moteur, de la locomotion et des systèmes régulés par les neurohormones4.
De plus, dans le domaine de la biologie évolutive du développement, les insectes hémimétaboles (à développement direct) restent sous-représentés, le D. melanogaster, holométabole (à développement indirect ou subissant une métamorphose), étant l'insecte modèle le plus étudié. L'étude d'espèces d'insectes à développement direct comme C. morosus, qui traverse plusieurs stades ninfaux avant d'atteindre la maturité sexuelle5, nous permet de combler des lacunes phylogénétiques essentielles dans la recherche en biologie évolutive du développement. Cela rend possible la comparaison entre insectes hémimétaboles et holométaboles, qui se sont séparés tôt dans l'évolution des insectes mais ne sont pas également représentés dans les systèmes modèles actuels en laboratoire. L'utilisation plus large de C. morosus comme organisme de laboratoire a été limitée par des conditions d'élevage inconstantes, non reproductibles, et par l'absence de repères clairs pour le développement et la survie. Ici, nous présentons un protocole étape par étape incluant des conditions de culture définies et des résultats attendus, applicables dans différents laboratoires, et soutenant diverses applications telles que le suivi de l'embryogenèse, l'étude du développement longitudinal et les expériences sur le rendement reproductif.
C. morosus est facile à élever en captivité, ce qui le rend particulièrement adapté aux recherches en laboratoire ainsi qu'aux environnements pédagogiques. Sa capacité à se reproduire par parthénogenèse6 élimine la nécessité de dispositifs d'élevage complexes, réduit les contraintes d'entretien et simplifie la gestion des populations. Bien que l'élevage réussi profite de conditions environnementales contrôlées, son maintien reste simple et peu coûteux par rapport à de nombreux autres modèles de laboratoire. C. morosus s'alimente facilement de végétaux courants tels que le lierre (Hedera helix), la ronce (Rubus fruticosus) ou les feuilles de rosier (Rosa spp.). D'autres avantages de ce système incluent l'autotomie, la capacité de régénérer les pattes7, une taille corporelle importante et la possibilité de se nourrir d'une variété de plantes hôtes. Toutefois, cette espèce présente également des limites, notamment l'absence de séquence génomique disponible publiquement, un temps de développement relativement long et un exochorion embryonnaire dur qui peut rendre les injections difficiles8. Malgré ces limitations, C. morosus constitue un modèle pratique et efficace pour des applications à la fois en recherche et en enseignement.
Des protocoles d'élevage standardisés pour C. morosus sont essentiels afin d'obtenir des résultats cohérents et reproductibles dans les études de recherche. Bien que plusieurs études en laboratoire sur C. morosus aient été rapportées dans la littérature6,9,10,11,12, à notre connaissance, aucun protocole détaillé pour l'élevage de C. morosus en laboratoire n'a encore été publié à ce jour. Dans cette étude, nous avons mis au point avec succès un ensemble complet de protocoles standardisés pour les cultures de C. morosus en laboratoire, incluant l'élevage des œufs, des nymphes récemment écloses et des adultes reproducteurs. Grâce à ces méthodes, nous souhaitons rendre cet insecte plus accessible à la communauté élargie de la recherche biologique.
Protocole
1. Environmental rearing conditions
- Maintain the laboratory culture in a climate-controlled room or incubator with environmental settings as follows: 23 °C, relative humidity 70%, light-dark photoperiod of 12:12 h.
NOTE: Under these conditions, C. morosus eggs are expected to hatch approximately 74-80 days after being laid.
2. Establishment and maintenance of mesh enclosures
NOTE: Mesh insect enclosures with fabric mesh ventilation on three sides are recommended for housing C. morosus. An enclosure measuring 61 x 61 x 91.5 cm is suitable for maintaining up to 50 adults or, when establishing a new colony, up to 500 hatchlings.
- Select a mesh enclosure of appropriate size. Ensure the container is clean and free of debris before introducing the animals.
- For establishing a new colony using mature adults, place 25–50 adult females into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Mesh openings should be in the range of 0.2–1.0 mm to prevent escape of the small first instar hatchlings. - For establishing a new colony using hatchlings, transfer up to approximately 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
3. Feeding and maintenance
- During cage cleanings, let the insects stay in the enclosure; gently take them off foliage and place them on the bottom of the mesh enclosure while cleaning around them.
NOTE: Expect cleaning to take roughly 10–20 min per cage. - Provide fresh foliage such as ivy, bramble, or rose once per week. Ensure all plant material is pesticide-free. Wash foliage with tap water prior to addition to cages to remove surface debris and contaminants.
- Trim stems to fit vessels (small jars or bottles) filled with tap water to maintain leaf hydration. Place the prepared foliage inside the enclosure, making sure leaves are elevated and accessible to the insects. Carefully close the enclosure after placement.
- During weekly cage cleanings, remove wilted or dried foliage and any accumulated excrement from the bottom of the enclosure.
NOTE: Replace foliage when leaves show signs of dehydration, such as dryness, brittleness, wilting, or discoloration. Maintaining a clean environment is essential for colony health and well-being. - Lightly mist each enclosure daily with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Reduce density if rapid food depletion occurs.
4. Collection and maintenance of Carausius morosus hatchlings
NOTE: In this study, we use “hatchling” to refer to individuals immediately after emerging from the egg (first instar), while “nymph” refers to juvenile stages following postembryonic molts.
- Gather 6 cm Petri dishes with newly emerged hatchlings.
- Using blunt plastic forceps, gently transfer no more than 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Collect only fully emerged, stretched out nymphs that have completed exoskeleton expansion. Disturbing the nymphs before they have fully emerged from the egg may impair body extension and lead to premature death. For similar reasons, try to minimize direct handling of nymphs following transfer to the mesh enclosure. - Provide fresh foliage as described in section 3.
- Label new colony enclosures with the following information: egg batch collection date(s), date of hatching or range of hatching dates, and number of hatchlings added.
NOTE: This tracks enclosure age and predicts the start of reproductive maturity. - Lightly mist each enclosure immediately after hatchling transfer, and daily thereafter, with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Hatchlings may remain in the same enclosure throughout development until adulthood. Under the laboratory conditions described in section 1, approximately 13% of hatchlings survive to adulthood in 4–5 months (Table 1). - Remove any dead or damaged hatchlings during weekly cage cleaning to prevent contamination.
5. Collection and maintenance of C. morosus eggs
- Open an enclosure containing adult females.
- Using a gloved hand, gently sweep the substrates on the bottom of the cage, which contain both eggs and fecal matter, towards the front opening.
- Carefully transfer the material using a gloved hand to a 15 cm Petri dish for egg retrieval.
6. Termination of insects and disposal of enclosure waste
NOTE: When C. morosus are no longer needed for experiments, have died, or eggs are not required:
- Euthanasia/Disposal of insects: Transfer live or dead insects no longer needed for culture or experiments into an autoclavable waste bag, and store in a -20 °C freezer for at least 72 h.
- Egg destruction: To prevent overpopulation, remove any eggs not used for experiments from cages or Petri dishes, place them in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- Waste handling: Place any contaminated waste from enclosures or materials used for egg or insect collection in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- After freezing materials, transfer the autoclavable waste bag to a biohazard bin for proper disposal.
NOTE: As C. morosus is an invasive species outside of India, it is crucial that all materials are properly disposed of as described above to prevent accidental release into the environment.
7. Egg retrieval
- Using blunt plastic forceps, carefully pick up each egg and place it into a clean 6 cm Petri dish.
NOTE: Mature eggs are protected by a hardened exochorion and are dark brown, resembling plant seeds. Using a white background can help differentiate droppings from eggs when sorting. - Label the dish with the date and time of collection for tracking purposes. Keep the lid off during incubation to allow ventilation.
NOTE: A 6 cm Petri dish is sufficient for storing up to 200 eggs. - Approximately 1 week before the expected hatching window (74–80 days after egg laying; Kovacikova & Extavour, unpublished data), replace the Petri dish cover.
- Begin daily monitoring of egg containers before the expected hatching date to observe emerging hatchlings.
8. Life expectancy
- After hatching, monitor individuals as they undergo five to six molts before reaching reproductive maturity, which under the laboratory conditions described in Section 1, happens on average 139 days after hatching (Table 1).
- To follow this protocol, define developmental timing under these culture conditions as follows: embryogenesis duration (egg laying to hatching) is 74–80 days; time from hatching to sexual maturity (onset of oviposition) is approximately 135 days, corresponding to approximately 200 days from egg laying to sexual maturity, and total lifespan from egg laying to death is approximately 9.5 months.
Résultats
Nous avons recueilli des données attestant de l'élevage en laboratoire réussi de C. morosus, depuis l'œuf jusqu'à l'âge adulte reproductif, entre septembre 2024 et novembre 2025. Au cours de cette période de 14 mois, nous avons mis en place, entretenu et surveillé cinq cages pour l'un ou plusieurs des éléments suivants : mortalité des adultes, ponte des œufs, moment de l'éclosion des œufs et survie des jeunes jusqu'à l'âge adulte. Notre méthode permet un maintien à long terme de la colonie sans signes évidents de maladie liée à un agent pathogène ou de déclin de la reproduction, éléments qui constitueraient des résultats sous-optimaux. Après plus de deux ans de culture continue, nous n'avons observé aucune mortalité massive liée à un agent pathogène, et la production d'œufs ainsi que celle de jeunes a demeuré stable d'une génération à l'autre.
Les données présentées dans la Figure 1 et la Figure 2 montrent les observations effectuées dans les cinq cages surveillées, depuis la mise en place jusqu’au stade adulte des éclosions, y compris le nombre d’œufs pondus et la mortalité des adultes pour chaque cage. Une fois que les individus fondateurs de chaque cage ont atteint la maturité sexuelle et commencé à pondre des œufs, nous avons enregistré le nombre d’adultes présents dans chaque cage afin d’établir la population initiale au début de la ponte. Le nombre d’adultes dans chaque cage au fil du temps est indiqué dans la Figure 1 et le Tableau 1. Nous interprétons la diminution constante de la survie comme une mortalité liée à l’âge.
Nous avons suivi la production d'œufs en parallèle dans les mêmes cinq cages que celles utilisées pour le suivi de la survie des adultes (Figure 1 et Figure 2). Le nombre quotidien d'œufs par cage était le plus élevé durant les 30 à 50 premiers jours de ponte et a diminué progressivement par la suite. Bien que la production totale d'œufs varie entre les cages (Table 2), ce schéma général était cohérent dans l'ensemble des cinq cages réplicates. Nous avons suivi la dynamique d'éclosion des œufs sur une période de 50 jours pour 105 lots d'œufs au total, chaque lot correspondant à un groupe d'œufs pondus dans la même cage au cours d'une période de 24 heures. Pour les analyses de la taille des lots présentées dans la Figure 3, 75 lots ont été regroupés en trois catégories : petite, moyenne et grande taille. Nous avons constaté que, dès l'éclosion du premier œuf d'un lot, l'éclosion de 90 % des œufs était atteinte dans un délai de 12 jours suivant l'émergence du premier jeune (Figure 3D), indépendamment de la taille du lot (Figure 3B). En utilisant l'expression « achèvement de l'éclosion » pour décrire la proportion d'œufs d'un lot ayant éclos à un moment donné après l'émergence du premier jeune du lot, nous observons que la répartition des lots d'œufs selon le jour correspondant à 90 % d'éclosion indique que la majorité des lots atteignent ce seuil entre les jours 10 et 14 suivant l'éclosion (Figure 3C).
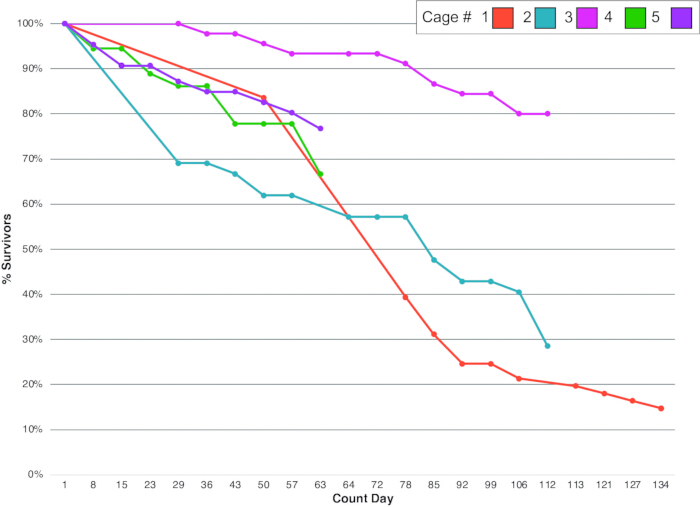
Figure 1. Dynamique de la mortalité des adultes. Évolution de la survie au fil du temps dans cinq cages expérimentales répliquées de C. morosus. Le pourcentage de survie est représenté en fonction du temps pour les individus de chaque cage surveillée. Voir les métriques récapitulatives dans Tableau 1. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
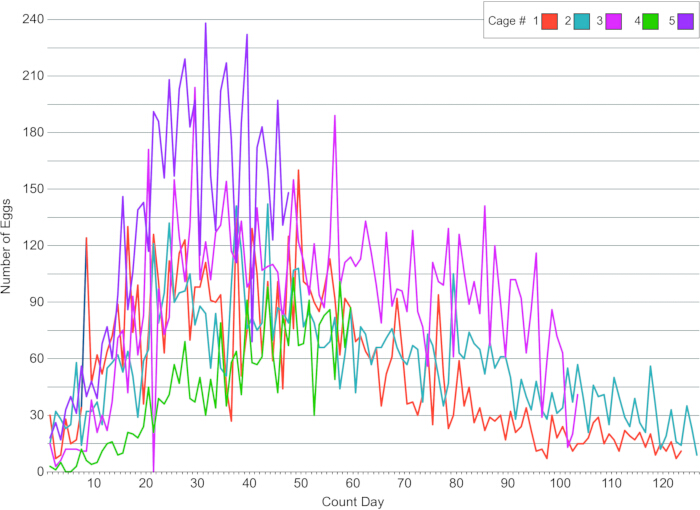
Figure 2. Dynamique de production d'œufs. Nombre d'œufs collectés à partir des cinq mêmes cages surveillées dans la Figure 1. Les cages 1 à 5 ont été surveillées quotidiennement pendant 47, 58, 106, 129 et 132 jours, respectivement. Le graphique présente les données des 126 premiers jours de ponte. Voir les métriques récapitulatives dans le Tableau 2. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
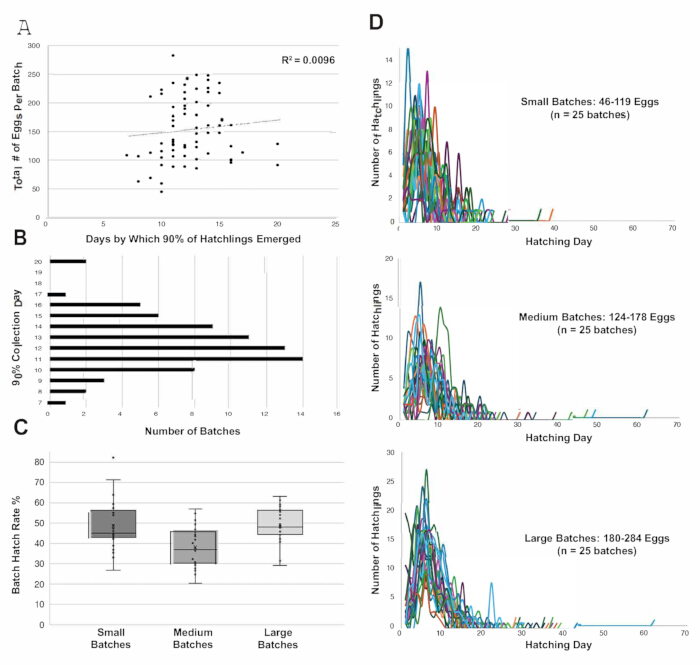
Figure 3. Dynamique de l'éclosion des œufs. (A) Relation entre le nombre total d'œufs par ponte et le nombre de jours nécessaires pour atteindre 90 % d'éclosion terminée. (B) Répartition des pontes selon le jour où elles ont atteint 90 % d'éclosion terminée, sur une période allant des jours 7 à 20. (C) Répartition du taux d'éclosion par ponte selon les pontes de petite, moyenne et grande taille. n = 25 pontes par catégorie de taille. (D) Trajectoires d'éclosion sur une période de collecte de 70 jours pour les 75 pontes utilisées dans l'analyse de la taille des pontes. Un total de 105 pontes a été suivi ; pour les analyses présentées ici, les 75 pontes ont été regroupées selon le nombre total d'œufs en utilisant des seuils par tiers. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
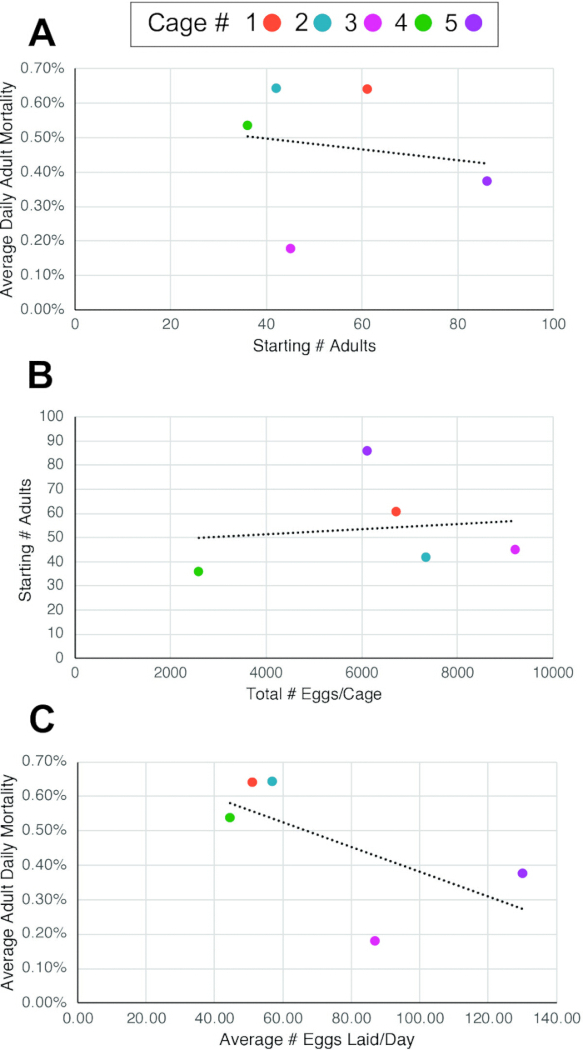
Figure 4. Relations entre le nombre d'adultes, la mortalité des adultes et la production d'œufs par cage. (A) Il n’existe aucune relation significative (R2 = 0,025) entre la mortalité quotidienne moyenne des adultes et le nombre d’adultes fondateurs dans une cage. (B) Il n’existe aucune relation significative (R2 = 0,017) entre la production totale d’œufs et le nombre d’adultes fondateurs dans une cage. (C) On observe une corrélation négative modérée (R2 = 0,411) entre la production quotidienne moyenne d’œufs et la mortalité quotidienne moyenne des adultes. La mortalité quotidienne moyenne des adultes = (% de mortalité totale) / (nombre total de jours de suivi). Veuillez cliquer ici pour consulter une version agrandie de cette figure.
| Numéro de cage # | ancienne cage n° | Premier jour d'éclosion jeunes ajoutés à la cage fondatrice | éclosion du dernier jour jeunes ajoutés à la cage fondatrice | # Éclosion jeunes ajoutés à la cage | Plage de jours d'éclosion des embryons ont été ajoutés | Temps moyen entre le début de la cage et le comptage des adultes # | Premier jour du décompte des adultes | Premier jour où les adultes ont commencé à pondre des œufs | Temps écoulé entre l'éclosion et l'âge adulte | Temps écoulé entre l'éclosion et la ponte | Nombre initial d'adultes | Survie des oisillons jusqu'à l'âge adulte hotte | Dernier jour du décompte des adultes | Nombre final d'adultes | Durée de surveillance de l'adulte # [jours] | Mortalité moyenne des adultes au cours de la période de surveillance [%] | Mortalité quotidienne moyenne des adultes [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | ND | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | ND | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | ND | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Moyennes | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tableau 1 : Dynamique de survie et de mortalité des adultes dans les cages expérimentales. Résultats relatifs à la survie des adultes pour cinq cages expérimentales répliquées. Pour chaque cage, nous indiquons la période d'installation de la cage, le nombre d'éclosions utilisées pour constituer chaque cage (pour 2 des 5 cages), la survie des éclosions jusqu'au stade adulte (pour 2 des 5 cages), la durée entre l'installation de la cage, le début du comptage des adultes et le début de la ponte, la durée du suivi des adultes, les effectifs adultes initiaux et finaux, la mortalité des adultes durant la période surveillée, ainsi que la mortalité moyenne quotidienne. La survie des éclosions jusqu'au stade adulte a été calculée uniquement pour les cages dont le nombre initial d'éclosions était connu.
| N° de cage | Date de début de la collecte des œufs | Date de fin de la collecte des œufs | Durée de la collecte des œufs [jours] | Nombre total d'œufs/cage | Nombre moyen d'œufs pondus/jour | Nombre initial d'individus adultes | Nombre total d'œufs/individus adultes initiaux | Nombre moyen d'œufs/individu adulte initial/jour |
| 1 | 29/05/2025 | 08/10/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 04/07/2025 | 10/11/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 27/07/2025 | 10/11/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 13/09/2025 | 10/11/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 24/09/2025 | 10/11/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Moyennes | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tableau 2 : Production d'œufs dans les cages expérimentales. Production d'œufs de cinq cages expérimentales répliquées contenant des adultes matures. Pour chaque cage, nous indiquons les dates de début et de fin de collecte des œufs, la durée totale de la collecte, la production cumulative d'œufs par cage, ainsi que le nombre moyen d'œufs pondus par jour.
Discussion
Les méthodes d'élevage décrites ici fournissent un cadre simple et reproductible pour maintenir des populations de laboratoire de C. morosus. Bien que C. morosus a longtemps été maintenu en laboratoire ou comme animal de compagnie, les protocoles d'élevage en recherche expérimentale ont varié selon les études6,9,10,11,12. Veiller à des conditions environnementales et des pratiques alimentaires constantes est important pour réaliser C. morosus un organisme modèle de laboratoire fiable pour la recherche en développement, physiologie et évolution.
Chronologie du développement chez C. morosus par rapport à d'autres insectes modèles
Contrairement aux insectes holométaboles comme la drosophile Drosophila melanogaster, C. morosus présente des taux de développement plus lents et une phase juvénile plus prolongée. Alors que D. melanogaster achève l'embryogenèse en environ 24 h et atteint la maturité reproductive en 10 à 12 jours à 25 °C13, dans nos conditions d'élevage, C. morosus nécessite 74 à 80 jours pour l'embryogenèse et environ 135 à 139 jours après l'éclosion pour atteindre la maturité reproductive, soit environ 200 jours entre la ponte et la maturité reproductive à 23 °C (données non montrées). Cette durée prolongée reflète des différences physiologiques et évolutives fondamentales entre les insectes hémimétaboles et holométaboles14,15 et est régulièrement observée chez les Phasmatodea16,17,18. Bien que d'autres insectes hémimétaboles, comme le grillon Gryllus bimaculatus, achèvent l'embryogenèse et atteignent la maturité sexuelle en un délai plus court (dix jours et six semaines, respectivement, à 29 °C19), le développement plus lent de C. morosus offre une opportunité unique pour des recherches reproductibles et des études détaillées, longitudinales, de l'embryogenèse et du développement juvénile.
Source du feuillage et pratiques d'alimentation
Dans ce protocole, nous décrivons l'utilisation du lierre (Hedera helix) comme source alimentaire principale pour notre colonie de C. morosus, avec un feuillage collecté toute l'année à un endroit fixe sur le campus. Bien que le lierre ne soit pas accessible à tous les laboratoires, plusieurs autres sources végétales ont été signalées comme adaptées au maintien de colonies de C. morosus, notamment le ronce (Rubus spp.), le troène (Ligustrum spp.), le néflier (Pyracantha spp.), la rose (Rosa spp.), l'aubépine (Crataegus monogyna), le chêne (Quercus spp.) et le noisetier (Corylus spp.)20. Un point important à considérer lorsqu'on utilise du feuillage provenant de sources extérieures est que la teneur nutritionnelle est moins contrôlée que dans les systèmes de laboratoire utilisant des régimes normalisés (par exemple, Drosophila melanogaster), ce qui peut introduire une variabilité nutritionnelle. Pour limiter ce facteur, nous avons utilisé la même espèce végétale provenant du même emplacement durant toutes les saisons, et fourni du feuillage à toutes les cages une fois par semaine lors de l'entretien régulier. Les branches de lierre utilisées pour l'alimentation présentaient généralement un mélange de feuilles jeunes et matures ; nous n'avons pas sélectionné les branches selon un stade particulier de développement foliaire. Toutes les feuilles étaient lavées avant d'être placées dans les cages. Le remplacement hebdomadaire, impliquant l'élimination de tout le feuillage et son renouvellement le même jour, a été mis en œuvre pour assurer la cohérence et gérer l'ampleur de la colonie. Le feuillage coupé était conservé dans des récipients remplis d'eau à l'intérieur des cages afin de maintenir l'hydratation pendant la semaine. Dans la plupart des cas, les feuilles restaient en bon état pendant toute la semaine, bien qu'un dessèchement ou une consommation prématurée puisse parfois survenir ; dans de tels cas, nous remplaçions le feuillage avant l'écoulement d'une semaine.
Taille des colonies, taux de survie et reproduction des adultes
Une installation adéquate des colonies et une gestion attentive de la densité de population étaient essentielles pour maintenir les stocks en bonne santé. Le maintien d'un maximum d'environ 500 naissains ou de 50 adultes par enceinte de 61 cm x 61 cm x 91,5 cm permettait de préserver des conditions stables, d'assurer l'entretien des colonies et d'obtenir des observations développementales reproductibles.
La comparaison de la mortalité quotidienne moyenne avec le nombre d'adultes fondateurs dans une cage (Figure 4A et Tableau 1) n'a révélé aucune relation prévisible entre ces deux paramètres. De même, il n'existait pas de relation prédictive forte entre le nombre total d'adultes fondateurs et la production totale d'œufs (Figure 4B, Tableau 1 et Tableau 2). En revanche, les cages présentant une mortalité quotidienne moyenne plus faible chez les adultes montraient une légère tendance à avoir un rendement quotidien moyen en œufs plus élevé (Figure 4C). Toutefois, les différences entre les cages suggèrent que la production d'œufs variait selon les adultes (Tableau 1 et Tableau 2), ce qui pourrait indiquer que des facteurs autres que la survie des adultes contribuent aux profils de fécondité, et que les femelles individuelles peuvent également varier quant au nombre d'œufs qu'elles pondent chaque jour.
La production d'œufs dans toutes les cages surveillées a généralement diminué au cours de l'expérience (Figure 2). La plupart des cages ont enregistré les taux journaliers de ponte les plus élevés au début de la période reproductive (les 50 premiers jours), après quoi la production a progressivement diminué (Figure 2). Ce schéma est conforme à notre observation selon laquelle les individus atteignent généralement la maturité sexuelle et commencent à pondre des œufs environ 135 jours après l'éclosion, et que la mortalité débute environ 90 jours plus tard (~225 jours après l'éclosion ; données non montrées).
Durée et dynamique de l'éclosion
Dans l'ensemble des lots d'œufs surveillés, la majorité des éclosions s'est produite dans un intervalle régulier de 12 jours suivant le début de l'émergence (Figure 3D). De même, aucune corrélation n'a été observée entre la taille du lot et le moment de l'éclosion de 90 % des œufs (Figure 3A), et la plupart des lots ont atteint 90 % d'éclosion entre les jours 10 et 14 après l'émergence du premier nimfe (Figure 3B). Cette période d'éclosion prévisible constitue un atout utile pour la gestion d'une colonie de C. morosus, car elle permet de regrouper les jeunes éclos par cohortes d'âge similaire, améliorant ainsi le calibrage du développement et réduisant la variabilité expérimentale. Connaître le moment où aura lieu l'éclosion massive permet également une meilleure planification du renouvellement des enclos et de l'allocation des ressources, notamment la préparation en temps voulu des enclos, du feuillage et des matériaux de suivi, ce qui est particulièrement important pour les études à grande échelle ou à long terme. Bien que des espèces de Phasmatodea sexuées et parthénogénétiques aient été étudiées, nous ne connaissons aucune preuve indiquant que le mode de reproduction à lui seul entraîne des différences dans la durée de l'embryogenèse. En revanche, les variations du développement ont été décrites comme spécifiques à l'espèce et influencées par les conditions environnementales2.
Manipulation des œufs et considérations relatives au substrat
Notre méthode de manipulation des œufs consiste à recueillir directement les œufs depuis le sol de l'enceinte et à les incuber dans des boîtes de Pétri aérées. Cette approche permet une observation facile des œufs, contrairement aux systèmes utilisant des grillons, qui collectent les œufs dans des substrats tels que la fibre de coco ou des mèches de coton21. L'exochorion rigide des œufs de C. morosus assure une protection lors de la manipulation et contre la dessiccation, permettant une incubation sûre dans des boîtes de Pétri sans substrat supplémentaire dans nos conditions d'élevage. Prises ensemble, ces procédures standardisées offrent une approche structurée pour maintenir des populations saines de C. morosus destinées à des recherches reproductibles en développement, comportement, génétique ou physiologie. Des contrôles environnementaux constants (23 °C, 70 % HR, cycle lumineux 12:12 LD), un entretien régulier des enceintes et des chronologies de développement prévisibles font de C. morosus un système modèle accessible et peu coûteux. Contrairement à certains systèmes de grillons où l'entassement, le cannibalisme ou la charge pathogène peuvent rapidement déstabiliser les colonies22, C. morosus est facile à maintenir, ce qui le rend particulièrement adapté aux expériences à grande échelle et aux études s'étendant sur plusieurs générations. Alors que C. morosus est de plus en plus adopté comme espèce modèle hémimétabole, l'utilisation de méthodes standardisées devrait favoriser la reproductibilité et la comparabilité entre les études dans divers domaines de la biologie des insectes.
Survie de l'éclosion à l'âge adulte
La survie des jeunes éclos jusqu'à l'âge adulte dans notre étude (~13 %) est nettement inférieure à celle rapportée par une autre étude quantitative sur la survie des nymphes de C. morosus en conditions contrôlées de laboratoire, dans laquelle 68 % des individus ont survécu jusqu'à l'âge adulte avec une restriction calorique et jusqu'à 87 % avec un accès ad libitum à la nourriture23. Nous émettons l'hypothèse que la survie plus faible observée dans notre colonie (~13 %) par rapport à l'étude précédente est due à des différences dans la manière dont les animaux ont été élevés, qui reflètent à leur tour les objectifs différents de notre élevage et de celui de l'étude antérieure. Notre protocole a été conçu pour maintenir des colonies importantes et continuellement reproductrices, plutôt que pour maximiser la survie de groupes individuels. Ainsi, nous avons conservé les animaux à des densités relativement élevées, contrairement à l'étude précédente, qui élevait des animaux isolés de l'œuf à l'âge adulte dans des cages individuelles23. Nous supposons que la méthode d'élevage en haute densité que nous décrivons ici pourrait augmenter la mortalité par rapport à l'élevage en isolement, en particulier durant les premiers stades nymphaux, où les individus pourraient être plus sensibles à l'entassement ou à la compétition. Dans nos cages plus grandes, la variabilité de la qualité des plantes a pu également jouer un rôle, comparée à l'approche d'élevage individuel, qui fournissait aux individus des disques de taille contrôlée découpés dans des feuilles de plantes23. Toutefois, malgré son taux de survie relativement plus faible, notre colonie a régulièrement produit un grand nombre d'œufs et est restée stable dans le temps (Figure 1, Figure 3, Tableau 1 et Tableau 2). Cela suggère que l'approche que nous décrivons ici est efficace pour maintenir une culture de laboratoire à long terme.
Facteurs influençant la survie et limites du protocole
Plusieurs facteurs dans ce protocole sont susceptibles d'influencer la survie et doivent être soigneusement contrôlés. La densité de population est un paramètre important, car un surpeuplement peut réduire la survie, en particulier durant les premiers stades larvaires. Un autre paramètre influant sur la survie est une hydratation adéquate, surtout pendant les premiers stades larvaires. Toutes les procédures et les délais décrits dans le protocole sont fondés sur les conditions environnementales spécifiques utilisées dans cette étude. Toutefois, des variations d'humidité, de température, de circulation d'air ou de type de plante peuvent affecter la fréquence des pulvérisations d'eau, la fréquence de remplacement du feuillage, la durée d'éclosion des œufs et la survie globale. Par exemple, dans des conditions de culture plus sèches, des pulvérisations d'eau et des remplacements de plantes plus fréquents peuvent être nécessaires pour maintenir l'hydratation. Différentes espèces végétales peuvent également influencer l'alimentation et le développement. Ces facteurs doivent être ajustés en fonction des conditions d'élevage et des objectifs expérimentaux. Pour des applications nécessitant une forte survie juvénile, un suivi individuel ou des tests comportementaux, des densités initiales plus faibles peuvent être préférables.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à déclarer.
Remerciements
Ce projet a été financé par la bourse IOS 22207477 de la National Science Foundation attribuée à CGE, qui est chercheur à l'Institut médical Howard Hughes. Nous reconnaissons que Carausius morosus est supposé provenir du Tamil Nadu, en Inde, et que des cultures en laboratoire de cette espèce sont maintenues en dehors de l'Inde depuis au moins 1908. Nous remercions sincèrement Stanislav Gorb et Thies Büscher (Université de Kiel) d'avoir fourni le groupe initial d'adultes utilisé pour établir notre culture, ainsi que tous les membres du laboratoire Extavour pour leur soutien, notamment l'ancien membre du laboratoire le Dr Upendra Bhattarai (affiliation actuelle : Université Brown), qui a mis en place la colonie initiale.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Sacs en polypropylène autoclavables, 30,5 cm × 61 cm | VWR | 95042-554 | Pour l'élimination des déchets d'insectes, d'œufs et d'enceintes |
| Poubelle pour déchets biologiques | N/A | N/A | Pour l'élimination après congélation |
| Pinces en plastique effilées | Amazon | B07YZ5FB27 | Pour la collecte et la manipulation des œufs et des jeunes éclos |
| Chambre climatique ou incubateur | N/A | N/A | Pour maintenir une température de 23 °C, une humidité relative de 70 % et un photopériode de 12 h lumière / 12 h obscurité |
| Gants jetables | N/A | N/A | Pour la collecte des œufs et la manipulation des déchets |
| Boîtes de Pétri jetables, 150 × 15 mm | VWR | 25384-326 | Pour la collecte des œufs |
| Boîtes de Pétri jetables, 60 × 15 mm | VWR | 25384-092 | Pour l'incubation des œufs |
| Feuillage frais (lierre, ronce ou feuilles de rose) | N/A | N/A | Source alimentaire sans pesticide |
| Congélateur, -20 °C | N/A | N/A | Pour l'euthanasie/l'élimination et la congélation des œufs ou des déchets avant élimination |
| Enceintes à mailles pour insectes | Amazon | B09GS2CH1G | Utilisées pour loger les insectes |
| Flacon pulvérisateur, 250 mL | Amazon | B000H88PCU | Pour brumiser les enceintes à mailles |
| Récipient en verre haut, hauteur de 18–23 cm | N/A | N/A | Utilisé pour contenir de l'eau et les tiges de plantes |
| Eau du robinet | N/A | N/A | Pour la brumisation et le maintien de l'hydratation du feuillage |
| Surface ou plateau de tri blanc | N/A | N/A | Pour différencier les œufs des déjections lors du tri |
Références
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Réimpressions et autorisations
