Ce protocole décrit l'utilisation de l'optogénétique pour comprendre le comportement du moustique Aedes aegypti. Des méthodes d'élevage, de préparation, de tests et d'analyse sont présentées afin d'évaluer la fonction neuronale pendant l'attraction envers les animaux hôtes et l'alimentation par le sang. Ces techniques fondamentales permettront des études sur les circuits neuronaux et le comportement de ce vecteur important de maladies humaines.
Article de méthode
Analyse optogénétique du comportement du moustique Aedes aegypti
* These authors contributed equally
Dans cet article
Résumé
Résumé
Le moustique Aedes aegypti est un vecteur important de pathogènes viraux et sert de modèle pour d'autres espèces de vecteurs. La transmission des pathogènes se produit lorsqu'un moustique pique un animal hôte, mais les circuits neuronaux qui contrôlent la recherche de l'hôte et le comportement de piqûre restent inconnus. Cet article décrit des méthodes permettant de manipuler l'activité neuronale chez le moustique à l'aide de l'optogénétique, une technique essentielle pour établir les relations de causalité entre les circuits neuronaux et le comportement. Ces méthodes comprennent l'élevage de moustiques pour l'optogénétique et trois tests conçus pour mesurer différentes étapes de la séquence d'activation, d'attraction, de sondage par le proboscis et de rassasiement par le sang de l'hôte. Ces comportements se produisent à différentes échelles spatiales et en réponse à différents stimuli sensoriels. Chaque test comportemental est équipé de DEL rouges (~625 nm) pour l'activation optogénétique. Pour détecter l'activation en réponse à des stimuli olfactifs, les comportements de vol et de marche sont quantifiés. Pour évaluer l'attraction ou l'atterrissage, les moustiques sont exposés à un repas sanguin chauffé dans une arène de grande taille. Le sondage par le proboscis et le rassasiement sont analysés à l'aide d'une vidéo à plus haute résolution, permettant de mesurer les appendices et la taille de l'abdomen. Le protocole décrit des modèles de vision artificielle permettant une quantification temporelle à haute résolution du comportement ainsi que des mesures finales de l'alimentation. Ces méthodes peuvent être utilisées pour tester le rôle de toute population neuronale accessible génétiquement dans le comportement de piqûre des moustiques et peuvent être étendues à d'autres comportements.
Introduction
Le moustique est l'un des animaux les plus dangereux au monde, non pas en raison de sa férocité ou de sa force, mais en raison de son efficacité en tant que vecteur de maladies. Les parasites responsables du paludisme se transmettent par Anopheles les moustiques sont responsables de centaines de milliers de décès chaque année, tandis que Aedes aegypti et Aedes albopictus sont responsables de la propagation de la fièvre jaune, de la dengue, du chikungunya, de la fièvre Zika et de nombreuses autres maladies mortelles1Les moustiques sont présents sur tous les continents sauf en Antarctique et constituent une préoccupation majeure pour la santé publique.2. Le comportement de prise de sang transmet directement des agents pathogènes, mais il constitue également une étape essentielle du moustique cycle de vie, car un repas sanguin chez un vertébré est nécessaire pour pondre des œufs. La maîtrise de la propagation des maladies transmises par les moustiques nécessite donc une compréhension de leurs mécanismes de recherche d'hôte.
Il est bien établi que les moustiques femelles utilisent des indices à longue et courte distance pour localiser leurs hôtes3,4. Le dioxyde de carbone (CO2) est un gaz très volatil présent dans l'air expiré par l'humain et constitue souvent le premier signal perçu par le moustique. Chez Aedes aegypti, il est détecté par les neurones sensoriels olfactifs grâce aux protéines Gr1, Gr2 et Gr3, qui forment le récepteur du CO25. L'exposition au CO2 déclenche un comportement de décollage et de vol, également appelé activation6,7, qui peut persister jusqu'à 10–15 minutes, même en l'absence de stimuli supplémentaires8. Le CO2 agit de manière synergique avec les odeurs cutanées pour renforcer l'activation et l'attraction5,9. Après la détection du CO2 et des odeurs cutanées, le moustique est préparé à percevoir des indices supplémentaires, plus proches de l'hôte, tels que la chaleur, le contraste visuel et l'humidité, qui le guident vers un atterrissage sur un hôte apte à fournir un repas sanguin5,10,11,12,13. L'intégration de multiples signaux sensoriels permet aux moustiques de poursuivre efficacement et de localiser leur hôte.
Lorsqu'un moustique femelle se pose sur un hôte potentiel, il enfonce son proboscis à la surface jusqu'à ce qu'un fragment de peau soit localisé, un processus appelé sondage14,15. Après le sondage, le stylet transperce la peau, localise un vaisseau sanguin et aspire simultanément du sang tout en injectant de la salive, permettant au moustique de doubler son poids corporel en quelques minutes16. Le sang est dirigé vers l'intestin moyen, où les protéines sont digérées pour la production d'œufs. Curieusement, la gorgée de sang prélevée sur un hôte n'est pas nécessaire à la transmission des agents pathogènes, car le simple sondage peut suffire à propager la maladie16,17. Par conséquent, la compréhension de chaque étape du comportement de piqûre pourrait permettre de développer des stratégies visant à perturber la recherche d'hôte et la piqûre chez les moustiques femelles, et, en définitive, à contrôler la propagation des maladies transmises par les moustiques.
De nombreux outils ont été développés chez les organismes modèles afin de manipuler l'activité neuronale. Les premiers outils fonctionnaient de manière constitutive ou par activation thermique18,19,20,21. Bien qu'utiles, ces réactifs génétiques présentent certains inconvénients. Les outils constitutifs peuvent affecter le développement, entraînant des phénotypes qui ne sont pas uniquement dus à la fonction des circuits des neurones. Les moustiques utilisent la chaleur corporelle pour identifier les vertébrés hôtes, ce qui rend les canaux activés thermiquement particulièrement inadaptés à l'étude de leur comportement22,23. Dans les études comportementales, l'optogénétique désigne l'utilisation d'outils génétiques qui répondent à des longueurs d'onde spécifiques de la lumière afin de contrôler l'activation des neurones d'intérêt. Cette technique a déjà été utilisée dans plusieurs systèmes, allant de l'analyse de la valence de la soif chez la souris à l'étude du comportement de parade chez Drosophila, en passant par la restauration de la perte de vision due à la rétinite pigmentaire dans des essais cliniques chez l'humain24,25,26. Les canaux optogénétiques fonctionnent en absorbant des photons et en permettant à des types spécifiques d'ions de traverser la membrane plasmique, activant ou inhibant ainsi le neurone. En introduisant dans un organisme des gènes transgéniques codant pour des protéines sensibles à la lumière, cette technique permet d'activer ou d'inhiber des neurones spécifiques qui, autrement, seraient impossibles à manipuler. L'optogénétique offre des avantages en matière de contrôle temporel et spatial, ainsi qu'une gamme de témoins permettant des inférences expérimentales.
Les auteurs ont récemment décrit la première utilisation d'outils optogénétiques pour étudier le comportement des moustiques8. Ces outils reposent sur le canal à cations activé par la lumière rouge CsChrimson, un channelrhodopsine décalée vers le rouge27. Les opsines microbiennes, y compris CsChrimson, nécessitent un cofacteur chimique, le rétinal all-trans, afin d'absorber les photons28. CsChrimson est fusionné au rapporteur fluorescent tdTomato et est sous le contrôle du système binaire d'expression QF2/QUAS, ce qui permet de le combiner de manière souple avec différentes lignées conductrices29. Pour cibler les neurones sensoriels du CO2, une lignée conductrice a été utilisée qui exprime le facteur de transcription QF2 dans les neurones exprimant la sous-unité Gr3 du récepteur du CO230. Les moustiques ont montré une réponse comportementale minimale après exposition à la lumière rouge seule8 ; en outre, la lumière rouge pénètre le plus efficacement les tissus biologiques, ce qui rend une opsine activée par la lumière rouge idéale pour l'optogénétique25.
Cet article décrit les protocoles de trois tests permettant de mesurer différents aspects du comportement de recherche d'hôte et de prise de sang combinés à une stimulation optogénétique (Figure 1A). Premièrement, un protocole d'élevage de lignées de moustiques optogénétiques est fourni. La deuxième section décrit l'opto-thermocycleur, un thermocycleur PCR modifié pouvant être utilisé pour suivre l'activation et la prospection lorsque les moustiques sont exposés à des stimuli thermiques et lumineux. Le test par opto-thermocycleur est conçu pour mesurer ces comportements de recherche sur des échelles de temps prolongées, en utilisant des souches conductrices pour contrôler l'activité neuronale par optogénétique. La troisième section décrit le test de la couverture de sang, dans lequel les moustiques ont un accès constant à un repas sanguin artificiel mince placé à la base d'un thermocycleur modifié, permettant de suivre le vol, la prospection et l'engorgement dans différentes conditions de lumière et de température. Le test de la couverture de sang, basé sur l'opto-thermocycleur, offre un moyen de quantifier l'engorgement à partir d'un repas sanguin artificiel, permettant l'étude des comportements alimentaires des moustiques sous des stimuli optogénétiques et thermiques précisément calibrés. La dernière section décrit le distributeur membranaire optogénétique, dans lequel les moustiques reçoivent un repas sanguin chaud contenu dans un récipient, permettant de suivre à la fois l'attraction pour une source de sang et l'engorgement lors d'une exposition à des stimuli lumineux. Le test au distributeur membranaire optogénétique sert à étudier la séquence comportementale complète de recherche d'hôte et de prise de sang dans un système de vol libre. En complément des résultats attendus pour chaque test, des modèles de vision artificielle sont décrits afin de suivre les parties du corps des moustiques et d'identifier les comportements durant les tests. Les tests par opto-thermocycleur, couverture de sang et distributeur membranaire optogénétique permettent de mesurer des stades distincts du comportement de prise de sang chez le moustique tout en manipulant l'activité neuronale à l'aide de la lumière. Ces techniques innovantes permettent d'étudier la manière dont les circuits neuronaux du moustique contrôlent des comportements menaçant la santé publique.
Protocole
Les moustiques utilisés dans ce protocole contiennent des transgènes et doivent, conformément à la réglementation du Département américain de l'agriculture, être élevés dans des installations de confinement des arthropodes de niveau II32. Les moustiques sont maintenus en confinement afin d'en empêcher l'échappement et sont éliminés dans des déchets biologiques dangereux. Les protocoles de biosécurité et de confinement des arthropodes ont été examinés et approuvés par le service Yale Environmental Health & Safety. Ce travail ne fait pas usage de sujets humains ou animaux. Le génotype des moustiques peut être confirmé par des marqueurs fluorescents (3xP3-dsRed pour Gr3-QF2 et 3xP3-CFP pour QUAS-CsChrimson) ou par PCR pour le construct inséré8. Tous les matériaux utilisés dans cette étude sont répertoriés dans le Tableau des matériaux.
1. Élevage optogénétique
- Élever les moustiques selon le protocole standard31, avec les exceptions suivantes afin de maximiser la réponse des lignées optogénétiques pendant l'expérimentation.
- Effectuer des croisements en utilisant les souches homozygotes Gr3-QF2, QUAS-CsChrimson et la souche sauvage de Liverpool afin de produire les lignées hétérozygotes expérimentales Gr3-QF2/+, QUAS-CsChrimson/+ et Gr3>CsChrimson.
- Élever les moustiques à l’intérieur d’un incubateur hermétiquement fermé à la lumière, réglé à 28 °C et 80 % d’humidité, selon un cycle de 14 h de lumière bleue (450 nm) et 10 h d’obscurité (Figure 1B).
NOTE : L’utilisation de lumière bleue minimise l’activation des canaux activés par la lumière rouge, tels que CsChrimson. Toutes les étapes d’élevage réalisées en dehors de l’incubateur doivent être effectuées dans des conditions de faible luminosité. - Commencer les expériences sur des moustiques adultes au plus tôt une semaine après l’émergence.
NOTE : Bien que l’âge idéal pour les expériences comportementales soit de 2 à 3 semaines, des moustiques jusqu’à 4 semaines après l’émergence peuvent être utilisés. Les génotypes témoins et expérimentaux doivent avoir le même âge, noté en jours post-émergence. Pour standardiser l’âge des animaux, tous les œufs doivent être éclos le même jour. - Deux jours avant l’expérimentation, aspirer délicatement les femelles accouplées non alimentées en sang hors des cages et les anesthésier à 4 °C. À l’aide d’une plume ou d’un aspirateur, transférer soigneusement les moustiques vers les récipients expérimentaux selon le type de test utilisé.
- Préparer un aliquot de 0,2 M d’all-trans rétinale (ATR) dans du diméthylsulfoxyde (DMSO), stocké à -20 °C. Fournir une solution de 10 % de saccharose et 400 µM d’ATR via des mèches en coton imbibées placées sur le grillage du récipient. Les animaux peuvent se nourrir de ce mélange pendant 1 à 3 jours dans l’obscurité.
NOTE : L’alimentation dans l’obscurité, par opposition à la lumière bleue, évite le blanchiment de l’ATR (Figure 1B). De plus, à toutes les étapes du protocole, les moustiques ont été anesthésiés par exposition à 4 °C pendant 5 à 10 min, jusqu’à ce qu’ils cessent de bouger. À la fin de chaque expérience, les moustiques ont été euthanasiés par exposition à -20 °C pendant 24 h.
ATTENTION : L’all-trans-rétinale peut provoquer de graves irritations au contact de la peau et des yeux. Porter des équipements de protection individuelle (EPI) appropriés tels qu’une blouse de laboratoire, des gants et une protection oculaire lors de sa manipulation. Le diméthylsulfoxyde est un liquide combustible pouvant être absorbé par la peau au contact et doit être manipulé dans un environnement sec, avec des EPI et une protection oculaire adéquates. Le DMSO doit également être stocké dans des conteneurs ignifuges destinés au stockage de produits chimiques. - Un jour (20 à 24 h) avant l’expérimentation, remplacer les distributeurs de saccharose par de nouveaux contenant de l’eau distillée et 400 µM d’ATR. Les animaux restent dans l’obscurité jusqu’au début de l’expérimentation (Figure 1B). Passer à la section 2, 3 ou 4.
NOTE : Les expériences doivent être réalisées pendant la période photopériodique diurne des moustiques afin de maximiser le taux de réponse.
2. Opto-thermocycleur
- Assemblage des composants du test
- Fabriquer les plaques acryliques destinées à contenir les moustiques (Figure 2). Se référer à Figure 2A pour un schéma, Figure 2B pour les composants électroniques, et Figure 2C pour une image du plaque acrylique Voir les fichiers dans (https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0) pour les modèles.
- Pour créer les parois, découper au laser une plaque acrylique de 3 mm d'épaisseur en quatre rectangles de 10 cm sur 1 cm et six rectangles de 7 cm sur 1 cm. Assembler les rectangles à l'aide de colle acrylique en une matrice de cinq par trois, où chaque unité forme une chambre de 17 mm sur 17 mm sur 10 mm. Le modèle pour ces pièces se trouve dans le fichier «14_animal_thick_v3.ai”.
ATTENTION : La colle acrylique est inflammable et peut provoquer des irritations respiratoires ainsi que des irritations oculaires. Une protection individuelle appropriée doit être utilisée lors de la manipulation de la colle acrylique, telle que des gants, une blouse de laboratoire et des lunettes de protection. Ce solvant doit être utilisé dans un endroit bien ventilé et à l'écart de toute flamme nue. - Pour le fond de la chambre, découper une feuille d'acrylique de 1,5 mm d'épaisseur en un rectangle de 6,985 cm sur 10,16 cm, en retirant le puits inférieur droit. Découper une autre feuille d'acrylique de 1,5 mm d'épaisseur en un rectangle de 6,985 cm sur 10,16 cm pour le couvercle. Le gabarit pour ces pièces est «14_animal_thin_v3.ai”.
- Pour créer les parois, découper au laser une plaque acrylique de 3 mm d'épaisseur en quatre rectangles de 10 cm sur 1 cm et six rectangles de 7 cm sur 1 cm. Assembler les rectangles à l'aide de colle acrylique en une matrice de cinq par trois, où chaque unité forme une chambre de 17 mm sur 17 mm sur 10 mm. Le modèle pour ces pièces se trouve dans le fichier «14_animal_thick_v3.ai”.
- Découper une feuille de treillis noir résistant aux UV à la même taille que la pièce acrylique inférieure (Figure 2C). Placez le maillage entre les parois de la plaque et la pièce inférieure, puis fixez-les en place à l’aide d’une colle acrylique. Retirez le maillage du puits en bas à droite afin que le trou soit dégagé.
- Fabriquer les plaques acryliques destinées à contenir les moustiques (Figure 2). Se référer à Figure 2A pour un schéma, Figure 2B pour les composants électroniques, et Figure 2C pour une image du plaque acrylique Voir les fichiers dans (https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0) pour les modèles.
- Construire un cadre qui maintiendra la caméra et les DEL (Figure 2A).
- Construire un cadre avec quatre piliers situés à chaque coin du thermocycleur en utilisant des profilés carrés optiques de 60,96 cm et 25 mm. Utiliser deux profilés de construction de 22,86 cm et 25 mm pour relier le pilier avant droit au pilier arrière droit et le pilier avant gauche au pilier arrière gauche, à 30 cm du plan de travail.
- Relier les piliers droit et gauche à l'avant avec une rail de construction de 30,48 cm et 25 mm, surélevé de 24 cm au-dessus du plan de travail, et à l'arrière avec un rail de construction de 30,48 cm et 25 mm, surélevé de 42 cm au-dessus du plan de travail.
- Fixer des tiges optiques d'une longueur d'un pied sur les rails de construction situés sur les côtés gauche et droit du cadre. Relier six DEL de 627 nm (rouges) connectées en série à 24 cm au-dessus du bloc PCR du thermocycleur à chacune des tiges.
REMARQUE : Bien que la longueur d'onde de la lumière produisant une activité maximale de CsChrimson soit d'environ 590 nm, des longueurs d'onde proches de 625 nm permettent de concilier l'activation de CsChrimson et l'évitement de réponses comportementales à la lumière chez les témoins génétiques.27. Fixer un dissipateur thermique et une lentille sur chaque LED afin de concentrer la lumière vers le bloc du thermocycleur. - Fixer un support optique de 30,48 cm au sommet des deux piliers avant du rail de construction. Utiliser une pince en angle droit au milieu du support optique pour fixer un support optique de 15,24 cm orienté vers l'intérieur, au-dessus du bloc du thermocycleur. Fixer une caméra équipée d'un filtre passe-haut infrarouge à l'extrémité, orientée vers le bas, à 40 cm au-dessus du bloc.
- À l’aide de poteaux optiques, créer un cadre qui s’étend à partir du rail de construction en formant un rectangle autour du bloc PCR, surélevé juste au-dessus de la surface. Fixer une bande de DEL infrarouges, orientée vers le bloc PCR, afin d’illuminer les moustiques perpendiculairement à la caméra.
REMARQUE : L'illumination infrarouge utilisée pour l'imagerie vidéo ne chauffe pas de manière mesurable l'arène, puisque la surface du thermocycleur est maintenue à 24 °C tout au long de l'expérience. - Placer un rideau occultant sur la structure afin d'éviter les interférences dues à la lumière ambiante.
- Recouvrir la surface et les côtés du bloc PCR d'une seule couche de ruban opaque afin de créer une surface plane et uniforme à fond sombre.
- Placer le capteur de thermocouple sur le bloc PCR dans le coin inférieur droit et le fixer avec du ruban opaque. Vérifier une distribution uniforme de la lumière sur le bloc PCR à l'aide d'un wattmètre. Régler la tension ou le courant de l'alimentation électrique afin d'obtenir un éclairement de 12 µW/mm2.
- Sur le bord du bloc PCR, placez une DEL infrarouge afin de synchroniser la vidéo avec le signal de sortie du stimulus (Figure 2C). Recouvrir la surface avec du ruban adhésif noir afin de permettre la détection de la lumière sans créer de reflets sur la caméra.
- Connecter le thermocouple, la LED de synchronisation et les LED de lumière rouge selon le schéma indiqué dans Figure 2B. Télécharger les logiciels requis (SpinView (version 1.27.0.48), CoolTerm (version 2.0.1), Arduino IDE (version 1.8.12)). Télécharger le code Arduino et le programme du thermocycleur depuis le dépôt GitHub.
REMARQUE : Le code Arduino est programmé pour délivrer une lumière rouge, une chaleur à température corporelle, ainsi que la combinaison de ces deux stimuli. Sept programmes de stimulation, dont l'ordre des stimuli est randomisé, sont fournis en ressources. Ces programmes peuvent être modifiés pour délivrer différents stimuli. Chaque expérience comprend neuf stimuli : trois stimuli de chaleur uniquement, trois stimuli de lumière uniquement, et trois stimuli combinant chaleur et lumière simultanément. La délivrance des stimuli fonctionne par détection, par l'Arduino, des variations de température de surface du bloc PCR via le thermocouple, puis déclenche les stimuli lumineux aux moments précisés. Des détails supplémentaires sont disponibles dans les commentaires inclus dans les programmes de stimulation.
- Préparation de l'essai
- Élever les moustiques selon le protocole d'élevage optogénétique ; voir la section 1 et Figure 1B.
- Deux jours avant l'expérience, transférer 14 moustiques femelles à l'aide d'un aspirateur vers un récipient séparé. Fournir de l'ATR aux moustiques conformément à l'étape 1.6. Si plusieurs génotypes sont comparés, les rendre indiscernables à l'expérimentateur.
REMARQUE : Une fois que les moustiques ont reçu l'ATR, ils doivent être manipulés à la lumière tamisée. - Un jour avant l'expérience (20–24 h), aspirez 14 moustiques femelles par plaque en acrylique et anesthésiez-les à 4 °C. Placer soigneusement un moustique à la fois dans chaque puits à l’aide d’une plume ou d’un aspirateur.
- Fixez le côté de la plaque en acrylique avec du ruban adhésif transparent pour maintenir le couvercle en place. Ne repliez pas le ruban sur le dessus ou le dessous de la plaque en acrylique, car cela obstruerait la vue de la caméra.
- Placer la plaque en acrylique sur trois mèches en coton imprégnées de 400 µM ATR dans de l'eau distillée (voir étape 1.6), placé en parallèle. Aligner chacun des trois ajouter des rangées à une mèche afin que tous les moustiques aient accès à la solution d'eau-ATR. Placer la plaque acrylique dans un incubateur sombre pendant la nuit.
- Exécuter l'essai
- Connectez la caméra, les DEL et l'Arduino à l'ordinateur. Mettez l'alimentation sous tension. Nettoyez la surface de l'optothermocycleur avec de l'éthanol à 70 % et laissez sécher.
ATTENTION : L'éthanol est inflammable et peut provoquer une irritation oculaire grave. Il convient de porter des équipements de protection individuelle adaptés lors de la manipulation de l'éthanol. En outre, éviter toute flamme nue. - À l’aide d’un récipient opaque, transférez la plaque acrylique contenant les moustiques au centre du bloc PCR. Recouvrez l’opto-thermocycleur d’un rideau occultant.
- Ouvrir SpinView sur l'ordinateur. Cliquer sur le nom de la caméra pour ouvrir la vue caméra. Brancher les lampes infrarouges et s'assurer que le bloc PCR et la plaque en acrylique sont visibles dans la vue caméra.
- Si nécessaire, ajuster la plaque en acrylique de manière à ce qu'elle soit alignée, centrée, et que le thermocouple soit visible dans le coin inférieur droit de la plaque en acrylique. S'assurer que la lumière de synchronisation est bien dans le champFigure 2C).
- Ajustez les paramètres de la caméra et de SpinView afin d'obtenir une vidéo nette et recadrée montrant la plaque en acrylique. Dans le Format d'image onglet, régler le Largeur, Hauteur, Décalage X, et Décalage Y options permettant de s'assurer que la plaque en acrylique et la lumière de synchronisation sont visibles. Dans le Paramètres onglet, ensemble Fréquence d'acquisition des images Activer à vrai et Fréquence d'acquisition des images à 30 ips.
- Tourner Exposition automatique et Gain Auto arrêter. Ajuster le Temps d'exposition et Gain des valeurs permettant de créer un contraste net entre le fond noir et les moustiques. Cliquez sur le bouton d'enregistrement rouge situé dans le coin supérieur droit pour ouvrir une fenêtre distincte afin d'enregistrer le fichier vidéo.
- Dans la fenêtre contextuelle, définir le chemin du fichier en haut : cliquer Parcourir, accédez au dossier expérimental, cliquez Nouveau dossieret étiquetez-le avec le nom de l'essai. Réglez le nombre d'images à enregistrer sur la valeur appropriée pour l'expérience (par exemple, 43 500) ou sur 0 pour arrêter manuellement l'enregistrement.
- Dans l'onglet Vidéos, définir les champs suivantsType d'enregistrement vidéo : MJPG, Taille de fractionnement du fichier vidéo : 1000 Mo, Qualité de compression JPEG : 65. Ouvrir le «optothermo_lightheat_aléatoire1’ sur le thermocycleur et lancez-le. Le thermocycleur doit commencer par une étape de maintien à 25 °C.
- Ouvrir le programme correspondant, «TC_optothermo_lightheat_random1.ino’, sur l’IDE Arduino, et téléversez-le sur la carte. Ouvrez le moniteur série et vérifiez que la température est d’environ 25 °C.
- Fermer le moniteur série dans l'IDE Arduino. Ouvrir CoolTerm pour commencer à acquérir la sortie du moniteur série Arduino. Vérifier que le port série et le canal correspondent à ceux de l'IDE Arduino. La sortie apparaît alors dans la fenêtre de CoolTerm.
- Commencez l'enregistrement de la sortie Arduino dans un fichier Texte/Binaire. Démarrez l'enregistrement vidéo sur Spinview. Cliquez Résumé pour mettre fin à la pause du thermocycleur. Surveillez la sortie Arduino dans CoolTerm pour vérifier si la température descend à 18 °C et le compteur de stimulations augmente à 1, lançant ainsi l'essai. Laissez le test se dérouler jusqu'à la fin de l'essai.
- Connectez la caméra, les DEL et l'Arduino à l'ordinateur. Mettez l'alimentation sous tension. Nettoyez la surface de l'optothermocycleur avec de l'éthanol à 70 % et laissez sécher.
- Nettoyer
- Arrêter l'enregistrement vidéo et l'acquisition des données de sortie de CoolTerm. Fermer les deux programmes. Mettre fin au programme du thermocycleur. Retirer la plaque en acrylique contenant les moustiques du thermocycleur et la placer à -20 °C °C pendant une nuit pour euthanasier les moustiques.
ATTENTION : Lors de l'euthanasie de moustiques transgéniques, veiller à ce qu'ils restent à -20 °environnement C pendant au moins 24 h avant de les jeter dans une poubelle de danger biologique afin de s'assurer de leur mort. - Si l'on commence un autre essai, répéter la section 2.3. Débrancher les câbles de la caméra et d'Arduino. Éteindre l'alimentation électrique. Débrancher les DEL infrarouges. Nettoyer les plaques acryliques en enlevant le ruban adhésif et en éliminant les moustiques morts.
- Pulvériser le couvercle et la plaque acrylique avec de l'éthanol à 70 % et essuyer soigneusement avec un doigt ganté toutes les parois des puits et du maillage. Rincer abondamment à l'eau désionisée, puis empiler les plaques acryliques pour le stockage, en séparant les couvercles par une serviette en papier afin d'éviter les rayures.
- Arrêter l'enregistrement vidéo et l'acquisition des données de sortie de CoolTerm. Fermer les deux programmes. Mettre fin au programme du thermocycleur. Retirer la plaque en acrylique contenant les moustiques du thermocycleur et la placer à -20 °C °C pendant une nuit pour euthanasier les moustiques.
3. Test du drap sanguin
- Assemblage des composants du test (Figure 3)
- Construire le test opto-thermocycleur comme décrit à la section 2.1. Se référer aux figures pour le test (Figure 3A), le stimulus thermique (Figure 3B) et la plaque en aluminium (Figure 3C).
- Construire une plaque chauffante en aluminium pour l’alimentation en sang comme illustré à la Figure 3C.
- À l’aide d’une découpeuse laser ou d’une découpeuse à jet d’eau, fabriquer le dessus et le dessous de la plaque. Fabriquer le dessous de la plaque en découpant une feuille d’aluminium de 0,8 mm d’épaisseur à 90 mm par 134 mm. Fabriquer le dessus en découpant une feuille d’aluminium de 1,6 mm d’épaisseur à 90 mm par 134 mm. Découper 15 trous rectangulaires (17,2 mm par 18,6 mm) dans la plaque supérieure. Les fichiers modèles sont disponibles dans le dépôt GitHub blood blanket (https://github.com/sorrellslab/bloodblanket) sous « Modèles de plaque en aluminium ».
- Placer entre les pièces en aluminium un joint en silicone fin (0,5 mm d’épaisseur) afin d’éviter les fuites. Découper le joint au laser pour qu’il corresponde à la forme de la plaque supérieure en aluminium.
- Assembler les couches à l’aide de huit boulons hexagonaux standard 4–40 de 0,47625 cm à tête bombée. Utiliser un taraud pour créer des filetages destinés aux boulons dans les pièces métalliques. Fixer ces boulons à l’aide de rondelles plates et rondelles en « W » au bas de la plaque afin d’assurer une fixation plus solide lorsqu’elle est posée sur le bloc du thermocycleur.
- Télécharger le code Arduino et le programme du thermocycleur pour le test blood blanket depuis le dépôt GitHub (https://github.com/sorrellslab/bloodblanket).
- Préparer des aliquotes d’ATP à 20 mM dans du NaHCO3 à 25 mM et conserver à -20 ˚C jusqu’à utilisation.
REMARQUE : Préparer une solution fraîche d’ATP tous les six mois. Éviter les cycles répétés de congélation-décongélation. Préparer du NaHCO3 à 1 M et du NaCl à 5 M (conserver chacun à température ambiante). Le NaHCO3 en solution n’est stable que 7 jours.
- Préparation de l’expérience
- Élever les moustiques et les transférer dans des plaques acryliques comme décrit aux sections 1 et 2.2. Si des comparaisons doivent être effectuées entre différents génotypes, les rendre aveugles pour l’expérimentateur.
- Le jour de l’expérience, préparer un repas sanguin artificiel minimal de 10 mL (110 mM NaCl, 20 mM NaHCO3 et 1,5 mM ATP) en ajoutant 750 µL d’ATP à 20 mM, 220 µL de NaCl à 5 M et 200 µL de NaHCO3 à 1 M aux solutions mères dans 8,83 mL d’eau déionisée. Mélanger soigneusement par retournements successifs.
REMARQUE : Préparer le repas sanguin artificiel frais avant chaque expérience. - Configurer l’enregistrement SpinView selon les étapes 2.3.4 à 2.3.8.
- Ouvrir le fichier Arduino « Red-light-Only__BB_.ino » (ou le fichier de stimulus souhaité) pour l’expérience.
- Réalisation des essais
- Prélever 650 µL du repas sanguin artificiel minimal dans chaque puits de la plaque, en veillant à ce que le repas remplisse entièrement chaque puits sans débordement.
- Tendre un carré de parafilm de 10,2 cm sur 10,2 cm sur un anneau de 20,3 cm de diamètre. Placer le parafilm sur la plaque, en appuyant sur les bords jusqu’à ce qu’il adhère. À l’aide d’un scalpel, découper une bordure de 1,3 cm autour de la plaque et replier l’excédent de parafilm dessous pour sceller le repas.
- Placer la plaque directement sur le bloc PCR pour permettre un transfert thermique maximal (Figure 3A).
REMARQUE : Du ruban opaque est utilisé sur la surface du bloc PCR pour l’opto-thermocycleur, mais pas pour le blood blanket. - Placer la sonde thermocouple sur la surface du parafilm, dans le coin inférieur droit de la plaque en aluminium. Connecter la caméra, les LED et l’Arduino à l’ordinateur. Allumer l’alimentation électrique. Démarrer le programme « BB_thermocycler_program.x50prog » sur le thermocycleur.
REMARQUE : La vitesse de variation de température correspond à la vitesse maximale de rampe du thermocycleur, choisie pour imiter au mieux l’atterrissage d’un moustique sur un hôte pour s’alimenter. - À l’aide d’un récipient sombre et avec un éclairage tamisé afin de minimiser l’exposition à la lumière, transférer la plaque acrylique contenant les moustiques sur la plaque en aluminium, en veillant à aligner chaque puits avec les moustiques. S’assurer que la sonde thermocouple se trouve dans le coin inférieur droit de la plaque et qu’elle est en contact avec le parafilm pour mesurer la température du repas sanguin artificiel.
- Démarrer le programme en re-téléversant le programme « Red-light-Only__BB_.ino » dans l’IDE Arduino. Fermer le moniteur série. Dans CoolTerm, appuyer sur Connect pour afficher la température actuelle. À partir de cette température initiale, régler la température de déclenchement dans le script Arduino à environ 0,6 °C en dessous.
- Dans la fenêtre CoolTerm, sélectionner Capture to Text/Binary File et démarrer la collecte de données. Démarrer l’enregistrement vidéo dans la fenêtre d’enregistrement de SpinView. Cliquer sur Resume pour mettre fin à la phase de maintien du thermocycleur. Observer la sortie Arduino dans CoolTerm pour s’assurer que la baisse de température a été détectée et que l’essai a commencé.
- À la fin de la durée de l’essai, cliquer sur Stop Recording. Dans CoolTerm, dans l’onglet Capture to Text/Binary File, sélectionner Stop pour arrêter l’écriture de la sortie série.
- Retirer la plaque de moustiques de la plaque blood blanket et les transférer dans la chambre froide pour les anesthésier. Compter le nombre de moustiques ayant un abdomen élargi contenant le repas sanguin artificiel comme étant gorgés, y compris ceux ayant partiellement mangé.
- Entre chaque essai, nettoyer la surface du bloc PCR en essuyant avec un Kimwipe humidifié à 70 % d’éthanol. Retirer le parafilm et rincer la plaque en aluminium avec de l’eau déionisée. Répéter la section 3.3 pour les essais suivants. Faire varier l’ordre des essais d’un jour à l’autre afin de minimiser l’effet des cycles d’activité circadiens.
- Nettoyage
- Arrêter tous les programmes en cours d’enregistrement et quitter. Débrancher les câbles USB de la caméra, de l’Arduino et des lampes infrarouges. Éteindre l’ordinateur. Arrêter le programme « thermocycler_program.x50prog » en cours d’exécution sur le thermocycleur.
- Placer les plaques de moustiques dans un congélateur à -20 °C pendant la nuit pour tuer les moustiques. Laver la plaque en aluminium avec de l’eau déionisée. Rincer la plaque acrylique avec de l’éthanol à 70 %, puis rincer à l’eau déionisée et la laisser sécher toute la nuit avant d’y placer d’autres moustiques.
REMARQUE : Les plaques doivent être séchées toute la nuit après lavage afin de s’assurer qu’aucune humidité ne subsiste. En cas d’humidité résiduelle, de la condensation se formera sur le couvercle et perturbera l’enregistrement vidéo.
4. Essai de nourrisseur opto-membranaire
- Assemblage des composants du test (Figure 4)
- Assemblez un cadre à l’aide de composants optomécaniques et d’une plateforme acrylique noire de 30,48 cm sur 30,48 cm d’épaisseur 0,635 cm. Créez un trou au centre de l’acrylique d’un diamètre de 11,43 cm à l’aide d’un découpeur laser. Découpez des trous à 2,54 cm de chaque coin afin que l’acrylique repose sur les supports du cadre, à environ 23,495 cm au-dessus de la base.
- Au centre, fixez un anneau acrylique noir de 19,05 cm de diamètre intérieur et de 20,32 cm de diamètre extérieur (Figure 4A). Les modèles de tous les composants acryliques se trouvent dans le dépôt GitHub du dispositif opto-membrane (https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0), accompagnés des programmes Arduino. Consultez la figure pour la configuration générale (Figure 4A), le stimulus (Figure 4B), le schéma du circuit (Figure 4C) et une image fixe de la vidéo (Figure 4D).
REMARQUE : Les matériaux spécifiques utilisés pour assembler cette plateforme ne sont pas critiques ; des options plus économiques peuvent être disponibles. - Placez une caméra équipée d’un filtre passe-haut infrarouge sous le trou central, orientée vers le haut en direction du récipient à moustiques. Réglez l’ouverture sur la position entièrement ouverte, afin de focaliser sélectivement sur le dessus en treillis du récipient (Figure 4A).
- Pour fabriquer les récipients, découpez un tube en polycarbonate transparent de diamètre 11,43 cm en segments cylindriques de 12,7 cm.
- Construisez les fonds des récipients en découpant au laser des cercles de 11,43 cm de diamètre dans de l’acrylique d’épaisseur 0,3175 cm. Les bords des cercles sont gravés au laser afin d’être encastrés dans le tube. Fixez-les aux tubes avec de l’époxy plastique.
- Créez un couvercle encastré à l’aide d’acrylique noir de 0,635 cm et 0,3175 cm d’épaisseur et d’un treillis noir résistant aux UV. L’anneau intérieur a un diamètre de 10,795 cm, tandis que l’anneau extérieur a un diamètre de 12,065 cm, le treillis noir étant tendu sur l’anneau plus petit. Le treillis doit être cousu à travers des trous découpés au laser à l’aide de fil ciré.
REMARQUE : Les récipients doivent toujours être placés sur des essuie-tout afin d’éviter de rayer les fonds acryliques à travers lesquels la vidéo est enregistrée.
- Construisez des récipients acryliques pour la distribution du repas sanguin (Figure 4A).
- Découpez un anneau de 5,08 cm de diamètre intérieur et de 6,6 cm de diamètre extérieur dans de l’acrylique transparent de 0,15875 cm d’épaisseur. Fixez-le à un autre anneau transparent de diamètre intérieur 5,842 cm et de diamètre extérieur 6,604 cm à l’aide de colle acrylique.
- Placez un cylindre en treillis métallique de 13,97 cm de hauteur et de 19,05 cm de diamètre à l’intérieur de l’anneau acrylique noir, au centre de la plateforme.
- À l’intérieur du treillis métallique, fixez une spirale de bandes lumineuses RVB espacées de 3,81 cm de l’extérieur du récipient, qui seront contrôlées par une carte Arduino Uno reposant sur la plateforme acrylique noire (Figure 4C).
- À l’aide d’un luxmètre, mesurez l’intensité lumineuse à l’intérieur du cylindre et ajustez la position des lumières afin que l’arène soit éclairée entre 3,5 et 6 µW/mm2. À l’extérieur du treillis métallique, fixez un anneau de LED infrarouges de 850 nm au cadre à l’aide de colliers, orientés vers l’intérieur.
- Branchez un câble USB dans la carte Arduino Uno et connectez-la à l’ordinateur. Branchez un câble USB de la caméra à l’ordinateur. Désactivez la connexion Internet.
- Placez la structure opto-membrane dans un incubateur sombre ou une chambre environnementale à 26 °C et 80 % d’humidité relative pendant toute la durée des expériences.
- Préparation des récipients à moustiques
- Avant l’expérience, nettoyez les récipients à moustiques en vaporisant de l’éthanol à 70 % et en essuyant doucement avec une éponge souple. Rincez les récipients à l’eau déionisée et laissez-les sécher à l’air toute la nuit.
- Deux jours avant l’expérience, triez les moustiques mâles et femelles sous anesthésie froide et placez 20 femelles dans chaque récipient. Fournissez un accès à l’ATR selon l’étape 1.6.
- À ce stade, les génotypes doivent être masqués à l’expérimentateur. L’ordre des essais doit être alterné entre les jours afin de minimiser les différences de comportement dues au moment de l’expérience.
- Réalisation des essais
- Pour préparer le repas sanguin, placez des flacons de 119 mL d’eau dans un bain-marie à 45 °C, un par essai. Ce volume et cette température maintiennent le repas sanguin proche de la température corporelle tout au long de l’expérience.
- Préparez des aliquotes de 5 mL de sang de mouton défibriné. Conservez-les à 4 °C et retournez-les avant utilisation pour éviter la séparation. Préparez le repas sanguin frais avant chaque expérience.
ATTENTION : Manipulez le sang de mouton défibriné en portant des EPI appropriés afin de minimiser l’exposition aux agents pathogènes. Les matériaux réutilisables ayant été en contact avec le sang doivent être trempés dans une solution d’eau de Javel à 10 %, puis rincés à l’eau DI. Comme l’eau de Javel peut provoquer de graves irritations cutanées et oculaires, des EPI appropriés doivent être portés tout au long de la manipulation. - Placez la première aliquote de sang dans un bain-marie à 45 °C pendant au moins 20 min avant l’essai. Faites décongeler l’ATP sur glace. Tendez un carré de parafilm de 5,08 cm sur 5,08 cm sur le couvercle acrylique du côté du cercle plat plus grand, afin de créer un réservoir pour le repas sanguin (Figure 4A).
- Nettoyez l’ordinateur avec de l’éthanol à 70 % pour éliminer les odeurs humaines. Connectez l’ordinateur à un disque dur externe. Connectez la caméra et l’Arduino. Branchez les lumières RVB et infrarouges à une source d’alimentation.
- Ouvrez le logiciel SpinView et le fichier Arduino correspondant au stimulus approprié. Créez un dossier sur le disque dur externe pour stocker les données de l’expérience. Téléversez le fichier Arduino « blue_only.io » pour fournir une lumière bleue faible de 471 nm provenant des LED RVB à l’arène (selon Figure 4B).
- Sans exposer les moustiques à un excès de CO2 provenant de l’haleine, examinez le récipient concerné par l’essai et notez tout décès avant l’expérience. Placez le récipient au centre et laissez-le s’acclimater sous lumière bleue faible pendant 10 à 20 min avant l’exposition au stimulus.
REMARQUE : L’étape d’acclimatation et l’expérience sont réalisées sous lumière bleue faible car l’obscurité totale inhibe le vol des moustiques. - Activez l’enregistrement vidéo
- Dans le programme SpinView, sélectionnez la caméra. Dans l’onglet Paramètres, ajustez l’exposition et le gain selon les besoins pour maintenir un fort contraste entre les insectes clairs et le fond sombre (Figure 4D).
- Cliquez sur le bouton d’enregistrement rouge dans la barre supérieure pour régler les paramètres d’enregistrement vidéo. Définissez le chemin du fichier en cliquant sur Parcourir, puis accédez au disque dur externe. Créez un nouveau dossier avec un nom descriptif pour chaque essai. N’incluez pas d’espaces dans le nom du dossier.
- Dans l’onglet Options d’enregistrement, sélectionnez Capturer 0 images, ce qui permettra à la vidéo de s’enregistrer jusqu’à l’arrêt manuel. Sous Mode d’enregistrement, sélectionnez Mise en mémoire tampon. Dans l’onglet Vidéos, définissez les champs suivants : Type d’enregistrement vidéo : MJPG, Taille de fractionnement du fichier vidéo : 1000 Mo, et Qualité de compression JPEG : 65.
- Juste avant l’exposition au stimulus, pipetez 500 µL d’ATP 20 mM, pour une concentration finale de 2 mM ATP, dans l’aliquote de sang de 5 mL préparée. Retournez le tube plusieurs fois pour mélanger.
- Versez la solution ATP-sang dans le récipient du repas sanguin. Au-dessus du repas sanguin, placez un flacon de 119 mL retourné rempli d’eau à 45 °C afin de maintenir la température du sang proche de la température corporelle humaine tout au long de l’expérience.
- Dans le logiciel SpinView, sélectionnez Démarrer l’enregistrement. Sans stimuler les moustiques avec votre haleine, placez le repas sanguin sur le couvercle en treillis du récipient afin que les moustiques puissent percer la membrane de parafilm à travers le treillis.
- Téléversez le programme Arduino pour « 1sON_10sOFF.io » (Figure 4B), ou le stimulus souhaité. Cela délivrera 1 s de lumière rouge à 624 nm toutes les 10 s, jusqu’à ce que le fichier « blue_only.io » soit téléversé manuellement. La longueur d’onde de 624 nm est suffisante pour activer optogénétiquement CsChrimson.
- Placez l’aliquote de sang dans le bain-marie pour l’essai suivant. Après 15 min d’essai, sélectionnez Arrêter l’enregistrement. Téléversez le fichier « blue_only.io » pour interrompre le stimulus lumineux rouge.
- Retirez le support du repas sanguin et la bouteille d’eau. Retirez le récipient et anesthésiez les moustiques à 4 °C. Pour effectuer des essais supplémentaires, revenez à la section 4.3. Examinez visuellement les moustiques anesthésiés pour déterminer et noter le nombre ayant ingéré du sang en recherchant un abdomen rempli de sang.
- Nettoyage
- Fermez tous les programmes. Éjectez le disque dur externe et déconnectez-le de l’ordinateur. Éteignez l’ordinateur.
- Nettoyez les récipients à moustiques comme décrit précédemment à l’étape 4.2.1. Nettoyez les supports acryliques pour repas sanguin. Remplissez un bac en polycarbonate de moitié d’eau au deux tiers, puis ajoutez 100 mL d’eau de Javel.
- Ajoutez les supports acryliques pour repas sanguin et les bouteilles en plastique dans le bac. Couvrez avec un couvercle et laissez tremper pendant 10 min. Rincez l’eau de Javel et retirez le parafilm. Frottez doucement et rincez pour éliminer tout résidu de sang.
5. Analyse du comportement
- Préparer les vidéos pour l'analyse en les compressant au format .mp4 à l'aide de ffmpeg (version 8.0.1). Si les fichiers vidéo sont divisés, les fusionner en une seule vidéo à l'aide de tout logiciel de montage vidéo. Ouvrir les vidéos d'entraînement dans SLEAP (version 1.4.1) en niveaux de gris.
REMARQUE : Si les paramètres d'enregistrement vidéo sont appropriés, tout doit être visible dans le cadre et les moustiques en mouvement ne doivent pas être flous. D'autres logiciels de suivi des parties du corps peuvent être utilisés. La version de SLEAP utilisée dans cet article est la 1.4.1. Se référer à la documentation de SLEAP pour les protocoles les plus récents. - Créer un squelette qui étiquette les parties pertinentes des animaux en fonction des comportements évalués (Figure 2D, Figure 3D, et Figure 4E).
- Utilisation de la «Cadre aléatoire» option sous le Cadre suggéré onglet, sélectionnez aléatoirement 10 images et étiquetez chaque moustique comme une instance. Si certaines parties du moustique sont obstruées (par exemple, l'extrémité du rostre est insérée dans la maille lors du sondage), indiquez l'emplacement approximatif de la partie corporelle. Entraînez un modèle sur les images étiquetées avec ces paramètres
- Pour un modèle multi-animal en approche descendante (utilisé pour le modèle d'opto-thermocycleur et de couverture thermique sanguine) : Dans le Pipeline d'entraînement onglet, défini Nombre maximal d'instances à 14. Dans l'onglet Configuration du modèle de centroïde, définir Taille du recadrage à Auto, et régler Plateau Min. Delta à 1e-04, définir Plaque de patience à 10, définir Pas à 8, et le Pièce d'ancrage comme thorax.
- Pour un modèle multi-animé de type Bottom-Up (utilisé pour le distributeur Opto-membrane) : Dans le Pipeline d'entraînement onglet, définir Nombre maximal d'instances à aucun maximum. Dans l'onglet Configuration du modèle Bottom-Up, définir Taille de la zone recadrée à Auto, et régler Plateau Min. Delta à 1e-04, définir Plateau de patience à 10, et régler Pas à 16.
- Prédire sur un nombre défini d'images avec ces paramètres : dans l'onglet Pipeline d'inférence, pour l'opto-thermocycleur et la couverture sanguine, régler Nombre maximal d'instances à 14, Tracker à Simple, Nombre maximal de pistes à 14, et Connecter les ruptures de piste unique à Vrai.
- Pour l'alimenteur opto-membrane, régler Aucun Max pour Nombre maximal d'instances et Nombre maximal de pistes, Tracker à Simple, et Connecter les cassures simples des brins à Vrai. Corriger les cadres prédits et réentraîner. Répéter plusieurs cycles de prédiction, d'annotation et d'entraînement sur l'ensemble de données d'entraînement.
REMARQUE : La validation a été effectuée en vérifiant aléatoirement des images étiquetées afin d'identifier des erreurs récurrentes (par exemple, détections erronées de moustiques, prédictions en double, orientation incorrecte ou attribution erronée des parties du corps), en se concentrant sur les images contenant ces cas limites. Jusqu'à 150 images étiquetées peuvent être nécessaires, selon la fréquence des erreurs. SLEAP fournit également des métriques d'évaluation basées sur une interface graphique pour une validation supplémentaire du modèle. Une fois que l'inspection visuelle confirme une précision et une exactitude suffisantes, appliquez le modèle à des vidéos expérimentales et exportez les résultats au format .csv ou .h5 pour l'analyse du comportement. Des classificateurs de comportement peuvent ensuite être entraînés à l'aide des sorties de l'estimation de la posture, comme décrit précédemment.8. Les comportements sont définis comme suit : marche, déplacement corporel translationnel accompagné d'un mouvement des pattes ; vol, déplacement translationnel rapide avec les ailes déployées ; toilette, mouvements répétitifs des pattes sur différentes parties du corps (antennes, proboscis, ailes ou pattes) ; et exploration, insertion du proboscis à travers la maille située au fond du récipient. Les classificateurs de comportement doivent atteindre >Précision de 90 % par rapport aux annotations humaines. - Effectuer l'analyse statistique en choisissant des tests non paramétriques, car les données ne suivent généralement pas une distribution normale. Réaliser les tests post-hoc appropriés avec correction pour comparaisons multiples. Pour les données d'engorgement, les réplicats expérimentaux correspondent à des groupes de moustiques, tandis que pour les données comportementales, les réplicats correspondent à des moustiques individuels.
Résultats
Trois tests comportementaux ont été utilisés pour observer les comportements de recherche d'hôte et de prise de sang chez les moustiques, comme illustré dans la figure 1A. Les moustiques ont été élevés selon un cycle lumière bleue-obscurité (14:10 LD ; figure 1B) afin de synchroniser leurs rythmes circadiens, permettant ainsi de réaliser les expériences pendant les périodes d'éveil. Deux jours avant les expériences, les moustiques ont été transférés en obscurité totale et ont reçu le cofacteur d'opsine ATR. Si les moustiques ne sont pas synchronisés ou n'ont pas reçu d'ATR, ils présenteront une faible activité dans les tests comportementaux. Les génotypes utilisés pour chaque test étaient Gr3>CsChrimson ainsi que deux témoins génétiques : la lignée conductrice Gr3-QF2 et la lignée effectrice QUAS-CsChrimson.
L'essai avec le thermocycleur optique (section 2) permet d'évaluer le comportement d'excitation et de sondage des moustiques sur de longues périodes en réponse à des stimuli thermiques et lumineux. L'apport de chaleur imite l'approche du moustique d'un hôte à sang chaud, tandis que l'application lumineuse de 5 secondes imite une longue expiration du souffle.33. L'utilisation d'un thermocycleur permet un chauffage et un refroidissement rapides de la surface, synchronisés avec l'activation optogénétique au moyen d'un thermocouple et d'un microcontrôleur (Figure 2A, B). Les trois génotypes de moustiques ont été placés dans des plaques acryliques comportant des puits isolés munis de fonds en treillis, où ils manifestent des comportements de marche, de vol et de piqûre (Figure 2C). La position des parties du corps du moustique a été détectée à l'aide d'algorithmes de suivi de posture, tels que SLEAP34 et DeepLabCUT35 (Figure 2D, E). Des algorithmes de classification du comportement peuvent être utilisés à partir du suivi de la posture (par exemple, SimBA36, A-SOiD37) ou de la vidéo (par exemple, FERAL38) entrée. Figure 2E montre les annotations SLEAP pendant le vol, la marche et la prospection, comportements essentiels liés à la recherche d'hôte et à l'alimentation. Ces comportements peuvent être classifiés selon la vitesse du thorax et la distance entre la base et l'extrémité de la proboscis. Ici, les résultats du suivi comportemental obtenus à l'aide de APT et JAABA sont présentés39Les moustiques ont été exposés soit à une augmentation de température, soit à un stimulus lumineux, soit à la fois à une augmentation de température et à un stimulus lumineux simultanément, puis à une pause de 20 min avant le stimulus suivant.8. (Figure 2F). Lorsqu'elles sont exposées à la chaleur, les trois génotypes présentent une courte période de sondage (Figure 2G). Importamment, lorsqu'ils sont exposés à un stimulus lumineux de 5 secondes, les Gr3>CsChrimson les moustiques entrent en état d'excitation ou « activation », manifestant une augmentation des comportements de marche et de vol qui persiste jusqu'à 10 à 15 minutes. Les moustiques présentent également des comportements de sondage, définis comme l'insertion répétée du rostre dans le fond maillé des plaques. Les données ont été représentées sous forme de comportement individuel des moustiques (Figure 2G) et proportion de tous les moustiques présentant chaque comportement au fil du temps (Figure 2H). L'opto-thermocycleur permet des stimulations optogénétiques et thermiques répétées et précises sur plusieurs individus, ce qui en fait un outil utile pour l'étude de l'éveil et l'exploration du comportement.
Le test de la couverture sanguine (section 3) repose sur le test du thermocycleur optique, mais fournit un repas sanguin artificiel minimal appétent afin que l'engorgement des moustiques puisse être quantifié (Figure 3A). Une impulsion de lumière rouge de 5 secondes (~627 nm) a été administrée pour activer optogénétiquement les neurones sensoriels au CO2, et la fine couche de repas sanguin artificiel a été chauffée de 25 °C à ~35 °C (mesurée à la surface par un thermocouple ; Figure 3B). Les trois génotypes ont chacun été exposés à un repas sanguin artificiel sur une plaque d'alimentation en aluminium (Figure 3C). Des moustiques Gr3-QF2, QUAS-CsChrimson et Gr3>CsChrimson (n = 10 essais par groupe génétique, 14 moustiques chacun) ont été chacun exposés à un repas sanguin artificiel sur une plaque d'alimentation en aluminium (Figure 3C). Afin de mesurer l'engorgement des moustiques au fil du temps pendant l'expérience, SLEAP a été utilisé pour suivre des points sur le corps du moustique. Cela a été réalisé en créant un squelette comprenant 5 nœuds sur l'abdomen du moustique (Figure 3D). À la fin de chaque essai, le nombre de moustiques engorgés a été compté manuellement. Les lignées de moustiques témoins, Gr3-QF2 et QUAS-CsChrimson, ont montré un taux d'engorgement moyen similaire (Figure 3E, p = 0,401). En revanche, la lignée Gr3>CsChrimson a montré des taux d'alimentation significativement plus élevés, avec un taux d'engorgement moyen de 53 % (Figure 3E, p = 0,00078 par rapport à Gr3-QF2 et p = 0,00097 par rapport à QUAS-CsChrimson). Les données ont été représentées sous forme de diagrammes en violon et de boîtes à moustaches (médiane, écart interquartile et étendue) et analysées à l'aide du test de Kruskal-Wallis et du test de Dunn avec correction de Holm à un seuil de significativité de p < 0,05. L'engorgement individuel des animaux au fil du temps a été défini comme la variation de la surface abdominale délimitée par les 5 nœuds (Figure 3F). Ces résultats montrent que le test de la couverture sanguine peut être utilisé pour évaluer les effets de l'activation optogénétique des populations neuronales sensibles au CO2 sur le comportement d'engorgement des moustiques lors d'un repas sanguin artificiel.
Le test d'alimentation par membrane optogénétique (section 4), dans lequel des moustiques ont accès à un repas sanguin chaud dans une arène cylindrique, permet d'étudier l'attraction des moustiques vers une source de sang ainsi que leur gorgeement. Afin de déterminer si l'activation optogénétique des neurones sensoriels du CO2 suffit à provoquer l'attraction vers une source de sang et l'alimentation, des moustiques Gr3>CsChrimson et des moustiques témoins (n = 10 pour chaque génotype, où n désigne le nombre d'essais réalisés, avec 20 moustiques par récipient par essai) ont eu accès à un repas sanguin chaud dans le dispositif d'alimentation par membrane optogénétique, sous exposition à des impulsions répétées de lumière rouge intense d'une durée de 1 seconde toutes les 10 secondes, pendant 15 minutes (Figure 4B). Pour mesurer l'attraction vers la membrane d'alimentation, un modèle SLEAP à trois points a été utilisé afin de suivre la tête, le thorax et l'abdomen des moustiques posés, en comptabilisant ceux situés dans la zone d'intérêt (Figure 4D, Figure 4E). Les moustiques Gr3>CsChrimson ont montré une attraction accrue à la zone du repas sanguin au fil du temps par rapport au témoin Gr3-QF2 (Figure 4F, p = 0,027). Les moustiques Gr3>CsChrimson n'ont pas montré d'attraction statistiquement plus élevée que les moustiques QUAS-CsChrimson (Figure 4F, p = 0,310). Les groupes de significativité ont été déterminés par le test de Kruskal-Wallis, suivi du test de Dunn avec correction de Holm. Le seuil de significativité a été fixé à p < 0,05. Les données ont été représentées sous forme de pourcentage moyen de moustiques attirés vers le repas sanguin, la zone ombrée indiquant l'erreur standard. Les génotypes témoins Gr3-QF2 et QUAS-CsChrimson ont montré des taux de gorgeement similaires, respectivement de 26 % et 29 %, évalués manuellement comme décrit (Figure 4G, p = 0,351). En revanche, les moustiques Gr3>CsChrimson ont présenté un taux de gorgeement significativement plus élevé que les deux témoins, avec une moyenne de 61 % (Figure 4G, p < 0,001 par rapport à Gr3-QF2 et p = 0,002 par rapport à QUAS-CsChrimson). Les données ont été représentées sous forme de diagrammes en violon et de boîtes à moustaches (médiane, intervalle interquartile et étendue) et analysées à l'aide du test de Kruskal-Wallis et du test de Dunn avec correction de Holm, avec un seuil de significativité fixé à p < 0,05. Ces résultats indiquent que le test d'alimentation par membrane optogénétique constitue un moyen valable d'évaluer les effets de l'activation optogénétique des neurones du CO2 sur l'attraction des moustiques et leur gorgeement lors d'un repas sanguin.
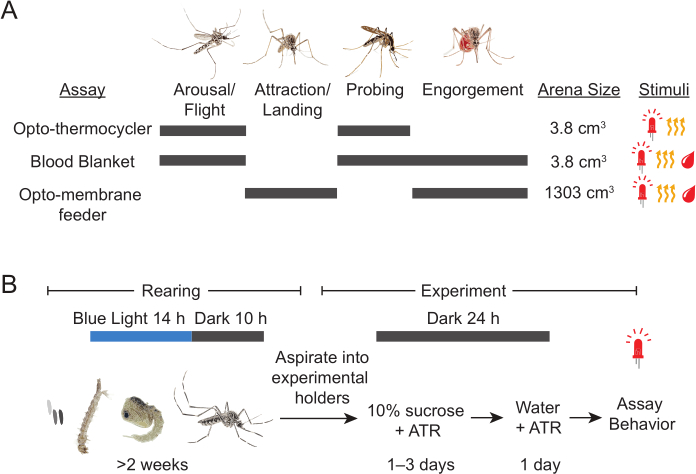
Figure 1 : Tests et élevage pour l’optogénétique chez les moustiques. (A) Schéma des comportements de recherche d’hôte chez les moustiques, avec les caractéristiques des tests de comportement présentés. Les étapes de la recherche d’hôte mesurées par chaque test comportemental sont indiquées par des barres grises. (B) Chronologie de l’élevage des moustiques pour les expériences d’optogénétique. La figure 1 a été créée par les auteurs pour cette publication à l’aide d’Adobe Illustrator, et aucune licence n’est requise pour son utilisation. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
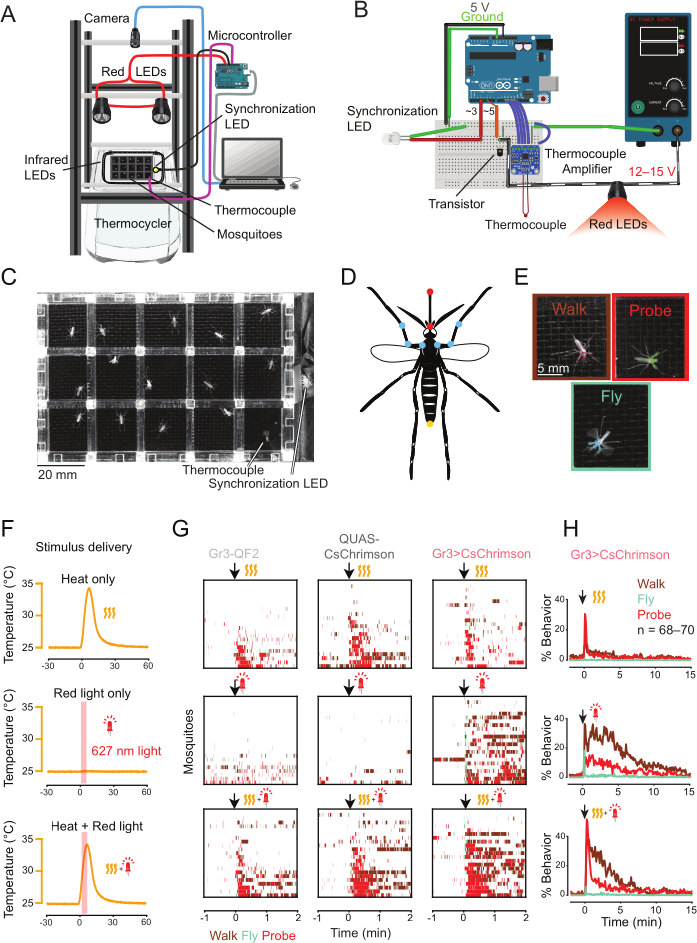
Figure 2 : Le thermocycleur optogénétique quantifie les comportements d’excitation et de recherche lors de l’activation optogénétique. (A) Schéma de l’essai au thermocycleur optogénétique, composé d’une plaque de moustiques placée sur le bloc d’un thermocycleur PCR équipé de LED au-dessus et d’une caméra. (B) Schéma du circuit du microcontrôleur qui détecte la température du thermocycleur et commande les LED. Le schéma a été créé avec Fritzing sous licence CC-BY-SA 3.0 (https://github.com/fritzing/fritzing-app/blob/develop/README.md). Cette licence autorise également la réutilisation complète de l’image, à condition d’en mentionner correctement la source. (C) Image fixe de l’essai montrant la plaque en acrylique pouvant contenir jusqu’à 14 moustiques. Le thermocouple se trouve dans le puits en bas à droite. (D) Le squelette du moustique utilisé dans le modèle SLEAP pour estimer les postures. Les points marqués sur le corps incluent : l’extrémité et la base de la proboscis, utilisés pour détecter le comportement de sondage (en rouge) ; les pattes antérieures, au niveau de leur insertion sur le thorax, là où le fémur rejoint la tibia, et où le tibia rejoint le tarse (en bleu) ; et l’extrémité de l’abdomen (en jaune). Un modèle multi-animal vu de dessus a été utilisé. Des estimateurs de posture et des classificateurs comportementaux ont été utilisés pour quantifier l’excitation et le comportement de sondage des moustiques. (E) Exemples de déplacements, de vol et de sondage de moustiques, avec les prédictions de SLEAP superposées. La marche et le vol servent d’indicateurs comportementaux d’excitation. (F) Sortie de la délivrance du stimulus. Les lignes ondulées jaunes indiquent les stimuli thermiques à température corporelle, et les LED rouges indiquent les stimuli lumineux rouges. (G) Éthogrammes des comportements de marche, de vol et de sondage chez des moustiques Gr3-QF2, QUAS-CsChrimson et Gr3>CsChrimson (n = 22–23 moustiques individuels par génotype) après la délivrance du stimulus. (H) Comportement persistant après l’activation optogénétique chez les moustiques Gr3>CsChrimson (n = 68–70 moustiques individuels). Les panneaux A–E de la figure ont été créés par les auteurs pour cette publication à l’aide d’Adobe Illustrator, et aucune licence de droit d’auteur n’est requise pour leur utilisation. Les données présentées en (F–H) sont reproduites de Sorrells et al., 2022, sous licence CC BY 4.08. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
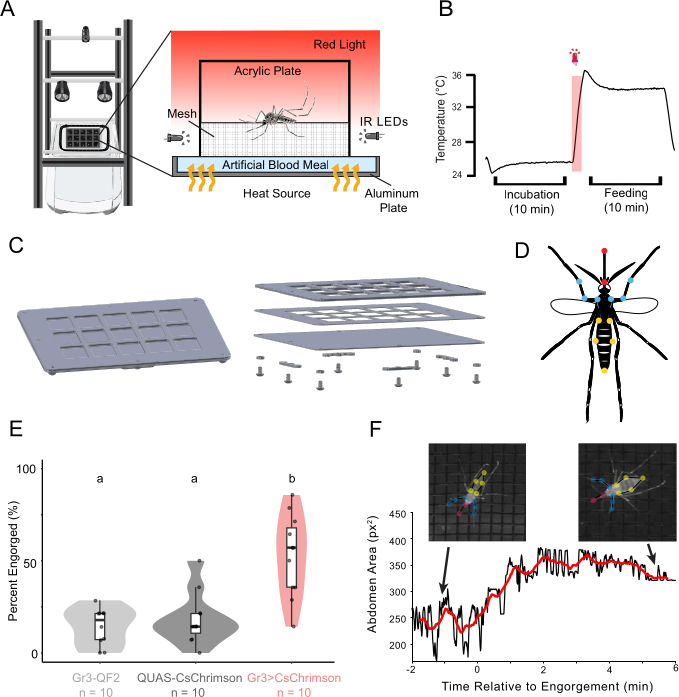
Figure 3 : Le test du « blood blanket » quantifie l'engorgement en réponse à une activation optogénétique. (A) Schéma du test du « blood blanket ». Le moustique est placé dans une cage en acrylique où un sang artificiel accessible est présenté sous un tamis. (B) Relevé de la température et du stimulus lumineux rouge provenant du test. (C) Schéma de l'assemblage de la plaque chauffante en aluminium utilisée pour l'alimentation. (D) Le squelette SLEAP utilisé pour l'estimation de la posture comprenait les points décrits dans la Figure 2D, ainsi que quatre points situés sur les flancs de l'abdomen, là où il rejoint le thorax, et aux bords de la partie la plus épaisse de l'abdomen. L'engorgement a été mesuré comme la surface délimitée par les cinq points situés le long du périmètre abdominal, à partir des prédictions d'un modèle multi-animal en vue de dessus. (E) Graphique en violon représentant le pourcentage moyen de moustiques engorgés par génotype lors du repas sanguin artificiel (n = 10 essais, 14 moustiques par essai pour chaque génotype). La significativité a été déterminée à l'aide du test de Kruskal-Wallis, suivi d'un test de Dunn avec correction de Holm. Des lettres différentes indiquent une significativité de p < 0,05 entre les groupes, les groupes portant la même lettre n'étant pas significativement différents les uns des autres. (F) Évolution de l'engorgement au cours du temps chez un animal Gr3>CsChrimson, mesuré par la surface abdominale. La courbe de tendance rouge affiche une fenêtre glissante de 30 secondes sur huit minutes de l'essai, x = 0 marquant le moment où l'engorgement commence. Tous les schémas de la Figure 3 ont été créés par les auteurs pour cette publication à l'aide d'Adobe Illustrator, et aucune licence de droit d'auteur n'était requise pour leur utilisation. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
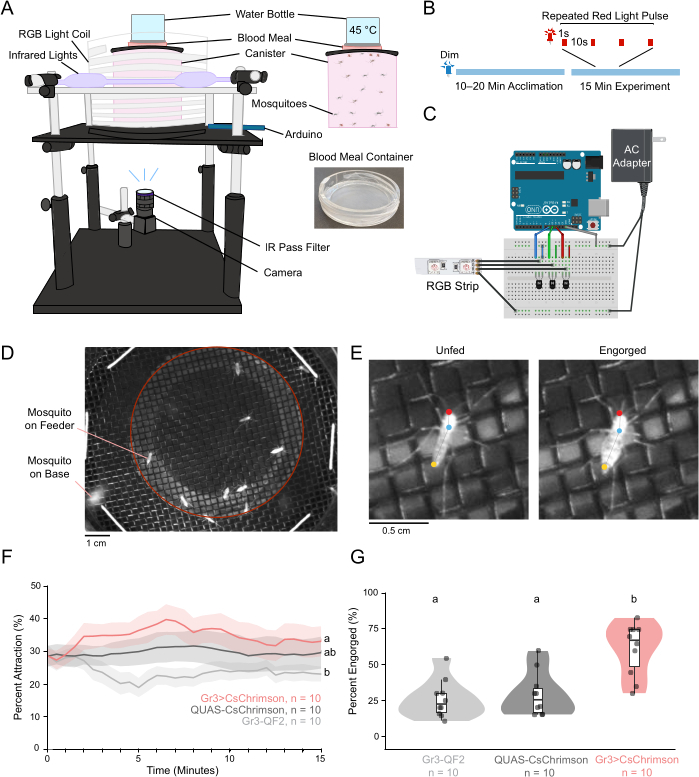
Figure 4 : Le test du nourrisseur membranaire optogénétique mesure l’attraction et l’alimentation sanguine. (A) Schéma du nourrisseur membranaire optogénétique avec ses composants individuels. (B) Chronologie des essais expérimentaux. La ligne bleue représente une lumière bleue atténuée durant toute la période d’acclimatation et de l’expérience. Un segment du stimulus expérimental est illustré, correspondant à des impulsions d’une seconde de lumière rouge espacées de 10 s. (C) Schéma montrant le câblage du nourrisseur membranaire optogénétique. Le schéma du circuit a été réalisé avec Fritzing sous licence CC-BY par les auteurs. (D) Image d'exemple extraite d'une vidéo du nourrisseur membranaire optogénétique. Les moustiques situés dans le cercle rouge sont comptés pour déterminer le pourcentage d’attraction. (E) Exemples de moustique non nourri et de moustique repu, avec la tête, le thorax et l’abdomen étiquetés par le modèle de suivi SLEAP pour le nourrisseur membranaire optogénétique. Un modèle SLEAP multi-animal « de bas en haut » a été utilisé pour mesurer l’attraction vers la zone d’intérêt où est placé le repas sanguin. (F) Graphique linéaire représentant le pourcentage moyen d’occupation de la zone du repas sanguin (utilisé comme indicateur comportemental de l’atterrissage) en fonction du temps, selon le génotype (n = 10 essais de 20 moustiques par génotype). La moyenne est tracée toutes les 30 s. Les zones ombrées indiquent l’erreur standard. La significativité a été déterminée par le test de Kruskal-Wallis, suivi du test de Dunn avec correction de Holm. Des lettres différentes indiquent des groupes significativement distincts ; le seuil de significativité était fixé à p < 0,05. (G) Graphique en violon représentant le pourcentage moyen de moustiques repus après un repas sanguin, selon le génotype. Dans les graphiques (F, G), la significativité a été déterminée par le test de Kruskal-Wallis, suivi du test de Dunn avec correction de Holm. Les génotypes portant la même lettre ne diffèrent pas significativement entre eux. Le seuil de significativité est défini comme p < 0,05. La figure 4 a été créée à l’aide d’Adobe Illustrator, ses données ont été recueillies par les auteurs pour cette publication, et aucune licence de droit d’auteur n’était requise pour son utilisation. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Discussion
Cet article décrit des protocoles détaillés permettant d'évaluer la capacité de types cellulaires neuronaux à induire des étapes spécifiques de l'attraction de l'hôte et de la piqûre. Le comportement de piqûre comprend une série d'étapes comportementales, allant de la détection à longue distance à l'attraction à courte distance, puis à la perforation de la peau et enfin à l'engorgement. En théorie, les types neuronaux pourraient contrôler des actions ou étapes spécifiques, orienter le comportement vers des séquences particulières, augmenter la durée de l'ensemble du comportement, ou assumer de nombreuses autres fonctions. Ainsi, les différents tests présentés sont nécessaires pour analyser le rôle neuronal dans ce processus.
Plusieurs erreurs fréquentes peuvent entraîner de mauvaises réponses des moustiques dans ces tests. Une faible activité et une alimentation insuffisante peuvent être évitées en réalisant les expériences pendant la période d’activité maximale des moustiques, près des moments de transition entre les cycles clair et obscur de leurs chambres d’incubation. De faibles taux d’alimentation dans le dispositif de sang artificiel et dans le nourrisseur à membrane optique peuvent résulter d’un repas sanguin artificiel de mauvaise qualité ou d’une température inappropriée. Veillez à ce que tous les réactifs (NaHCO3, ATP, sang de mouton défibriné) ne soient pas périmés et soient correctement stockés. Il est recommandé de préparer toutes les solutions le jour de l’expérience afin de garantir une fraîcheur optimale. Assurez-vous que la plaque du dispositif de sang artificiel entre en contact direct avec la surface du bloc du thermocycleur PCR. Les plaques du thermocycleur optique et du dispositif de sang artificiel peuvent accumuler de la condensation en présence d’humidité résiduelle. Avant les expériences, placez les plaques sur des essuie-tout pour absorber toute humidité. En cas de réponse optogénétique insuffisante, assurez-vous que les moustiques aient au moins une semaine d’âge et disposent d’un temps suffisant pour s’alimenter en ATR, qui est un cofacteur chimique indispensable aux canaux CsChrimson.
Des outils optogénétiques ont été conçus pour être sensibles à des longueurs d'onde allant du bleu (~450 nm) au rouge (~650 nm), couvrant ainsi tout le spectre visible. La lumière rouge est particulièrement utile chez les insectes, car ceux-ci présentent généralement une faible sensibilité et/ou des réponses comportementales à ces longueurs d'onde.40Curieusement, les moustiques montrent une attraction en vol envers des zones de stimuli visuels aux longueurs d'onde longues, présentes dans les teintes de la peau humaine.41. Ainsi, l'utilisation de la lumière rouge pourrait constituer une limitation qui complique l'interprétation des activations optogénétiques dans les tests d'attraction des moustiques vers un hôte. Toutefois, génétiquement témoin les moustiques ont montré des réponses minimales à la lumière rouge appliquée de façon large, même à des intensités élevées (Figures 2–4). Des contrôles génétiques dépourvus soit du construct de commande, soit du construct effecteur, ainsi que des contrôles réalisés en absence de lumière, sont recommandés afin d'interpréter correctement les effets comportementaux. Un contrôle dépourvu du cofacteur rhodopsine ATR est souvent utilisé dans les expériences d'optogénétique chez d'autres espèces ; toutefois, la nourriture pour poissons donnée aux larves de moustiques contient de la vitamine A, précurseur de l'ATR, ce qui rend ce type de contrôle moins efficace dans ce système.
Les stimuli optogénétiques présentés ici se limitent à des stimuli continus d'intensité lumineuse réglable. Les stimuli optogénétiques qui reproduisent fidèlement les schémas d'activité neuronale naturelle sont les plus susceptibles d'induire le comportement d'intérêt. Par conséquent, si des enregistrements neuronaux sont disponibles, le stimulus peut être conçu pour correspondre à l'intensité observée et aux dynamiques temporelles. Lorsque ces éléments sont inconnus, la fonction des neurones peut être explorée à l'aide de différents stimuli et contextes comportementaux, en gardant à l'esprit que les résultats peuvent ne pas refléter la fonction des neurones dans un comportement naturel. Néanmoins, l'activation de l'activité neuronale en dehors de la plage naturelle peut être utilisée pour sonder les circuits ou les propriétés comportementales de manière originale, tout comme l'électrophysiologie peut être utilisée pour étudier les propriétés cellulaires. À ce jour, les outils optogénétiques n'ont été utilisés que chez les neurones sensoriels du moustique, une application qui présente certains avantages par rapport à l'administration de stimuli naturels. Les stratégies traditionnelles de mesure de la recherche d'hôte par le moustique reposent sur l'administration de gaz CO2 réel. L'utilisation de CO2 réel nécessite un flux d'air filtré et humidifié, ce qui implique des dispositifs expérimentaux complexes capables de délivrer et d'éliminer précisément le gaz en de courtes périodes9,10,42,43. Le flux d'air et l'humidité sont tous deux des indices pour l'attraction et la navigation du moustique, ce qui rend l'administration optogénétique attrayante comme méthode permettant d'étudier les effets des stimuli olfactifs indépendamment de ces autres stimuli. Des outils optogénétiques ont également été utilisés précédemment pour étudier l'effet du sexe et de l'état physiologique sur le comportement8, apportant ainsi des éclaircissements sur ces questions importantes en biologie du moustique.
Outre l'optogénétique, ces protocoles utilisent des tests standards qui ont été employés pour évaluer le comportement des moustiques et présentent certaines limites. Pour faciliter le nettoyage, la couverture de sang utilise un repas artificiel contenant uniquement les substances sapides nécessaires à l'engorgement des moustiques. Cette limitation pourrait être surmontée par l'utilisation de sang (comme dans l'alimenteur opto-membranaire) ou de matériaux biomimétiques reproduisant certains aspects des tissus de l'hôte. La chaleur dans l'opto-thermocycleur et la couverture de sang est transmise à des moustiques marchant ou immobiles, plutôt qu'à des moustiques en vol, et est limitée par la vitesse de rampe du thermocycleur PCR. Par conséquent, ces tests permettent de détecter le comportement de sondage et d'engorgement, mais pas l'attraction. Une autre limitation des tests en laboratoire est qu'afin de comprendre l'effet comportemental de signaux spécifiques, d'autres signaux utilisés par les moustiques sont exclus. Des tests de laboratoire de plus en plus complexes et des tests semi-naturels pourraient être mis en place pour étudier d'autres aspects des environnements naturels dans lesquels les moustiques se nourrissent de leurs hôtes.
Une autre limitation de l'optogénétique chez le moustique est que peu de lignées d'expression ont été créées au-delà de celles destinées aux neurones sensoriels. Ainsi, son plein potentiel sera atteint lorsqu'elle sera combinée à des promoteurs exprimés dans les interneurones, qui ne peuvent pas être directement stimulés par d'autres approches. De nouvelles ressources émergentes, telles que l'atlas cellulaire du moustique Aedes aegypti, ouvrent la voie à des progrès en neurogénétique des moustiques44. Des travaux futurs seront nécessaires pour développer de tels promoteurs afin d'explorer les circuits neuronaux des moustiques. De même, d'autres outils optogénétiques d'inhibition sont requis pour déterminer si un type de neurone est nécessaire à un comportement particulier. Bien que les tests présentés dans cet article soient conçus pour mesurer l'attraction pour l'hôte et l'alimentation en sang, ces approches pourraient être étendues à l'étude d'autres étapes de la recherche d'hôte ainsi qu'à des comportements tels que l'accouplement, la ponte et l'alimentation au nectar. Les études optogénétiques fourniront de nouvelles connaissances sur la manière dont le comportement des moustiques est contrôlé au niveau des circuits neuronaux et pourraient conduire à de nouvelles stratégies pour prévenir la propagation des maladies transmises par les moustiques.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
Remerciements
Nous remercions Kim Lezon-Geyda, Fernanda Medeiros Contini et Yaoyu Jiao pour leurs commentaires sur le manuscrit. Cette recherche a été financée par la subvention DP2AI177891 du NIH. Nous remercions le Neurotechnology Core, financé par l'Institut Yale Kavli pour les neurosciences, pour ses conseils techniques. T.S. est boursier HHMI Freeman Hrabowski.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 1⁄Acrylique noire de 8 pouces | McMaster-Carr | 8650K32 | Structure d'alimentation opto-membranaire |
| 1⁄Acrylique transparent de 8 pouces | McMaster-Carr | 8536K134 | Réservoir opto-membranaire |
| ¼ Acrylique noire de 1 pouce | McMaster-Carr | 8560K259 | Structure d'alimentation opto-membranaire |
| Adaptateur secteur | Jameco ReliaPro | 2197581 | Structure d'alimentation opto-membranaire |
| Colle acrylique | United States Plastic Corp | 97562 | Récipient d'alimentation opto-membranaire, cage à couverture de sang |
| Adénosine 5′-sel de disodium de triphosphate hydraté | Sigma Aldrich | A6419-1G | Repas sanguin artificiel |
| Tout-trans-rétinal | Spectrum Chemical | R3041-1GM | Élevage optogénétique |
| Plaque en aluminium | Thorlabs | MB12 | Structure d'alimentation opto-membranaire |
| Feuille d'aluminium 0,03125 in | McMaster-Carr | 89015K11 | Plaque de nourrissage par transfusion sanguine |
| Tôle d'aluminium 0,0625 in | McMaster-Carr | 89015K37 | Plaque de nourrissage par couverture sanguine |
| Animal Part Tracker (APT) | Laboratoire Branson à HHMI Janelia Farm | N/A | Version 3.0, données reproduites par l'opto-thermocycleur (Figure 2), téléchargé le 9 juillet 2020 |
| Arduino IDE | Arduino | N/A | Version 1.8.12, utilisée pour le contrôle des stimuli du cyclothermoptogénérateur, couverture chauffante, & alimentateur opto-membrane |
| Carte de microcontrôleur Arduino Uno Rev3 | Arduino | A000066 | Programmation du distributeur opto-membranaire |
| Écran de fenêtre en fibre de verre noir | Produits Premium Breakthrough | IHLRS3684BL | Cage avec couverture sanguine |
| Ruban adhésif noir | Thorlabs | T137-2.0 | Opto-thermocycleur |
| Serrures noires à fermeture à glissière | Attaches câbles et plus encore | ct242 | Structure d'alimentation opto-membranaire |
| Draps d'occultation | Configurer le magasin | 6520SF | Opto-thermocycleur et couverture chauffante |
| Lumières LED bleues | 21LEDUSA | RB5730BLWP | Élevage de moustiques |
| Bouteille | SKS Bottle &et emballage | 0604-07 | Réchauffeur de sang opto-membranaire |
| Granulés pour poissons de fond | API | 5352983 | Nourrir les larves |
| Caméra | Mouche noire | U3-13S2M-CS, FLI | Enregistrement de vidéos pour les tests |
| Compteur de clics | ULine | H-7350 | Éclaircir les larves |
| Ordinateur | Asus | X1407Q | Exécution des tests |
| Eau de Javel concentrée (8,25 % d'hypochlorite de sodium) | VWR | 89501-620 | Nettoyage du distributeur à membrane optique |
| CoolTerm | Le logiciel gratuit de Roger Meier | N/A | Version 2.0.1, utilisée pour l'enregistrement via port série pour opto-thermocycleur, couverture chauffante & alimentateur opto-membrane |
| Sang de mouton défibriné | Laboratoires d'hémostase | DSB100 | Repas sanguin pour alimenteur opto-membranaire |
| Boulon hexagonal à tête bombée 4-40 | McMaster-Carr | 92949A105 | Plaque de nourrissage par couverture sanguine |
| Époxy | Loctite | 1363118 | Plaque acrylique de thermocycleur optique, structure d'alimentation à membrane optique |
| Éthanol | Decon Labs | 2716 | Désinfection |
| Disque dur externe | LaCie | LAC9000298 | Stockage des vidéos |
| ffmpeg | FFmpeg | N/A | Version 8.0.1, prétraitement de vidéos |
| Mèche en coton de quatre pouces | Richmond Dental | 201226 | Nourrir des moustiques adultes |
| GitHub | GitHub, Inc. | N/A | Dépôts de code, de fichiers de pièces et de modèles SLEAP pour l'opto-thermocycleur (v1.0.0, https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0), la couverture thermique sanguine (v1.0.0, https://github.com/sorrellslab/bloodblanket/releases/tag/v1.0.0) et le distributeur opto-membranaire (v1.0.0, https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0) |
| Gr3>CsChrimson | N/A | N/A | Créé pour cette étude, décrit à l'étape 1.2 |
| Moustiques Gr3-QF2 | N/A | N/A | Réactif génétique, DOI : 10.1016/j.cell.2013.12.044 |
| Incubateur avec porte opaque | Caron | 7340-25 | Élevage de moustiques |
| Diode électroluminescente infrarouge | Adafruit | 387 | Opto-thermocycleur et couverture sanguine |
| Bande de LED infrarouge | Éclairage par forme d'onde | 7031.85 | Opto-thermocycleur, couverture sanguine et structure opto-membranaire |
| Filtre passe-infrarouge | Edmund Optics | 65-796 | Enregistrement de vidéos pour les tests |
| Cage à insectes | Bugdorm | DP1000 | Enclos pour moustiques adultes |
| Janelia Automatic Animal Behavior Annotator (JAABA) | Laboratoire Branson à HHMI Janelia Farm | N/A | Opto-thermocycleur : données reproduites (Figure 2) ; Version 0.5.0 |
| Grande tasse à soupe | WebstaurantStore | 50016SOUPPLA | Élevage de moustiques |
| Dissipateur thermique à LED | Luxeon Star | N25-15B | Opto-thermocycleur et couverture sanguine |
| Objectif LED | Luxeon Star | 10209 | Opto-thermocycleur et couverture sanguine |
| Support de lentille LED | Luxeon Star | 10235 | Opto-thermocycleur et couverture sanguine |
| Ruban pour objectif de LED | Luxeon Star | LT-01 | Opto-thermocycleur et couverture sanguine |
| Lumière LED | Luxeon Star | SP-01-D9 | Stimulus lumineux rouge pour Opto-thermocycleur et couverture chauffante |
| Ruban thermique LED | Luxeon Star | LXT-S-12 | Opto-thermocycleur et couverture sanguine |
| Rails de construction optique | Thorlabs | XE25L12, XE25L24, XE25L09, XE25T4, RA90, TRA6, TR12 | Opto-thermocycleur et structure de couverture sanguine |
| Poste optique | Thorlabs | TR12 | Structure d'alimentation opto-membranaire |
| Serviettes en papier | Pacific Blue | 27385 | Nettoyage du récipient |
| Parafilm | Amcor | PM-996 | Membrane de couverture sanguine, contenant pour repas opto-membranaire |
| thermocycleur PCR | Eppendorf | 2231001196 | Opto-thermocycleur et couverture sanguine |
| Gobelet en plastique portionnable | Choix | 999P2C | Nourrir des moustiques adultes |
| Couvercle pour gobelet doseur en plastique | Choix | 999PL2 | Nourrir des moustiques adultes |
| Bac en polycarbonate | Cambro | 21410CWCHCL | Élevage des larves |
| Panneau en polycarbonate, demi-taille | Cambro | 24CW135 | Nettoyage opto-membranaire des aliments |
| Couvercle en polycarbonate, demi-taille | Cambro | 20CWCH135 | Nettoyage opto-membranaire des aliments |
| Couvercle en polycarbonate pour plat | Cambro | 10CWCH135 | Élevage des larves |
| Tube en polycarbonate | McMaster-Carr | 8585K56 | Récipient opto-membranaire pour alimentation |
| Périmètre de puissance | Cohérent | 1299161 | Tous les dosages |
| Moustiques QUAS-CsChrimson | N/A | N/A | Réactif génétique, DOI : 10.7554/eLife.76663 |
| Lumières RVB | Digikey | 289-1189-ND | Livraison de stimuli par alimentateur opto-membrane |
| Pinces d'angle droit | Thorlabs | RA90 | Structure d'alimentation opto-membranaire |
| Scotch Magic Tape | 3M | 104 | Couvercle acrylique pour opto-thermocycleur et couverture sanguine |
| Joint en silicone, 0,5 mm | McMaster-Carr | 1460N22 | Plaque de nourrissage par couverture sanguine |
| SLEAP | Talmo Lab | N/A | Version 1.4.1a2, suivi du positionnement des moustiques dans chacun des tests |
| Bicarbonate de sodium, solution tampon 1 M, pH 8,0 | Thermo Scientific | J62495.AP | Repas sanguin artificiel |
| Solution de chlorure de sodium | Sigma-Aldrich | S5150-1L 100 3532552 | Repas sanguin artificiel |
| SpinView | Teledyne Vision Solutions | N/A | Version1.27.0.48, logiciel d'enregistrement vidéo pour les trois tests |
| Flacon pulvérisateur | Uline | S-11686 | Désinfection |
| Saccharose | Sigma Aldrich | S0389-500G | Nourrir des moustiques adultes |
| Thermocouple (type T) | Harold G Schaevitz Industries LLC | CPTC-120-X-N | Opto-thermocycleur et couverture sanguine |
| Amplificateur de thermocouple | Adafruit | MAX31856 | Opto-thermocycleur et couverture sanguine |
| Minuterie | EnduraLight | RAC-MT | Contrôle du cycle lumineux pour l'élevage de moustiques |
| Pipette de transfert | Thermo Scientific | SAM-225 | Éclaircir les larves |
| Sac poubelle | Uline | S-23040 | Transport d'insectes |
| Maille résistante aux UV | McMaster-Carr | 87655K13 | Réservoir opto-membranaire pour alimentation |
| Eau | Sigma Aldrich | W4502-1L | Repas sanguin artificiel pour couverture sanguine |
| Fil ciré | McMaster-Carr | 6356K91 | Couvercle du boîtier opto-membranaire |
| Treillis métallique | McMaster-Carr | 9322T65 | Structure d'alimentation opto-membranaire |
Références
- UNICEF, UNDP, World Bank, WHO Special Program for Research and Training in Tropical Diseases. Global vector control response 2017-2030. Geneva: World Health Organization; 2017.
- Knight KL, Stone A. A catalog of the mosquitoes of the world (Diptera: Culicidae). Lanham (MD): Entomological Society of America; 1959.
- Raji JI, DeGennaro M. Genetic analysis of mosquito detection of humans. Curr Opin Insect Sci. 2017;20:34-38.
- Coutinho-Abreu IV, Riffell JA, Akbari OS. Human attractive cues and mosquito host-seeking behavior. Trends Parasitol. 2022;38(3):246-264.
- McMeniman CJ, Corfas RA, Matthews BJ, Ritchie SA, Vosshall LB. Multimodal integration of carbon dioxide and other sensory cues drives mosquito attraction to humans. Cell. 2014;156(5):1060-1071.
- Gillies MT. The role of carbon dioxide in host-finding by mosquitoes (Diptera: Culicidae): a review. Bull Entomol Res. 1980;70(4):525-532.
- Geier M, Bosch O, Boeckh J. Influence of odor plume structure on upwind flight of mosquitoes towards hosts. J Exp Biol. 1999;202(Pt 12):1639-1648.
- Sorrells TR, Pandey A, Rosas-Villegas A, Vosshall LB. A persistent behavioral state enables sustained predation of humans by mosquitoes. eLife. 2022;11:e76663.
- Dekker T, Geier M, Cardé RT. Carbon dioxide instantly sensitizes female yellow fever mosquitoes to human skin odors. J Exp Biol. 2005;208(15):2963-2972.
- van Breugel F, Riffell J, Fairhall A, Dickinson MH. Mosquitoes use vision to associate odor plumes with thermal targets. Curr Biol. 2015;25(16):2123-2129.
- Liu MZ, Vosshall LB. General visual and contingent thermal cues interact to elicit attraction in female Aedes aegypti. mosquitoes. Curr Biol. 2019;29(13):2250-2257.e4.
- Chandel A, DeBeaubien NA, Ganguly A, et al. Thermal infrared directs host-seeking behavior in Aedes aegypti. mosquitoes. Nature. 2024;633(8030):615-623.
- Tang R, Busby R, Laursen WJ, Keane GT, Garrity PA. Functional dissection of mosquito humidity sensing reveals distinct Dry and Moist Cell contributions to blood feeding and oviposition. Proc Natl Acad Sci U S A. 2024;121(35):e2407394121.
- Burgess L. Probing behavior of Aedes aegypti. (L.) in response to heat and moisture. Nature. 1959;184(4703):1968-1969.
- Hol FJ, Lambrechts L, Prakash M. BiteOscope, an open platform to study mosquito biting behavior. eLife. 2020;9:e56829.
- Martin-Martin I, Williams AE, Calvo E. Determination of mosquito probing and feeding time to evaluate mosquito blood feeding. Cold Spring Harb Protoc. 2023;2023(6):pdb.top107659.
- Boyd MF, Stratman-Thomas WK. Studies on benign tertian malaria. VII. Some observations on inoculation and onset. Am J Epidemiol. 1934;20(2):488-495.
- Swanson MM, Poodry CA. The shibire(ts) mutant of Drosophila: a probe for the study of embryonic development. Dev Biol. 1981;84(2):465-470.
- Sweeney ST, Broadie K, Keane J, Niemann H, O'Kane CJ. Targeted expression of tetanus toxin light chain in Drosophila specifically eliminates synaptic transmission and causes behavioral defects. Neuron. 1995;14(2):341-351.
- Baines RA, Uhler JP, Thompson A, Sweeney ST, Bate M. Altered electrical properties in Drosophila neurons developing without synaptic transmission. J Neurosci. 2001;21(5):1523-1531.
- Hamada FN, Rosenzweig M, Kang K, et al. An internal thermal sensor controlling temperature preference in Drosophila. Nature. 2008;454(7201):217-220.
- Corfas RA, Vosshall LB. The cation channel TRPA1 tunes mosquito thermotaxis to host temperatures. eLife. 2015;4:e11750.
- Greppi C, Laursen WJ, Budelli G, et al. Mosquito heat-seeking is driven by an ancestral cooling receptor. Science. 2020;367(6478):681-684.
- Allen WE, DeNardo LA, Chen MZ, et al. Thirst-associated preoptic neurons encode an aversive motivational drive. Science. 2017;357(6356):1149-1155.
- Inagaki HK, Jung Y, Hoopfer ED, et al. Optogenetic control of Drosophila courtship using a red-shifted channelrhodopsin reveals experience-dependent influences. Nat Methods. 2014;11(3):325-332.
- Sahel JA, Boulanger-Scemama E, Pagot C, et al. Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med. 2021;27(7):1223-1229.
- Klapoetke NC, Murata Y, Kim SS, et al. Independent optical excitation of distinct neural populations. Nat Methods. 2014;11(3):338-346.
- Deisseroth K. Optogenetics. Nat Methods. 2011;8(1):26-29.
- Potter CJ, Tasic B, Russler EV, Liang L, Luo L. The Q system: a repressible binary system for transgene expression, lineage tracing, and mosaic analysis. Cell. 2010;141(3):536-548.
- Herre M, Goldman OV, Lu TC, et al. Non-canonical odor coding in the mosquito. Cell. 2022;185(17):3104-3123.e28.
- Wohl MP, McMeniman CJ. Batch rearing Aedes aegypti. Cold Spring Harb Protoc. 2023;2023(3):pdb.prot108017.
- American Committee of Medical Entomology, American Society of Tropical Medicine and Hygiene. Arthropod containment guidelines, version 3.2. Vector Borne Zoonotic Dis. 2019;19(3):152-173.
- Pleil JD, Wallace MAG, Davis MD, Matty CM. The physics of human breathing: flow, timing, volume, and pressure parameters for normal, on-demand, and ventilator respiration. J Breath Res. 2021;15(4):042002.
- Pereira TD, Tabris N, Matsliah A, et al. SLEAP: a deep learning system for multi-animal pose tracking. Nat Methods. 2022;19(4):486-495.
- Mathis A, Mamidanna P, Cury KM, et al. DeepLabCut: markerless pose estimation of user-defined body parts with deep learning. Nat Neurosci. 2018;21(9):1281-1289.
- Goodwin NL, Choong JJ, Hwang S, et al. Simple Behavioral Analysis (SimBA) as a platform for explainable machine learning in behavioral neuroscience. Nat Neurosci. 2024;27(7):1411-1424.
- Tillmann JF, Hsu AI, Schwarz MK, Yttri EA. A-SOiD, an active-learning platform for expert-guided, data-efficient discovery of behavior. Nat Methods. 2024;21(4):703-711.
- Skovorodnikov P, Zhao J, Buck F, et al. FERAL: a video-understanding system for direct video-to-behavior mapping. bioRxiv. 2025. doi:10.1101/2025.11.16.688666.
- Kabra M, Robie AA, Rivera-Alba M, Branson S, Branson K. JAABA: interactive machine learning for automatic annotation of animal behavior. Nat Methods. 2013;10(1):64-67.
- Autrum H, Bennett MF, Diehn B, et al. Comparative physiology and evolution of vision in invertebrates. A: Invertebrate photoreceptors. Berlin: Springer; 1979.
- Alberto DAS, Rusch C, Zhan Y, Straw AD, Montell C, Riffell JA. The olfactory gating of visual preferences to human skin and visible spectra in mosquitoes. Nat Commun. 2022;13(1):555.
- Dekker T, Cardé RT. Moment-to-moment flight maneuvers of the female yellow fever mosquito (Aedes aegypti. L.) in response to plumes of carbon dioxide and human skin odor. J Exp Biol. 2011;214(Pt 20):3480-3494.
- Demir M, Kadakia N, Anderson HD, Clark DA, Emonet T. Walking Drosophila navigate complex plumes using stochastic decisions biased by the timing of odor encounters. eLife. 2020;9:e57524.
- Goldman OV, DeFoe AE, Qi Y, et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti. mosquito. Cell. 2025;188(25):7267-7290.e26.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible