Ce protocole décrit une méthode d'imagerie en temps réel de cellules vivantes permettant de visualiser la phagocytose par des macrophages dépendante des anticorps, à l'aide de cellules cancéreuses du sein triple négatif marquées par la protéine verte fluorescente, de macrophages dérivés de cellules mononucléées du sang périphérique et d'un microscope automatisé.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Imagerie en accéléré de la phagocytose de cellules de cancer du sein triple négatif marquées à la protéine de fluorescence verte par des macrophages induite par des anticorps
* These authors contributed equally
Dans cet article
Résumé
Résumé
La phagocytose cellulaire dépendante des anticorps est un mécanisme clé par lequel les macrophages englobent les cellules cancéreuses opsonisées par des anticorps. Ce protocole décrit une méthode d'imagerie en temps réel avec prise d'images à intervalles réguliers permettant de visualiser la phagocytose des cellules cancéreuses du sein triplement négatives exprimant la protéine CD24 et marquées par la protéine fluorescente verte, réalisée par les macrophages de manière dépendante des anticorps. Les macrophages sont dérivés de cellules mononucléées du sang périphérique humain, différenciés à l'aide du facteur de stimulation des colonies de macrophages et polarisés à l'aide de l'interféron gamma et du lipopolysaccharide afin d'obtenir un phénotype pro-inflammatoire. Les cellules cancéreuses sont opsonisées avec un anticorps monoclonal anti-CD24 avant d'être mises en co-culture avec les macrophages selon un rapport effecteur-cible défini. Les événements phagocytaires sont enregistrés sur une période de 16 h à l'aide d'un microscope automatisé équipé d'un contrôle environnemental permettant de maintenir des conditions physiologiques. L'imagerie est réalisée en champ clair et en fluorescence, ce qui permet d'identifier les cellules cancéreuses et de suivre leur internalisation par les macrophages. Des images représentatives en enregistrement temporel montrent l'englobement progressif des cellules cancéreuses fluorescentes au fil du temps. Pour permettre une évaluation quantitative, un dosage par point final parallèle est effectué dans des conditions de co-culture identiques, au cours duquel les cellules cancéreuses non internalisées sont éliminées avant l'imagerie, permettant ainsi une mesure précise des événements phagocytaires. Cette méthode fournit une approche standardisée et reproductible pour visualiser in vitro la phagocytose macrophagique induite par les anticorps. De manière importante, l'intégration de l'imagerie en temps réel avec une quantification basée sur un point final permet une évaluation complémentaire de la cinétique et de l'ampleur de la phagocytose. Ce protocole facilite l'évaluation des anticorps thérapeutiques et des immunothérapies anticancéreuses ciblant les macrophages dans un cadre in vitro contrôlé.
Introduction
Le cancer du sein est la malignité la plus fréquemment diagnostiquée chez les femmes dans le monde, représentant environ 2,3 millions de nouveaux cas chaque année1. Cette maladie est cliniquement hétérogène et se divise en au moins quatre sous-types moléculaires majeurs selon le statut des récepteurs hormonaux — récepteur des œstrogènes (ER) et récepteur de la progestérone (PR) — ainsi que l'expression de l'oncogène du récepteur 2 du facteur de croissance épidermique humain (HER2)2. Les tumeurs luminales A expriment ER et/ou PR sans sur-expression de HER2 (ER/PR+ et HER2−) ; les tumeurs luminales B expriment simultanément ER/PR et HER2 (ER/PR+ et HER2+) ; les tumeurs HER2+ se caractérisent par une forte expression de HER2 indépendamment du statut des récepteurs hormonaux ; et le cancer du sein triple négatif (CSTN) ne présente aucune expression des trois marqueurs (ER−, PR− et HER2−)2,3. Parmi ces sous-types, le CSTN représente la forme cliniquement la plus difficile à traiter et correspond à environ 15 % à 20 % de tous les cancers du sein. Les patientes atteintes de CSTN présentent l'évolution la plus agressive de la maladie, avec le pronostic le plus sombre et la survie globale à 5 ans la plus courte, en raison de réponses médiocres à la chimiothérapie conventionnelle et de l'absence de thérapies ciblées efficaces3,4. De plus, le CSTN présente une forte propension aux métastases viscérales, en particulier vers les poumons dans les cinq ans suivant le diagnostic, et les patientes atteintes d'un CSTN avancé ou métastatique (CSTNM) ont une survie médiane qui dépasse rarement deux ans5,6. Ces statistiques soulignent le besoin critique et non satisfait de nouvelles stratégies thérapeutiques pour le CSTN.
Le microenvironnement tumoral (TME) joue un rôle central dans la progression du cancer du sein et l'évasion immunitaire. Les macrophages associés aux tumeurs figurent parmi les cellules immunitaires les plus abondantes au sein du TME et ont récemment été reconnus comme des médiateurs essentiels de l'immunité innée anti-tumorale7,8,9. Bien que les macrophages associés aux tumeurs aient été historiquement divisés en états « M1 » pro-inflammatoires et « M2 » pro-tumoraux, ce modèle binaire ne rend pas compte de l'ampleur réelle de l'hétérogénéité des macrophages. En réalité, les macrophages associés aux tumeurs occupent un spectre fonctionnel dynamique, évoluant en réponse aux divers signaux biochimiques présents dans le TME. Dans ce paysage complexe, les cellules cancéreuses détournent activement l'activité des macrophages par diverses stratégies d'évasion immunitaire, notamment la surexpression de signaux « ne me mangez pas ». L'axe CD47/SIRPα a été le premier point de contrôle immunitaire inné identifié dans ce contexte6,10, et plus récemment, le CD24 s'est imposé comme un nouveau signal antiphagocytaire puissant11,12. Le CD24 est une petite glycoprotéine de type mucine fortement glycosylée, ancrée à la membrane cellulaire par un lien glycosylphosphatidylinositol13. Il est exprimé sur diverses lignées cellulaires immunitaires dans des conditions physiologiques, mais est fréquemment surexprimé dans les tumeurs solides, notamment les cancers du sein, ovarien, pancréatique et colorectal14. Sur les cellules tumorales, le CD24 interagit avec le récepteur inhibiteur lectine-like immunoglobuline liant l'acide sialique 10 (Siglec-10) exprimé sur les macrophages. Cette interaction déclenche la phosphorylation des domaines motifs inhibiteurs à base de tyrosine dans la queue cytoplasmique du Siglec-10, activant ainsi les phosphatases SHP-1 et SHP-2 qui suppriment la signalisation phagocytaire en aval11. Le blocage de l'interaction CD24/Siglec-10 par un anticorps monoclonal s'est révélé fortement augmenter la phagocytose des tumeurs humaines exprimant le CD24 par les macrophages. Notre étude récente a également montré que l'invalidation du gène CD24a dans des cellules de cancer du sein augmente leur sensibilité à la phagocytose par les macrophages dans un modèle murin de cancer du sein triple négatif9.
La phagocytose cellulaire dépendante des anticorps (ADCP) est un mécanisme essentiel par lequel les anticorps dirigent les macrophages vers la phagocytose des cellules tumorales15,16. Après liaison aux antigènes exprimés par les cellules tumorales, la région Fc de l'anticorps interagit avec les récepteurs Fcγ (FcγR) présents sur les macrophages, déclenchant des cascades de signalisation intracellulaire qui aboutissent à une réorganisation du cytosquelette, à la formation d'une cupule phagocytaire et à l'englobement de la cellule cible17.
Dans cette étude, nous avons mis au point et validé un protocole d'imagerie en temps réel de cellules vivantes par microscopie à intervalles pour mesurer la phagocytose des cellules cancéreuses du sein par les macrophages induite par les anticorps. La méthode utilise des macrophages dérivés de cellules mononucléées du sang périphérique (PBMC) provenant de donneurs humains sains, différenciés à l'aide du facteur de stimulation des colonies de macrophages (M-CSF), puis stimulés par le lipopolysaccharide (LPS) et l'interféron gamma (IFN-γ). L'analyse par cytométrie en flux a confirmé la surexpression de CD80 au sein de la population CD11b⁺ après stimulation (Figure 1), ce qui soutient le phénotype classiquement activé. Cet état d'activation confère une capacité robuste à la phagocytose médiée par les anticorps, ce qui le rend particulièrement adapté à l'évaluation de la phagocytose cellulaire dépendante des anticorps (ADCP). Des cellules cancéreuses du sein positives pour CD24, marquées par la GFP, servent de cellules cibles et sont opsonisées avec un anticorps monoclonal thérapeutique anti-CD24 avant la co-culture. Les événements de phagocytose sont enregistrés sur une période de 16 h à l'aide d'un microscope automatisé dans des conditions environnementales contrôlées. Afin de permettre une évaluation quantitative parallèlement à une visualisation dynamique, un dosage terminal distinct est réalisé dans des conditions de co-culture identiques, permettant une mesure rigoureuse de la phagocytose après élimination des cellules cibles non internalisées. Ce protocole fournit une plateforme standardisée, reproductible et riche en informations visuelles pour évaluer l'ADCP médiée par un anticorps anti-CD24. De manière importante, l'intégration de l'imagerie en temps réel avec une stratégie complémentaire de quantification basée sur un point final permet d'évaluer simultanément la cinétique et l'ampleur de la phagocytose. La méthode peut être adaptée pour étudier d'autres cibles immunothérapeutiques dirigées contre les macrophages. Ce protocole est particulièrement adapté à l'évaluation de l'ADCP induite par des anticorps monoclonaux thérapeutiques dirigés contre des antigènes membranaires des cellules cancéreuses. Il convient bien au criblage comparatif d'anticorps candidats, à la caractérisation des réponses dose-dépendantes et aux études mécanistiques concernant l'interaction Fc–FcγR, y compris les effets du blocage des signaux « ne me mangez pas » (par exemple, CD47–SIRPα). Étant donné que le test utilise des macrophages humains primaires, il est également approprié pour des études translationnelles nécessitant l'évaluation de la variabilité inter-donneurs avant le développement clinique.
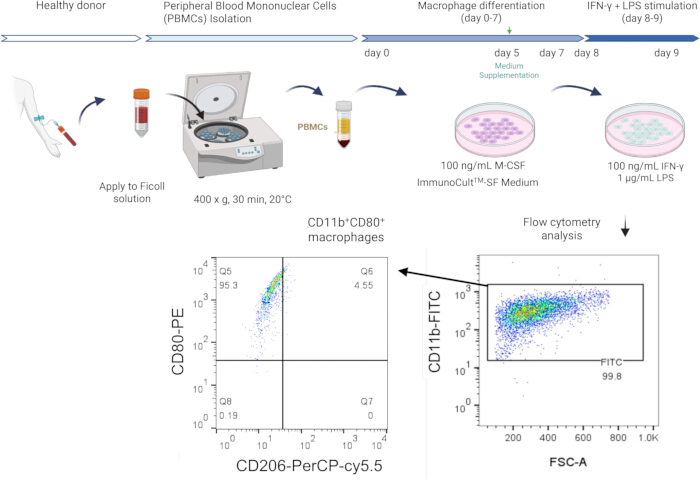
Figure 1. Génération et validation par cytométrie en flux de macrophages stimulés par IFN-γ/LPS dérivés de cellules mononucléées du sang périphérique. Panneau supérieur : les cellules mononucléées du sang périphérique (PBMC) sont isolées à partir de donneurs sains par centrifugation en gradient de densité à l’aide d’une solution de Ficoll à 400 × g pendant 30 min à 20 °C, tous les réactifs ayant été prééquilibrés à 20 °C ± 2 °C. Les PBMC isolées sont cultivées dans un milieu ImmunoCult-SF supplémenté avec 100 ng/mL de facteur de stimulation des colonies de macrophages (M-CSF) pendant 7 jours afin d’induire la différenciation en macrophages (jour 0–7), avec un renouvellement du supplément du milieu au jour 5. Au jour 8, les macrophages différenciés sont stimulés avec 100 ng/mL d’IFN-γ et 1 µg/mL de LPS pendant 48 h (jour 8–10). Les cellules sont ensuite analysées par cytométrie en flux. Panneau inférieur : analyse par cytométrie en flux des macrophages. Les cellules ont été marquées avec un panel de surface composé de CD11b-FITC, CD80-PE et CD206-PerCP-Cy5.5, puis le DAPI a été ajouté avant l’acquisition afin d’exclure les cellules mortes. Stratégie de gating : les cellules ont d’abord été sélectionnées selon leur viabilité (DAPI⁻), puis identifiées comme CD11b⁺ sur un graphique CD11b-FITC en fonction de FSC-A afin de confirmer l’identité des macrophages. Les événements viables CD11b⁺ ont ensuite été analysés sur un dot plot CD80 contre CD206 pour confirmer la population CD80⁺CD206⁻ induite par la stimulation IFN-γ/LPS. À droite : dot plot représentatif de CD11b-FITC en fonction de FSC-A montrant que 99,8 % des cellules sélectionnées étaient CD11b⁺, confirmant ainsi l’identité des macrophages. À gauche : la majorité des cellules CD11b⁺ se situaient dans la zone CD80⁺CD206⁻ (Q1 : 95,2 %), indiquant le phénotype pro-inflammatoire attendu dans les conditions de stimulation appliquées. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
Les utilisateurs doivent prendre en compte plusieurs contraintes lors de l'application de cette technique. Premièrement, la variabilité entre donneurs des macrophages dérivés des PBMC peut introduire une variance importante dans le rendement phagocytaire, et nous recommandons d'utiliser plusieurs donneurs (n ≥ 3), en indiquant les données individuelles de chaque donneur en parallèle des résultats regroupés. Deuxièmement, le modèle de co-culture en 2D ne reproduit pas le microenvironnement tumoral, et les résultats doivent être validés dans des modèles en 3D ou in vivo avant toute extrapolation clinique. Troisièmement, la fenêtre d'imagerie de 16 heures capte les événements phagocytaires précoces, mais ne reflète pas des processus à plus long terme tels que la présentation d'antigènes ou l'activation immunitaire secondaire. Ainsi, l'utilisation combinée de l'imagerie en temps réel et de la quantification en point final fournit un cadre complémentaire qui améliore à la fois l'interprétabilité et la reproductibilité des mesures de phagocytose dépendante des anticorps (ADCP).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Ce protocole implique l'utilisation de macrophages primaires dérivés d'échantillons sanguins de donneurs sains. La collecte et le traitement des échantillons ont été réalisés conformément aux lignes directrices du comité d'éthique (IRB) de l'Université de médecine de Chine.
1. Préparation des macrophages dérivés des PBMC
REMARQUE : Effectuer toutes les procédures impliquant du sang humain sous l'approbation du comité d'éthique institutionnel (par exemple, CMUH IRB). Obtenir le consentement éclairé de donneurs sains avant le prélèvement de sang.
PRÉCAUTION : Manipulez tous les produits sanguins humains en respectant les conditions de niveau de biosécurité 2 et en appliquant les précautions universelles.
- Prélèvement sanguin
- Prélevez du sang total auprès d'un donneur sain dans des tubes vacuolaires de 10 mL revêtus d'acide éthylènediaminotétraacétique (EDTA).
- Dilution du sang
- Diluez le sang total dans un rapport 1:1 avec une solution saline tamponnée au phosphate glacée (PBS ; sans Ca2⁺/Mg2⁺) (par exemple, 10 mL de sang + 10 mL de PBS).
- Mélangez par retournement trois à cinq fois.
NOTE : Conservez la PBS sur glace avant utilisation. La basse température aide à préserver la viabilité cellulaire pendant le traitement.
- Stratification par gradient de densité
- Déposez délicatement le sang dilué en couche au-dessus du Ficoll–Paque PLUS selon un rapport volumétrique de 2:1 (v/v) dans un tube conique (par exemple, 8 mL de sang au-dessus de 4 mL de Ficoll dans un tube de 15 mL, ou 30 mL au-dessus de 15 mL dans un tube de 50 mL).
- Équilibrez le sang dilué et le Ficoll–Paque PLUS à 20°C ± 2°C avant la stratification.
- Sortez le Ficoll–Paque PLUS du stockage à 4°C au moins 30 minutes avant utilisation, ou réchauffez-le brièvement dans un bain-marie à 20°C ± 2°C.
- N'utilisez pas de réactifs froids, car la densité du Ficoll est calibrée à 20°C ± 2°C, et toute déviation compromettra l'efficacité de la séparation et le rendement en PBMC.
NOTE : Inclinez le tube à un angle de 45° et pipetez lentement le sang le long de la paroi afin de maintenir une interface nette. N'altérez pas la couche de Ficoll.
- Centrifugation
- Centrifugez à 400 × g pendant 30 minutes à 20°C, frein désactivé (Figure 1).
NOTE : L'utilisation du frein perturberait le gradient de densité et réduirait le rendement en PBMC.
- Centrifugez à 400 × g pendant 30 minutes à 20°C, frein désactivé (Figure 1).
- Récupération des PBMC
- Aspirez soigneusement uniquement la couche buffy coat (l'interface blanchâtre entre le plasma et la couche de Ficoll), sans perturber le plasma au-dessus ni la couche de Ficoll en dessous, à l'aide d'une pipette serologique.
- Transférez la couche récupérée dans un nouveau tube conique de 50 mL.
- Lavage des PBMC
- Ajoutez du PBS pour porter le volume total à 25 mL dans un tube conique de 50 mL.
- Utilisez un tube de 50 mL pour assurer une centrifugation et un équilibrage adéquats.
- Centrifugez à 300 × g pendant 10 minutes.
- Lysis des hématies
- Jetez le surnageant.
- Resuspendez le culot dans 5 mL de tampon de lyse des globules rouges (RBC) en pipetant doucement plusieurs fois avec une pipette serologique jusqu'à ce que le culot soit complètement dispersé et qu'aucun agrégat visible ne subsiste.
- Incuvez à température ambiante pendant 5 minutes.
ATTENTION : Une dispersion complète est nécessaire pour assurer une lyse uniforme ; toutefois, évitez de pipeter vigoureusement ou d'utiliser un vortex, ce qui pourrait endommager les PBMC. Ne dépassez pas 5 minutes d'incubation avec le tampon de lyse des globules rouges, car une exposition prolongée pourrait compromettre la viabilité des PBMC.
- Formation du culot de PBMC
- Centrifugez à 500 × g pendant 5 minutes pour former un culot de PBMC et éliminer les débris d'hématies lysées.
- Resuspension finale
- Jetez le surnageant.
- Resuspendez le culot dans 5 mL de milieu macrophagique ImmunoCult-SF.
NOTE : Dans des conditions standard, 10 mL de sang total produisent généralement 1,5–2,0 × 10⁷ PBMC.
2. Différenciation des macrophages (jours 0 à 7)
REMARQUE : Utilisez des boîtes de Pétri non traitées pour culture de tissus (TC) afin de sélectionner les macrophages différenciés dérivés des monocytes par adhérence. Les lymphocytes non adhérents seront éliminés lors des cultures ultérieures.
- Jour 0 : Semis des cellules
- Réaliser un dénombrement cellulaire et semer 1 × 10⁷ PBMC dans une boîte de Pétri de 10 cm non traitée pour la culture cellulaire.
- Compléter le volume à 10 mL avec le milieu ImmunoCult-SF pour macrophages supplémenté en 100 ng/mL de M-CSF (préparé en ajoutant directement la solution mère de M-CSF au milieu complet juste avant utilisation, puis en mélangeant par retournements doux).
NOTE : Ce protocole peut être ajusté proportionnellement selon le rendement en PBMC du donneur, en utilisant comme référence une densité de semis d'au moins 1 × 10⁶ cellules/mL.
- Incubation et suivi
- Incuber à 37 °C avec 5 % de CO₂ dans un incubateur humidifié.
- Surveiller quotidiennement la formation d'agrégats de monocytes en suspension et l'apparition de cellules adhérentes.
NOTE : Les monocytes augmentent progressivement de taille et forment des agrégats au fur et à mesure de leur différenciation. Certains monocytes commencent à adhérer à la boîte. Aucune intervention n'est requise à cette étape.
- Jour 5 : Supplémentation du milieu
- Ajouter délicatement 5 mL de milieu frais ImmunoCult-SF pour macrophages supplémenté en 100 ng/mL de M-CSF dans la boîte, en prenant soin de ne pas perturber les macrophages adhérents.
- Poursuivre la culture pendant 2 jours supplémentaires (jusqu'au jour 7).
ATTENTION : Ajouter le milieu frais doucement le long de la paroi de la boîte afin d'éviter de perturber les macrophages adhérents, car une perturbation mécanique pourrait affecter l'efficacité de la différenciation et le rendement cellulaire.
NOTE : Éviter de remplacer complètement le milieu afin de préserver les facteurs autocrines/paracrines qui favorisent la différenciation des macrophages.
- Jour 7 : Évaluation morphologique
- Examiner l'efficacité de la différenciation des macrophages au microscope inversé.
- Les cellules adhérentes présentent une morphologie typique des macrophages : grande taille, forme aplatie et irrégulière, avec des pseudopodes visibles.
- Au jour 7, des macrophages bien différenciés doivent être observables.
ATTENTION : L'évaluation morphologique au jour 7 constitue une étape essentielle préalable à la validation ultérieure par cytométrie en flux. Des macrophages bien différenciés doivent être clairement visibles au microscope, et une proportion élevée de cellules adhérentes présentant une morphologie macrophagique reflète une efficacité de différenciation élevée (une confluence d'environ 70 % de macrophages adhérents présentant la morphologie caractéristique est considérée comme un indicateur de différenciation réussie). Les cultures présentant une faible adhérence, majoritairement des cellules arrondies ou une différenciation morphologique insuffisante ne donneront probablement pas de résultats fiables en cytométrie en flux et ne doivent pas être poursuivies vers la stimulation et la coloration.
3. Polarisation des macrophages (jours 8 à 10)
- Prélèvement et clarification du milieu conditionné
- Au jour 8, aspirez soigneusement les 15 mL de milieu de la boîte de culture sans perturber les macrophages adhérents, puis transférez-les dans un tube conique stérile de 50 mL.
- Centrifugez le milieu recueilli à 400 × g pendant 5 min afin de former un culot de débris cellulaires.
- Conservez le surnageant clarifié pour l'étape suivante.
- Stimulation par l'interféron gamma (IFN-γ) et le lipopolysaccharide (LPS)
- Transférez les 15 mL de surnageant clarifié dans un nouveau tube stérile et ajoutez 100 ng/mL d'IFN-γ et 1 µg/mL de LPS.
- Mélangez soigneusement par aspiration et expulsion douce à l’aide d’une pipette (5 à 10 fois) afin d’assurer une distribution uniforme des cytokines sans introduire de bulles.
- Replongez les 15 mL entiers de milieu enrichi en cytokines dans la boîte de culture d’origine, en pipetant délicatement le long de la paroi interne pour éviter de perturber les macrophages adhérents.
- Incubez à 37 °C avec 5 % de CO₂ pendant 48 h (du jour 8 au jour 10).
NOTE : Utilisez un milieu conditionné (ancien) afin de préserver les facteurs autocrines et paracrines. Cette combinaison d’IFN-γ et de LPS est utilisée pour polariser les macrophages vers un phénotype pro-inflammatoire. Dans les conditions de stimulation par l’IFN-γ (100 ng/mL) et le LPS (1 µg/mL) utilisées dans ce protocole, les macrophages présentent des modifications morphologiques caractéristiques, notamment des lamellipodes allongés compatibles avec un état activé pro-inflammatoire, ainsi que l’expression de CD11b et de CD80.
PRÉCAUTION : Manipulez le LPS conformément aux procédures de sécurité en laboratoire, car il s’agit d’un endotoxine biodégradable pouvant provoquer des réponses inflammatoires en cas d’exposition.
4. Confirmation des marqueurs du phénotype inflammatoire des macrophages stimulés par l'IFN-γ et le LPS par cytométrie en flux
- Récolte des cellules
- Récupérez un sous-ensemble de macrophages polarisés au jour 10 pour le phénotypage.
- Ajoutez 10 mM de EDTA dans du PBS et incubez pendant 10 à 15 min à 37 °C.
- Détachez les cellules par pipetage doux.
NOTE : Prolongez l'incubation avec l'EDTA de 30 min supplémentaires à 37 °C si les cellules restent adhérentes, puis répétez le pipetage doux. Évitez le pipetage vigoureux ou le raclage mécanique afin de préserver la viabilité cellulaire et l'intégrité des marqueurs de surface.
- Préparation de la coloration par anticorps
- Colorez les cellules avec des anticorps conjugués à des fluorochromes dirigés contre CD11b (marqueur pan-lignée des macrophages), CD80 (marqueur inflammatoire) et CD206 (marqueur anti-inflammatoire utilisé comme marqueur d'exclusion négative pour l'identification du phénotype inflammatoire).
- Procédure de coloration
- Transférez 5 × 10⁵ macrophages détachés dans un tube de cytométrie en flux contenant 100 µL de PBS froid.
- Ajoutez les anticorps CD11b-FITC, CD80-PE et CD206-PerCP-Cy5.5 à une concentration finale de 1 µg/mL chacun.
- Mélangez la suspension cellulaire par pipetage doux.
- Incubez les échantillons sur glace pendant 1 h, à l'abri de la lumière.
- Centrifugez les échantillons à 300 × g pendant 1 min à 4 °C.
- Aspirez soigneusement le surnageant.
- Ajoutez 0,5 mL de PBS froid pour laver le culot cellulaire.
- Centrifugez les échantillons à 300 × g pendant 1 min à 4 °C.
- Jetez le surnageant.
- Resuspendez le culot cellulaire dans 200 µL de PBS froid.
- Ajoutez du DAPI à une concentration finale de 1 µg/mL.
NOTE : Incluez des contrôles d'isotype appropriés et un colorant de viabilité (par exemple, DAPI ou colorant fixable Viobility 405/452).
- Analyse par cytométrie en flux
- Acquérez les échantillons colorés à l’aide d’un cytomètre en flux.
- Confirmez l’expression de CD11b et de CD80 dans la population de macrophages.
- Poursuivez vers le test de phagocytose uniquement après avoir confirmé une expression des marqueurs compatible avec un phénotype inflammatoire.
- Acquisition et configuration de la cytométrie en flux
- Configuration de l'appareil
- Configurez le cytomètre en flux en utilisant les canaux suivants : Pacific Blue/V450 (DAPI), FITC (CD11b), PE (CD80) et PerCP-Cy5.5 (CD206).
- Réglez le paramètre d'acquisition pour collecter 10 000 événements par échantillon dans la fenêtre parent définie.
- Étalonnage du seuil et du gain
- Ouvrez quatre diagrammes de dispersion affichant la DSC sur l'axe des abscisses et un canal de fluorophore sur l'axe des ordonnées.
- Préparez des cellules colorées avec des anticorps de contrôle d'isotype correspondant à chaque fluorophore.
- Acquérez les échantillons de contrôle d'isotype.
- Ajustez le gain de chaque canal afin de positionner la population de contrôle d'isotype en dessous de 101 sur l'échelle logarithmique.
- Utilisez ce seuil pour définir les niveaux de signal de fond.
NOTE : Utilisez une plage d'échelle logarithmique de 101 à 101·5 pour établir une séparation fiable entre le signal de fond et le signal spécifique.
- Compensation
- Ajoutez une goutte de billes de compensation dans un tube microcentrifuge de 1,5 mL.
- Ajoutez l'anticorps conjugué au fluorophore correspondant à une concentration finale de 1 µg/mL.
- Incubez pendant 30 min sur glace, à l'abri de la lumière.
- Centrifugez à 400 × g pendant 1 min.
- Jetez le surnageant.
- Resuspendez les billes dans 200 µL de PBS froid.
- Acquérez les contrôles monochromatiques.
- Appliquez la compensation spectrale pour corriger le recouvrement des fluorophores.
- Stratégie de fenêtrage
- Sélection des cellules vivantes
- Affichez Pacific Blue/V450 (DAPI) sur l'axe des ordonnées et la DSC sur l'axe des abscisses.
- Faites une fenêtre sur les événements DAPI-négatifs (en dessous de 101) pour sélectionner les cellules vivantes.
- Identification des macrophages
- Définissez la population de cellules vivantes comme fenêtre parent.
- Affichez FITC (CD11b) sur l'axe des ordonnées et la DSC sur l'axe des abscisses.
- Faites une fenêtre sur les événements CD11b⁺ (au-dessus de 101).
- Identification du phénotype inflammatoire
- Définissez la population CD11b⁺ comme fenêtre parent.
- Affichez PE (CD80) sur l'axe des ordonnées et PerCP-Cy5.5 (CD206) sur l'axe des abscisses.
- Appliquez un fenêtrage en quadrants à 101.5 sur les deux axes.
- Identifiez les cellules CD80⁺CD206⁻ dans le quadrant supérieur gauche (Q1).
- Sélection des cellules vivantes
- Configuration de l'appareil
- Critères d'acceptation
- Confirmez que ≥90 % des cellules dans la fenêtre parent CD11b⁺ sont CD80⁺CD206⁻.
- Poursuivez vers le test de phagocytose uniquement lorsque ce seuil est atteint.
- Répétez l'isolement des PBMC, la différenciation avec M-CSF et la stimulation par IFN-γ/LPS si les échantillons ne satisfont pas à ce critère.
5. Test de phagocytose dépendante des anticorps
REMARQUE : Vérifiez une expression stable de la GFP dans les cellules cancéreuses avant la mise en place du test. Confirmez l'expression de CD24 sur les cellules cibles avant le test. Utilisez des cellules cancéreuses présentant une positivité pour CD24 comprise entre 50 % et 100 % pour des performances optimales. Les cellules MDA-MB-468 utilisées dans ce protocole présentent une positivité de 100 % pour CD24.
- Ensemencement des macrophages
- Ensemencer les macrophages stimulés par l'IFN-γ et le LPS, comme validé à l'étape 4, à raison de 2 × 10⁵ cellules par puits dans une plaque de culture tissulaire de 24 puits.
- Incuber la plaque à 37 °C en conditions statiques avec 5 % de CO₂ pendant 12 à 16 heures pour permettre l'adhérence cellulaire (Figure 2A).
NOTE : S'assurer d'une bonne adhérence des macrophages avant de poursuivre. Des macrophages mal adhérents pourraient se détacher pendant l'imagerie et fausser les résultats.
- Préparation des cellules cancéreuses
- Cultiver des cellules cancéreuses du sein marquées par la GFP et positives pour le CD24 (MDA-MB-468) jusqu'à une confluence de 70 % à 80 %.
- Aspirer le milieu de culture.
- Laver la monocouche cellulaire une fois avec du PBS.
- Détachement des cellules cancéreuses
- Ajouter du PBS contenant 10 mM de EDTA dans la boîte de culture.
- Incuber les cellules à 37 °C pendant 5 à 10 minutes.
- Détacher les cellules par pipetage doux afin d'obtenir une libération complète des cellules.
NOTE : Éviter l'utilisation de la trypsine pour le détachement cellulaire. La digestion enzymatique pourrait cliver le CD24 de la surface cellulaire et compromettre la liaison de l'anticorps.
- Collecte et comptage des cellules cancéreuses
- Recueillir les cellules détachées dans un tube de centrifugation.
- Centrifuger les cellules à 300 × g pendant 5 minutes.
- Jeter le surnageant.
- Resuspendre le culot cellulaire dans du milieu RPMI complet.
- Compter les cellules viables.
- Opsonisation des cellules cancéreuses par anticorps
- Resuspendre les cellules cancéreuses à une densité de 2 × 10⁵ cellules/mL dans 0,5 mL de milieu RPMI complet.
- Ajouter l'anticorps monoclonal anti-CD24 à une concentration finale de 1 µg/mL.
- Mélanger la suspension cellulaire par pipetage doux afin d'assurer une distribution uniforme de l'anticorps.
- Incuber les cellules à 37 °C pendant 30 minutes en conditions statiques.
NOTE : Inclure un contrôle d'IgG d'isotype apparié à la même concentration comme contrôle négatif pour la phagocytose dépendante des anticorps.
- Préparation pour la co-culture
- Ne pas laver les cellules après l'opsonisation.
- Passer directement à la co-culture afin de maintenir le revêtement d'anticorps à la surface cellulaire.
- Mise en place de la co-culture
- Ajouter 1 × 10⁵ cellules cancéreuses du sein marquées par la GFP et opsonisées par anticorps dans chaque puits contenant des macrophages.
- Maintenir un rapport effecteur-cible de 2:1.
NOTE : Ajuster le rapport effecteur-cible selon le plan expérimental. Utiliser des rapports macrophages-cellules cancéreuses plus élevés que le rapport 2:1 décrit (par exemple, 3:1 ou 5:1) afin d'augmenter la fréquence des contacts cellule-cellule et d'améliorer la détection des événements phagocytaires.
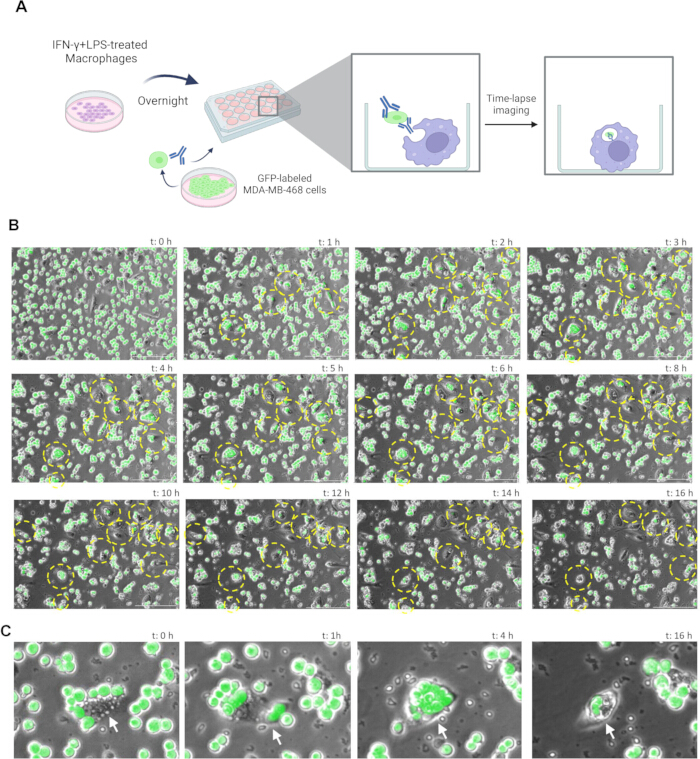
Figure 2. Imagerie en temps réel de la phagocytose cellulaire dépendante des anticorps. (A) Aperçu schématique du système de co-culture et du dispositif d’imagerie en temps réel. Les paramètres d’imagerie comprenaient un intervalle de 10 min sur une durée totale d’acquisition de 16 h (97 images), à l’aide d’un objectif 10× avec des canaux de contraste de phase et de GFP. (B) Images représentatives en temps réel de 1 h à 16 h montrant des événements phagocytaires caractérisés par l’internalisation de cellules cancéreuses positives au GFP par les macrophages au fil du temps. Les cercles pointillés jaunes mettent en évidence des événements phagocytaires représentatifs. Sur le canal de contraste de phase, les cellules cancéreuses englobées apparaissent comme des structures intracellulaires brillantes dans le cytoplasme des macrophages (flèches blanches). Sur le canal GFP, la fluorescence localisée à l’intérieur des macrophages confirme l’internalisation. (C) Vues agrandies d’événements phagocytaires représentatifs à 0, 1, 4 et 16 h, illustrant le processus séquentiel d’englobement des cellules cancéreuses marquées au GFP par les macrophages. La séquence d’images a été choisie comme représentative en raison de la visualisation claire des événements phagocytaires médiés par les macrophages. Les flèches blanches indiquent les macrophages interagissant avec et internalisant les cellules cibles. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
6. Imagerie en laps de temps (système automatisé d'imagerie de cellules vivantes)
REMARQUE : Configurez le protocole d'imagerie à l'aide d'un système d'imagerie automatisée de cellules vivantes Lionheart et du logiciel d'imagerie automatisée de cellules vivantes Gen5 avant le dosage. Suivez une formation appropriée avant d'utiliser le système d'imagerie afin de garantir un paramétrage précis, des performances optimales et une utilisation sécurisée.
- Préparation de l'instrument
- Allumez le système d'imagerie, le module de contrôle environnemental et l'approvisionnement en gaz CO₂ au moins 1 heure avant l'imagerie.
- Ouvrez le panneau de contrôle environnemental dans le logiciel d'imagerie automatisée de cellules vivantes.
- Réglez la température à 37 °C et le CO₂ à 5 %.
- Vérifiez que la température de la chambre se stabilise à ± 0,2 °C et que le taux de CO₂ atteint 5,0 % ± 0,1 % avant de charger la plaque.
- Configuration de la plaque
- Placez la plaque à 24 puits dans la chambre d'imagerie du système d'imagerie.
- Configuration initiale
- Ouvrez le Gestionnaire de tâches du logiciel d'imagerie automatisée de cellules vivantes.
- Sélectionnez [Mode manuel de l'imager].
- Cliquez sur [Capturer maintenant] pour initialiser les paramètres d'imagerie.
- Sélectionnez un objectif 10×.
- Sélectionnez « microplaque » comme réglage de filtre.
- Sélectionnez une plaque à 24 puits dans la bibliothèque de plaques du logiciel d'imagerie automatisée de cellules vivantes.
- Mise au point et configuration de l'image
- Sélectionnez le canal de contraste de phase.
- Sélectionnez un puit représentatif (par exemple, A1).
- Activez la mise au point automatique avant l'acquisition en laps de temps.
- Capturez une image à l'aide de l'icône caméra.
- Vérifiez la morphologie cellulaire et la qualité de la mise au point.
- Naviguez vers [Traiter/Analyser].
- Sélectionnez [Créer une expérience à partir d'un ensemble d'images] pour configurer l'expérience.
- Paramètres d'acquisition en laps de temps
- Ouvrez le panneau de réglages [Procédure].
- Réglez la température à 37 °C et le CO₂ à 5 %.
- Dans [Démarrer la cinétique], réglez la durée d'exécution à 16:00:00.
- Réglez l'intervalle d'imagerie à 0:10:00.
- Réglez le nombre total de lectures à 97.
- Utilisez un intervalle d'imagerie de 10 à 15 minutes pour équilibrer la résolution temporelle et la phototoxicité tout en capturant les premiers événements phagocytaires.
- Configuration des canaux d'imagerie
- Réglez le canal 1 sur contraste de phase.
- Réglez le canal 2 sur GFP (Ex 469/35, Em 525/39).
- Sélectionnez un objectif 10× pour un champ de vision et une résolution optimaux.
- Réglez l'éclairage, le temps d'intégration et le gain sur [Auto], ou ajustez-les manuellement.
- Utilisez un temps d'exposition typique pour GFP de 100 à 300 ms afin d'éviter la saturation du signal.
- Appliquez des paramètres d'imagerie identiques à tous les puits.
- Configuration des positions d'imagerie
- Ouvrez le menu [Définir les balises].
- Désactivez l'acquisition en Z-stack.
- Désactivez l'acquisition en montage.
- Réalisez l'imagerie sur un seul plan focal.
- Définissez manuellement les positions d'imagerie en sélectionnant des régions représentatives et non superposées dans chaque puit à l'aide de l'icône microscope.
- Conservez des positions d'imagerie identiques pour tous les points temporels.
- Sélectionnez au moins 4 à 6 champs de vision par puit.
- Acquisition en laps de temps
- Cliquez sur [Lecture] pour démarrer l'imagerie automatisée en laps de temps.
- Exportation et visualisation des données
- Ouvrez le fichier d'expérience enregistré après l'acquisition.
- Sélectionnez les positions d'imagerie.
- Exportez les données en laps de temps au format MP4.
- Ouvrez l'[Outil de traitement].
- Appliquez la [Déconvolution d'image] si nécessaire pour améliorer la visualisation et identifier des événements de phagocytose représentatifs.
REMARQUE : Utilisez l'imagerie en laps de temps uniquement pour une visualisation qualitative. Des cellules cancéreuses GFP-positives non internalisées peuvent se superposer ou s'associer de manière transitoire aux macrophages, entraînant des signaux faux positifs. Effectuez une analyse quantitative à l'aide d'un test terminal distinct.
7. Quantification du phagocytose en point final
- Élimination des cellules non internalisées
- Réaliser le test dans des conditions de co-culture identiques.
- Terminer l'expérience après 4 h.
- Retirer le milieu de culture.
- Ajouter du PBS contenant 10 mM de EDTA.
- Incuber à 37 °C pendant 5 min.
- Laver délicatement avec du PBS pour éliminer les cellules positives pour la GFP non internalisées.
- Ajouter du milieu frais pour les macrophages.
- Acquisition d'images pour la quantification
- Acquérir les images en contraste de phase et dans le canal GFP.
- Capturer au moins 4 à 6 champs par puits.
- Analyser un minimum de trois puits par condition.
- Définition des événements phagocytaires
- Identifier les macrophages contenant des signaux positifs pour la GFP entièrement inclus à l'intérieur de la limite cellulaire.
- Analyse d'images
- Ouvrir les images dans le logiciel ImageJ.
- Utiliser le module complémentaire Cell Counter.
- Compter le nombre total de macrophages.
- Compter les macrophages contenant des cellules positives pour la GFP internalisées.
- Calcul de l'indice de phagocytose
- Calculer :
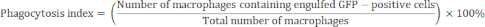
- Réaliser l'analyse de manière aveugle.
- Répéter l'analyse sur au moins trois expériences indépendantes.
- Calculer :
- Présentation des données
- Présenter des images représentatives en enregistrement temporel dans l'ordre chronologique (Figure 2B et Figure 2C).
- Présenter des images représentatives du point final (Figure 3A et Figure 3B).
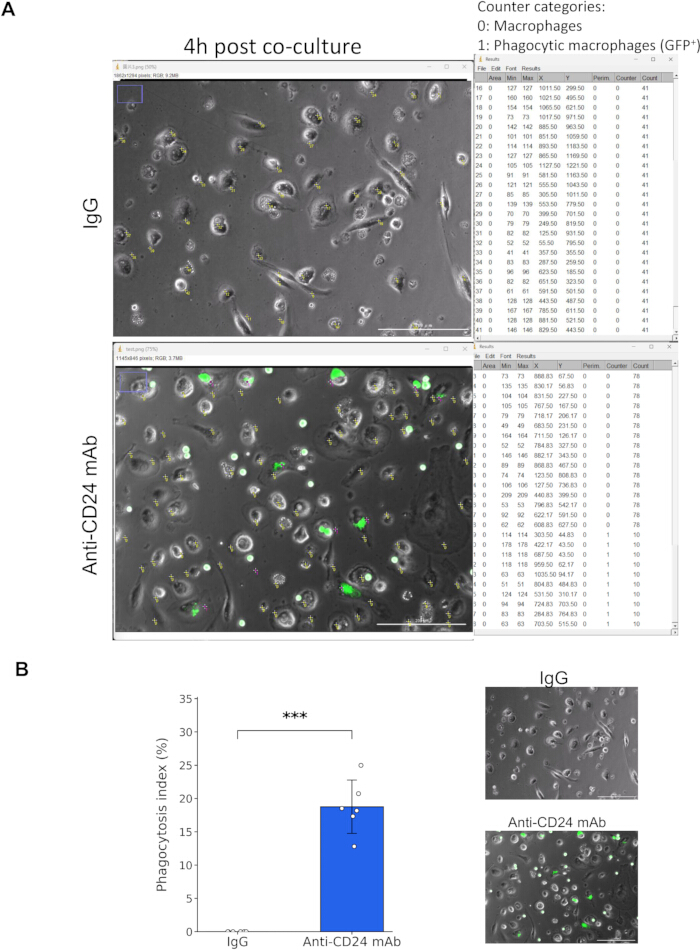
Figure 3. Quantification de la phagocytose macrophagique dépendante des anticorps par analyse en point final. (A) Images représentatives en contraste de phase et en fluorescence GFP de macrophages en co-culture avec des cellules cancéreuses du sein marquées au GFP pendant 4 h, suivie de l'élimination des cellules non internalisées par un traitement au EDTA. Les canaux contraste de phase et GFP ont été superposés afin d'identifier les macrophages et les cibles GFP-positives internalisées. Le nombre de macrophages (compteur 0) et de macrophages GFP-positifs ayant effectué une phagocytose (compteur 1) a été déterminé à l’aide du module complémentaire Cell Counter d’ImageJ. Dans la condition contrôle IgG, aucun événement de phagocytose n’a été observé, tandis que le traitement par l’anticorps monoclonal anti-CD24 a entraîné la présence de signaux GFP-positifs intracellulaires nets dans les macrophages, indiquant une phagocytose active. Échelle = 200 µm. (B) Quantification de l’indice de phagocytose, défini comme le pourcentage de macrophages contenant des cellules GFP-positives internalisées par rapport à l’ensemble de la population de macrophages. L’anticorps monoclonal anti-CD24 a significativement augmenté l’indice de phagocytose par rapport au contrôle IgG (0,00 ± 0,00 % contre 18,76 ± 4,01 %, moyenne ± écart-type ; n = 6 champs par groupe ; ***p < 0,001, test t non apparié de Welch). Les données sont représentatives d’au moins trois expériences indépendantes. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
La génération et la polarisation réussies de macrophages à partir de PBMC ont été confirmées par une évaluation morphologique et une analyse en cytométrie en flux (Figure 1). Les PBMC isolés par centrifugation en gradient de densité ont été cultivés dans un milieu supplémenté en M-CSF, conduisant à des cellules adhérentes présentant une morphologie typique de macrophages au jour 7. Après stimulation par l'IFN-γ et le LPS, les cellules ont exprimé un phénotype compatible avec une activation d...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Plusieurs étapes de ce protocole sont essentielles pour obtenir des résultats fiables et reproductibles. Premièrement, la qualité et la pureté de l'isolement des PBMC influencent directement le rendement en macrophages et l'efficacité de leur différenciation. Un dépôt soigneux du sang dilué sur le gradient de Ficoll et une centrifugation effectuée sans freinage sont indispensables pour préserver l'interface du buffy coat. Une lyse incomplète des hématies ou une incubation excessive avec le tampon de lyse compromettra la ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs déclarent ne pas avoir de conflit d'intérêts.
Remerciements
Ce travail a été soutenu par le Cancer Biology and Precision Therapeutics Center de l'Université médicale de Chine, dans le cadre du programme de centres de recherche d'excellence du projet Higher Education Sprout du ministère de l'Éducation (MOE) de Taïwan (CBPTC-PROJ-5-2).
Nous remercions le Centre de biologie du cancer et de thérapeutique de précision pour le financement et le soutien académique fournis.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Solution mère d'acide éthylènediaminetétraacétique (EDTA) 0,5 M | Sigma-Aldrich (ou équivalent) | E7889 (ou équivalent) | Utilisé pour préparer une solution working d'EDTA à 10 mM dans du PBS pour le détachement des cellules |
| Plaques de culture tissulaire à 24 puits (traitées pour la culture tissulaire) | Corning (ou équivalent) | 3524 | Utilisé pour la co-culture de macrophages et de cellules cancéreuses lors du test de phagocytose |
| Anticorps anti-CD206 humain (cytométrie en flux) | BioLegend (ou équivalent) | 321122 (ou équivalent) | Marqueur du phénotype macrophagique alternatif |
| Anticorps monoclonal anti-CD24 humain | Thermo Fisher Scientific (ou équivalent) | MA1-91384 (ou équivalent) | Utilisé pour opsoniser les cellules cancéreuses en vue d'une phagocytose dépendante des anticorps |
| Système automatisé d'imagerie de cellules vivantes avec chambre de contrôle environnemental (par exemple, Lionheart FX) | Agilent Technologies (ou équivalent) | Microscope automatisé BioTek Lionheart FX | Permet une imagerie en laps de temps prolongé sous température contrôlée et 2 conditions |
| Logiciel d'imagerie pour l'imagerie automatisée de cellules vivantes (par exemple, Gen5) | Agilent Technologies (ou équivalent) | N/A | Utilisé pour l'acquisition et l'analyse de données d'imagerie en laps de temps |
| Centrifugeuse (rotor à godets balançants) | Thermo Fisher Scientific (ou équivalent) | Multifuge X4R Pro avec rotor TX-1000 (ou équivalent) | Utilisé pour l'isolement des PBMC et les étapes de lavage cellulaire |
| 2 incubateur (37°C, 5 % 2) | Thermo Fisher Scientific (ou équivalent) | Forma Chaleur directe 2 Incubateur (ou équivalent) | Maintient les conditions physiologiques pour la culture cellulaire |
| 2 alimentation en gaz avec régulateur | Agilent Technologies (ou équivalent) | N/A | Fournitures 2 pour le contrôle environnemental du système d'incubation et d'imagerie |
| Tubes coniques (15 mL et 50 mL) | Corning (ou équivalent) | 352070 (ou équivalent) | Utilisé pour l'isolement, le lavage et les étapes de centrifugation des PBMC |
| Tubes de prélèvement sanguin revêtus d'EDTA (vacutainers) | BD Biosciences (ou équivalent) | 367863 (ou équivalent) | Utilisé pour la collecte d'échantillons de sang total auprès de donneurs |
| Ficoll-Paque PLUS | Cytiva (ou équivalent) | 17144003 (ou équivalent) | Milieu à gradient de densité pour l'isolement des PBMC |
| cytomètre en flux (par exemple, FACSCanto II) | BD Biosciences (ou équivalent) | BD FACSCanto II | Utilisé pour l'analyse phénotypique des macrophages |
| Billes de compensation (cytométrie en flux) | Biolegend (ou équivalent) | 424602 | Utilisé pour les contrôles de compensation en une seule couleur |
| anticorps anti-CD11b humain marqué par la FITC (cytométrie en flux) | BioLegend (ou équivalent) | 101205 (ou équivalent) | Marqueur utilisé pour identifier les macrophages |
| anticorps PE anti-CD80 humain (cytométrie en flux) | BioLegend (ou équivalent) | 375410 (ou équivalent) | Marqueur associé au phénotype de macrophage activé |
| Ligne cellulaire de cancer du sein exprimant la GFP (MDA-MB-468) | ATCC (ou équivalent) | HTB-132 (ou équivalent) | Cellules cibles utilisées dans le test de phagocytose ; la GFP permet la visualisation |
| Milieu ImmunoCult-SF pour macrophages | STEMCELL Technologies (ou équivalent) | 10961 (ou équivalent) | Milieu sans sérum utilisé pour la différenciation des macrophages |
| Dulbecco’milieu de culture de Dulbecco (DMEM) | Thermo Fisher Scientific (ou équivalent) | 12100046 | Utilisé pour la culture et la resuspension des cellules cancéreuses |
| Anticorps de contrôle d'isotype (IgG) | Bio X Cell (ou équivalent) | BE0297 (ou équivalent) | Contrôle négatif pour le test de phagocytose dépendante des anticorps |
| Lipopolysaccharide (LPS) | Sigma-Aldrich (ou équivalent) | L2630 (ou équivalent) | Stimulus utilisé pour activer les macrophages en combinaison avec l'IFN-γ |
| Interféron gamma humain recombinant (IFN-γ) | STEMCELL Technologies (ou équivalent) | 78020 (ou équivalent) | Cytokine utilisé pour l'activation des macrophages |
| Facteur de stimulation des colonies de macrophages humain recombinant (M-CSF) | STEMCELL Technologies (ou équivalent) | 78057 (ou équivalent) | Facteur de croissance utilisé pour la différenciation des macrophages |
| Pipettes Pasteur ou pipettes sérologiques | Jetbiofil (ou équivalent) | GSP010010 (ou équivalent) | Utilisé pour la manipulation de liquides lors de l'isolement des PBMC et de la culture cellulaire |
| PBS (Ca2+-/Mg2+-sans | Thermo Fisher Scientific (ou équivalent) | BP399-500 (ou équivalent) | Tampon utilisé pour les étapes de lavage des cellules et de dilution |
| Plaques de Petri (100 mm, non–traité pour culture tissulaire | Corning (ou équivalent) | 430591 | Utilisé pour la différenciation des macrophages par sélection par adhérence |
| Tampon de lyse des érythrocytes (globules rouges) | BioLegend (ou équivalent) | 420301 (ou équivalent) | Utilisé pour éliminer les globules rouges lors de l'isolement des PBMC |
| Colorant fixable Viobility 405/452 | Miltenyi Biotec (ou équivalent) | 130-130-404 (ou équivalent) | Utilisé pour évaluer la viabilité cellulaire lors de l'analyse par cytométrie en flux |
| DAPI | Sigma-Aldrich (ou équivalent) | D9542 (ou équivalent) | Utilisé pour l'exclusion des cellules mortes en cytométrie en flux |
Références
- Sung H, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Perou CM, et al. Molecular portraits of human breast tumours. Nature. 2000;406(6797):747-752.
- Foulkes WD, Smith IE, Reis-Filho JS. Triple-negative breast cancer. N Engl J Med. 363(20):1938-1948.
- Dent R, et al. Triple-negative breast cancer: Clinical features and patterns of recurrence. Clin Cancer Res. 2007;13(15 Pt 1):4429-4434.
- Lin NU, et al. Sites of distant recurrence and clinical outcomes in patients with metastatic triple-negative breast cancer: High incidence of central nervous system metastases. Cancer. 2008;113(10):2638-2645.
- Bianchini G, De Angelis C, Licata L, Gianni L. Treatment landscape of triple-negative breast cancer - expanded options, evolving needs. Nat Rev Clin Oncol. 2022;19(2):91-113.
- Lecoultre M, Dutoit V, Walker PR. Phagocytic function of tumor-associated macrophages as a key determinant of tumor progression control: A review. J Immunother Cancer. 2020;8(2).
- Mantovani A, Allavena P, Marchesi F, Garlanda C. Macrophages as tools and targets in cancer therapy. Nat Rev Drug Discov. 2022;21(11):799-820.
- Chan SH, Lin CY, Tseng HJ, Wang LH. Cd24a knockout results in an enhanced macrophage- and cd8⁺ t cell-mediated anti-tumor immune responses in tumor microenvironment in a murine triple-negative breast cancer model. J Biomed Sci. 2025;32(1):73.
- Majeti R, et al. CD47 is an adverse prognostic factor and therapeutic antibody target on human acute myeloid leukemia stem cells. Cell. 2009;138(2):286-299.
- Barkal AA, et al. CD24 signalling through macrophage siglec-10 is a target for cancer immunotherapy. Nature. 2019;572(7769):392-396.
- Wang X, et al. CD24-siglec axis is an innate immune checkpoint against metaflammation and metabolic disorder. Cell Metab. 2022;34(8):1088-1103.e1086.
- Chan SH, et al. Identification of the novel role of CD24 as an oncogenesis regulator and therapeutic target for triple-negative breast cancer. Mol Cancer Ther. 2019;18(1):147-161.
- Huang S, Zhang X, Wei Y, Xiao Y. Checkpoint CD24 function on tumor and immunotherapy. Front Immunol. 2024;15:1367959.
- Weiskopf K, Weissman IL. Macrophages are critical effectors of antibody therapies for cancer. MAbs. 2015;7(2):303-310.
- Cao X, et al. Promoting antibody-dependent cellular phagocytosis for effective macrophage-based cancer immunotherapy. Sci Adv. 2022;8(11):eabl9171.
- Aderem A, Underhill DM. Mechanisms of phagocytosis in macrophages. Annu Rev Immunol. 1999;17:593-623.
- Flannagan RS, Jaumouille V, Grinstein S. The cell biology of phagocytosis. Annu Rev Pathol. 2012;7:61-98.
- Denardo DG, Ruffell B. Macrophages as regulators of tumour immunity and immunotherapy. Nat Rev Immunol. 2019;19(6):369-382.
- Horsthemke M, Wilden J, Bachg AC, Hanley PJ. Time-lapse 3d imaging of phagocytosis by mouse macrophages. J Vis Exp. 2018;(140). doi:10.3791/57566.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible