Ce protocole fournit une méthode normalisée de découpe intra-chambre permettant de déterminer l'apparition, le moment du pic et la cinétique des émissions de composés volatils induites par une blessure, associée à des mesures simultanées d'échanges gazeux.
Article de méthode
Une méthode de coupe intra-chambre pour la quantification en temps réel des composés volatils induits par le blessage foliaire et des échanges gazeux
31 vues
⸱
11 septembre 2026
Dans cet article
Résumé
Résumé
Les composés organiques volatils (COV) émis par les feuilles des plantes jouent un rôle clé dans la signalisation du stress, les interactions plante-atmosphère et la défense des plantes. Parmi ceux-ci, les COV induits par des blessures (COV-blessure) sont libérés en quelques secondes suivant un dommage mécanique, une herbivorie ou une perturbation environnementale. La dynamique de leur émission dépend fortement du moment, de la gravité et de la méthode de la perturbation tissulaire. Toutefois, leur quantification précise reste difficile en raison d'artéfacts mécaniques, de conditions d'exposition variables et de retards entre la blessure et la mesure. Cette étude présente un protocole standardisé d'excision foliaire en chambre pour la surveillance en temps réel des COV-blessure et des échanges gazeux. Un coupeur de qualité chirurgicale a été intégré à une chambre portable d'échange gazeux afin de réaliser des coupes nettes et contrôlées à l'intérieur d'une chambre scellée, sous des conditions stables de lumière, d'humidité, de CO2 et de température. Un spectromètre de masse à temps de vol avec réaction de transfert de protons (PTR-TOF-MS) a mesuré en continu les émissions volatiles à la sortie de la chambre, minimisant ainsi les retards et la distorsion du signal. Ce dispositif permet de déterminer avec une grande fidélité temporelle le début de l'émission, le moment du pic, la vitesse maximale de montée et la libération totale. L'application de cette méthode à Quercus rubra, Acer platanoides et Gossypium hirsutum a démontré sa capacité à distinguer des profils d'émission induits par blessure différents selon les types foliaires contrastés. En éliminant les retards liés aux méthodes d'échantillonnage conventionnelles, cette approche permet de caractériser la trajectoire cinétique complète des émissions induites par blessure et surmonte les principales limites des méthodes antérieures. Elle fournit un cadre solide pour l'étude des réponses rapides au stress en physiologie végétale, en biochimie écologique et dans les interactions plante-atmosphère.
Introduction
Les plantes réagissent à une blessure en libérant un signal chimique rapide, mais la capture précise de ce signal reste techniquement difficile. En quelques secondes après un herbivorie, un dommage causé par le vent ou une perturbation mécanique, les plantes émettent une bouffée transitoire de composés organiques volatils (COV) qui activent les défenses internes et préparent les plantes voisines1,2,3,4. Ces COV induits par la blessure (COVb) comprennent les volatils des feuilles vertes (VFV), le méthanol, les alcools et aldéhydes à chaîne courte, les terpénoïdes et les dérivés des oxylipines. Ils proviennent soit d'une synthèse de novo dans les cellules du mésophylle, soit de la rupture de structures de stockage telles que les canaux à résine et les trichomes. En tant que signaux de stress immédiats, les COVb coordonnent les défenses physiologiques, médient la communication entre plantes et interagissent avec la chimie atmosphérique1,5,6,7.
Étant donné que l'herbivorie naturelle associe des dommages mécaniques à des éliciteurs salivaires et microbiens, les études expérimentales utilisent des blessures simulées afin d'isoler les réponses liées uniquement aux lésions physiques8. Toutefois, la nature transitoire des composés organiques volatils induits par les blessures (wVOCs) les rend intrinsèquement difficiles à capturer. Les méthodes classiques, telles que l'échantillonnage en espace de tête statique couplé à la chromatographie en phase gazeuse-spectrométrie de masse (GC-MS), passent souvent à côté du pic initial d'émission et déforment son profil cinétique9,10. Les retards d'équilibre, les températures d'incubation élevées et les lignes d'échantillonnage prolongées augmentent le temps de séjour et altèrent le signal enregistré, en particulier pour les composés réactifs tels que les sesquiterpènes9,11,12. Pris ensemble, ces artefacts réduisent l'amplitude du signal et masquent la dynamique temporelle des émissions volatiles induites par les blessures, compliquant ainsi l'interprétation des réponses des plantes au stress.
De nombreuses études interrompent également la mesure pour blesser les feuilles à l'extérieur de la chambre. Cette interruption déstabilise le débit de gaz, modifie le moment du traumatisme et réduit le contrôle sur la précision de l'incision13,14,15. En conséquence, les premières minutes suivant la blessure sont souvent perdues ou altérées13, précisément au moment où les taux d'émission atteignent leur maximum et où apparaissent des profils cinétiques caractéristiques3,6,16,17. Certaines approches ont réalisé la section des feuilles à l'intérieur de chambres de grand volume en utilisant des lames en téflon ou des perforateurs mécaniques12,18,19. Toutefois, ces dispositifs ont souvent entraîné une instabilité d'étanchéité, des longueurs de coupure inconstantes et des incisions irrégulières dues au déplacement de l'outil ou aux différences de résistance des feuilles. Le grand volume de la chambre a en outre retardé le renouvellement de l'air et élargi le signal des composés volatils16. Prises ensemble, ces limitations expérimentales empêchent une caractérisation précise de la dynamique temporelle des émissions induites par une blessure dans des conditions physiologiques stables.
Pour surmonter ces difficultés, cette étude présente un protocole de blessure en temps réel à l'intérieur de la chambre qui intègre un coupeur de qualité chirurgicale dans un système d'échange gazeux couplé à une spectrométrie de masse à temps de vol avec réaction de transfert de protons (PTR-TOF-MS). Ce protocole permet une blessure foliaire et une détection des composés volatils synchronisées dans des conditions environnementales contrôlées, tout en mesurant simultanément les flux de volatils et les échanges gazeux avec une haute résolution temporelle. En réalisant la section foliaire directement dans la chambre de mesure, le protocole réduit au minimum les retards d'échantillonnage associés aux approches conventionnelles, préserve la dynamique temporelle des composés volatils induits par la blessure et émis rapidement, et illustre une procédure de coupe standardisée sur des feuilles aux propriétés mécaniques différentes. Cette résolution temporelle permet une caractérisation directe du début, du moment du pic et des cinétiques spécifiques à l'espèce des émissions de composés volatils induites par la blessure.
Le protocole a été évalué à l'aide de trois espèces présentant des caractéristiques anatomiques et physiologiques contrastées (Quercus rubra, Acer platanoides et Gossypium hirsutum) afin de démontrer son applicabilité à divers types de feuilles. L'application de conditions de mesure identiques pour toutes les espèces montre que le protocole permet de résoudre la dynamique des COV induits par des blessures sur une large gamme de profils d'émission, tout en minimisant la variabilité expérimentale. Cette approche est largement applicable aux études nécessitant des mesures à haute résolution temporelle des COV induits par des blessures dans des conditions environnementales contrôlées. Ensemble, ces caractéristiques offrent un cadre normalisé pour l'étude des réponses rapides des plantes au stress et facilitent l'application du protocole à différentes espèces et systèmes expérimentaux.
Protocole
Toutes les plantes ont été cultivées dans des conditions d'environnement contrôlé, en chambre de croissance. Les réactifs et l'équipement utilisés sont répertoriés dans le Tableau du matériel.
1. Construction et installation du coupe-feuille intra-chambre
- Concevoir un coupe-feuille rotatif conçu pour s'adapter aux dimensions internes (4 cm × 2 cm) de la tête de mesure standard.
- Fixer une lame de rasoir à une tige en acier inoxydable (diamètre de 1 mm) à l’aide de brasure d’argent afin d’assurer la stabilité mécanique.
ATTENTION : Les lames de rasoir sont extrêmement tranchantes. Porter des gants résistants aux coupures lors de la manipulation. Après usage, éliminer les lames de rasoir conformément aux procédures de sécurité en laboratoire de l’établissement pour les objets tranchants. Effectuer la brasure d’argent sous une ventilation appropriée et porter une protection oculaire. - Insérer la tige porte-lame dans une aiguille de seringue en acier inoxydable (diamètre extérieur de 1,6 mm) afin de permettre une rotation axiale libre.
- Sceller les deux extrémités de l’aiguille à l’aide d’un bouchon en polytétrafluoroéthylène (PTFE) à faible émission afin de maintenir des conditions étanches tout en préservant la rotation.
- Monter une poignée de rotation manuelle à l’extrémité proximale de la tige afin de permettre une rotation contrôlée du coupeur interne.
- Fixer deux supports flexibles fabriqués à partir d’une feuille de laiton ressort (épaisseur de 0,2 mm) à la surface extérieure de l’aiguille afin de fixer le coupeur à la moitié inférieure de la chambre.
- Créer une incision triangulaire dans le joint de la chambre inférieure afin de permettre l’insertion de la lame sans contact avec la surface de la feuille.
- Sceller le point d’insertion à l’aide d’une pâte d’étanchéité à faible émission afin d’éviter toute fuite de gaz.
REMARQUE : Avant de poursuivre, vérifier que l’installation du coupeur n’a pas compromis l’étanchéité de la chambre. Confirmer que la chambre se ferme complètement, que le thermocouple reste en contact avec la surface de la feuille, et que le système d’échange gazeux indique un débit d’air stable sans signe de fuite. Ne poursuivre que lorsque des conditions stables de la chambre ont été confirmées. Choisir la longueur de la lame afin d’obtenir une coupe d’environ 10 mm. La mécanique intégrée du coupeur et sa position à l’intérieur de la chambre à feuille sont illustrées dans la Figure 1B.
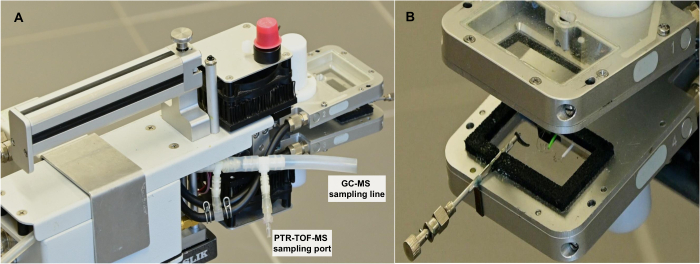
Figure 1 : Système modifié d'échange gazeux muni d'un coupe-feuille intégré dans la chambre et de lignes d'échantillonnage des composés volatils. (A) Aperçu du système d'échange gazeux modifié, montrant le port d'échantillonnage PTR-TOF-MS et la ligne d'échantillonnage CPG-SM positionnée près de la sortie de la chambre pour la collecte des composés volatils. (B) Vue agrandie de la chambre ouverte, montrant le mécanisme de coupe intégré et la zone où la feuille est positionnée pendant la blessure. Le coupeur est intégré de manière hermétique dans la chambre, permettant de blesser la feuille sans ouvrir l'enceinte durant la mesure. Cette configuration permet un suivi en temps réel des émissions de composés volatils et des échanges gazeux dans des conditions environnementales contrôlées. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
2. Configuration des voies d'échantillonnage des composés volatils
- Installez un téflon en forme de T (1/16″ ou 1/8″ de diamètre interne) à proximité de la sortie de la chambre (Figure 1A) afin de minimiser la longueur du tube entre la chambre et l'analyseur de composés volatils.
- Reliez la sortie au système de collecte des COV à l’aide d’un tube inerte (par exemple, FEP ou PTFE ; diamètre intérieur de 1,6 mm). Installez le raccord en T immédiatement adjacent à la sortie de la chambre pour que le tube entre la chambre et l'analyseur de composés volatils soit aussi court que possible, réduisant ainsi au minimum le volume interne, le temps de séjour et les pertes par adsorption.
- Maintenez le débit d’air dans la chambre à 750 µmol s-1.
REMARQUE : Un tube inerte court réduit l’adsorption et le temps de séjour des composés réactifs.
3. Préparation du matériel végétal
- Faire pousser Quercus rubra, Acer platanoides et Gossypium hirsutum dans une chambre à environnement contrôlé à 25 °C le jour / 20 °C la nuit, 60 % d'humidité relative, une intensité lumineuse de 1000 µmol m-2 s-1 et un photopériode de 16 h/8 h pendant 4 mois.
- Maintenir les plantes sous une concentration ambiante de CO2 (~430 ppm) tout au long de l'expérience.
- Arroser toutes les plantes tous les deux jours jusqu'à ce que le sol atteigne sa capacité au champ.
- Sélectionner des feuilles complètement déployées et non sénescents pour des expériences à stade de développement comparable.
4. Expériences de blessure des feuilles et de collecte des COV
- Enclorez la feuille et définissez les conditions environnementales
- Enclorez une feuille attachée complètement développée dans la cuvette équipée du coupeur interne.
- Réglez la température du bloc à 25 °C, l'humidité relative de l'air à 60 %, l'intensité de la lumière actinique à 1000 µmol m-2 s-1 (90 % rouge, 10 % bleu) et le débit d'air à 750 µmol s-1.
- Laissez la feuille s'acclimater aux conditions environnementales choisies jusqu'à l'obtention de valeurs stables d'assimilation nette de CO2, de conductance stomatique et de signaux de base des COV, généralement atteintes 20 à 30 minutes après l'enclosure de la feuille.
- Réalisez les mesures d'échanges gazeux, de fluorescence et de suivi des COV
- Commencez les mesures simultanées d'échanges gazeux et de COV avec une résolution de 1 Hz.
- Après avoir terminé les mesures d'échanges gazeux, enregistrez le rendement de fluorescence en état stable (Fs), puis appliquez une impulsion saturante (8000 µmol m-2 s-1, 0,6 s) via le fluorimètre de chambre (3055-FL) afin de déterminer le rendement maximal de fluorescence (Fm′) chez les feuilles adaptées à la lumière.
- Éteignez la lumière actinique et adaptez la feuille à l'obscurité pendant 20 minutes.
- Enregistrez la respiration nocturne de la feuille.
- Mesurez la fluorescence initiale (F₀) à l'aide d'une faible lumière modulée de mesure (0,03 µmol m-2 s-1), suivie d'une impulsion saturante pour obtenir la fluorescence maximale chez les feuilles adaptées à l'obscurité (Fm).
- Rallumez la lumière actinique.
- Poursuivez les mesures de COV et d'échanges gazeux dans les mêmes conditions environnementales jusqu'à stabilisation du signal de base avant blessure.
REMARQUE : Avant de provoquer la blessure, vérifiez que les conditions environnementales choisies restent stables et que l'assimilation nette de CO₂, la transpiration et les signaux de base des COV ont atteint des valeurs stables. Poursuivez uniquement lorsque ces conditions sont maintenues sous les paramètres de mesure sélectionnés.
- Blessure de la feuille et collecte des COV
- Insérez la première cartouche de COV dans la ligne de sortie et connectez-la à une pompe portable d'échantillonnage d'air à débit constant. Faites passer l'air de la chambre à travers la cartouche à un débit constant de 200 mL min-1. Utilisez une cartouche adsorbante en acier inoxydable à lit multiple (longueur de 10,5 cm, diamètre intérieur de 3 mm), adaptée à la capture de COV C3–C17, remplie de Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) et Carbotrap X 20/40 mesh (0,1 g), disposés du plus faible au plus fort pouvoir d'adsorption dans le sens de l'échantillonnage.
REMARQUE : Avant l'échantillonnage, conditionnez les cartouches en faisant passer de l'hélium de haute pureté à 200 mL min-1 pendant 3 heures à 250 °C. La collecte sur cartouche permet une analyse ultérieure par GC-MS en mode déconnecté pour l'identification des composés, si requis par les objectifs expérimentaux. Bien que la collecte sur cartouche fasse partie du protocole décrit ici, les résultats représentatifs présentés dans cette étude proviennent de mesures continues par PTR-TOF-MS. Adaptez le choix de l'adsorbant à la gamme de volatilité et à la polarité des COV ciblés, ainsi qu'aux conditions d'échantillonnage. - Collectez les COV pré-blessure pendant 15 minutes à 200 mL min-1.
- Remplacez la cartouche et collectez les COV pendant 2 minutes.
- Faites pivoter le coupeur interne de 360° pour exciser la feuille sans ouvrir la chambre, puis ramenez la lame à sa position initiale.
REMARQUE : Placez la feuille dans la chambre de manière à ce que l'incision soit réalisée dans le limbe enfermé tout en maintenant un scellement complet de la chambre. Dans la mesure permise par la taille et la morphologie de la feuille, évitez de couper la nervure principale et maintenez la position de l'incision aussi constante que possible entre les échantillons. Des dommages aux nervures majeures pouvant augmenter considérablement les émissions de COV induites par la blessure, une localisation cohérente de la blessure améliore la reproductibilité expérimentale5.
PRÉCAUTION : Assurez-vous que la chambre est parfaitement scellée avant de couper. - Poursuivez la collecte des COV avec la même cartouche pendant 13 minutes.
- Insérez une troisième cartouche et collectez les COV pendant 15 minutes.
- Faites fonctionner le PTR-TOF-MS en continu pendant toutes les périodes pour une détection en temps réel.
REMARQUE : Avant et après chaque mesure sur plante, collectez un échantillon de fond en chambre vide dans les mêmes conditions environnementales. Utilisez ces mesures de fond pour la correction du signal de base des émissions de COV lors de l'analyse des données.
- Insérez la première cartouche de COV dans la ligne de sortie et connectez-la à une pompe portable d'échantillonnage d'air à débit constant. Faites passer l'air de la chambre à travers la cartouche à un débit constant de 200 mL min-1. Utilisez une cartouche adsorbante en acier inoxydable à lit multiple (longueur de 10,5 cm, diamètre intérieur de 3 mm), adaptée à la capture de COV C3–C17, remplie de Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) et Carbotrap X 20/40 mesh (0,1 g), disposés du plus faible au plus fort pouvoir d'adsorption dans le sens de l'échantillonnage.
5. Détection des composés volatils et utilisation de l'instrument
- Régler la température de l'entrée et du tube de dérive du PTR-TOF-MS à 80 °C, le débit d'entrée à 100 mL min-1, le débit de vapeur d'eau à 4,0 mL min-1, le courant ionique à 4,0 mA, la pression de la chambre de dérive à 2,1 mbar, le rapport densité de champ du tube de dérive à 115 Td, et la pression du module TOF-MS à 1,2 × 10⁻⁷ mbar.
- Enregistrer les signaux volatils avec une résolution temporelle de 1 Hz et un intervalle d'échantillonnage de 400 ps.
- Étalonner le PTR-TOF-MS avant chaque expérience à l'aide d'un mélange gazeux étalon certifié contenant des COV représentatifs des principales classes de composés volatils végétaux. Traiter les données d'étalonnage et calculer les concentrations de COV à l'aide du logiciel PTR-MS Viewer selon les procédures décrites13,16.
6. Analyse en mode hors ligne par GC-MS des échantillons prélevés sur cartouche
REMARQUE : La procédure suivante décrit l'analyse hors ligne des échantillons prélevés sur cartouche au cours du protocole décrit ci-dessus. L'analyse par GC-MS permet une identification complémentaire des composés, tandis que les résultats représentatifs présentés dans cette étude reposent sur des mesures continues par PTR-TOF-MS.
- Procéder à la désorption thermique des cartouches à l’aide d’un dispositif automatisé de désorption thermique couplé à un système de GC-MS, selon la procédure décrite par Kännaste et al.20.
- Identifier les composés par comparaison avec des étalons authentiques et la bibliothèque spectrale de masse NIST. Réaliser la détection spectrométrique de masse en utilisant une ionisation par impact électronique (70 eV) et confirmer les identités des composés en appariant à la fois les temps de rétention et les spectres de masse avec les étalons authentiques, lorsque disponibles.
NOTE : L’échantillonnage sur cartouches suit le protocole modifié de Kännaste et al.20 pour la capture des volatils C3–C17.
7. Analyse des données
- Soustraire le fond de la chambre vide de toutes les traces d'émission avant l'analyse. Définir la ligne de base pré-lésion pour chaque masse surveillée comme le signal moyen durant un intervalle fixe immédiatement avant la coupe.
- Utiliser l'heure de la coupe comme point de référence commun pour toutes les masses surveillées. Déterminer le début de l'émission comme la première augmentation détectable du signal de COV corrigé par rapport à la ligne de base après la coupe de la feuille.
NOTE : Le début de l'émission a été défini comme la première augmentation consécutive au-dessus de la ligne de base pré-lésion qui se poursuit dans la phase croissante de l'explosion d'émission, excluant ainsi les fluctuations isolées attribuables au bruit instrumental. - Calculer le temps jusqu'au pic comme l'intervalle entre l'heure de la coupe et le signal d'émission maximal. Calculer la pente maximale de l'explosion d'émission à partir de la dérivée première du signal corrigé par rapport à la ligne de base, en utilisant la moyenne des pentes avant et arrière entre les points de données adjacents13. Définir l'amplitude du pic comme la valeur maximale d'émission observée durant l'explosion.
Résultats
Afin d'évaluer si la position d'échantillonnage des composés volatils influence la détection du signal, nous avons comparé deux configurations à l'aide d'injections contrôlées de gaz dans la chambre foliaire. Dans un premier dispositif, les composés volatils étaient prélevés directement à la sortie de la chambre d'échange gazeux modifiée (Figure 1). En revanche, dans l'autre configuration, l'air passait par les tubulures de l'analyseur d'échange gazeux avant d'atteindre le détecteur. L'enregistrement simultané des deux signaux a permis une comparaison directe de leurs dynamiques temporelles.
L'injection de composés volatils purs a produit des réponses rapides du détecteur avec des pics d'émission distincts (Figure 2). Lorsqu'elles étaient prélevées directement à la sortie de la chambre, les signaux augmentaient immédiatement après l'injection, atteignaient un maximum net et décroissaient rapidement. Lorsqu'elles étaient prélevées après le passage dans le tube de l'analyseur, les mêmes composés produisaient des réponses retardées et atténuées.
Pour l'isoprène (m/z 69), le décalage temporel entre les positions d'échantillonnage était minimal, et les amplitudes des pics sont restées similaires (Figure 2A). Pour le Z-3-hexén-1-ol (m/z 83), le passage à travers le tube a réduit la hauteur du pic et élargi la courbe de décroissance par rapport à l'échantillonnage direct (Figure 2B). Cet effet était le plus marqué pour l'α-pinène (m/z 137), où le passage dans le tube atténuait fortement le pic par comparaison avec le signal mesuré directement à la sortie de la chambre (Figure 2C).
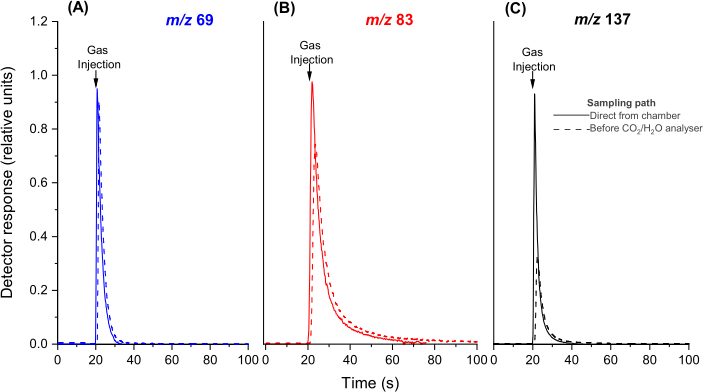
Figure 2 : Effet de la position d'échantillonnage sur la réponse temporelle de la détection des composés volatils. Les réponses à l'injection de (A) l'isoprène pur (m/z 69), (B) le Z-3-hexén-1-ol, détecté principalement sous forme d'ion fragment m/z 83, et (C) l'α-pinène (m/z 137) ont été enregistrées à deux positions d'échantillonnage. Les lignes continues représentent l'échantillonnage immédiatement après la sortie de la chambre, tandis que les lignes en pointillés représentent la position standard d'échantillonnage située avant les analyseurs de CO₂/H₂O, après passage dans les tubes du système d'échange gazeux. Les flèches indiquent l'injection du gaz. Les réponses ont été normalisées par rapport au signal maximal détecté par le PTR-QMS échantillonnant à proximité de la chambre. Pour visualiser les différences de forme de réponse, les courbes temporelles correspondant à l'échantillonnage standard ont été décalées de 0,9 s par rapport à l'échantillonnage direct. Cette figure a été modifiée d'après Rasulov et al.16. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
La coupe des feuilles a déclenché des émissions rapides de composés volatils spécifiques à chaque espèce (Quercus rubra, Acer platanoides et Gossypium hirsutum), et le système a détecté ces émissions en quelques secondes. Grâce à la configuration interne de la chambre, qui a permis de déterminer directement le début et le pic des émissions, il a été possible de quantifier la cinétique propre à chaque composé sans interrompre la mesure.
Chez toutes les espèces, le signal dominant induit par la blessure dans les mesures PTR-TOF-MS a été détecté à m/z 99, attribué de manière provisoire à des composés de type hexénal dérivés de la LOX, sur la base d'études PTR-TOF-MS antérieures (Figure 3, Figure 4 et Figure 5). Les émissions maximales variaient de 24 à 300 nmol m-2 s-1 selon les trois espèces, illustrant la capacité du protocole à résoudre la dynamique des COV induits par les blessures sur une large gamme d'intensités d'émission (Figure 3, Figure 4 et Figure 5). Dans tous les cas, m/z 99 augmentait en quelques secondes après la coupure, atteignait un pic entre environ 39 et 57 s, et présentait la pente d'augmentation la plus forte parmi les masses surveillées (Tableau 1), ce qui l'identifie comme la composante majeure de la réponse aiguë au traumatisme.
La masse 69 est restée négligeable avant la section chez A. platanoides (Figure 4B) et G. hirsutum (Figure 5B) et n’a augmenté que légèrement après la blessure. En revanche, Q. rubra a présenté des émissions de base importantes avant la section, suivies d'une augmentation transitoire modeste puis d'une stabilisation, en accord avec une émission constitutive d'isoprène superposée à la réponse à la blessure (Figure 3B).
D'autres masses surveillées ont révélé une séquence temporelle nette après la section. Chez toutes les espèces, les rapports m/z 43, 57, 69 et 99 définissaient la phase initiale de l'explosion, tandis que les rapports m/z 45 et 83 atteignaient leur maximum plus tard (Figure 3, Figure 4 et Figure 5 ; Tableau 1). Ce schéma était particulièrement marqué chez A. platanoides, où le rapport m/z 45 commençait à augmenter immédiatement après la section, mais atteignait son maximum seulement après environ 155 s, indiquant une réponse plus lente et plus prolongée que celle des fragments initiaux liés à la LOX (Figure 4A ; Tableau 1). De même, le rapport m/z 83 atteignait son maximum plus tard que les fragments précoces chez toutes les espèces et était particulièrement retardé chez G. hirsutum, n'atteignant son maximum qu'après environ 223 s (Figure 5A ; Tableau 1).
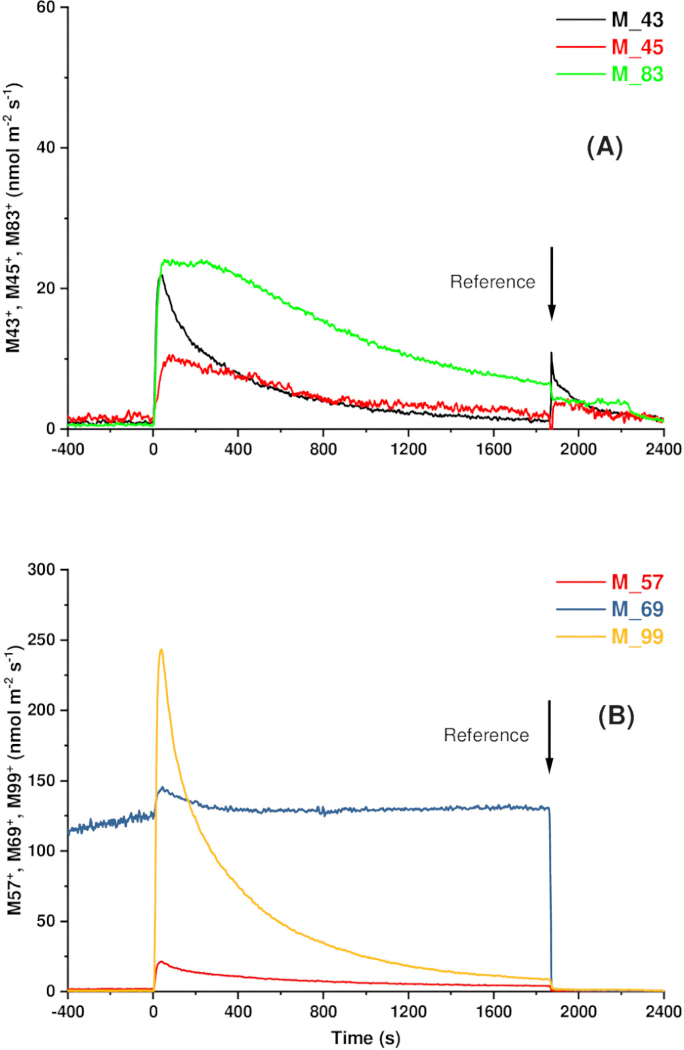
Figure 3 : Émissions volatiles induites par blessure résolues en fonction du temps dans une feuille représentative de Quercus rubra. (A) m/z 43, 45 et 83. (B) m/z 57, 69 et 99. À t = 0, la feuille a été coupée à l’aide d’un coupe-feuille intégré dans la chambre, illustré dans la Figure 1, produisant une incision de 10 mm. Les émissions volatiles ont été surveillées en continu à l’aide d’un spectromètre de masse à temps de vol avec réaction de transfert de proton (PTR-TOF-MS), et les taux d’échange gazeux ont été mesurés avec un système Walz GFS-3000. Les signaux sont présentés sous forme de profils d’émission corrigés du bruit de fond représentatifs, illustrant la résolution temporelle accessible avec ce protocole. Voir le Tableau 1 pour des descripteurs cinétiques représentatifs extraits de ces profils d’émission. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Malgré ces caractéristiques communes, les mesures représentatives montrent que les trajectoires d'émission peuvent différer entre espèces. Chez Q. rubra, les signaux à m/z 43 et 57 ont augmenté rapidement, puis se sont séparés durant la phase de décroissance, m/z 57 diminuant plus lentement que m/z 43 (Figure 3A,B). Chez A. platanoides, ce schéma s'inverse, m/z 43 présentant une diminution plus lente en fin de phase (Figure 4A). Chez G. hirsutum, tous les signaux étaient d'amplitude inférieure, et les profils d'émission combinaient des pics initiaux rapides à une décroissance plus progressive. Notamment, m/z 45 présentait une légère augmentation secondaire durant la phase de décroissance (Figure 5A).
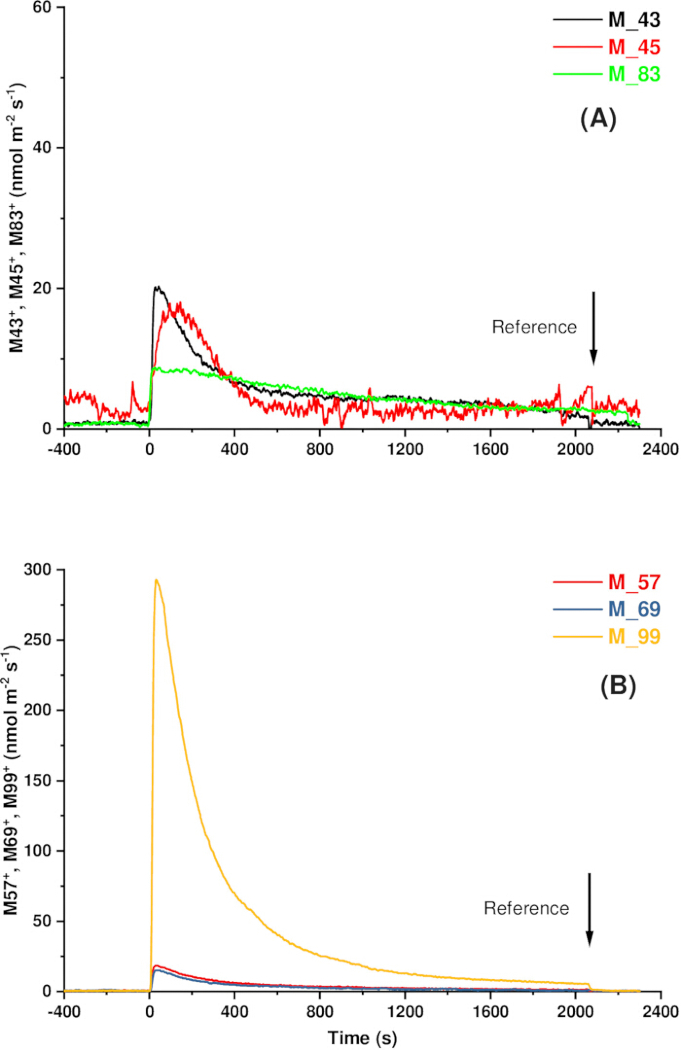
Figure 4: Émissions volatiles induites par une blessure, résolues en fonction du temps, dans une feuille représentative de Acer platanoides. (A) m/z 43, 45 et 83. (B) m/z 57, 69 et 99. La feuille a été coupée à t = 0 à l’aide d’un coupeur intégré dans la chambre (Figure 1 ; incision de 10 mm). Les émissions volatiles ont été mesurées en continu à l’aide d’un spectromètre de masse à temps de vol avec réaction de transfert de protons (PTR-TOF-MS), et les échanges gazeux ont été mesurés avec un système Walz GFS-3000. Les signaux sont présentés sous forme de profils d’émission corrigés du bruit de fond, illustrant la résolution temporelle accessible avec ce protocole. Voir Tableau 1 pour les descripteurs cinétiques représentatifs extraits de ces profils d’émission. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Ensemble, ces profils indiquent que les émissions induites par la blessure suivent une cascade propre à chaque composé plutôt qu'une libération unique et synchrone, avec des composantes précoces marquées suivies de réponses plus larges et différées.
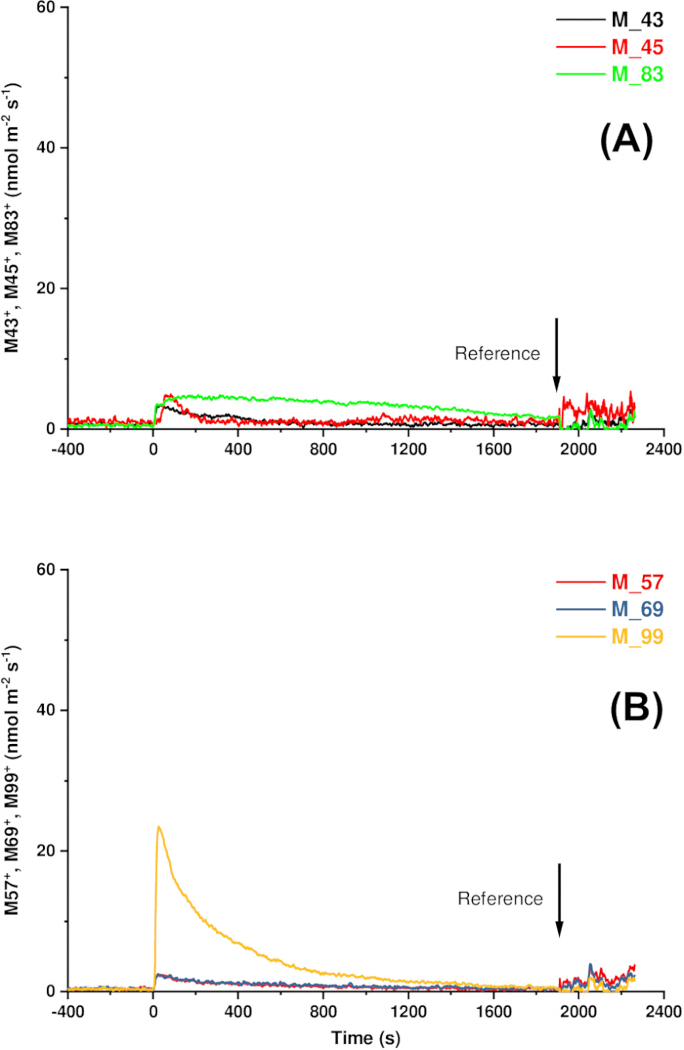
Figure 5 : Émissions volatiles induites par blessure, résolues temporellement, dans une feuille représentative de Gossypium hirsutum. (A) m/z 43, 45 et 83. (B) m/z 57, 69 et 99. La feuille a été coupée à t = 0 à l’aide d’un coupeur intégré dans la chambre (Figure 1 ; incision de 10 mm). Les émissions volatiles ont été mesurées en continu à l’aide d’un spectromètre de masse à temps de vol avec réaction de transfert de proton (PTR-TOF-MS), et les échanges gazeux ont été mesurés avec un système Walz GFS-3000. Les signaux sont présentés sous forme de profils d’émission corrigés du bruit de fond représentatifs, illustrant la résolution temporelle atteignable avec ce protocole. Voir Tableau 1 pour les descripteurs cinétiques représentatifs extraits de ces profils d’émission. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Discussion
Le protocole présenté ici permet une analyse à haute résolution temporelle des émissions de composés volatils induites par une blessure, dans des conditions expérimentales contrôlées. En intégrant directement l'événement de coupe dans la chambre foliaire et en surveillant en continu les signaux volatils (Figure 1), le système capte la réponse en émission sans les distorsions dues à un échantillonnage différé, à l'ouverture de la chambre ou à la manipulation de la feuille en dehors du dispositif de mesure. Ces perturbations peuvent modifier à la fois le moment apparent et l'amplitude des pics d'émission dans les mesures basées sur des enceintes fermées3,6,13,17. En maintenant la blessure et la mesure dans la même enceinte, le protocole préserve la chronologie des émissions et permet une quantification fiable, résolue dans le temps, des réponses volatiles induites par le stress.
| Espèces | Masse moléculaire protonée | Amplitude maximale (nmol m-2 s-1) | Délai d'apparition après la ou les incision(s) | Temps du pic (s) | Pente maximale (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tableau 1 : Valeurs représentatives de l'amplitude maximale, de l'apparition de l'émission, du temps pour atteindre le pic et de la pente maximale extraites de mesures continues par PTR-TOF-MS après blessure foliaire. Les valeurs comprennent l'amplitude maximale, l'apparition de l'émission, le temps pour atteindre le pic et la pente maximale. Ces valeurs illustrent le type de descripteurs cinétiques générés par le protocole et sont fournies à titre d'exemples de principe plutôt que de comparaisons statistiques entre espèces. L'apparition de l'émission a été définie comme la première augmentation détectable au-dessus du niveau de référence pré-blessure après la coupure, le temps pour atteindre le pic comme l'intervalle entre la coupure et le signal maximal, et la pente maximale comme la dérivée première maximale du signal corrigé du niveau de référence.
La comparaison des positions d'échantillonnage a montré que la configuration d'échantillonnage affectait de manière marquée le signal enregistré (Figure 2). Un échantillonnage direct à la sortie de la chambre préservait la formation rapide des pics, tandis qu'un échantillonnage après le tube de l'analyseur retardait la formation des pics et atténuait l'intensité du signal. Cet effet était négligeable pour l'isoprène (m/z 69), modéré pour m/z 83, et le plus marqué pour l'α-pinène (m/z 137), ce qui est cohérent avec une distorsion croissante liée au transport pour les composés plus lourds ou plus réactifs10,21. L'adsorption sur les surfaces du tube, le transport retardé à travers la ligne d'échantillonnage et les interactions chimiques durant le transport peuvent élargir ou atténuer les pics d'émission, modifiant ainsi l'interprétation de la cinétique des composés volatils9,12,21.
Un avantage central du présent protocole réside dans sa capacité à résoudre la phase la plus précoce des émissions de composés volatils induites par une blessure. Chez toutes les espèces, cette phase précoce est apparue en quelques secondes après la section et était dominée par un pic à m/z 99, qui présentait à la fois l'amplitude maximale la plus élevée et la pente maximale la plus raide (Figure 3, Figure 4, et Figure 5; Tableau 1). Les maximums des pics ont été atteints environ 40 à 57 s après la section, nettement plus tôt que les 100 à 280 s généralement rapportés dans les études antérieures13,19,22. Ce décalage reflète probablement la synchronisation entre la blessure et la détection à l'intérieur de la chambre, réduisant au minimum les retards causés par la manipulation des feuilles et le transport dans la ligne d'échantillonnage.
En synchronisant la blessure et la détection dans le même enceinte, le protocole a également mis en évidence une cascade au niveau des fragments dans laquelle les m/z 43 et 57 augmentent immédiatement après la coupe, tandis que le m/z 45 atteint son maximum plus tardivement et présente une dynamique de décroissance plus étendue (Figure 3, Figure 4 et Figure 5; Tableau 1). Cet ordre est conforme aux études antérieures basées sur la PTR, malgré l'absence de séparation au niveau des composés comparée à la GC-MS, où les émissions précoces sont dominées par les aldéhydes C6 dérivés de la lipoxygénase, suivis par les alcools et produits apparentés en aval19,22. Conformément aux études antérieures utilisant la PTR-TOF-MS, le signal dominant à m/z 99 correspond à des composés de type hexénal, dont le fragment de déshydratation à m/z 81 a été identifié comme un signal majeur précoce, tandis que le m/z 83 reflète les contributions des hexénols et de l'hexanal22. Cette séquence renforce davantage une hiérarchie dépendante de la taille et de la voie métabolique, selon laquelle des composés oxygénés plus petits et rapidement formés sont libérés plus tôt que des molécules plus grandes ou plus complexes13,23.
Outre les fragments dérivés de la lipoxygénase, le signal à m/z 69, attribué de façon provisoire à l'isoprène, présentait des trajectoires d'émission distinctes parmi les exemples représentatifs (Figure 3, Figure 4, et Figure 5). Q. rubra ont montré des émissions de base importantes, tandis que A. platanoides et G. hirsutum n'ont produit que des concentrations infimes, conformes à leurs caractéristiques d'émission connues24,25. Chez différentes espèces, l'isoprène a répondu faiblement à la blessure, ce qui est conforme à son de novo synthèse via la voie MEP, qui dépend du métabolisme photosynthétique et est donc indirectement affectée par une blessure mécanique15.
Ces dynamiques rapides reflètent des réponses biochimiques bien établies des feuilles aux dommages mécaniques. Une lésion mécanique active rapidement la voie de la lipoxygénase, qui produit des impulsions transitoires de composés volatils C6 et d'autres composés oxygénés apparentés à partir de l'oxydation des lipides membranaires5,7,17,22,23. Ces émissions présentent des dynamiques fortement asymétriques, caractérisées par une augmentation rapide après la rupture du tissu, suivie d'une phase de décroissance plus lente16. Ce schéma asymétrique dans le système actuel se déroule à l'échelle de temps de quelques secondes à quelques minutes, comme illustré par les descripteurs cinétiques représentatifs résumés dans Tableau 1, tandis que les études qui blessent les feuilles à l'extérieur de la chambre rapportent des pics retardés13. Cette résolution plus précoce permet de capter le signal dès son début, réduit l'étalement temporel et permet une quantification directe des deux phases, montante et de décroissance. L'ensemble de ces caractéristiques cinétiques définit la trajectoire complète d'émission, que des approches par échantillonnage discret ou différé sous-estiment souvent5,15.
La standardisation de l'événement de coupe à l'intérieur de la chambre améliore davantage la reproductibilité expérimentale en assurant une géométrie et une gravité de blessure constantes, deux paramètres déterminés par la longueur de l'incision et influençant directement l'ampleur des émissions de composés organiques volatils (COV)5,18,22. Toutefois, comme la lame de coupe occupe une position fixe à l'intérieur de la chambre, l'emplacement de l'incision dépend de la taille et de la morphologie de la feuille, ainsi que de la nécessité de maintenir une étanchéité hermétique. Dans la mesure du possible, l'incision doit être réalisée dans la lame intercostale en évitant le nerf médian et les autres nervures principales. Cependant, l'évitement complet des nervures principales ne peut pas toujours être garanti, notamment pour les feuilles étroites ou petites. Étant donné qu'une lésion des nervures principales peut modifier considérablement les émissions de COV induites par la blessure5, la position de l'incision doit être maintenue aussi constante que possible entre les échantillons d'une même expérience.
Le maintien de conditions environnementales stables est tout aussi important pour obtenir des mesures reproductibles des COV induits par blessure. Étant donné que la production, la libération et le transport des COV sont influencés par les conditions environnementales, la température, l'humidité, l'irradiance, la concentration de CO2 et le débit d'air dans la chambre ont été maintenus constants durant toutes les mesures. La normalisation de ces variables réduit davantage la variabilité expérimentale et améliore la reproductibilité des cinétiques de COV induits par blessure. En outre, comme le protocole est entièrement compatible avec des mesures simultanées des échanges gazeux, des applications futures pourraient relier directement la dynamique d'émission des COV aux variations de la photosynthèse et de la transpiration dans des conditions expérimentales identiques26. Ces mesures pourraient aider à distinguer la régulation biochimique de la production de COV des processus physiques affectant la libération de composés volatils, notamment l'évaporation accrue de composés oxygénés solubles dans l'eau à partir du tissu blessé16. Par conséquent, les différences entre traitements ou espèces ne doivent être interprétées que lorsque les conditions environnementales, la géométrie des blessures et le matériel végétal, y compris le stade de développement des feuilles, sont normalisés tout au long de l'expérience12.
Bien que les approches antérieures utilisant des chambres montrent la faisabilité de mesures en temps réel des COV induits par des blessures, elles ont également révélé d'importantes limitations techniques. Des coupes irrégulières, des tailles de blessures inconstantes et des perturbations du scellement de la chambre ont introduit une variabilité entre les mesures18,19. De plus, ces approches s'appuyaient souvent sur des volumes de chambre relativement importants, ce qui ralentissait le renouvellement de l'air, retardait la formation des pics et élargissait les profils de signaux volatils22,27. Ces effets sont d'autant plus marqués pour les composés moins volatils et peuvent varier selon la température21. En revanche, la chambre plus petite utilisée dans le présent protocole (~8 mL de volume interne) réduit le temps de séjour de l'air, contribuant à l'apparition plus nette observée dans nos mesures (Figure 1).
Le protocole a été conçu pour des expériences physiologiques contrôlées plutôt que pour une surveillance directe in situ des écosystèmes forestiers. Les mesures sont effectuées sur des feuilles attachées dans des conditions environnementales bien définies, ce qui permet de minimiser la variabilité expérimentale et de caractériser précisément la cinétique des COV induits par les blessures. Les applications sur le terrain dépendront de la disponibilité de systèmes portatifs de mesure des échanges gazeux et de détection des COV. Néanmoins, comme le mécanisme de coupe intégré peut être adapté à différentes configurations de chambre avec seulement de légères modifications, cette approche devrait pouvoir être facilement transférée vers des plateformes portatives d'échanges gazeux et d'autres dispositifs expérimentaux au fur et à mesure que ces technologies deviendront disponibles. Cette souplesse élargit les possibilités d'étudier les réponses rapides des plantes au stress tout en préservant la résolution temporelle nécessaire à une caractérisation précise de la dynamique des émissions de COV, facilitant ainsi des études mécanistiques des premières réponses physiologiques et biochimiques aux dommages foliaires.
Déclarations de divulgation
Les auteurs déclarent qu'ils n'ont aucun conflit d'intérêts.
Remerciements
Nous reconnaissons le financement fourni par le Conseil estonien de la recherche (PRG2207) et le ministère de l'Éducation et de la Recherche d'Estonie (Centre d'excellence Agro-CropFuture, « Agroécologie et nouvelles cultures dans les climats futurs », TK200U1).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Système GC-MS avec désorbeur thermique TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | Système GC-MS avec désorbeur thermique TD-20. www.shimadzu.com |
| Système d'échange gazeux GFS-3000 | Walz GmbH | GFS-3000 | Mesures d'échange gazeux foliaire. www.walz.com |
| Hélium de haute pureté (99,999 %) | Fournisseur local | N/A | Utilisé pour le conditionnement des cartouches d'adsorbant et pour la désorption thermique en GC-MS. www.airliquide.com (ou fournisseur équivalent). |
| Étalon de calibration de l'isoprène | Sigma-Aldrich Chemie GmbH | Personnalisé | Étalon de calibration personnalisé de l'isoprène (3,43 ppm). www.sigmaaldrich.com |
| Mastic d'étanchéité à faibles émissions | Fournisseur local | N/A | Utilisé pour sceller le point d'insertion du coupeur dans la chambre. |
| Cartouche adsorbante en acier inoxydable à lit multiple | Supelco | Personnalisé | Longueur de 10,5 cm × diamètre intérieur de 3 mm ; chargée avec Carbotrap C (0,2 g, 20–40 mesh), Carbopack B (0,1 g, 40–60 mesh) et Carbotrap X (0,1 g, 20–40 mesh). Utilisée pour l'identification facultative hors ligne des COV par GC-MS. www.sigmaaldrich.com |
| Pompe portable de prélèvement d'air à débit constant | SKC Inc. | 210-1003MTX | Pompe portable de prélèvement d'air à débit constant. |
| Spectromètre de masse PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | Détection des COV. www.ionicon.com |
| Fil de brasure argentée | Fournisseur local | N/A | Utilisé pour fixer une lame de rasoir à une tige en acier inoxydable. |
| Feuille de laiton ressort (épaisseur 0,2 mm) | Fournisseur local | N/A | Soutiens flexibles utilisés pour fixer le coupeur. |
| Tige en acier inoxydable (diamètre 1 mm) | Fournisseur local | N/A | Tige de support du coupeur. |
| Aiguille de seringue en acier inoxydable (diamètre extérieur 1,6 mm) | Fournisseur local | N/A | Logement pour une lame de coupe rotative. |
| Bouchons en téflon | Fournisseur local | N/A | Utilisés pour sceller le logement du coupeur tout en permettant la rotation. |
| Connecteur en téflon en forme de T | Fournisseur local | N/A | Installé près de la sortie de la chambre pour réduire la longueur du tube. |
| Tuyau en téflon (FEP ou PTFE) | Fournisseur local | N/A | Ligne d'échantillonnage des COV entre la chambre et les détecteurs. |
| Mélange gazeux d'étalonnage des COV | Ionimed GmbH | Personnalisé | 1 ppm de chaque composé dans N2 ; utilisé pour l'étalonnage du PTR-TOF-MS. www.ionimed.com |
Références
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible