Cet article présente un protocole de transfection inverse optimisé pour une délivrance efficace d'ARNm modifié au niveau des nucléosides codant pour la transcriptase inverse de la télomérase humaine (hTERT) (ARNm hTERT) dans des fibroblastes humains sénescents. Le pré-recouvrement des surfaces de culture avec des complexes ARNm hTERT-lipides améliore l'absorption, permettant l'activation de la télomérase, l'allongement des télomères et une réjuvénation partielle. Les cultures réintègrent finalement la sénescence ou entrent en crise sans toutefois s'immortaliser.
Article de méthode
Protocole de transfection inverse optimisé pour l'administration d'ARNm de la télomérase aux fibroblastes humains en sénescence précoce
* These authors contributed equally
Dans cet article
Résumé
Résumé
La sénescence cellulaire est associée à des altérations profondes de la physiologie cellulaire, notamment une fluidité membranaire réduite, un trafic endosomal altéré, une capacité endocytaire diminuée et une activité extracellulaire accrue des RNases, ce qui entrave une livraison efficace des ARNm. Ces obstacles ont limité l'application des approches basées sur l'ARN dans les cellules sénescentes, en particulier pour la délivrance de longs transcrits thérapeutiques. Ce protocole décrit une méthode de transfection inverse optimisée permettant une livraison efficace d'ARN messager (ARNm) modifié dans des fibroblastes humains sénescents. Bien qu'un ARNm codant pour la transcriptase inverse de la télomérase humaine (hTERT) ait été utilisé comme transcrit modèle, le flux opératoire est largement applicable à d'autres ARNm. Contrairement aux méthodes conventionnelles de transfection, où les complexes ARN-lipides sont ajoutés au milieu de culture après l'attachement des cellules, la transfection inverse consiste à déposer les complexes sur la surface du milieu de culture avant la mise en culture des cellules, permettant ainsi une interaction directe entre les cellules en cours d'attachement et les complexes de transfection. Afin d'optimiser l'efficacité de la transfection, le protocole utilise un ARNm modifié par des nucléosides contenant de la pseudouridine et de la 5-méthylcytidine, des queues poly(A) prolongées, un timing optimisé de formation des complexes, une inhibition des RNases, une élévation transitoire du pH endosomal par la chloroquine, une densité de semis cellulaire accrue et des périodes d'incubation prolongées. Grâce à cette approche, des efficacités de transfection d'environ 50 % à 80 % ont été obtenues dans les fibroblastes sénescents après livraison d'un transcrit d'ARNm hTERT de 5 kb. Une activité maximale de la télomérase a été détectée 24 à 48 heures après la transfection. Un seul cycle de transfection a induit un allongement mesurable des télomères, tandis que trois transfections consécutives ont entraîné un allongement substantiel mais fini des télomères. Un rétablissement partiel des phénotypes associés à la sénescence a été observé entre 72 et 96 heures, incluant une diminution de l'activité de la β-galactosidase associée à la sénescence, une réduction de l'expression de p16 et de p21, un rétablissement de la morphologie cellulaire et une prolongation de la durée de vie réplicative. L'ARNm hTERT livré a été dégradé dans un délai de 72 à 96 heures, et aucune immortalisation n'a été observée. Ce protocole fournit une méthode pratique pour la livraison transitoire d'ARNm dans des cellules sénescentes et pourrait être adapté à un large éventail de types cellulaires et d'espèces.
Introduction
L'approche de transfection inverse représente une adaptation méthodologique essentielle pour les cellules sénescentes, permettant de surmonter les obstacles fondamentaux que ces cellules opposent aux méthodes de transfection classiques. Contrairement à la transfection directe, au cours de laquelle les cellules sont préalablement mises en culture et laissées s'attacher avant l'ajout des complexes de transfection, la transfection inverse consiste à ajouter directement les cellules en suspension sur des complexes préformés d'ARNm hTERT et de lipides. Cette technique augmente considérablement l'efficacité de la transfection dans les cellules sénescentes en maximisant l'exposition aux complexes de transfection durant la phase critique d'attachement, période au cours de laquelle le remaniement membranaire est le plus actif.
Le changement conceptuel fondamental de ce protocole consiste à considérer les cellules sénescentes comme un problème de délivrance particulier, et non simplement comme des versions difficiles à transfecter de cellules jeunes. Lors de la sénescence, des modifications globales de la composition lipidique membranaire, incluant les phospholipides, les sphingolipides et le cholestérol, altèrent la fluidité membranaire, la courbure et les interactions protéine-lipide, tout en contribuant au phénotype sécréteur associé à la sénescence1,2,3. Les cellules sénescentes présentent également une endocytose récepteur-médiée dépendante de la clathrine et des cavéoles réduite, ainsi qu'un routage endocytique modifié, en partie dus à la diminution de l'amphiphysine-1 et à des adaptations compensatoires de l'expression de la cavéoline, ce qui atténue l'internalisation et la signalisation dépendantes des récepteurs4,5,6. Parallèlement, l'axe des endosomes tardifs et des lysosomes régulé par Rab7 ainsi que le réseau plus vaste endosomal-autophagique-lysosomal (EAL) deviennent dysrégulés, Rab7 agissant comme un régulateur maître de la maturation endolysosomale et de la fusion autophagosome-lysosome, processus perturbés au cours du vieillissement et des maladies neurodégénératives7.
Les cellules sénescentes surexpriment fréquemment plusieurs composants du système de traitement et d'adaptation lysosomale (LYPAS), notamment la biogenèse lysosomale induite par TFEB/TFE3 et l'autophagie médiée par des chaperonnes, augmentant ainsi la masse lysosomale. Toutefois, les lysosomes individuels présentent souvent un pH intraluminal élevé, des dommages membranaires et une capacité protéolytique altérée, ce qui contribue à une dysfonction lysosomale malgré leur abondance accrue8,9,10,11. Dans leur ensemble, ces modifications peuvent diriger plus efficacement les matériaux internalisés vers des compartiments endolysosomaux dégradatifs, augmentant ainsi la probabilité que l'ARN ou les protéines livrés soient dégradés avant une libération cytosolique productive9,10,11. La transfection inverse cible directement la fenêtre temporelle la plus précoce, durant l'adhésion, lorsque les membranes se remodelent, forçant un contact prolongé et de haute affinité entre les cellules et les complexes ARNm-lipides, contournant ainsi au moins partiellement l'endocytose altérée à l'état stationnaire dans les cellules sénescentes complètement adhérentes4,5,6,12.
Du point de vue de la conception de l'ARN, le protocole suppose que, dans un contexte de vieillissement, une simple structure de base composée d'une coiffe et d'une queue poly(A) est insuffisante : la modification complète des nucléosides (par exemple, pseudouridine ou N1‑méthylpseudouridine associée à de la 5‑méthylcytidine) est considérée comme indispensable afin de dissocier la traduction de la détection par les récepteurs Toll-like endosomaux et de l'induction d'interféron de type I. Des travaux fondamentaux ont montré que l'incorporation de nucléosides modifiés dans l'ARN supprime l'activation des TLR3, TLR7 et TLR8, et réduit fortement la production de cytokines par les cellules dendritiques, fournissant ainsi une base mécanistique à la moindre immunogénicité innée des plateformes d'ARNm modifiées actuelles13. Des revues plus récentes sur les vaccins ARNm–LNP et les médicaments à base d'ARNm soulignent l'ingénierie coordonnée de la coiffe 5′, des régions non traduites (UTR), de la séquence codante et de la queue poly(A) afin d'augmenter la stabilité et la traduction in vivo, tout en minimisant l'activation de l'immunité innée14. En particulier, la longueur et l'architecture de la queue poly(A) se sont imposées comme des déterminants clés de la stabilité et du rendement traductionnel de l'ARNm transcrit in vitro, justifiant l'utilisation de conceptions poly(A) prolongées ou ingénierisées dans l'ARNm thérapeutique15.
Par ailleurs, le protocole intègre explicitement une protection contre les RNases extracellulaires et endosomales durant la formation des complexes et leur internalisation, ainsi qu'une fenêtre définie d'échappement endosomique à l'aide d'un agent lysosomotrope transitoire tel que la chloroquine16,17. La chloroquine est depuis longtemps utilisée comme sonde fonctionnelle des barrières endosomiques et peut augmenter de manière marquée la liaison à la cible et la silencing par ARNsi ou oligonucléotides antisens en favorisant la rupture de la membrane endosomique et la libération du matériel d'acide nucléique dans le cytosol18. Parallèlement, l'imagerie en cellules vivantes et en super-résolution de l'ARNm délivré par des nanoparticules lipidiques (LNP) a montré que le transport productif est fortement limité par des événements d'échappement rares depuis les endosomes précoces ou de recyclage, plutôt que par l'internalisation initiale en tant que telle, soulignant ainsi l'importance de concevoir délibérément une étape d'échappement endosomique pour les thérapeutiques à base d'ARNm19.
Collectivement, ces altérations associées au vieillissement, concernant la dynamique membranaire, le trafic endocytaire, le traitement lysosomal et l'activation du système immunitaire inné, créent des obstacles importants à une livraison efficace des ARNm. La stratégie de transfection inverse décrite ici a été mise au point pour surmonter ces limitations en combinant une ingénierie optimisée des ARNm, une protection contre les RNases, une échappatoire endosomale améliorée et une exposition directe des cellules en phase d'attachement à des complexes préformés d'ARNm et de lipides. Bien que l'ARNm d'hTERT soit utilisé comme ARN modèle, ce protocole est largement applicable à la livraison d'autres ARNm thérapeutiques de grande taille dans des populations cellulaires sénescentes ou difficiles à transfecter20,21,22.
Protocole
1. Transcription in vitro de l'ARNm de hTERT
- Transcription in vitro (IVT) avec ARCA et ΨUTP
- Préparer une réaction IVT de 20 µL selon le Tableau 1. Adapter linéairement la réaction si un rendement plus élevé est requis.
- Combiner tous les composants de la réaction sauf la polymérase ARN T7 dans un tube sans RNase. Ajouter la polymérase ARN T7 en dernier, mélanger délicatement, puis centrifuger brièvement le tube.
- Incuber la réaction à 37 °C pendant 0,5 à 4 h.
NOTA : Ajuster le temps d'incubation en fonction de la longueur du brin matrice. Incuber les réactions contenant des matrices courtes (environ 500 pb) pendant environ 30 min et celles contenant des matrices plus longues (environ 4 kb) pendant 3 à 4 h.
- Traitement par DNase
- Ajouter 1 µL de DNase I sans RNase directement dans le mélange de réaction IVT.
- Incuber la réaction à 37 °C pendant 15 min.
NOTA : Le traitement par DNase doit être effectué directement dans le mélange de réaction IVT, sans purification préalable de l'ARNm synthétisé.
- Purification de l'ARNm
- Ajouter 115 µL d'H₂O sans nucléase pour diluer le mélange de réaction.
- Purifier l'ARNm à l'aide d'un kit de purification ARN selon les instructions du fabricant.
- Éluer l'ARNm purifié dans 20 à 30 µL d'H₂O sans nucléase.
- Mesurer la pureté de l'ARNm par spectrophotométrie et vérifier l'intégrité de l'ARN par électrophorèse sur gel d'agarose dénaturant à 1,0–1,5 % ou sur gel de polyacrylamide à faible pourcentage.
- Adénylation (ajout de la queue poly(A))
- Préparer une réaction d'adénylation de 50 µL selon le Tableau 2. Mélanger délicatement les composants de la réaction et incuber à 37 °C pendant 30 à 60 min.
NOTA : Ajuster le temps d'incubation en fonction de la quantité d'ARN utilisé. - Arrêter la réaction en ajoutant 2 µL d'EDTA 0,5 M (pH 8,0).
- Préparer une réaction d'adénylation de 50 µL selon le Tableau 2. Mélanger délicatement les composants de la réaction et incuber à 37 °C pendant 30 à 60 min.
- Purification finale et contrôle qualité
- Purifier l'ARNm adénylé à l'aide d'un kit de purification ARN selon les instructions du fabricant.
- Éluer l'ARNm purifié dans 20 à 30 µL d'H₂O sans nucléase.
- Évaluer la qualité de l'ARNm avant de passer à la transfection
- Mesurer la concentration d'ARNm à 260 nm et déterminer la pureté à l'aide des rapports A260/A280 et A260/A230. Utiliser des préparations d'ARNm dont les valeurs A260/A280 sont d'environ 2,0 et les valeurs A260/A230 supérieures à 2,0.
- Évaluer l'intégrité de l'ARNm par électrophorèse sur gel ou à l'aide d'un système d'analyse ARN selon les instructions du fabricant.
- Confirmer la longueur de la queue poly(A) par RT-PCR ou analyse sur Bioanalyzer. Vérifier que la longueur de la queue poly(A) se situe entre 120 et 200 nucléotides.
- Aliquoter l'ARNm purifié et conserver les aliquots à −80 °C afin de minimiser les cycles de congélation-décongélation.
2. Transfection inverse
- Jour −1 : Préparation avant la transfection
- Vérifier le phénotype sénescen
- Réaliser une coloration par la β-galactosidase associée à la sénescence (SA-β-gal) sur un échantillon représentatif de cellules. Vérifier que plus de 70 % des cellules sont positives.
- Confirmer l'expression des marqueurs de sénescence (p16 et p21) par qRT-PCR ou immunofluorescence.
- Déterminer la viabilité cellulaire et vérifier qu'elle dépasse 90 %.
- Préparer les réactifs
- Préchauffer le milieu de culture complet à 37 °C.
- Préchauffer le tampon phosphate-saline (PBS) à 37 °C.
- Préparer du milieu Opti-MEM I frais.
NOTA : N'ajoutez pas d'inhibiteur de RNase à l'Opti-MEM I avant utilisation.
- Vérifier le phénotype sénescen
- Jour 0 : Jour de la transfection
NOTA : Prévoir environ 3 h entre la préparation des réactifs et l'incubation des cellules transfectées.- Préparation de l'ARNm hTERT
- Dégeler l'ARNm hTERT sur de la glace. Mesurer la concentration en ARNm et utiliser des préparations dont la concentration est comprise entre 0,5 et 1,0 µg/µL.
- Diluer la quantité souhaitée d'ARNm hTERT dans l'Opti-MEM I selon le format de culture utilisé (Tableau 3). Ajouter l'inhibiteur de RNase à une concentration finale de 0,5 à 1,0 U/µL et mélanger délicatement.
- Garder l'ARNm dilué sur de la glace jusqu'à la formation des complexes.
NOTA : Ajouter l'inhibiteur de RNase immédiatement avant utilisation. Ne pas stocker l'ARNm avec l'inhibiteur de RNase, car son activité diminue après congélation.
- Préparation du réactif de transfection
- Mélanger 6,0 µL de réactif de transfection avec 100 µL d'Opti-MEM I dans un tube stérile sans RNase. Mélanger délicatement par pipetage.
- Incuber le mélange à température ambiante pendant 5 min.
NOTA : Pour les grands ARNm hTERT (~5 kb), optimiser les rapports réactif/ARNm entre 0,4 et 0,6 µL de réactif par 100 ng d'ARNm.
- Formation du complexe ARNm-lipide
- Ajouter la solution d'ARNm hTERT diluée (100 µL) à la solution de réactif de transfection diluée (106 µL). Mélanger délicatement en pipetant 5 à 6 fois.
- Incuber le mélange à température ambiante pendant 15 à 20 min.
- Ne pas dépasser 30 min de complexation.
- Vérifier la formation réussie du complexe par l'apparition d'une solution légèrement trouble.
NOTA : Réaliser la préparation des cellules pendant la période de complexation.
- Préparation des cellules pour la transfection inverse
- Aspirer le milieu de culture des cultures cellulaires sénescents.
- Laver les cellules une fois avec du PBS préchauffé (2 mL par puits d'une plaque 6 puits).
- Ajouter 500 µL de trypsine-EDTA 0,05 % par puits.
- Incuber les cellules à 37 °C pendant 3 à 5 min.
- Neutraliser la trypsine avec 3 mL de milieu complet contenant du sérum.
- Triturer doucement les cellules pour obtenir une suspension monocellulaire.
- Déterminer le nombre de cellules à l'aide d'un hématimètre ou d'un compteur cellulaire automatisé.
- Préparer une suspension contenant 2,0–2,5 × 10⁵ cellules par puits dans du milieu complet.
NOTA : Éviter une trypsination prolongée car les cellules sénescents sont très sensibles au stress mécanique. Maintenir les cellules en suspension ; ne pas les pré-plater avant la transfection inverse.
- Transfection inverse
- Préparation de la plaque de culture
- Ajouter 500 µL de poly-L-lysine 0,01 % dans chaque puits d'une plaque 6 puits et incuber pendant 30 min à température ambiante.
- Aspirer la solution d'ensemencement immédiatement avant utilisation.
- Ajouter 200 µL du complexe ARNm hTERT-lipide au centre de chaque puits.
- Incuber la plaque à 37 °C et 5 % CO₂ pendant 30 min.
NOTA : Réaliser l'ensemencement de la plaque en parallèle avec la formation des complexes et la préparation des cellules.
- Préparation de la suspension cellulaire
- Suspendre 2,0–2,5 × 10⁵ cellules dans 1800 µL de milieu complet sans antibiotique.
- Resuspendre doucement les cellules pour obtenir une suspension monocellulaire homogène.
NOTA : Utiliser un milieu sans antibiotique pendant la transfection.
- Ensemencement des cellules sur les complexes
- Ajouter 1800 µL de la suspension cellulaire directement sur les complexes ARNm hTERT-lipide préformés.
- Incliner doucement la plaque 2 à 3 fois dans chaque direction pour répartir uniformément les cellules.
NOTA : Ne pas pipeter la suspension après l'ajout des cellules, car cela pourrait perturber les complexes ARNm-lipide.
- Incubation des cellules
- Incuber les cellules à 37 °C dans un incubateur humidifié contenant 5 % de CO₂ pendant 6 à 8 h.
- Surveiller l'attachement cellulaire par microscopie optique 2 à 3 h après la transfection.
- Vérifier que les cellules sont uniformément réparties et commencent à s'attacher à la surface de culture.
NOTA : Un nombre excessif de cellules en suspension ou de débris cellulaires peut indiquer une cytotoxicité associée à la transfection.
- Préparation de la plaque de culture
- Préparation de l'ARNm hTERT
3. Atténuation de la cytotoxicité
- Réduire la durée d'exposition à la transfection à 48 h si la perte cellulaire dépasse 20 %.
- Supplémenter les cultures avec 10 µM d'inhibiteur de ROCK, Y-27632, pendant la période de transfection afin d'améliorer la survie cellulaire.
- Après 6 à 8 h de transfection, aspirer soigneusement le milieu de transfection en minimisant la perturbation des cellules partiellement attachées. Laisser environ 100 µL de milieu résiduel dans chaque puits.
- Ajouter 1 mL de milieu de croissance complet frais, préalablement réchauffé et supplémenté avec 15 % de FBS, dans chaque puits.
- Ajouter la chloroquine à une concentration finale de 10 à 20 µM immédiatement après le remplacement du milieu.
- Incuber les cultures pendant 2 h supplémentaires à 37 °C dans un incubateur humidifié contenant 5 % de CO₂.
- Remplacer le milieu contenant la chloroquine par du milieu de croissance complet frais.
- Replacer les cultures dans l'incubateur pour une croissance continue.
NOTE : Surveiller la morphologie et la viabilité cellulaire tout au long de la période de récupération. Un détachement cellulaire excessif ou la présence de débris peuvent indiquer une cytotoxicité associée à la transfection.
4. Analyse après transfection
- Évaluer l'expression protéique de TERT 24 à 48 heures après la transfection.
- Mesurer les niveaux de la protéine TERT par immunoblot ou coloration en immunofluorescence selon les procédures de laboratoire standard.
- Mesurer l'activité de la télomérase durant le même intervalle à l'aide d'un dosage approprié de l'activité télomérasique.
NOTE : L'activité télomérasique diminue généralement après 48 heures en raison de la dégradation de l'ARNm hTERT transféré de façon transitoire. - Évaluer la longueur des télomères 48 à 72 heures après la transfection à l'aide de la PCR quantitative multiplex monochrome (MMqPCR) ou d'une méthode équivalente d'analyse de la longueur des télomères.
NOTE : Un allongement détectable des télomères peut être observé suite à une livraison réussie de l'ARNm hTERT. - Évaluer les phénotypes associés au vieillissement cellulaire et à la rajeunissement 7 jours après la transfection
- Mesurer l'activité de la β-galactosidase associée au vieillissement (SA-β-gal).
- Mesurer les niveaux d'expression de p16 et de p21.
- Évaluer l'expression de Ki67.
- Examiner la morphologie cellulaire par microscopie optique.
NOTE : Comparer les cultures traitées avec des témoins non traités ou transférés avec un faux transgène (mock-transfected) et âgés afin d'évaluer les changements dans les phénotypes associés au vieillissement et les caractéristiques prolifératives.
5. Protocole de doses répétées (facultatif)
- Réaliser la transfection initiale comme décrit dans les sections 2 à 4.
- Répéter les transfections selon le calendrier suivant : jour 0 : première transfection ; jour 5 : deuxième transfection ; jours 10 à 12 : troisième transfection.
- Conserver les cellules en culture adhérente et ne pas les trypsiner avant les transfections suivantes.
- Préparer des complexes frais d'ARNm hTERT–lipides comme décrit dans les sections 2.2.1 à 2.2.3.
- Aspirer le milieu de culture de chaque puits.
- Ajouter directement 200 µL de complexes d'ARNm hTERT–lipides dans chaque puits.
- Ajouter immédiatement 800 µL de milieu F-10 complet frais après l'ajout des complexes.
- Incuber les cellules pendant 4 à 6 h à 37 °C dans un incubateur humide contenant 5 % de CO₂.
- Remplacer le milieu de transfection par du milieu complet frais.
REMARQUE : Limiter le traitement à un maximum de trois cycles de transfection afin de minimiser la cytotoxicité cumulative associée à la transfection.
6. Protocole de transfection directe (2 µg/mL, format 6 puits)
- Jour −1 : Semis des cellules
- Détacher les fibroblastes sénescents ou pré-sénescents à l’aide de trypsine-EDTA 0,05 %.
- Neutraliser la trypsine avec un milieu de culture complet.
- Déterminer le nombre de cellules et leur viabilité.
- Ensemencer les cellules dans des plaques de 6 puits à une densité de 2,0–2,5 × 10⁵ cellules par puits.
- Incuber les cellules toute la nuit à 37 °C dans un incubateur humidifié contenant 5 % de CO₂ jusqu’à ce qu’elles atteignent une confluence d’environ 60–80 %.
- Jour 0 : Préparation des complexes ARNm-hTERT–réactif
- Dégeler un aliquot d’ARNm hTERT modifié au niveau des nucléosides sur de la glace.
- Diluer l’ARNm hTERT dans du Opti-MEM pour obtenir une concentration finale de 2 µg/mL dans un tube stérile sans RNase (Tube A).
- Ajouter un inhibiteur de RNase dans le Tube A pour atteindre une concentration finale de 0,5–1,0 U/µL et mélanger délicatement.
- Diluer le réactif de transfection dans du Opti-MEM dans un second tube sans RNase (Tube B), en utilisant 0,4–0,6 µL de réactif par 100 ng d’ARNm.
- Ajouter goutte à goutte le contenu du Tube B dans le Tube A tout en mélangeant doucement.
- Incuber le mélange à température ambiante pendant 15 à 20 minutes.
- Jour 0 : Transfection directe
- Vérifier que les cellules présentent une confluence de 60 à 80 % et une morphologie saine.
- Aspirer le milieu de culture.
- Laver les cellules une fois avec 1 à 2 mL de PBS préalablement réchauffé.
- Ajouter 0,5 mL de milieu complet ou à teneur réduite en sérum, préalablement réchauffé, dans chaque puits.
- Éventuellement, ajouter du chloroquine à une concentration finale de 10 à 20 µM.
- Ajouter 0,5 mL des complexes ARNm-hTERT–réactif préparés à l’étape 6.2.6 dans chaque puits.
- Agiter doucement la plaque pour répartir uniformément les complexes.
- Incuber les cellules pendant 4 à 6 heures à 37 °C dans un incubateur humidifié contenant 5 % de CO₂.
REMARQUE : Prolonger la durée d’incubation à 6–8 heures pour les cellules sénescentes si nécessaire. - Aspirer le milieu de transfection.
- Ajouter 2,0 mL de milieu complet frais dans chaque puits.
- Effectuer les analyses post-transfection décrites dans la section 4.
REMARQUE : Utiliser la même préparation d’ARNm hTERT, le même réactif de transfection et la même dose nominale lors de la comparaison des conditions de transfection directe et inverse.
Résultats
Le modARNm d2EGFP-T2A-hTERT a été conçu comme un cadre de lecture ouvert hybride dans lequel un rapporteur EGFP instable (d2EGFP) était relié à la TERT humaine par un peptide auto-clivable T2A. Les séquences complètes en nucléotides et en protéines de toutes les constructions sont fournies dans le Fichier Supplémentaire 1. La séquence codante était encadrée par une région non traduite (UTR) 5′ synthétique et l’UTR 3′ de la β-globine humaine afin d’augmenter l’efficacité de la traduction et la stabilité de l’ARNm (Figure 1A). La cassette d’expression contenait également une séquence synthétique stabilisatrice d’enzyme (Es) et une séquence synthétique amplificatrice de la transcription (TEs), conçues pour améliorer la processivité de la polymérase T7 et réduire la terminaison prématurée de la transcription. Après clonage en aval d’un promoteur T7, une transcription in vitro a été réalisée à l’aide d’un analogue de cap anti-inversion (ARCA) et de nucléotides modifiés (m5CTP et ΨUTP), suivie d’un ajout enzymatique d’une queue poly(A) (environ 120–200 nt) afin de produire un modARNm d2EGFP-T2A-hTERT capé, polyadénylé et de haute intégrité (Figure 1A).
L'analyse automatisée de l'ARN par électrophorèse capillaire a confirmé une synthèse efficace du transcrit, révélant une espèce d'ARN majoritaire de la taille attendue avec des produits de dégradation minimes, quelle que soit la quantité d'ARN utilisée, ce qui est compatible avec une production réussie d'ARNm modifié de pleine longueur (Figure 1B). Après transfection de fibroblastes LF1 en sénescence précoce avec 2 µg/mL d'ARNm modifié d2EGFP-T2A-hTERT, la protéine hTERT est devenue détectable dans les 24 heures et est restée élevée pendant 48 à 96 heures, indiquant une traduction prolongée du transcrit synthétique (Figure 1C). L'analyse du rapporteur d2EGFP associé a montré une fluorescence intense après transfection inverse, tandis qu'une fluorescence nettement plus faible a été observée après transfection directe (Figure 1D,E). Ces résultats indiquent une meilleure délivrance et expression de l'ARNm modifié hTERT grâce à l'approche de transfection inverse dans les fibroblastes LF1 en sénescence précoce.
Une transfection répétée dans le sens direct (FT) de fibroblastes LF1 en début de sénescence avec le modARNm d2EGFP-T2A-hTERT à des intervalles de 5 jours a entraîné une augmentation progressive de la longueur moyenne des télomères (rT/S) par rapport aux témoins transfectés de manière factice, mesurée par PCR quantitative multiplex monochrome (MMqPCR) (Figure 2A). Le ratio rT/S a augmenté après chaque cycle de FT, la signification statistique passant de *P < 0,05 à **P < 0,01.
L'application du même schéma posologique par transfection inverse (RT) a entraîné une augmentation plus marquée de la longueur des télomères. Le ratio rT/S a augmenté après chaque cycle de RT et atteint des différences très significatives par rapport aux témoins transfectés de manière factice (*P < 0,05 à ****P < 0,0001) (Figure 2B). Une comparaison directe de la FT et de la RT après trois cycles de traitement a montré que les deux approches augmentaient significativement les valeurs de rT/S par rapport aux témoins transfectés de manière factice ; toutefois, la RT produisait une augmentation supérieure à celle de la FT dans des conditions identiques de posologie et de chronologie (*P < 0,05, ***P < 0,001, ****P < 0,0001) (Figure 2C).
L'analyse de la croissance à long terme a en outre démontré que l'administration répétée de modARN de hTERT prolongeait la durée de vie réplicative (Figure 2D). Les cellules ayant reçu un, deux ou trois cycles de traitement ont présenté des doubles cumulatifs de population de plus en plus élevés par rapport aux témoins transfectés de manière factice. Les cultures ayant subi trois rounds de traitement par modARN de hTERT, en particulier par RT, ont montré la plus grande divergence par rapport aux courbes de croissance témoins au cours d'une période d'environ 250 jours (jusqu'à ****P < 0,0001). Les calculs des doubles de population sont présentés dans le Fichier supplémentaire 2.
Les fibroblastes LF1 en sénescence précoce transfectés avec le modARN d2EGFP-T2A-hTERT ont présenté une forte formation de paliers au test TRAP 48 h après la transfection, tandis que les cellules traitées au modARN d'EGFP ou au faux traitement n'ont montré qu'un signal de fond, indiquant que l'activité télomérase provenait de l'expression exogène de hTERT (Figure 3A). Un prétraitement thermique a supprimé le profil en paliers, confirmant la spécificité du test (Figure 3B).
L'analyse cinétique a montré que l'activité de la télomérase atteignait un maximum entre 24 et 48 heures après la transfection, puis diminuait progressivement, revenant à des niveaux proches de la ligne de base entre 72 et 96 heures (Figure 3C). L'augmentation de la concentration de modARN-hTERT de 50 à 3 000 ng/mL a entraîné une augmentation correspondante de l'intensité du signal TRAP, démontrant une activation de la télomérase dépendante de la dose (Figure 3D).
L'analyse fonctionnelle à l'aide de constructions de l'hTERT de type sauvage, inactive sur le plan catalytique (IC) et dépourvue de signal de localisation nucléaire (ΔSNU) a démontré que seul l'hTERT de type sauvage produisait une activité télomérase importante. Les deux variants, IC et ΔSNU, n'ont pas induit d'activité comparable, malgré des conditions de livraison similaires (Figure 3E). Conformément à ces résultats, l'analyse par MMqPCR a révélé une augmentation marquée de la longueur moyenne des télomères (rT/S ≈ 1,4) uniquement chez les cellules ayant reçu l'ARNm modifié de l'hTERT de type sauvage. Les cellules ayant reçu l'hTERT-IC, l'hTERT-ΔSNU ou un traitement témoin sont restées proches des niveaux de base (rT/S ≈ 0,3 ; ****P < 0,0001) (Figure 3F).
Trois cycles consécutifs de transfection inverse avec de l'ARNm modifié hTERT à des intervalles de cinq jours ont réduit de manière significative la proportion de cellules positives pour la β-galactosidase associée au vieillissement. Le pourcentage de cellules positives est passé d'environ 85 % dans les cultures traitées au faux traitement à environ 40 % dans les cultures traitées à l'hTERT, 15 jours après la dernière transfection (***P < 0,001) (Figure 4A).
L'immunomarquage en microscopie confocale a révélé une expression accrue de Ki67 dans les cellules ayant subi trois cycles de transfection inverse par hTERT par rapport aux témoins traités de façon factice, indiquant une activité proliférative augmentée (Figure 4B). L'analyse par RT-qPCR a en outre montré une diminution de l'expression des marqueurs associés au vieillissement cellulaire p16 et p21 après traitement par hTERT. Par rapport aux cellules en sénescence précoce traitées de façon factice, l'expression de p16 a diminué d'environ 2,3 fois à 0,7 fois, et celle de p21 a diminué d'environ 11 fois à 6 fois (**P < 0,01 ; ****P < 0,0001) (Figure 4C,D). La figure supplémentaire 1 montre en outre que le traitement par la chloroquine (CQ) ou par le Y-27632 seul n'a pas significativement modifié l'expression de p16 ou de p21 dans les cellules transfectées de façon factice. En revanche, l'association de CQ et de Y-27632 au cours de trois cycles de transfection inverse par hTERT a entraîné la plus forte réduction de l'expression de p16 et de p21 par rapport à la transfection inverse par hTERT seule ou à chacun des agents pris individuellement, tandis que le traitement par un seul agent produisait des effets intermédiaires. Ces résultats indiquent que l'utilisation combinée de CQ et de Y-27632 renforce la réduction de l'expression des marqueurs associés au vieillissement cellulaire après transfection inverse par ARNm d'hTERT. Dans leur ensemble, ces résultats démontrent que la transfection inverse répétée d'ARNm d'hTERT favorise l'allongement des télomères, réduit les marqueurs associés à la sénescence et améliore les caractéristiques prolifératives des fibroblastes LF1 en sénescence précoce.
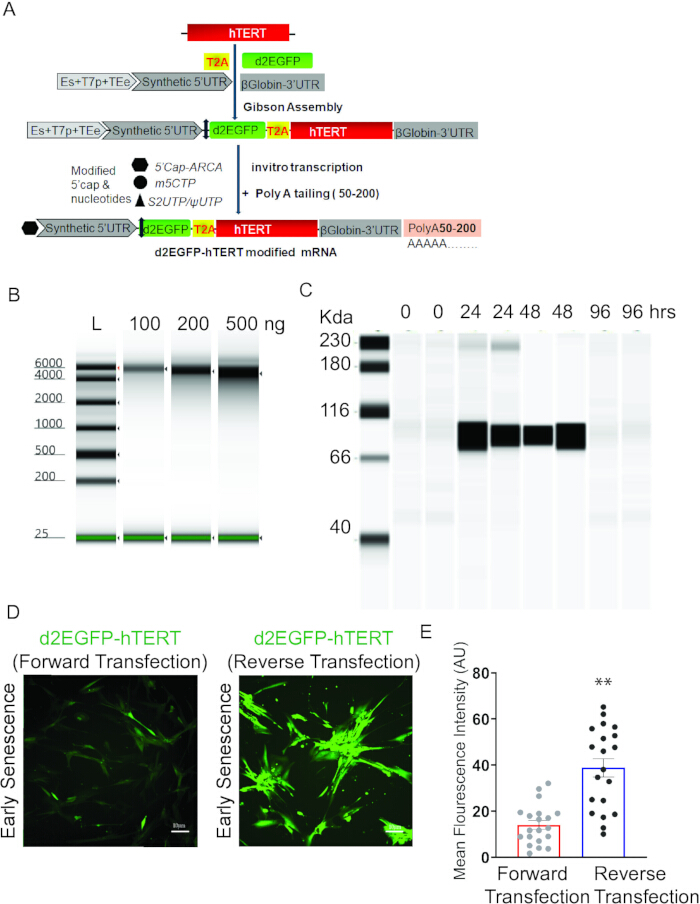
Figure 1: Conception, synthèse et validation fonctionnelle de l'ARNm d2EGFP‑T2A‑hTERT dans des fibroblastes LF1 en début de sénescence. (A) Schéma de conception du construit hybride d'ARNm hTERT contenant la cassette d2EGFP liée par le peptide T2A, permettant l'expression simultanée de hTERT et de la GFP instable (d2EGFP). Le cadre de lecture ouvert (ORF) d2EGFP-T2A-hTERT est encadré par la région UTR 3’ du gène humain de la β-globine (HBB) et une région UTR 5’ synthétique. L'ARNm a été synthétisé à l'aide de nucléotides modifiés, et une queue poly(A) a été ajoutée en fin de procédure. (B) Synthèse efficace d'ARNm d2EGFP-T2A-hTERT de haute intégrité par transcription in vitro, analysée par électrophorèse automatisée des ARN. (C) Analyse cinétique de l'expression de la protéine hTERT par immunoessai capillaire automatisé après transfection avec 2 µg/mL d'ARNm d2EGFP-T2A-hTERT. (D) Efficacité et expression après transfection de l'ARNm d2EGFP-T2A-hTERT, évaluées par l'expression de EGFP en comparant la transfection directe (FT) et la transfection inverse (RT), dans des fibroblastes primaires diploïdes en début de sénescence (LF1). Échelle = 10 µm. (E) Quantification de l'intensité moyenne de fluorescence (MFI) du signal eGFP après transfection directe ou inverse. Un total de 20 images individuelles a été analysé pour chaque condition, couvrant 4 zones distinctes issues de 5 réplicats biologiques. Les données représentent les moyennes ± écart-type (SD). **P < 0,01 ; évalué par le test t non apparié avec correction de Welch. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
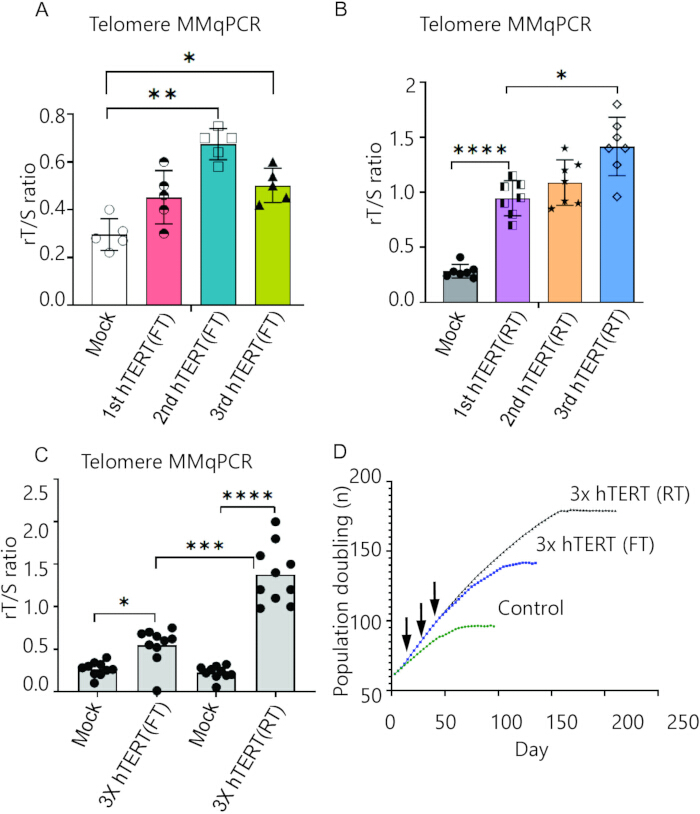
Figure 2 : Dynamique de la longueur des télomères et durée de vie proliférative après des transfections répétées d'ARNm hTERT dans le sens direct ou inverse dans des fibroblastes LF1 en sénescence précoce. (A) Les longueurs moyennes des télomères (rT/S) ont été déterminées par la méthode MMqPCR des télomères. Des fibroblastes en sénescence précoce ont été transfectés dans le sens direct (FT) avec de l’ARNm d2EGFP-T2A-hTERT trois fois de suite à des intervalles de 5 jours, à partir du doublement de population (PD) n°76. La barre d'erreur indique l'erreur type de la moyenne (SEM) ; n = 5 réplicats biologiques ; *P < 0,05, **P < 0,01 par rapport aux cellules traitées uniquement avec un faux traitement (mock). (B) De manière similaire à (A), les valeurs rT/S ont été évaluées lorsque des cellules en sénescence précoce ont été transfectées de façon répétée (RT) avec de l’ARNm d2EGFP-T2A-hTERT trois fois consécutivement à des intervalles de 5 jours, à partir du doublement de population (PD) n°76. La barre d'erreur représente l'erreur type de la moyenne (SEM) ; n = 7 réplicats biologiques ; *P < 0,05, ****P < 0,0001 par rapport aux cellules traitées uniquement avec un faux traitement. (C) Comparaison des longueurs moyennes des télomères (rT/S) après trois transfections successives dans le sens direct et inverse, à des intervalles de 5 jours, ou après un faux traitement uniquement. La barre d'erreur représente l'erreur type de la moyenne (SEM) ; n = 10 réplicats biologiques ; *P < 0,05, ***P < 0,001, ****P < 0,0001. (D) Courbes de croissance de fibroblastes LF1 transfectés avec 2 µg/ml d’ARNm d2EGFP-T2A-hTERT ou avec un faux traitement uniquement, une fois, deux fois ou trois fois de suite à des intervalles de 5 jours à partir du PD n°76. Les flèches noires indiquent les moments des traitements. Les courbes de croissance ont été reproduites trois fois, chaque population étant cultivée en triplets. Trois réplicats techniques par échantillon biologique ; les données représentent les moyennes ± écart-type (SD). *P < 0,05, **P < 0,01 ; ****P < 0,0001, évalué par le test ANOVA de Brown-Forsythe et Welch Veuillez cliquer ici pour consulter une version agrandie de cette figure.
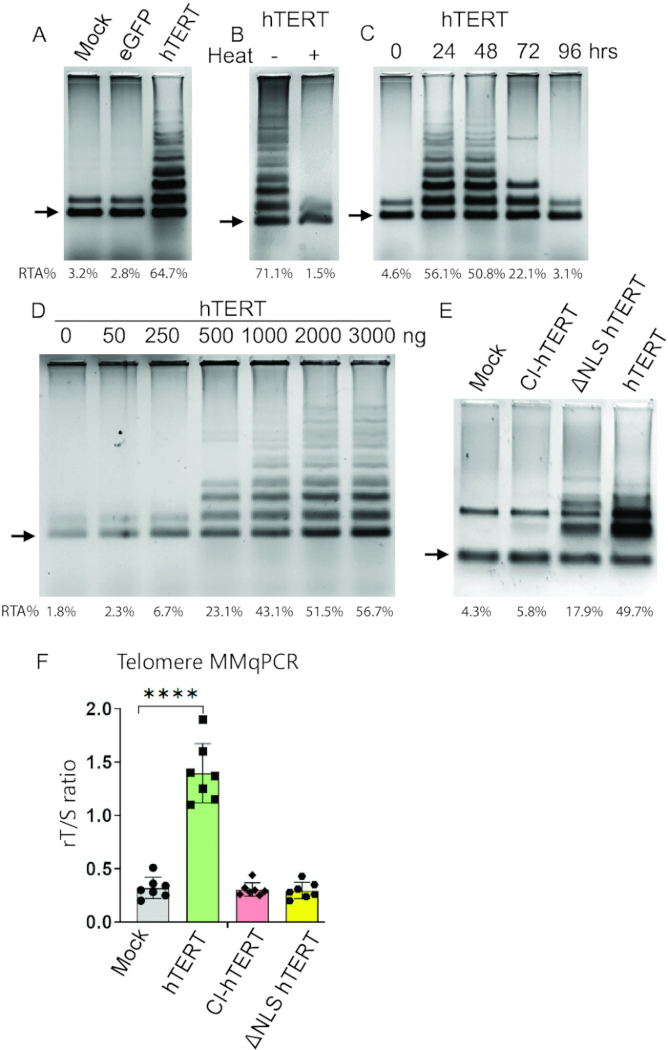
Figure 3 : Un ARNm hTERT catalytiquement actif et localisé dans le noyau induit une augmentation transitoire et dépendante de la dose de l'activité télomérase, suffisante à elle seule pour provoquer un allongement mesurable des télomères dans les fibroblastes LF1 en début de sénescence. (A) Des cellules en début de sénescence ont été transfectées avec un ARNm témoin (mock), eGFP ou d2EGFP-T2A-hTERT. 48 h après la transfection, un extrait cellulaire a été préparé à partir de 20 000 cellules et soumis à un test TRAP. Les produits de réaction ont été analysés par électrophorèse sur gel natif et colorés au SYBR Green. (B) Inactivation de la télomérase par la chaleur, mesurée à l’aide du test TRAP. (C) L’analyse de l’activité télomérase au cours du temps dans les cellules LF1 en début de sénescence après transfection par l’ARNm hTERT a montré que l’activité revenait à la ligne de base dans les 72 h, indiquant une activation transitoire de l’enzyme. (D) Les cellules LF1 en sénescence précoce ont reçu des quantités variables d’ARNm d2EGFP-T2A-hTERT (0–3 000 ng/mL), montrant une augmentation de l’activité télomérase proportionnelle à la dose. (E) L’administration de 2 µg/mL de TERT a augmenté l’activité télomérase dans les cellules LF1 en début de sénescence. La forme ΔNLS a partiellement augmenté l’activité télomérase sans induire l’allongement des télomères, car elle agit dans le cytoplasme sans translocation vers le noyau, tandis que l’ARNm TERT catalytiquement inactif (CI) n’a pas produit cet effet, ce qui indique des résultats fonctionnels distincts. (F) Effet de la transfection inverse par le TERT fonctionnel, le TERT déficient en signal de localisation nucléaire (ΔNLS) et le TERT catalytiquement inactif (CI) sur la longueur moyenne des télomères (rT/S) des cellules LF1 en début de sénescence, soulignant l’importance du TERT catalytiquement actif et localisé dans le noyau pour l’allongement des télomères. Les barres d’erreur représentent l’écart-type (SD) ; n = 7 réplicats biologiques ; ****P < 0,0001 par rapport aux cellules traitées uniquement avec des témoins (mocks), évalué par ANOVA à un facteur avec correction de Welch. Le pourcentage d’activité télomérase relative (RTA %) est indiqué au bas de chaque piste. Le rapport entre les intensités des échelles d’échantillons TRAP et de la bande ITAS (contrôle interne - IC) a été calculé selon la formule suivante pour chaque piste : Activité normalisée = intensité de l’échelle / intensité de l’IC, puis chaque échantillon a été normalisé par rapport au témoin positif en pourcentage (témoin positif : H1299, 2 500 cellules) selon la formule suivante : Activité relative (%) = Activité normalisée (échantillon) / Activité normalisée (référence). Une soustraction du fond a été appliquée à chaque étape. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
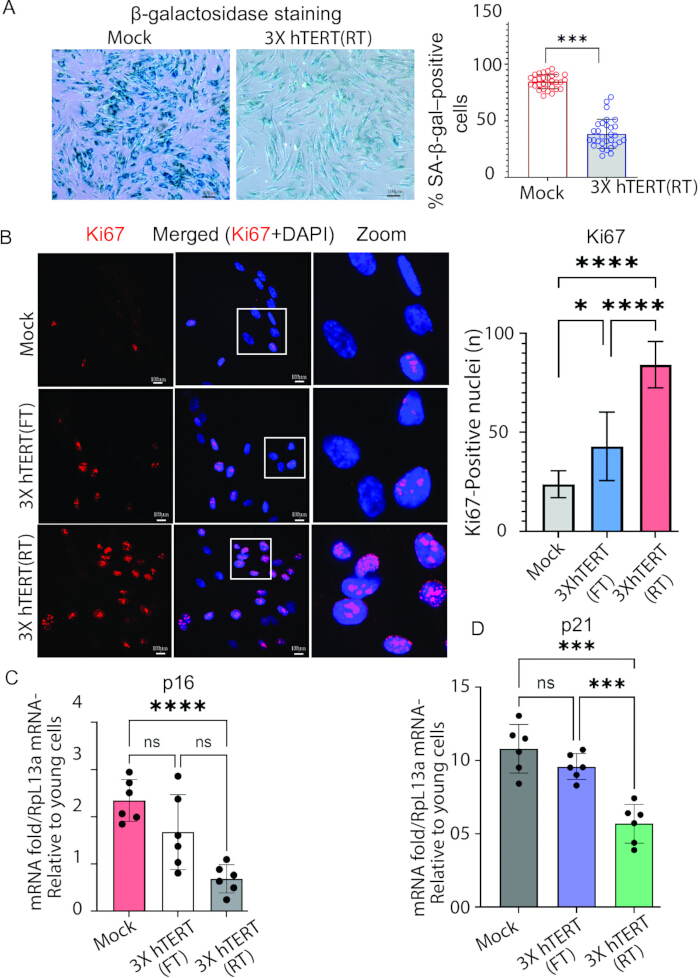
Figure 4: La transfection inverse optimisée par ARNm hTERT inverse partiellement les phénotypes associés au vieillissement et restaure les marqueurs de prolifération dans les fibroblastes LF1 en début de sénescence. (A) Images représentatives de cellules LF1 en sénescence précoce exprimant β-gal après une transfection répétée trois fois de suite par un ARNm hTERT modifié, à des intervalles de 5 jours. Échelle = 100 µm. L'expression de β-gal a été analysée 15 jours après la dernière transfection. Les expériences ont été réalisées trois fois avec >100 cellules par échantillon comptées manuellement.B) Images représentatives de cellules LF1 en sénescence précoce obtenues en microscopie confocale (grossissement 20x), colorées avec le marqueur de prolifération Ki67. Échelle = 100 µm. Augmentation significative de l'expression de Ki-67 après trois cycles de transfection inverse avec hTERT. Le pourcentage de noyaux positifs pour Ki-67 augmente significativement après 3× hTERT (RT). Le graphique représente la moyenne ± écart-type du nombre de noyaux positifs pour Ki-67, normalisé par rapport à la condition transfectée avec le témoin (Mock). Pour chaque condition, un total de 18 images a été analysé, avec sélection de 6 champs distincts pour chacun des réplicats biologiques, soit un total de n = 3 réplicats biologiques. ****P < 0.0001. (CExpression des marqueurs de sénescence après une réjuvenation partielle médiée par hTERT (3×) évaluée par RT-qPCR (n = 6). Toutes les données représentent des moyennes ± ÉT. **P < 0.01; ****P < 0,0001, tel qu'évalué par le test t non apparié avec correction de Welch. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Composant | Volume/Concentration finale |
| ADN matrice pour PCR | 200 –1000 ng |
| Tampon IVT 10× | 2 μL |
| ATP (100 mM) | 2 μL (10 mM final) |
| GTP (100 mM) | 1,5 μL (7,5 mM final) |
| CTP (100 mM) | 2 μL (10 mM final) |
| m1Ψ-5′-TP (100 mM) | 2 μL (10 mM final) (Vous pouvez augmenter l'incorporation du pseudo-UTP en ajoutant de l'UTP normal selon un rapport de 1:4 à 2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (2 mM final) |
| Inhibiteur de RNase (40 U/μL) | 0,5 μL (20 U) |
| Polymérase ARN T7 (50 U/μL) | 2 μL (100 U) |
| H₂O sans nuclease | 20 μL |
Tableau 1 : Composition de la réaction de transcription in vitro (IVT) pour la synthèse d'ARNm hTERT modifié par des nucléosides. Les composants de la réaction et les quantités finales utilisées pour la synthèse IVT avec coiffe ARCA sont indiqués.
| Composant | Volume/Concentration finale |
| ARNm purifié jusqu'à 5 μg | ≤20 μL |
| Buffer 10× pour l'ajout de la queue poly(A) | 5 μL |
| ATP (10 mM) | 5 μL (concentration finale de 1 mM) (Bien qu'il soit déjà présent dans le tampon, l'ajout supplémentaire contribue à la stabilisation de la poly(A).) |
| Poly(A) polymérase (5 U/μL) | 1 μL (5 U) |
| H₂O sans nucléase | Quantité nécessaire pour un volume total de 50 μL |
Tableau 2 : Composition de la réaction de queue poly(A) utilisée pour la modification post-transcriptionnelle de l'ARNm hTERT. Les volumes des réactifs et les conditions de réaction pour la génération d'une queue poly(A) de 120 à 200 nucléotides sont indiqués.
| Paramètre | Format 12 puits | Format 6 puits |
| Surface de croissance | ~3,8 cm² | ~9,5 cm² |
| Milieu par puit | 1,0 mL | 2,0 mL |
| Nombre de cellules semées | 5× 10⁴–6,5× 10⁴ cellules/ml | 2,0–2,5 × 10⁵ |
| Nombre moyen de cellules (à confluence 100 %) | 5,7× 10⁴–7,2× 10⁴ cellules/ml | 2,9–3 × 10⁵ |
| Quantité de transfection d'ARNm | 750 –1000 ng | 2000–3500 ng |
| Réactif de transfection d'ARNm | 1,5 – 3,0 µL | 4,75 – 7 µL |
| Volume final d'ARNm + réactif de transfection dans Opti-MEM | 50 µL | 200 µL |
Tableau 3 : Paramètres de transfection recommandés pour la livraison d'ARNm hTERT dans des formats de culture en plaques 6-puits et 12-puits. Les densités de semis cellulaires, les quantités d'ARNm, les volumes de réactif de transfection et les volumes de formation des complexes utilisés pour les expériences de transfection directe et inverse sont résumés.
Figure supplémentaire 1 : Effet de la chloroquine et du Y-27632 sur l'expression des protéines p16 et p21 associées au vieillissement après une transfection inverse répétée par ARm hTERT. (A) Analyse par RT-PCR quantitative de l'expression de l'ARNm p16 dans des fibroblastes LF1 traités de manière factice et transférés de façon inverse (RT) 3 fois par hTERT, après traitement par la chloroquine (CQ), le Y-27632 ou leur association, comme indiqué. (B) Analyse par RT-PCR quantitative de l'expression de l'ARNm p21 dans les mêmes conditions expérimentales. Les niveaux d'ARNm ont été normalisés à RpL13a et exprimés par rapport aux cellules témoins jeunes (PD#12). Chaque point de données représente des réplicats biologiques. Les données représentent les moyennes ± écart-type (n = 2 réplicats biologiques), avec 5 réplicats techniques par réplicat biologique. La significativité statistique est indiquée sur la figure ; ns, non significatif. *P < 0,05, **P < 0,01, ****P < 0,0001, déterminée par l'ANOVA de Brown–Forsythe et Welch. Abréviations : CQ, chloroquine ; RT, transfection inverse ; Y-27632, inhibiteur de la kinase associée à la protéine Rho (ROCK).Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Séquences d'ADN et de protéines des constructions d'expression de hTERT.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 2 : Calcul du doublement de la population (PD). Les doublements de population (PD) ont été calculés à l’aide de la formule PD = log₂ (Nf/N₀), où N₀ correspond au nombre de cellules semées et Nf au nombre de cellules viables récoltées. Le PD cumulé a été déterminé en additionnant les valeurs de PD au cours des passages.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Cette étude redéfinit le vieillissement cellulaire comme un problème de délivrance particulier, plutôt que comme une simple variation de la physiologie proliférative, et développe une stratégie de transfection par ARNm de la télomérase adaptée aux contraintes biophysiques et immunologiques de l'état sénescen. Les cellules sénescen présentent des membranes rigidifiées enrichies en cholestérol et une activité endocytique réduite, créant ainsi une barrière importante à une délivrance efficace des acides nucléiques. En adoptant une approche de transfection inverse, ce protocole exploite la période d'adhésion transitoire durant laquelle les cellules sénescen subissent une remodélisation membranaire et montrent une plasticité membranaire accrue, synchronisant ainsi le contact entre les cellules et les complexes avec une période de capacité d'absorption améliorée3,4. Des résultats représentatifs démontrent que cette stratégie améliore la délivrance et l'expression de l'ARNm modifié de hTERT par rapport à la transfection directe classique, entraînant un allongement plus important des télomères et des phénotypes associés à la rajeunissement plus marqués.
Une caractéristique centrale de la méthode est une stratégie d'ingénierie multilayer de l'ARNm conçue pour surmonter trois obstacles majeurs dans les cellules sénescentes : une signalisation immunitaire innée élevée, une dégradation accrue de l'ARN et une capacité traductionnelle altérée23,24,25. L'incorporation de pseudouridine et de 5-méthylcytidine réduit l'activation des voies de signalisation TLR3, TLR7/8 et RIG-I tout en améliorant simultanément la stabilité des transcrits et l'efficacité traductionnelle13,26. Le capage ARCA et l'optimisation de la queue poly(A) améliorent davantage la stabilité des transcrits et le rendement traductionnel, permettant une expression transitoire mais robuste de l'hTERT. Conformément à des études antérieures, ces modifications favorisent une expression efficace de la télomérase tout en minimisant l'activation du système immunitaire inné associée à la livraison d'ARN exogène.
Le protocole aborde également l'environnement extracellulaire riche en RNase, caractéristique des cultures sénescentes27. La protection de l'ARN est renforcée par la modification des nucléosides, la formation de complexes lipidiques et l'ajout immédiat d'un inhibiteur de RNase avant la transfection. De plus, le moment de la transfection inverse est ajusté aux cinétiques d'attachement plus lentes des cellules sénescentes, permettant une interaction prolongée entre les cellules et les complexes ARNm-lipides durant l'adhésion cellulaire. Ces modifications améliorent collectivement la probabilité d'absorption réussie du matériel génétique par une population cellulaire difficile à transfecter.
L'échappement endosomal représente un second goulot d'étranglement critique pour la livraison d'ARNm dans les cellules sénescentes. Les cellules sénescentes présentent une teneur lysosomale accrue ainsi qu'un trafic renforcé des cargaisons internalisées vers les compartiments dégradatifs17,28. Une exposition transitoire à la chloroquine pendant la période post-transfection précoce améliore la livraison fonctionnelle en favorisant l'échappement endosomal et en réduisant la dégradation lysosomale de l'ARNm internalisé. Bien que la dose optimale et la durée d'exposition puissent varier selon les types cellulaires, les résultats présentés ici indiquent qu'un renforcement de l'échappement endosomal améliore considérablement l'efficacité de livraison dans les fibroblastes sénescents.
Au niveau fonctionnel, l'administration répétée de modARNm hTERT a entraîné des augmentations cumulatives de la longueur relative des télomères, une prolongation du temps de vie réplicatif et une réduction de plusieurs phénotypes associés au vieillissement cellulaire. Les cellules ayant reçu un traitement répété par hTERT ont montré une activité SA-β-gal réduite, une diminution de l'expression de p16 et de p21, une augmentation de l'expression de Ki67 et une capacité proliférative améliorée par rapport aux cellules témoins transfectées de manière factice. Il est important de noter que l'activité de la télomérase est restée transitoire, revenant à des niveaux proches de la baseline quelques jours après la transfection. Ce profil d'expression transitoire évite toute modification génétique permanente tout en fournissant une activité télomérasique suffisante pour induire des effets biologiques mesurables. Cependant, il convient de souligner que les mesures de longueur relative des télomères obtenues par MMqPCR ne quantifient pas directement l'extension absolue des télomères. De futures études utilisant l'analyse des fragments de restriction terminaux, l'hybridation in situ en fluorescence quantitative, la cytométrie en flux couplée à l'hybridation in situ (Flow-FISH) ou les méthodologies TeSLA permettront une évaluation plus précise de la dynamique de la longueur des télomères après l'administration d'ARNm hTERT.
Plusieurs limites méritent d'être prises en compte. Les populations de cellules sénescentes sont par nature hétérogènes et peuvent varier dans leur réponse à la livraison d'ARNm selon la méthode d'induction de la sénescence, la source du donneur et l'historique de culture. Par conséquent, l'efficacité de la transfection et les résultats en matière de rajeunissement peuvent différer entre les systèmes expérimentaux. De plus, la réactivation de la télomérase s'attaque principalement aux aspects du vieillissement cellulaire dépendants des télomères, sans corriger directement tous les marqueurs de la sénescence. Les altérations associées au vieillissement, telles que la dérive épigénétique, le dysfonctionnement mitochondrial, la protéostasie modifiée et la signalisation inflammatoire chronique, peuvent persister malgré un allongement réussi des télomères29,30. Ce protocole doit donc être considéré comme un outil ciblé permettant d'étudier et de renverser partiellement la sénescence induite par les télomères, plutôt que comme une stratégie de rajeunissement complète.
Les paramètres décrits dans ce protocole sont destinés à servir de lignes directrices pratiques pour les cellules humaines sénescentes et ont été élaborés par une optimisation itérative fondée sur des études publiées et sur l'expérience expérimentale. Des facteurs tels que la densité cellulaire, le rapport réactif de transfection / ARNm, le temps de complexation et les conditions d'échappement endosomal peuvent nécessiter des ajustements selon les types cellulaires et les conditions expérimentales. Les chercheurs doivent donc considérer les conditions rapportées comme un point de départ pour l'optimisation, et non comme des points finaux universellement applicables.
En résumé, ce protocole fournit un cadre reproductible pour délivrer de l'ARNm hTERT modifié à des cellules humaines sénescentes en utilisant une stratégie de transfection inverse optimisée pour les caractéristiques physiologiques de la sénescence. Cette approche permet une réactivation transitoire de la télomérase, un allongement mesurable des télomères, une prolongation de la durée de vie réplicative et une inversion partielle des phénotypes associés à la sénescence. De futures études devraient évaluer l'applicabilité de cette stratégie à d'autres types de cellules sénescentes, examiner des approches combinatoires avec des interventions complémentaires de rajeunissement, et explorer la traduction vers des plateformes de délivrance in vivo. En tant que telle, cette méthode constitue un outil précieux pour l'étude de la biologie des télomères, du rajeunissement cellulaire et des mécanismes de la sénescence en recherche sur le vieillissement.
Déclarations de divulgation
J.M.S. est cofondateur et président du comité consultatif scientifique de Transposon Therapeutics.
Remerciements
Ce travail a été soutenu par des subventions des National Institutes of Health (NIH) P01 AG051449, R01 AG016694 et R01 AG078925 attribuées à JS.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Ham's F-10 Nutrient Mix | Thermo Fisher | 11550043 | Milieu de culture cellulaire. |
| 3´-O-Me-m7G(5')ppp(5')G RNA Cap Structure Analog | New England Biolab | S1411L | Pour la plupart des ARN, la structure de capuchon augmente la stabilité, diminue la sensibilité à la dégradation par les exonucléases et favorise la formation de complexes d'initiation de l'ARNm. |
| 5-Methyl-Cytidine-5´-Triphosphate (5-Methyl-CTP) | New England Biolab | N0432S | Les NTP modifiés sont couramment utilisés pour réduire l'immunogénicité des ARN transcrits in vitro. |
| Plaque 6 puits | Corning | 351146 | Pour cultiver et traiter des volumes moyens à élevés de cellules adhérentes ou en suspension dans des conditions expérimentales indépendantes. |
| Anticorps anti-Ki67 (SP6) | abcam | ab16667 | Ki67 est principalement exprimé dans les cellules proliférantes. |
| Kit d'analyse de sénescence cellulaire (coloration SA-bêta-gal) | cellbiolabs | CBA-230 | Identification des cellules sénescentes par le test de coloration SA-β-gal. |
| Tubes DNA LoBind 0,5 ml | Eppendorf | 022431005 | Pour récupérer efficacement l'ADN et l'ARN sans aucune perte. |
| Tubes DNA LoBind 1,5 ml | Eppendorf | 22431021 | Pour récupérer efficacement l'ADN et l'ARN sans aucune perte. |
| DNase I, sans RNase (1 U/μL) | Thermo Fisher | EN0521 | La DNase I, sans RNase, est une endonucléase qui digère l'ADN simple et double brin. |
| Poly(A) polymérase d’E. coli | New England Biolab | M0276S | Dans Escherichia coli, la poly(A) polymérase I (PAP I) agit principalement comme un catalyseur pour l'ajout, indépendant du modèle, de résidus d'adénosine monophosphate (AMP) à l'extrémité 3' des molécules d'ARN. |
| Sérum de veau fœtal | Thermo Fisher | A5256701 | Supplément pour milieu de culture cellulaire |
| Kit HiScribe T7 ARCA mRNA | New England Biolab | E2065S | Le kit HiScribe T7 ARCA mRNA (avec rallongement) est conçu pour la production rapide d'ARNm capé ARCA et doté d'une queue poly(A) in vitro. Les ARNm capés sont synthétisés par incorporation co-transcriptionnelle d'un analogue de capuchon anti-inversion (ARCA) à l'aide de la polymérase ARN T7. |
| Kit HiScribe T7 mRNA avec réactif CleanCap AG | New England Biolab | E2080S | les kits HiScribe T7 mRNA avec réactif CleanCap AG permettent la production rapide et simplifiée d'un ou de plusieurs transcrits avec des rendements typiques de ≥90 μg par réaction, |
| LongAmp Hot Start Taq ADN polymérase | New England Biolab | M0534S | La LongAmp Hot Start Taq ADN polymérase offre des performances exceptionnelles avec des amplicons longs. |
| Transcriptase inverse M-MuLV | New England Biolab | M0253L | La transcriptase inverse M-MuLV synthétise un brin d'ADN complémentaire amorcé à partir d'un initiateur en utilisant soit l'ARN (synthèse d'ADNc) soit l'ADN simple brin comme matrice. |
| Kit Monarch de purification rapide de l'ARN par colonne (50 μg) | New England Biolab | T2040L | La fonction principale du kit Monarch® de purification rapide de l'ARN par colonne (50 μg) est de purifier et concentrer jusqu'à 50 μg d'ARN de haute qualité provenant de réactions enzymatiques ou de mélanges d'extraction. |
| NEBuilder HiFi DNA Assembly Master Mix | New England Biolab | E2621L | Le mélange maître NEBuilder HiFi DNA Assembly permet l'assemblage fluide de plusieurs fragments d'ADN, quelle que soit leur longueur ou la compatibilité de leurs extrémités. Il est utile pour la communauté de biologie synthétique, ainsi que pour le clonage en une seule étape de plusieurs fragments, grâce à sa facilité d'utilisation, sa souplesse et son format simple de mélange maître. |
| Opti-MEM - Milieu à faible teneur en sérum | Thermo Fisher | 31985070 | Pour maximiser l'efficacité de transfection cellulaire lors de la formation de complexes lipides-charge utile. Il constitue un environnement optimisé et chimiquement défini qui maintient une viabilité élevée des cellules de mammifères tout en réduisant le besoin de supplémentation standard en sérum. |
| PBS, pH 7,4 | Thermo Fisher | 10010023 | L'utilisation fonctionnelle principale du tampon phosphate salin (PBS) à pH 7,4 est de maintenir un pH stable et un équilibre osmotique pour les cellules de mammifères et les molécules biologiques. |
| Bandes PCR | Thermo Fisher | AB0776 | L'utilisation fonctionnelle principale des tubes en bande PCR (généralement en format 8 ou 12 bandes) est de contenir des réactions liquides à faible volume pendant le cyclage thermique à haut débit. |
| Poly-L-lysine hydrobromure | Millipore Sigma | P4707-50ML | L'utilisation fonctionnelle principale du poly-L-lysine (PLL) hydrobromure pour l'attachement cellulaire est de recouvrir des surfaces solides chargées négativement (comme le verre ou le plastique) afin de créer un substrat hautement adhésif chargé positivement. |
| Pseudouridine-5´-Triphosphate (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Le pseudouridine-5´-triphosphate (Pseudo-UTP) est couramment utilisé pour réduire l'immunogénicité des ARN transcrits in vitro. |
| Jeu de solutions de ribonucléotides | New England Biolab | N0450L | Quatre solutions séparées d'ATP, de GTP, de CTP et d'UTP. |
| Inhibiteur ROCK Y-27632 (dihydrochlorure) | Stem cell technologies | 72302 | Le Y-27632 est un inhibiteur cellulaire, très puissant et sélectif, de la kinase associée à Rho contenant un domaine enroulé (ROCK). Le Y-27632 inhibe à la fois ROCK1 (Ki = 220 nM) et ROCK2 (Ki = 300 nM) en compétition avec l'ATP pour la liaison au site catalytique |
| Eau de qualité RT-PCR | Thermo Fisher | AM9935 | L'utilisation fonctionnelle principale de l'eau de qualité RT-PCR (souvent étiquetée comme eau sans nucléase) est de servir de solvant ultra-pur pour des tests enzymatiques sensibles où toute contamination dégraderait l'échantillon ou inhiberait l'amplification. |
| SUPERase·In inhibiteur de RNase | Thermo Fisher | AM2694 | SUPERase In inhibiteur de RNase est un inhibiteur protéique d'origine non humaine qui se lie de manière non covalente et inhibe les RNases les plus courantes et problématiques, notamment les RNases A, B, C, 1 et T1. |
| Colorant SYBR Green I pour gélatine d'acides nucléiques | Thermo Fisher | S7563 | L'utilisation fonctionnelle principale du colorant SYBR™ Green I pour gélatine d'acides nucléiques est de visualiser et quantifier l'ADN double brin (ADNdb) dans des gélatines d'agarose ou de polyacrylamide. |
| Kit de transfection TransIT-mRNA | Mirusbio/ Millipore Sigma | MIR 2250 | Réactif de transfection à haute efficacité et faible toxicité pour les grands ARN. |
| Kit de détection de la télomérase TRAPeze | Millipore Sigma | S7700 | Le test TRAP (protocole d'amplification des répétitions télomériques) est une méthode PCR sensible et largement utilisée pour détecter et mesurer l'activité de la télomérase dans les cellules et échantillons tissulaires de mammifères. Il comprend trois étapes principales : l'extension des répétitions télomériques par la télomérase, l'amplification de ces produits par PCR, puis leur détection. |
| Trypsine-EDTA (0,05 %), rouge de phénol | Thermo Fisher | 25300054 | Pour détacher les cellules de mammifères adhérentes des récipients de culture lors du passage courant des cellules (sous-culture) et de leur récolte. |
Références
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.