Ce protocole vise à évaluer le développement du mélanome chez les xénogreffes de poisson-zèbre en utilisant la résonance paramagnétique électronique in vivo (spectroscopie pour détecter et analyser les radicaux mélaniniques), offrant une approche novatrice pour la recherche préclinique sur le mélanome et l’évaluation thérapeutique.
Article de méthode
Résonance paramagnétique électronique en bande X pour la surveillance in vivo des changements radicaux associés à la mélanine dans les xénogreffes de mélanome de poisson-zèbre
Dans cet article
Résumé
Résumé
Ce protocole présente une application in vivo novatrice de la spectroscopie par résonance paramagnétique électronique en bande X (9,5 GHz) pour surveiller la dynamique des radicaux associés à la mélanine dans des modèles de xénogreffes de mélanome de poisson-zèbre (Danio rerio). L’objectif de cette méthode est de permettre une évaluation directe, sans marqueur et quantitative, des modifications redox associées à la mélanine lors du développement embryonnaire, ainsi que des interactions tumeur-hôte dans un modèle vertébré physiologiquement pertinent.
En tirant parti des propriétés paramagnétiques intrinsèques de la mélanine, cette approche fournit des informations biochimiques complémentaires qui ne peuvent être obtenues uniquement par l’imagerie conventionnelle basée sur la fluorescence. Il est important de noter que le signal de résonance paramagnétique électronique détecté reflète la fraction redox active du polymère mélaninique, et sert donc de lecture sensible au rédox plutôt que de mesure directe de l’abondance totale du pigment.
La performance de la méthode a été validée par la détection sélective de radicaux associés à la mélanine dans des embryons de type sauvage pigmentés, l’absence de signal dans les témoins albinos, des changements développementaux statistiquement significatifs du signal de résonance paramagnétique électronique normalisée à travers des réplications biologiques indépendantes, et des résultats comparables obtenus à l’aide de porte-échantillons alternatifs et d’échantillons congelés.
En combinant la spectroscopie par résonance paramagnétique électron-bande X avec des modèles de xénogreffes de poisson-zèbre, ce protocole offre une plateforme évolutive, éthiquement favorable et transférable pour la recherche préclinique sur le mélanome, les études de biologie redox et l’évaluation d’interventions modulant la mélagène.
Introduction
L’objectif global de cette étude est de développer et valider une méthode in vivo fiable pour la détection et la quantification des radicaux mélaniniques chez les embryons de poisson-zèbre (Danio rerio), modèle de xénogreffe combiné à la spectroscopie par résonance paramagnétique électronique en bande X (9,5 GHz). Cette approche vise à permettre une évaluation directe et quantitative des processus redox associés à la mélanine lors du développement du mélanome et en réponse aux interventions pharmacologiques.
La mélanine est un groupe hétérogène de biopolymères responsables de la pigmentation de la peau, des cheveux et des yeux chez un large éventail d’organismes. Parmi ses formes, l’eumélanine et la phéomélanine jouent des rôles distincts en biologie. L’eumélanine présente des propriétés antioxydantes et photoprotectrices, tandis que la phéomélanine peut favoriser la génération d’espèces réactives de l’oxygène (ROS), en particulier sous exposition auxUV 1,2,3. Les actions antioxydantes et prooxydantes sont toutes deux liées à la formation des radicaux mélaniniques. Au niveau moléculaire, la mélanine est un polymère hétérogène rédox-actif composé de sous-unités indoliques et contenant de la quinone, pouvant exister dans plusieurs états physicochimiques, notamment la quinone entièrement oxydée, la semiquinone partiellement réduite et la forme d’hydroquinoneentièrement réduite 4,5,6. L’abondance relative des espèces de radicaux semiquinones est dynamique et dépend des conditions physicochimiques locales, notamment la disponibilité en oxygène, les espèces réactives d’oxygène (ROS), les interactions entre ions métalliques, le pH, le degré de polymérisation et la maturation desmélanosomes 7,8,9.
Ainsi, des méthodes permettant une évaluation quantitative de ces concentrations radicales sont nécessaires pour mieux comprendre les changements dans l’état redox de la mélanine. Dans le mélanome, la dysrégulation de la mélanogenèse chez les mélanocytes contribue à l’initiation et à la progression du mélanome. Cette dysrégulation est souvent liée aux déplacements de l’état redox, dépendant des conditions microenvironnementales locales. Cela fait de l’activité redox de la mélanine un facteur important en biologietumorale 10. Par conséquent, des méthodes permettant une évaluation directe des radicaux mélaniniques sont essentielles pour comprendre la pathogenèse du mélanome et la réponse thérapeutique.
Les embryons de poisson-zèbre représentent un modèle in vivo puissant pour étudier la pigmentation et le mélanome. Jusqu’à 5 jours après la fécondation (120 heures après la fécondation, HPF), ils ne sont pas classés comme animaux protégés selon la directive 2010/63/UE, ce qui permet des expérimentations à haut débit sans approbation éthique formelle. Le développement rapide, la transparence optique et les protocoles établis rendent le poisson-zèbre très adapté aux études toxicologiqueset pharmacologiques 11,12. Il est important de noter que ce poisson partage d’importantes similitudes génétiques et physiologiques avec les humains, et que les voies clés impliquées dans la mélanocèse sontconservées 13. Alors que les poissons zèbres sauvages produisent principalement de l’eumélanine et servent de modèle pour la pigmentation physiologique, les modèles de xénogreffes — basés sur l’implantation de lignées cellulaires de mélanome produisant de l’eumélanine et de la phéomélanine — permettent d’étudier la progression tumorale des mammifères et les réponses aux médicaments dans un microenvironnement physiologiquementpertinent 14,15.
Actuellement, l’imagerie basée sur la fluorescence est la méthode standard utilisée dans les études de xénogreffes de mélanome de poisson-zèbre. Cette approche permet de visualiser en temps réel la croissance, la migration et la réponse au traitement des tumeurs via des colorants fluorescents, par exemple le dichlorodihydrofluorescéine diacétate (DCFDA) ou des lignes transgéniques (Grx1-roGFP2, HyPer)16,17. Cependant, les techniques de fluorescence fournissent principalement des informations morphologiques et spatiales et sont limitées dans leur capacité à capturer les processus biochimiques et liés au redox. De plus, leurs lectures peuvent être affectées par le photoblanchiment, la fuite de colorant, les interférences des composés fluorescents et d’éventuelles altérations de la physiologie cellulaire causées par le marquage. De manière cruciale, les méthodes basées sur la fluorescence ne fournissent pas d’informations directes sur les radicaux mélaniniques ni sur leur comportement dynamique redox.
La spectroscopie par résonance paramagnétique électronique offre une approche analytique unique et puissante, car elle permet la détection et la quantification directes d’espèces paramagnétiques, y compris les radicaux associés à la mélanine stables. L’eumélanine et la phéoménanine contiennent toutes deux des moitiés semiquinones qui génèrent des signaux de résonance paramagnétique électronique caractéristiques, et la contribution relative de ces signaux a été explorée comme biomarqueur de l’état de pigmentation et de la progression dumélanome 18,19. Il est important de noter que, puisque seule la fraction de semiquinone active en redox contribue directement au signal détecté, la spectroscopie par résonance paramagnétique électronique fournit des informations complémentaires aux tests conventionnels liés à la mélanogenèse, tels que la quantification de la teneur en mélanine, l’activité de la tyrosinase ou l’analyse de la pigmentation. En conséquence, l’intensité du signal de résonance paramagnétique électronique doit être interprétée comme une lecture sensible au redox de l’état fonctionnel de la mélanine, influencée par les conditions physicochimiques locales, plutôt que comme une mesure directe de l’abondance totale de pigment.
Alors que la plupart des études in vivo sur la résonance paramagnétique électronique ont été menées à l’aide de systèmes en bande L (une forme de spectroscopie de résonance paramagnétique électronique utilisant des micro-ondes basse fréquence (autour de 1–2 GHz) pour étudier les espèces paramagnétiques, en particulier dans les échantillons plus grands où une pénétration plus profonde du signal est nécessaire) la résonance paramagnétique électronique en bande X offre une résolution spectrale et une sensibilité plus élevées pour les échantillons de petit volume, ce qui le rend particulièrement adapté aux embryons de poisson-zèbre. De plus, les développements techniques récents, y compris les systèmes de détection multi-harmoniques, améliorent significativement la qualité du signal et permettent des mesures fiables dans des échantillons biologiques difficiles (petits et plushydratés) 21,22. La taille du résonateur en bande X est la taille appropriée pour quelques embryons de poisson-zèbre, ce qui, combiné à une résolution plus élevée que pour le système en bande L, permet de réduire le nombre d’animaux utilisés. C’est particulièrement important lorsqu’on travaille avec des modèles de xénogreffes.
Malgré ces avantages, l’application de la résonance paramagnétique électronique en bande X aux embryons de poisson-zèbre vivants et aux xénogreffes de mélanome dans ce modèle reste largement inexplorée. Des études in vitro utilisant des lignées cellulaires de mélanome, telles que B16F10, ont fourni des informations précieuses sur les propriétés des radicaux mélaniniques ; cependant, ils manquent du contexte physiologique complexe d’un organismevivant 23,24. En particulier, le microenvironnement du poisson-zèbre introduit des facteurs critiques — tels que les gradients d’oxygène, les interactions cellule-cellule et l’activité métabolique dynamique — qui peuvent influencer de manière significative le comportement des radicauxmélaniniques 25,26. Il est donc clair qu’il est nécessaire de développer et de valider une méthodologie in vivo permettant la mesure directe des radicaux mélaniniques dans des conditions physiologiquement pertinentes.
Dans cette étude, nous présentons un protocole détaillé pour appliquer la spectroscopie par résonance paramagnétique électronique en bande X aux embryons de poisson-zèbre, y compris des modèles xénogreffes contenant des lignées cellulaires de mélanome B16F10 et B16F1. Cette méthode offre une approche complémentaire de l’imagerie basée sur la fluorescence en permettant une évaluation quantitative de la teneur en radicaux mélaniniques, offrant ainsi un aperçu de la dynamique redox. En intégrant les informations structurelles et spatiales issues des techniques de fluorescence avec les connaissances biochimiques issues de la résonance paramagnétique électronique, cette stratégie combinée renforce la puissance analytique des modèles de poisson-zèbre pour la recherche préclinique sur le mélanome. Il est important de noter que le signal de résonance paramagnétique électronique détecté dans ce protocole reflète la fraction redox active du polymère mélaninique. En conséquence, l’intensité du signal doit être interprétée comme une lecture sensible au redox plutôt qu’une mesure directe de la teneur totale en mélanine, et considérée en combinaison avec la teneur totale en pigment comme une indication de décalages redox associés à la mélanine. En raison de l’approche de mesure globale de l’organisme et du nombre limité de cellules de mélanome injectées, le signal détecté représente principalement des changements radicaux globaux associés à la mélanine au niveau de l’embryon/larve de poisson zèbre entier, plutôt qu’un signal spécifique au mélanome provenant exclusivement du xénogreffe. Cette distinction est particulièrement pertinente dans les systèmes biologiques dynamiques, où des variations de l’état d’oxydation de la mélanine peuvent se produire indépendamment des variations de la quantité globale de pigment.
Protocole
Des embryons de poisson-zèbre (Danio rerio) ont été utilisés dans cette étude jusqu’à 5 jours après la fécondation (120 hpf). À ce stade de développement, les embryons ne sont pas considérés comme des animaux protégés au titre de la directive 2010/63/UE et les expériences ne nécessitent donc pas d’autorisation formelle d’un comité d’éthique. Néanmoins, tous les travaux ont été réalisés conformément aux bonnes pratiques de laboratoire et aux directives institutionnelles pour la prise en charge et l’utilisation du poisson-zèbre.
1. Préparation des réactifs et maintien des lignées cellulaires de mélanome de souris B16F1 et B16F10
- Préparation du milieu complet
- Ajoutez 50 mL de sérum bovin fœtal (FBS) et 5,5 mL de solution de pénicilline-streptomycine à 500 mL de médium Eagle modifié (DMEM) de Dulbecco.
- Chauffez le milieu complet à 37 °C avant utilisation.
REMARQUE : Utilisez des solutions préchauffées pour minimiser le stress thermique lors de la manipulation des cellules.
- Dégel et démarrage de la culture à partir de cellules congelées
- Décongelez rapidement le flacon congelé avec des cellules dans un bain-marie à 37 °C (~1–2 min).
- Désinfectez l’extérieur du flacon avec 70 % d’éthanol. Effectuez toutes les étapes suivantes dans des conditions aseptiques.
- Transférez la suspension de la cellule dans un tube conique de 15 mL contenant 9 mL de milieu complet préchauffé. Conservez une petite aliquote de la suspension originale pour le test des mycoplasmes.
- Des cellules centrifugeuses dans le tube à 200 × g pendant 5 minutes à température ambiante.
- Aspirez le surnageant pour éliminer le résidu de diméthyle sulfoxyde (DMSO ; du milieu de congélation).
- Resuspendez la granule cellulaire dans 10 mL de milieu complet frais et préchauffé.
- Transférez les cellules dans une boîte de Petri de ⌀�9 cm et faites doucement tournoyer en forme de huit pour répartir uniformément les cellules.
- Incubez les cellules à 37°C, 5 % de CO₂ et ≥95 % d’humidité pendant la nuit.
- Remplacez le milieu de culture par un milieu complet frais pré-chauffé après 16 à 24 heures.
- Poursuivre l’incubation jusqu’à ce que les cellules atteignent >80 % de confluence. Procéder à la sous-culture (voir étape 1.3).
REMARQUE : Alternativement aux boîtes de Petri, des vaisseaux de culture stériles (par exemple, des flasques en T) peuvent être utilisés. Si des plats ou fioles plus petits sont préférés, séparez les cellules proportionnellement pour maintenir la même surface relative de culture.
- Subculture des cellules
- Retirez le milieu de culture de la monocouche cellulaire. Conservez une petite aliquote pour le test des mycoplasmes.
- Ajoutez 10 mL de solution physiologique tamponnée phosphate (PBS) à la plaque de culture.
- Laissez le PBS reposer sur les cellules à température ambiante pendant 3 à 5 minutes pour permettre l’élimination complète des protéines sériques.
- Aspirez doucement le PBS en veillant à ne pas déloger les cellules.
- Ajoutez 1 mL de réactif de dissociation cellulaire et incubez à 37°C jusqu’à ce que les cellules se rassemblent et se détachent (ne pas dépasser 5 minutes d’incubation).
- Ajoutez 1 mL de milieu complet préchauffé pour stopper la dissociation enzymatique.
- Faites doucement une pipette sur la suspension à cellules plusieurs fois pour obtenir une suspension à cellule simple.
- Transférez les cellules dans une nouvelle boîte de Petri ou flasque en T contenant un milieu complet préchauffé dans un rapport de 1:4 à 1:10. Faites doucement tournoyer en huit pour répartir uniformément les cellules.
- Incubez les cellules à 37 °C, 5 % de CO₂ et ≥95 % d’humidité.
REMARQUE : Utilisez des solutions préchauffées (37 °C) et effectuez toutes les procédures dans des conditions aseptiques dans une armoire de sécurité biologique de classe II tout en portant un équipement de protection individuelle approprié. Sous-culture des cellules tous les 2 à 3 jours ou à 80–90 % de confluence. Utilisez les cellules à passage bas (
- Cryopréservation (banquement) des cellules
- Utilisez des cellules saines, en croissance exponentielle (~70 %–80 % de confluent).
- Prélèvez les cellules comme décrit aux étapes 1.3.1–1.3.7 et transférez la suspension cellulaire dans un tube conique de 15 mL.
- Centrifugez les cellules à 300 × g pendant 2 minutes.
- Retirez le surnageant et remettez les cellules en suspension dans un milieu de cryoconservation à 1–5 × 10⁶ cellules/mL.
- Suspension de cellules aliquotes dans des cryovials marqués (lignée cellulaire, numéro de passage, date).
- Congelez les fioles toute la nuit à -80°C à l’aide d’un récipient à taux contrôlé.
- En alternative, utilisez une méthode d’isolation imbriquée : insérez les fioles dans un petit rack en polystyrène conçu pour des tubes de 1,5/2,0 mL, qui est ensuite situé dans une boîte en polystyrène plus grande.
REMARQUE : Cette configuration à double couche est conçue pour fournir le tampon thermique nécessaire à un taux de refroidissement progressif, ce qui est essentiel pour la cryopréservation réussie.
REMARQUE : Les matériaux cryogéniques doivent être manipulés avec des gants isolants et une protection faciale. Suivez les directives institutionnelles pour la gestion de l’azote liquide et des déchets dangereux.
- En alternative, utilisez une méthode d’isolation imbriquée : insérez les fioles dans un petit rack en polystyrène conçu pour des tubes de 1,5/2,0 mL, qui est ensuite situé dans une boîte en polystyrène plus grande.
- Après une incubation nocturne à -80 °C, transférer les fioles dans de l’azote liquide pour un stockage à long terme. Les cryovials peuvent être stockés à -80 °C pour un stockage à court terme.
- Tests de mycoplasme
- Prélever une petite aliquote de milieu de culture ou de suspension cellulaire lors du décongélation, de la sous-culture ou de la cryopréservation.
- Évaluez la contamination par mycoplasmas à l’aide d’un kit de détection de mycoplasmes validé basé sur PCR ou enzymatique, conformément aux instructions du fabricant.
- Utilisez des cultures mycoplasma-négatives pour des expériences ou des banques de lignées cellulaires.
- Notez les résultats et jetez ou isolez toute culture contaminée jusqu’à ce que ce soit dissipé.
REMARQUE : Testez régulièrement la contamination par mycoplasme.
2. Transplantation de cellules cancéreuses dans des larves de poisson-zèbre
- Préparer les cellules cancéreuses pour la transplantation
- Faites croître les cellules jusqu’à ~80 % de confluence.
- Prélever les cellules comme décrit aux étapes 1.3.1–1.3.7.
- Transférez la suspension de la cellule dans un tube microcentrifuge de 2 mL.
- Centrifugez les cellules à 300 × g pendant 2 minutes à température ambiante.
- Retirez le surnageant et lavez la granule cellulaire avec 1 mL de PBS stérile.
- Répétez l’étape 2.1.4–2.1.5 et remettez les cellules dans le PBS restant. Une suspension plus dense entraînera moins de sédimentation.
- Pipettez doucement la suspension de haut en bas jusqu’à obtenir une suspension homogène à cellule unique.
REMARQUE : Utilisation d’une pointe de pipette de 200 μL préhumidifiée (apprêtée) avec une solution de polyvinylpyrroldone (PVP) à 45 %, car elle aide à prévenir la sédimentation cellulaire dans la microaiguille d’injection. - Gardez la suspension de cellules sur glace jusqu’à l’injection.
REMARQUE : Si un agglomération cellulaire survient, passer la suspension cellulaire à travers un filtre cellulaire de 35–40 μm et/ou traiter les cellules avec 0,01–0,05 mg/mL de DNase I.
- Production d’œufs de poisson-zèbre
- La veille de la collecte prévue des œufs, placez les poissons-zèbres adultes dans des aquariums de reproduction contenant de l’eau du système (préparés pour la frai).
- Garder les chars dans l’obscurité totale toute la nuit ; Cela garantit que la frai se déclenche le lendemain matin, lorsque les lumières sont allumées.
- Les poissons fraieront après le début de la lumière le lendemain. Ramassez les œufs en versant l’eau de l’aquarium à travers un passoire à thé.
- Rincez soigneusement les œufs avec un médium E3 (5 mM NaCl, 0,17 mM KCl, 0,33 mMCaCl 2, 0,33 mMMgSO 4).
- Transférez les œufs fécondés dans des boîtes de Petri de 9 cm contenant 20 à 25 mL de milieu E3. Ne placez pas plus de 50 embryons dans chaque plat.
- Incubez les embryons à 28 °C jusqu’à une utilisation ultérieure.
REMARQUE : Veillez à garder les œufs humides en permanence.
- Préparation des embryons de poisson-zèbre
- Retirez manuellement les chorions des embryons à environ 36 hpf.
- Utilisez deux paires de pinces ultra-fines Jewelry No. 5. Avec une paire, pincez fermement mais doucement le chorion pour stabiliser l’œuf. Utilisez la deuxième paire de pinces pour attraper le chorion près de la première paire.
- Tirez doucement la pince dans des directions opposées pour créer une petite déchirure. Élargissez soigneusement l’ouverture jusqu’à ce que l’embryon glisse vers l’extérieur.
- Anesthésiez les larves déchorionées avec une solution tricaïne fraîchement préparée selon les protocoles établis pour les poissonszèbres 27.
REMARQUE : Les embryons sans chorions sont fragiles, collants et doivent être empêchés d’être exposés à l’air. Utilisez des pipettes en verre et des boîtes de Petri recouvertes d’agarose lors du travail avec des poissons zèbres <3 dpf.
- Retirez manuellement les chorions des embryons à environ 36 hpf.
- Préparez les aiguilles de microinjection
- Retirez les capillaires en verre sans filament à l’aide d’un extracteur dont les paramètres sont réglés selon les directives du fabricant.
- À l’aide de pinces fines, cassez la pointe de l’aiguille en deux étapes : d’abord, faites une petite coupure à la pointe fine. Ensuite, effectuez une seconde cassure exactement là où les cellules restent bloquées. Cela crée une ouverture optimale, juste assez grande pour que les cellules puissent passer, tout en restant aussi petite que possible.
- Remplissez l’aiguille avec la suspension à cellules à l’aide d’un long microlader – une pointe pour remplir les microcapillaires en verre. Évitez d’introduire des bulles d’air.
- Utiliser la densité cellulaire maximale possible (concentration maximale) pour la suspension ; La dose cellulaire spécifique est contrôlée via les réglages de l’injecteur.
- Chargez fréquemment l’aiguille avec de petites aliquotes, limitant la colonne de suspension à une hauteur maximale de 2 mm. Cela minimise la sédimentation cellulaire à l’intérieur de l’aiguille, assurant une distribution plus homogène et une livraison plus régulière lors des injections.
- Montez l’aiguille chargée sur un support de l’appareil de microinjection.
- Ajustez la pression d’injection et la durée de l’impulsion pour délivrer le nombre désiré de cellules par injection (le volume total de la suspension cellulaire injectée ne doit pas dépasser la taille de l’œil de l’embryon de poisson-zèbre au moment de l’injection).
REMARQUE : Des exemples détaillés de méthodologie de microinjection par xénogreffe de poisson-zèbre ont été décrits précédemment par d’autresauteurs 28.
- Procédure de microinjection
- Injectez la suspension cellulaire soit dans le sac vitellin, soit dans la circulation selon le plan expérimental.
- Délivrer plus de 1000 cellules par embryon dans des conditions d’injection calibrées.
REMARQUE : Inclure les embryons injectés dans une solution saline tamponnée phosphate (PBS) comme témoins négatifs.
- Manipulation post-injection
- Maintenir l’embryon/larves injectées à 28-32 °C
- Surveillez quotidiennement la survie larvaire et la progression du développement sous une lunette de dissection.
- Évaluer la prolifération et la migration des cellules tumorales aux points temporels expérimentaux sélectionnés.
- Procéder à la mesure de la résonance électron-paramagnétique (EPR) comme décrit à la section 3.1 ou stocker l’échantillon comme décrit à la section 2.7
REMARQUE : Rejetez les larves avec un traumatisme par injection ou une injection incorrecte. Respectez toutes les directives institutionnelles en matière de biosécurité et de soins aux animaux. Manipuler la tricaïne et les déchets biologiques selon les protocoles de sécurité. Éliminer les matières dangereuses conformément à la réglementation.
- Collecte d’échantillons pour la congélation
- Euthanasiez les larves par immersion dans une solution de tricaïne refroidie pendant au moins 3 minutes.
- Transférer des groupes de 10 larves dans des tubes microcentrifuges de 1,5 mL. Retirez l’excès de médium de chaque tube.
- Stockez les échantillons à -20 °C jusqu’à l’analyse par résonance paramagnétique électronique.
3. Détection des radicaux mélaniniques par spectroscopie de résonance paramagnétique électronique
- Détection du radical mélanine chez les larves de poisson-zèbre in vivo
- Allumez le spectromètre de résonance paramagnétique électronique en bande X et laissez le système se stabiliser selon les instructions du fabricant.
- Transférez 20 à 30 larves de poisson-zèbre (3 à 5 jours après la fécondation, dpf) dans un tube microcentrifuge de 1,5 mL.
- Remplir le capillaire plat pour les larves de poisson-zèbre avec 100 μL de milieu E3.
- Scellez une extrémité du capillaire avec un bouchon en plastique et assurez-vous que la colonne de liquide reste confinée à la chambre plate.
- Transférez plusieurs larves avec un petit volume de milieu E3 dans un capillaire hématocrite de 100 μL.
- Déposez doucement les larves à partir du capillaire de l’hématocrite en haut de la partie plate.
REMARQUE : Veillez à préserver la continuité de la solution. Aucune bulle d’air ne doit être présente dans la partie plate ou près du sommet de la partie plate. - Retirez l’excès de liquide de la section tubulaire externe du capillaire tout en maintenant un contact continu avec le liquide dans la chambre plate.
- Répétez les étapes 3.1.5–3.1.7 jusqu’à ce que 20 à 30 larves soient chargées dans le capillaire plat.
- Retirez le liquide résiduel des sections tubulaires du capillaire.
- Insérez le capillaire dans le spectromètre de résonance paramagnétique électronique et positionnez l’échantillon au centre du résonateur.
- Régler les paramètres d’acquisition dans le logiciel du spectromètre comme suit : champ central = 335 mT ; largeur de balayage = 10 mT ; amplitude de modulation = 500 μT ; puissance micro-ondes = 1,6 mW ; nombre de scans = 32 ; temps de balayage = 11 s ; constante de temps = 0.
- Acquérir le spectre de résonance paramagnétique des électrons.
- Retirez le capillaire du résonateur et libérez les larves dans un milieu E3 frais dans une boîte de Petri.
REMARQUE : Évitez d’introduire des bulles d’air lors du chargement de l’échantillon, car les discontinuités dans la colonne liquide peuvent réduire la reproductibilité du signal. Si la détection multiharmonique n’est pas disponible, il faut réduire l’amplitude de modulation et optimiser les paramètres d’acquisition pour maximiser l’intensité du signal sans distorsion spectrale.
- Détection des radicaux mélaniniques chez les larves de poisson-zèbre congelés
- Décongeler un échantillon congelé contenant 10 larves de poisson-zèbre euthanasiées à température ambiante pendant 5 à 10 minutes.
- Ajoutez 100 μL de milieu E3 à l’échantillon décongelé.
- Transférez les larves avec le milieu dans un capillaire hématocrite de 100 μL.
- Retirez l’excès de liquide du capillaire jusqu’à ce que l’échantillon n’occupe que le volume actif du résonateur (environ 1 cm de longueur).
- Scellez le capillaire avec un produit d’étanchéité.
- Insérez le capillaire dans le spectromètre de résonance paramagnétique électronique et positionnez l’échantillon au centre du résonateur.
- Régler les paramètres d’acquisition dans le logiciel du spectromètre comme suit : champ central = 335 mT ; largeur de balayage = 10 mT ; amplitude de modulation = 500 μT ; puissance micro-ondes = 1,6 mW ; nombre de scans = 32 ; temps de balayage = 11 s ; constante de temps = 0.
- Acquérir et sauvegarder le spectre de résonance paramagnétique électronique.
REMARQUE : Assurez-vous que le bord supérieur de l’échantillon reste sous le bord supérieur du résonateur pour éviter la distorsion du signal. Si la détection multiharmonique n’est pas disponible, réduire l’amplitude de modulation et optimiser la puissance micro-ondes pour maximiser l’intensité du signal sans distorsion spectrale.
- Extraction de données de résonance paramagnétique électronique à partir de logiciels d’analyseur multiharmonique et post-traitement des spectres
- Ouvrez le spectre de résonance paramagnétique électronique enregistré dans le logiciel d’analyse multiharmonique.
- Activez le traitement du signal à double canal en sélectionnant Utiliser deux canaux.
- Réglez le nombre d’harmoniques traitées à 30.
- Ajustez le paramètre phase/degré micro-ondes jusqu’à obtenir des composants d’absorption et de dispersion symétriques.
- Ajustez le paramètre phase/degré de modulation jusqu’à ce que le canal 1 affiche un signal d’absorption pure et le canal 2 un signal de dispersion pure.
- Ajustez le paramètre amplitude/G de modulation jusqu’à obtenir la raie spectrale la plus étroite et non déformée.
- Réglez le paramètre passe-bas/Hz pour réduire le bruit des hautes fréquences tout en préservant la forme de la raie spectrale.
- Sélectionnez l’onglet Suppression du bruit et cliquez sur Activer la suppression du bruit. Ajustez les paramètres de l’affinement du facteur de lissage et de la ligne étroite jusqu’à ce que le rapport signal/bruit soit amélioré sans distorsion visible de la raie spectrale.
- Sélectionnez l’onglet Artefacts et activez la correction des valeurs aberrantes et la correction de bande passante.
- Sauvegardez les spectres dans un format utilisé par le logiciel d’analyse de données pour une analyse ultérieure.
- Calculez l’intensité du signal double intégrée en utilisant une intégration numérique dans un logiciel d’analyse de données adapté.
REMARQUE : Lors du travail avec des résonateurs à haute Q, la correction de bande passante améliore la reconstruction des composantes harmoniques supérieures. La reconstruction multiharmonique permet la récupération de spectres non déformés à partir de données brutes surmodulées et améliore le rapport signal/bruit dans des échantillons biologiques de faible intensité.
Résultats
Un aperçu schématique du flux de travail expérimental est présenté à la Figure 1. Des embryons de poisson-zèbre ont été prélevés, transplantés avec des cellules de mélanome B16F10, incubés dans des conditions contrôlées, puis surveillés par microscopie en champ clair ou à fluorescence avant l’analyse par résonance paramagnétique électronique en bande X. Les embryons vivants étaient ensuite chargés dans un capillaire plat/support d’échantillon pour des mesures de résonance paramagnétique électronique de l’organisme entier, permettant la détection non invasive des signaux radicaux associés à la mélanine. Après l’acquisition par résonance paramagnétique électronique, les embryons étaient libérés dans un nouveau milieu E3, permettant des mesures longitudinales sur les mêmes spécimens biologiques.
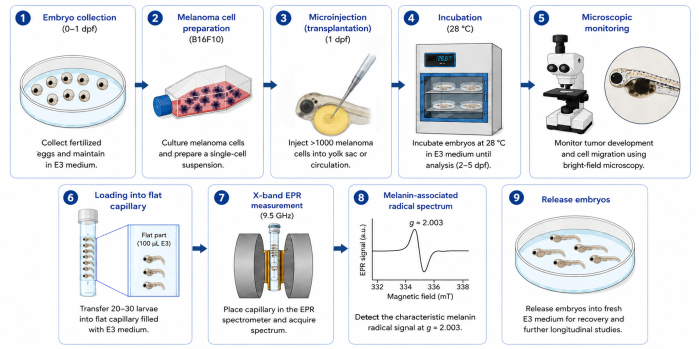
Figure 1 : Aperçu graphique du flux de travail expérimental pour la surveillance in vivo des radicaux associés à la mélanine dans les xénogreffes de mélanome de poisson-zèbre utilisant la spectroscopie par résonance paramagnétique électronique en bande X (EPR). Les embryons de poisson-zèbre sont collectés, transplantés avec des cellules de mélanome, incubés et surveillés au microscope avant de les charger dans un capillaire plat sur mesure pour des mesures EPR d’organismes entiers. Après la détection du signal radical caractéristique associé à la mélanine (g ≈ 2,003), les larves sont relâchées pour des mesures longitudinales de suivi. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Pour valider la spécificité de la méthode, des mesures ont été effectuées sur des embryons de type sauvage (WT) et de poisson-zèbre albinos. Les embryons WT commencent à développer une pigmentation visible à environ 27 hpf. De manière correspondante, les spectres de résonance paramagnétique électronique acquis à partir d’embryons WT présentent un signal caractéristique à ligne unique centré à g ≈ 2,003, cohérent avec les radicaux semiquinones dérivés de l’eumélanine (par exemple, DHI/DHICA). En revanche, les embryons albinos, qui ne présentent pas de synthèse fonctionnelle de mélanine, ne montrent aucun signal de résonance paramagnétique électronique détectable dans la même région spectrale, même à 5 jours après la fécondation (dpf). Cela confirme que le signal observé provient spécifiquement des radicaux mélaniniques et représente une sélectivité de la méthode de validation de contrôle négative (Figure 2).
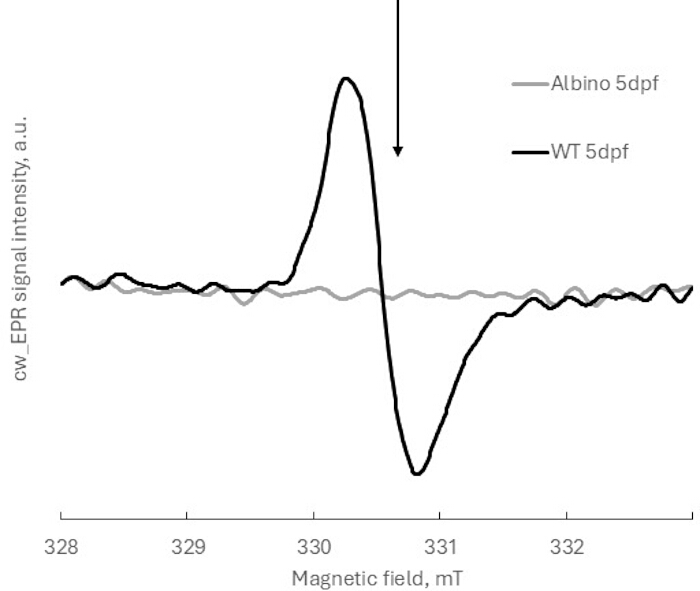
Figure 2 : Spectres représentatifs de résonance paramagnétique d’électrons en bande X des embryons de type sauvage (WT) et de poisson-zèbre albinos à 5dpf. La flèche indique la position de résonance (g ≈ 2,003) du signal radical associé à la mélanine provenant des embryons de poisson-zèbre à 5dpf WT. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
La méthode permet un suivi quantitatif de la formation des radicaux mélaniniques pendant le développement. Au fur et à mesure que la pigmentation progresse, une augmentation nette de l’intensité du signal de résonance paramagnétique électronique est observée. La comparaison des embryons WT de 2 dpf à 5 dpf montre une augmentation substantielle du signal de résonance paramagnétique électronique double intégré normalisé par embryon. La normalisation a été réalisée en divisant les intensités brutes du signal de résonance paramagnétique électronique par le nombre d’embryons dans l’échantillon avant de calculer la double intégrale (Figure 3A).
L’analyse statistique a été réalisée à l’aide du test de Kruskal–Wallis suivi du test de comparaison multiple de Dunn. L’analyse de six réplications biologiques indépendantes (chacune comprenant 7 à 10 embryons) a révélé des différences statistiquement significatives dans le signal de résonance paramagnétique électronique normalisé entre les stades de développement (p < 0,05), confirmant la sensibilité de la méthode.
L’intégrale double des spectres de résonance paramagnétique des électrons est proportionnelle au nombre de spins électroniques non appariés. Ainsi, son augmentation indique une augmentation de la population de radicaux associés à la mélanine au cours du développement. Il est important de noter que cette augmentation reflète probablement des changements dans l’équilibre redox mélaninique associés à une mélanogenèse progressive, plutôt qu’à une accumulation pigmentaire seule.
La reproductibilité du protocole a été évaluée en comparant des spectres de résonance paramagnétique électronique représentatifs acquis à partir d’échantillons contenant un nombre différent d’embryons (7 contre 10) au même stade de développement (5 dpf). Comme prévu, les spectres bruts ont montré des différences d’amplitude du signal proportionnelles à la taille de l’échantillon (Figure 3B). Après normalisation de chaque spectre au nombre d’embryons par échantillon, les spectres se chevauchaient presque entièrement (Figure 3C), et la variabilité entre les lots restait inférieure à 10 %. Ces résultats soulignent l’importance de la normalisation par embryon et confirment la robustesse de la méthode pour les études comparatives.
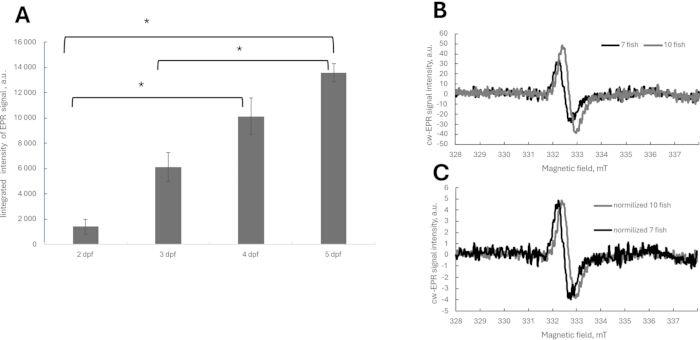
Figure 3 : Surveillance quantitative des dynamiques radicales associées au développement à la mélanine et normalisation des spectres de résonance paramagnétique électronique. (A) Signal de résonance paramagnétique électronique en bande X double intégré obtenu à partir d’embryons de poisson-zèbre de type sauvage (WT) à 2, 3, 4 et 5 jours après la fécondation (dpf). L’intensité du signal a été normalisée au nombre d’embryons par échantillon. Les données représentent la moyenne ± DE de six réplicés biologiques indépendants, chacun comprenant 7 à 10 embryons. Différences statistiquement significatives - *p < 0,05. (B) Spectres représentatifs de résonance paramagnétique électronique brute acquis à partir d’embryons de 5 dpf WT à partir d’échantillons contenant 7 et 10 embryons. L’amplitude du signal augmente proportionnellement au nombre d’embryons dans l’échantillon. (C) Les mêmes spectres de résonance paramagnétique électronique que ceux du panneau B après normalisation, c’est-à-dire les intensités spectrales brutes, sont divisés par le nombre d’embryons dans le capillaire. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Pour évaluer si le protocole dépend du capillaire plat personnalisé utilisé pour les mesures in vivo du poisson-zèbre, la détection des radicaux associés à la mélanine a été réalisée à la fois en utilisant le capillaire plat personnalisé et un capillaire standard commercialement disponible pour l’analyse ex vivo . Les spectres représentatifs de résonance paramagnétique électronique obtenus à l’aide des deux supports d’échantillon ont montré une forme de raie et une position de résonance très comparables (Figure 4A), indiquant que la détection fiable des radicaux associés à la mélanine ne se limite pas à la conception capillaire personnalisée. Les signaux provenant des capillaires plats, après normalisation par embryon, étaient deux fois plus faibles que ceux recalculés à partir du capillaire standard.
Pour évaluer davantage la flexibilité de manipulation des échantillons, des embryons de poisson-zèbre ont été mesurés immédiatement après la collecte et après la congélation, suivis d’une analyse ex vivo à l’aide de capillaires standards. Aucune différence statistiquement significative n’a été observée entre les échantillons frais et congelés sur six réplications biologiques indépendantes (Figure 4B). Ces résultats démontrent que le protocole peut être adapté aux détenteurs d’échantillons par résonance paramagnétique électronique courants et supporte une analyse ex vivo différée, augmentant significativement l’accessibilité, la flexibilité et la reproductibilité de la méthode dans des laboratoires disposant de différents spectromètres à résonance paramagnétique électronique.
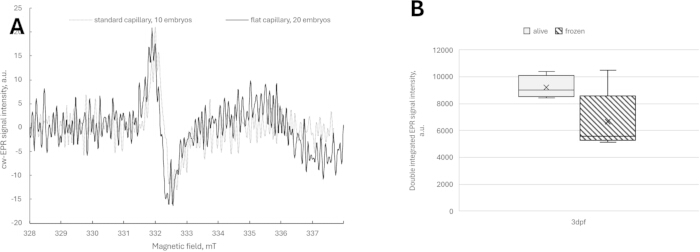
Figure 4 : Compatibilité du protocole. (A) Spectres bruts de résonance paramagnétique électronique mesurés dans des capillaires standards et plats de poisson-zèbre 2dpf WT. (B) Comparaison des mêmes répliques biologiques (3 dpf WT poisson-zèbre) mesurés vivants et congelés dans des capillaires standards. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Pour déterminer si le signal de résonance paramagnétique électronique détecté pouvait être directement attribué aux radicaux mélaniniques dérivés du mélanome, des embryons de poisson-zèbre albinos ont été utilisés comme fond sans mélanine et injectés avec des cellules de mélanome B16F10. Les mesures de résonance paramagnétique électronique ont été effectuées 4 jours après la fécondation (dpf) sous les mêmes conditions d’acquisition que pour les embryons de type sauvage. Comme prévu, les embryons albinos non injectés n’ont montré aucun signal de résonance paramagnétique électronique détectable dans la région spectrale spécifique à la mélanine. Il est important de noter qu’aucun signal de résonance paramagnétique électronique associé à la mélanine détectable n’a été observé chez les embryons albinos avec des cellules B16F10 injectées (Figure 5A), malgré un engraftement cellulaire réussi confirmé par microscopie brillante (Figure 5B).
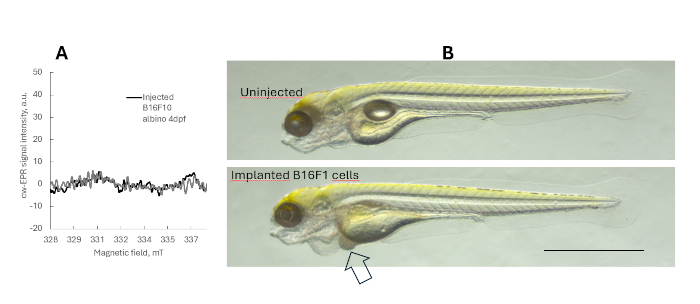
Figure 5 : Évaluation de la détection directe de radicaux associés à la mélanine dérivée du mélanome dans les xénogreffes B16F10 de poisson-zèbre albinos. (A) Signal de résonance paramagnétique électronique associé à la mélanine dans des mesures de xénogreffe albinos albinos à 4df et B16F10 mesurées avec un spectromètre de résonance paramagnétique électronique en bande X. Trois répliques biologiques de 10 embryons chacune ont été utilisées. (B) Image en champ clair de 4 dpf albinos et xénogreffes albinos avec B16F10 trois jours après l’implantation des cellules cancéreuses. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Ces résultats indiquent que, dans les conditions expérimentales actuelles, le nombre de cellules de mélanome injectées est inférieur au seuil de détection directe de la résonance paramagnétique électronique en bande X. Par conséquent, le signal associé à la mélanine détecté dans les mesures de l’organisme entier reflète principalement des changements globaux dans le statut redox mélaninique de l’embryon/larve du poisson-zèbre, plutôt qu’un signal spécifique au mélanome provenant exclusivement du xénogreffe.
Dans les expériences de xénogreffe, l’efficacité de l’engressement et de la croissance des cellules du mélanome dépendait fortement du site d’injection. L’injection dans la circulation (circulation sanguine) a permis un développement tumoral plus constant et a permis une détection fiable des signaux de résonance paramagnétique électronique associés aux cellules du mélanome. En revanche, l’injection dans le sac vitellin entraînait un développement embryonnaire altéré et une croissance tumorale faible, entraînant des signaux faibles ou incohérents. Par conséquent, l’injection sanguine est recommandée pour obtenir des résultats robustes et interprétables (Figure 6).
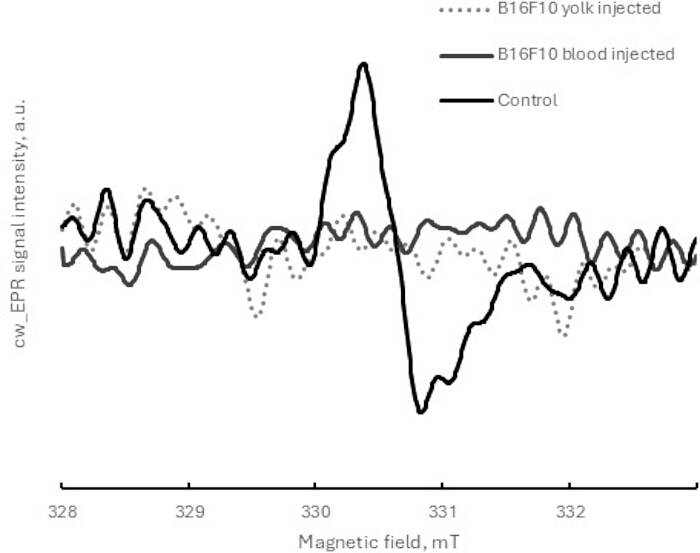
Figure 6 : Effet du site d’injection des cellules de mélanome sur le développement de l’embryon et du xénogreffe de 2 dpf mesuré par résonance paramagnétique électronique en bande X. Spectres représentatifs de résonance paramagnétique électronique provenant d’embryons de poisson-zèbre injectés de cellules de mélanome B16F10 dans le sac vitellin ou la circulation. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Pour démontrer davantage l’applicabilité de la méthode dans les modèles de mélanome, nous avons comparé le signal de résonance paramagnétique électronique obtenu à partir d’embryons de poisson-zèbre de type sauvage (WT) et d’embryons WT injectés avec des cellules de mélanome B16F10 à différents moments du développement.
Chez les embryons de WT, le signal de résonance paramagnétique électronique augmentait progressivement avec le temps, reflétant l’accumulation naturelle d’eumélanine au cours du développement. En revanche, les embryons porteurs de xénogreffes B16F10 présentaient une dynamique du signal modifiée, avec un signal de résonance paramagnétique électronique modifié par rapport à WT aux moments correspondants (Figure 7). Ces différences reflètent probablement une modulation de la mélanogenèse de l’hôte induite par la tumeur et des conditions rédox systémiques, plutôt que la détection directe des radicaux mélaniniques dérivés du mélanome seuls. Comme les cellules B16F10 produisent principalement de l’eumélanine, aucun signal de phéomélanine n’a été détecté.
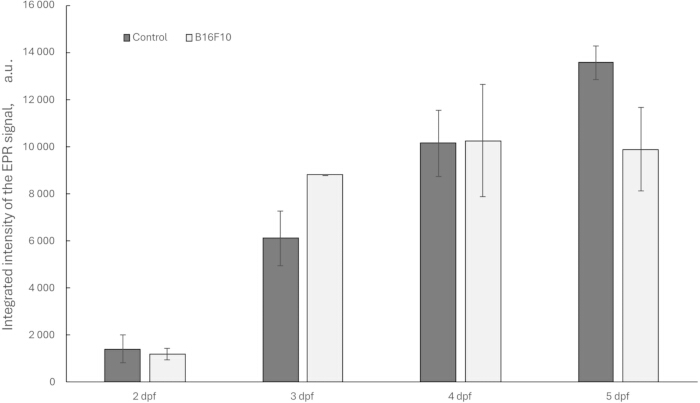
Figure 7 : Comparaison représentative des dynamiques des signaux EPR chez l’organisme entier dans les embryons témoins porteurs de WT et WT B16F10. Signal de résonance paramagnétique électron-bande X double intégré obtenu à partir d’embryons de poisson-zèbre de type sauvage (WT) et de xénogreffes WT B16F10 à 2, 3, 4 et 5 jours après la fécondation (dpf). L’intensité du signal a été normalisée au nombre d’embryons par échantillon. Les données représentent la moyenne ± DE de six réplications biologiques indépendantes (pour le contrôle) et trois pour les xénogreffes de B16F10, chacune comprenant 7 à 10 embryons. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Dans l’ensemble, la mise en œuvre réussie de ce protocole s’explique par : (i) la détection d’un signal clair de résonance paramagnétique électronétique monoligne à g ≈ 2 chez les embryons pigmentés, (ii) l’absence de signal dans les témoins albinos, (iii) l’augmentation de l’intensité du signal au stade de développement, et (iv) la reproductibilité entre réplications biologiques après normalisation.
Discussion
Cette étude présente un protocole robuste et sensible pour la détection in vivo des radicaux associés à la mélanine chez les embryons de poisson-zèbre à l’aide de spectroscopie par résonance paramagnétique électronique en bande X. La méthode permet un suivi non invasif et sans marqueur des modifications rédoxes associées à la mélanine lors de la mélanogenèse physiologique, le développement de xénogreffes de mélanome et l’intervention pharmacologique. En combinant la haute sensibilité de la spectroscopie par résonance paramagnétique électronique en bande X avec la plateforme de xénogreffe du poisson zèbre, cette approche étend les capacités analytiques des modèles actuels de mélanome du poisson zèbre au-delà de l’imagerie morphologique conventionnelle, vers la caractérisation biochimique directe des espèces de mélanine actives en rédox. Contrairement à l’imagerie basée sur la fluorescence, qui fournit principalement des informations structurelles et spatiales, la spectroscopie par résonance paramagnétique électronique détecte directement les radicaux paramagnétiques stables de semiquinone, fournissant une compréhension fonctionnelle complémentaire de la biologie redox de la mélanine.
Le flux de travail présenté présente a une large applicabilité à la recherche sur la pigmentation et le mélanome. Les applications potentielles incluent l’évaluation des thérapies anti-mélanome, l’étude des modifications induites par le médicament dans l’équilibre redox, l’évaluation de composés modulateurs de la mélanogenèse tels que les agents dépigmentants ou de réponse UV, ainsi que l’analyse des interactions tumeur-hôte in vivo. De plus, l’intégration avec l’imagerie à fluorescence et d’autres tests phénotypiques peut fournir une plateforme multimodale combinant des informations spatiales, morphologiques et biochimiques, améliorant ainsi la valeur prédictive des modèles de poisson-zèbre dans la recherche préclinique et le développement thérapeutique.
Plusieurs paramètres expérimentaux sont essentiels pour obtenir des résultats fiables. Dans les expériences de xénogreffe, l’injection dans la circulation a permis une enrichesse plus cohérente et des mesures de résonance paramagnétique électronique reproductible que l’injection dans le sac vitelin, ce qui est en accord avec les étudesprécédentes 29,30. Le choix de la température d’incubation joue un rôle important. Alors que les xénogreffes de poisson-zèbre peuvent généralement être maintenues à 32 °C pour favoriser la cinétique cellulairedes mammifères 31, les lignées de mélanome B16F10 murin utilisées dans cette étude semblent suffisamment agressives pour démontrer des capacités prolifératives et migratoires robustes à 28 °C. Parce qu’un environnement à 32 °C pourrait accélérer considérablement le développement du poisson-zèbre — conduisant potentiellement à un comportement alimentaire indépendant avant le cinquième jour après la fécondation — maintenir les larves à 28 °C garantirait que les organismes restent dans les stades de développementnon protégés 32. Par conséquent, ce choix de température pourrait permettre d’observer avec succès la progression et la métastase tumorale tout en restant conforme aux réglementations sur le bien-être animal qui protègent les larves une fois qu’elles atteignent le stade d’alimentation indépendante. Un autre point crucial est que la normalisation précise du nombre d’embryons et la régularité du stade développemental sont essentielles pour minimiser la variabilité biologique. Des signaux faibles ou incohérents peuvent résulter d’une pigmentation insuffisante, d’une faible charge tumorale, d’un positionnement sous-optimal de l’échantillon au sein du résonateur ou d’un plombage capillaire incomplet. Dans de tels cas, augmenter le nombre d’embryons par échantillon, optimiser l’efficacité de la transplantation et vérifier le placement de l’échantillon dans le volume actif du résonateur peut améliorer la détection du signal. Un nombre plus élevé d’embryons est nécessaire pour les mesures in vivo dans un capillaire plat en raison des pertes diélectriques et du facteur de remplissage réduit associé aux mesures d’organismes entiers dans des échantillons biologiques aqueux. Néanmoins, cette méthode pourrait être utilisée avec des capillaires standards ex vivo. Ces résultats démontrent que le protocole est compatible avec les configurations de spectroscopie par résonance paramagnétique électronique en bande X courantes et supporte une analyse ex vivo différée, augmentant l’accessibilité et la reproductibilité entre les laboratoires utilisant différents instruments.
Malgré ses avantages, la méthode présente plusieurs limites. Une considération biologique importante est que le signal de résonance paramagnétique électronique détecté reflète la fraction redox active du polymère mélanine, plutôt que la teneur totale de pigment seule 15,21,33. En conséquence, les variations de l’intensité du signal de résonance paramagnétique électronique doivent être interprétées comme des changements dans l’équilibre redox associé à la mélanine plutôt que comme un substitut direct de l’abondance de mélanine. Les expériences sur les xénogreffes albinos ont également démontré que, dans les conditions expérimentales actuelles, le nombre de cellules de mélanome injectées restait en dessous du seuil de détection directe de la spectroscopie par résonance paramagnétique électronique en bande X. Ainsi, le signal de l’organisme global détecté chez les larves porteuses de xénogreffes reflète principalement les changements globaux du statut redox associé à la mélanine de l’hôte, induits par des interactions tumeur-hôte, plutôt que par un signal spécifique au mélanome provenant exclusivement du xénogreffe. Il est important de noter que le microenvironnement du poisson-zèbre introduit des gradients dynamiques d’oxygène, des interactions métaboliques et des conditions de stress oxydatif qui peuvent également moduler les populations de radicaux mélaniniques invivo 19,20. Dans les applications xénogreffes, la méthode est actuellement limitée aux modèles de mélanome fortement pigmentés, car une concentration suffisante de mélanine est nécessaire pour une détection fiable du signal. Les tumeurs amélanotiques ou faiblement pigmentées peuvent ne pas produire de signauxdétectables 27. De plus, les lignées cellulaires de mélanome utilisées dans cette étude (B16F10) produisent principalement de l’eumélanine, ce qui donne une seule raie de résonance paramagnétique électronique. Dans les modèles ayant une contribution significative à la phéomélanine, un chevauchement spectral peutsurvenir 13. Dans de tels cas, une simulation spectrale avancée et une déconvolution seraient nécessaires pour distinguer les signaux d’eumélanine et de phéomélanine.
Néanmoins, le flux de travail présenté offre un large potentiel pour étudier la biologie du mélanome, la modulation induite par des médicaments de la mélanogenèse, le stress oxydatif et les interactions tumeur-hôte in vivo. L’intégration de la spectroscopie par résonance paramagnétique électronique avec l’imagerie à fluorescence, les rapporteurs génétiques et d’autres tests phénotypiques pourrait encore renforcer la valeur prédictive des modèles de poisson-zèbre dans la recherche préclinique sur le mélanome et le développement thérapeutique.
Déclarations de divulgation
L’auteur Mikołaj Baranowski travaille chez Novilet, qui fabrique des composants du spectromètre utilisé dans cette étude (analyseur multiharmonique). Les auteurs restants ne déclarent aucun intérêt concurrent.
Remerciements
Le projet « Un nouveau capillaire et une méthode pour déterminer le radical mélanine destiné à des études précliniques de médicaments potentiels pour le mélanome dans le modèle d’embryon de Danio rerio » FENG.02.07-IP.05-0059/23 a été réalisé dans le cadre du programme FENG POC de la Fondation pour la science polonaise, cofinancé par l’Union européenne dans le cadre des Fonds européens pour une économie intelligente 2021–2027 (FENG). Cette recherche a été soutenue par l’Union européenne dans le cadre du programme Smart Growth Operation (numéro de projet POIR.01.02.00-00-0077/18).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 1.5 mL ou 0.5 mL tubes eppendorf | Eppendorf | 0030120086, 0030121023 | Pour transférer les larves de poisson-zèbre vers le capillaire |
| Pipettes Pasteur jetables de 3 mL | Medlab Products | 76-1303-2 | Pour trier et transférer les embryons et les larves |
| Spectromètre EPR X-band de table MiniScope MS200 | Magnettech | Bruker.com | Enregistrement des spectres EPR |
| Chlorure de calcium, dihydrate | Chempur | 363-118748706 | Pour préparer le milieu E3 |
| Lamelles de comptage cellulaire (par exemple, EVE ou EVE PLUS) | Nanoentek Inc | NC2200445 | Pour le compteur cellulaire |
| CellTracker Green | Thermo Fisher | C2925 | Colorant fluorescent pour le suivi cellulaire, pour le marquage cellulaire |
| CM-DiI | Thermo Fisher | C7000 | Colorant fluorescent pour le suivi cellulaire, pour le marquage cellulaire |
| Incubateur CO2 ICO240med | Memmert | N/A | Pour le maintien des cellules, réglé à 37°C, 5% CO2, ≥95% humidité |
| Compteur cellulaire automatisé Countess II | Invitrogen | AMQAX1000 | Pour le comptage des cellules et la densité cellulaire |
| Boîtes de stockage cryogénique CryoKING | Biologix | BGX-ID81 | Pour le stockage des poissons-zèbres avec des xénogreffes |
| Milieu de cryopréservation CM-1 | Cytion | #800150 | Pour congeler les cellules cancéreuses |
| Milieu de Dulbecco modifié de l'aigle (DMEM), glucose élevé, glutamine, sans pyruvate de sodium | Gibco | #11965-092 | Pour le maintien de la culture cellulaire |
| Milieu E3 | In house | N/A | Pour le maintien des embryons/larves de poisson-zèbre, préparé selon Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Incubateur d'oeufs | Incubato | 10130024 | Pour l'incubation des embryons/larves de poisson-zèbre, réglé à 28–32°C |
| Logiciel eSpect+ | Novilet | https://novilet.eu/products/espect/ | Pour l'analyseur multiharmonique |
| Sérum bovin fœtal (FBS) | Gibco | A5256701 | Supplément pour DMEM |
| Pinces fines, revêtues de céramique, Dumont #5, 11 cm | Dumont SA | 11252-50 | Pour le déchorionnage des embryons de poisson-zèbre |
| Capillaires en verre plat conçus pour les poissons-zèbres (Numéro d'application : 21 736) | N/A | N/A | Pour les mesures EPR des embryons de poisson-zèbre |
| Aiguilles en capillaire de verre | Harvard Apparatus | GB100-10 | Sans filament, pour les microinjections |
| Capillaires d'hématocrite (pipettes microdisposables BRAND BLAUBRAND), volume 50 et 100 μL | BRAND | 41121500 | Pour les mesures EPR ou pour le transfert des larves de poisson-zèbre dans un capillaire plat |
| Chlorure de magnésium, hexahydrate | Chempur | 363-116120500 | Pour préparer le milieu E3 |
| Système de microinjection avec micromanipulateur FemtoJet | Eppendorf | EPE5252000021 | Pour charger les cellules dans les microaiguilles |
| Embouts Microloader pour le chargement des aiguilles | Eppendorf | #5242956003 | Pour le système de microinjection |
| Ligne cellulaire de mélanome murin B16-F1 | Cytion | CLS-400122 | Pour les xénogreffes |
| Ligne cellulaire de mélanome murin B16-F10 | Cytion | 305157 | Pour les xénogreffes |
| Analyseur multiharmonique eSpect+ | Novilet | https://novilet.eu/products/espect/ | Pour le spectromètre EPR, pour augmenter la sensibilité |
| Solution de pénicilline-streptomycine | Sigma | P0781-50ml | Facultatif, supplément pour DMEM pour la culture cellulaire |
| Petit bac à pétri, 55 mm | Medlab Products | 51-0056-0A-NX | Pour l'incubation des œufs, embryons et larves de poisson-zèbre |
| Tampon phosphate (PBS), sans calcium ni magnésium | Sigma | D8537-500ml | Pour le rinçage des cellules |
| Chlorure de potassium | Chempur | 363-117397402 | Pour préparer le milieu E3 |
| Kit d'étanchéité pour capillaires d'hématocrite - Critoseal | Noxygen | NOX-A.3-VPC | Pour les mesures EPR des embryons de poisson-zèbre |
| Chlorure de sodium | Chempur | 363-117941206 | Pour préparer le milieu E3 |
| Conteneur de stockage statique en azote liquide | Biobase | YDS-47-127-FS | Pour le stockage des cultures cellulaires |
| Stéréomicroscope | Optatech | SK Series | Pour l'évaluation du développement des embryons de poisson-zèbre |
| Tubes Falcon stériles de 15 mL | SPL Life Sciences | S50015 | Pour la récolte des cellules (centrifugation) |
| Plats à pétri de 90 nm stériles | Googlab Scientific | GP508 | Pour les cultures cellulaires |
| Cryovials stériles : Tube CryoPure 1,0 mL | Sarstedt | 72.377 | Pour congeler les cellules |
| Pipettes Pasteur stériles pour la culture cellulaire (pipettes sérologiques Corning Falcon), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 |
Références
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible