Ce protocole décrit la préparation au laboratoire des grilles d’affinité lipidique monocouche Ni-NTA pour la microscopie électronique cryogénique (cryo-EM). Cette modification de la surface de la grille par microscopie électronique à transmission (MET) capture sélectivement des complexes protéiques solubles marqués par polyhistidine, améliorant ainsi la détermination structurale en concentrant des échantillons dilués et en attachant les particules à l’écart de l’interface air–eau.
Article de méthode
Préparation détaillée des grilles d’affinité des monocouches lipidiques Ni-NTA pour l’analyse structurale cryo-EM de complexes protéiques solubles marqués par polyhistidine
Dans cet article
Résumé
Résumé
La préparation cryogénique de l’échantillon reste un défi technique majeur pour la détermination structurelle à haute résolution des complexes protéiques. Les interactions à l’interface air-eau peuvent induire une dénaturation des protéines ou une orientation préférentielle, limitant ainsi la résolution atteignable. De plus, les échantillons dilués ou les cibles à faible abondance présentent souvent une densité de particules insuffisante, ce qui entrave une collecte efficace des données. Les grilles d’affinité à base de lipides offrent une stratégie efficace pour remédier à ces limites. Cet article présente un protocole étape par étape pour préparer des grilles d’affinité lipidique Ni-NTA pour l’analyse structurale de complexes protéiques solubles marqués par polyhistidine. Les étapes majeures du protocole incluent la préparation d’un mélange lipidique, le dépôt du mélange lipidique sur la surface d’un tampon réservoir, le transfert de la monocouche lipidique résultante sur des grilles TEM, le séchage et le stockage optionnel des grilles lipidiques jusqu’à 1 semaine, et la cryo-plongée des grilles lipidiques avec l’échantillon. La mise en œuvre réussie de ce protocole permet d’obtenir des cryo-grilles contenant une seule couche de particules bien dispersées avec une densité de particules améliorée par rapport aux grilles préparées sans monocouche lipidique. La procédure peut être réalisée en quelques heures dans un laboratoire équipé d’un ventouse cryogénique, d’une hotte chimique et d’outils standards couramment utilisés pour la préparation des échantillons cryogéniques. En combinant des instructions écrites détaillées avec des démonstrations vidéo, ce travail vise à améliorer l’accessibilité, la reproductibilité et l’adoption plus large des grilles d’affinité lipidique Ni-NTA au sein de la communauté cryo-EM.
Introduction
Les techniques expérimentales pour la détermination de la structure des protéines, notamment la cristallographie aux rayons X, la résonance magnétique nucléaire (RMN) et la microscopie électronique cryogénique (cryo-EM), reposent toutes sur une préparation minutieuse de l’échantillon. Dans l’analyse à particule unique (SPA) cryo-EM, la qualité de l’échantillon est souvent le facteur principal limitant la résolution de la reconstruction finale. À mesure que les avancées technologiques dans les microscopes électroniques à cryo-transmission (cryo-TEMs) et les détecteurs directs d’électrons améliorent l’efficacité de la collecte de données et la résolution atteignable, le principal défi en cryo-EM haute résolution se déplace de plus en plus de l’acquisition d’image à la préparation et à la qualité deséchantillons 1,2,3,4,5,6,7.
La préparation traditionnelle d’une cryo-grille consiste généralement à appliquer quelques microlitres d’échantillon à la surface d’une grille de microscopie électronique à transmission (TEM), à abîmer la grille avec du papier filtre, puis à la plonger rapidement dans un cryogène, généralement de l’éthane liquide ou un mélange propane-éthane. Idéalement, la cryo-grille résultante contient une fine glace vitrée avec des particules monodispersées. En pratique, atteindre ce résultat est souvent difficile et peut nécessiter plusieurs cycles d’optimisation pour générer des grilles adaptées à la détermination structurelle à haute résolution. Les problèmes courants incluent la dénaturation des protéines à l’interface air-eau (AWI)8,9, une orientation préférentielle10 et une faible densité de particules dans la couche de glace11,12. Ce dernier défi est particulièrement important pour les complexes protéiques très dynamiques, de courte durée de vie ou difficiles à isoler à des concentrations micromolaires. Plusieurs stratégies ont été développées pour répondre à ces limitations, notamment l’oxyde de graphène13 en continu ultra-fin decarbone 14 et les nanobilles recouvertes de streptavidine pour capturer des cibles biotinylées15.
Une approche alternative consiste à modifier des grilles TEM avec des surfaces d’affinité conçues pour lier sélectivement les molécules cibles. Ces grilles d’affinité peuvent concentrer les particules à la surface de la grille tout en réduisant l’exposition à l’AWI, améliorant ainsi la distribution des particules et préservant l’intégrité structurelle. De plus, l’effet de concentration peut enrichir des complexes macromoléculaires à faible abondance à partir d’échantillons dilués ou hétérogènes.
Au cours de la dernière décennie, plusieurs stratégies de grille d’affinité ont été développées pour la SPA cryo-EM. Ces approches peuvent être catégorisées par modification de la surface de la grille TEM et la stratégie de fonctionnalisation correspondante. Les surfaces couramment utilisées incluent des monocouches lipidiques ultrafines degraphène 14 ou oxyde de graphène amorphe 13,16 ou des nanotubes lipidiques 17,18 et des cristaux bidimensionnels de streptavidine cultivés sur des monocoucheslipidiques 19,20. Parmi ces approches, les grilles d’affinité bidimensionnelles pour streptavidine ont particulièrement réussi à permettre la détermination de la structure protéique à hauterésolution 21,22,23,24,25,26,27,28,29 . Des méthodologies connexes incluent l’utilisation de streptavidine monodispersée à particule unique liée à des monocouches lipidiques, qui a récemment été appliquée pour déterminer la structure du complexe de maintenance des mini-chromosomes lié à l’ADN double brin (ADNds)30.
Malgré ces avancées, les méthodes accessibles et reproductibles pour la préparation de la grille d’affinité restent limitées. Chaque technique a des exigences spécifiques pour la liaison sélective de cibles, et aucune n’est disponible commercialement, nécessitant des protocoles de fabrication spécialisés et des modifications chimiques. Ces étapes supplémentaires peuvent considérablement accroître la complexité technique des flux de travail cryo-EM SPA. En conséquence, cet article présente un protocole détaillé, étape par étape, destiné à faciliter la préparation de la technologie de grille d’affinité décrite ici. Le protocole de grille d’affinité des monocouches lipidiques Ni-NTA a été mis en œuvre régulièrementdepuis 17 ans et peut être facilement adopté pour les études structurales cryo-EM de complexes protéiques solubles marqués par polyhistidine couvrant une large gamme de poids moléculaire (97–470 kDa) (Figure 1). La méthode est compatible avec des concentrations de protéines allant de 0,05 à 0,2 mg/mL dans des tampons sans détergent.
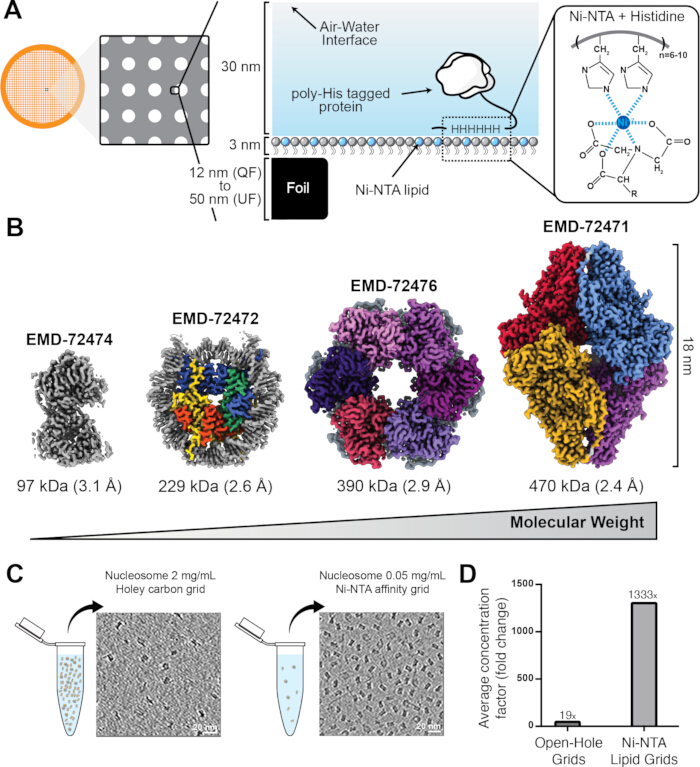
Figure 1 : Aperçu de la conception de la grille d’affinité lipidique Ni-NTA. (A) Schéma d’un cryo-réseau lipidique Ni-NTA à 20 %. La cryo-grille est représentée à gauche, avec une vue en coupe transversale de la monocouche lipidique illustrant les dimensions du film de carbone, de la monocouche lipidique, de la glace vitrée et des particules attachées (centre). L’interaction entre les chaînes latérales d’histidine et les lipides Ni-NTA est représentée à droite. (B) Exemples de protéines marquées par polyhistidine résolues à l’aide de grilles d’affinité lipidique. Les cartes sont dessinées à l’échelle les unes par rapport aux autres, avec le poids moléculaire, la taille, la résolution et le numéro d’accès EMDB indiqués. (C) Tranches tomographiques représentatives de nucléosomes marqués par polyhistidine préparées à l’aide de cryo-grilles non lipidiques à 2 mg/mL (à droite) et de cryo-grilles d’affinité lipidique Ni-NTA à 0,05 mg/mL (à gauche). (D) Facteur de concentration moyen des cryo-grilles non lipidiques comparées aux cryo-grilles d’affinité lipidique Ni-NTA, démontrant la capacité du film lipidique à concentrer les protéines marquées par la polyhistidine à l’écart de l’interface air-eau (AWI). Des extraits de cette figure ont été adaptés des figures 1A, B et 2A, B dans Skrajna et al.17 avec l’autorisation d’Elsevier. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Protocole
Cette étude n’a pas impliqué de participants humains, de données cliniques ou d’animaux vivants. Les réactifs et l’équipement utilisés sont listés dans le tableau des matériaux.
REMARQUE : DOPC fait référence au 18:1 (Δ9-cis) PC. Le lipide Ni-NTA correspond à 18:1 DGS-NTA(Ni). Le tampon faible en sel désigne 10 mM HEPES (pH 7,4) avec 50 mM de NaCl. Le tampon de dilution désigne 20 mM HEPES (pH 7,4) avec 150 mM de NaCl.
1. Lavage de la verrerie réutilisable (~30 min)
- Rassemblez deux petites boîtes de Petri, deux petits caches pour boîte de Petri, une fiole volumétrique de 25 mL avec bouchon, et une fiole volumique de 1 mL avec un bouchon. Placez les objets près de l’évier.
- Dissoudre une poudre de tensioactif anionique dans de l’eau tiède du robinet dans une cuve en plastique de 11,4 L.
- Immergez doucement la verrerie dans la solution de tensioactif.
- En portant des gants en nitrile, frottez toutes les surfaces disponibles en verre avec une brosse de laboratoire. Rincez soigneusement avec de l’eau ultrapure.
- Éliminez l’eau résiduelle en tapotant doucement la verrerie sur des essuie-tout.
- Séchez la verrerie avec un sèche-cheveux jusqu’à ce qu’il ne reste plus d’humidité visible.
REMARQUE : Conservez la verrerie lavée dans un environnement propre et sans poussière.
2. Équilibrer les lipides à la température ambiante (1–4 h)
REMARQUE : Si les stocks de lipides ont été préparés auparavant, passez cette section.
- Placez une ampoule scellée de 25 mg de poudre DOPC et une ampoule scellée de 1 mg de poudre lipidique Ni-NTA dans une hotte chimique.
- Équilibrez les lipides à température ambiante pendant au moins 1 heure.
3. Installation de la station de nettoyage des solvants (~10 min)
ATTENTION : Le chloroforme est un liquide dangereux et volatil qui agit comme dépresseur du système nerveux central ainsi qu’irritant pour la peau, les yeux et les respiratoires. Effectuer toutes les étapes impliquant plus de 100 μL de chloroforme dans une hotte chimique tout en portant un équipement de protection individuelle (EPI) approprié, y compris des gants, une blouse de laboratoire et une protection oculaire. Retirez et jetez les gants en nitrile contaminés dans la minute suivant l’exposition, car le chloroforme pénètre rapidement le nitrile. Ne combinez pas les déchets de chloroforme avec d’autres flux de déchets chimiques.
- Rassemblez 99,8 % de chloroforme, une bouteille de déchets chloroforme avec couvercle, 99,5 % d’éthanol, une bouteille d’éthanol avec couvercle, un contenant pour objets tranchants, deux petites boîtes de Petri, deux petits caches pour boîtes de Petri, une grande boîte de Petri contenant du papier filtrant de grade 1, trois feuilles ou plus de1 à 2 cm de film auto-scellant, et des essuie-tout. Disposez tous les matériaux dans la hotte chimique (Figure 2).
- Rincez les plaques de Petri avec 20 à 30 mL de chloroforme. Jetez le rinçage dans la bouteille de déchets appropriée. Répétez avec de l’éthanol. Faites sécher la vaisselle à l’air libre.
- Remplissez une petite boîte de Petri de chloroforme et l’autre d’éthanol. Couvrez les deux plats pour minimiser l’évaporation.
- Remplissez les boîtes de Petri tout au long de l’expérience, surtout lorsque le chloroforme devient visiblement trouble à cause des contaminants.
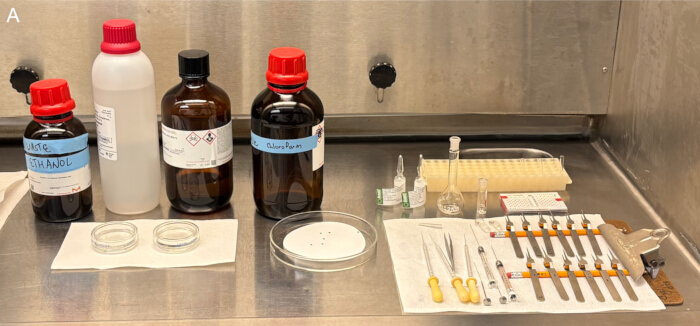
Figure 2 : Hotte chimique contenant des outils et réactifs pour la préparation du mélange lipidique. Image de la station de nettoyage à solvants et des outils, verrerie et grilles TEM nettoyées. Bouteilles de gauche à droite : déchets d’éthanol, éthanol, chloroforme et déchets de chloroforme. Des boîtes de Petri de gauche à droite : éthanol, chloroforme et grilles TEM sur papier filtre. D’autres objets de gauche à droite et de haut en bas incluent des tubes de culture dans un support à tubes, des ampoules lipidiques, des fioles volumétriques avec bouchons, des grilles TEM stockées, des pipets en verre avec bulbes, des pinces à pointe fine, des seringues en verre et des pinces anti-capillaires avec des entretoises (bouts de crayon) insérés. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
4. Outils de nettoyage, verrerie et grilles TEM avec solvants (~20 min)
- Rassemblez une paire de pinces à pointe fine, douze paires de pinces anticapillaires auto-fermées, trois pipettes en verre, une seringue en verre de 25 μL, une seringue en verre de 2,5 μL, trois tubes de culture en verre dans un support à tubes, une fiole volumétrique de 25 mL avec bouchon, une fiole volumétrique de 1 mL avec bouchon, vingt à vingt-cinq fioles en verre filetées de 3,7 mL avec capuchons phénoliques, et douze grilles TEM en maille dorée en holey-carbone. Placez les matériaux près de la station de nettoyage des solvants dans la hotte chimique.
REMARQUE : Gardez une entretoise, comme un bout de crayon, insérée dans chaque paire de pinces anti-capillaires lorsqu’elle n’est pas utilisée pour éviter les malformations et le désalignement des extrémités. Jetez les pinces pliées. - Nettoyez la pince en immergeant plusieurs fois les pointes dans le chloroforme. Répétez avec de l’éthanol. Sèche à l’air libre.
- Nettoyez les pipettes en verre en aspirant et en distribuant du chloroforme plusieurs fois. Répétez avec de l’éthanol. Sèche à l’air libre.
- Nettoyez les seringues en aspirant et en distribuant du chloroforme jusqu’à ce que le ventouse se déplace en douceur. Répétez avec de l’éthanol. Retirez le piston du canon de la seringue et séchez à l’air libre.
- Nettoyez les tubes de culture en ajoutant et en retirant le chloroforme plusieurs fois avec une pipette en verre. Répétez avec de l’éthanol. Enlevez le liquide résiduel en inversant les tubes et en les tapotant doucement sur des essuie-tout. Sèche à l’air libre.
- Nettoyez les flasques volumétriques en ajoutant du chloroforme avec une pipette en verre, en bouchant la fiole, puis en agitant doucement pour rincer les surfaces intérieures. Jetez le solvant dans la bouteille de déchets. Répétez avec de l’éthanol. Laissez les fioles sans bouchon et sèches à l’air.
- Nettoyez les fioles en ajoutant du chloroforme avec une pipette en verre, en bouchant la fiole, puis en agitant doucement pour rincer les surfaces intérieures. Jetez le solvant. Répétez avec de l’éthanol. Laissez les fioles sans bouchon et sèches à l’air.
- Nettoyez les grilles TEM en saisissant le bord extérieur renforcé avec une pince à pointe fine tout en évitant d’endommager le film de carbone. Immergez les grilles verticalement dans le chloroforme trois fois, puis trois fois dans l’éthanol.
- Placez la grille TEM côté charbon vers le haut sur le papier filtre et laissez-les sécher à l’air.
5. Refroidissement du tampon de lancement (>20 min)
- Placez au moins 50 mL de tampon faible en sel sur la glace.
- Refroidissez le tampon pendant au moins 20 minutes.
6. Préparation de solutions séparées de 1 mg/mL de stock de chloroforme de DOPC et de lipide Ni-NTA (~20 min)
REMARQUE : Si les stocks lipidiques ont été préparés auparavant, passez à la section 8, « Préparation du mélange lipidique 80 % DOPC/20 % Ni-NTA ».
- Assurez-vous que les poudres lipidiques DOPC et Ni-NTA se sont équilibrées à température ambiante.
ATTENTION : Les rasoirs et le verre brisé sont des dangers tranchants. Faites preuve de prudence lorsque vous utilisez un rasoir et cassez des ampoules en verre. - Pour améliorer la visibilité de la poudre DOPC, retirez l’étiquette de l’ampoule en la coupant avec un rasoir et en la décollant. Répétez pour l’ampoule lipidique Ni-NTA.
- Avec les deux mains et en travaillant sur le récipient pour objets tranchants, ouvrez soigneusement l’ampoule contenant 25 mg de DOPC. Jetez le col de l’ampoule dans le récipient à objets tranchants. Placez le corps de l’ampoule près de la plaque en chloroforme. Répétez pour l’ampoule lipidique Ni-NTA de 1 mg.
- Brossez soigneusement les fragments de verre des gants et des surfaces de travail dans le récipient à objets tranchants. Remplacez immédiatement les gants endommagés.
- Marquez une pipette en verre pour le chloroforme, une pour la DOPC et une pour les lipides de Ni-NTA.
- Remplissez une petite boîte de Petri nettoyée au solvant avec du chloroforme.
- Utilisez la pipette DOPC pour transférer 2 à 5 mL de chloroforme dans l’ampoule DOPC. Aspirez et distribuez la solution jusqu’à ce que le lipide au fond et sur les côtés se dissolve complètement.
- Transférez la solution DOPC dans la fiole volumétrique de 25 mL à l’aide de la pipette DOPC. Amenez la fiole à un volume final de 25 mL avec du chloroforme à l’aide de la pipette au chloroforme.
- Jetez l’ampoule DOPC dans le récipient pour objets tranchants.
- Transférez moins de 1 mL de chloroforme dans la fiole volumétrique de 1 mL à l’aide de la pipette au chloroforme.
- Utilisez la pipette lipidique Ni-NTA pour transférer le chloroforme de la fiole volumétrique de 1 mL vers l’ampoule lipidique Ni-NTA. Aspirez et distribuez la solution jusqu’à ce que le lipide au fond et sur les côtés se dissolve complètement.
- Transférez la solution lipidique Ni-NTA dans la fiole volumétrique de 1 mL à l’aide de la pipette lipidique Ni-NTA. Amenez la fiole à un volume final de 1 mL avec du chloroforme à l’aide de la pipette au chloroforme.
- Jetez l’ampoule lipidique Ni-NTA dans le récipient pour objets tranchants.
7. Préparation de petites aliquotes de lipides pour un stockage à long terme (~15 min)
- Utilisez la pipette DOPC pour aliquoter 1 à 2 mL de stock DOPC dans plusieurs fioles en verre. Bouchons et étiquettes sur les fioles.
- Utilisez la pipette lipidique Ni-NTA pour aliquoter 0,2 à 0,5 mL de stock lipidique Ni-NTA dans plusieurs fioles en verre. Bouchons et étiquettes sur les fioles.
ATTENTION : L’azote liquide (LN2) est un cryogène qui peut initialement produire un bref effet de Leidenfrost avant de provoquer une douleur intense, un engourdissement, des cloques et des engelures. La gravité des blessures augmente avec la durée de l’exposition et peut évoluer des brûlures du premier au quatrième degré en moins d’une minute. Les objets refroidis par LN2 peuvent causer des blessures similaires. Soyez attentif à la conduction thermique via des outils cryo-échantillons lors de la manipulation en LN2. Portez une visière pour vous protéger des éclaboussures. Ne pas immerger les mains dans le LN2, même en portant des gants cryoprotecteurs, car le LN2 piégé pourrait rester en contact avec la peau. Ne confondez pas la vapeur d’eau atmosphérique condensée avec la vapeur LN2. Le LN2 augmente d’environ 700 × en volume lorsqu’il est transformé en un asphyxiant gazeux invisible et inodore. Assurez-vous que tous les réservoirs et dewars de LN2 sont correctement ventilés pour éviter l’accumulation de pression. Utiliser le LN2 uniquement dans des zones bien ventilées et évaporer le LN2 inutilisé dans une hotte chimique. - Remplissez un petit dewar au cryogène avec du LN2.
- Retirez le bouchon d’un flacon aliquote, versez de la vapeur d’azote dans la fiole, rebouchez la fiole, puis scellez-la avec un film auto-scellant. Répétez pour tous les flacons d’aliquote.
REMARQUE : Conservez les stocks d’aliquotes lipidiques à −20 °C pendant jusqu’à 3 mois.
8. Préparation du mélange lipidique 80 % DOPC/20 % Ni-NTA (~15 min)
- Assurez-vous que les aliquotes lipidiques du DOPC et du Ni-NTA se sont équilibrées à température ambiante.
- Étiquetez un tube de culture en verre pour la DOPC, un pour les lipides de Ni-NTA, et un pour le mélange lipidique.
- Utilisez la pipette DOPC pour transférer 50 à 100 μL (2 à 3 gouttes) de stock DOPC dans le tube de culture DOPC. Scellez le tube avec un film auto-étanche.
- Utilisez la pipette lipidique Ni-NTA pour transférer 20 à 50 μL (1 à 2 gouttes) de base lipidique Ni-NTA dans le tube de culture lipidique Ni-NTA. Scellez le tube avec un film auto-étanche.
- Utilisez la seringue de 25 μL pour aspirer 20 μL d’aliquote DOPC dans le fût de la seringue. Confirmez que le fût ne contient pas de bulles et réextractez l’échantillon si nécessaire. Distribuez l’aliquote dans le tube du mélange lipidique. Répétez une fois pour un volume total de 40 μL.
- Nettoyez la seringue avec du chloroforme suivi d’éthanol.
- Utilisez la seringue pour prélever 10 μL d’aliquote lipidique Ni-NTA. Confirmez que le fût ne contient pas de bulles et réextractez l’échantillon si nécessaire. Distribuez l’aliquote dans le tube du mélange lipidique, portant le volume total final à 50 μL.
- Mélangez les lipides en aspirant et en distribuant la solution plusieurs fois. Scellez le tube avec un film auto-étanche.
- Nettoyez la seringue avec du chloroforme suivi d’éthanol. Sèche à l’air libre.
9. Moulage d’une monocouche lipidique et transfert sur les grilles TEM (~10 min)
- Assurez-vous que le tampon pauvre en sel est bien refroidi.
- Rassemblez une petite lampe LED, le tampon froid pauvre en sel, une bouteille tampon à déchets, de l’éthanol réactif, une bouteille d’éthanol pour déchets, une bouteille d’huile de ricin avec compte-gouttes, le mélange lipidique, une petite boîte de Petri, une seringue de 2,5 μL, douze paires de pinces anti-capillaires, douze grilles TEM et des mouchoirs à faible tenace. Disposez les matériaux sur un plateau noir bien éclairé (Figure 3).
- Orientez le bras plat de chaque paire de pinces anti-capillaires vers le côté carbone d’une grille TEM. Serrez la grille le long du bord extérieur renforcé. Répétez pour toutes les grilles.
- Remplissez la petite boîte de Petri jusqu’à ras bord avec un tampon froid à faible teneur en sel (Figure 4A). Placez une goutte d’huile de ricin au centre de la surface tampon (Figure 4B, 4C).
REMARQUE : Procédez rapidement aux étapes suivantes car la monocouche lipidique s’éloigne progressivement du centre de l’huile de ricin au fil du temps, réduisant ainsi l’efficacité du transfert. Les fluctuations de température et les vibrations accélèrent ce processus. - Utilisez la seringue de 2,5 μL pour extraire 1 μL de mélange lipidique. Abaissez la pointe de l’aiguille de la seringue au centre de l’huile de ricin. Distribuez le mélange lipidique sous forme de gouttelette suspendue au biseau de l’aiguille juste au-dessus de la surface, puis touchez doucement la gouttelette à l’huile de ricin (Figure 4D).
- Utilisez la lampe LED pour confirmer la formation d’un cercle lipidique plat de 2 à 3 cm de diamètre entouré d’un anneau d’huile de ricin (Figure 4E). Si cette morphologie n’est pas observée, réinitialisez la plaque de coulée en jetant le tampon, en rinçant la plaque avec de l’éthanol réactif, en séchant avec des tissus à faible teneur en peluches, puis en réappliquant un mélange tampon pauvre en sel, huile de ricin et lipides.
REMARQUE : Un excès d’huile de ricin entrave la formation de la monocouche lipidique, tandis qu’une quantité insuffisante d’huile de ricin ne contient pas la monocouche. La fluidité lipidique dépend de la température. Si le tampon est trop froid, le lipide ne se répand pas en monocouche. Si le tampon est trop chaud, les lipides et l’huile de ricin migrent vers le bord du plat et s’effondrent. Versez un tampon refroidi dans une boîte de Petri à température ambiante pour obtenir une propagation optimale des lipides. Réinitialisez la plaque de montée au besoin après chaque transfert de grille. Assurez-vous que la plaque de montée est complètement exempte d’huile avant d’ajouter un nouveau tampon. - Transférez la monocouche lipidique sur une grille TEM en abaissant la grille TEM serrée au centre de la moule lipidique avec le côté carbone orienté vers le bas. Touchez doucement toute la surface du carbone à la monocouche lipidique sans submerger ni libérer la grille (Figure 4F).
- Inspectez la grille lipidique pour confirmer une couverture complète du liquide et l’absence d’huile de ricin (Figure 5). Jetez les grilles huileuses.
- Répétez la procédure de transfert pour toutes les grilles TEM.
REMARQUE : Les grilles lipidiques serrées peuvent sécher en 5 à 10 minutes. Les grilles lipidiques peuvent rester serrées sur le dessus du banc toute la nuit avant la réhydratation. Sinon, les grilles lipidiques séchées peuvent être placées dans une boîte à grilles et stockées dans un dessicateur à température ambiante pendant jusqu’à 1 semaine avant de les récupérer et de les réhydrater.
CRITIQUE : Ne procéder que si le gel plongeant survient dans les 2 heures. Sinon, retardez les étapes restantes.
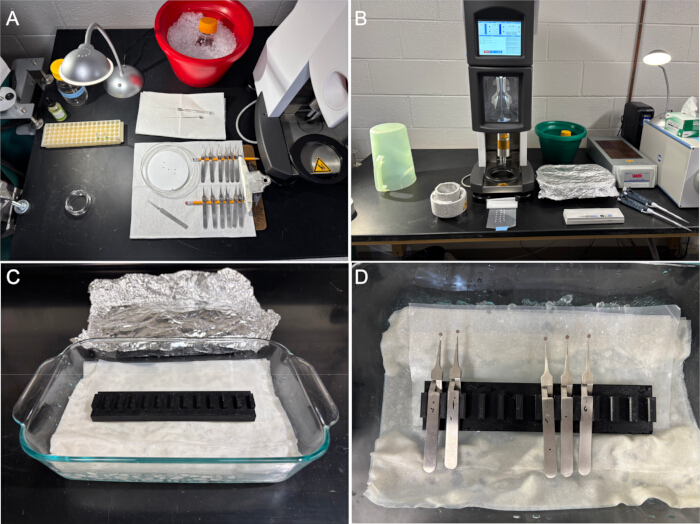
Figure 3 : Installation d’établi pour couler des monocouches lipidiques et congéler par plongeon. (A) Les éléments présentés de gauche à droite et de haut en bas comprennent une bouteille compte-gouttes d’huile de ricin, une bouteille de déchets tampon, une lampe LED, un tampon froid à faible teneur en sel sur glace, un support à tubes contenant des aliquotes lipidiques et un mélange lipidique, une seringue en verre de 2,5 μL, une boîte de Petri vide, une boîte de Petri contenant des grilles TEM sur papier filtrant, des pinces à pointe fine et des pinces anti-capillaires avec des entretoises insérées. (B) Les éléments présentés comprennent un cryo-piston refroidi et humidifié, un pot cryo-piston assemblé, un seau à glace contenant un tampon de dilution et un échantillon, une chambre d’humidité sur le plan d’essai recouverte de papier aluminium, un film scellé et auto-scellant avec des lignes de gouttes tampons de dilution, des pinces cryo-plongeer et des micropipettes. (C) Chambre d’humidité sur le plan de travail contenant de la glace, des essuie-tout humides, un film auto-étanché et un porte-pince version de table. (D) Grilles lipidiques serrées par une pince anti-capillaire à l’intérieur de la chambre d’humidité du dessus du repos. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
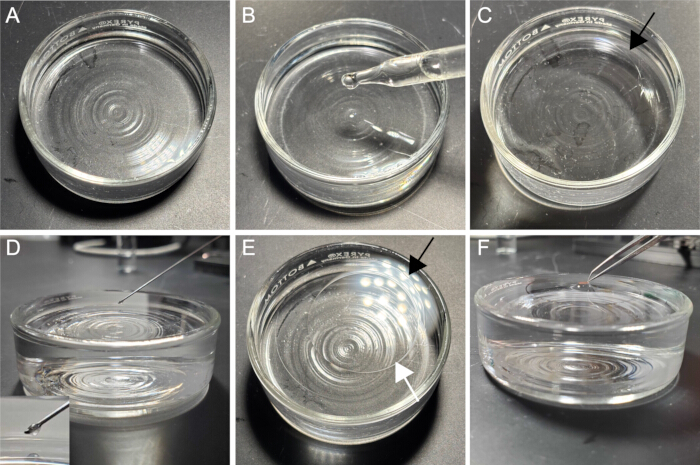
Figure 4 : Moulage d’une monocouche lipidique et son transfert sur des grilles TEM. (A) Plat de coulée rempli d’un tampon faible en sel. (B) Distribution d’une goutte d’huile de ricin dans la boîte de coulée. (C) Cercle d’huile de ricin flottant sur la surface tampon ; La flèche noire indique la limite de l’huile de ricin. (D) Aiguille de seringue centrée au-dessus de l’huile de ricin avec le biseau orienté vers le bas ; 1 μL de gouttelette de mélange lipidique suspendue à la pointe de l’aiguille. (E) Mélange lipidique répandu dans un anneau d’huile de ricin ; La flèche noire indique la limite de l’huile de ricin, et la flèche blanche indique la limite de la monocouche lipidique. (F) Transfert de la monocouche lipidique sur le côté carbone d’une grille TEM. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
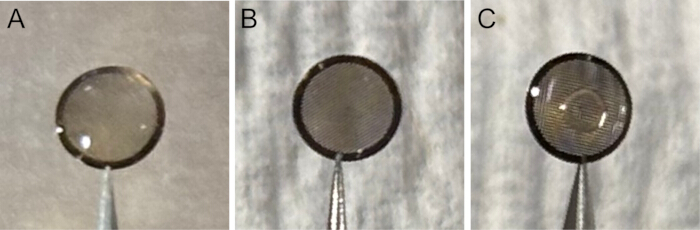
Figure 5 : Exemples de grilles TEM après transfert de monocouches lipidiques. (A) Transfert lipidique réussi avec tampon réparti sur toute la surface de la grille. (B) Transfert lipidique réussi après séchage à l’air pendant 1 h. (C) Transfert lipidique contaminé à l’huile de ricin, visible au centre de la grille. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
10. Incubation du papier blot dans un cryo-plunger à 4 °C et 100 % d’humidité (>1 h)
- Réglez la chambre d’humidité du cryo-plunger à 4 °C et 100 % d’humidité.
- Installez du papier diluant sur les tampons buvants. Faites couver le papier à eau à haute humidité pendant au moins 1 heure.
11. Refroidissement du tampon de dilution (~20 min)
- Placez au moins 20 mL de tampon de dilution sur de la glace.
- Refroidissez le tampon pendant au moins 20 minutes.
12. Tampon de dilution d’incubation sur les grilles lipidiques (>15 min)
- Rassemblez une plaque de cuisson, une version d’un porte-pince imprimé en 3D (Dossiers supplémentaires 1–3), une bande de film auto-scellant de 10 cm de large de 25 à 35 cm, une bande de 35 à 45 cm de papier aluminium de 30,4 cm de large, de la glace et des essuie-tout. Placez les matériaux près du cryo-plunger (Figure 3).
- Placez la plaque de cuisson dans le sens de la longueur à côté du ventouse cryogénique. Remplissez la plaque à moitié avec de la glace, puis couvrez-la avec des essuie-tout. Humidifier légèrement les essuie-tout avec de l’eau du robinet.
- Placez la bande de film auto-scellant dans le sens de la longueur sur la moitié opposée du plat de cuisson, directement au-dessus des essuie-tout mouillés.
- Placez le porte-pince imprimé en 3D dans le sens de la longueur au centre de la plaque, directement sur les serviettes en papier mouillées et le film auto-scellant.
- Couvrez la plaque de cuisson avec du papier aluminium (Figure 3).
- Remplacez la glace fondue tout au long de l’expérience.
- Placez les grilles lipidiques fixées dans la chambre d’humidité du dessus de travail au-dessus du film auto-étanché, avec le côté lipidique orienté vers le haut (Figure 3).
REMARQUE : Évitez de déplacer la chambre d’humidité du dessus de travail ou de toucher les grilles lipidiques avec une pointe de pipette, car ces actions pourraient déloger les grilles. Récupérez toutes les grilles qui tombent sur le film auto-scellant si les grilles restent intactes. - Appliquez 2 μL de tampon de dilution d’échantillon sur chaque surface lipidique. Couvrez la chambre avec du papier aluminium pour minimiser l’évaporation.
- Maintenir l’hydratation de chaque grille lipidique en appliquant 2 μL supplémentaires de tampon de dilution chaque fois qu’il reste moins de 1 μL de liquide sur la grille.
- Équilibrez les grilles lipidiques hydratées dans la chambre d’humidité refroidie sur le plan de travail pendant au moins 15 minutes.
13. Incubation de l’échantillon sur les grilles lipidiques (>15 min)
- Assurez-vous que les grilles lipidiques ont été hydratées de façon continue avec un tampon de dilution pendant au moins 15 minutes.
- Assurez-vous que le tampon de dilution d’origine est complètement refroidi.
- Appliquez 3 μL d’échantillon marqué à la polyhistidine sur chaque grille lipidique hydratée. Couvrez la chambre avec du papier aluminium pour minimiser l’évaporation.
- Maintenir l’hydratation de chaque grille lipidique en appliquant 2 μL supplémentaires de tampon de dilution chaque fois qu’il reste moins de 2 μL de liquide sur la grille.
- Incubez les grilles pendant au moins 15 minutes.
14. Préparation du pot cryo-plunger (>15 min)
- Assemblez le pot de ventouse cryogénique, y compris la broche utilisée pour le refroidissement indirect de la coupelle en laiton.
- Étiquetez les boîtes cryo-grille et placez-les dans le pot cryo-plunger.
- Remplissez le pot cryo-plunger avec du LN2. Couvrez la casserole pour minimiser la contamination de la glace.
- Maintenir le niveau LN2 au-dessus des boîtes cryo-grille en ajoutant périodiquement du LN2 supplémentaire.
- Refroidissez les composants métalliques et les boîtes de cryo-grille à la température LN2 pendant au moins 10 minutes.
ATTENTION : Le propane liquide et l’éthane sont des cryogènes hautement inflammables qui causent des blessures similaires à celles du LN2 mais qui manquent d’effet Leidenfrost notable. Par conséquent, le contact peut provoquer des blessures immédiates et persistantes. Évitez les éclaboussures lors de la manipulation. Si le propane-éthane contamine le LN2, manipulez le LN2 contaminé avec les mêmes précautions élevées que le propane liquide et l’éthane. Après utilisation, placez le pot cryo-piston dans une hotte chimique pour permettre aux cryogènes de s’évaporer en toute sécurité. - Remplissez la coupe en laiton avec un mélange liquide propane-éthane 60:40.
- Équilibrez le mélange propane-éthane à la température LN2 pendant au moins 5 minutes.
15. Gel plongeant des grilles lipidiques (~1 h)
- Assurez-vous que le papier à secs est resté équilibré à 4 °C et 100 % d’humidité pendant au moins 1 heure.
- Assurez-vous que les grilles lipidiques ont incubé avec un échantillon marqué au polyhistidine pendant au moins 15 minutes.
- Confirmez que la température propane-éthane est inférieure à −190 °C, puis retirez la broche.
- Distribuez trois gouttes de 50 μL de tampon de dilution en ligne sur un film auto-scellant fixé de10 cm (Figure 3).
- Lavez une grille lipidique serrée en touchant séquentiellement la surface lipidique à chaque goutte tampon de dilution et en relâchant la grille sur la goutte finale.
- Utilisez la pince cryo-plonger pour capter la grille lipidique flottante. Montez la grille dans le cryo-plunger.
- Absorbez les gouttes tampons utilisées avec un mouchoir sans peluches et jetez-les.
- Appliquez les réglages suivants du cryo-plunger sur la grille lipidique avant de plonger par congélation dans le mélange propane-éthane : temps d’attente, 0 s ; tache totale, 1 ; force de blot, −10 ; temps de tache, 4 s ; et le temps de vidange, 0 s.
- Transférez la cryo-grille de la coupe propane-éthane dans une fente disponible dans une boîte cryo-grille.
- Répétez la procédure de plonge-freezing pour toutes les grilles lipidiques.
Résultats
Pour illustrer les résultats attendus de ce protocole, une série d’expériences a été réalisée. Les grilles TEM R1.2/1.3 à holey-carbone avec ou sans 20 % de monocouches lipidiques Ni-NTA ont été congelées en plongée avec un échantillon et imagées à l’aide d’un cryo-TEM de 200 keV. Pour chaque condition, 3 à 9 cases de grille étaient imaginées. L’épaisseur de la glace variait selon les grilles individuelles et les carrés de la grille, avec des régions optimales contenant de fines glaces vitrées et des particules bien intégrées, comme le confirment les anneaux de Thon caractéristiques dans la transformée rapide de Fourier (FFT)31.
Dans la première expérience, Staphylococcus aureus glutamate synthase (saGS) marquée par la polyhistidine purifiée a été utilisée pour démontrer la préparation optimale et la performance attendue des grilles d’affinité lipidique Ni-NTA à 20 % (Figure 6). Les monocouches lipidiques ont été transférées sur des grilles TEM en maille dorée. Les grilles lipidiques ont été séchées et stockées dans un dessicateur pendant une semaine avant la réhydratation. Après une réhydratation complète, le saGS à 0,1 mg/mL a été incubé sur les grilles pendant 15 à 30 minutes pour permettre la liaison des particules. Les particules saGS, avec un nombre moyen de 274 particules par micrographie (N = 7), apparaissaient réparties uniformément sur la monocouche lipidique avec peu ou pas de chevauchement.
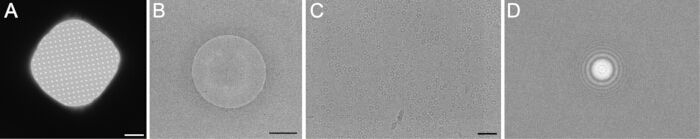
Figure 6 : Images cryo-TEM représentatives d’une grille d’affinité lipidique Ni-NTA à 20 %. La monocouche lipidique a été séchée pendant une semaine puis réhydratée avec un tampon pauvre en sel comme décrit dans le protocole. Des images représentatives ont été collectées à des grossissements faibles (A), intermédiaires (B) et élevés (C), avec la FFT correspondante affichée en (D). Les particules, avec en moyenne 274 particules par micrographie (N = 7), sont réparties uniformément sur la surface de la grille à l’intérieur d’une fine couche de glace vitrée. Barres d’échelle : 10 μm, 500 nm et 50 nm. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Dans la deuxième expérience, des échantillons de SaGS présentant un empilement de particules ont été utilisés pour démontrer les effets des grilles lipidiques sur l’agrégation des protéines (Figure 7). Quatre conditions de cryo-grille ont été examinées : saGS à 1,0 mg/mL sur des grilles en maille cuivrée sans lipides, SAGS à 0,1 mg/mL sur des grilles en maille de cuivre sans lipides, saGS à 0,1 mg/mL sur des grilles en maille dorée avec des lipides jamais séchés, et SAGS à 0,1 mg/mL sur des grilles en maille dorée avec des lipides séchés pendant une semaine avant réhydratation. Les grilles lipidiques présentaient une densité de particules plus élevée, avec des moyennes de 40 ou 46 particules par micrographie (N = 12), par rapport aux grilles non lipidiques préparées à la même concentration de protéines, qui donnaient en moyenne 2 particules par micrographie (N = 12). Ces résultats ont démontré un effet de concentration clair par rapport aux grilles TEM non modifiées, confirmant que la monocouche lipidique Ni-NTA à 20 % est restée intacte. Bien que l’empilement de particules ait encore été observé, les particules sur les grilles lipidiques présentaient un chevauchement minimal et restaient dans un plan focal similaire. En revanche, les particules sur des grilles non lipidiques apparaissaient à des profondeurs focales sensiblement différentes, avec des particules agrégées observées à une concentration plus élevée de 1 mg/mL.
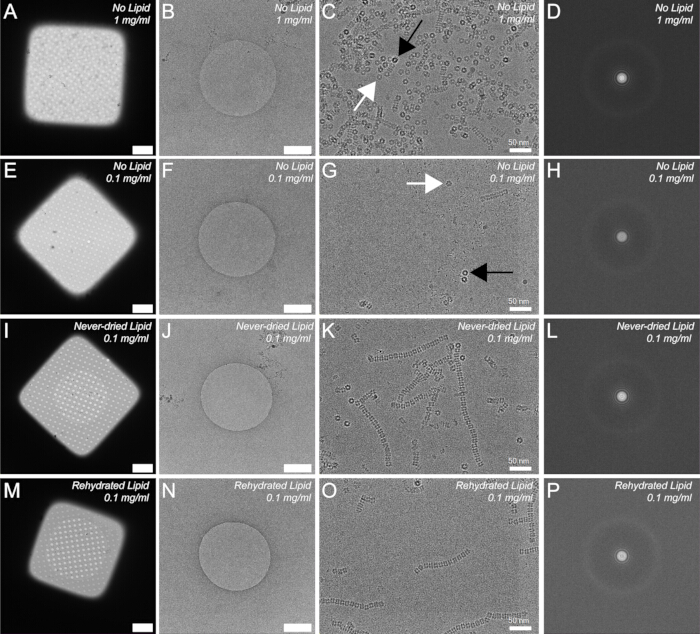
Figure 7 : Images cryo-TEM de saGS empilés marqués par polyhistidine sur des grilles lipidiques et non lipidiques Ni-NTA à 20 %. (A–D) Grille non lipidique préparée avec SAGS à 1,0 mg/mL, montrée à faible (A), intermédiaire (B) et haute (C) grossissante, avec la FFT (D) correspondante. (E–H) Grille non lipidique préparée avec du saGS à 0,1 mg/mL. (I–L) Grille lipidique jamais séchée préparée avec du saGS à 0,1 mg/mL.
(M–P) Grille lipidique réhydratée préparée avec du saGS à 0,1 mg/mL. La densité des particules sur les grilles non lipidiques était inférieure à celle observée sur les grilles d’affinité lipidique correspondantes, soit en moyenne 2 particules par micrographie contre 46 et 47 particules par micrographe respectivement (N = 12). Les flèches noires indiquent des particules fortement défocalisées. Les flèches blanches indiquent les particules proches du focus. Barres d’échelle : 10 μm, 500 nm et 50 nm. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Lors de la troisième expérience, des grilles lipidiques ont été exposées à la N-dodécyl-β-D-maltoside (DDM). Un saGS purifié à 0,1 mg/mL a été utilisé comme échantillon. Le détergent a perturbé la monocouche lipidique. Les cryo-grilles lipidiques contenant 0,05 % de DDM dans le tampon (Figure 8) présentaient des espaces dans la monocouche lipidique, des micelles lipidiques à la surface de la grille, et une densité de particules réduite par rapport à la condition de contrôle.
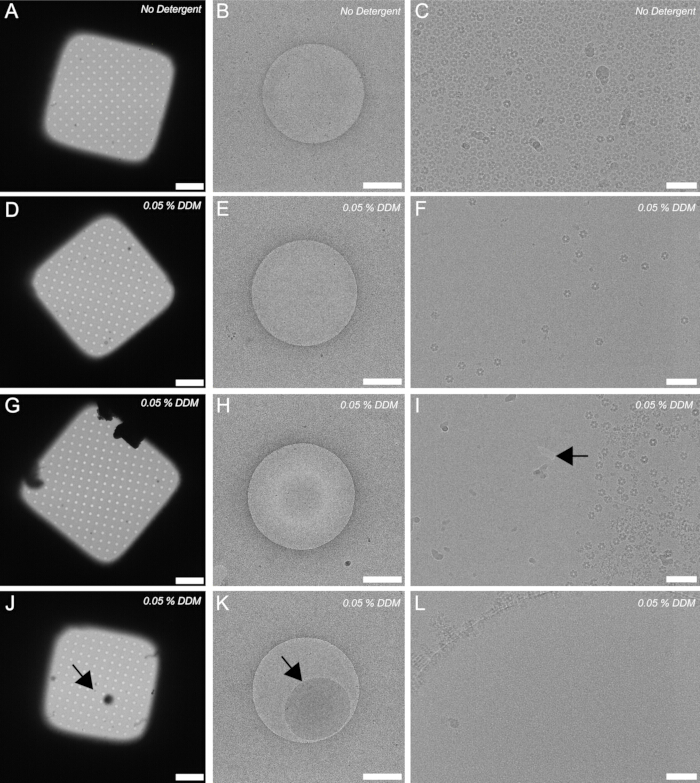
Figure 8 : Images représentatives de grilles lipidiques Ni-NTA à 20 % exposées à 0,05 % de N-dodécyl-β-D-maltoside (DDM). Les cryo-grilles étaient photographiées à faible grossissement, moyen et élevé. (A–C) Images d’une grille d’affinité lipidique Ni-NTA à 20 % réhydratée avec un tampon de dilution d’échantillon. (D–L) Images d’une grille d’affinité lipidique Ni-NTA à 20 % réhydratée avec un tampon de dilution d’échantillon contenant 0,05 % de DDM. La densité de particules du saGS était plus faible sur les grilles TEM traitées au détergent. La flèche dans le panneau I indique un trou dans la monocouche lipidique. Les flèches dans les panneaux J et K indiquent la même micelle lipidique. Barres d’échelle : 10 μm, 500 nm et 50 nm. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
L’épaisseur de la glace variait à la fois entre les grilles et à l’intérieur des carrés individuels. Dans certains cas, la glace était trop fine ou absente de certaines parties du carré de la grille (Figure 9A), répartie de manière inégale (Figure 9B) ou excessivement épaisse pour l’imagerie (Figure 9C). Dans certaines régions, l’épaisseur de la glace était inférieure au diamètre du complexe protéique. Les zones sèches ou régions contenant de la glace très fine, définies comme plus fines que le diamètre de la particule, doivent être évitées lors de la collecte de données car les protéines de ces régions sont probablement dénaturées. D’après l’expérience de ce protocole, environ 25 % à 50 % des cryo-grilles devraient contenir une glace suffisamment fine adaptée à la collecte de données SPA sur plusieurs carrés de grille. L’épaisseur de la glace peut être optimisée en ajustant le temps de blotting ou en modifiant le volume tampon final sur la grille avant la plongeance par congélation.
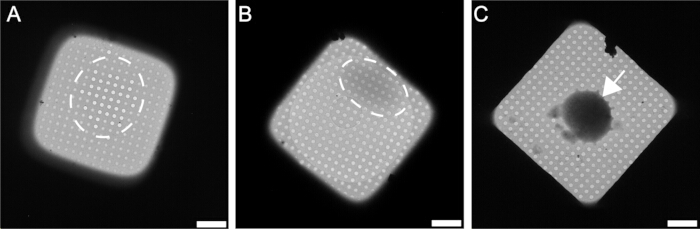
Figure 9 : Exemples de grilles d’affinité Ni-NTA sous-optimales. Micrographies cryo-TEM représentatives de cryo-grilles sous-optimales à 20 % d’affinité Ni-NTA. (A) Film lipidique absent du centre du carré de la grille, indiqué par le cercle blanc pointillé entourant les trous vides. (B) Carré de grille contenant de la glace inégale, avec une glace plus épaisse près de la région indiquée par le cercle blanc pointillé. (C) Carré de grille contenant de la glace trop épaisse pour l’imagerie, indiqué par la flèche. Barres d’échelle : 10 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Lorsqu’elles sont correctement préparées, les grilles d’affinité contiennent une monocouche lipidique avec une couche principalement unique de particules adsorbées sur le film. La densité des particules devrait dépasser celle observée sur les grilles non lipidiques préparées à partir de concentrations d’échantillons similaires. L’échec de transférer la monocouche lipidique sur une grille TEM donne des cryo-grilles contenant soit des trous vides (Figure 10A), soit des trous contenant de la glace vitrée dépourvue de film lipidique et présentant peu ou pas de particules (Figure 10B, C).
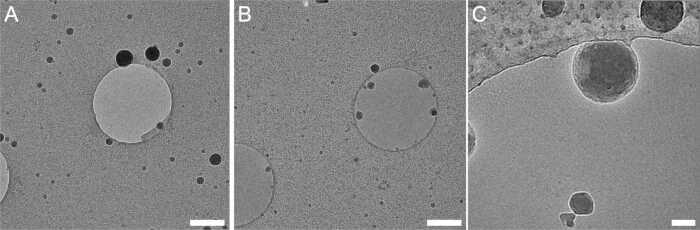
Figure 10 : Exemple d’une grille TEM sans monocouche lipidique. Images cryo-TEM montrant un transfert raté de la monocouche lipidique sur la surface de la grille TEM. Les nucléosomes humains marqués par la polyhistidine sont adsorbés sur le film de carbone. (A) Région de la grille contenant des trous vides. (B) Différentes régions d’une même grille contenant des trous remplis de glace vitrée mais dépourvus de particules visibles ou de film lipidique. (C) Image à fort grossissement d’un trou dépourvu de film lipidique mais contenant de la glace vitrée ; des particules sont visibles sur le film épais de support en carbone. Barres d’échelle : 1 μm et 50 nm. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Fichier supplémentaire 1 : Instructions pour l’impression 3D du porte-pince. Ce fichier complémentaire contient des instructions détaillées pour l’impression 3D de supports de pince personnalisés utilisés lors de l’hydratation de la grille lipidique et de l’incubation des échantillons. Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 2 : fichier STL pour l’impression 3D d’un porte-pince de table. Ce fichier complémentaire contient le fichier stéréolithographie (STL) nécessaire à l’impression 3D de la version porte-pince utilisée pour incuber des grilles lipidiques hydratées dans une chambre d’humidité sur le dessus du laboratoire (Figure 3C, 3D). Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 3 : Fichier STL pour l’impression 3D du porte-pince à pincette cryo-plunger. Ce fichier complémentaire contient le fichier stéréolithographie (STL) nécessaire à l’impression 3D de la version porte-pince utilisée pour incuber des grilles lipidiques hydratées dans une chambre d’humidité cryo-plunger. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Cette étude présente un protocole détaillé, étape par étape, pour la préparation des grilles d’affinité lipidique monocouche Ni-NTA et met en lumière des considérations pratiques importantes ainsi que des avantages de cette approche pour la détermination systématique de la structure cryo-EM des complexes protéiques solubles marqués par polyhistidine. Plusieurs étapes du protocole sont techniquement complexes et sujettes à l’erreur de l’utilisateur, en particulier pour les utilisateurs débutants.
La modification de la monocouche lipidique peut être achevée en environ 2 heures, et les grilles lipidiques résultantes peuvent être séchées et stockées pour une utilisation ultérieure. Avec 2 heures supplémentaires et accès à un cryo-plunger, des cryo-grilles peuvent ensuite être préparées. En conséquence, cette méthode convient parfaitement aux installations multi-utilisateurs et aux laboratoires de cryo-EM. Grâce à cette approche, des structures de complexes protéiques solubles allant de 97 à 470 kDa ont été déterminées à une résolution inférieure à3 Å 17. Une liaison efficace à la monocouche lipidique Ni-NTA nécessite un composant marqué par polyhistidine contenant un lieur flexible. Bien qu’un certain degré d’orientation préférée par rapport à la monocouche ait été observé pour certains échantillons, y compris les nucléosomes et la glutamate synthase, ces orientations n’ont pas limité la résolution ni introduit d’artefacts d’étirement dans les reconstructions finales. L’interaction entre la monocouche lipidique Ni-NTA et les protéines marquées par la polyhistidine favorise une capture efficace des particules à la surface de la grille TEM. Par conséquent, l’analyse structurelle peut être réalisée à l’aide d’échantillons relativement dilués et de pipelines de traitement cryo-EM standard, tels que RELION et cryoSPARC, sans étapes supplémentaires de préparation de l’échantillon.
Une manipulation soigneuse des grilles TEM et la préparation des mélanges lipidiques sont essentielles pour obtenir des résultats reproductibles. Les monocouches lipidiques sont très sensibles aux contaminants, notamment les détergents résiduels, les huiles et la poussière. Un nettoyage approfondi de toute la verrerie est donc crucial. Un lavage avec un tensioactif anionique, suivi d’un rinçage approfondi à l’eau ultrapure et d’un séchage approfondi à l’air libre est fortement recommandé avant un rinçage au chloroforme et à l’éthanol immédiatement avant l’utilisation.
Le protocole utilise des grilles TEM gold-mesh car elles sont non réactives sur une large gamme de conditions d’échantillonnage et de tampon. Pour accueillir différents échantillons, les tampons utilisés lors du moulage lipidique, de la réhydratation par grille lipidique, de l’incubation des échantillons et du lavage avant la congélation en plongée peuvent être modifiés selon les besoins. Les tampons d’échantillons contenant du glycérol ou d’autres additifs peuvent être retirés lors de l’étape de lavage avant vitrification. Les tampons contenant du dithiothréitol (DTT) doivent être évités car la DTT réduit le nickel32 et interfère avec la liaison entre les protéines marquées par la polyhistidine et la monocouche lipidique Ni-NTA. Les détergents ne sont pas recommandés car le 0,05 % de N-dodécyl-β-D-maltoside (DDM) perturbait la monocouche lipidique, et d’autres détergents couramment utilisés pour les études structurales des protéines membranaires devraient produire des effets similaires (Figure 8D–L). Il reste à déterminer si des concentrations plus faibles de détergent ou des détergents à faible concentration de micelle critique perturbent également l’intégrité des monocouches.
La partie la plus exigeante techniquement du protocole est le casting et le transfert de la monocouche lipidique sur la grille TEM. Cette étape est très sensible à la température, aux vibrations et à la technique de manipulation. Les résultats optimaux ont été obtenus en moulant des films lipidiques à température ambiante (~22 °C) à l’aide d’un tampon prérefroidi. Les perturbations mécaniques doivent être minimisées car les vibrations peuvent déstabiliser la monocouche. En conséquence, la boîte de Petri doit rester immobile après la mise en chute lipidique. Lors du transfert, la monocouche d’huile de ricin et de lipides peut migrer progressivement à travers la surface tampon, augmentant la probabilité de transfert d’huile de ricin au lieu de la monocouche lipidique (Figure 5C). Un remplissage correct de la boîte de Petri et un contrôle attentif de l’orientation de la grille sont nécessaires pour assurer un transfert monocouche complet et uniforme. L’absence de transfert du film lipidique sur la surface de la grille TEM produit une surface hydrophobe, provoquant la formation de gouttes du tampon sur la surface du carbone.
Dans cette étude, seul un cryo-plunger utilisant un buvard bilatéral a été évalué. Cependant, d’autres méthodes de blotting, y compris manuelles ou à un seul côté, devraient produire des résultats comparables à condition que le film lipidique reste intact. Lors de l’adaptation de ce protocole, les grilles lipidiques doivent être traitées de manière similaire aux grilles TEM standard, avec plusieurs considérations importantes. Le nettoyage plasma doit être évité, et les grilles lipidiques doivent rester continuellement hydratées pendant au moins 15 minutes avant l’application de l’échantillon. Les échantillons doivent être incubés sur la grille lipidique pendant au moins 15 minutes pour permettre l’adsorption de surface, et la grille doit être contactée avec au moins une goutte de tampon de dilution avant de bavard pour normaliser le volume tampon final sur la surface de la grille. Maintenir l’hydratation de la monocouche lipidique Ni-NTA tout au long de l’incubation de l’échantillon est crucial, car l’évaporation peut augmenter les concentrations locales de sel et potentiellement modifier la structure des protéines ou l’assemblage complexe. Des temps d’incubation plus longs (>30 min) peuvent augmenter la densité des particules sur la grille, bien qu’une incubation prolongée doive être équilibrée avec une dégradation potentielle de l’échantillon. Le mélange 60:40 liquide propane-éthane décrit dans ce protocole est recommandé mais pas strictement obligatoire. Des rapports alternatifs propane-éthane ou de l’éthane pur peuvent également être utilisés en conjonction avec un déboucheur cryogénique équipé d’un système de chauffage à coupe d’éthane pour maintenir le cryogène à l’état liquide tout au long de l’expérience. Enfin, la distribution des particules est influencée par l’épaisseur de la glace. Dans certains cas, les particules peuvent être exclues des régions contenant une glace particulièrement fine, en particulier près du centre des carrés de la grille. Les conditions de blotting peuvent donc devoir être optimisées pour chaque dispositif de vitrification. Dans l’ensemble, les grilles d’affinité monocouches lipidiques Ni-NTA offrent une stratégie robuste et accessible pour la détermination structurale des complexes protéiques solubles marqués par des polyhistidine. Avec une mise en œuvre soigneuse de la procédure étape par étape décrite ici, cette méthode peut être facilement intégrée dans les flux de travail cryo-EM standards.
Remerciements
Les auteurs remercient Caleb Fisher, Rob McGinty, Nicholas Wright, Blake Fordyce et Bryan Roth de l’Université de Caroline du Nord à Chapel Hill pour avoir fourni des tampons utilisés dans ces expériences. L’installation centrale de cryoEM de l’UNC-Chapel Hill et le comité de défense des installations centrales de l’UNC sont reconnus pour leur soutien technique et financier. L’installation de cryomicroscopie biomoléculaire électronique du département de chimie et biochimie de l’Université de Californie à Santa Cruz (RRID : SCR_021755) est reconnue pour son assistance technique. Ce travail a été soutenu par le National Cancer Institute of the National Institutes of Health sous le numéro de subvention P30CA016086 et par une subvention des National Institutes of Health R35GM150960 attribuée à Richard W. Baker.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | Flacon volumétrique VWR, verre transparent, Classe A, sérialisé, avec bouchon en verre à tête plate, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | Seringue de 2,5 microlitres, aiguille amovible (RN), pas d'aiguille incluse |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Flacon fileté en verre transparent Fisherbrand Classe B avec fermeture intégrée, 3,7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Boîte à grilles cryogénique ronde avec couvercle |
| 11.4 L plastic tub | Sterilite 12 qt bac à vaisselle, bac de lavage en plastique polyvalent | ||
| 25 µL glass syringe | Hamilton | 80430 | Seringue de 25 microlitres, aiguille amovible (RN), inclut une aiguille biseautée de 52 mm, calibre 22s |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | Flacon volumétrique VWR, verre transparent, Classe A, sérialisé, avec bouchon en verre à tête plate, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Éthanol, 99,5%, réactif ACS, absolu, 200 preuves |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroforme, ACS, 99,8+% |
| Aluminum foil | Walmart | Papier aluminium, largeur 30,4 cm | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Alconox, détergent en poudre anionique pour microscopie électronique, 4 lb |
| Baking dish | Walmart | Plat de cuisson en verre profond Pyrex 232-D 3-quart | |
| Blot paper | Ted Pella | 47000-100 | Papier filtre standard Vitrobot, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Huile de ricin biologique avec compte-gouttes, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), poudre de 1,2-dioléoyl-sn-glycéro-3-phosphocholine, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | Pince DUMONT Biology Grade, style 5, acier inoxydable poli |
| Glass culture tube | Fisher Scientific | 14958A | Tube en verre flint jetable Fisherbrand avec extrémité unie, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Pipette Pasteur en verre borosilicaté jetable Fisherbrand, 14,6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mailles |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Papier filtre qualitatif Whatman, Grade 1, diamètre 150 mm |
| Large petri dish with cover | Fisher Scientific | 08747E | Plat de Pétri réutilisable Corning PYREX avec couvercle, diamètre 150 mm, hauteur 15 mm |
| Low-lint tissues | Fisher Scientific | 06-666 | Serviettes délicates Kimtech Science Kimwipes, 1 pli |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioléoyl-sn-glycéro-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (sel de nickel) |
| Pipet bulb | Fisher Scientific | S32325 | Bulbule en caoutchouc Fisherbrand, naturel, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Alcool réactif ≥89% (GC), contient 5% d'alcool isopropylique et 5% d'alcool méthylique |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | Pince anti-capillaires DUMONT, Grade Biology, style 5ACN, acier inoxydable |
| Self-sealing film | Fisher Scientific | S47529 | Film d'emballage Parafilm M, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Plat de Pétri réutilisable Corning PYREX avec couvercle, diamètre 60 mm, hauteur 15 mm |
| Syringe needle | Hamilton | 7803-01 | Aiguille amovible (RN) de 27 calibre à petit embout, biseautée, longueur 75 mm, angle de 45° |
Références
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible