L'immunotransfert avec LC3 est une méthode largement utilisée pour surveiller l'autophagie, mais nécessite une optimisation minutieuse. Ce protocole décrit une approche fiable pour la détection et la quantification de LC3-II dans des cellules cancéreuses pancréatiques dérivées de KPC, incluant des considérations techniques essentielles et un flux de travail standardisé pour l'analyse densitométrique à l'aide de Fiji.
Article de méthode
Analyse par Western Blot de la protéine associée aux microtubules et à la chaîne légère 3 pour surveiller la dynamique autophagosomale dans des cellules de cancer du pancréas dérivées de souris
Dans cet article
Résumé
Résumé
L'autophagie joue un rôle complexe dans l'adénocarcinome canalaire pancréatique (PDAC), contribuant à la progression tumorale, à l'adaptation au stress et à la résistance aux traitements. Une évaluation précise de la dynamique des autophagosomes est donc essentielle pour les études en biologie du cancer. Parmi les méthodes disponibles, le dosage immunologique de la protéine légère de la microtubule (LC3) est largement utilisé pour surveiller la dynamique des autophagosomes, en distinguant les formes cytosoliques (LC3-I) et lipidées, associées aux autophagosomes (LC3-II). Toutefois, la faible masse moléculaire de LC3 et la différence minime de mobilité électrophorétique entre ces isoformes posent des défis techniques nécessitant une optimisation rigoureuse. Nous présentons ici un protocole reproductible d'analyse semi-quantitative des niveaux de LC3-II par immunotransfert (Western blot) dans des cellules cancéreuses pancréatiques murines dérivées de KPC. La méthode intègre des conditions optimisées de lyse cellulaire, d'électrophorèse, de transfert protéique et de détection par anticorps afin d'assurer une séparation et une détection fiables des isoformes de LC3. En outre, un flux de travail standardisé pour l'analyse densitométrique des bandes LC3-II à l'aide de Fiji (ImageJ) est fourni. La sensibilité de la méthode est démontrée par la détection de niveaux accrus de LC3-II dans des conditions d'induction de l'autophagie (traitement au gemcitabine) et de flux autophagique altéré (inhibition de VMP1). Les paramètres techniques critiques influant sur l'interprétation des données, notamment la composition du tampon de lyse et la spécificité des anticorps, sont également examinés, ainsi que les pièges expérimentaux courants. Bien que le dosage immunologique de LC3 ne suffise pas à définir complètement le flux autophagique, combiné à des essais complémentaires, il constitue une approche robuste et accessible pour surveiller l'activité autophagique. Ce protocole peut être adapté à d'autres contextes expérimentaux, facilitant ainsi les études mécanistiques de l'autophagie dans les modèles de cancer.
Introduction
La macroautophagie (désormais appelée autophagie) est une voie dégradative régulée par laquelle les cellules dégradent des éléments cytoplasmiques, notamment des protéines et des organites dysfonctionnels. Un critère caractéristique de l'autophagie est la formation d'une structure à double membrane appelée autophagosome, qui isole le matériel cellulaire puis le transporte vers les lysosomes pour sa dégradation1,2,3. Dans les cellules normales, l'autophagie participe au renouvellement contrôlé des protéines et des organites, limitant ainsi le stress oxydatif et réduisant le risque de développement tumoral. Dans les cellules cancéreuses, toutefois, ce processus peut être détourné afin de favoriser la survie en cas de forte demande métabolique, de privation nutritionnelle ou d'hypoxie. En facilitant l'adaptation à un microenvironnement hostile, l'autophagie contribue également à la résistance aux chimiothérapies, en partie en atténuant les dommages cellulaires induits par le traitement4,5.
Le cancer du pancréas est la troisième cause de mortalité liée au cancer aux États-Unis. Environ 90 % des cancers du pancréas sont classés comme adénocarcinomes canalaire du pancréas (PDAC). Contrairement à plusieurs autres tumeurs malignes, pour lesquelles un dépistage précoce et des progrès thérapeutiques ont amélioré la survie des patients, le PDAC est diagnostiqué à un stade avancé dans plus de 80 % des cas. Cette présentation à un stade tardif, combinée à une biologie tumorale agressive et à une résistance marquée aux traitements, se traduit par un taux de survie globale à cinq ans d'environ 11 %6.
Le modèle murin KPC, basé sur l'activation spécifique du pancréas du gène Kras oncogénique et la délétion conditionnelle de Trp53 induite par la recombinase Cre, est l'un des modèles génétiquement modifiés les plus utilisés pour le carcinome adénocarcinaire ductal du pancréas. Ces souris développent spontanément des tumeurs qui ressemblent étroitement à la maladie humaine, évoluant de néoplasies intraépithéliales pancréatiques (PanIN) vers un carcinome invasif. Ce modèle reproduit notamment des caractéristiques clés du cancer du pancréas, notamment un stroma désmoplastique dense et un microenvironnement tumoral immunosuppresseur. Les cellules tumorales isolées de souris KPC (cellules dérivées de KPC) constituent un système in vitro complémentaire qui conserve de nombreuses caractéristiques génétiques et phénotypiques des tumeurs d'origine, permettant des études mécanistiques et une évaluation contrôlée des réponses thérapeutiques7,8.
VMP1 est une protéine essentielle liée à l'autophagie qui initie l'autophagie par son interaction avec la Béciline-1 et le recrutement du complexe PI3KC39,10. Au-delà de l'initiation, VMP1 participe à plusieurs étapes de l'autophagie, notamment la formation de l'autophagosome10, la fermeture11 et des processus sélectifs tels que la mitophagie12 et la zymophagie13. VMP1 reste impliqué tout au long du flux autophagique et pourrait exercer des fonctions supplémentaires en tant que scramblase de phospholipides14. Dans le pancréas, l'expression de VMP1 est généralement faible, mais elle est fortement induite en cas de stress, notamment lors de pancréatite ou de transformation oncogénique, où elle favorise l'autophagie en aval de la signalisation du KRAS muté15,16. VMP1 est surexprimé dans le cancer du pancréas17, et des modèles murins expérimentaux ont montré que l'autophagie dépendante de VMP1 coopère avec KRAS pour favoriser l'initiation tumorale et la formation des lésions intraépithéliales pancréatiques (PanIN)18. De plus, VMP1 contribue à la résistance aux chimiothérapies, car sa surexpression induite par des agents tels que la gemcitabine19 stimule l'autophagie19 et soutient la survie des cellules tumorales17, soulignant ainsi son rôle pro-tumorigène15.
Les autophagosomes se caractérisent par la présence de la protéine liée à l'autophagie, la chaîne légère 3 du microtubule-associated protein (LC3)20. Dans des conditions basales, la LC3 est principalement présente sous une forme soluble (LC3-I) répartie dans tout le cytoplasme et le noyau. Lors de l'activation de l'autophagie, la LC3 subit une lipidation par conjugaison à la phosphatidyléthanolamine, produisant ainsi la forme associée aux membranes LC3-II1,21. Bien que la LC3-II ait une masse moléculaire plus élevée que la LC3-I en raison de cette modification, elle migre plus rapidement lors de l'électrophorèse SDS-PAGE, probablement en raison de son hydrophobicité accrue. Par conséquent, la conversion de la LC3-I en LC3-II reflète une lipidation plutôt qu'un traitement protéolytique, la LC3-I étant généralement détectée à environ 16 kDa et la LC3-II à environ 14 kDa. Étant donné que les niveaux de LC3-II sont corrélés à l'abondance des autophagosomes, l'immunotransfert de LC3 est largement utilisé pour surveiller l'activité autophagique22. Une évaluation précise de la dynamique de la LC3 est donc essentielle pour interpréter les résultats expérimentaux liés à l'autophagie.
Cette étude décrit la standardisation et l'optimisation technique d'un protocole classique d'immunotransfert de LC3 dans une lignée cellulaire de cancer du pancréas dérivée de KPC. L'optimisation est particulièrement importante car LC3 est une protéine de faible masse moléculaire, les formes LC3-I et LC3-II diffèrent par seulement environ 2 kDa en mobilité électrophorétique, et LC3-II est une espèce lipidée21,22. Par conséquent, de légères variations procédurales peuvent compromettre la détection de LC3 et conduire à des résultats sous-optimaux. De plus, l'origine des échantillons constitue un paramètre important pour obtenir une immunoréactivité optimale. Le protocole optimisé est suffisamment sensible pour détecter une augmentation des niveaux de LC3-II après traitement avec l'agent chimiothérapeutique gemcitabine et après l'extinction de VMP1, des conditions connues pour stimuler l'autophagie et perturber respectivement le flux autophagique. Enfin, deux écueils techniques potentiels sont mis en évidence afin d'illustrer leur impact sur la qualité des données et l'interprétation des résultats. Un aperçu de ce protocole expérimental est présenté dans Figure 1.
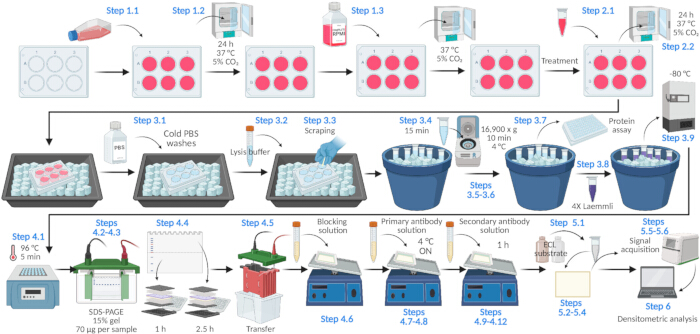
Figure 1 : Représentation schématique du protocole de transfert Western pour LC3 dans des cellules dérivées de KPC. Aperçu schématique du protocole utilisé pour détecter et quantifier les niveaux de LC3-II par immunotransfert. Des cellules de cancer du pancréas dérivées de KPC sont cultivées et soumises à des traitements expérimentaux, puis lysées ; la quantification des protéines est suivie d'une électrophorèse sur gel de polyacrylamide en présence de dodécylsulfate de sodium (SDS-PAGE), d'un transfert sur membrane, d'une détection anticorps dirigé contre LC3, d'une acquisition du signal chimiluminescent et d'une analyse densitométrique des bandes LC3-II normalisées à une protéine de chargement. Ce flux opératoire met en évidence les principales étapes procédurales et les phases critiques nécessaires à une évaluation fiable de la dynamique de LC3. Créé avec BioRender.com. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Protocole
Toutes les procédures impliquant des animaux ont été réalisées conformément aux directives institutionnelles et approuvées par le comité institutionnel de soins aux animaux et d'utilisation (IACUC) du Massachusetts General Hospital selon le protocole n°2019N000111. La lignée cellulaire de cancer du pancréas dérivée de KPC utilisée dans cette étude a été précédemment établie dans le laboratoire Mostoslavsky selon ce protocole approuvé. La liste des réactifs, produits chimiques et informations sur l'équipement est fournie dans le Tableau des matériaux.
1. Préparation des cellules
- Ensemencez des cellules tumorales pancréatiques dérivées de souris KrasG12D; Trp53f/+; p48-Cre (désormais appelées KPC) dans une plaque de 6 puits en milieu Roswell Park Memorial Institute (RPMI 1640) contenant 10 % de sérum de veau fœtal, 100 U/mL de pénicilline et 100 µg/mL de streptomycine. Ajustez la densité d'ensemencement afin d'obtenir une confluence de 70 % à 90 % le jour du lyse.
REMARQUE : Une densité d'ensemencement de 3,5 × 10⁵ cellules par puits a conduit à une confluence d'environ 80 % après 72 h. Étant donné que la croissance peut varier selon les laboratoires et les modèles KPC, déterminez empiriquement la densité d'ensemencement optimale avant de réaliser l'expérience.
REMARQUE : Pour générer des lignées cellulaires stables avec une diminution de VMP1, produisez des particules lentivirales en co-transfectant des cellules HEK293T avec des plasmides d'emballage et le vecteur lentiviral correspondant à l'aide de polyéthylénimine (PEI). Récupérez les surnageants lentiviraux 72 h après la transfection, centrifugez-les à 300 × g pendant 10 min à 4 °C pour éliminer les débris cellulaires, puis filtrez-les à travers un filtre à seringue de 0,45 µm. Soumettez les cellules KPC à un seul cycle de transduction avec les surnageants viraux récupérés. Sélectionnez les cellules transduites de manière stable par un traitement avec 2,5 µg/mL de puromycine (dilution 1:4 000 à partir d'une solution mère de 10 mg/mL) pendant 72 h. - Incubez les cellules à 37 °C dans un incubateur humidifié contenant 5 % de dioxyde de carbone (CO₂).
- Remplacez le milieu par du milieu frais et poursuivez l'incubation dans les mêmes conditions.
2. Traitement par la gemcitabine à 20 µM
- Préparer une solution de gemcitabine à 10 mM dans du milieu RPMI un jour avant la lyse. Traiter chaque puits avec 4 µL de la solution à 10 mM afin d'obtenir une concentration finale de 20 µM.
- Incuber les cellules pendant 24 h à 37 °C dans un incubateur humide contenant 5 % de dioxyde de carbone (CO₂).
3. Extraits cellulaires
- Placer la plaque sur de la glace et laver trois fois avec du tampon phosphate salin (PBS ; 137 mM NaCl, 2,7 mM KCl, 8 mM Na₂HPO₄ et 2 mM KH₂PO₄) froid.
- Ajouter 80 µL de tampon de lyse (50 mM Tris-HCl, pH 8,0, 150 mM NaCl, 1 % de Triton X-100 et 0,1 % de SDS) supplémenté avec des inhibiteurs de protéases.
REMARQUE : Si des niveaux de confluence différents sont observés entre les puits, ajuster le volume de tampon de lyse afin d'obtenir des concentrations en protéines comparables. À titre indicatif, utiliser environ 10 µL de tampon de lyse par 10 % de confluence (par exemple, 70 µL pour une confluence de 70 % et 90 µL pour une confluence de 90 %). - À l’aide de l’extrémité large (proximale) d’une pipette P200, racler soigneusement toute la surface de chaque puit afin de détacher et de recueillir les cellules dans le tampon de lyse.
- Recueillir le lysat dans un tube de microcentrifugeuse et le maintenir sur glace pendant 15 min.
- Centrifuger les échantillons à 16 900 × g à 4 °C pendant 10 min.
- Transférer le surnageant dans un tube de microcentrifugeuse propre.
- Prélever un aliquot pour la quantification des protéines et le maintenir sur glace jusqu’à l’analyse.
REMARQUE : Pour la quantification des protéines, diluer 2,5 µL de lysat dans 7,5 µL de tampon de lyse et mélanger avec 200 µL de réactif acide bichinconinique. D'autres méthodes de quantification des protéines peuvent également être utilisées. - Ajouter du tampon d’échantillonnage 4× de Laemmli (250 mM Tris-HCl, pH 6,8, 8 % de SDS, 40 % de glycérol, 0,04 % de bleu de bromophénol et 20 % de β-mercaptoéthanol) aux lysats et bien mélanger. Pour 77,5 µL de lysat, ajouter 25,8 µL de tampon d’échantillonnage de Laemmli.
- Conserver les échantillons à −80 °C.
REMARQUE : Le protocole peut être interrompu à cette étape. Les échantillons peuvent être conservés à −80 °C pendant jusqu’à deux semaines avant la SDS–PAGE.
4. Électrophorèse SDS-PAGE et immunotransfert
- Chauffer les échantillons à 96 °C pendant 5 min.
- Déposer 70 µg de chaque échantillon sur un gel de SDS–PAGE à 15 % (épaisseur de 1,5 mm) et faire migrer à 90 V jusqu'à ce que le front de colorant pénètre dans le gel de séparation. Utiliser un gel de séparation en polyacrylamide 15 % préparé soi-même, contenant 15 % d'acrylamide/bis-acrylamide, 375 mM de Tris-HCl (pH 8,8) et 0,1 % de SDS.
- Augmenter la tension à 120 V et poursuivre l'électrophorèse jusqu'à ce que le front de colorant atteigne le bas du gel ou en sorte. Arrêter la migration avant que le marqueur de 10 kDa de l'échelle de poids moléculaire ne sorte du gel.
- Couper le gel autour de 25 kDa pour séparer les parties supérieure et inférieure.
- Transférer les protéines sur une membrane de PVDF de 0,2 µm pré-activée avec du méthanol dans un tampon de transfert (25 mM de Tris base, 192 mM de glycine et 20 % [v/v] de méthanol) à 200 mA pendant 1 h pour la partie inférieure du gel (<25 kDa) et 2,5 h pour la partie supérieure du gel (>25 kDa).
- Bloquer la membrane pendant 1 h dans le tampon de blocage avec agitation douce.
- Préparer une solution d'anticorps primaire anti-LC3 à 1:1 000 dans le tampon de blocage contenant 0,1 % de Tween-20.
REMARQUE : L'anticorps primaire anti-LC3 a été utilisé à une dilution de 1:1 000, et l'anticorps de contrôle de chargement anti-actine a été utilisé à une dilution de 1:4 000. - Incuber la membrane toute la nuit à 4 °C avec l'anticorps primaire anti-LC3 sous agitation douce.
- Laver la membrane quatre fois pendant 5 min avec du TBS-T (0,1 % de Tween-20 dans TBS ; 20 mM de Tris-HCl, pH 7,6, et 150 mM de NaCl).
- Préparer une solution d'anticorps secondaire anti-lapin conjugué à la peroxydase de raifort à 1:2 000 dans le tampon de blocage.
- Incuber la membrane avec l'anticorps secondaire pendant 1 h à température ambiante sous agitation douce.
- Laver la membrane quatre fois pendant 5 min avec du TBS-T.
- Laver la membrane deux fois avec du TBS.
5. Détection chimiluminescente
- Préparez le substrat chimiluminescent à deux composants en mélangeant des volumes égaux du réactif A (solution de luminol/activateur) et du réactif B (solution de peroxyde) juste avant utilisation.
- Épongez délicatement l'excès de liquide sur la membrane à l’aide d’un essuie-tout de laboratoire.
- Placez la membrane dans une boîte opaque.
- Ajoutez la solution chimiluminescente amplifiée sur la membrane, fermez la boîte et incubez pendant 5 min.
- Laissez s’écouler l’excès de solution, puis placez la membrane dans le système d’imagerie pour la détection du signal.
- Acquérez les images conformément aux instructions du fabricant pour le système d’imagerie.
6. Analyse densitométrique à l'aide de Fiji
- Faites glisser et déposez le fichier image dans la fenêtre Fiji pour l'ouvrir.
- Convertissez l'image en niveaux de gris 8 bits (Image → Type → 8-bit).
- Si nécessaire, faites pivoter l'image pour aligner les bandes horizontalement (Image → Transform → Rotate).
- Activez l'aperçu et réglez la grille sur un nombre approprié de lignes (par exemple, 20).
- Ajustez l'angle de rotation jusqu'à ce que les bandes soient correctement alignées.
- Utilisez l'outil de sélection rectangulaire pour définir une région d'intérêt (ROI) autour de la première piste, en incluant uniquement la bande correspondant à LC3-II.
REMARQUE : La sélection ne doit pas être plus de deux fois plus large que haute. Utilisez les mêmes dimensions de ROI pour toutes les bandes incluses dans l'analyse. - Sélectionnez Analyze → Gels → Select First Lane.
- Déplacez la même ROI vers la piste suivante et positionnez-la autour de la bande correspondante.
- Sélectionnez Analyze → Gels → Select Next Lane.
- Répétez les étapes 6.6 et 6.7 jusqu'à ce que la dernière piste soit sélectionnée.
- Générez les profils d'intensité (Analyze → Gels → Plot Lanes).
- Utilisez l'outil de ligne droite pour définir la ligne de base de chaque pic et quantifiez l'intensité de la bande à l'aide de l'outil baguette magique.
- Normalisez les valeurs par rapport à un témoin de chargement.
Résultats
Ce protocole décrit le transfert Western permettant de suivre la dynamique de LC3 dans une lignée cellulaire de cancer pancréatique dérivée de KPC sous différentes conditions expérimentales. Le protocole permet d'obtenir des images chimiluminescentes de LC3 et d'un témoin de charge. Dans cette étude, l'actine a été utilisée comme témoin de charge.
Deux applications représentatives du protocole sont présentées. Premièrement, des cellules KPC témoins ont été comparées à des cellules KPC traitées par la gemcitabine. La gemcitabine est un agent chimiothérapeutique dont il a déjà été rapporté qu'il induit l'autophagie dans les cellules cancéreuses du pancréas19. La figure 2A montre un immunoblot représentatif de LC3, l'actine étant utilisée comme témoin de chargement. La quantification obtenue par analyse densitométrique dans Fiji est présentée dans la figure 2B. Les niveaux de LC3-II ont été normalisés par rapport à l'actine. Une augmentation significative de 59 % des niveaux de LC3-II a été observée dans les cellules traitées par la gemcitabine, ce qui est compatible avec une induction de l'autophagie.
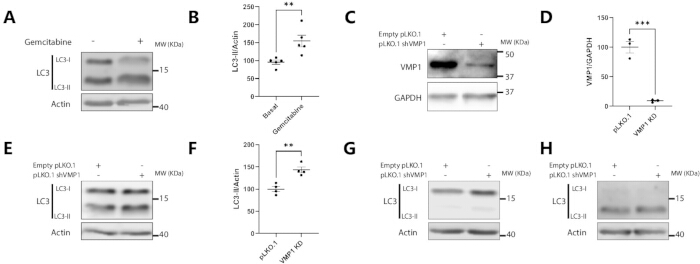
Figure 2 : Analyse par immunoblot de LC3 dans des cellules de cancer du pancréas dérivées de KPC : (A-B) effets de la gemcitabine, (C-F) la diminution de VMP1, et (G-H) des conditions techniques sous-optimales. (A–B) Niveaux de LC3 dans des conditions basales et après traitement à la gemcitabine. Des cellules de cancer du pancréas dérivées de KPC ont été traitées avec 20 µM de gemcitabine pendant 24 h ou laissées non traitées. Des lysats cellulaires ont été immunomarqués pour LC3 et l’actine, utilisée comme témoin de chargement. (A) Des images représentatives d’immunoblot de LC3 et d’actine sont montrées. (B) Le graphique présente la quantification de la densitométrie de la bande LC3-II normalisée à l’actine. Les données sont exprimées en moyenne ± SEM. **p < 0,01 par test t de Student non apparié. n = 4 par condition. (C–D) Validation de l’extinction de VMP1 par ARNh. Des cellules exprimant de façon constitutive soit un plasmide pLKO.1 vide (pLKO.1), soit un plasmide pLKO.1 codant un ARNh ciblant la séquence murine de VMP1 (VMP1 KD) ont été lysées et analysées. (C) Image représentative d’un immunoblot de VMP1, avec GAPDH comme témoin de chargement. (D) Quantification des niveaux d’expression de VMP1 montrant une réduction d’environ 90 % dans les cellules VMP1 KD. Les données sont exprimées en moyenne ± SEM. ***p < 0,001 par test t de Student non apparié. n = 3 par condition. (E–F) Effet de la diminution de VMP1 sur l’accumulation de LC3-II. Des cellules de cancer du pancréas dérivées de KPC exprimant de façon constitutive un plasmide pLKO.1 vide ou un plasmide shVMP1 ont été lysées et immunomarquées pour LC3 et l’actine, utilisée comme témoin de chargement. (E) Des images représentatives d’immunoblot de LC3 et d’actine sont montrées. (F) Le graphique présente la quantification de la densitométrie de la bande LC3-II normalisée à l’actine. Les données sont exprimées en moyenne ± SEM. **p < 0,01 par test t de Student non apparié. n = 5 par condition. (G-H) Expériences sous-optimales. Des cellules de cancer du pancréas dérivées de KPC exprimant de façon constitutive soit un plasmide pLKO.1 vide, soit un plasmide shVMP1 ont été lysées et immunomarquées pour LC3 et l’actine, utilisée comme témoin de chargement. (G) Images représentatives d’immunoblot de LC3 et d’actine obtenues à partir de lysats préparés à l’aide d’un tampon de lyse à faible concentration en détergent. (H) Images représentatives d’immunoblot de LC3 et d’actine, où LC3 a été détectée à l’aide d’un anticorps primaire dont la réactivité avec la protéine murine n’est pas garantie. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Une deuxième expérience a été réalisée à l'aide de cellules cancéreuses pancréatiques dérivées de KPC exprimant de façon constitutive soit un plasmide pLKO.1 vide (pLKO.1), soit un plasmide pLKO.1 codant pour un ARNsh ciblant la séquence murine de VMP1 (VMP1 KD). La diminution efficace de VMP1 a d'abord été vérifiée. La figure 2C montre un immunoblot représentatif de VMP1 avec GAPDH comme contrôle de chargement, et la figure 2D quantifie une réduction de 90 % de l'expression de VMP1 dans les cellules VMP1 KD. Les niveaux de LC3-II ont ensuite été évalués dans ces cellules. Une accumulation accrue de LC3-II était attendue, car VMP1 est nécessaire à la formation des autophagosomes. Bien que la diminution de VMP1 n'empêche pas la conversion de LC3-I en LC3-II, elle altère la formation des autophagosomes et la dégradation ultérieure du contenu, entraînant une accumulation de LC3-II11,15. Des immunoblots représentatifs de LC3 et d'actine sont présentés dans la figure 2E, et la quantification du rapport LC3-II/actine est indiquée dans la figure 2F. Une augmentation significative de 43 % des niveaux de LC3-II a été observée dans les cellules VMP1 KD par rapport aux témoins pLKO.1.
Ces résultats démontrent que le protocole permet une détection et une quantification fiables des niveaux de LC3-II dans un modèle de cellules cancéreuses pancréatiques dérivé de KPC. Toutefois, de légères déviations par rapport au protocole peuvent entraîner des résultats sous-optimaux.
Étant donné que LC3-II est la forme lipidée de LC3, une extraction efficace nécessite un tampon de lyse contenant une concentration adéquate de détergents. Figure 2G montre des immunotransferts représentatifs de LC3 et d’actine obtenus à partir du même modèle expérimental décrit dans les Figure 2E–F (pLKO.1 versus VMP1 KD), mais en utilisant un tampon de lyse à faible concentration en détergent (50 mM Tris-HCl, pH 7,4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA et 0,1 % de Triton X-100). Bien que le signal de l’actine soit resté acceptable, le signal de LC3 était sous-optimal. Seule la bande LC3-I était clairement visible, tandis que la bande LC3-II était à peine détectable et nettement réduite par rapport à LC3-I.
Une autre variable importante dans l'immunotransfert de LC3 est le choix de l'anticorps primaire. Les immunotransferts présentés dans les Figures 2A, 2B, 2E, 2F, et 2G ont été réalisés à l'aide d'un anticorps primaire ayant permis une détection robuste de LC3 dans ce système expérimental. En revanche, la Figure 2H montre un immunotransfert de LC3 obtenu avec un anticorps primaire différent, donnant des résultats sous-optimaux. Dans ces conditions, LC3-I était à peine détectable, et le signal de LC3-II était nettement plus faible que celui obtenu avec l'anticorps utilisé dans les expériences précédentes.
Discussion
Cet article décrit l'optimisation technique et la standardisation d'un protocole classique d'immunotransfert de LC3 dans des cellules de cancer du pancréas dérivées de KPC. Compte tenu du rôle de plus en plus reconnu de l'autophagie et des protéines liées à l'autophagie dans le développement et la progression du cancer du pancréas23, ce protocole standardisé offre une méthode fiable pour surveiller la dynamique de LC3. Le protocole peut être appliqué pour évaluer le pool d'autophagosomes dans diverses conditions expérimentales, notamment la chimiothérapie, le stress oxydatif, l'hypoxie, le stress du réticulum endoplasmique, ainsi que des manipulations génétiques telles que la surexpression, l'extinction, la suppression ou la mutation de gènes. En plus de l'évaluation de la dynamique de LC3, le protocole peut être adapté pour étudier les interactions directes ou indirectes entre LC3 et des protéines d'intérêt. Par exemple, une immunoprécipitation d'une protéine cible suivie de la détection de LC3 dans l'éluat peut être réalisée à l'aide de ce protocole. De plus, l'immunotransfert de LC3 peut être utilisé pour analyser les vésicules extracellulaires dans le contexte de l'autophagie sécrétoire, un domaine émergent dont l'importance croissante est mise en évidence dans le carcinome adénoïde ductal du pancréas24,25.
Comme illustré dans la Figure 2G–H, plusieurs étapes critiques doivent être soigneusement contrôlées, car de légères variations peuvent entraîner des résultats sous-optimaux. L'un des paramètres les plus importants est la composition du tampon de lyse. Une extraction efficace de la LC3-II nécessite un tampon présentant une concentration relativement élevée en détergent, comme le tampon RIPA ou une formulation similaire. Les tampons contenant moins de détergent, couramment utilisés dans les protocoles d'immunoprécipitation afin de préserver les interactions protéine-protéine, peuvent ne pas solubiliser adéquatement la LC3-II. Dans ces conditions, la LC3-I peut rester détectable, tandis que la LC3-II devient difficile, voire impossible, à détecter, compromettant ainsi l'interprétation des données.
Un autre facteur critique est le choix d'un anticorps primaire validé pour le système expérimental étudié. L'évaluation technique présentée ici s'est limitée à la comparaison de deux anticorps provenant du même fabricant et ne constitue pas une validation exhaustive entre plusieurs clones ou fournisseurs. Néanmoins, les résultats illustrent à quel point la performance des anticorps peut varier considérablement selon les systèmes expérimentaux. Bien qu'aucune conclusion définitive concernant la spécificité d'espèce ne puisse être tirée de cette comparaison restreinte, la performance sous-optimale de l'anticorps alternatif évalué dans ce modèle souligne l'importance d'une validation empirique plutôt que de s'appuyer sur une réactivité croisée prédite. Selon la fiche technique du fabricant, cet anticorps est validé pour des échantillons humains, tandis que la réactivité chez la souris est prédite en fonction de l'homologie de séquence. Bien qu'une détection faible de LC3 ait été observée dans des cellules murines (Figure 2H), le même anticorps avait précédemment échoué à produire des signaux détectables dans du tissu pancréatique de rat et dans des cellules AR42J dérivées de rat (données non montrées). Ces observations soulignent l'importance de valider la performance de l'anticorps dans le modèle biologique spécifique étudié.
Les paramètres supplémentaires nécessitant une optimisation incluent la composition du gel et les conditions d'électrophorèse. Un gel de séparation à 15 % permet une séparation adéquate des formes LC3-I et LC3-II lorsque l'électrophorèse est arrêtée entre le moment où le front de colorant atteint le bas du gel et avant que le marqueur de poids moléculaire de 10 kDa ne sorte du gel. En revanche, des gels à pourcentage plus faible, comme les gels à 7 %, ne fournissent pas une résolution suffisante. Les conditions de transfert sont tout aussi importantes, car la LC3 est une protéine de faible poids moléculaire. Un temps ou un courant de transfert insuffisant peut réduire l'efficacité du transfert, tandis qu'un temps ou un courant excessif peut entraîner une perte de protéine à travers la membrane. L'utilisation de membranes ayant des pores plus larges peut augmenter davantage ce risque.
Plusieurs modifications du protocole peuvent être acceptables. Des racloirs à cellules commerciaux peuvent être utilisés à la place des embouts de pipette P200 lors de la collecte des cellules. Les échantillons peuvent être traités immédiatement après la lyse plutôt que d'être congelés, à condition qu'ils soient maintenus sur glace. Des gels de polyacrylamide disponibles dans le commerce, y compris des gels gradients de 4–20 %, peuvent également être utilisés. Des réactifs de blocage alternatifs, tels que du lait de qualité laboratoire ou de l'albumine sérique de bœuf (BSA) à 1 % dans du TBS-T, peuvent remplacer la solution de blocage décrite ici. De même, des tampons d'incubation d'anticorps alternatifs peuvent être utilisés, à condition que l'azoture de sodium soit exclu des solutions contenant des anticorps secondaires conjugués à la peroxydase de raifort, car il inhibe l'activité peroxydasique.
Le protocole peut également être adapté à d'autres systèmes expérimentaux, notamment des lignées cellulaires provenant de tissus différents et des lysats tissulaires. Toutefois, comme le protocole a été principalement optimisé dans des cellules cancéreuses pancréatiques dérivées de KPC, son applicabilité plus large doit être soigneusement évaluée. Les différences de type cellulaire, de niveaux basaux d'autophagie, de profils d'expression protéique et de composition des échantillons peuvent affecter de manière significative la détection de LC3. Par conséquent, l'adaptation à d'autres systèmes nécessitera probablement une optimisation supplémentaire, et la compatibilité des anticorps avec l'espèce étudiée devra toujours être vérifiée.
Une limitation fondamentale du immunoblotting de LC3 doit également être soulignée. L'accumulation de LC3-II seule est insuffisante pour déterminer de manière définitive l'état de l'autophagie ou pour distinguer une induction accrue de l'autophagie d'une clairance altérée des autophagosomes. Bien que LC3-II soit générée lors de l'induction de l'autophagie, elle est également dégradée dans les lysosomes dans le cadre du processus autophagique. Par conséquent, à la fois une autophagie renforcée et un flux autophagique altéré en aval de la conjugaison de LC3 peuvent entraîner une accumulation de LC3-II26.
Cette limitation est illustrée par les expériences présentées dans la Figure 2A, B et la Figure 2E, F, où des niveaux élevés de LC3-II ont été observés dans des conditions biologiquement distinctes. Dans les cellules traitées par la gemcitabine, l'accumulation de LC3-II reflète une induction active de l'autophagie associée à une augmentation de l'expression de VMP1 et une conversion renforcée de LC3-I en LC3-II11,19. En revanche, l'extinction de VMP1 perturbe la maturation et l'élimination des autophagosomes. Dans ces conditions, la lipidation de LC3 reste intacte, mais la dégradation de LC3-II est compromise en raison d'un flux autophagique altéré, entraînant une accumulation de LC3-II malgré une progression autophagique déficiente22. Étant donné que ces états biologiques distincts ne peuvent pas être différenciés uniquement par immunoblotting de LC3, des approches complémentaires telles que l'analyse de SQSTM1/p62 et les tests d'inhibition lysosomale sont nécessaires pour une évaluation rigoureuse du flux autophagique26.
Lorsqu'elle est combinée à ces approches complémentaires, l'immunoblotting de LC3 reste l'une des méthodes les plus accessibles et les plus informatives pour surveiller l'autophagie. Les techniques alternatives présentent également des limites. La quantification des points de LC3 par immunofluorescence27 ne permet pas de distinguer de façon fiable une augmentation de l'autophagie d'un flux altéré et peut s'avérer difficile à standardiser et à automatiser. Toutefois, l'immunofluorescence nécessite moins de matériel biologique et peut donc être avantageuse pour des échantillons cliniques limités, tels que des biopsies humaines. De plus, l'immunoblotting de LC3 ne nécessite pas de systèmes rapporteurs basés sur la transfection, évitant ainsi les artéfacts liés à la surexpression des protéines. Enfin, la cytométrie en flux classique ne dispose pas d'une résolution suffisante pour distinguer LC3-I de LC3-II, ce qui limite son utilité pour évaluer l'activité autophagique.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun conflit d’intérêts.
Remerciements
Ce travail a été soutenu par des subventions du Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], de l'Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], de l'Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA] et de la Fundación Norberto Quirno, Ciudad de Buenos Aires.
Les auteurs remercient sincèrement The Company of Biologists pour le soutien financier accordé dans le cadre d'une bourse de voyage attribuée par Disease Models & ; Mécanismes. Ce soutien a contribué aux travaux découlant de la visite financée. Des informations supplémentaires sur l'organisation caritative sont disponibles à l'adresse suivante : https://www.biologists.com/.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Scanner C-DiGit Blot | LI-COR BioScience | 3600 | Utilisé pour la détection chimiluminescente à l'étape 5.6 |
| Solution saline tamponnée au phosphate 10x (PBS) | Corning | 46-013-CM | Utilisée pour préparer du PBS 1x stérile afin de laver les cellules avant le repiquage à l'étape 1.1. |
| 2-Mercaptoéthanol (β-mercaptoéthanol) | Sigma-Aldrich (Merck) | M3148 | Utilisé pour préparer le tampon d'échantillonnage Laemmli 4× pour la préparation des échantillons SDS-PAGE à l'étape 3.8. |
| Agitateur 3D | DLAB | SK-D1807-E | Utilisé pour l'incubation des membranes dans les solutions de blocage, d'anticorps primaires et secondaires, ainsi que pendant les étapes de lavage (étapes 4.6, 4.8, 4.9, 4.11, 4.12 et 4.13). |
| Plaque de culture cellulaire 6 puits | SORFA | SCP-11-006 | Utilisée pour ensemencer les cellules à l'étape 1.1. |
| Acrylamide | Sigma-Aldrich (Merck) | A8887 | Utilisée pour préparer le gel SDS-PAGE 15 % requis aux étapes 4.2–4.5. |
| Anti-Glyceraldehyde-3-Phosphate Déshydrogénase, monoclonal souris, clone 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Réactivité : humain, félin, porcin, souris, lapin, poisson, canin, rat. Utilisé comme contrôle de chargement pour évaluer l'efficacité de l'extinction (Figures 2C et 2D). |
| Anticorps secondaire anti-IgG de souris, conjugué à la peroxydase (HRP) | Cell Signaling Technology | 7076 | RRID: AB_330924. Utilisé pour préparer la solution d'anticorps secondaire à l'étape 4.10. |
| Anticorps secondaire anti-IgG de lapin, conjugué à la peroxydase (HRP) | Cell Signaling Technology | 7074 | RRID: AB_2099233. Utilisé pour préparer la solution d'anticorps secondaire à l'étape 4.10. |
| Anticorps anti-β-Actine (ACTB), monoclonal souris, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Réactivité : mouton, carpe, félin, poulet, rat, souris, Hirudo medicinalis, lapin, canin, porcin, humain, bovin, cobaye. Utilisé comme contrôle de chargement dans les Figures 2A, 2B, 2E, 2F, 2G et 2H. |
| Bleu de bromophénol | Sigma-Aldrich (Merck) | B0126 | Utilisé pour préparer le tampon d'échantillonnage Laemmli 4× pour la préparation des échantillons SDS-PAGE à l'étape 3.8. |
| Acide Éthylènediaminetétraacétique (EDTA) | Sigma-Aldrich (Merck) | E9884 | Utilisé pour préparer le tampon de lyse à faible détergent (Figures 2G et 2H). |
| Sérum de veau fœtal | NATOCOR | Lintc-634 | Utilisé pour préparer le milieu complet pour la culture cellulaire (étapes 1 et 2). |
| Fiji | Logiciel open-source | N/A | Logiciel d'analyse d'images |
| Glycérol | Sigma-Aldrich (Merck) | G5516 | Utilisé pour préparer le tampon d'échantillonnage Laemmli 4× pour la préparation des échantillons SDS-PAGE à l'étape 3.8. |
| Glycine | Sigma-Aldrich (Merck) | G7126 | Utilisée pour préparer le tampon de transfert à l'étape 4.5. |
| Mémoire Immun-Blot PVDF, rouleau, 0,2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Utilisée pour le transfert à l'étape 4.5. |
| Tampon de blocage Intercept (TBS) | LI-COR BioScience | 927-60001 | Utilisé pour le blocage à l'étape 4.6, et pour préparer les solutions d'anticorps primaires et secondaires aux étapes 4.7 et 4.10. |
| Anticorps monoclonal de lapin LC3 A/B (D3U4C) | Cell Signaling Technology | 12741 | RRID: AB_2617131 Réactivité : humain, souris, lapin. Utilisé pour préparer la solution d'anticorps primaire à l'étape 4.7. |
| Anticorps monoclonal de lapin LC3B (D11) | Cell Signaling Technology | 3868S | RRID: AB_2137707 Réactivité : humain. Utilisé comme anticorps primaire LC3 dans la Figure 2H. |
| Méthanol | Anedra | 6197 | Utilisé pour activer la membrane PVDF et préparer le tampon de transfert à l'étape 4.5. |
| Unité de filtration par seringue Millex-HV, 0,45 μm PVDF | Merck Millipore | SLHV033RS | Utilisée pour filtrer le milieu contenant le lentivirus (étape 1.1). |
| Bain-marie sec numérique mini | Labnet International, Inc. | D 5060075 | Utilisé pour chauffer les échantillons à l'étape 4.1. |
| Système d'électrophorèse Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | Utilisé pour la SDS-PAGE et le transfert aux étapes 4.2, 4.3 et 4.5. |
| MISSION shRNA ciblant la souris Vmp1 (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Utilisé pour générer des lignées cellulaires stables avec extinction de VMP1 (étape 1.1). |
| N,N'-Méthylènebisacrylamide (Bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | Utilisée pour préparer le gel SDS-PAGE 15 % requis aux étapes 4.2–4.5. |
| Nabigem 1g Gemcitabine | Microsules Argentina | M3060584-3 | Utilisé pour le traitement au gemcitabine à l'étape 2. |
| Solution de pénicilline-streptomycine (Pen-Strep) | Sartorius | 03-031-1B | Utilisée pour préparer le milieu complet pour la culture cellulaire (étapes 1 et 2). |
| Kit d'analyse protéique Pierce BCA | Thermo Fisher Scientific | 23227 | Utilisé pour la quantification des protéines (étape 3.7). |
| Comprimés inhibiteurs de protéase Pierce | Thermo Fisher Scientific | A32953 | Utilisés pour préparer le tampon de lyse à l'étape 3.2. |
| Polyéthylènimine HCl MAX, linéaire (PEI MAX), PM 40 000 | Polysciences | 24765-1 | Utilisé pour la transfection avec des plasmides lentiviraux (étape 1.1). |
| Chlorure de potassium (KCl) | Sigma-Aldrich (Merck) | P9333 | Utilisé pour préparer le PBS à l'étape 3.1. |
| Phosphate monobasique de potassium (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | Utilisé pour préparer le PBS à l'étape 3.1. |
| Alimentation électrique PowerPac Basic | Bio-Rad | 1645050 | Utilisée pour la SDS-PAGE et le transfert aux étapes 4.2, 4.3 et 4.5. |
| Marqueur protéique pré-étalonné | Genbiotech | PM201 | Utilisé pour la SDS-PAGE aux étapes 4.2 - 4.4. |
| Puromycine (solution à 10 mg/mL) | InvivoGen | ant-pr-1 | Utilisée pour la sélection des cellules transduites de manière stable (étape 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Utilisé pour préparer le milieu complet pour la culture cellulaire (étapes 1 et 2). |
| Chlorure de sodium (NaCl) | Sigma-Aldrich (Merck) | S9888 | Utilisé pour préparer le PBS à l'étape 3.1, les tampons de lyse à l'étape 3.2, et le TBS à l'étape 4.9. |
| Sulfate de dodécylsodium (SDS) | Sigma-Aldrich (Merck) | L3771 | Utilisé pour préparer le tampon de lyse à l'étape 3.2 et le gel SDS-PAGE 15 % requis aux étapes 4.2–4.5. |
| Fluorure de sodium (NaF) | Sigma-Aldrich (Merck) | S7920 | Utilisé pour préparer le tampon de lyse à faible détergent (Figures 2G et 2H). |
| Phosphate dibasique de sodium (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Utilisé pour préparer le PBS à l'étape 3.1. |
| Centrifugeuse Sorval ST 16R | Thermo Fisher Scientific | 75004380 | Utilisée pour centrifuger les cellules à l'étape 1.1 et les lysats à l'étape 3.5. |
| Substrat chimiluminescent SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | Utilisé pour la détection chimiluminescente à l'étape 5.1. |
| Cabinet de sécurité de classe II, type A2, série 1300 A2 Thermo Scientific | Thermo Fisher Scientific | 1386 | Utilisé pour la manipulation stérile des cultures cellulaires aux étapes 1.1, 1.3 et 2.1. |
| Incubateur CO2 Thermo Scientific BB 150 | Thermo Fisher Scientific | BB150-2TCS-L | Utilisé pour la culture cellulaire aux étapes 1.2 et 2.2. |
| Anticorps monoclonal de lapin TMEM49/VMP1 (D1Y3E) | Cell Signaling Technology | 12929 | RRID: AB_2714018 Réactivité : humain, souris, rat. Utilisé comme anticorps primaire pour vérifier l'efficacité d'extinction de VMP1 dans les Figures 2C et 2D. |
| Tris base | Sigma-Aldrich (Merck) | T1503 | Utilisé pour préparer le tampon de transfert à l'étape 4.5. |
| Chlorhydrate de Tris (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Utilisé pour préparer les tampons de lyse à l'étape 3.2, le tampon d'échantillonnage Laemmli 4× à l'étape 3.8, le gel SDS-PAGE 15 % requis aux étapes 4.2–4.5, et le TBS à l'étape 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Utilisé pour préparer les tampons de lyse à l'étape 3.2. |
| Trypsine EDTA | Gibco | 11570626 | Utilisée pour le repiquage des cellules à l'étape 1.1. |
Références
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible