En utilisant un modèle explant ex vivo , de petits morceaux de la portion rostrale du tissu adipeux blanc viscéral provenant de souris maigres sont cultivés pendant 7 à 10 jours, permettant l’induction et l’étude de l’inflammation du tissu adipeux lors de l’alimentation riche en graisses.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Un modèle murin ex vivo pour l’inflammation du tissu adipeux riche en graisses
* These authors contributed equally
Dans cet article
Résumé
Résumé
Ce protocole décrit un modèle murin ex vivo qui reproduit certaines caractéristiques cellulaires et inflammatoires observées dans le tissu viscéral adipeux (VAT) après une alimentation riche en graisses (HLD), sans intervention diététique in vivo. De petits explants de la TVA de souris maigres sont cultivés pendant 7 à 10 jours, durant lesquels ils développent spontanément un phénotype inflammatoire qui ressemble beaucoup à celui de la TVA provenant d’animaux nourris au DAF. Il est important de noter que le modèle préserve l’architecture du tissu adipeux (AT), permettant l’étude des processus inflammatoires dans un contexte physiologiquement pertinent. Lors de la culture, des signes clés d’inflammation liée à l’obésité apparaissent, notamment la formation de structures en forme de couronne (CLS), l’accumulation de macrophages (MMe) activés métaboliquement, et une augmentation de la production de cytokines inflammatoires. Malgré la mortalité des adipocytes, d’autres facteurs d’inflammation liée à l’obésité, notamment les facteurs de stress métaboliques tels que les acides gras saturés, la gestion altérée des lipides, l’excès de glucose, le stress oxydatif, l’hypoxie, le déséquilibre des adipokines et la signalisation paracrine adipocyte–cellules immunitaires, peuvent être partiellement représentés dans le modèle. Le système prend en charge un large éventail d’applications en aval, incluant l’imagerie en direct, la cytométrie en flux, la PCR quantitative, l’ELISA, l’immunocoloration et le séquençage d’ARN en vrac ou unicellulaire. De plus, des traitements pharmacologiques et basés sur des cytokines peuvent être appliqués pour étudier les voies de signalisation et les réponses spécifiques à chaque type cellulaire. Ce modèle facilement personnalisable s’aligne sur les principes des 3R en réduisant l’utilisation animale pour les études alimentaires in vivo . Le modèle est reproductible, rentable et simple à mettre en œuvre, offrant une plateforme polyvalente pour étudier la mort des adipocytes, la dynamique des cellules immunitaires et les stratégies thérapeutiques dans l’inflammation de l’AT.
Introduction
Le tissu adipeux (AT) est un organe métaboliquement actif composé d’environ 20 % d’adipocytes et d’un mélange hétérogène de cellules immunitaires, de fibroblastes, de cellules progénitrices et de cellules vasculaires chezl’humain 1. L’AT est classée en tissu adipeux blanc uniluculaire (WAT), tissu adipeux brun multiloculaire (BAT) et tissu adipeux beige intermédiaire, reflétant une hétérogénéité dans la composition, la fonction et la localisation anatomique. La WAT est répartie entre les dépôts sous-cutanés (SCAT), viscéraux (VAT), périvasculaires et de moelle adipeuse, qui diffèrent par leur origine développementale, leurs profils d’expression génique et leur fonction métabolique. Au-delà de son rôle dans le stockage lipidique, l’AT agit comme un organe endocrinien en sécrétant des cytokines, des hormones etdes adipokines. Comparé au SCAT, la TVA est plus métaboliquement active et enrichie dans les cellules inflammatoires, ce qui la rend particulièrement pertinente pour les études sur l’inflammation de la TA et les maladies métaboliques telles que le diabètede type 2 3,4,5.
L’AT est un régulateur clé de la santé métabolique et joue un rôle central dans l’obésité, qui est associée à de nombreuses comorbidités. L’obésité favorise l’hypertrophie des adipocytes, l’hyperplasie et laprolifération 6, tandis que l’expansion et l’inflammation de l’AT sont fortement corrélées à l’hyperglycémie, à l’hyperinsulinémie, à l’hypertriglycémie et à une tolérance auglucose altérée 3. L’expansion de l’AT est présumée s’accompagner d’une augmentation de la mortalité des adipocytes, avec environ 10 % de renouvellement cellulairepar an 7, déclenchant le recrutement des macrophages essentiel à l’élimination et au remodelagedes tissus 8. Comme les adipocytes sont nettement plus grands (100–200 μm) que les macrophages, une phagocytose efficace par ces cellules environ cinq fois plus petites est difficile, ce qui altère l’homéostasie tissulaire et favorise une inflammation chronique del’AT 9. Les macrophages du tissu adipeux (MAT) médiatisent l’élimination des adipocytes mourants surdimensionnés soit en fusionnant en cellules géantes multinucléées (MGC), soit en formant des structures en forme de couronne (CLS) autour des adipocytes morts et en les dégradant par exocytoselysosomale 10,11,12. L’abondance du CLS est corrélée à une inflammation associée àl’obésité 11,13.
Dans un AT sain, les distributeurs automatiques sont principalement des macrophages anti-inflammatoires de type M2, tandis que l’obésité favorise une transition vers un phénotype pro-inflammatoire de typeM1 14,15. D’autres sous-ensembles mécanistiques distincts de macrophages émergent, notamment les macrophages métaboliquement activés (MMe) et les macrophages associés aux lipides (LAMs), qui jouent un rôle important dans l’élimination des adipocytes morts par exocytoselysosomale 16,17,18.
Pour étudier l’inflammation de la AT dans un environnement multicellulaire physiologiquement pertinent, le protocole a établi un modèle murin ex vivo basé sur des cultures organotypiques d’explant de TVA dérivées de souris maigres. Les explantes de TVA cultivées pendant 7 à 10 jours développent un phénotype inflammatoire comparable à celui observé après au moins 12 semaines d’alimentation riche en graisses (HFD) en ce qui concerne la formation du CLS, le phénotype des macrophages et la production de cytokinesinflammatoires 9,19. Il est important de noter que cette approche réduit l’utilisation animale, élimine le besoin d’approbations d’interventions alimentaires et contribue aux principes des 3R en réduisant la dépendance aux études d’intervention alimentaire à long terme. Comparée aux systèmes conventionnels de culture cellulaire bidimensionnelle (2D), tels que les modèles de culture unicellulaire (par exemple, cellules 3T3-L1 ou cultures primaires d’adipocytes), cette méthode préserve la complexité tissulaire et la diversité cellulaire, permettant ainsi l’étude des interactions physiologiques cellule-cellule, y compris celles entre cellules immunitaires et adipocytes.
Les explants d’AT cultivés sont compatibles avec une large gamme d’approches analytiques. L’imagerie confocale en direct permet de surveiller l’accumulation d’ATM, la formation de CLS et la formationMGC 9,19. La digestion de la collagénase permet d’isoler la fraction vasculaire stromale (SVF) pour les analyses cytométriques en flux, incluant les tests de prolifération et la détermination des phénotypes12 de type M1, M2 ou MMe. Les analyses d’expression génique, incluant la PCR quantitative (qPCR) et le séquençage ARN, peuvent être réalisées sur des explants entiers, des cellules SVF ou des macrophagestriés 9. L’expression des protéines et l’activité enzymatique peuvent être évaluées par Western blotting ou ELISA 12,20,21, tandis que l’architecture tissulaire et l’expression des marqueurs peuvent être visualisées par coloration à montage complet et immunofluorescence 9,22. De plus, des interventions pharmacologiques et génétiques, y compris la déplétion de l’ATM et le traitement par cytokines, sont facilement réalisables 21,23,24.
En résumé, ce modèle murin ex vivo d’inflammation AT de type HFD permet d’étudier la mort des adipocytes, d’observer directement in situ le comportement cellulaire, ainsi que de manipuler des substances pharmacologiques ou génétiques pertinentes pour l’immunologie AT (Figure 1).
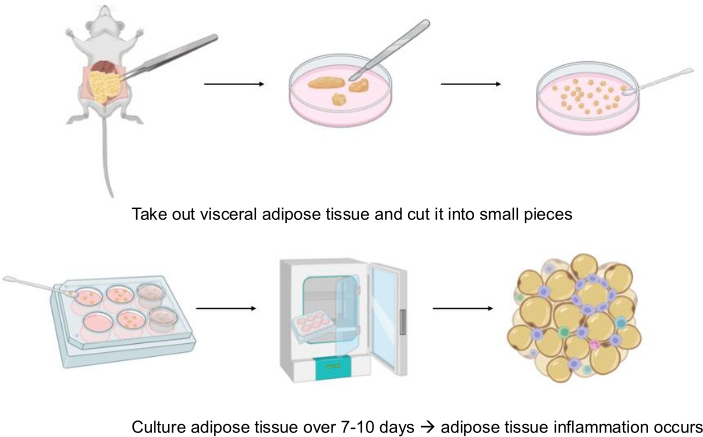
Figure 1 : Résumé graphique du flux de travail. Le tissu adipeux viscérale (AT) est isolé chez la souris, découpé en petits explants, puis cultivé pendant 7 à 10 jours. Pendant la période de culture, les explants développent un phénotype inflammatoire, permettant d’étudier l’inflammation du tissu adipeux dans des conditions contrôlées ex vivo. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Les expériences animales ont été réalisées conformément aux directives institutionnelles et nationales et approuvées par les autorités réglementaires compétentes. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdDes souris tomate (« MacFat », RRID : Csf1r-eGFP : RRID :IMSR_JAX :018549, Adipoq-iCreERT2 : RRID :IMSR_JAX :025124, CAG-tdTomate : RRID :IMSR_JAX :007914)27,28 ont été utilisées pour des expériences de microscopie représentative. Cette lignée de rapporteur permet de visualiser les macrophages par expression de GFP et les adipocytes par expression de tdTomatoes. Comme l’expression de tdTomato est perdue après la mort des adipocytes, la viabilité des adipocytes peut être surveillée pendant la culture. Les souris rapporteures Csf1r-eGFP (« MacGreen », RRID :IMSR_JAX :018549)28 ont été utilisées pour la visualisation des macrophages et les analyses de cytométrie en flux. Les souris C57BL/6J (RRID :IMSR_JAX :000664) ont été utilisées pour des expériences non imageries, y compris des analyses scRNA-seq et qPCR. Toutes les lignées transgéniques ont été maintenues sous forme de souris hétérozygotes sur un fond C57BL/6J.
Les expériences animales suivaient les « Principes de soins aux animaux de laboratoire » (publication NIH n° 85e23, révisée en 1985) et des lois nationales spécifiques, et étaient approuvées par les autorités locales de l’État de Saxe : Landesdirektion à Leipzig, Allemagne (application expérimentale animale : TV11-21-MEZ). Selon les autorités locales, les expériences décrites ne constituent pas des tests sur les animaux, car il est indiqué « si un vertébré est tué uniquement dans le but d’utiliser ses organes ou tissus à des fins scientifiques, cela n’est pas considéré comme un test animal au sens de l’article 7(2) de la loi sur le bien-être animal (TierSchG), mais plutôt comme un meurtre en vertu de l’article 4(3) de la loi sur le bien-être animal (TierSchG). » Le meurtre des animaux doit être rapporté dans un « rapport animal ». Ce rapport est inclus dans la demande d’expérimentation animale. Le comité d’éthique de la Faculté de médecine de l’Université de Leipzig a également approuvé les projets de recherche. Conformément aux directives de l’application expérimentale animale TV11-21-MEZ, les souris sont euthanasiées par overdose de l’anesthésique inhalé isoflurane. Une concentration effective de gaz (5 % dans le gaz porteur d’O₂) est délivrée via un vaporisateur d’isoflurane. La procédure d’euthanasie est terminée lorsque l’arrêt circulatoire définitif (absence de respiration [test des plumes] et de battement cardiaque [palpation]) est confirmé.
Les souris étaient hébergées dans une installation à température contrôlée (22 ± 2 °C), sans agents pathogènes spécifiques, à l’Université de Leipzig, dans des groupes frères et sœurs de 3 à 5 animaux sous un cycle clair/obscur de 12 heures. Les animaux avaient un accès ad libitum à l’eau et à un régime alimentaire standard (9 % de kcal de gras ; Sniff GmbH, Allemagne). Des expériences représentatives ont été réalisées avec des souris mâles et femelles. Les réactifs, produits chimiques et kits utilisés dans le protocole sont listés dans le tableau des matériaux.
1. Préparatifs
- Préparez les réactifs et les équipements
- Préparez le milieu de culture dans des conditions stériles en complétant le RPMI-1640 avec un sérum fœtal bovin (FBS) à 10 % et une solution antibiotique à 1 %.
- Réchauffez le milieu de culture et le PBS stérile à 37 °C.
- Nettoyez tout le matériel et la zone de travail à l’intérieur de la hotte de culture tissulaire avec 70 % d’éthanol.
- Préparez les animaux
- Sacrifiez les souris selon les directives institutionnelles. Éventuellement, peser les animaux.
- Placez les animaux dans un gobelet en verre contenant 70 % d’éthanol.
- Essuyez l’extérieur du bécher en verre avec de l’éthanol et transférez-le dans la hotte de culture tissulaire.
2. Isolement du tissu adipeux (Figure 2)
- Préparez la souris
- Placez la souris sur le dos dans un plat en verre à l’aide d’une pince contondante, ou épinglez-la sur une planche de dissection.
- Ajoutez une fine couche de PBS pré-chauffé à une boîte de Petri.
- Changez pour une paire de gants propres.
- Soulevez la peau abdominale inférieure avec des pinces et faites une petite incision horizontale à l’aide de ciseaux pour ouvrir la cavité abdominale.
- Réalisez une incision verticale (~2 cm de la caudale à la rostrale) s’étendant à partir de la coupe initiale pour exposer les organes internes.
- Isole le coussin gras
- À l’aide de petits ciseaux tranchants et de pinces pointues, localisez et excissez le tissu adipeux blanc. Utilisez un ensemble d’instruments séparé pour éviter toute contamination.
- Souris mâles : La graisse gonadiale est attachée uniquement à l’épididyme et aux testicules. Soulevez délicatement le coussinet adipeux et coupez au-dessus de l’épididyme, ou retirez l’épididyme et les testicules avec la graisse gonadique, puis retirez-les ensuite.
- Femelles souris : La graisse gonadique est attachée à la corne utérine et aux ovaires et est plus proéminente que chez les mâles. Soulevez délicatement le coussin adipeux et excisez le long de la corne utérine et des ovaires.
- Placez les coussinets graisseux isolés dans la boîte de Petri remplie de PBS.
- Retirez les résidus de l’épididyme, des testicules, des ovaires ou des vaisseaux sanguins à l’aide d’une lame de rasoir.
- Transférez le coussin graisseux nettoyé dans une seconde boîte de Petri contenant du PBS préchauffé. Éventuellement, pèse les coussinets gras.
REMARQUE : Peser les coussinets graisseux avant la culture permet de normaliser la masse tissulaire entre les conditions expérimentales.
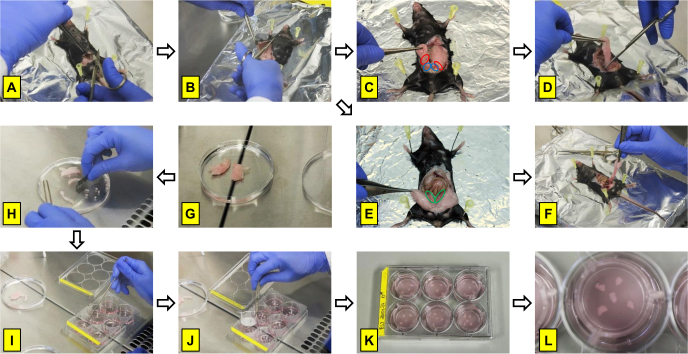
Figure 2 : Isolement et culture des explantes viscérales de tissu adipeux. (A,B) Ouverture de la cavité abdominale et exposition du tissu adipeux viscéral. (C, D) Isolement du tissu adipeux épididymaire chez les souris mâles, la graisse est attachée à l’épididyme (cercles rouges) et au testicule (cercles bleus). (Mi, Fa) Isolement du tissu adipeux gonadique des souris femelles, la graisse est attachée à la corne utérine (cercles verts) et aux ovaires. (G, H) Préparation et taille des explantes de tissu adipeux. (I, J) Transfert des explants dans des puits de culture et placement des inserts de culture cellulaire. (K, L) Images représentatives des explantations pendant la culture sur des plaques à 6 puits. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
3. Préparation et culture de l’explant
- Préparez les explants
ATTENTION : Les lames de rasoir sont tranchantes et peuvent causer des blessures. Manipuler et éliminer les lames avec soin conformément aux procédures de sécurité institutionnelles.- Découpez le coussin graisseux en bandes puis en cubes d’environ 10mm 3 (~10 mg par explant) à l’aide d’une lame de rasoir.
- Établir des cultures d’explantations
- Ajoutez 1 à 1,5 mL de milieu de culture à chaque puits d’une plaque à 6 puits.
REMARQUE : Pour la normalisation, utilisez environ 50 mg de tissu adipeux par 1 mL de milieu de culture. - Transférez cinq explants dans chaque puits à l’aide d’une cuillère ou d’une spatule stérile.
- Disposez les explants uniformément en cercle.
- Couvrez les explants avec un insert de culture cellulaire à l’aide de pinces stériles.
REMARQUE : Évitez d’introduire des bulles d’air lors du positionnement des inserts, et assurez-vous que les explants sont centrés à l’intérieur de celles-ci. - Incubez les explants à 37 °C, 5 % de CO₂ et 21 % d’O₂ pendant 7 à 10 jours.
REMARQUE : Utilisez du PBS préchauffé et un milieu de culture pour améliorer la viabilité des tissus. Travaillez rapidement pour minimiser le temps où les coussinets graisseux restent à l’extérieur de l’incubateur. Évitez la contamination par le pelage de souris. Si les poils adhèrent au tissu, retirez-les et rincez le tissu avec du PBS tiède.
- Ajoutez 1 à 1,5 mL de milieu de culture à chaque puits d’une plaque à 6 puits.
4. Analyses en aval
- Après la période de culture de 7 à 10 jours, il faut collecter des explants, des cellules de fractions vasculaires stromales ou des surnadants en culture pour des analyses en aval, incluant microscopie, cytométrie en flux, qPCR, ELISA ou séquençage ARN, selon les besoins du point de départ expérimental.
5. Analyse statistique
- Effectuer des analyses statistiques à l’aide de GraphPad Prism 10.2. Examinez les ensembles de données pour les valeurs aberrantes à l’aide du test ROUT (Q = 1 %) et évaluez la normalité à l’aide du test de Shapiro–Wilk (α = 0,05).
- Comparez deux groupes en utilisant les tests t de Student appariés ou les tests par paires de Wilcoxon, selon le cas. Comparez plusieurs groupes en utilisant une ANOVA unidirectionnelle suivie du test post hoc de Dunnett. Considérons des différences statistiquement significatives à p < 0,05.
- Présentez les données comme moyenne ± SEM. Sauf indication contraire, définissez n comme le nombre de réplicés biologiques (souris individuelles).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
La viabilité générale des tissus a été maintenue tout au long de la période de culture et a été surveillée à l’aide de plusieurs approches complémentaires. La viabilité tissulaire peut être évaluée par microscopie confocale à l’aide de colorants de viabilité tels que laCalcéine 25, la coloration par anticorps contre Perilipine pour évaluer l’intégrité de la membranedes adipocytes 17,26, ou l’expression de ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Compte tenu de la prévalence mondiale croissante des maladies métaboliques et du diabète, comprendre les mécanismes sous-jacents à l’inflammation du tissu adipeux (AT) reste un objectif important de la recherche. Pour répondre à ce besoin, un système de culture explant ex vivo permettant l’induction et l’analyse de l’inflammation de l’AT dans des conditions expérimentales contrôlées a été développé.
Une exigence cruciale de cette méthode est la préser...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs ne déclarent aucun intérêt concurrent.
Remerciements
Les auteurs remercient Constance Hobusch et Florian Kirmse pour leur excellente assistance technique. Des analyses de cytométrie en flux ont été réalisées à la Core Unit Fluorescence Technologies de l’Université de Leipzig, avec le soutien technique de Kathrin Jäger et Pia Glöckner. Ce travail a été soutenu par la Deutsche Forschungsgemeinschaft (DFG, Fondation allemande de la recherche), projet numéro 209933838 – SFB 1052 (projet B09).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
```html
```
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | Flow cytometry: 1:10000; Staining: 1:2000 | Invitrogen | D3835 |
| Bovine Serum Albumin | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | Staining: 1:100; Flow cytometry: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | Flow cytometry: 1:100 | BioLegend | 117334 |
| CD16/32 | Flow cytometry: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | Flow cytometry: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | Flow cytometry: 1:400 | BioLegend | 102606 |
| CD45 – PE | Flow cytometry: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Clodronate Liposomes | 500 µg/ml clodronate | Liposoma | |
| Collagenase Type 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | Flow cytometry: 0.2 µg/ml | Thermo Fisher | 62248 |
| Ethanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | Flow cytometry: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | Flow cytometry: 1:200 | Invitrogen | 25-4801-82 |
| Fetal Calf Serum | 1.10 | Gibco | 10270106 |
| Fetal Calf Serum | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | Flow cytometry: 1:20000; Staining: 1:10000 | Invitrogen | H34477 |
| MAC-2 | Staining: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | with 11 mM glucose | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Zinc chloride | 0.8 mM | Sigma | Z0152 |
| Zinc formaline | Polyscience | 21516-3.75 |
Références
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
