Les légumineuses s'associent à des micro-organismes du sol bactéries, formant des nodosités racinaires dans lesquelles les bactéries fixent l'azote atmosphérique pour l'utiliser par la plante. La microtomographie computérisée (microCT) permet une imagerie 3D non destructive de l'organisation tissulaire, des zones de bactéroïdes et des faisceaux vasculaires de ce tissu racinaire opaque et dur, offrant des avantages par rapport aux techniques d'imagerie traditionnelles qui nécessitent la sectionnement des nodosités.
Article de méthode
Imagerie microCT 3D des nodosités racinaires de Medicago sativa
* These authors contributed equally
Dans cet article
Résumé
Résumé
La relation symbiotique entre la légumineuse Medicago sativa et la bactérie du sol Sinorhizobium meliloti conduit à la formation de nodules racinaires fixateurs d'azote. Des méthodes destructrices classiques, telles que l'inclusion en paraffine, la microtomie vibrante et la cryomicrotomie, ont été utilisées pour visualiser la colonisation bactérienne du nodule, rendant extrêmement difficile l'obtention d'informations tridimensionnelles fiables. Ces approches sont souvent combinées à un marquage ou une coloration fluorescente, pouvant induire un stress supplémentaire nuisant à la croissance de la plante et à la formation des nodules. La microtomographie à rayons X (microCT) s'est imposée comme un outil relativement rapide, simple et robuste en biologie végétale, permettant de visualiser de manière non destructive les caractéristiques histologiques des plantes en trois dimensions (3D), évitant ainsi les artefacts liés à la préparation des échantillons et garantissant une reconstruction 3D de haute fidélité. Bien que la microCT ait déjà été appliquée à l'étude des nodules racinaires des légumineuses, un protocole détaillé et validé, documentant l'ensemble du processus depuis la récolte des plantes et la préparation des échantillons jusqu'au balayage et à la visualisation par logiciel, fait encore défaut.
Dans cette étude, nous présentons un protocole pas à pas de microCT utilisant Medicago sativa comme modèle. Le protocole comprend l'excision des nodules racinaires, la fixation, l'amélioration du contraste, le montage, l'acquisition d'images et la reconstruction tridimensionnelle. Les paramètres critiques influençant des éléments tels que la qualité d'image, la préservation des tissus et le contraste sont mis en évidence. Grâce à cette approche, il est possible de visualiser en trois dimensions l'organisation générale des tissus, les cellules infectées par des bactéroïdes et les faisceaux vasculaires, sans découper physiquement les nodules. Le flux de travail décrit ici fournit une méthode reproductible pour l'imagerie non destructive et à haute résolution de nodules racinaires natifs, et pourrait probablement être adapté à d'autres espèces de légumineuses, offrant ainsi aux chercheurs un outil pratique pour l'étude de la structure des nodules et de l'organisation bactérienne au sein de ceux-ci en 3D.
Introduction
Les plantes de la famille des Leguminosae (ou Fabaceae), comme Medicago sativa (luzerne), établissent une relation symbiotique avec des bactéries du sol fixatrices d'azote appartenant à la famille des Rhizobiaceae, telles que Sinorhizobium meliloti, ce qui conduit au développement de nodosités racinaires. La plante libère des flavonoïdes afin d'attirer les bactéries dans des conditions de limitation en azote. Cela active l'expression des facteurs Nod chez les bactéries symbiotiques, provoquant l'enroulement des poils racinaires et la formation subséquente d'une chambre d'infection entourant les bactéries1,2,3,4. Un filament d'infection se forme à partir d'une zone affaiblie de la paroi de la chambre, créant un tube allongé qui transporte les bactéries à travers la cellule du poil racinaire5. Lorsque le filament d'infection atteint le cortex interne, une série de divisions cellulaires initie la formation d'un organe racinaire spécialisé appelé la nodosité1,2,5. Les bactéries infectent ensuite la cellule de la nodosité et vivent de manière intracellulaire, entourées par la membrane symbiosomale à l'intérieur de la cellule. Ici, la plante fournit du carbone et d'autres nutriments aux bactéries. En échange, les bactéries fixent l'azote pour la plante, en convertissant l'azote atmosphérique inutilisable en ammoniac, une forme assimilable par la plante2,3,4. Ainsi, la nodosité racinaire fonctionne comme une usine biologique essentielle pour la fixation de l'azote, permettant la croissance de la plante même en l'absence d'engrais azotés de synthèse. Ce processus de fixation biologique de l'azote revêt une importance économique et environnementale majeure, car il permet aux légumineuses de croître sans engrais de synthèse6. De plus, certaines légumineuses forment des nodosités indéterminées qui présentent des zones distinctes dans lesquelles les bactéries se différencient et fixent l'azote de manière plus efficace4. Il est donc crucial de visualiser à la fois l'extérieur et l'intérieur de la nodosité (où les bactéries occupent physiquement les cellules végétales au sein de la nodosité) afin d'étudier en détail la fixation biologique de l'azote. Toutefois, cet organe est opaque et rempli de la protéine végétale rouge nommée leghémoglobine, ce qui rend les méthodes d'imagerie traditionnelles difficiles à mettre en œuvre.
Les techniques d'imagerie utilisées par le passé étaient destructives. L'incision au paraffin, l'incision au vibratome et l'incision cryogénique ont été utilisées pour produire des sections de tissus, mais elles perturbent l'état natif du tissu et introduisent des artefacts qui compliquent la reconstruction tridimensionnelle (3D)6,7,8,9,10. La reconstruction à partir de sections de tissu de nodules inclus dans le paraffin a été réalisée avec succès, mais elle utilise des échantillons déshydratés et nécessite plus de 200 sections individuelles8. Sur des sections individuelles, certaines parties du système vasculaire peuvent être observées, mais pas la manière dont les faisceaux se divisent et s'enroulent autour du nodule. Diverses techniques de marquage et de coloration fluorescentes ont été appliquées sur des sections de tissus avant microscopie confocale, mais elles présentent généralement les problèmes suivants8,9,10 : (i) le tissu des nodules végétaux est fortement autofluorescent, (ii) de nombreuses méthodes nécessitent un éclaircissement du tissu avant l'imagerie, (iii) la coloration fluorescente peut endommager le tissu du nodule, (iv) l'inoculation des plantes avec des bactéries marquées par la protéine verte fluorescente (GFP) induit un stress qui affecte à la fois la croissance de la plante et la formation des nodules, et (v) les nodules natifs sont trop gros pour permettre de façon simple la section complète de l'échantillon5,11.
Couramment utilisée dans les contextes médicaux, l'imagerie par tomodensitométrie (CT) est employée à des fins diagnostiques et thérapeutiques12,13. Une version miniaturisée de cette technique, la microtomographie aux rayons X (microCT), est une méthode d'imagerie permettant une visualisation tridimensionnelle (3D) non destructive de petits échantillons. Alors que la CT fait tourner l'appareil autour d'un sujet de grande taille, la microCT fait pivoter un sujet plus petit près de la source de rayons X, ce qui permet une résolution beaucoup plus élevée. La microCT a été appliquée à la biologie du développement animale, mais s'est également imposée comme un outil prometteur en biologie végétale6,10,14,15,16,17,18,19. De manière importante, la microCT et la tomographie aux rayons X basée sur synchrotron ont été largement utilisées en physiologie végétale pour étudier l'embolie du xylème et pour croiser la validation d'estimations basées sur l'imagerie avec des mesures hydrauliques conventionnelles20,21,22. En imagerie des organes intacts à des échelles sans découpage physique, la microCT préserve les relations spatiales au sein de tout le nodule. Grâce à des agents de contraste appropriés, elle permet de distinguer des structures au niveau tissulaire telles que les faisceaux vasculaires et les zones d'infection, et peut pénétrer au-delà des limites imposées par la diffusion de la lumière dans les approches optiques conventionnelles, ce qui est particulièrement précieux pour les nodules opaques et autofluorescents. Les échantillons peuvent également être rescannés, intégrés à des protocoles corrélés ultérieurs après traitement pour microscopie optique ou électronique, ou archivés pour des analyses futures. Bien que quelques études aient utilisé la microCT et la CT aux rayons X basée sur synchrotron pour examiner les nodules racinaires du soja, aucune description détaillée ne couvre l'ensemble du processus, de la récolte et de la coloration des nodules jusqu'à l'imagerie et la reconstruction, notamment pour des nodules plus petits comme ceux de la luzerne6,14. Le contraste aux rayons X dépend de la densité tissulaire, et la plupart des tissus végétaux sont de faible densité et peu atténuants pour les rayons X. En l'absence d'agent de contraste, les nodules ne peuvent pas être distingués du fond sur un microCT conventionnel de laboratoire. Nous avons utilisé l'acide phosphotungstique (PTA), un colorant non spécifique qui se lie aux protéines et à d'autres biomolécules et qui s'est révélé efficace pour produire un fort contraste dans les tissus végétaux14.
Cette étude présente un protocole détaillé, étape par étape, d'imagerie microCT des nodosités racinaires de légumineuses en utilisant la luzerne comme modèle, sur un système conventionnel en laboratoire qui constitue une alternative plus accessible à la microscopie à rayons X (XRM) et aux plateformes basées sur synchrotron6,14. Ce flux de travail inclut des instructions spécifiques pour la récolte des nodosités sur la racine, la fixation, la coloration, l'amélioration du contraste, le montage, l'acquisition, la reconstruction 3D et l'analyse (Figure 1). Entre ces étapes, nous fournissons des paramètres détaillés afin d'assurer un montage stable, la rétention d'humidité et un bon contraste. En définitive, ce pipeline microCT constitue une méthode reproductible permettant une visualisation non destructive et à haute résolution de caractéristiques histologiques 3D, incluant l'organisation tissulaire globale, l'occupation bactérienne des cellules végétales, les zones distinctes de fixation de l'azote et les faisceaux vasculaires des nodosités racinaires entières de luzerne à l'état natif. Nous pensons que ce protocole pourra être adapté à d'autres espèces de légumineuses, offrant aux chercheurs une méthode pratique pour visualiser intégralement la structure et l'organisation tridimensionnelles de cet organe racinaire très important.
Protocole
1. Récolte et fixation des nodules
- Utilisez un scalpel (voir Tableau des matériaux) pour effectuer une incision droite à travers la racine de chaque côté du nodule d'intérêt, en laissant le nodule attaché à la racine (Figure 2).
- Transférez huit à douze nodules dans un flacon en verre de 20 mL contenant 10 mL d'éthanol à 70 % (v/v) (voir Tableau des matériaux).
2. Coloration des nodosités
- Préparer une solution de PTA à 1 % (p/v) dans de l'éthanol à 70 % en ajoutant 2 g de poudre de PTA dans 200 mL d'éthanol à 70 % dans un flacon carré de 200 mL à large ouverture (voir Tableau des Matériaux). Agiter jusqu'à dissolution complète, puis conserver à 4 °C. Préparer la solution de coloration un jour avant utilisation.
- Éliminer l'éthanol à 70 % utilisé lors de la fixation et le remplacer par 10 mL de solution de PTA à 1 % (voir Tableau des Matériaux).
- Placer le flacon en verre sur un agitateur orbital à température ambiante à 80 tr/min pendant 4 semaines. Remplacer la solution de coloration par 10 mL de solution fraîche de PTA à 1 % chaque semaine (voir Tableau des Matériaux, Figure 2).
3. Montage des nodules
- Faites fondre la paraffine à l’aide d’un chauffe-ballon à 100 °C dans un bécher en verre ouvert de 100 mL (voir Tableau des matériaux).
- Sélectionnez des embouts de pipette de 200 µL pour l’encapsulation des échantillons. Scellez les embouts à l’extrémité étroite en les trempant légèrement (1–2 mm) dans la paraffine fondue (voir Tableau des matériaux).
- Rincez l’échantillon dans 2 mL d’éthanol à 70 % dans une boîte de culture micropuits de 35 mm pendant 5 min (voir Tableau des matériaux).
- Ajoutez environ 0,2 g d’agarose à bas point de fusion dans un ballon Erlenmeyer de 25 mL et mélangez avec 20 mL d’eau déminéralisée pour obtenir une solution d’agarose à 1 % (p/v) à bas point de fusion. Chauffez sur un chauffe-ballon à 50 °C et agitez plusieurs fois jusqu’à dissolution complète. Placez ensuite le ballon dans un bain-marie réglé à 40 °C (voir Tableau des matériaux).
- Ajoutez environ 25 µL d’agarose à 1 % à bas point de fusion dans les embouts de pipette scellés placés à l’envers et laissez refroidir pendant 1 min (voir Tableau des matériaux).
- Prenez un nodule et transférez-le dans l’embout de pipette à l’aide de pinces fines afin de l’immobiliser dans l’agarose à 1 % à bas point de fusion. Utilisez un embout de chargement de gel pour rapprocher le nodule autant que possible du côté scellé à la paraffine de l’embout de pipette, sans endommager le nodule racinaire (voir Tableau des matériaux).
- Placez les embouts contenant les nodules racinaires dans un support afin de permettre la solidification de l’agarose à bas point de fusion. Une fois solidifiée, scellez l’extrémité ouverte des embouts de pipette avec du Parafilm pour conserver l’humidité (voir Tableau des matériaux). Conservez l’échantillon au réfrigérateur à 4 °C et analysez les échantillons encapsulés dans la semaine.
4. Imagerie par microCT
- Monter les embouts de pipette à l’envers sur un support d’échantillon de taille appropriée afin de permettre un positionnement aussi proche que possible de la source de rayons X et garantir un centrage précis de l’échantillon (voir Tableau des matériaux).
- Ouvrir le logiciel de tomographie. Visser fermement l’échantillon sur le porte-échantillon, puis sur le plateau de rotation du microCT (voir Tableau des matériaux, Figure 3, Figure supplémentaire 1).
- Activer la vue caméra et la source de rayons X, puis allumer l’écran de visualisation continue des rayons X (Figure supplémentaire 1).
- Régler la hauteur de l’échantillon verticalement pour amener la région d’intérêt au centre de l’écran de visualisation continue des rayons X. Noter cette hauteur pour une utilisation ultérieure à l’étape 4.10 (Figure supplémentaire 1).
- Avec un binning de 512 × 512, régler la taille du pixel (voir Tableau supplémentaire 1) de sorte que l’échantillon occupe la majeure partie du champ de vision de la vue continue des rayons X, en laissant un peu d’espace vide de chaque côté (Figure supplémentaire 1).
- Centrer l’échantillon sur l’écran de visualisation continue des rayons X en effectuant une rotation tous les 45° et en ajustant le centrage à chaque fois (Figure supplémentaire 1).
- Changer le binning à 2048 × 2048 (voir Tableau supplémentaire 1, Figure supplémentaire 1).
- Dans le menu Modes de balayage, choisir aucun filtre et régler la tension à 50 kV et le courant à 40 µA (voir Tableau supplémentaire 1, Figure supplémentaire 1).
- Effectuer une correction de champ plat en descendant l’échantillon à 68 mm afin qu’il ne soit plus dans le champ de vision de l’écran de visualisation continue des rayons X. Désactiver la Correction de champ plat et régler le Temps d’exposition de manière à ce que la transmission moyenne des rayons X soit de 55 %. Réactiver la Correction de champ plat (voir Tableau supplémentaire 1, Figure supplémentaire 1).
- Replacer l’échantillon à la hauteur déterminée à l’étape 4.4 (Figure supplémentaire 1).
- Dans Options de balayage, définir le nom du fichier et l’emplacement du dossier (Figure supplémentaire 1).
- Régler l’angle de rotation à 0,200°. Définir la Moyenne par image à 3 et le Mouvement aléatoire à 30. Choisir un balayage à 360° (voir Tableau supplémentaire 1, Figure supplémentaire 1).
- Si souhaité, ajuster la Largeur partielle pour exclure l’espace vide excessif et réduire la taille des données (Figure supplémentaire 1).
- Cliquer sur Balayer pour démarrer l’acquisition (Figure supplémentaire 1).
5. Reconstruction d'image
- Ouvrez le logiciel de reconstruction d'images et chargez toutes les projections 2D provenant du scan (voir Tableau des matériaux, Fig. 4).
- Cliquez sur Aperçu pour visualiser les résultats de la reconstruction à l'emplacement de la ligne verte (Figure supplémentaire 2).
- Ajustez l'histogramme dans l'onglet Sortie. Supprimez la zone plate à droite et conservez la valeur à 0 ou légèrement inférieure à 0 sur la gauche (Figure supplémentaire 2).
- Dans l'onglet Démarrer, cliquez sur Ajustement fin pour le post-alignement. Commencez avec l'étape Paramètre à un et le Nombre d'essais à cinq. Cliquez sur Démarrer puis sur OK. Lorsque les résultats apparaissent dans l'onglet Sortie, cliquez sur la fenêtre prv et utilisez les flèches pour parcourir les résultats afin de choisir le meilleur alignement. Laissez l'image affichée sur la meilleure reconstruction (Figure supplémentaire 2).
- Activez la région d'intérêt (ROI) dans l'onglet Sortie en cochant la case à côté de « Utiliser la ROI ». Choisissez cercle comme forme de la ROI. Ajustez la taille de la ROI à celle de l'échantillon à travers le volume de données en retournant à l'onglet Démarrer et en déplaçant la ligne verte pour prévisualiser différents emplacements. Laissez un espace vide autour de l'échantillon (Figure supplémentaire 2).
- Revenez à l'onglet Démarrer. Déplacez les lignes rouges en haut et en bas pour supprimer les zones inutiles dans les données de reconstruction. Vérifiez qu'aucune donnée importante n'a été exclue en déplaçant la ligne verte près des lignes rouges et en prévisualisant les reconstructions dans l'onglet Sortie (Figure supplémentaire 2).
- Dans l'onglet Sortie, enregistrez la reconstruction sous forme d'images TIFF (16 bits) à l'emplacement souhaité (Figure supplémentaire 2).
- Retournez à l'onglet Démarrer et cliquez sur Démarrer (Figure supplémentaire 2).
6. Visualisation 3D
- Ouvrir le logiciel Dragonfly (voir Tableau des matériaux).
NOTE : Pour plus d'informations sur Dragonfly et ses fonctionnalités, veuillez consulter https://dragonfly.comet.tech/ - Importer les images TIFF reconstruites.
- Sélectionner toutes les images et vérifier que l'espacement des images correspond à la Taille des pixels de l'image mise à l'échelle indiquée dans le fichier texte du scan (Figure supplémentaire 3).
- Ajuster le niveau de fenêtrage pour obtenir une vue 3D présentant un bon contraste (Figure supplémentaire 3).
- Parcourir les différents plans de coupe 2D (XY, transversal ; XZ, coronal ; YZ, sagittal) (Figure supplémentaire 3).
- Faire un clic droit sur l'image et exporter une capture d'écran de la vue afin de sauvegarder les coupes souhaitées (Figure 4).
Résultats
Nous avons récolté deux nodosités racinaires chacune sur trois plantes de M. sativa. Deux nodosités ont été utilisées pour comparer les durées de coloration, et quatre ont été imagées après une coloration complète de 28 jours avec du PTA à 1 % dans de l'éthanol à 70 % afin d'améliorer le contraste. En utilisant de l'agarose à bas point de fusion à 1 % comme milieu de montage dans les embouts de pipette, nous avons obtenu un environnement de montage présentant une faible densité aux rayons X entourant l'échantillon. La solution de coloration a permis d'augmenter efficacement le contraste du tissu végétal (Figure 5A,B, Figure supplémentaire 4). Le signal provenant de l'échantillon a pu être facilement distingué du fond et de l'embout de pipette grâce à l'histogramme des données, permettant une visualisation 3D sans obstacle de la structure externe et interne de la nodosité racinaire entière (Figure 5A,B).
L'épiderme externe est visible, mais il présente un contraste moindre par rapport aux autres tissus (Figure 5C–E). En revanche, les faisceaux vasculaires sont nets et bien connectés du bas vers le haut de l'échantillon (Figure 5A,B). Sur des coupes transversales, on peut clairement observer le nombre et la division de ces faisceaux (Figure 5C). De plus, le tissu interne présente un bon contraste, permettant l'identification du cortex et des vacuoles végétales (Figure 5C–E). Le fort contraste facilite également la reconnaissance des cellules infectées et non infectées (Figure 5C–E). Les coupes coronales et sagittales révèlent la répartition des zones méristématique, d'infection et de différenciation (Figure 5D). Vidéo supplémentaire 1 montre une vue à 360° d'un nodule reconstruit en 3D.
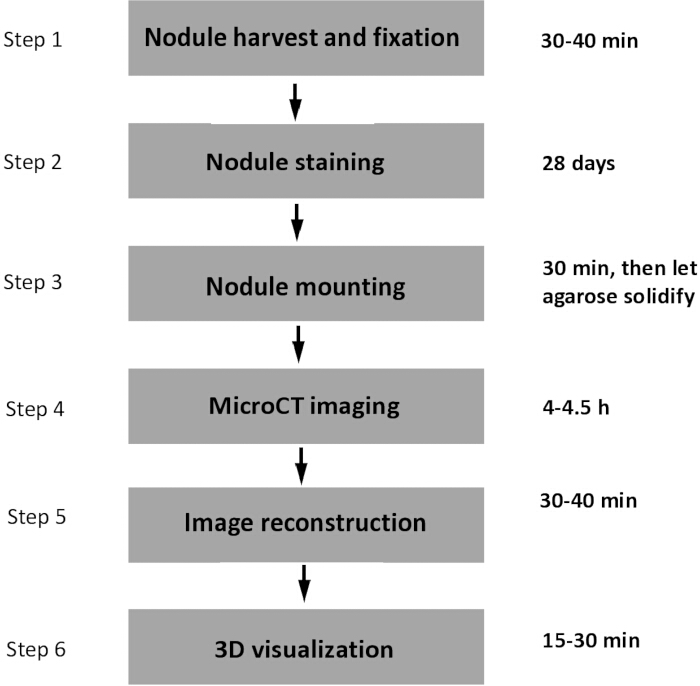
Figure 1 : Schéma du protocole. Aperçu du déroulement du protocole utilisant la microCT pour l'imagerie des nodosités racinaires des légumineuses, ainsi que la durée requise pour chaque étape. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
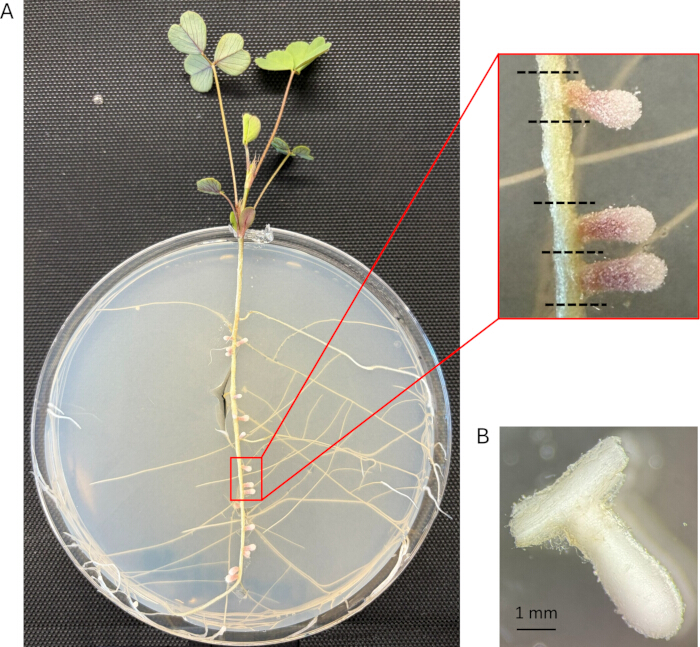
Figure 2 : Nodules racinaires de M. sativa pour ce protocole. (A) Plante de M. sativa à 28 jours après inoculation avec les bactéries S. meliloti (28 jpi). Les lignes pointillées noires représentent les lignes de coupe suggérées pour l'excision des nodules représentés. Deux nodules ont été excisés par plante pour trois plantes, et quatre échantillons ont été analysés. (B) Nodule de M. sativa à 28 jpi après 4 semaines de coloration au PTA. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
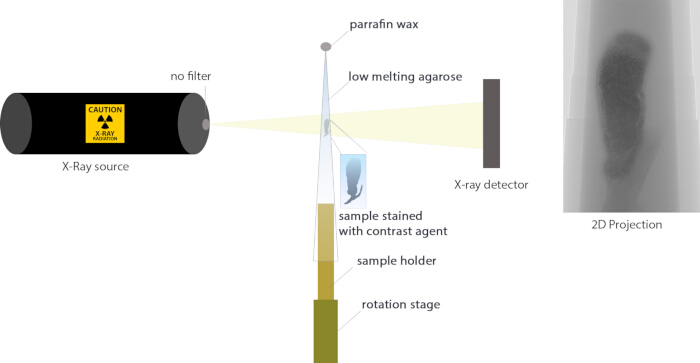
Figure 3 : Aperçu du montage de l'échantillon pour la micro-TDM. Le nodule racinaire marqué avec un agent de contraste est stabilisé dans de l'agarose à bas point de fusion à l'intérieur d'une pointe de micropipette. La pointe de micropipette est scellée à une extrémité avec de la cire de paraffine et fixée sur le plateau rotatif à l'intérieur de l'appareil de micro-TDM. La source de rayons X (sans filtre) se trouve d'un côté de l'appareil, et les rayons traversent l'échantillon pour atteindre le détecteur de rayons X situé de l'autre côté. L'analyse produit une projection 2D basée sur la densité tissulaire. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
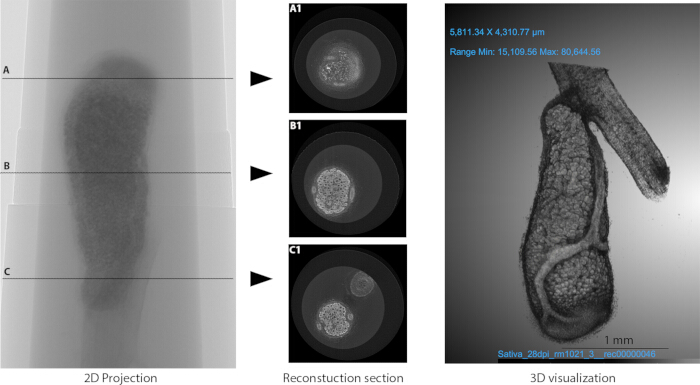
Figure 4 : Exemple de reconstruction d'image et de visualisation en 3D. (Gauche) Projection 2D. (Milieu) Section reconstruite. A1, B1 et C1 montrent des sections transversales reconstruites aux emplacements A, B et C de la projection 2D microCT. (Droite) Une visualisation en 3D du nodule racinaire produite à partir des images reconstruites. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
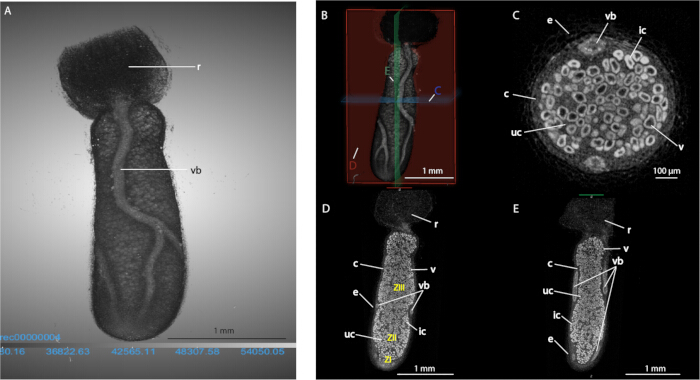
Figure 5: Images représentatives annotées. (A) Annoté Visualisation 3D de M. sativa nodule racinaire.B) Contours rouges, bleus et verts sur une image 3D montrant la coupe transversale (C), coronal (D) et sagittale (E) respectivement. Plans transversaux annotés (C), coronal (D) et sagittale (E) sections de M. sativa nodule racinaire. Abréviations : c – cortex ; e – épiderme ; ic – cellule infectée ; r – racine ; uc – cellule non infectée ; v – vacuole ; vb – faisceau vasculaire ; ZI – Zone I (méristématique) ; ZII – Zone II (infection) ; ZIII – Zone III (différenciation). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Figure supplémentaire 1. Captures d'écran du logiciel pour l'imagerie microCT. (A1) Ouvrir et fermer la porte du plateau. (A2) Activer la vue de la caméra. (A3) Allumer la source de rayons X. (A4) Activer la vue continue aux rayons X. (A5) Ajuster la hauteur de l'échantillon. (A6) Ajuster la taille des pixels. (A7) Faire tourner l'échantillon. (A8) Changer le regroupement de pixels (binning). (A9) Changer le filtre. (A10) Options pour accéder aux modes de numérisation. (A11) Régler la tension et le courant de la source de rayons X. (A12) Double-cliquer pour désactiver la correction de champ plat. (A13) Options de numérisation. (B1) Correction de champ plat désactivée. (B2) Options pour accéder aux modes de numérisation. (B3) Transmission moyenne aux rayons X. (B4) Ajuster le temps d'exposition. (B5) Mettre à jour les champs plats. (C1) Nommer le fichier et choisir l'emplacement de sauvegarde des données. (C2) Régler l'incrément de rotation, la moyenne des images, le mouvement aléatoire et la numérisation à 360 degrés. (C3) Ajuster la largeur partielle. (C4) Démarrer la numérisation.Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 2. Captures d'écran du logiciel pour la reconstruction d'images. (A1) Choisissez l'emplacement de prévisualisation de l'échantillon. (A2) Prévisualisation de l'échantillon. (A3) Réglage fin des paramètres. (A4) Définissez le nombre d'essais et le pas des paramètres pour l'alignement postérieur. (A5-6) Parties supérieure et inférieure de la zone de reconstruction. (A7) Démarrer la reconstruction. (B1) Ajuster le contraste. (B2) Visualiser et parcourir les résultats de l'alignement postérieur. (B3) Créer une région d'intérêt circulaire (ROI). (B4) Choisissez le format de fichier et l'emplacement d'enregistrement des données.Veuillez cliquer ici pour télécharger ce fichier.
Figure suplémentaire 3. Captures d'écran du logiciel pour la visualisation 3D. (A) Informations sur l'espacement des images. (B) Outils de sélection, de rotation et de zoom (en haut). Réglage du niveau de fenêtre pour le contraste (en bas). (C) Affichage de l'échelle (en haut). Changer la couleur de fond (en bas). Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 4. Reconstruction par microCT après coloration au PTA pendant 14, 17 et 28 jours. (A) Section reconstruite de M. sativa après 14 jours de coloration au PTA, montrant un bruit dans la couche externe (n = 1). (B) Section reconstruite de M. sativa après 17 jours de coloration au PTA, montrant un contraste plus élevé dans la couche externe mais une moindre netteté à l'intérieur par rapport à (A) (n = 1). (C) Section reconstruite de M. sativa après 28 jours de coloration au PTA, montrant un contraste plus élevé dans les couches interne et externe par rapport à (A) et (B) (n = 4).Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Paramètres pour l'imagerie microCT.Veuillez cliquer ici pour télécharger ce fichier.
Vidéo supplémentaire 1 : Vidéo du nodule en 3D.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Voici quelques recommandations concernant la préparation des échantillons et la coloration. Lors de la préparation des échantillons pour l'imagerie microCT, l'excision minutieuse des nodules est essentielle pour préserver l'intégrité structurelle. Nous recommandons de conserver un petit segment de racine de chaque côté du point d'attachement du nodule afin de maintenir le contexte spatial et de minimiser les dommages tissulaires. L'utilisation d'un agent de contraste est cruciale pour améliorer l'atténuation des rayons X et visualiser les structures anatomiques internes14. Une étude antérieure utilisant la coloration par l'acide phosphotungstique (PTA) a montré qu'une durée minimale de coloration de 14 jours est nécessaire pour obtenir un contraste suffisant chez différentes espèces végétales et types de tissus, sans signe de surcoloration14. Dans cette étude, des nodules racinaires de soja induits par Bradyrhizobium (fixés à 14 jours post-infection) avaient été colorés pendant 35 jours14. En utilisant cette plage (14 à 35 jours) comme référence, nous avons réalisé des essais préliminaires de coloration sur nos propres échantillons de nodules à plusieurs intervalles (14, 17 et 28 jours) et comparé le contraste des images obtenues. Une durée de coloration de 28 jours a été retenue pour ce protocole, car elle offrait un meilleur contraste, des limites cellulaires plus nettes et une coloration plus uniforme par rapport aux durées plus courtes (Figure supplémentaire 4). Nous précisons que les reconstructions à 14 et 17 jours proviennent d'un seul nodule et non d'une étude systématique avec réplicats, tandis que la condition à 28 jours inclut les quatre nodules scannés, et la durée de coloration devrait être ajustée selon la résolution requise pour l'étude. Une période de 28 jours n'est toutefois pas brève. Comme suggéré dans des études antérieures, la coloration assistée par micro-ondes pourrait favoriser la pénétration du PTA et ainsi réduire la durée nécessaire de coloration14. Des agents à base d'iode, tels que la solution de Lugol, sont également utilisés pour améliorer le contraste dans les tissus végétaux23,24. Nous avons choisi le PTA en raison de ses performances démontrées sur les tissus nodulaires et nous n'avons pas comparé différents agents de coloration, l'objectif principal de cette étude étant d'établir un protocole unique et reproductible14. De futures études devraient tester d'autres colorants sur diverses espèces végétales et types de tissus.
Un encastrement adéquat est tout aussi important. L'échantillon doit rester entièrement recouvert d'agarose à bas point de fusion afin d'éviter la déshydratation et de préserver sa morphologie naturelle. Après l'encastrement, les échantillons doivent être conservés toute une nuit à 4 °C pour garantir la solidification complète de l'agarose et assurer la stabilité durant le balayage. L'échantillon monté doit être solidement fixé sur le plateau de balayage afin d'éviter les dérives ou les artefacts dus aux vibrations pendant l'acquisition des données.
La microCT permet une visualisation tridimensionnelle non destructive de tissus complets de nodosités à une résolution plus faible que celle de la microscopie optique et de la microscopie électronique. La microtomographie à rayons X (XRM) et la tomographie par rayons X basée sur synchrotron fournissent généralement des images de qualité et de résolution supérieures à celles de la microCT conventionnelle. La tomographie par rayons X basée sur synchrotron permet également de scanner directement des échantillons frais non colorés, car le flux élevé de photons et la cohérence du faisceau autorisent une acquisition rapide et un contraste suffisant sans agents de contraste6. La comparaison directe avec Duncan et al. (2022)14 et Nakhforoosh et al. (2024)6 est limitée par des différences dans la conception des études : espèce (soja contre Medicago sativa), type de nodosité (déterminé contre indéterminé) et modalité d'imagerie (XRM et tomographie par rayons X basée sur synchrotron contre microCT conventionnelle). Néanmoins, la taille nominale du pixel de nos reconstructions de nodosités est d’environ 1,75 µm, plus fine que celle du scan de nodosité de Duncan et al. (2022)14 (2,2 µm, Figure 4A), bien que leurs reconstructions montrent encore une plus grande clarté que les nôtres. Cela reflète probablement que la résolution effective dépend de plus que la taille nominale du pixel ; l'agrandissement optique des objectifs de l'XRM, la sensibilité du détecteur, la stabilité de la source, la qualité de la caméra et les méthodes de reconstruction y contribuent tous. Bien que des structures volumineuses et peu denses, telles que les vacuoles, soient facilement distinguables, comme illustré ici, l'occupation individuelle des cellules par les bactéroïdes ainsi que les organites plus petits ou moins denses ne le sont pas, et les processus biologiques dynamiques ne peuvent pas être capturés en temps réel. Les agents de contraste à base de PTA et d'iode sont non spécifiques et ne permettent pas d'identifier les molécules. Les questions au niveau subcellulaire nécessiteront toujours la microscopie à fluorescence ou la microscopie électronique. Ces approches d'imagerie sont complémentaires, la microCT étant particulièrement adaptée à la morphologie d'organes entiers et à l'architecture tissulaire en 3D, fournissant ainsi un contexte pour la microscopie optique et électronique, qui permettent d'explorer des détails structurels et moléculaires plus fins.
Nous avons reproduit avec succès ce protocole sur des nodosités prélevées à des stades temporels et de développement similaires chez M. sativa inoculé avec d'autres souches de S. meliloti, ainsi que chez M. truncatula et Trigonella foenum-graecum inoculés avec plusieurs souches différentes de S. meliloti (données non publiées). Nous n'avons pas testé de nodosités à différents stades de développement, car notre objectif était de caractériser et de fournir un protocole reproductible pour des nodosités matures assurant la fixation de l'azote. Néanmoins, ce protocole devrait être applicable à des nodosités à stades de développement variés, la limitation la plus pertinente étant la taille des nodosités. Les nodosités que nous avons scannées mesuraient environ 2,5 mm de longueur (Tableau supplémentaire 1). Sur le microCT utilisé dans cette étude, la taille minimale que nous recommandons est de 1 mm de longueur. La taille des échantillons pouvant être imagés dépendra de l'appareil utilisé, car les grossissements peuvent varier.
Des preuves récentes suggèrent que le taux d'occupation au sein de la nodosité est un paramètre important qui corrèle directement avec l'efficacité de la fixation de l'azote. Les nodosités possédant une proportion plus élevée de cellules infectées ont démontré une meilleure fixation de l'azote que celles dans lesquelles moins de cellules sont occupées par des bactéries25. De plus, la santé de la nodosité dépend de l'importance du réseau vasculaire, et un réseau vasculaire perturbé ou limité indique des nodosités défectueuses ainsi qu'une santé réduite de la plante26. Étant donné la possibilité de visualiser l'occupation et l'architecture vasculaire, la microtomographie à rayons X (microCT) comble un vide important dans le domaine de la fixation de l'azote. Ce protocole rend accessible de manière non destructive la visualisation systématique des structures internes et externes des nodosités racinaires, structures qui constituent des déterminants directs de l'efficacité de fixation sous-tendant l'approvisionnement symbiotique en azote des cultures.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
Remerciements
Nous tenons à remercier Stephanie Sage pour son aide dans la préparation des plantes. Xia Zhao a aidé à l'encapsulation des échantillons. Nous sommes reconnaissants envers Madi Mitchell pour les discussions initiales sur le projet. Nous remercions Tom Kleist et Kexi Yi pour leurs conseils en matière d'interprétation des données. Nous remercions également Keith Duncan (Donald Danforth Plant Science Center) pour ses conseils concernant le protocole. Ce projet est financé par le Stowers Institute for Medical Research.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Vial en verre de 20 mL | Sigma-Aldrich | Z190527 | Utilisé pour contenir les nodules lors de la fixation et de la coloration. |
| Pointes de pipette de 200 µL | Fisherbrand | 02-717-144 | Utilisé pour contenir les nodules lors de l'imagerie. |
| Boîte de culture micropuits de 35 mm | Fisher Scientific | 507532924 | Utilisé pour laver les nodules après coloration. |
| Logiciel Dragonfly | Comet Technologies Canada Inc. | V2022.2 | Utilisé pour visualiser et manipuler des reconstructions 2D dans une vue 3D. |
| Éthanol | Decon Labs | V1001 | Utilisé pour fixer et laver les nodules. |
| Pinces fines | Dumont | AA-Inox-E | Utilisé pour ajuster les nodules dans la pointe de pipette. |
| Pointe de chargement de gel | Corning (Costar) | 4853 | Utilisé pour manipuler le nodule à l'intérieur de l'agarose dans la pointe de pipette. |
| Plaque chauffante | Mirak | SP72725 | Utilisé pour faire fondre la paraffine et dissoudre l'agarose à bas point de fusion. |
| Agarose à bas point de fusion | GeneMate | 490001-602 | Utilisé pour l'inclusion des nodules racinaires afin de maintenir leur orientation et leur humidité. |
| MicroCT | Bruker | Bruker SkyScan 1272 | Utilisé pour scanner le nodule. |
| Logiciel NRecon | Bruker | V2.2.0.6 | Utilisé pour la reconstruction des projections 2D. |
| Agitateur orbital | VWR | 77591-858 | Utilisé pour agiter le nodule racinaire afin d'accélérer la pénétration du colorant. |
| Paraffine | McCormick Scientific | 39503002 | Utilisé pour sceller l'extrémité étroite de la pointe de pipette. |
| Parafilm | Alkali Scientific | PM996 | Utilisé pour sceller les pointes de pipette afin d'empêcher l'échantillon de se dessécher. |
| Acide phosphotungstique | Electron Microscopy Science (EMS) | 19500 | Utilisé pour la coloration des nodules. |
| Support d'échantillon - L 3,4 cm D 0,63 mm | Bruker | Set from Bruker with machine | Utilisé pour maintenir la pointe de pipette et l'échantillon pendant l'imagerie. |
| Lame de scalpel | Fisher Scientific | S07890 | Utilisé pour récolter les nodules racinaires. |
| Logiciel Skyscan | Bruker | v1.5.1.0 | Utilisé pour manipuler le MicroCT. |
| Bain-marie | Boekel Grant | 640013001 | Utilisé pour maintenir l'agarose à l'état liquide pendant l'inclusion des nodules. |
Références
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible