Ce protocole décrit des procédures progressives permettant d'évaluer la résistance de l'organisme entier au stress thermique, au stress oxydatif, au stress du réticulum endoplasmique et au stress mitochondrial. Il fournit également des méthodes pour évaluer si les neurones jouent un rôle dans la résistance au stress.
Article de méthode
Méthodes de mesure de la résistance à plusieurs facteurs de stress chez Caenorhabditis elegans
Dans cet article
Résumé
Résumé
Les organismes sont exposés à divers facteurs de stress environnementaux et cellulaires tout au long de leur vie. La capacité à résister à différents types de stress est étroitement corrélée à la durée de bonne santé et à la longévité des organismes. Caenorhabditis elegans (C. elegans) constitue un organisme modèle idéal pour mesurer la résistance au stress et faciliter l'étude des mécanismes moléculaires conservés qui sous-tendent cette résistance. C. elegans possède également un système nerveux simplifié, fondamental pour comprendre les bases neuronales de la résistance au stress. Nous présentons ici des méthodes permettant de mesurer la résistance au stress chez C. elegans dans quatre conditions de stress différentes : stress thermique, stress du réticulum endoplasmique (ER), stress mitochondrial et stress oxydatif. Des cohortes de vers sont placées sur des boîtes de Pétri contenant un milieu solide à base d'agar, puis exposées à des températures extrêmes pour induire un stress thermique, ou à un agar contenant différentes concentrations de composés induisant un stress du réticulum endoplasmique, mitochondrial ou oxydatif. À titre d'exemple, nous avons mis en place des concentrations croissantes de chaque stress et déterminé la dose optimale afin d'observer les différences de résistance au stress entre une souche dont les neurones RIC ont été ablatés et une souche sauvage. Dans des conditions de stress, la survie des C. elegans est surveillée heure par heure ou jour après jour, et des courbes de survie sont tracées et comparées afin d'identifier les différences de capacité de résistance au stress entre diverses souches de C. elegans. Ces méthodes offrent une approche reproductible pour évaluer la résistance à plusieurs facteurs de stress selon différentes doses et échelles de temps, chez des souches de C. elegans de type sauvage, mutantes ou modifiées au niveau neuronal, et contribuent également à révéler les mécanismes moléculaires et neuronaux sous-jacents à la réponse à de multiples stress.
Introduction
Les organismes subissent diverses contraintes environnementales tout au long de leur vie. La plupart des facteurs de stress, notamment la chaleur, l’hypoxie, les radiations, le stress oxydatif, le stress osmotique et le stress pathogène, provoquent des dysfonctionnements cellulaires et des déséquilibres de l’homéostasie, déclenchant ainsi des réponses intracellulaires au stress. Les organismes ont développé des voies de réponse au stress fortement conservées afin de faire face à des défis et à des facteurs de stress environnementaux dynamiques. Ces voies conservées incluent la réponse au choc thermique (HSR)1, la réponse aux protéines mal repliées (UPR) dans le réticulum endoplasmique (ER) et les mitochondries2, ainsi que la réponse au stress oxydatif3. Les régulateurs maîtres de ces différentes voies de réponse au stress, généralement des facteurs de transcription, induisent l’expression de gènes cibles afin de rétablir la protéostasie et favoriser la survie cellulaire4. Ces réponses comprennent la synthèse de chaperonnes qui replient les protéines mal conformées et l’élimination des protéines endommagées par dégradation protéique4. L’incapacité à activer les réponses au stress entraîne l’accumulation de protéines endommagées dans le cytoplasme ou les organites, conduisant à un dysfonctionnement cellulaire et tissulaire. Un déséquilibre des réponses cellulaires au stress a été associé à diverses maladies chroniques, allant de la neurodégénérescence au syndrome métabolique5,6. En revanche, une activation appropriée des voies de réponse au stress conduit à une amélioration de l’espérance de bonne santé et à une extension significative de la durée de vie7. Il est donc important d’étudier les mécanismes moléculaires de la résistance au stress afin d’exploiter les réponses protectrices pour améliorer la santé. Ainsi, il est nécessaire de mettre en place des méthodes et techniques reproductibles permettant de quantifier précisément la résistance au stress chez des animaux vivants.
Les découvertes des 15 dernières années ont révélé un rôle de la signalisation neuronale dans l'amélioration de la résistance au stress chez de nombreuses espèces8. Les premières observations ont montré que la réponse thermique (HSR) et la réponse à la protéine mal repliée du réticulum endoplasmique (UPR du RE) dans les neurones suffisent à activer la réponse au stress dans les tissus non neuronaux, établissant ainsi le concept de régulation non autonome cellulaire de la résistance au stress8,9,10. Depuis cette découverte initiale, des preuves croissantes ont montré que plusieurs voies de résistance au stress répondent à des signaux environnementaux et favorisent la résistance au stress par le biais de la signalisation neuronale. Plus précisément, la HSR10,11, l'UPR du RE12,13, la réponse aux protéines mal repliées mitochondriales (UPRmt)14,15 et la réponse au stress oxydatif3 favorisent chacune la résistance au stress de manière non autonome par l'intermédiaire des neurones. Le mécanisme de régulation non autonome cellulaire de la résistance au stress est conservé chez divers organismes, notamment la drosophile D. melanogaster16,17,18,19 et la souris20,21.
Afin de faciliter la recherche sur le rôle des neurones dans la résistance au stress sous l'effet de plusieurs facteurs de stress, nous présentons ici un protocole systématique permettant d'évaluer la résistance face à quatre types de stress régulés par les neurones : le stress thermique, le stress du réticulum endoplasmique, le stress mitochondrial et le stress oxydatif. C. elegans, un organisme modèle facile à manipuler, a été utilisé pour mesurer la résistance au stress face à ces quatre facteurs. L'utilisation de C. elegans dans des tests de résistance au stress permet non seulement d'étudier l'activation des réponses au stress au niveau cellulaire, mais également au niveau de l'organisme entier.
Les voies de réponse au stress activées par le stress thermique, le stress du réticulum endoplasmique, le stress mitochondrial et le stress oxydatif sont conservées et fonctionnellement importantes chez les organismes, y compris les humains22,23,24,25. Le stress thermique provoque le mauvais repliement et l'agrégation des protéines, et active la réponse au choc thermique, qui est essentielle pour maintenir l'homéostasie protéique26. La température environnementale physiologique de C. elegans est de 20 °C, et une température supérieure à 25 °C induit un stress thermique chez C. elegans27. Nous induisons un stress thermique à trois températures élevées et contraignantes : 30 °C, 35 °C et 37 °C.
Le RE est le site principal de synthèse et de repliement des protéines28. L’accumulation de protéines non repliées ou mal repliées dans la lumière du RE active la réponse aux protéines non repliées afin de rétablir l’homéostasie protéique29. Le stress du RE peut être induit par un composé chimique, la tunicamycine, qui bloque la glycosylation N-liée et provoque l’accumulation de protéines mal repliées dans la lumière du RE30. Une résistance accrue au stress induit par le mauvais repliement des protéines dans la lumière du RE indique une survie augmentée12. Nous exposons des vers à différentes concentrations de tunicamycine (25–200 µg/mL) et évaluons leur sensibilité en mesurant leur taux de survie.
Les mitochondries sont le centre métabolique cellulaire et les « centrales énergétiques » de la cellule. Les espèces réactives de l'oxygène (ROS) et les protéines mal repliées dans les mitochondries déclenchent la réponse mitochondriale au stress protéique et induisent un stress mitochondrial31. Le stress mitochondrial peut être induit par l'antimycine A, un inhibiteur du complexe mitochondrial III qui bloque le transfert d'électrons et provoque la production de ROS32. Nous utilisons différentes concentrations d'antimycine A (5–80 µg/mL) afin d'identifier une dose optimale pour le test de résistance au stress mitochondrial.
Le stress oxydatif est généralement induit par des toxines environnementales et par des radicaux libres cellulaires produits lors du métabolisme. Le stress oxydatif provoque des lésions des protéines, des lipides et de l'ADN chez tous les organismes.33Le paraquat, un herbicide qui transfère des électrons à l'oxygène et génère une quantité excessive de radicaux superoxyde, est un puissant inducteur du stress oxydatif.34. Nous appliquons quatre doses croissantes de paraquat (2,5 à 20 mM) et observons une gamme de survie maximale allant de 3 à 12 jours chez C. elegans.
Ces quatre conditions de stress permettent d'obtenir facilement des résultats hautement reproductibles concernant la résistance au stress chez C. elegans. Des méthodes d'évaluation de la résistance au stress ont déjà été décrites précédemment35,36,37,38,39,40. Contrairement à une revue publiée antérieurement qui résumait divers agents stressants et les analyses de survie35, cet article établit des protocoles détaillés, réalisables étape par étape, afin de mener à bien des tests de stress reproductibles et cohérents. Plusieurs protocoles publiés auparavant se concentraient sur un type spécifique de test de stress, comme le choc thermique36 ou le stress oxydatif38 ; en revanche, ce protocole décrit les quatre types différents de tests de stress : thermique, réticulaire (ER), mitochondrial et oxydatif. Les protocoles de test de stress rapportés précédemment utilisaient également des tests terminaux basés sur des capteurs fluorescents, tels que des capteurs transcriptionnels fluorescents spécifiques à certaines voies pour le stress réticulaire, mitochondrial et oxydatif40, ou la réponse au choc thermique39 ; alors que ce protocole repose sur des tests de survie afin de mesurer efficacement l'état général de santé de C. elegans. De manière importante, ce protocole inclut une titration des doses pour chacun des quatre tests, fournissant ainsi des références concernant la gamme de doses efficaces pouvant être choisies pour les tests de stress ; il optimise également l'échelle de temps (allant de quelques heures à plusieurs jours) dans les différents tests de stress ; en outre, nous présentons un nouveau rôle d’un neurone régulant plusieurs réponses au stress, à titre d'exemple pour évaluer si les neurones régulent la résistance au stress.
La mise au point d'un test de résistance au stress nécessite de choisir un agent stressant approprié et une métrique d'évaluation fiable. Les tests de survie chez C. elegans se sont révélés des outils puissants pour mesurer des processus physiologiques, tels que la durée de vie, la résistance au stress et les infections pathologiques. Un avantage majeur de l'utilisation de C. elegans dans les tests de survie réside dans la facilité de préparation et d'analyse de vers synchronisés et de même âge, grâce à leur autofécondation, leur grande taille de ponte et leur cycle de développement court de trois jours entre l'œuf et l'adulte jeune. Les mâles sont rares dans une population naturelle de C. elegans cultivés et ne sont donc généralement pas utilisés dans les tests de survie, y compris dans ce protocole, étant principalement employés pour des croisements génétiques35. Comparés à d'autres méthodes d'évaluation terminales (par exemple, les capteurs fluorescents, l'accumulation de protéines ou de lipides), les tests de survie permettent d'évaluer efficacement l'état de santé global de C. elegans et s'achèvent relativement rapidement, généralement en quelques heures à plusieurs semaines selon la dose des agents stressants. Nous utilisons les taux de survie comme indicateur principal de la résistance au stress chez différentes souches de C. elegans. La survie est déterminée par la motilité et la réponse à une stimulation mécanique douce ; l'absence de réponse à la stimulation sert à définir la mortalité dans les tests de stress chez C. elegans. Les tests de survie chez C. elegans peuvent être réalisés en milieu solide ou liquide contenant une source alimentaire bactérienne35. Toutefois, le milieu liquide n'est pas l'habitat naturel des vers, et ceux-ci sont contraints de s'agiter constamment en culture liquide, ce qui entraîne une courbe de survie plus courte41. Ici, nous utilisons un milieu solide pour évaluer les effets de différentes concentrations d'agents stressants sur la survie de vers de type sauvage et de mutants dont les neurones ont été ablatés. Ces données de titration en fonction de la concentration peuvent servir de guide à d'autres chercheurs réalisant des tests comparables de résistance au stress.
Protocole
Les expériences impliquant C. elegans ont été menées à l’université d’État du Kansas, à Manhattan, KS, États-Unis, conformément aux directives institutionnelles de biosécurité et de laboratoire. Étant donné que C. elegans est un organisme modèle invertébré, une approbation du comité d’éthique pour les animaux vertébrés n’était pas requise pour cette étude. Les détails de tous les réactifs, équipements, logiciels et souches utilisés sont indiqués dans le Tableau des matériaux.
1. Préparer des boîtes de milieu NGM (milieu de croissance pour nématodes) et préparer la souche Escherichia coli OP50
- Préparer les plaques NGM
- Prélever 3 g de NaCl, 17 g d'agar (poudre) et 2,5 g de peptone, ajouter 900 mL d'eau désionisée ultrapure (dd) H2O et compléter jusqu'à un volume final de 1 L, puis stériliser par autoclavage. Refroidir le milieu à environ 60 °C dans un bain-marie à 60 °C.
- Ajouter 1 mL de CaCl2 1 M (préparé dans de l'eau ddH2O et stérilisé par filtration), 1 mL de cholestérol à 5 mg/mL (préparé dans de l'éthanol et stérilisé par filtration), 1 mL de MgSO4 1 M (préparé dans de l'eau ddH2O et stérilisé par filtration) et 25 mL de tampon KP 1 M.
Pour préparer le tampon KP, mélanger 130 mL de K2HPO4 1 M avec 870 mL de KH2PO4 1 M préparés dans de l'eau ddH2O. Après un mélange complet, ajuster le pH à 6,0. Après préparation, le pH mesuré est généralement proche de 6,0 et aucun ajustement supplémentaire n'est nécessaire. La plage de pH acceptable pour le tampon KP est de 5,8 à 6,2, avec un pH cible de 6,0. Vérifier que le pH final est d'environ 6,0 avant utilisation. Si nécessaire, ajuster à pH 6,0 à l'aide de K2HPO4 1 M ou de KH2PO4 1 M. - Mélanger soigneusement et verser le milieu (NGM) dans les plaques (boîtes de Pétri). Pour les plaques de 60 mm, verser 10 mL de milieu NGM par plaque ; pour les plaques de 35 mm, verser 3 mL de milieu NGM par plaque. Laisser les plaques d'agar NGM à température ambiante (22–25 °C) sur une surface plane pendant au moins 24 h avant d'ensemencer la nourriture bactérienne.
ATTENTION : Lors de la préparation et du versement de l'agar NGM fondu, utiliser des gants résistants à la chaleur et des équipements de protection individuelle adaptés pour éviter les brûlures et l'exposition à des liquides chauds.
- Préparer la nourriture bactérienne Escherichia coli OP50 pour Caenorhabditis elegans
- Étaler des bactéries Escherichia coli OP50 sur une plaque d'agar Luria-Bertani (LB) et incuber à 37 °C pendant la nuit (plaques d'agar LB : ajouter 1 g de NaCl, 1 g de tryptone, 0,5 g d'extrait de levure et 1,5-2,0 g de poudre d'agar à 100 mL d'eau ddH2O, stériliser par autoclavage pendant 20 min, refroidir à 50-60 °C et verser le milieu dans les plaques. Placer sur une surface plane propre et laisser sécher).
- Inoculer une colonie unique dans 100 mL de milieu LB liquide (milieu LB : ajouter 1 g de NaCl, 1 g de tryptone et 0,5 g d'extrait de levure à 100 mL d'eau ddH2O, stériliser par autoclavage pendant 20 min. Refroidir à moins de 37 °C avant l'inoculation).
- Cultiver les bactéries dans un incubateur agité à 37 °C jusqu'à ce que la suspension bactérienne atteigne une densité optique à 600 nm (OD600) d'environ 0,3 dans une dilution 10 fois de la suspension bactérienne (100 µL de suspension bactérienne mélangés avec 900 µL de milieu LB). Récolter et conserver la suspension bactérienne à 4 °C. La nourriture bactérienne peut être conservée jusqu'à une semaine avant d'être ensemencée sur une plaque NGM40.
- Utiliser une pipette multipipette pour ensemencer les bactéries OP50 sur les plaques NGM. Ensemencer 200 µL pour les plaques d'agar de 60 mm et 100 µL pour les plaques d'agar de 35 mm. Laisser les plaques NGM ensemencées à température ambiante (~22–25 °C) sur une surface plane pendant au moins 24 h avant utilisation. Ne pas laisser les plaques à température ambiante plus de 48 h. Ranger les plaques ensemencées dans une boîte en plastique propre et les conserver à 4 °C.
REMARQUE : Si des plaques non ventilées sont utilisées, les bactéries OP50 ensemencées peuvent nécessiter un temps de séchage plus long.
ATTENTION : Manipuler les cultures d'E. coli OP50 selon les pratiques microbiologiques appropriées et porter une blouse de laboratoire, des gants et une protection oculaire. Désinfecter les surfaces de travail et éliminer les déchets bactériens conformément aux procédures de biosécurité institutionnelles.
2. Entretien et synchronisation de C. elegans
Le flux de travail de cette section est résumé dans la Figure 1A.
- Entretenir les vers à 20 °C sur des plaques NGM ensemencées avec OP50 en transférant les adultes sur de nouvelles plaques NGM ensemencées avec OP50 deux fois par semaine afin d'éviter la famine des vers. Placer 20 à 40 vers adultes gravides sur une plaque NGM fraîchement ensemencée avec OP50 à l’aide d’un cure-dent en platine, et retirer tout larve ou œuf transféré accidentellement avec les adultes gravides depuis la plaque d’origine. L’utilisation d’un nombre connu de vers gravides facilite une tenue de registre précise et garantit leur retrait complet à l’étape ultérieure (section 1.2).
NOTE : Un total de 20 à 40 vers gravides suffit à produire 80 à 120 œufs en 2 h, selon les caractéristiques d’une souche sauvage (N2). La ponte est optimale lorsque les adultes gravides sont au premier jour (jour 1) de l’âge adulte. Pour les souches ayant une fécondité plus faible ou plus élevée, ajuster en conséquence le nombre de vers gravides. L’objectif de cette étape est d’obtenir suffisamment d’œufs qui se développeront en vers synchronisés pour les tests de stress ultérieurs. - Après environ 2 h, retirer les vers gravides de la plaque. Compter le nombre de vers gravides retirés à cette étape et vérifier que les 20 à 40 vers gravides placés initialement sur la plaque ont bien été tous retirés.
- Incuber les plaques contenant les œufs à 20 °C jusqu’à ce que les vers atteignent le stade L4 tardif pour les tests de stress. Synchroniser les vers au stade L4 afin de minimiser la variabilité introduite par les différences d’âge adulte et de statut reproductif12,35,37,38,40,42,43. À 20 °C, les vers atteignent de manière uniforme le stade L4 tardif environ 54 à 58 h après la ponte sur des plaques d’agar solide chez la souche sauvage (observation personnelle et 36,40).
NOTE : Pour les souches présentant un retard de développement, ajuster le moment de la synchronisation au stade L4 tardif en fonction de leur taux de développement spécifique.
PRÉCAUTION : Manipuler C. elegans selon les pratiques microbiologiques appropriées et porter une blouse de laboratoire et des gants afin de minimiser l’exposition aux matières biologiques et d’éviter toute contamination.
3. Condition de stress et collecte des données
- Essai de stress thermique
Le flux de travail de cette section est résumé dans Figure 1B.- Synchroniser les vers au stade L4 tardif (section 2) et les maintenir à 20 °C. Transférer les vers synchronisés au stade L4 sur des plaques NGM de 35 mm ensemencées avec OP50 (section 1), en utilisant 4 plaques par groupe comme réplicats techniques, avec 30 à 35 vers par plaque. Se reporter à la section 4 pour la mise en place des réplicats biologiques.
- Placer les boîtes contenant les vers au stade L4 tardif à 30, 35 ou 37 °C incubateur. S'assurer que l'incubateur atteint la température réglée avant de placer à l'intérieur les boîtes contenant les vers analysés. La survie moyenne des vers de type sauvage à 30, 35 ou 37 °C varie de environ 4 h à 3 jours (Figure 2B–D) par rapport à une survie moyenne d'environ 20 jours en l'absence de stress physiologique (Figure 2A).
ÉTAPE CRITIQUE : Placer toutes les plaques de test côté gélose vers le bas, en une seule couche, dans le 35 °C incubateur pour permettre une équilibration rapide et uniforme de la température.
REMARQUE : Lors des tests de stress thermique à 30, 35 ou 37 °C, la plupart des vers ne pondent pas d'œufs. Dans les rares cas où des œufs sont pondus, aucun n'est observé éclore. Par conséquent, il n'est pas nécessaire de transférer les vers sur des boîtes fraîches. - Comptez le nombre de vers morts à chaque point temporel pour chaque plaque de réplicat technique et notez le nombre sur une feuille de saisie des données. La survie des vers est évaluée chaque heure sous 35 °C ou 37 °C stress thermique et une fois par jour sous 30 °C stress thermique. L'analyse est effectuée au microscope stéréoscopique à température ambiante. Pendant l'analyse, retirez uniquement la plaque en cours d'examen de l'incubateur ; toutes les autres plaques doivent rester à la température de stress thermique définie afin de minimiser toute interruption de l'exposition au stress thermique. Cette pratique permet de maintenir des conditions expérimentales constantes pour tous les échantillons.
ÉTAPE CRITIQUE : Afin de minimiser les interruptions de l'exposition au stress thermique, ne laissez chaque plaque hors de l'incubateur pendant plus de 3 min lors de chaque session d'évaluation. Selon la survie des vers à différents moments au cours du test de stress, l'évaluation d'une plaque à température ambiante prend généralement entre 30 s et 3 min. L'ordre d'évaluation est important, compte tenu du temps consacré à l'évaluation manuelle. Nous recommandons d'évaluer un réplicat technique de chaque condition successivement, jusqu'à ce que tous les réplicats techniques soient évalués pour l'ensemble des conditions. Par exemple, dans trois conditions/groupes (A, B et C) comportant chacune 4 plaques de réplicats techniques, organisez l'ordre d'évaluation comme suit : A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Évaluer la survie des vers en fonction de si une réponse motrice à une stimulation physique douce peut être observée. Les vers qui se déplacent activement sont considérés comme vivants, aucune stimulation physique n'étant alors nécessaire. Pour les vers qui n'exhibent pas de mouvement spontané, stimuler doucement les vers en touchant deux fois la région postérieure du corps avec une aiguille en platine. L'absence de réponse motrice est notée comme un décès, et le ver mort est retiré de la boîte après avoir été enregistré. Une observation d'environ 2 s après chaque contact suffit pour déterminer la présence d'une réponse motrice. Un compteur manuel est recommandé pour enregistrer le nombre de vers vivants et morts pendant le comptage, et ainsi réduire les erreurs de dénombrement. Afin de s'assurer que chaque ver est compté une seule fois et non plusieurs fois, placer une feuille plastique transparente quadrillée sous la boîte, ou tracer une grille sur le fond de la boîte afin de diviser la surface en sections pour le comptage.
REMARQUE : Remettre immédiatement les boîtes dans l'incubateur à condition thermique après le comptage. - Surveiller la survie des vers à intervalles réguliers jusqu'à ce que tous les animaux soient morts ou censurés selon les critères prédéfinis. Rassembler les données de survie enregistrées et les utiliser pour générer des courbes de survie destinées à une analyse ultérieure.
- Test de stress du réticulum endoplasmique
Le flux de travail de cette section est résumé dans Figure 1C.- Préparer des boîtes de milieu pour le test de stress du RE. Ajouter la solution mère de tunicalmycine (10 mg/mL dans du diméthylsulfoxyde (DMSO), stockée à –20 °C) dans le milieu NGM liquide (de la section 1.1.2) à une concentration finale de 25, 50, 100 ou 200 µg/mLPar exemple, pour 1 L de milieu d'essai du stress du RE, ajouter 2,5, 5, 10 ou 20 mL de solution mère de tunicamycine (10 mg/mL dans le DMSO) afin d'obtenir une concentration finale de 25, 50, 100 ou 200 µg/mL tunicamycine dans les boîtes de milieu. Si un témoin non traité est inclus dans le test, ajouter la même quantité de DMSO (2,5, 5, 10 ou 20 µL) au milieu de contrôle correspondant.
ÉTAPE CRUCIALE : Refroidir le milieu NGM stérilisé à l'autoclave à environ 55 °C tout en agitant, et ajouter de la tunicamycine à la concentration finale souhaitée. Mélanger soigneusement avant de verser 3 mL de milieu NGM contenant la tunicamycine dans chaque plaque de 35 mm. Ensemencer chaque plaque d'agar de 35 mm avec 100 µL bactéries OP50 (section 1.2). Les boîtes de milieu NGM ensemencées avec OP50 et contenant de la tunicycline peuvent être conservées à 4 °C pendant jusqu'à une semaine avant utilisation.
ATTENTION : La Tunicamycine est dangereuse et doit être manipulée sous une hotte chimique, en portant une blouse de laboratoire, des gants et une protection oculaire. Éviter tout inhalation ainsi que tout contact avec la peau ou les yeux. - Synchroniser les vers au stade L4 tardif (section 2) et les maintenir à 20 °C. Transférer les vers synchronisés au stade L4 sur des plaques NGM de 35 mm ensemencées avec OP50 et contenant de la tunicycline, en utilisant 4 plaques par groupe comme réplicats techniques, avec 30 à 35 vers par plaque. Se référer à la section 4 pour la mise en place des réplicats biologiques.
- Incuber toutes les plaques à 20 °C. Enregistrer quotidiennement le nombre de vers morts. La survie moyenne des vers de type sauvage à 25, 50, 100 ou 200 µg/mL la tétracycline varie entre environ 8 et 11 jours (Figure 2E,) par rapport à une survie moyenne d'environ 20 jours en l'absence de stress physiologique (Figure 2A).
REMARQUE : Dans le test de stress du RE induit par la tunicamycine, des œufs sont pondus, mais ils ne sortent pas des plaques d'agar contenant de la tunicamycine. Par conséquent, il n'est pas nécessaire de transférer les vers sur des plaques fraîches. - Comptez chaque jour le nombre de vers morts sur chaque plaque de réplicat technique et enregistrez le nombre sur une feuille de données de comptage. Le comptage est effectué manuellement sous un microscope stéréoscopique sur la paillasse, à température ambiante. Les vers en mouvement actif sont considérés comme vivants, aucune stimulation physique n'étant nécessaire. Pour les vers ne présentant pas de mouvement spontané, stimulez doucement les vers en touchant deux fois la région postérieure du corps avec un cure-dent en platine. L'absence de réponse est enregistrée comme un décès, et le ver mort est retiré de la plaque après avoir été comptabilisé. L'utilisation d'un compteur manuel est recommandée afin d'assurer un comptage précis. Pour s'assurer que chaque ver est compté une seule fois et non plusieurs fois, placez une feuille plastique transparente quadrillée sous la plaque, ou dessinez une grille sur le fond de la plaque afin de diviser la plaque en sections quadrillées pour le comptage.
REMARQUE : Remettre immédiatement les boîtes au thermostat après le comptage. Maintenir les vers au thermostat pendant environ 24 h avant le prochain comptage. - Surveiller quotidiennement la survie des vers jusqu'à ce que tous les animaux soient morts ou censurés selon les critères prédéfinis. Rassembler les données de survie enregistrées et les utiliser pour générer des courbes de survie destinées à une analyse ultérieure.
- Préparer des boîtes de milieu pour le test de stress du RE. Ajouter la solution mère de tunicalmycine (10 mg/mL dans du diméthylsulfoxyde (DMSO), stockée à –20 °C) dans le milieu NGM liquide (de la section 1.1.2) à une concentration finale de 25, 50, 100 ou 200 µg/mLPar exemple, pour 1 L de milieu d'essai du stress du RE, ajouter 2,5, 5, 10 ou 20 mL de solution mère de tunicamycine (10 mg/mL dans le DMSO) afin d'obtenir une concentration finale de 25, 50, 100 ou 200 µg/mL tunicamycine dans les boîtes de milieu. Si un témoin non traité est inclus dans le test, ajouter la même quantité de DMSO (2,5, 5, 10 ou 20 µL) au milieu de contrôle correspondant.
- Test de stress mitochondrial
Le flux de travail de cette section est résumé dans Figure 1D.- Préparer des plaques de milieu pour le test de stress mitochondrial. Ajouter la solution mère d'antimycine A (5 mg/mL dans du DMSO, stockée à –20 °C) dans le milieu NGM liquide (du point 1.1.2) à une concentration finale de 5, 10, 20, 40 ou 80 µg/mLPar exemple, pour 1 L de milieu d'essai de stress mitochondrial, ajouter 1, 2, 4, 8 ou 16 mL de solution mère d'antimycine A (5 mg/mL dans le DMSO) pour une concentration finale de 5, 10, 20, 40 ou 80 µg/mL antimycine A dans les boîtes de milieu. Si un témoin non traité est inclus dans le test, ajouter la même quantité de DMSO (1, 2, 4, 8 ou 16 µL) au milieu de contrôle correspondant.
ÉTAPE CRITIQUE : Refroidir le milieu NGM stérilisé à l'autoclave à environ 55 °C tout en agitant, et ajouter de l'antimycine A à la concentration finale souhaitée. Mélanger soigneusement avant de verser 3 mL du milieu NGM contenant l'antimycine A dans chaque plaque de 35 mm. Ensemencer chaque plaque d'agar de 35 mm avec 100 µL bactéries OP50 (section 1.2). Les boîtes de milieu NGM ensemencées avec OP50 et contenant de l'antimycine A peuvent être conservées à 4 °C pendant jusqu'à une semaine avant utilisation.
ATTENTION : L'antimycine A est dangereuse et doit être manipulée sous hotte chimique en portant une blouse de laboratoire, des gants adaptés et une protection oculaire. Éviter tout inhalation ainsi que tout contact avec la peau ou les yeux. - Synchroniser les vers au stade L4 tardif (section 2) et les maintenir à 20 °C. Transférer les vers synchronisés au stade L4 sur des plaques NGM de 35 mm ensemencées avec OP50 contenant de l'antimycine A, en utilisant 4 plaques par groupe comme réplicats techniques, avec 30 à 35 vers par plaque. Se référer à la section 4 pour la mise en place des réplicats biologiques.
- Incuber toutes les plaques à 20 °C. Enregistrer quotidiennement le nombre de vers morts.
ÉTAPE CRITIQUE : En raison de problèmes liés à l'éclosion des œufs et au développement des larves, transférez les vers sur des boîtes fraîches tous les deux jours pendant les 10 premiers jours. Cessez les transferts lorsqu'aucune nouvelle larve ni aucun nouvel œuf ne sont observés sur la boîte. Tous les réplicats techniques doivent subir le même nombre de transferts. Par exemple, lorsqu'une seule boîte nécessite un transfert, toutes les boîtes de ce réplicat biologique doivent être transférées simultanément. La survie moyenne des vers de type sauvage sous 5, 10, 20, 40 ou 80 µg/mL la durée de l'antimycine A varie d'environ 1,5 à 5 jours (Figure 2G,H) par rapport à une survie moyenne d'environ 20 jours en l'absence de stress physiologique (Figure 2A).
REMARQUE : Le test d'induction de stress mitochondrial par l'antimycine A nécessite le transfert des vers sur des boîtes fraîches tous les deux jours durant les 10 premiers jours. Ce transfert est effectué afin d'éviter l'entassement et la privation de nourriture, et de distinguer les vers expérimentaux de leur descendance. - Comptez chaque jour le nombre de vers morts sur chaque plaque de réplicat technique et enregistrez le nombre sur une feuille de saisie des résultats. Le comptage est effectué manuellement au microscope stéréoscopique sur la paillasse, à température ambiante. Les vers qui se déplacent activement sont considérés comme vivants, aucune stimulation physique n'étant nécessaire. Pour les vers qui n'exhibent aucun mouvement spontané, stimulez-les doucement en touchant deux fois la région postérieure du corps avec un curet en fil de platine. L'absence de réponse est notée comme un décès, et le ver mort est retiré de la plaque après enregistrement. Il est recommandé d'utiliser un compteur manuel pour garantir un comptage précis. Afin de s'assurer que chaque ver est compté une seule fois et non plusieurs fois, placez une feuille plastique transparente quadrillée sous la plaque, ou dessinez une grille au fond de la plaque pour diviser les plaques en sections quadrillées afin de faciliter le comptage.
REMARQUE : Remettre immédiatement les vers dans l'incubateur après le comptage. Maintenir les vers dans l'incubateur pendant environ 24 h avant le prochain comptage. - Surveiller quotidiennement la survie des vers jusqu'à ce que tous les animaux soient morts ou retirés conformément aux critères prédéfinis. Rassembler les données de survie enregistrées et les utiliser pour générer des courbes de survie destinées à une analyse ultérieure.
- Préparer des plaques de milieu pour le test de stress mitochondrial. Ajouter la solution mère d'antimycine A (5 mg/mL dans du DMSO, stockée à –20 °C) dans le milieu NGM liquide (du point 1.1.2) à une concentration finale de 5, 10, 20, 40 ou 80 µg/mLPar exemple, pour 1 L de milieu d'essai de stress mitochondrial, ajouter 1, 2, 4, 8 ou 16 mL de solution mère d'antimycine A (5 mg/mL dans le DMSO) pour une concentration finale de 5, 10, 20, 40 ou 80 µg/mL antimycine A dans les boîtes de milieu. Si un témoin non traité est inclus dans le test, ajouter la même quantité de DMSO (1, 2, 4, 8 ou 16 µL) au milieu de contrôle correspondant.
- Essai de stress oxydatif
Le flux de travail de cette section est résumé dans Figure 1E.- Préparer des boîtes de milieu pour le test de stress oxydatif. Ajouter la solution mère de paraquat (0,5 M dans de l'eau ddH₂O)2O, stocké à –20 °C) dans le milieu NGM liquide (du point 1.1.2) à une concentration finale de 2,5, 5, 10 ou 20 mM.
ÉTAPE CRITIQUE : Refroidir le milieu NGM stérilisé à l'autoclave à environ 55 °C tout en agitant, puis ajouter du paraquat à la concentration finale souhaitée. Bien mélanger avant de verser 3 mL du milieu NGM contenant le paraquat dans des boîtes de 35 mm. Ensemencer chaque boîte de 35 mm contenant le milieu gélosé avec 100 µL Bactéries OP50 (section 1.2). Les bactéries OP50 peuvent être ensemencées 2 à 3 jours avant le moment du test. Les boîtes de milieu NGM ensemencées avec OP50 et contenant du paraquat peuvent être conservées à 4 °C pendant jusqu'à une semaine avant utilisation.
ATTENTION : Le paraquat est hautement toxique et doit être manipulé sous hotte chimique, avec des gants adaptés, une blouse de laboratoire et une protection oculaire. Éviter tout inhalation, ingestion, et tout contact avec la peau ou les yeux. - Synchroniser les vers au stade L4 tardif (section 2) et les maintenir à 20 °C. Transférer les vers synchronisés au stade L4 sur des boîtes de Pétri de 35 mm contenant du NGM ensemencé avec OP50 et du paraquat, en utilisant 4 boîtes par groupe comme réplicats techniques, avec 30 à 35 vers par boîte. Se référer à la section 4 pour la mise en place des réplicats biologiques.
- Incuber toutes les plaques à 20 °C. Noter quotidiennement le nombre de vers morts. La survie moyenne des vers de type sauvage en présence de paraquat à 2,5, 5, 10 ou 20 mM varie approximativement entre 2,5 et 5 jours (Figure 2I, J), par rapport à une survie moyenne d'environ 20 jours en l'absence de stress physiologique (Figure 2A).
REMARQUE : Dans le test de stress oxydatif induit par le paraquat, le transfert des vers vers de nouvelles boîtes n'est pas nécessaire. Un nombre limité de larves est présent sur les boîtes contenant le paraquat et celles-ci restent bloquées au stade de développement correspondant au stade L2 ou à un stade antérieur tout au long du test. Elles n'interfèrent ni avec l'identification de cohortes synchronisées ni avec l'apparition d'une privation alimentaire. Compte tenu du stress physique pouvant être induit par le transfert des vers, il n'est pas recommandé de les transférer durant le test. - Comptez chaque jour le nombre de vers morts sur chaque plaque de réplicat technique et enregistrez le nombre sur une feuille de données de comptage. Le comptage est effectué manuellement au microscope stéréoscopique sur la paillasse, à température ambiante. Les vers en mouvement actif sont considérés comme vivants, aucune stimulation physique n'étant nécessaire. Pour les vers ne présentant pas de mouvement spontané, stimulez doucement les vers en touchant deux fois la région postérieure du corps avec un cure-dent en platine. L'absence de réponse est enregistrée comme un décès, et le ver mort est retiré de la plaque après enregistrement. L'utilisation d'un compteur manuel est recommandée afin d'assurer un comptage précis. Pour s'assurer que chaque ver est compté une seule fois et non plusieurs fois, placez une feuille plastique transparente quadrillée sous la plaque, ou dessinez une grille sur le fond de la plaque afin de diviser la surface en sections quadrillées pour le comptage.
REMARQUE : Remettre immédiatement les vers dans l'incubateur après le comptage. Maintenir les vers dans l'incubateur pendant environ 24 h avant le prochain comptage. - Surveiller quotidiennement la survie des vers jusqu'à ce que tous les animaux soient morts ou censurés selon les critères prédéfinis. Rassembler les données de survie enregistrées et les utiliser pour générer des courbes de survie destinées à une analyse ultérieure.
- Préparer des boîtes de milieu pour le test de stress oxydatif. Ajouter la solution mère de paraquat (0,5 M dans de l'eau ddH₂O)2O, stocké à –20 °C) dans le milieu NGM liquide (du point 1.1.2) à une concentration finale de 2,5, 5, 10 ou 20 mM.
4. Analyse des données
- Enregistrer le nombre de vers morts sur chaque plaque de réplicat technique à chaque point temporel. Les données de mortalité sont consignées dans une feuille de notation organisée par point temporel (heures ou jours après l'initiation de la condition de stress), groupe expérimental (souches différentes ou conditions de traitement différentes) et réplicat technique (plaque 1, 2, 3 ou 4). À chaque intervalle de notation (horaire ou quotidien, selon le test), le nombre de vers morts est enregistré séparément pour chaque plaque, et la mortalité cumulative est suivie jusqu'à la fin du test.
- Saisir les données de mortalité de chaque point temporel d'évaluation dans OASIS 2 (application en ligne pour l'analyse de survie 2)44 pour la génération de courbes de survie de Kaplan-Meier et l'analyse statistique par le test du log-rang. Alternativement, la mortalité peut être calculée comme le pourcentage de vers morts à des points temporels individuels et comparée entre les groupes à l'aide d'un test t de Student non apparié bilatéral test-t (pour deux groupes) ou ANOVA à un facteur suivie du test de comparaisons multiples de Tukey (pour trois groupes ou plus).
REMARQUE : Les vers présentant une rupture ou une éclosion matricide (« bagging ») sont comptabilisés comme morts au moment où ils sont observés, afin de refléter la survie globale. Les vers rompus et les vers ayant subi une éclosion matricide ont été inclus dans les courbes de survie rapportées dans les résultats représentatifs ci-dessous. Le nombre de vers censurés provenant de différentes conditions a été enregistré dans Tableau supplémentaire 1. Les vers qui s'échappent de la plaque d'essai, se dessèchent sur la paroi de la plaque ou sont absents lors du comptage sont considérés comme des observations censurées et exclus de l'analyse subséquente de survie. Les animaux présentant une mobilité altérée mais réagissant à une légère stimulation tactile sont comptés comme vivants. Les vers présentant des anomalies de ponte avant le début de l'essai sont exclus de l'analyse de survie. - Effectuer tous les tests de stress avec au moins trois réplicats biologiques indépendants réalisés à des jours différents. Chaque réplicat biologique comprend quatre plaques en réplicat technique contenant des vers. Les données provenant des réplicats techniques au sein d’un même réplicat biologique sont regroupées afin de produire une seule courbe de survie. Les réplicats biologiques indépendants sont analysés séparément et présentés comme des jeux de données distincts, sans être regroupés. Chaque réplicat biologique est réalisé à l’aide de milieux préparés indépendamment et de nouvelles préparations de composés inducteurs de stress. Les protocoles décrits ci-dessus correspondent aux étapes nécessaires pour obtenir un réplicat biologique pour chaque test de stress. Les mâles sont exclus ; seules les hermaphrodites sont incluses et analysées dans ce protocole.
REMARQUE : L'humidité des incubateurs dans ce protocole n'est pas contrôlée, tandis que la température des incubateurs est strictement maintenue à la température expérimentale. Les expériences rapportées ici n'ont pas été réalisées dans des conditions d'aveugle, et l'expérimentateur connaissait le génotype et les conditions de traitement lors de l'analyse. Il est recommandé, lorsque cela est possible, de procéder à l'aveugle pour le génotype et les conditions de traitement afin de minimiser les biais potentiels d'analyse.
Résultats
À l'aide des protocoles décrits ci-dessus, nous avons d'abord utilisé des vers de type sauvage (WT) N2 pour examiner la survie des vers sous une gamme croissante de doses des quatre types de stress : stress thermique, du réticulum endoplasmique, mitochondrial et oxydatif. Nous avons ensuite utilisé une souche avec ablation neuronale pour évaluer le rôle d'un interneurone RIC dans la résistance au stress, comparé aux vers de type sauvage.
Titration de la dose de stress thermique et comparaison de la résistance au stress thermique chez la souche avec ablation des RIC
À la température physiologique de 20 °C, les vers de type sauvage (WT) présentent une durée de vie moyenne de 20,67 jours (Figure 2A). En suivant les étapes du test de stress thermique décrites à la section 3.1, nous avons mesuré la survie des vers WT à des températures élevées de 30, 35 et 37 °C, utilisées comme doses croissantes de stress thermique. Les données ont montré que les vers WT vivent en moyenne 3,11 jours à 30 °C (Figure 2B) ; et survivent en moyenne 5,36 h à 35 °C et 4,89 h à 37 °C (Figure 2C). Ces résultats indiquent une diminution significative de la survie à des températures plus élevées. Les analyses statistiques et les valeurs de P sont présentées en détail dans le Tableau supplémentaire 2 et les légendes des figures. Ces données fournissent aux chercheurs des informations fiables pour choisir une température de stress et une échelle de temps optimales lors de la conception d’un test de stress thermique. Les chercheurs peuvent utiliser 30 °C pour examiner la survie des vers sur plusieurs jours, tandis que 35 °C ou 37 °C permettent une évaluation plus rapide de la survie des vers en quelques heures.
Nous avons ensuite utilisé 35 °C comme condition de stress thermique pour évaluer l'effet de l'ablation des neurones RIC sur la survie par rapport aux animaux WT. Cette température induit un niveau intermédiaire de stress thermique, évitant la sévérité extrême de 37 °C tout en produisant une réponse plus marquée que 30 °C, et permet d'obtenir un essai complet de survie en environ 12 h.
Les neurones RIC sont une paire d'interneurones octopaminergiques situés dans la région de la tête de C. elegans9,10. La souche dépourvue de neurones RIC a été générée en exprimant le gène de la caspase-3 sous le contrôle du promoteur du gène tbh-1 et a déjà été utilisée précédemment45. Brièvement, le promoteur tbh-1 a été inséré dans les plasmides donneurs mec-18p::caspase-3 (p12)::nz et mec-18p cz::caspase-3 (p17) afin de remplacer le promoteur mec-18. Trois constructions, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) et tbh-1p::GFP (20 ng/µL, comme marqueur des neurones RIC indiquant si les neurones RIC sont ablatés), ont été co-injectées avec le marqueur fluorescent de co-injection myo-3p::GFP (5 ng/µL) dans la souche sauvage N2 afin de générer des souches génétiques d'ablation des neurones RIC. Trois lignées issues d'injections indépendantes ont été conservées comme souche d'ablation des neurones RIC. Les lignées transgéniques ont été maintenues en sélectionnant les vers présentant le marqueur fluorescent myo-3p::GFP. Les résultats de chaque test de stress ont été validés par deux ou trois lignées indépendantes. L'ablation réussie des neurones RIC a été confirmée par l'absence de fluorescence tbh-1p::GFP dans la souche dépourvue de neurones RIC, tandis qu'une expression de GFP était observée dans les neurones RIC de la souche contrôle rapporteur tbh-1p::GFP (Figure supplémentaire 1).
À l'aide des étapes du test de stress thermique présentées à la section 3.1, nous avons examiné la survie des souches sauvages et celles dont les neurones RIC ont été ablatés sous un stress thermique de 35 °C (Figure 2D). En utilisant les étapes d'analyse des données présentées aux sections 4.1 à 4.3, les résultats ont montré qu'aucune différence significative n'a été observée entre la souche dont les neurones RIC ont été ablatés et le groupe témoin de type sauvage N2 sous un stress thermique de 35 °C (Figure 2D).
Tous les résultats représentatifs des tests de stress thermique ont été réalisés avec trois réplicats biologiques indépendants effectués à différents jours (Figure supplémentaire 2). Le nombre d'animaux (valeur de n indiquée dans les légendes des figures) contribuant à la courbe de survie présentée dans les résultats représentatifs et les figures supplémentaires correspond au nombre total issu des quatre réplicats techniques d'un seul réplicat biologique.
Titration de la dose de stress du RE et comparaison de la résistance au stress du RE chez la souche avec ablation de RIC
À l’aide des étapes du test de stress du RE présentées dans la section 3.2, nous avons mesuré la survie du type sauvage (WT) sous 25, 50, 100 ou 200 µg/mL de tunicamycine, représentant des doses croissantes de stress du RE (Figure 2E). Comparée à une survie moyenne en conditions non stressantes d’environ 20 jours (Figure 2A), la survie moyenne des vers de type sauvage est de 10,74 jours à 25 µg/mL, de 9,13 jours à 50 µg/mL, de 9,3 jours à 100 µg/mL et de 8,93 jours à 200 µg/mL de tunicamycine (Figure 2E). L’augmentation de la dose de tunicamycine n’a pas significativement modifié la survie à ces doses. Les analyses statistiques et les valeurs P sont présentées en détail dans le Tableau supplémentaire 2 et les légendes des figures. Ces données fournissent aux chercheurs des informations fiables pour choisir une dose optimale de tunicamycine dans un test de stress du RE.
Nous avons ensuite utilisé 50 µg/mL de tunicamycine, une dose intermédiaire parmi les doses testées, comme condition de stress du réticulum endoplasmique afin d'évaluer l'effet de l'ablation des neurones RIC sur la survie par rapport aux animaux WT. En suivant les étapes du test de stress du réticulum endoplasmique décrites à la section 3.2, nous avons examiné la survie des souches WT et celles ayant subi l'ablation des neurones RIC sous un stress du réticulum endoplasmique induit par 50 µg/mL de tunicamycine (Figure 2F). En appliquant les étapes d'analyse des données présentées aux sections 4.1 à 4.3, la courbe de survie de la souche ayant subi l'ablation des neurones RIC a montré un décalage significatif vers la droite par rapport au témoin WT N2, indiquant une survie prolongée en conditions de stress du réticulum endoplasmique. Ce résultat suggère que l'ablation des neurones RIC améliore la résistance au stress du réticulum endoplasmique (Figure 2F).
Tous les résultats représentatifs des dosages de stress du RE ont été réalisés avec trois réplicats biologiques indépendants effectués à des jours différents (Figure supplémentaire 3). Le nombre d'animaux (valeur de n indiquée dans les légendes des figures) contribuant à la courbe de survie présentée dans les résultats représentatifs et les figures supplémentaires correspond au nombre cumulé provenant des quatre réplicats techniques d'un seul réplicat biologique.
Titration de la dose de stress mitochondrial et comparaison de la résistance au stress mitochondrial chez la souche avec ablation de RIC
À l’aide des étapes du test de stress mitochondrial décrites à la section 3.3, nous avons mesuré la survie du type sauvage (WT) sous 5, 10, 20, 40 ou 80 µg/mL d’antimycine A, en tant qu’augmentation progressive du stress mitochondrial (Figure 2G). Les courbes de survie des vers WT ont montré des changements significatifs de manière dose-dépendante. Comparée à une survie moyenne non stressée d’environ 20 jours (Figure 2A), la survie moyenne des vers de type sauvage est de 4,96 jours à 5 µg/mL, de 3,77 jours à 10 µg/mL, de 2,68 jours à 20 µg/mL, de 1,65 jours à 40 µg/mL et de 1,4 jour à 80 µg/mL d’antimycine A (Figure 2G). Les analyses statistiques et les valeurs de P sont présentées en détail dans le Tableau supplémentaire 2 et les légendes des figures. Ces données fournissent des informations fiables aux chercheurs pour choisir une dose optimale d’antimycine A et une échelle de temps adaptée lors de la conception d’un test de stress mitochondrial. Les chercheurs peuvent choisir une concentration de 5 µg/mL pour évaluer la survie des vers sur environ 10 jours, ou utiliser des concentrations plus élevées d’antimycine A afin d’obtenir des résultats de survie en quelques jours. À noter que des concentrations plus élevées accélèrent la mortalité, tandis que des concentrations plus faibles entraînent un déclin plus progressif de la survie, permettant ainsi de distinguer plus facilement les différences subtiles entre souches.
Nous avons ensuite utilisé 5 µg/mL d'antimycine A, ce qui a provoqué une diminution plus progressive de la survie parmi les doses testées, comme condition de stress mitochondrial afin d'évaluer l'effet de l'ablation des neurones RIC sur la survie par rapport aux animaux WT. En suivant les étapes du test de stress mitochondrial décrites à la section 3.3, nous avons examiné la survie des souches WT et celles ayant subi une ablation des neurones RIC sous un stress mitochondrial induit par 5 µg/mL d'antimycine A (Figure 2H). En appliquant les étapes d'analyse des données présentées aux sections 4.1 à 4.3, la courbe de survie de la souche ayant subi l'ablation des neurones RIC a montré un décalage significatif vers la droite par rapport au témoin WT N2, indiquant une survie prolongée en conditions de stress mitochondrial. Ce résultat suggère que l'ablation des neurones RIC améliore la résistance au stress mitochondrial (Figure 2H).
Tous les résultats représentatifs des tests de stress mitochondrial ont été réalisés avec trois réplicats biologiques indépendants effectués à des jours différents (Figure supplémentaire 4). Le nombre d'animaux (valeur de n indiquée dans les légendes des figures) contribuant à la courbe de survie présentée dans les résultats représentatifs et les figures supplémentaires correspond au nombre cumulé provenant des quatre réplicats techniques d'un seul réplicat biologique.
Titration de la dose de stress oxydatif et comparaison de la résistance au stress oxydatif chez la souche avec ablation de RIC
À l’aide des étapes du test de stress oxydatif décrites à la section 3.4, nous avons mesuré la survie du type sauvage (WT) sous 2,5, 5, 10 ou 20 mM de paraquat, représentant des doses croissantes de stress oxydatif (Figure 2I). Les courbes de survie des vers WT ont montré des changements significatifs de manière dose-dépendante. Par rapport à une survie moyenne en conditions physiologiques non stressantes d’environ 20 jours (Figure 2A), la survie moyenne des vers de type sauvage est de 4,92 jours à 2,5 mM, de 3,81 jours à 5 mM, de 2,93 jours à 10 mM et de 2,81 jours à 20 mM de paraquat (Figure 2I). Les analyses statistiques et les valeurs de P sont présentées en détail dans le Tableau supplémentaire 2 et les légendes des figures. Ces données fournissent des informations fiables aux chercheurs pour choisir une dose optimale de paraquat et une échelle de temps adaptée lors de la conception d’un test de stress oxydatif. Les chercheurs peuvent choisir une concentration de 2,5 mM pour évaluer la survie des vers sur environ 10 jours, ou utiliser des concentrations plus élevées de paraquat afin d’obtenir des résultats de survie en quelques jours. À noter que les concentrations plus élevées (10 mM et 20 mM) accélèrent la mortalité, tandis que les concentrations intermédiaires et faibles (2,5 mM et 5 mM) entraînent un déclin plus progressif de la survie, permettant ainsi de distinguer plus facilement les différences subtiles entre souches.
Nous avons ensuite utilisé le paraquat à 5 mM, une dose intermédiaire parmi les doses testées, comme condition de stress oxydatif afin d'évaluer l'effet de l'ablation des neurones RIC sur la survie par rapport aux animaux WT. En suivant les étapes du test de stress oxydatif décrites à la section 3.4, nous avons examiné la survie des souches WT et celles ayant subi l'ablation des neurones RIC sous un stress oxydatif induit par le paraquat à 5 mM (Figure 2J). En appliquant les étapes d'analyse des données présentées aux sections 4.1 à 4.3, les résultats ont montré qu'aucune différence significative n'était observée entre la souche ayant subi l'ablation des neurones RIC et le groupe témoin sauvage N2 sous un stress oxydatif induit par le paraquat à 5 mM (Figure 2J).
Tous les résultats représentatifs des dosages de stress oxydatif ont été réalisés avec trois réplicats biologiques indépendants effectués à des jours différents (Figure supplémentaire 5). Le nombre d'animaux (valeur de n indiquée dans les légendes des figures) contribuant à la courbe de survie présentée dans les résultats représentatifs et les figures supplémentaires correspond au nombre total issu des quatre réplicats techniques d'un seul réplicat biologique.
Dépannage
Un problème récurrent dans les tests d'oxydation induite par le paraquat est que les vers s'échappent des boîtes de Pétri en agar, entraînant une perte d'animaux et une réduction du nombre de vers disponibles pour l'analyse. Un acide palmitique une barrière ou une autre « clôture » peut être ajoutée aux plaques de test pour réduire partiellement ce comportement d'évasion46,47, bien que l'amélioration soit modeste et ne permette pas d'éliminer complètement le problème. Aucune différence significative n'a été observée concernant la santé et la durée de vie des C. elegans après traitement par l'acide palmitique48. La barrière d'acide palmitique agit comme un agent répulsif "clôture" sur des plaques NGM pour prévenir C. elegans de s'échapper en raison du stress, de la famine ou des agents pathogènes. Pour minimiser l'évasion des vers, appliquer 30 µL de 10 mg/mL d'acide palmitique dans l'éthanol (ajouter 0,5 g d'acide palmitique à 50 mL d'EtOH à 100 %) sur le bord de la plaque d'essai de 35 mm et faire tourner doucement la plaque pour former un anneau continu. Une fois l'éthanol évaporé, l'acide palmitique L'anneau constitue une barrière physique et chimique permettant de réduire l'échappement des vers. Les vers qui meurent en contact avec l'anneau d'acide palmitique sont censurés et exclus de l'analyse de survie.
PRÉCAUTION : L'acide palmitique et ses solutions doivent être manipulés avec les équipements de protection individuelle (EPI) de laboratoire appropriés, y compris des gants, une blouse de laboratoire et une protection oculaire, et il convient de prendre soin d'éviter tout contact avec la peau et les yeux.
DISPONIBILITÉ DES DONNÉES
Les données de survie à la base de la Figure 2 et des figures supplémentaires, y compris les données pour tous les réplicats biologiques et les résultats statistiques, se trouvent dans les Figure supplémentaire 1–5, Tableau supplémentaire 1–2 et Fichier supplémentaire 1.
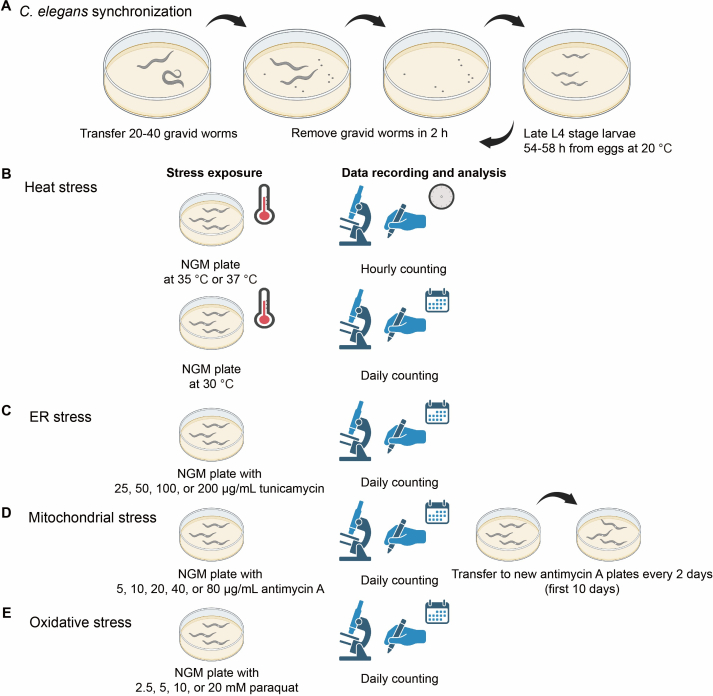
Figure 1 : Flux de travail des tests de stress. (A) Des vers synchronisés sont obtenus en collectant les œufs pondus par des vers gravides au cours d'une période de 2 heures. Les vers synchronisés sont utilisés pour tous les tests de stress et sont transférés sur des boîtes de milieu NGM ou dans des conditions de stress au stade L4 tardif, après 54 à 58 heures de développement à partir des œufs à 20 °C. (B) Dans le test de stress thermique, les vers synchronisés sont transférés sur des boîtes de milieu NGM placées dans une étuve à 35 °C ou 37 °C, et les vers morts sont comptabilisés heure par heure. Pour le test de stress thermique dans une étuve à 30 °C, les vers morts sont comptabilisés quotidiennement. (C) Dans le test de stress du réticulum endoplasmique, les vers synchronisés sont transférés sur des boîtes de milieu NGM contenant 25, 50, 100 ou 200 µg/mL de tunicamycine. Les vers morts sont comptabilisés quotidiennement. (D) Dans le test de stress mitochondrial, les vers synchronisés sont transférés sur des boîtes de milieu NGM contenant 5, 10, 20, 40 ou 80 µg/mL d'antimycine A, et la survie est évaluée par comptage quotidien. Afin d'éviter toute interférence due à la descendance, les vers sont transférés sur des boîtes fraîches contenant de l'antimycine A tous les deux jours durant les 10 premiers jours du test. (E) Dans le test de stress oxydatif, les vers synchronisés sont transférés sur des boîtes de milieu NGM contenant 2,5, 5, 10 ou 20 mM de paraquat, et la survie est évaluée par comptage quotidien. La résistance au stress est évaluée en comparant les courbes de survie de Kaplan-Meier générées à partir de chaque test. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
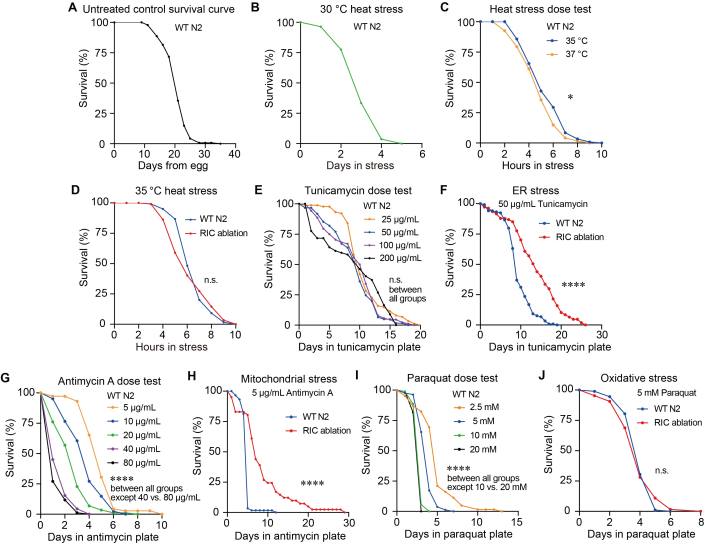
Figure 2: Titrage des doses de stress thermique, du réticulum endoplasmique, mitochondrial et oxydatif, et comparaison de la résistance au stress chez les animaux avec ablation des neurones RIC souche. (A) Courbe de survie de Kaplan-Meier représentative de la souche WT N2 en conditions non stressantes (n = 141, survie moyenne = 20,67 jours). (B) Représentatif Courbe de survie de Kaplan-Meier de la souche sauvage N2 sous 30 °C stress thermique (n = 111, survie moyenne = 3,11 jours). (CCourbe de survie de Kaplan-Meier représentative de la souche WT N2 sous 35 °C et 37 °C stress thermique (n = 119, 121) ; test de log-rang, P = 0,0244, * indique P < 0.05. (DCourbe de survie de Kaplan-Meier représentative des souches N2 WT et RIC avec ablation neuronale sous 35 °C stress thermique (n = 117, 120) ; test de log-rang, P = 0,4972, n.s. indique une différence non significative. Le N2 de type sauvage a été utilisé comme témoin. (ECourbes de survie dose-réponse de la souche sauvage N2 sous des concentrations croissantes de traitement par la tunicycline (n = 88, 61, 88, 67) ; test de log-rank, P = 0.6472 (25 µg/mL par rapport à 100 µg/mL), P = 0.1473 (25 µg/mL contre 50 µg/mL), P = 0.6581 (50 µg/mL contre 200 µg/mL), P = 1 (25 µg/mL par rapport à 200 µg/mL; 50 µg/mL par rapport à 100 µg/mL; 100 µg/mL par rapport à 200 µg/mL), n.s. indique une différence non significative. (FCourbe de survie de Kaplan-Meier représentative de N2 WT et RIC souche dépourvue de neurones sous 50 µg/mL stress du RE induit par la tunicamycine (n = 119, 107) ; test de log-rang, **** indique P < 0.0001. (GCourbes de survie de Kaplan-Meier représentatives de la souche WT N2 traitée avec des concentrations croissantes d'antimycine A (n = 72, 81, 88, 91, 85) ; test du log-rank, P = 0.000038 (5 µg/mL contre 10 µg/mL), P = 0.00002 (10 µg/mL par rapport à 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL contre 40 µg/mL), P < 0.0001 (5 µg/mL par rapport à 20 µg/mL; 5 µg/mL contre 40 µg/mL; 5 µg/mL par rapport à 80 µg/mL; 10 µg/mL par rapport à 40 µg/mL; 10 µg/mL par rapport à 80 µg/mL; ou 20 µg/mL contre 80 µg/mL), P = 0.189 (40 µg/mL par rapport à 80 µg/mL), **** indique P < 0.0001. (HCourbe de survie de Kaplan-Meier représentative des souches N2 WT et RIC avec ablation neuronale sous 5 µg/mL stress mitochondrial induit par l'antimycine A (n = 59, 41) ; test de log-rank, P = 3,2 × 10⁻9, **** indique P < 0.0001. (ICourbes de survie de Kaplan-Meier représentatives de la souche WT N2 sous différentes doses de paraquat (n = 62, 81, 88, 93) ; test du log-rang, P = 1.80 × 10⁻7 (2,5 mM contre 5 mM) P < 0,0001 (2,5 mM contre 10 mM ; 2,5 mM contre 20 mM ; 5 mM contre 10 mM ; 5 mM contre 20 mM) P = 0,1445 (10 mM contre 20 mM), **** indique P < 0.0001. (JCourbes de survie de Kaplan-Meier représentatives de souches de type sauvage N2 et de souches avec ablation des neurones RIC sous stress oxydatif induit par le paraquat à 5 mM (n = 92, 64) ; test de log-rang, P = 0,9817, n.s. indique une différence non significative. Toutes les expériences ont été réalisées avec trois réplicats biologiques indépendants. Des résultats représentatifs provenant d'un réplicat biologique sont présentés dans cette figure. Chaque réplicat biologique comprend quatre plaques en réplicats techniques contenant des vers. Le nombre d'animaux (n) contribuant au courbe de survie sur cette figure correspond au nombre regroupé provenant des quatre réplicats techniques d'un seul réplicat biologique. Les réplicats biologiques indépendants ont été analysés séparément plutôt que regroupés, et sont présentés comme des jeux de données individuels dans les figures supplémentaires 2 à 5. La significativité a été évaluée à l'aide d'un test de log-rank comparant les distributions de survie. Statistiques détaillées P les valeurs, la survie moyenne et l'erreur standard parmi les réplicats techniques sont indiquées dans le tableau supplémentaire 2. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Figure supplémentaire 1 : Absence de tbh-1p::Fluorescence GFP dans la souche avec ablation des neurones RIC, tandis que l'expression de la GFP était observée dans les neurones RIC de la tbh-1p::Souche témoin avec rapporteur GFP. (A) Images fluorescentes des neurones RIC ablés souche tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17) tbh-1p::GFP; myo-3p::GFP et un tbh-1p::Souches contrôles rapportrices GFP OH16150 tbh-1p::GFP; tdc-1p::mCherry. Des vers au stade L4 tardif ont été observés en utilisant une excitation à 488 nm avec un temps d'exposition de 800 ms pour le canal GFP et de 176 ms pour le canal champ clair. Les flèches jaunes indiquent l'emplacement des neurones RIC dans le témoin tbh-1p::souche rapporteur GFP ou localisation attendue des neurones RIC, absente chez la souche avec ablation des neurones RIC. tbh-1p::Le signal GFP n'a pas été détecté au niveau de la localisation du neurone RIC chez la souche dont le neurone RIC a été ablaté, tandis que tbh-1p::Un signal GFP a été observé dans les neurones RIC du tbh-1p::Souche témoin avec rapporteur GFP OH16150. La fluorescence de la musculature pariétale dans la souche dont les neurones RIC ont été ablatés provient de myo-3p::GFP, un marqueur de co-injection.A) n = 14 pour OH16150 ; n = 20 pour la souche avec ablation des neurones RIC.B, C) Résultats représentatifs provenant de deux autres réplicats biologiques. Des vers au stade L4 tardif ont été observés en utilisant une excitation à 488 nm avec un temps d'exposition de 1007 ms (B) ou 1998 ms (C) temps d'exposition pour le canal GFP et un temps de 176 ms (B et C) durée d'exposition pour le canal champ clair. (Bn = 8 pour OH16150 ; n = 17 pour la souche avec ablation des neurones RIC.Cn = 14 pour OH16150 ; n = 13 pour RIC souche dépourvue de neurones Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 2 : Réplicats biologiques des courbes de survie en conditions sans stress ou sous stress thermique. (A, B) Courbes de survie de Kaplan-Meier issues de deux réplicats biologiques indépendants en conditions sans stress. (A) n = 123, survie moyenne = 20,52 jours ; (B) n = 130, survie moyenne = 22,74 jours. (C, D) Courbes de survie de Kaplan-Meier de la souche sauvage N2 sous stress thermique à 30 °C. Les données proviennent de deux réplicats biologiques indépendants. (C) n = 130, survie moyenne = 3,72 jours. (D) n = 98, survie moyenne = 3,77 jours. (E, F) Courbes de survie de Kaplan-Meier sous conditions de stress thermique à 35 °C ou 37 °C. Les données proviennent de deux réplicats biologiques indépendants. (E) n = 118, 121 ; test de log-rank, P = 0,0409, * indique P < 0,05. (F) n = 122, 120 ; test de log-rank, P = 0,0251, * indique P < 0,05. (G, H) Courbes de survie de Kaplan-Meier des souches sauvage N2 et avec ablation des neurones RIC sous stress thermique à 35 °C. Les données proviennent de deux réplicats biologiques indépendants. (G) n = 79, 76 ; test de log-rank, P = 0,2217, n.s. indique aucune différence significative. (H) n = 77, 81 ; test de log-rank, P = 0,1881, n.s. indique aucune différence significative. La significativité a été évaluée à l’aide d’un test de log-rank comparant les distributions de survie. Les valeurs détaillées des P statistiques, la survie moyenne et l’E.S. entre les réplicats techniques figurent dans le tableau supplémentaire 2. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 3 : Réplicats biologiques des courbes de survie en conditions de stress du réticulum endoplasmique. (A, B) Courbes de survie de Kaplan-Meier de la souche sauvage N2 soumise à différentes concentrations de traitement par la tunicalycine. Les données proviennent de deux réplicats biologiques indépendants. (A) n = 110, 102, 100, 96 ; (B) n = 88, 77, 75, 69. Les valeurs de P statistiques entre les différents groupes (A et B) sont indiquées dans le tableau supplémentaire 2. (C, D) Courbes de survie de Kaplan-Meier de la souche sauvage N2 et de la souche avec ablation des neurones RIC en conditions de stress du réticulum endoplasmique induit par 50 µg/mL de tunicalycine. Les données proviennent de deux réplicats biologiques indépendants. (C) n = 104, 55 ; test de log-rank, P = 0,012, * indique P < 0,05 ; (D) n = 85, 109 ; test de log-rank, P = 0,0001, *** indique P < 0,001. La significativité a été évaluée à l’aide d’un test de log-rank comparant les distributions de survie. Les valeurs détaillées de P statistique , la survie moyenne et l’E. S. parmi les réplicats techniques sont incluses dans le tableau supplémentaire 2. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 4 : Réplicats biologiques des courbes de survie en conditions de stress mitochondrial. (A, B) Courbes de survie de Kaplan-Meier de la souche sauvage N2 soumise à différentes concentrations de traitement par l'antimycine A. Les données proviennent de deux réplicats biologiques indépendants. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. Les valeurs de P statistiques entre les différents groupes (A et B) sont indiquées dans le tableau supplémentaire 2. (C, D) Courbes de survie de Kaplan-Meier de la souche sauvage N2 et de la souche avec ablation des neurones RIC en conditions de stress mitochondrial induit par l'antimycine A. Les données proviennent de deux réplicats biologiques indépendants. (C) n = 105, 78 ; test de log-rank, P = 0,000004, **** indique P < 0,0001. (D) n = 89, 73 ; test de log-rank, **** indique P < 0,0001. La significativité a été évaluée à l'aide d'un test de log-rank comparant les distributions de survie. Les valeurs détaillées de P statistique , la survie moyenne et l'erreur standard (S. E.) parmi les réplicats techniques sont incluses dans le tableau supplémentaire 2. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 5 : Réplicats biologiques des courbes de survie en conditions de stress oxydatif. (A, B) Courbes de survie de Kaplan-Meier de la souche sauvage N2 soumise à différentes concentrations de paraquat. Les données proviennent de deux réplicats biologiques indépendants. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Les valeurs de P statistiques entre les différents groupes (A et B) sont indiquées dans le tableau supplémentaire 2. (C, D) Courbes de survie de Kaplan-Meier de la souche sauvage N2 et de la souche avec ablation des neurones RIC en conditions de stress oxydatif induit par 5 mM de paraquat. Les données proviennent de deux réplicats biologiques indépendants. (C) n = 87, 82 ; test de log-rank, P = 0,2629, n.s. indique une différence non significative. (D) n = 116, 118 ; test de log-rank, P = 0,1184, n.s. indique une différence non significative. La significativité a été évaluée à l’aide d’un test de log-rank comparant les distributions de survie. Les valeurs détaillées de P statistique , la survie moyenne et l’E.S. entre les réplicats techniques sont incluses dans le tableau supplémentaire 2. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Résumé du nombre de vers inclus dans toutes les courbes de survie. Le tableau récapitule le nombre initial de vers ainsi que les nombres de vers rompus, « bagged » et censurés. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2: Analyses statistiques détaillées de toutes les courbes de survie, y compris P valeurs, survie moyenne et E. T. Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Données soutenant les résultats de cette étude.
Comprend la vérification de l'ablation réussie des neurones RIC et les résultats de tous les réplicats biologiques sous-jacents aux données présentées dans les figures principales. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Nous avons décrit ici des étapes standardisées pour des tests de stress reproductibles sous stress thermique, du réticulum endoplasmique, mitochondrial et oxydatif chez C. elegans (Figure 1). Nous avons examiné une gamme de doses croissantes des quatre agents de stress sur la survie des vers de type sauvage (Figure 2). Nous avons également présenté un exemple d'étude du rôle d'un interneurone dans la résistance au stress face aux quatre types de stress, en utilisant une souche avec ablation neuronale (Figure 2).
Pour réussir l'application du protocole d'essai de stress présenté ici, plusieurs points essentiels doivent être pris en compte au cours du processus. En raison des variations d'un laboratoire à l'autre liées à des différences telles que la poudre d'agar, le milieu, la température ambiante et l'humidité, il est recommandé de titrer chaque concentration de stress ou de composé inducteur de stress selon la procédure de titrage et les étapes décrites dans les sections Protocole et Résultats. Une condition de stress appropriée doit produire une réponse de survie intermédiaire reproductible chez les vers sauvages témoins, offrant ainsi une plage dynamique suffisante pour détecter à la fois une résistance accrue et une résistance diminuée au stress. Les conditions entraînant une survie quasi totale ou une létalité quasi complète doivent être évitées. Ensuite, il est essentiel de s'assurer que les vers sont synchronisés au même stade de développement pour tous les réplicats biologiques et techniques. La synchronisation des vers peut être réalisée en suivant la procédure décrite aux sections 2.1 à 2.3. La synchronisation au stade L4 tardif est recommandée. L'initiation des essais de stress au stade L4 est une pratique bien établie dans le domaine de la recherche sur la réponse au stress chez C. elegans, et de nombreuses études ont utilisé des animaux synchronisés au stade L4 pour des essais de résistance au stress oxydatif42, à la chaleur 40,43, et à d'autres types de stress35. Le démarrage au stade L4 assure une synchronisation du développement tout en minimisant la variabilité introduite par les différences d'âge adulte et de statut reproductif, notamment le début de la production d'œufs et la rétention d'embryons, facteurs qui peuvent tous deux influencer les mesures de résistance au stress12,37,38,40. Puisque tous les groupes expérimentaux de notre étude ont été synchronisés et traités de manière identique, cette approche fournit une base cohérente et appropriée pour comparer la résistance au stress. Enfin, si les vers ont été privés de nourriture ou soumis à un stress avant le début de l'essai, leurs descendants doivent être récupérés et élevés pendant plusieurs générations dans des conditions nourries et non stressantes avant d'être utilisés comme vers gravides afin de produire une descendance synchronisée pour les essais de stress.
Les variations inter-expérimentales entre réplicats biologiques indépendants peuvent résulter de différences dans la préparation et le stockage des boîtes, notamment la durée de conservation des boîtes contenant des composés inducteurs de stress à 4 °C et le moment du semis bactérien OP50. Pour améliorer la reproductibilité entre les expériences réalisées à différents jours, les étapes critiques de préparation des boîtes doivent être standardisées selon le protocole décrit pour la fabrication des boîtes NGM à la section 1.1, des boîtes induisant un stress réticulaire par la tunicalycine à la section 3.2.1, des boîtes induisant un stress mitochondrial par l'antimycine A à la section 3.3.1, et des boîtes induisant un stress oxydatif par le paraquat à la section 3.4.1. Plus précisément, les boîtes en gélose doivent être séchées à température ambiante pendant environ 24 h après coulage, puis ensemencées avec OP50 une fois que la gélose est complètement solidifiée. Les boîtes NGM ensemencées avec OP50 doivent ensuite sécher à température ambiante pendant 24 h supplémentaires avant d'être stockées à 4 °C. La durée optimale de séchage peut varier selon l'utilisation de boîtes ventilées ou non ventilées et selon les conditions environnementales locales, telles que la température et l'humidité. Par conséquent, chaque laboratoire doit optimiser cette étape selon ses propres conditions et maintenir une durée de séchage constante pour tous les réplicats biologiques indépendants afin d'assurer la reproductibilité. Les boîtes destinées aux tests de stress doivent être utilisées dans la semaine suivant leur préparation afin de minimiser la dégradation des composés inducteurs de stress et une croissance bactérienne excessive, deux facteurs pouvant affecter la cohérence du test.
Ce protocole a également montré un exemple d'étude du rôle d'un interneurone dans la réponse au stress face aux quatre facteurs de stress à l'aide d'une souche d'ablation neuronale (Figure 2). Le promoteur d'un gène spécifiquement exprimé dans un neurone peut être utilisé pour induire l'expression de la caspase-3 et ablater le neurone cible. Ici, nous avons utilisé le promoteur tbh-1, qui dirige l'expression génique spécifiquement dans les neurones RIC, afin d'ablater les neurones RIC. Le promoteur tbh-1 a été largement validé pour la manipulation génétique ciblée des neurones RIC et est couramment utilisé pour l'expression cellule-spécifique, la complémentation, l'imagerie calcique et le blocage neuronal45,49,50. Conformément aux caractérisations rapportées pour tbh-1, nous avons observé une expression de tbh-1p::GFP limitée aux neurones RIC, sans détection de fluorescence dans d'autres tissus (Figure supplémentaire 1). Nous n'avons pas spécifiquement examiné la taille de la descendance ou la morphologie de la lignée germinale dans la souche avec ablation des neurones RIC ; toutefois, nous n'avons pas observé de défauts physiologiques évidents dans cette souche. Il a été rapporté que le marqueur tbh-1 présente une expression supplémentaire dans les cellules somatiques de la gaine gonadique, qui sont des cellules somatiques du système reproducteur51,52. Bien que nous ne puissions pas exclure complètement la possibilité d'une expression à faible niveau en dehors des neurones RIC, nous considérons peu probable que l'expression non-RIC de tbh-1 explique la résistance accrue au stress observée chez les animaux avec ablation des neurones RIC. Bien que cette méthode soit bien établie49,50, elle est limitée par une éventuelle expression dans des cellules autres que le neurone cible. D'autres méthodes sont nécessaires pour confirmer le rôle d'un neurone, par exemple surveiller l'activité neuronale en réponse aux facteurs de stress, ou évaluer le rôle des neurotransmetteurs libérés par ce neurone dans les tests de stress.
Les tests de survie chez C. elegans sont des outils puissants pour mesurer la résistance au stress en raison de la courte durée de vie des vers (environ 20 à 30 jours, Figure 2) et de la mortalité rapide induite par divers agents stressants, qui survient généralement en quelques heures à quelques jours (Figure 2). Toutefois, une limite de ces tests réside dans l'utilisation d'un critère binaire vivant/mort, qui ne permet pas de capturer le déclin physiologique progressif survenant pendant l'exposition au stress. Des tests complémentaires, tels que les tests d'agitation ou les mesures automatisées de la locomotion (vitesse) effectuées à plusieurs points temporels, peuvent fournir des informations supplémentaires sur la perte graduelle de la fonction neuromusculaire durant le stress. Une autre limitation est que le décès est déterminé par l'absence de réponse à une stimulation physique douce, ce qui peut sous-estimer la viabilité chez des animaux dont la locomotion est gravement altérée. De plus, l'évaluation manuelle introduit une variabilité dépendante de l'observateur et un biais potentiel. Pour minimiser ces effets, tous les comptages au sein d'un réplicat biologique indépendant doivent être réalisés par le même chercheur, qui doit être aveugle concernant le génotype et les conditions expérimentales. Des conditions d'évaluation constantes, notamment l'utilisation du même grossissement au microscope et des mêmes réglages d'éclairage à chaque point temporel, sont également essentielles pour réduire la variabilité entre les boîtes et entre les expériences. Dans les résultats représentatifs, nous présentons un exemple dans lequel une souche privée des neurones RIC montre une résistance accrue au stress du réticulum endoplasmique et au stress mitochondrial, mais pas au stress thermique ou oxydatif, comparée aux vers de type sauvage (Figure 2). Une différence de survie sous deux des quatre stress n'établit pas en soi un rôle spécifique à une voie pour ce neurone ; la conclusion biologique de cet article est présentée comme une démonstration de la méthode et de l'observation, et non comme une affirmation mécanistique.
Outre les tests de survie sous stress décrits ici, plusieurs plates-formes automatisées ont été mises au point pour mesurer la survie de C. elegans. L'analyse automatisée augmente considérablement le débit, permet une surveillance continue ou à haute fréquence, et réduit les biais liés à l'observateur ainsi que la main-d'œuvre associée au comptage manuel53,54,55. Ces systèmes sont particulièrement avantageux pour les criblages génétiques ou chimiques à grande échelle. Toutefois, la plupart des méthodes automatisées déduisent la mort de l'arrêt des mouvements, ce qui peut entraîner une mauvaise classification des vers qui sont en état de quiescence ou présentent une locomotion gravement altérée sous stress, selon l'algorithme d'imagerie et le seuil de détection. La détection automatisée peut également être influencée par des facteurs environnementaux, tels que la température, la condensation, la contamination fongique ou bactérienne, ainsi que les variations des conditions de culture, tous pouvant interférer avec la détection des vers et affecter les mesures de survie. En revanche, le comptage manuel permet à l'expérimentateur d'identifier des phénotypes anormaux, tels que le « bagging », l'éclosion interne ou la rupture des animaux, qui peuvent nécessiter des critères spécifiques de comptage ou de censure. Bien que le comptage manuel soit plus laborieux et soumis à une variabilité liée à l'observateur, ces limitations peuvent être réduites grâce à un comptage en aveugle, à des critères de comptage standardisés et à un comptage réalisé de manière cohérente par le même chercheur. Par conséquent, les tests de survie manuels et automatisés présentent chacun des avantages et des inconvénients distincts, et le choix de la méthode doit être guidé par les objectifs expérimentaux, le débit requis et la nature du paradigme de stress.
Pris ensemble, les méthodes décrites ici fournissent un cadre normalisé et reproductible pour évaluer les réponses de C. elegans à plusieurs facteurs de stress environnementaux, notamment le stress thermique, mitochondrial, du réticulum endoplasmique et le stress oxydatif. L'évaluation de la résistance à divers agents stressants est essentielle, car des perturbations génétiques ou physiologiques peuvent améliorer la résistance à un type de stress tout en augmentant la vulnérabilité à un autre, révélant ainsi des mécanismes spécifiques à chaque stress ainsi que des mécanismes partagés d'adaptation au stress. Ces tests permettent des comparaisons quantitatives de la résistance au stress entre différents génotypes et conditions expérimentales, et peuvent être facilement utilisés pour étudier les rôles des gènes, des neurones et des voies métaboliques dans le maintien de la résistance au stress et de l'homéostasie physiologique. De manière plus générale, ces méthodes offrent une plateforme solide pour identifier les mécanismes favorisant la santé et la survie de l'organisme dans des conditions environnementales défavorables.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à divulguer.
Remerciements
Les travaux de recherche mentionnés dans cette publication ont été financés par le Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), le Center of Biomedical Research Excellence (COBRE, P20 GM113109) et le Johnson Cancer Research Center de la Kansas State University (subvention Cancer Research Expansion Award) attribués à S.H.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Tunicamycine | Sigma-Aldrich | T7765 | Inducteur de stress du RE |
| Antimycine A | Sigma-Aldrich | A8674 | Inducteur de stress mitochondrial |
| Hydrate de dichlorure de viologène méthylé (paraquat) | Sigma-Aldrich | 856177 | Inducteur de stress oxydatif |
| Acide palmitique | MP Biomedicals, LLC | 100905 | Supprime le comportement d'échappement de C. elegans |
| Cholestérol | MP Biomedicals, LLC | 101382 | Pour NGM |
| Chlorure de calcium | Thermo Fisher Scientific Inc. | C79-500 | Pour NGM |
| Sulfate de magnésium anhydre | Mallinckrodt Pharmaceuticals plc | 6070 | Pour NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Pour NGM |
| Peptone | Apex Chemicals Co., Ltd | 20-260 | Pour NGM |
| Phosphate monobasique de potassium | Thermo Fisher Scientific Inc. | P285-3 | Pour NGM |
| Chlorure de sodium | Thermo Fisher Scientific Inc. | S640-3 | Pour NGM |
| Phosphate dibasique de potassium | Allied Chemical, General Chemical Division | Code 2131 | Pour NGM |
| Plaques de Pétri (35 mm) | Genesee Scientific, LLC | 32-103 | Plaques pour les tests de stress |
| Plaques de Pétri (60 mm) | Genesee Scientific, LLC | 32-105 | Entretien de C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| Agitateur-incubateur réfrigéré New Brunswick Scientific (Eppendorf) C24KC | Eppendorf / New Brunswick Scientific | C24KC | Incubateur à 37 °C |
| Incubateur chauffant/refroidissant DigiTherm® 38 litres | Tritech Research Inc. | DT2-MP-47L | Incubateur à 35 °C |
| Incubateur à basse température Fisher Scientific Isotemp | Fisher Scientific | 146E | Incubateur à 30 °C |
| Incubateur réfrigéré SHELab SRI20P | Sheldon Manufacturing Inc. | SRI20P | Incubateur à 20 °C |
| Microscope stéréo Leica M165 FC Research | Leica Microsystems | M165 FC | Microscope pour l'imagerie |
| Microscope stéréo à zoom ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | Microscope pour la manipulation et l'évaluation des vers |
| Microsoft Excel 2019 | Microsoft Corporation | Tracé des données brutes | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Visualisation des données | |
| OASIS 2 | POSTECH, PMID: 27528229 | Analyse statistique | |
| BioRender | Science Suite Inc. | Illustration schématique | |
| ImageJ | National Institutes of Health (NIH) | Traitement d'images | |
| Adobe Illustrator 2021 | Adobe Inc. | Mise en page et assemblage des figures | |
| sauvage | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | fabriqué en laboratoire | Ablation des RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. Les neurones RIC sont marqués par GFP et mCherry | Caenorhabditis Genetics Center, CGC | OH16150 |
Références
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible