Deux approches de co-culture sans contact sont décrites pour l'évaluation qualitative et quantitative des réponses morphologiques fongiques durant des interactions interspécifiques. Le protocole montre comment les facteurs intrinsèques influencent la croissance des hyphes, en utilisant un test interspécifique de Candida comme exemple. Ces méthodes peuvent être facilement adaptées pour étudier la communication interspécifique microbienne chez des organismes variés.
Article de méthode
Essais de co-culture sans contact pour les études morphométriques lors d'interactions interspécifiques chez les champignons
Dans cet article
Résumé
Résumé
Le comportement et la morphologie cellulaires sont généralement influencés par divers facteurs intra- et extracellulaires au sein d'une communauté microbienne. Les différentes approches disponibles pour étudier la communication microbienne peuvent être fastidieuses et/ou nécessiter des installations spécialisées ainsi qu'une expertise particulière. Ici, deux approches complémentaires de co-culture sans contact sont décrites : le test de co-culture en plaque de puits avec insert de membrane et le test basé sur le surnageant cellulaire libre (CFS), qui reposent sur la transition morphologique comme réponse mesurable afin d'explorer le rôle de divers facteurs dans une interaction interspécifique donnée. Le système de plaque de puits avec insert de membrane permet, tout en autorisant la diffusion de molécules extracellulaires, une interaction en temps réel entre des espèces physiquement séparées. En comparaison, le test basé sur le CFS offre une approche simplifiée et reproductible pour évaluer les réponses à des milieux conditionnés. Le protocole présenté ici inclut des procédures standardisées pour la préparation des cultures, la production de surnageants conditionnés, la mise en place du test, la microscopie, l'acquisition d'images, l'analyse morphométrique quantitative à l'aide de Fiji, ainsi que l'évaluation statistique. Cela est illustré par un exemple de réponse morphologique fongique à des facteurs intrinsèques et extrinsèques. Les méthodes décrites ici fournissent des outils accessibles et adaptables pour étudier de nouvelles interactions microbiennes au sein d'une communauté, et pourraient facilement être étendues afin d'explorer les mécanismes sous-jacents à la coexistence de multiples espèces dans une communauté.
Introduction
Dans les écosystèmes naturels et cliniques, les micro-organismes résident généralement au sein de communautés polymicrobiennes structurées, régies par des réseaux complexes d'interactions intra- et inter-espèces communication1Ces consortiums utilisent divers signaux chimiques, notamment des molécules de type quorum-sensing, des composés organiques volatils, ainsi que des peptides et des protéines sécrétés, afin de coordonner des comportements au niveau des populations.2Cartographier ces dynamiques de communication est essentiel, car les interactions coopératives, compétitives ou prédatrices au sein des niches modifient considérablement le métabolisme microbien, l'architecture spatiale et l'adaptation au stress.3Cliniquement, ces réseaux polymicrobiens (tels que les consortiums bactéro-fongiques à deux espèces ou les consortiums fongo-fongiques interspécifiques) présentent fréquemment une virulence synergique, une colonisation accélérée des tissus et une résistance accrue aux antimicrobiens, par rapport aux monocultures.4,5. La découverte des déterminants moléculaires des communications microbiennes est donc essentielle pour dépasser les modèles traditionnels et développer des stratégies anti-infectieuses innovantes capables de perturber la stabilité des communautés microbiennes6.
Pour disséquer les différents modes de communication microbienne, les chercheurs utilisent des configurations expérimentales variées, principalement employées en biologie cellulaire des mammifères, en immunologie et en oncologie7,8,9. Par exemple, les modèles de co-culture en contact direct constituent la norme pour étudier la signalisation juxtacrine et les interactions physiques entre cellules10. Des dispositifs similaires, modifiés, sont également utilisés pour étudier les interactions physiques entre micro-organismes, afin de comprendre l'inhibition croisée entre micro-organismes ou la réponse aux médicaments9,11,12. Toutefois, il est difficile de distinguer les mécanismes sous-jacents, car les signaux dépendants du contact et les signaux diffusibles contribuent tous deux à la réponse observée. Bien que les essais classiques basés sur le contact puissent fournir des informations spatiales, ils sont laborieux et/ou nécessitent un marquage distinct des souches, ce qui peut s'avérer fastidieux pour les organismes non modèles. En revanche, les essais Transwell (plaque de culture avec insert à membrane) sont utilisés, principalement dans les études sur les cellules de mammifères, pour distinguer les contributions des signaux dépendants du contact et des signaux diffusibles13,14,15,16. Cette méthode est particulièrement utile lorsque la communication cellulaire est médiée par des molécules sécrétées, permettant une analyse en temps réel de la dynamique des signaux entre populations cellulaires17. De plus, les essais sans contact offrent l'avantage d'une séparation par membrane, ce qui permet également d'intégrer des expériences avec des modèles informatiques afin de suivre dynamiquement les micro-organismes que les méthodes traditionnelles ne détectent pas18. Cette approche est parfois utilisée pour étudier simultanément la cinétique du développement de différentes espèces bactériennes19.
Une alternative plus économique et à haut débit au test utilisant des plaques de culture avec inserts de membrane est le test fondé sur le surnageant acellulaire (CFS) ou sur un milieu conditionné. Ce dernier est connu pour être utilisé en médecine régénérative et en biologie vasculaire afin d'isoler les sécrétomes nécessaires à la compréhension de la réparation tissulaire médiée par les cellules souches et/ou de l'angiogenèse induite par les tumeurs20. De manière similaire, dans les études microbiennes, les approches fondées sur le CFS se sont révélées utiles pour décrypter la compétition polymicrobienne. Par exemple, des filtrats bactériens (tels que les Pseudomonas aeruginosa acyl-homosérines lactones ou les Lactobacillus métabolites) ont été utilisés pour moduler la maturation de biofilms fongiques21,22. Récemment, les plateformes microfluidiques ont permis une biomimétique physiologique de haute fidélité grâce aux technologies d'organes-sur-puce23,24. Bien que des systèmes microfluidiques aient été mis en œuvre pour la détection simultanée de la réponse de la communauté microbienne à leurs sécrétomes, ils nécessitent un équipement spécialisé et une expertise particulière, et ne peuvent pas être facilement mis en place dans tous les contextes25,26,27. Ainsi, les tests utilisant des plaques avec inserts de membrane ou fondés sur le CFS s'annoncent comme les méthodes de choix dans la plupart des cas. Le choix entre ces deux tests dépendra de la nature de la molécule sécrétée. Si la molécule sécrétée est instable, c’est-à-dire qu’elle a une courte demi-vie, et qu’il est nécessaire de mesurer son activité en temps réel, le test utilisant des plaques avec inserts de membrane est plus approprié. En revanche, si la molécule sécrétée est stable et que l’expérience est réalisée à grande échelle, un test fondé sur le CFS sera plus économique.
L'objectif principal de ce protocole est de présenter une méthodologie qualitative et quantitative étape par étape permettant de suivre les caractéristiques morphologiques, en utilisant les plaques de culture avec inserts membranaires et les plates-formes CFS (Figure 1). Ici, cette approche est illustrée par la communication induite par des facteurs sécrétés entre Candida albicans et Candida glabrata. En outre, ces outils permettent également de quantifier les effets de variables génétiques intrinsèques (ploïdie et statut du locus de conjugaison) sur le développement géométrique absolu (longueur, volume et diamètre) des filaments de C. albicans lorsqu'ils sont exposés à des molécules de signalisation sécrétoires. Ce protocole établi fournit une plate-forme simple, abordable et sans contact, adaptée à l'étude de la dynamique de signalisation interspécifique.
Protocole
Les deux espèces, C. albicans et C. glabrata, sont classées comme agents pathogènes opportunistes humains de niveau de biosécurité 2 (BSL-2). Toutes les étapes expérimentales doivent être réalisées à l’intérieur de hottes de sécurité biologique certifiées, en stricte conformité avec les bonnes pratiques microbiologiques (GMP) et les procédures institutionnelles de confinement. Des équipements de protection individuelle (EPI), comprenant des blouses de laboratoire, des gants doubles et des lunettes de protection, doivent être portés en permanence. Tous les consommables contaminés, le matériel plastique et les cultures liquides doivent subir une stérilisation validée en autoclave (121 °C, 15 psi, pendant 20 min) ou une désinfection chimique à l’aide d’une solution fraîchement préparée d’hypochlorite de sodium à 10 % avant leur élimination définitive (Recommandé : Guide 2022 de l’Institut National de la Santé (NIH) sur l’élimination des déchets). Tous les réactifs standards, produits chimiques de qualité analytique et équipements utilisés dans cette méthodologie sont décrits dans le Tableau des matériaux. Les caractéristiques des souches fongiques et les génotypes de référence sont précisés dans le Tableau 1. La liste des milieux utilisés dans cette étude, avec leurs compositions, est fournie dans le Fichier supplémentaire 1.
1. Préparation du surnageant acellulaire (CFS)
- Initiation et incubation de la culture
- À l’aide d’une anse en plastique stérile, prélever une colonie isolée unique de C. glabrata CBS138 fraîchement cultivée sur une plaque d’agar de milieu minimal au glucose (GMM)28. Inoculer cette colonie dans un tube en verre stérile contenant 10 mL de bouillon standard Yeast Peptone Dextrose (YPD) (1 % p/v d’extrait de levure, 2 % p/v de peptone, 2 % p/v de D-glucose)29.
- Fermer hermétiquement le tube et le placer dans un incubateur agitateur orbital. Incuber la culture à une température constante de 37 °C avec agitation continue à 200 tr/min pendant 18 h.
- Vérifier que la culture est uniformément entrée en phase stationnaire tardive en s’assurant que la densité optique (OD600) se situe dans une plage stable comprise entre 12,0 et 14,0. Observer les cellules au microscope afin de confirmer qu’elles sont sous forme levurienne et exemptes de contamination. Cette fenêtre de développement est essentielle pour garantir une accumulation optimale des composants stables du sécrétome extracellulaire.
- Séparation cellulaire et filtration
- Transférer de manière aseptique la culture liquide de C. glabrata de 18 h dans un tube conique en polypropylène stérile de 15 mL.
- Équilibrer les tubes puis centrifuger la culture à 5 000 x g pendant exactement 5 min à une température ambiante contrôlée de 25 °C afin de compacter la biomasse en un culot compact.
- Transvaser le surnageant liquide brut dans une seringue en plastique stérile de 20 mL. Fixer soigneusement la seringue à un filtre stérile en polyéthersulfone (PES) de 0,22 µm à faible liaison aux protéines.
- Appliquer une pression mécanique régulière pour faire passer le liquide à travers le filtre PES dans un tube de collecte stérile de 15 mL, produisant ainsi le Surnageant Cellulaire Libre (CFS) utilisable. Si une résistance est ressentie pendant la filtration, ne pas appliquer une pression excessive, car cela pourrait provoquer la rupture de la membrane. Dans ce cas, utiliser un filtre neuf.
NOTE : Ne pas soumettre le CFS fraîchement obtenu à des cycles rapides de congélation-décongélation ni à des températures de stockage inférieures à 4 °C avant la mise en place du test, car la précipitation à froid pourrait déstabiliser des facteurs protéiques peu abondants. - Conserver le culot cellulaire compacté dans le tube de collecte initial si l’on passe directement à l’expérience de co-culture en plaque à puits avec insert membranaire (Étape 4).
2. Préparation de l'inoculum de Candida albicans pour les tests d'induction des hyphes
- Préparation et entretien de l'inoculum
- Prélever les souches cibles de C. albicans (se référer au Tableau 1 pour les génotypes) directement à partir des stocks maîtres de glycérol conservés à -80 °C. Étaler les cellules sur des géloses GMM (base d'azote de levure à 0,67 % p/v sans acides aminés, D-glucose à 2 % p/v, agar à 2 % p/v) afin d'obtenir des colonies de travail.
- Pour les souches diploïdes (SC5314, RBY1132, RBY1133) : inoculer une colonie isolée dans 5 mL de milieu liquide GMM. Incuber le tube pendant 12 h à 37 °C sous agitation constante à 200 tr/min.
REMARQUE : l'utilisation d'un milieu minimal (GMM) pour la préparation nocturne des cellules diploïdes est essentielle afin de supprimer l'auto-filamentation spontanée, fréquemment observée dans les milieux riches en nutriments. - Pour les souches haploïdes (GZY896, GZY803) : inoculer une colonie isolée dans 5 mL de bouillon YPD supplémenté avec 0,1 mg/mL d'uridine (YPDU). Incuber le tube pendant 12 h à 37 °C avec agitation continue à 200 tr/min.
- Pour préserver la stabilité morphologique et assurer la reproductibilité, limiter le nombre de sous-cultures liquides consécutives à un maximum de trois passages. Si l'auto-filamentation ou le regroupement pseudohyphal dépasse 2 % dans la population initiale témoin, éliminer la souche et repartir de cellules fraîches issues des stocks congelés maîtres.
- Normalisation
- Prélever 1 mL des cultures liquides de nuit dans des cuvettes stériles. Mesurer l'absorbance exacte à 600 nm (DO600) à l'aide d'un spectrophotomètre UV-visible étalonné, en utilisant du bouillon GMM ou YPDU frais comme témoin de blanc.
REMARQUE : la DO600 (densité cellulaire) des cultures liquides de nuit, en particulier celles cultivées dans du YPDU, dépasserait la plage de sensibilité du spectrophotomètre. Dans de tels cas, diluer les cultures de façon appropriée (10 à 20 fois) avant d'effectuer les mesures. - Calculer le volume de culture dense nécessaire pour obtenir une suspension cible normalisée. Diluer les cellules avec du milieu GMM liquide préchauffé (37 °C) dans un tube stérile afin d'obtenir une inoculum de travail de 1 mL ajusté à une DO600 finale absolue de 0,1.
- Prélever 1 mL des cultures liquides de nuit dans des cuvettes stériles. Mesurer l'absorbance exacte à 600 nm (DO600) à l'aide d'un spectrophotomètre UV-visible étalonné, en utilisant du bouillon GMM ou YPDU frais comme témoin de blanc.
3. Test d'induction des hyphes basé sur le CFS (format plaque 96 puits)
- Configuration du test
- Prendre une plaque stérile, optiquement claire, à fond plat, en polystyrène, de 96 puits (microplaque).
- Configuration des puits d'essai : Distribuer 45 µL de CFS fraîchement filtré de C. glabrata (provenant de l'étape 1.2.4) directement dans les puits d'essai désignés. Ajouter 45 µL de bouillon GMM stérile (ou de bouillon YPDU si on évalue des souches cibles haploïdes).
- Contrôles négatifs du milieu : Ajouter 90 µL de bouillon GMM dans les puits témoins. En outre, dans un puit distinct, mélanger 45 µL de bouillon GMM stérile avec 45 µL de bouillon YPD non inoculé (témoin) afin de surveiller les composants de fond du milieu.
- Contrôles positifs d'induction : Ajouter 80 µL de bouillon GMM combinés à 10 µL de sérum de veau fœtal (FBS ; concentration finale de 10 % v/v).
- Inoculation : Distribuer exactement 10 µL de l'inoculum de travail de C. albicans normalisé à une DO600 = 0,1 (provenant de l'étape 2.2.2) dans 90 µL de milieu approprié dans tous les puits expérimentaux et de contrôle.
- Incubation et collecte des données
- Couvrir la plaque de 96 puits avec son couvercle en plastique adapté afin de minimiser l'évaporation. Placer la plaque dans un incubateur statique maintenu à 37 °C pendant exactement 3 h. Éviter tout déplacement ou agitation de la plaque pendant cette période afin de permettre une filamentation stable.
- Après incubation, placer la plaque à puits verticalement sur la platine d'un microscope optique inversé équipé d'un système d'éclairage en champ clair et d'un module caméra CCD numérique intégré.
- Capturer systématiquement des images automatiques ou manuelles couvrant au moins cinq champs distincts par puit.
- Répéter cette configuration d'essai avec des doublons techniques clairs pour chaque condition, et au moins trois réplicats biologiques indépendents complets préparés à des jours différents.
4. Essai de co-culture en plaque de puits avec insert de membrane
- Configuration du compartiment abluinal (inférieur)
- Prendre une plaque de culture tissulaire stérile à 24 puits.
- Distribuer exactement 1,0 mL de la suspension cellulaire de C. albicans normalisée à une DO600 = 0,1 (provenant de l'étape 2.2.2) dans les chambres abluinales inférieures.
- Configuration du compartiment luminal (supérieur)
- Récupérer le culot cellulaire de C. glabrata mis de côté lors de l'étape 1.2.5. Resuspendre le culot dans 1 mL de bouillon GMM stérile, centrifuger à 5000 x g pendant 3 min, puis décantation du liquide. Répéter cette étape de lavage deux fois afin d'éliminer les composants nutritifs résiduels ou les éléments anciens du milieu.
- Resuspendre le culot lavé final dans du bouillon GMM frais et ajuster la densité optique finale à une valeur fortement concentrée de DO600 = 5,0.
- À l’aide de pinces stériles, prendre un insert de puits stérile muni d’une membrane en polycarbonate de 0,4 µm de porosité fabriquée par irradiation. Introduire délicatement le corps de l’insert dans le puits occupé de la plaque à 24 puits, en fixant ses rebords supérieurs sur les encoches centrales.
- Distribuer exactement 750 µL de la culture concentrée de C. glabrata à une DO600 = 5,0 dans la chambre supérieure de l’insert luminal.
REMARQUE : Le maintien d’un rapport initial de cellules d’environ 1:50 (C. albicans par rapport à C. glabrata) à travers la barrière membranaire permet une accumulation suffisante de ligands de signalisation tout en évitant les artefacts de rétroaction localisés.
- Incubation et imagerie
- Couvrir l’ensemble de la plaque munie d’inserts à membrane et incuber statiquement ou avec un léger agitage orbital (30 tr/min) à 37 °C pendant exactement 3 h.
- Après incubation, utiliser des pinces stériles pour soulever et extraire soigneusement l’insert luminal supérieur de chaque puits. Jeter les inserts dans les déchets biologiques dangereux.
REMARQUE : Le retrait complet de la membrane de l’insert supérieur avant l’imagerie est nécessaire pour éliminer les ombres réfractives, les motifs de diffusion de la lumière et les artefacts de grille de fond lors de l’analyse microscopique à haute résolution. - Placer la plaque à 24 puits sur la platine du microscope inversé pour l’évaluation morphologique. Dans cette étude, un microscope inversé équipé d’un objectif 10x/0,30NA, 20x/0,50NA ou 40x/0,60NA à distance de travail extra-longue, accompagné d’un filtre DIC, a été utilisé.
5. Microscopie à haute résolution et analyse numérique d'images
- Acquisition d'images numériques
- Balayer les fonds des puits à l'aide d'un objectif de faible grossissement (10x) afin de vérifier une distribution uniforme des cellules et signaler toute erreur localisée de suivi ou tout regroupement anormal des cellules.
- Acquérir au minimum 10 champs distincts à l’aide d’un objectif calibré de 20x. Ces images constituent le jeu de données principal permettant de suivre les décomptes standard de filaments et les distributions des populations.
- Pour une analyse phénotypique fine et des mesures détaillées des limites cellulaires, acquérir des microphotographies en utilisant une configuration d'objectif à distance de travail extra-longue de 40x. Enregistrer tous les fichiers d'image bruts.
- Pipeline de phénotypage quantitatif (Fiji)
- Lancer le Fiji (version 1.54p ou supérieure) de traitement. Ouvrez la micrographie cible en accédant à Fichier > Ouvrir ou en faisant glisser le fichier directement dans le Fiji panneau de commande
- Suivi de la longueur des hyphes (L) : cliquez avec le bouton droit sur l'icône de sélection de ligne dans le menu principal Fiji barre d'outils et sélectionnez le Outil de ligne segmentée dans le menu déroulant. Positionnez le curseur au point de jonction précis où le filament en mouvement émerge de la limite de la paroi de la cellule mère de levure.
- Cliquez continuellement avec le bouton gauche pour tracer l'axe longitudinal central de l'hyphes, en plaçant des points d'ancrage pour ajuster les courbures ou les coudes éventuels, et terminez la ligne à l'extrémité apicale absolue. Cliquez sur Mesurer pour enregistrer la longueur en micromètres (µm). Appuyez Ctrl+M (Windows) ou Cmd+M (Mac OS) pour enregistrer la longueur totale (L) en micromètres (µm) dans la fenêtre des Résultats.
- Pour éviter des mesures doubles du même filament, utilisez l’outil « Pinceau » intégré pour surligner chaque cellule terminée.
- Analyse de la cellule mère de levure : Localiser le corps de la cellule mère de levure attachée correspondant au filament hyphal précédemment suivi. Utiliser le Outil de ligne segmentée tracer une ligne droite le long de l'axe longitudinal maximal du corps cellulaire afin de mesurer son axe le plus long (axe majeur, défini comme la variable « a ») et exécuter le Mesurer commande.
- Tracer une ligne secondaire strictement perpendiculaire à l'axe majeur, traversant l'étendue transversale la plus large du corps cellulaire, afin de mesurer son axe transversal perpendiculaire correspondant (axe mineur, défini comme la variable « b ») et exécuter le Mesurer commande.
- Calculer le volume total de la cellule mère de levure (CV, exprimé en micromètres cubes), µm3) en appliquant le modèle géométrique standard d'un sphéroïde allongé à l'aide des variables logarithmées pour « a » et « b » : CV = 4/3 π ab2.
- Épaisseur structurale des hyphes (d) : Sélectionner le Outil de ligne segmentée. Mesurer la distance entre les parois extérieures c'est-à-dire une ligne tracée perpendiculairement à l'axe longitudinal. Effectuer ces mesures en trois points distincts et équidistants le long de la longueur du filament afin de tenir compte des variations structurelles naturelles, en enregistrant chaque mesure via le Mesurer commande
- Calculez la moyenne arithmétique de ces trois points de données distincts afin de déterminer une valeur précise d'épaisseur moyenne (d). Divisez cette valeur moyenne de diamètre par deux pour obtenir le rayon, variable structurelle (r = d/2).
- Calculer le volume total du filament hyphal (HV, exprimé en µm3) en traitant le filament comme un cylindre géométrique régulier non ramifié. Appliquer la longueur du filament suivie (L) et le rayon structural déduit (r) au modèle de calcul suivant : HV = π r2 L.
6. Conception statistique
- Réplicats biologiques
- Effectuez toutes les configurations de tests individuels sur au moins trois répétitions biologiques indépendantes en utilisant des cultures initiales fraîches, préparées séparément.
- Dans chaque essai biologique, attribuer au minimum deux puits techniques identiques par condition afin de tenir compte des effets localisés liés aux bords des puits ou des variations de pipetage.
- Définition de l'unité expérimentale : Pour garantir la validité statistique et éviter les artefacts, inclure au minimum trois répétitions techniques pour chaque expérience. Les cellules individuelles mesurées au sein d'un même puits constituent des sous-échantillons techniques ; de même, trois tels puits correspondent à trois réplicats techniques. De même, trois réplicats biologiques (expériences indépendantes) sont recommandés pour chaque échantillon (N = 3).
- Pour chaque condition distincte au sein d'un essai biologique, mesurer aléatoirement entre 50 et 100 cellules individuelles sur plusieurs champs microscopiques. Pour chaque réplicat biologique, calculer la valeur moyenne ou médiane de ces mesures cellulaires. Utiliser ces valeurs moyennes ou médianes provenant des réplicats biologiques pour tous les tests statistiques comparatifs ultérieurs.
- Analyse de la répartition et test d'hypothèses
- Soumettez les jeux de données des réplicats biologiques à une évaluation de la normalité à l’aide des tests de Shapiro-Wilk ou de D’Agostino-Pearson avant d’appliquer des méthodes paramétriques (par exemple, comparaison des moyennes).
- Comparaisons entre deux groupes : Lorsqu'on compare un seul groupe test directement à un seul groupe témoin (par exemple, de type sauvage) C. albicans croissance en milieu pur par rapport à la croissance en isolat C. glabrata CFS), appliquer un test t de Student non apparié bilatéral test t, à condition que le jeu de données suive une distribution normale.
- Si les données s'écartent significativement d'une distribution normale, recourir à une alternative non paramétrique, telle que le test U de Mann-Whitney (test de la somme des rangs de Wilcoxon), qui compare les valeurs médianes de données classées et ne dépend pas des valeurs absolues des données. On sait également que les tests non paramétriques sont insensibles aux valeurs aberrantes.
- Évaluations à groupes multiples : Lorsqu'on évalue simultanément trois lignées génétiques ou combinaisons de traitements ou plus (par exemple, en suivant les variations morphologiques au cours de MATa/a, MATα/α, et MATa/α souches), réaliser une analyse de variance unidirectionnelle (ANOVA) standard suivie du test a posteriori de Tukey pour des comparaisons par paires multiples. Si l'hypothèse de normalité n'est pas respectée, remplacer l'approche paramétrique par un test non paramétrique de Kruskal-Wallis suivi d'une analyse des comparaisons multiples a posteriori de Dunn.
- Représentation graphique et visualisation des données : Effectuer toutes les analyses statistiques et représentations graphiques à l'aide de logiciels statistiques et de création de graphiques.
REMARQUE : Un logiciel équivalent peut être utilisé pour effectuer les analyses statistiques et préparer les représentations graphiques. Les données provenant des plaques de culture avec inserts membranaires et des tests de CFS peuvent être représentées à l'aide de graphiques en colonnes avec points dispersés, de graphiques en violon avec dispersion ou de graphiques en boîte avec dispersion, illustrant la médiane (ligne centrale) et l'intervalle de confiance à 95 % (utilisé dans cette étude), ou la médiane (ligne centrale) ainsi que les premier et troisième quartiles (lignes supérieure et inférieure, respectivement). - Fixer le seuil de significativité statistique formelle à un niveau alpha de p < 0,05. Conserver les configurations conventionnelles de notation dans toutes les figures et tableaux générés. Par exemple : ns : p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Résultats
Essais de co-culture sans contact pour explorer les interactions inter-espèces
Les molécules solubles de signalisation extracellulaire, présentes en faible abondance, interviennent souvent dans des événements clés de communication lors de la cohabitation microbienne mixte. Ces dynamiques ont été évaluées à l’aide de deux dispositifs cellulaires sans contact, conçus pour analyser les schémas d’interaction entre C. albicans et C. glabrata, tout en empêchant tout contact physique direct entre cellules. La première configuration utilisait un système de culture en plaque à puits avec insert à membrane intégré, dans lequel les deux populations étaient séparées physiquement par une membrane en polycarbonate inerte poreuse de 0,4 µm, permettant une diffusion bidirectionnelle sans entrave des molécules sécrétées à travers la barrière. La deuxième configuration a consisté à surveiller la croissance des cellules levuriennes de C. albicans cultivées directement dans des plaques de microtitration contenant un surnageant acellulaire prélevé à partir de cultures de C. glabrata en phase stationnaire (CgCFS).
Conformément aux écrans précédents30, les cellules diploïdes hétérozygotes de type sauvage de C. albicans (SC5314) ont facilement développé des hyphes véritables en réponse soit à des cellules de C. glabrata séparées par la barrière de l'insert membrane, soit au CgCFS filtré. En revanche, les cellules maintenues dans un milieu contrôle négatif pur (GMM ou YPD) sont restées principalement sous forme de levure bourgeonnante et de pseudohyphes (Figure 2A). Les analyses comparatives ont montré une cohérence entre les deux dispositifs de test. Les deux essais ont donné des valeurs comparables pour toutes les métriques structurales, notamment la longueur, le volume et l'épaisseur des filaments (Figure 2). La différence entre les paramètres morphologiques a été considérée comme significative si la valeur p issue des tests statistiques appropriés, suivis de tests post-hoc pour comparaisons multiples, atteignait le seuil de 0,05. Ces observations ont montré qu'il n'existait pas de différence significative chez les cellules de C. albicans concernant la longueur des hyphes véritables induits par les cellules de C. glabrata dans le système de plaque de puits avec insert membrane (39,66 µm ± 6,81 µm) ou lorsqu'elles étaient exposées au CgCFS filtré (37,13 µm ± 6,50 µm ; Figure 2B). De même, les volumes de ces filaments induits dans le système de plaque de puits avec insert membrane (112,10 µm3 ± 22,59 µm3) n'étaient pas significativement différents de ceux observés dans le milieu conditionné par le CgCFS (109,78 µm3 ± 34,69 µm3 ; Figure 2C). En outre, les mesures du diamètre des filaments ont confirmé que l'épaisseur moyenne des hyphes restait constante entre les deux dispositifs, avec des valeurs de 1,89 ± 0,10 µm pour la configuration de plaque de puits avec insert membrane et de 1,92 µm ± 0,23 µm pour le traitement au CgCFS (Figure 2D).
Les états de ploïdie et les configurations du type sexuel modifient les dimensions morphologiques in vitro
Les rôles des niveaux de ploïdie et des architectures du locus d'accouplement dans la régulation des transitions dimorphiques ont été établis dans différents systèmes modèles de champignons. Ici, un pipeline analytique de suivi a été appliqué pour quantifier les paramètres de filamentation, notamment la longueur des hyphes, le volume structural, l'épaisseur et le volume correspondant de la cellule mère en forme de levure, chez un ensemble de souches haploïdes (MATa ou MATα) et diploïdes (MATa/a, MATα/α ou MATa/α) de C. albicans.
Le profilage structural a révélé que, suite à l'exposition au sécrétome inducteur de CgCFS ou au sérum témoin positif, la souche diploïde homozygote alpha (MATα/α) formait des filaments ayant des axes significativement plus longs (45,56 µm ± 9,24 µm et 46,62 µm ± 9,07 µm) et un volume plus important (125,24 µm3 ± 39,94 µm3 et 119,45 µm3 ± 37,32 µm3), comparée à la souche diploïde homozygote MATa/a (Figure 3A,C). Bien que les isolats cliniques standards de C. albicans existent principalement sous forme de diploïdes hétérozygotes, la souche témoin MATa/α présentait des filaments plus longs et des volumes plus grands par rapport à la souche MATa/a après induction (notamment avec le sérum). Toutefois, ces valeurs étaient significativement inférieures à celles observées chez la souche homozygote MATα/α (Figure 3B,D).
Parallèlement, les souches haploïdes ont montré un schéma inverse, où la souche haploïde MATa présentait une augmentation significative de la longueur des hyphes par rapport à la souche haploïde MATα dans les deux conditions d'induction (CgCFS : 22,06 µm ± 5,41 µm contre 17,58 µm ± 4,12 µm ; Sérique : 23,71 µm ± 6,59 µm contre 21,00 µm ± 5,29 µm ; Figure 4A). Fait intéressant, cette augmentation de la longueur dans le contexte haploïde se traduisait par une augmentation du volume des hyphes (38,84 µm3 ± 19,58 µm3 contre 34,25 µm3 ± 19,62 µm3) uniquement en réponse au CgCFS (Figure 4B). Ces premières mesures in vitro suggèrent une interaction complexe entre les états de ploïdie et les configurations du locus du type sexuel, indiquant que les locus MATa et MATα contribueraient probablement de manière différente à la dynamique de la filamentation.
Afin d'étudier les relations statistiques entre ces métriques structurelles au sein des jeux de données combinés, des analyses de corrélation de rang de Spearman (ρ) et de régression linéaire de Pearson (R2), incluant toutes les variantes de ploïdie et de type de reproduction testées, ont été réalisées. Des corrélations positives ont été observées pour toutes les paires analysées : longueur des hyphes par rapport au volume des hyphes, longueur des hyphes par rapport à l'épaisseur des hyphes, longueur des hyphes par rapport au volume de la cellule mère, et volume total des hyphes par rapport au volume de la cellule mère en forme de levure (Figure 5, Tableau supplémentaire 1 et Tableau supplémentaire 2).
La relation la plus forte a été observée entre la longueur des hyphes et le volume hyphal calculé (ρ = 0,91 ; Figure 5A). En revanche, la corrélation la plus faible concernait le volume initial de la cellule mère levurienne et le volume hyphal émergent (ρ = 0,63 ; Figure 5C). De plus, l'épaisseur hyphale ne corrélait pas aussi fortement avec la longueur hyphale que ne le faisait le volume hyphal (Figure 5A,D). Le volume de la cellule mère, la longueur hyphale et l'épaisseur hyphale ne présentaient pas de différences statistiquement significatives dans leurs corrélations (Figure 5B,D). Ces distributions géométriques suggèrent qu'un volume initial plus élevé de la cellule mère levurienne ne conduit pas nécessairement à des hyphes plus longs ou à un volume plus important.
En résumé, ces résultats démontrent l'utilité des plaques de culture avec inserts de membrane et des tests basés sur le CFS pour visualiser et quantifier les variations morphogénétiques chez C. albicans, sans aucun contact physique. Les données générées par ce protocole révèlent des caractéristiques morphologiques différentes selon les fonds génétiques de ploïdie et les configurations de type d'accouplement. Ces dispositifs expérimentaux sans contact offrent une méthodologie souple et évolutible, adaptable à l'étude de la dynamique de signalisation interspécifique dans diverses combinaisons microbiennes.
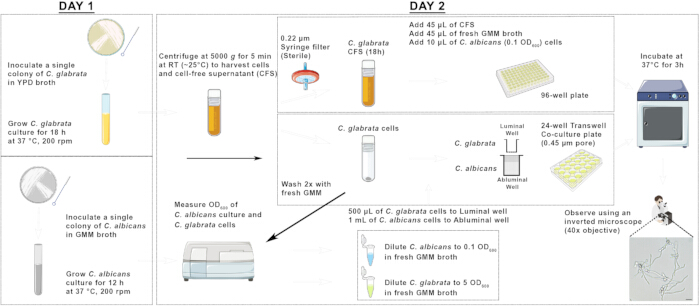
Figure 1: Représentation schématique des plaques de culture en insert à membrane pour les essais de co-culture et d'induction des hyphes basés sur le surnageant de culture filtré (CFS) avec des espèces de Candida. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
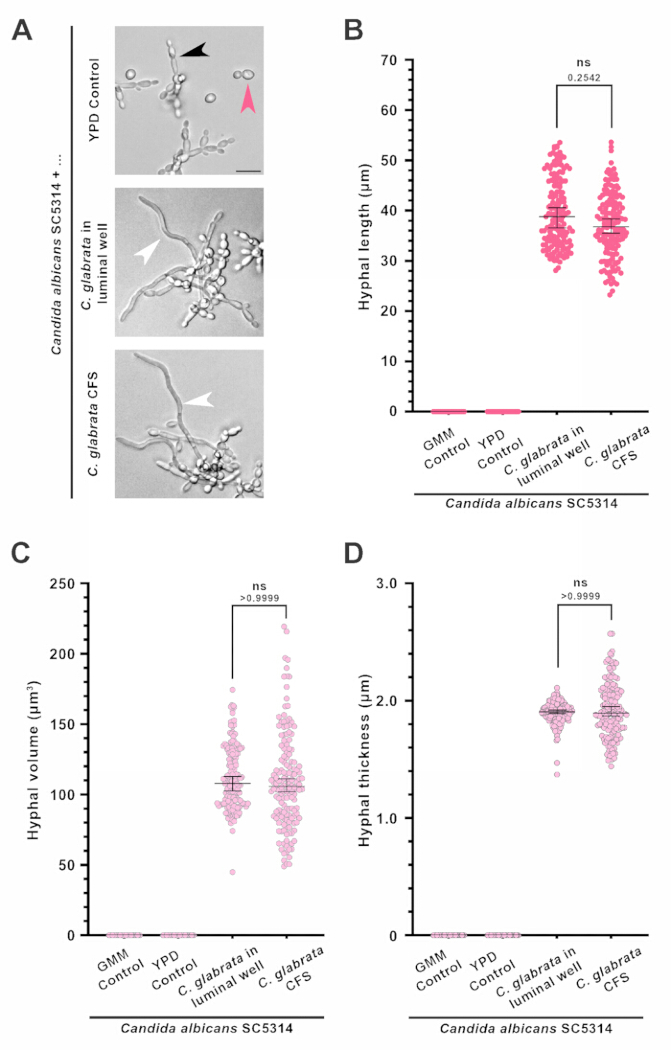
Figure 2 : Comparaison des morphologies hyphales observées entre le système de plaque à puits avec insert membranaire et les tests sans contact basés sur le surnageant acellulaire (CFS). (A) Microphotographies représentatives en champ clair illustrant la réponse morphologique de C. albicans au YPD (témoin), à C. glabrata dans un dispositif de plaque à puits avec insert membranaire, ou au milieu conditionné par le surnageant acellulaire (CFS) de C. glabrata. Les flèches roses, noires et blanches indiquent respectivement les formes levuriennes, pseudohyphales et les vrais hyphes. Échelle : 10 µm. Longueurs des hyphes (B), volumes des hyphes (C) et épaisseur des hyphes (D) d'une souche diploïde hétérozygote de C. albicans (SC5314) observées en réponse aux cellules de C. glabrata dans un dispositif de plaque à puits avec insert membranaire ou au CFS de C. glabrata. Les données représentent la médiane ± intervalle de confiance à 95 %, issues de trois expériences biologiques indépendantes, avec n = 50 cellules. ns, non significatif : p > 0,05. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
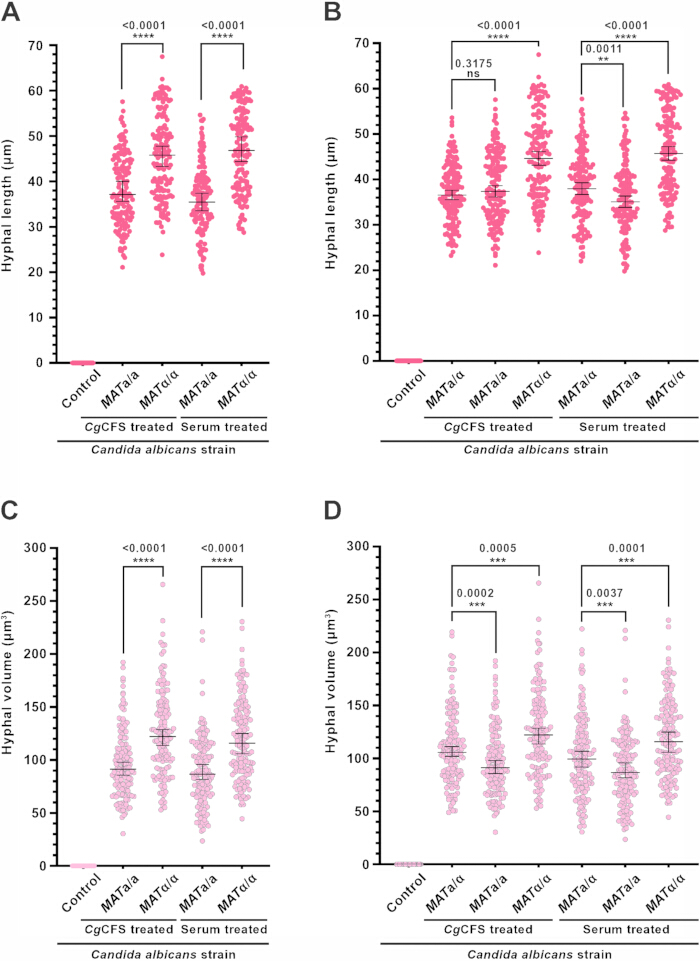
Figure 3 : Le type de reproduction et la zygotie ont des effets significatifs sur la morphologie des hyphes chez les souches diploïdes de C. albicans. Graphiques représentant les longueurs comparatives des hyphes, en réponse à la molécule inductrice indiquée, entre diploïdes homozygotes (A) et entre diploïdes hétéro- et homozygotes (B) de C. albicans. De même, les volumes comparatifs des hyphes, en réponse aux molécules inductrices mentionnées, sont présentés entre diploïdes homozygotes (C) et entre diploïdes hétéro- et homozygotes (D). Témoin : YPD, milieu non inducteur d'hyphes. Les données représentent la médiane ± intervalles de confiance à 95 %, issues de trois expériences biologiques indépendantes, avec n = 50 cellules. Les nombres indiqués en haut du graphique correspondent aux valeurs p, déterminées par des tests de comparaison de la somme des rangs de Wilcoxon. ** : p < 0,01, *** : p < 0,001, **** : p < 0,0001, significatif statistiquement ; ns, non significatif : p > 0,05. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
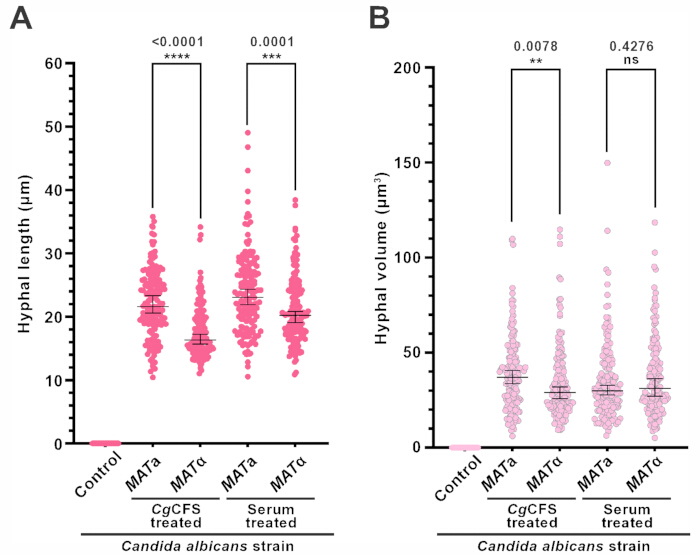
Figure 4 : Caractéristiques des hyphes chez C. albicans haploïde en réponse à différents inducteurs moléculaires. Les graphiques montrent les longueurs des hyphes (A) et les volumes des hyphes (B) chez des souches d'C. albicans haploïdes, en réponse à l'inducteur indiqué. Témoin : YPD, milieu témoin ne favorisant pas l'induction des hyphes. Les données représentent la médiane ± intervalles de confiance à 95 %, issues de trois expériences biologiques indépendantes, avec n = 50 cellules. Les valeurs numériques indiquées correspondent aux valeurs p, déterminées par le test de Wilcoxon. ** : p < 0,01, *** : p < 0,001, **** : p < 0,0001, significatif statistiquement ; ns, non significatif : p > 0,05. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
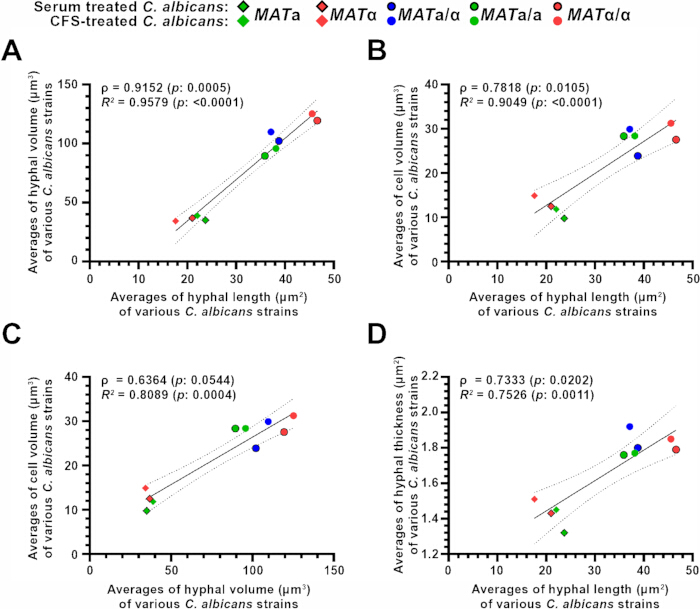
Figure 5 : Corrélation entre les paramètres morphologiques correspondant à la ploïdie de C. albicans. Les graphiques montrent la corrélation de Spearman et la régression linéaire entre les paramètres morphologiques utilisés dans cette étude, à savoir le volume des hyphes et la longueur des hyphes (A), le volume cellulaire et la longueur des hyphes (B), le volume cellulaire et le volume des hyphes (C), ainsi que l'épaisseur des hyphes et la longueur des hyphes (D). ρ : coefficient de corrélation de Spearman ; R2 : coefficient de détermination obtenu par analyse de régression linéaire ; p : valeur p. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Souche | Espèce | Ploïdie | Génotype | Source |
| CBS138 | Candida glabrata | Haploïde (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Double (2n) | Hétérozygote (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Double (2n) | Homozigote (MATa/a) ; arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Double (2n) | Homozigote (MATα/α) ; arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploïde (1n) | Homozigote (MATa) ; ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploïde (1n) | Homozigote (MATα) ; his4 ura3Δ::HIS4 |
Tableau 1 : Souches de Candida albicans et Candida glabrata utilisées dans cette étude. Le tableau présente les désignations, les génotypes précis, les états de ploïdie et la zygotie du type de reproduction des souches fongiques évaluées dans les essais de co-culture en plaque à puits avec insert de membrane sans contact et basés sur des surnageants cellulaires (CFS).
Tableau supplémentaire 1 : Données des analyses statistiques effectuées sur divers paramètres morphologiques de C. albicans. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2 : Valeurs brutes de tous les réplicats biologiques des différents paramètres morphologiques de C. albicans évalués dans cette étude.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Liste des milieux utilisés dans cette étude avec leurs compositions.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Un rapport antérieur, utilisant une plaque de puits avec inserts de membrane et un dosage basé sur le surnageant de culture filtré (CFS), a montré que C. albicans développe des hyphes en réponse à des cellules de C. glabrata ou à leur CFS. Toutefois, cette réponse n'était pas induite par d'autres levures, telles que Saccharomyces cerevisiae et Candida dubliniensis30. De plus, cette réponse hyphale n'était pas limitée à la souche de référence en laboratoire C. albicans SC5314, mais se produisait également dans d'autres contextes génomiques, notamment l'isolat clinique WUM5A30. Dans ce protocole, un flux de travail standardisé a été établi à partir de ces résultats afin de quantifier trois paramètres morphologiques : la longueur des hyphes, le volume des hyphes et l'épaisseur des hyphes. En outre, ces facteurs morphologiques ont été utilisés pour évaluer comment les variations de ploïdie et l'état du locus de type de conjugaison influencent les caractéristiques morphologiques de C. albicans en réponse à une molécule inductrice sécrétée.
Les méthodologies sans contact décrites ici offrent un cadre expérimental simple pour visualiser et analyser les résultats morphométriques des signaux solubles inter-espèces. Alors que la plaque de culture avec inserts à membrane permet une diffusion bidirectionnelle entre les cultures actives, le test basé sur le surnageant de culture filtré (CFS) propose un format évolutif, car les composants inducteurs requis sont collectés indépendamment de la culture cible en aval. Le maintien d’un ratio d’environ 1:50 (C. albicans par rapport à C. glabrata) dans le montage avec plaque d’inserts à membrane est nécessaire pour assurer la reproductibilité du test. Ce gradient de concentration garantit un flux adéquat de molécules inductrices solubles à travers la barrière membranaire, tout en restant en dessous des seuils d’accumulation des inhibiteurs endogènes de type quorum sensing, tels que le farnésol, qui peuvent supprimer la cinétique de filamentation de C. albicans31,32. De même, une étape cruciale du test basé sur le CFS est la période d’incubation de 18 h nécessaire pour que la culture source de C. glabrata atteigne uniformément la phase stationnaire tardive. Si la durée d’incubation de la culture de C. glabrata est inférieure à 12 h ou supérieure à 24 h, le CFS recueilli aura probablement une concentration sous-optimale de la molécule inductrice spécifique étudiée ici, ce qui entraînera une induction hyphale sous-optimale. Le stade de croissance approprié pour la collecte du CFS ou le ratio des cultures doit être standardisé pour tout nouvel objectif expérimental et/ou toute nouvelle combinaison d’espèces microbiennes.
Pour maximiser la reproductibilité du test dans différents environnements de laboratoire, les améliorations procédurales clés suivantes sont recommandées. Il est recommandé d'utiliser un milieu minimal au glucose (GMM) pour la culture nocturne de toutes les souches diploïdes de C. albicans. L'utilisation du GMM supprime l'auto-filamentation de fond fréquemment observée dans le milieu riche en nutriments YPD. Cette auto-filamentation a également été observée dans d'autres études, bien que le mécanisme sous-jacent reste encore mal compris33. Il est également recommandé de retirer physiquement intégralement l'insert en membrane de polycarbonate avant l'acquisition des images afin d'éliminer la diffusion de la lumière et les aberrations optiques pouvant interférer lors de la microscopie en champ clair à fort grossissement.
Bien que ces configurations sans contact permettent de distinguer les rôles des composants solubles du signal, elles présentent des défis expérimentaux spécifiques. Par exemple, les tests sans contact sont sujets à de légers risques tels que la rupture de la membrane due à une manipulation inadéquate, entraînant ainsi un passage microbien. Il convient donc d’être attentif lors du positionnement des pointes de pipette, en veillant à ce qu’elles touchent les parois de la chambre des inserts et non la membrane, lors de l’échantillonnage. De plus, une contamination croisée physique peut également survenir entre les compartiments en raison de tailles de pores inappropriées (trop grandes), ce qui peut être facilement corrigé en utilisant des inserts dotés d’une taille de pore de membrane adaptée. Une surcroissance fongique ou un dépôt important de biofilm peut recouvrir la membrane poreuse. Ce problème est résolu en limitant les inoculations initiales à une DO600 = 0,1 et en n’incubant pas au-delà de 12 heures. En outre, les micro-organismes peuvent ne pas se répartir de manière homogène dans les puits du dispositif, s’agglutinant souvent ou s’attachant près de la membrane, ce qui peut entraîner des biais inattendus dans les mesures de densité optique. En outre, comme ces systèmes séparent physiquement les deux populations, ils ne peuvent ni reproduire ni évaluer les interactions dépendant d’un contact cellulaire direct. Par exemple, la maturation de biofilms mixtes, la coagrégation mécanique ou la signalisation induite par des adhésines pariétales ancrées à la surface. Bien que ces tests sur plaque fournissent une vue d’ensemble efficace du stade initial de la cinétique de filamentation (à 3 h), ils ne rendent pas compte de la dynamique de croissance à long terme ni du comportement spatial. Pour les chercheurs nécessitant un suivi en continu et en temps réel sur des périodes prolongées, des canaux de perfusion microfluidiques spécialisés ou des chambres d’imagerie automatisées pour cellules vivantes peuvent constituer une alternative plus adaptée.
La géométrie cellulaire est fondamentalement liée à l'efficacité métabolique, le rapport surface sur volume (S/V) étant un facteur clé dans l'acquisition de nutriments et le transport intracellulaire. Chez les champignons dimorphes et filamenteux, la transition vers un morphotype hyphal allongé constitue une adaptation structurelle permettant de maintenir un rapport S/V optimal. Cela permet une absorption distribuée des nutriments le long de la paroi allongée du filament tout en maintenant des processus métaboliques dirigés vers l'extrémité hyphale34,35,36,37. Toutefois, notre étude montre que la mise à l'échelle morphométrique n'est pas uniformément proportionnelle selon les états de ploïdie et les configurations du locus de type sexuel.
Les jeux de données morphométriques générés via ce protocole de suivi révèlent des tendances claires de mise à l'échelle structurelle corrélées à la ploïdie, les lignées haploïdes présentant systématiquement des valeurs absolues plus faibles pour toutes les métriques géométriques par rapport aux souches diploïdes correspondantes (Figure 5). Dans le contexte diploïde, la configuration homozygote MATα/α a montré une cinétique de filamentation accrue (longueur et volume) par rapport aux souches MATa/a ou MATa/α dans ces conditions in vitro. Étant donné qu'une filamentation accrue est fréquemment associée à une capacité de pénétration plus élevée, on ne comprend pas clairement pourquoi les isolats cliniques de C. albicans sont principalement obtenus sous forme de diploïdes hétérozygotes (MATa/α). Il est possible que, dans un hôte immunocompétent, l'état hétérozygote confère un avantage de fitness plus étendu pour une colonisation commensale à long terme. Autrement dit, les caractéristiques structurelles du morphotype MATa/α sont optimisées pour la survie face à la surveillance immunitaire de l'hôte. Par conséquent, les futures recherches devraient exploiter ces systèmes de co-culture standardisés afin d'évaluer systématiquement le fitness comparatif des différents homozygotes de type d'accouplement sous différentes pressions sélectives.
Des études antérieures ont montré que la morphologie vacuolaire, les dynamiques de fission-fusion et l'expansion structurelle jouent un rôle important dans la régulation du volume interne et de la pression de turgescence des filaments fongiques en allongement. Par exemple, chez l'agent pathogène du blast du riz Magnaporthe oryzae, les transitions distinctes entre des hyphes végétatifs filiformes et des structures invasives bulbiformes sont étroitement coordonnées avec des modifications de l'organisation vacuolaire38,39,40. Toutefois, le protocole actuel n’a pas permis de suivre directement les dynamiques vacuolaires pendant la filamentation de C. albicans ; l’analyse de ces modifications des organites internes en relation avec le volume structural total représente une piste informative pour de futures recherches. En outre, des études supplémentaires sont nécessaires afin de déterminer pourquoi certains composants spécifiques du sécrétome d'origine fongique induisent des cinétiques d'échelle morphologique différentes de celles provoquées par des inducteurs chimiques d'origine hôte, tels que le sérum.
Les méthodes de co-culture sans contact décrites dans ce protocole peuvent être adaptées pour étudier les interactions inter-espèces et transversales aux royaumes, telles que la dynamique de signalisation entre des populations bactériennes opportunistes et des champignons dimorphes. De plus, comme ces formats en plaques de 96 et 24 puits sont évolutifs, cette plateforme quantitative peut être utilisée pour des criblages chimiques. Parmi eux, on peut citer l'identification d'inhibiteurs de petites molécules ou de nouveaux composés antifongiques capables de perturber sélectivement les voies de filamentation stimulées par le sécrétome, sans affecter directement la viabilité cellulaire de base.
Déclarations de divulgation
Les auteurs déclarent ne pas avoir d'intérêts concurrents ou conflictuels.
Remerciements
Ce travail a été soutenu par la bourse intermédiaire DBT-Wellcome Trust India Alliance (IA/I/19/1/504294) attribuée à RNP. KBSS a bénéficié du financement du Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) et du SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27). Les icônes utilisées dans la Figure 1 sont adaptées de Servier Medical Art (https://smart.servier.com/), sous licence CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), et de BioArt Source, NIAID, NIH.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Filtre à seringue PES de 0,22 μm | Millipore (Merck) | SLGPR33RS | |
| Agar-agar | HiMedia | GRM666 | |
| Glucose | HiMedia | GRM016 | |
| Plaque porteuse Nunc à 24 puits avec inserts pour culture cellulaire (0,4 μm) | Thermo Scientific | 141002 | |
| Boîte multidose Nunc BioLite à 96 puits, traitée pour culture cellulaire, fond plat | Thermo Scientific | 130188 | |
| Protéose peptone | HiMedia | RM005 | |
| Uridine | Sigma | U6381 | |
| Extrait de levure | HiMedia | RM027 | |
| Base d'azote de levure, avec sulfate d'ammonium, sans acides aminés | HiMedia | M878 |
Références
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Réimpressions et autorisations
