Les modèles de xénogreffe — dérivés de lignées cellulaires (CDX), dérivés de patients (PDX), humanisés et autologues — restent la plateforme in vivo principale pour le développement de médicaments anticancéreux ; la normalisation des rapports, le choix rationnel de la plateforme et la traduction assistée par intelligence artificielle définissent les meilleures pratiques actuelles.
Article de revue
Modèles de xénogreffes standardisés pour la recherche préclinique sur le cancer
Dans cet article
Résumé
Résumé
Les modèles de xénogreffe sont les principaux in vivo plateforme d'oncologie préclinique et le lien expérimental le plus établi entre les cultures cellulaires et les investigations cliniques. Depuis les modèles de lapins exposés à des carcinogènes au début du XXe siècle jusqu'aux systèmes actuels de xénogreffes dérivées de patients humanisés (PDX), ces plateformes ont évolué en réponse aux exigences de la recherche translationnelle en oncologie. Cette revue examine de manière critique les principes biologiques, les normes méthodologiques et les applications translationnelles des principales plateformes de xénogreffe actuellement utilisées. Les modèles de xénogreffes dérivées de lignées cellulaires (CDX) restent la modalité la plus largement utilisée et la plus rentable pour les tests d'efficacité préclinique, offrant la reproductibilité, l'extensibilité et l'accessibilité qui ont maintenu leur rôle dans les filières de développement de médicaments en oncologie depuis des décennies. Les modèles PDX se sont imposés comme la plateforme privilégiée pour la conception d'essais co-cliniques, la découverte de biomarqueurs prédictifs et les applications en oncologie personnalisée, préservant le paysage génomique, l'hétérogénéité intratumorale et l'architecture histologique de la tumeur d'origine au fil des passages successifs. La biologie de l'engraftement des systèmes PDX, incluant le choix de la souche d'hôte immunodéficient, le site d'implantation, la source tumorale et la biologie des passages, est passée en revue, de même que les configurations humanisées et autologues humanisées qui étendent l'utilisation de cette plateforme à l'évaluation des inhibiteurs de points de contrôle immunitaire, des engageurs bispécifiques de cellules T et des thérapies par cellules T exprimant un récepteur chimérique d'antigène (CAR-T). Cette revue aborde la traduction préclinique vers la clinique en fonction de la divergence immunologique, de la reconstitution incomplète du microenvironnement tumoral et de la standardisation. Des cadres formels, notamment la norme PDX Model Minimal Information (PDX-MI) et les Informations minimales pour la standardisation des souris humanisées (MISHUM), sont examinés conjointement avec les infrastructures mondiales de biobanques et les approches émergentes de modélisation translationnelle assistées par intelligence artificielle.
Introduction
Le cancer demeure l'une des principales causes de mortalité dans le monde, avec environ 28,4 millions de nouveaux cas diagnostiqués chaque année prévus d'ici 20401. Malgré des progrès thérapeutiques remarquables, notamment les agents ciblés moléculairement, les inhibiteurs des points de contrôle immunitaires, les thérapies par cellules T exprimant un récepteur chimérique d'antigène (CAR-T) et les conjugués anticorps-médicament, la majorité des patients atteints de cancers avancés développent une résistance aux médicaments ou ne répondent pas au traitement initial, et les taux de survie à cinq ans restent insatisfaisants pour de nombreuses tumeurs solides2. Le développement de médicaments anticancéreux continue d'être marqué par un goulot d'étranglement translationnel difficile. Une grande proportion d'agents en oncologie présentant une activité préclinique prometteuse échouent lors des essais cliniques, ce qui indique que de nombreux systèmes expérimentaux ne reflètent pas fidèlement les déterminants biologiques de la réponse des patients3,4. Le besoin de systèmes précliniques in vivo capables de reproduire fidèlement les propriétés génomiques, histopathologiques et pharmacologiques du cancer humain est bien établi. Les modèles de xénogreffe occupent une place centrale dans ce domaine, tant en ce qui concerne le problème que sa solution potentielle, car ils constituent le lien in vivo le plus consolidé entre la culture cellulaire et la clinique. Les modèles de xénogreffe sont créés en implantant du matériel tumoral humain dans un hôte immunologiquement perméable, le plus souvent une souris immunodéficiente5. Deux formes principales dominent le domaine : les xénogreffes dérivées de lignées cellulaires (CDX), obtenues à partir de lignées cellulaires cancéreuses établies, et les xénogreffes dérivées de patients (PDX), générées par l'engraftement direct de prélèvements chirurgicaux ou biopsiques frais, sans étape de culture prolongée6,7. Des variantes orthotopiques, disséminées, sous la capsule rénale, dérivées d'organoïdes ou humanisées élargissent encore ce cadre en modifiant le site d'implantation, le matériel d'origine ou l'état immunitaire de l'hôte8,9,10.
Les tumeurs humaines sont des systèmes dynamiques façonnés par les mutations somatiques, le reprogrammation épigénétique, l'hétérogénéité intratumorale et les interactions co-évolutionnaires continues entre les populations cellulaires néoplasiques et stromales6,11. Bien que les lignées cellulaires cancéreuses aient été historiquement considérées comme des prédicteurs moins efficaces de la réponse clinique3,4, cette opinion a depuis été affinée10,12,13. Même si les lignées cellulaires souffrent effectivement de dérive génomique, de perte des composants stromaux et immunitaires, et de divergence par rapport à l'hétérogénéité de la tumeur d'origine, une grande partie de leur apparente non-pertinence prédictive reflète la conception des études (petits panels, histologies non appariées et absence de stratification moléculaire) plutôt qu'un échec intrinsèque du modèle14. Les modèles PDX corrigent partiellement les limitations principales des modèles de lignées cellulaires (dérive génomique, perte d'hétérogénéité et absence de stroma) en greffant directement des fragments tumoraux frais provenant de patients dans des souris immunodéficientes, préservant ainsi l'histologie du donneur, l'architecture génomique et certains aspects de l'organisation stromale au cours des premiers passages, tandis que les variantes orthotopiques, disséminées, sous la capsule rénale, dérivées d'organoïdes et humanisées étendent ce cadre aux sites d'implantation, aux matériaux d'origine et au statut immunitaire de l'hôte10. Des essais PDX à l'échelle de la population reproduisent les réponses cliniques au niveau de l'indication thérapeutique12, et des paires appariées patient–PDX montrent une concordance d'environ 87 % avec les résultats individuels des patients, bien que la spécificité dans cette analyse ait été de 70 %13.
Le paysage des xénogreffes s'étend davantage pour inclure des plateformes humanisées, dans lesquelles des tumeurs PDX sont cultivées chez des hôtes reconstitués avec des composants du système immunitaire humain9, ainsi que des modèles orthotopiques implantés à des sites primaires anatomiquement correspondants et des variantes métastatiques14. Parallèlement, cette revue se concentre sur les modèles de xénogreffe murins ; d'autres systèmes complémentaires, tels que les tests sur membrane chorioallantoïdienne de poulet (CAM)15, les xénogreffes chez l'embryon de poisson-zèbre16 et les organoïdes dérivés de patients17, peuvent offrir des avantages indépendants en termes de rapidité, de débit et d'évolutivité, les intégrant ainsi dans des flux de travail précliniques multiplateformes combinés. L'infrastructure internationale de biobanques PDX s'est considérablement élargie au cours de la dernière décennie18, et des cadres formels de normalisation — la norme PDX Model Minimal Information (PDX-MI)19 et le Minimal Information for Standardization of Humanized Mice (MISHUM)20 — ont été établis ; toutefois, une adoption incomplète dans la littérature publiée demeure un obstacle structurel à la traduction clinique. Des cadres de normalisation formels ont été mis en place afin d'harmoniser la communication des annotations cliniques, des méthodologies d'engraftement, de l'historique des passages, des mesures d'assurance qualité et des paramètres de reconstitution immunitaire. Malgré ces progrès, aucune plateforme de xénogreffe unique n'est suffisante pour répondre à toutes les questions translationnelles. Les modèles PDX sont intrinsèquement lents, exigeants en ressources et sujets à des taux d'engraftement variables, tandis que les systèmes de xénogreffes humanisées, bien qu'ils atténuent partiellement le déficit immunitaire des hôtes PDX conventionnels, introduisent une variabilité supplémentaire due à une reconstitution immunitaire incomplète9, à l'hétérogénéité inter-donneurs21 et aux contraintes du rejet du greffon contre l'hôte22. La standardisation reste par ailleurs inégale : les protocoles d'établissement des modèles, les conventions de numérotation des passages, les méthodes d'authentification, la quantification de la croissance tumorale, la surveillance immunitaire, les définitions des points terminaux et la qualité globale des rapports varient fortement entre les institutions et les publications23. Cette revue examine les modèles de xénogreffe à travers deux perspectives complémentaires : la standardisation et le choix pratique du modèle. En positionnant les CDX comme le modèle de base essentiel in vivo et les PDX comme une plateforme plus fidèle mais plus exigeante en ressources, nous synthétisons les données actuelles sur la taxonomie des modèles, la biologie des souches d'hôtes, les déterminants de l'engraftement, la biobanque, la stabilité génomique, la conception quantitative des études et les cadres de communication, tout en replaçant les systèmes de xénogreffes dans un contexte plus large incluant les modèles syngéniques, les organoïdes, les modèles murins génétiquement modifiés (GEMM) et les tests alternatifs rapides. L'argument central est que la standardisation ne doit pas être perçue comme une tentative de regrouper toutes les études dans une seule catégorie de modèle, mais plutôt comme un cadre définissant comment chaque plateforme est générée, validée, rapportée et positionnée de manière rationnelle au sein d'un flux de travail préclinique intégré (Figure 1).
Revue et perspective
Développement historique et taxonomie
La démonstration par Yamagiwa et Ichikawa en 1915 du cancer de la peau induit par un carcinogène chez les lapins a établi le concept de modèle expérimental de tumeur24Les modèles syngéniques ont émergé au milieu du XXe siècle avec des lignées fondatrices telles que le carcinome pulmonaire de Lewis, le carcinome mammaire 4T1, le carcinome colorectal CT26 et le mélanome B16, qui conservent une utilité à l'ère actuelle de l'immuno-oncologie.25La découverte par Flanagan en 1966 de la souris nue athymique a fourni le premier hôte immunodéprimé capable de tolérer un tissu xénogénique.26, permettant à Rygaard et Povlsen d'obtenir la première greffe réussie d'une tumeur colorectale humaine en 196927. Le développement ultérieur de souches par l'intermédiaire de fonds génétiques SCID, NOD/SCID et dépourvus de la chaîne gamma commune du récepteur de l'IL-2 (Il2rg) a progressivement éliminé les barrières liées aux cellules T, aux cellules B et aux cellules NK28, établissant la taxonomie actuelle : CDX, PDX, variants orthotopiques et disséminés, xénogreffes dérivées d'organoïdes et xénogreffes humanisées6.
Le panel NCI-60, mis en place à la fin des années 1980 comme un criblage in vitro de 60 lignées cellulaires humaines cancéreuses couvrant neuf types de tissus, a institutionnalisé l'évaluation systématique des médicaments et a constitué le fondement de la pharmacologie préclinique basée sur des lignées cellulaires pendant plusieurs décennies, les composés actifs étant ensuite évalués dans des études CDX sous-cutanées chez des souris nues athymiques en utilisant des critères d'évaluation standardisés tels que le %T/C (pourcentage du volume tumoral traité par rapport au volume tumoral témoin), le retard de croissance tumorale et les décès liés au traitement, permettant ainsi la comparaison entre études29. Les modèles CDX restent la plateforme la plus largement utilisée et la plus rentable pour les tests d'efficacité préclinique ; les études CDX sous-cutanées atteignent leur point d'évaluation en 5 à 7 semaines (Figure 1) et jouent un rôle central dans le flux de développement des médicaments pour l'optimisation des doses, la caractérisation pharmacocinétique/pharmacodynamique (PK/PD), la quantification de l'inhibition de la croissance tumorale (TGI) et l'évaluation des critères d'efficacité liés à la survie (Figure 2).
D'un point de vue pratique, la taxinomie des modèles de xénogreffe est définie par trois variables : la source de la tumeur, le site d'implantation et le fond génétique de l'hôte. Les modèles CDX reposent sur des lignées cellulaires cancéreuses établies, disponibles en quantité stable et largement annotées sur les plans moléculaire et pharmacologique grâce à des ressources telles que l'Encyclopédie des Lignées cellulaires cancéreuses30. Les modèles PDX utilisent des fragments tumoraux prélevés directement sur des patients et greffés fraîchement afin de préserver l'histologie du donneur, l'architecture génomique et l'hétérogénéité intratumorale, bien que le stroma humain soit progressivement remplacé par un stroma murin au cours des passages successifs10. Le site d'implantation détermine le contexte biologique : la greffe sous-cutanée privilégie la simplicité technique, la reproductibilité et la mesure répétée au pied à coulisse ; l'implantation orthotopique restaure le microenvironnement spécifique à l'organe et favorise des schémas de métastases spontanées cliniquement pertinents ; l'injection intravasculaire (veine caudale, intracardiaque, intrasplénique) permet de générer des modèles de métastases expérimentales qui ciblent les étapes ultérieures de la cascade métastatique, telles que l'extravasation et la colonisation14 ; enfin, l'implantation sous la capsule rénale exploite un site fortement vascularisé qui améliore nettement les taux de prise des tumeurs difficiles à greffer31.
CDX et PDX : rôles complémentaires en oncologie préclinique
Des preuves croissantes indiquaient que les modèles CDX avaient une capacité limitée à prédire la réponse clinique aux médicaments, ce qui a conduit à une réévaluation des méthodologies précliniques en oncologie. Les lignées cellulaires cancéreuses établies, maintenues indéfiniment en culture artificielle, subissent une sélection clonale progressive, une divergence transcriptionnelle et une perte du contexte stromal et immunitaire par rapport aux tumeurs primitives dont elles sont issues. Les modèles PDX préservent l'histologie du donneur, l'architecture génomique et l'hétérogénéité intratumorale au fil des passages successifs10. En 2006, une plateforme PDX de cancer du pancréas a fourni la première démonstration de prédiction de la réponse au traitement guidée par biomarqueurs32. En 2011, la plateforme « xenopatient » a rassemblé 85 modèles PDX colorectaux annotés sur le plan moléculaire, reproduit les profils de réponse clinique au cérouximab et identifié l'amplification de HER2 comme mécanisme de résistance ciblable, validation ultérieurement confirmée dans les essais HERACLES33,34. Une étude marquante de 2015 a appliqué un dispositif d'essai clinique PDX (PCT) de type 1 × 1 × 1 sur environ 1 000 modèles et 62 régimes thérapeutiques, reproduisant des associations génotype-réponse et proposant de nouveaux mécanismes de résistance, établissant ainsi la pharmacologie à grande échelle sur modèles PDX comme une passerelle crédible vers la conception d'essais cliniques12.
Malgré ces progrès, les modèles CDX restent une référence pour l'évaluation préclinique précoce in vivo de thérapeutiques candidates, car ils sont rapides, expérimentalement propres et rentables : des lignées cellulaires authentifiées peuvent être manipulées génétiquement, amplifiées à grande échelle et implantées chez de larges cohortes appariées avec relativement peu de bruit biologique, permettant ainsi des mesures d'efficacité, de pharmacodynamique et de tolérabilité interprétables dans des délais inaccessibles aux modèles PDX ou aux systèmes humanisés. Des lignées canoniques telles que HCT116, A549 et U8735 sont associées à des décennies de littérature mécanistique et de ressources publiques en omique, et les variantes orthotopiques ou disséminées de CDX étendent leur utilité à l'étude du tropisme tissulaire, de la colonisation métastatique et des traitements spécifiques à un site, sans sacrifier leurs avantages opérationnels10. Pour des questions fondées sur des hypothèses centrées sur la dépendance à une cible, l'optimisation du schéma posologique, l'efficacité comparative ou la preuve de mécanisme, le CDX demeure la plateforme in vivo initiale appropriée. Ses limites reconnues, notamment la dérive clonale, l'absence de stroma humain et de compartiments immunitaires, ainsi qu'une valeur prédictive limitée au niveau de la population, définissent son utilisation correcte comme plateforme de triage rapide et d'étude mécanistique, plutôt que comme substitut aux résultats cliniques.
Établissement du modèle PDX : sources tumorales, implantation et biologie de l'attecissement
Du matériel tumoral viable est généralement obtenu par résection chirurgicale, mais aussi par biopsie carottée, épanchements malins ou aspirations médullaires dans les cas de malignités hématologiques31. La résection radicale fournit des volumes plus importants de tissu viable et architecturalement intact ; toutefois, les biopsies permettent d'obtenir un matériel adéquat lorsqu'elles sont dirigées vers des lésions métastatiques ou non résécables31,36. Le tissu doit être transporté dans un milieu tamponné froid et traité dans les ~24 h ; une ischémie chaude dépassant 2 h et des intervalles ex vivo supérieurs à 8–10 h réduisent progressivement l'efficacité d'engraftement. L'approbation du comité d'éthique institutionnel et un consentement éclairé écrit sont obligatoires.
Le matériel tumoral est transformé en fragments de 1 à 3 mm3, en préservant l'architecture de la matrice extracellulaire et l'hétérogénéité spatiale, ou dissocié en suspensions monocellulaires pour le tri et l'inoculation normalisée par dose. La co-implantation avec Matrigel est fréquemment utilisée pour favoriser la vascularisation précoce ; son effet est variable et doit être indiqué car il modifie le contexte microenvironnemental31. Un supplément hormonal, sous forme de pastilles d'estradiol pour les tumeurs mammaires ER-positives et de dihydrotestostérone pour les tumeurs de la prostate, améliore l'attecement des tumeurs dépendantes des hormones. L'implantation sous-cutanée au niveau du flanc dorsal permet un suivi par pied à coulisse et une simplicité opérationnelle ; l'implantation orthotopique restaure le microenvironnement spécifique à l'organe ; tandis que l'implantation sous la capsule rénale maximise les taux d'attecement pour les types de tumeurs difficiles à greffer, notamment le cancer du poumon non à petites cellules (NSCLC) et le cancer de la prostate31.
L'engraftement dépend fortement du type de tumeur. Les tumeurs agressives, peu différenciées, résistantes aux traitements ou métastatiques s'engraftent plus facilement que celles qui sont indolentes ou bien différenciées ; les cancers du sein triple négatifs, les adénocarcinomes pancréatiques ductaux, les cancers ovariens séreux de haut grade et les leucémies aiguës réussissent systématiquement mieux que les tumeurs du sein de type luminal A et d'autres tumeurs à faible taux d'engraftement, et un engraftement réussi prédit lui-même un pronostic défavorable pour le patient dans les cas de cancer du sein triple négatif et de tumeurs pancréatobiliaires10. La souche hôte constitue un second facteur déterminant majeur : des souches hautement immunodéficientes telles que NSG et NOG ont remplacé les souris nues et SCID dans les cas difficiles ou hématologiques en raison de leur perméabilité plus étendue9.
Par convention, l'implantation initiale chez le patient est désignée F0 (ou P0), les passages sériels étant étiquetés F1, F2, et ainsi de suite. La cinétique de croissance se stabilise généralement après les premiers passages, et la plupart des programmes réservent les études pharmacologiques formelles aux échantillons F2 ou F3 afin de réduire la variabilité inter-souris, bien qu'aucun seuil universel n'existe ; la majorité des programmes définissent les premiers passages comme allant de F2 à F4, les échantillons au-delà de F5 présentant un risque croissant de surcroissance subclonale et de dérive transcriptionnelle, dont le taux dépend du type de tumeur. Étant donné que le numéro de passage influence à la fois la reproductibilité et la dérive biologique, l'historique des passages, la souche hôte, le site d'implantation et l'origine doivent être enregistrés pour chaque étude conformément à la norme de rapport PDX-MI19.
Souches d'hôtes immunodéficients
Les souris athymiques nues (Foxn1nu) n'ont pas de lymphocytes T matures mais conservent les lymphocytes B, les cellules NK et l'immunité innée. Les souris CB-17 scid, porteuses d'une mutation perte-de-fonction dans Prkdc, manquent de lymphocytes T et B en raison d'une recombinaison V(D)J défectueuse, mais conservent les cellules NK et développent avec l'âge des lymphocytes "fuitifs"9. La mutation scid sur fond NOD/ShiLtJ (NOD/SCID) ajoute des défauts de l'immunité innée, notamment une déficience du complément, une fonction altérée des macrophages et des cellules dendritiques, ainsi qu'une activité NK réduite. L'ajout d'une mutation nulle dans la chaîne gamma commune du récepteur de l'IL-2 (Il2rg), nécessaire à la signalisation des interleukines IL-2, IL-4, IL-7, IL-9, IL-15 et IL-21, élimine les cellules NK fonctionnelles et affaiblit fortement l'immunité innée résiduelle, conduisant aux modèles NSG (NOD.Cg-Prkdcscid Il2rgtm1wjI/SzJ) et NOG (NODShi.Cg-Prkdcscid Il2rgtm1sug) ; le NSG porte une délétion complète d'Il2rg, tandis que le NOG exprime un récepteur tronqué capable de se lier aux ligands mais incapable de transmettre le signal. Les souris NSG et NOG permettent l'engraftement de tumeurs solides et d'hémopathies malignes et constituent les hôtes par défaut pour les travaux sur les modèles de xénogreffes dérivées de patients (PDX). La souche NRG (NOD.Cg-Rag1tm1Mom Il2rgtm1wjI) remplace la mutation Prkdc par une délétion de Rag1, préservant ainsi la compétence pour la réparation de l'ADN. La souche BRG (BALB/c-Rag2null Il2rgnull) offre une alternative sur fond BALB/c tolérante aux radiations, évitant l'allèle Sirpa spécifique à la souche NOD. Le rat SRG (double invalidation Rag2/Il2rg sur fond Sprague-Dawley) supporte les lignées cellulaires et les PDX qui se développent mal chez les NSG, notamment le cancer de la prostate VCaP avec un taux d'engraftement >90 %, et permet des prélèvements sanguins et tissulaires en série, des chirurgies orthotopiques et des études de pharmacocinétique physiologiquement pertinentes37.
Les systèmes xénogreffés humanisés rétablissent des souris gravement immunodéficientes avec des composants immunitaires humains avant ou simultanément à l'implantation de tumeurs38. Les trois formats principaux sont les hu-PBMC (injection de cellules mononucléées du sang périphérique adulte), les hu-CD34 (cellules souches hématopoïétiques humaines CD34⁺ administrées par voie intraveineuse après irradiation subléthale ou conditionnement au busulfan) et les modèles BLT (co-implantation de foie et de thymus fœtaux avec des cellules CD34⁺, produisant le développement lymphoïde le plus complet). Ces modèles permettent d'évaluer les inhibiteurs de points de contrôle immunitaires, les anticorps bispécifiques, les thérapies cellulaires et les mécanismes de résistance immuno-médiés38. Les conceptions autologues ou appariées au niveau du CMH associent le compartiment tumoral et le compartiment immunitaire provenant du même donneur. L'efficacité de la réconstitution dépend de la source du donneur, de la souche hôte, du régime de conditionnement et de la durée de l'étude ; les compartiments myéloïde, stromal et lymphoïde sont généralement incomplets ou déséquilibrés : les modèles hu-PBMC présentent une carence en cellules NK, en cellules B et en lignées myéloïdes, malgré un engraftement T-cellulaire robuste ; les modèles hu-CD34 permettent une production multilignée mais sous-représentent les cellules dendritiques conventionnelles et les macrophages tissulaires ; les modèles BLT assurent une éducation thymique T-cellulaire supérieure, mais restent sous-optimaux pour la réconstitution myéloïde. Les souris hu-PBMC atteignent rapidement une réconstitution T-cellulaire, mais développent une maladie du greffon contre l'hôte (GvHD) xénogénique en trois à six semaines, suite à la reconnaissance par les cellules T humaines du CMH murin ; les variants NSG dépourvus de CMH-I/II atténuent partiellement ce phénomène22. Les souris hu-CD34 permettent des études plus longues, mais nécessitent une période de réinstallation prolongée et ne reproduisent pas intégralement la biologie humaine des cellules myéloïdes, NK ou stromales.
Modèles orthotopiques et de métastases
Les xénogreffes sous-cutanées, bien qu'étant la plateforme préclinique de première intention, placent le tissu tumoral humain dans un contexte biologique qui s'écarte du microenvironnement organique d'origine. La composition de la matrice extracellulaire, l'architecture vasculaire, la tension en oxygène, les populations stromales et la signalisation paracrine de l'espace sous-cutané dorsal diffèrent de celles du sein, du pancréas, du péritoine, du côlon ou du poumon10. L'implantation orthotopique restaure le microenvironnement spécifique à l'organe et soutient généralement une vascularisation accrue ainsi qu'une métastase spontanée, reproduisant plus fidèlement la progression naturelle du cancer, au prix d'une complexité chirurgicale accrue et de la nécessité d'une surveillance basée sur l'imagerie39.
Les techniques de PDX orthotopiques se sont étendues à divers types de tumeurs. Le PDX du cancer du sein est établi dans la couche adipeuse mammaire, permettant des métastases spontanées vers les poumons et les ganglions lymphatiques40. Le PDX du cancer colorectal implanté dans la paroi cæcale ou colique reproduit l'invasion locale et les métastases hépatiques39. Le PDX du cancer de l'ovaire administré par voie intrapéritonéale reproduit la dissémination péritonéale caractéristique des formes séreuses de haut grade41. Le PDX du carcinome adénocarcinomateux ductal du pancréas implanté dans le pancréas reproduit la réaction stromale désoplacique et l'invasion locale précoce32. Deux stratégies principales de modélisation des métastases sont utilisées : les modèles de métastases expérimentales, dans lesquels les cellules tumorales sont administrées par voie intravasculaire pour évaluer les étapes ultérieures de la cascade métastatique, telles que l'extravasation et la colonisation ; et les modèles de métastases spontanées, dans lesquels la tumeur primaire orthotopique se dissémine selon l'ensemble complet de la cascade14.
Normalisation, authentification et conception de l'étude
Quatre cadres de rapport et de conception d'étude définissent les expériences de xénogreffe. PDX-MI précise les métadonnées minimales requises pour les modèles dérivés de patients, y compris les informations sur le donneur, la source de la tumeur, la souche hôte, le site d'implantation, le numéro de passage, le taux d'engraftement, ainsi que la caractérisation histologique et moléculaire ; l'authentification par répétitions courtes en tandem (STR) est incluse dans le contrôle qualité du modèle afin de confirmer l'origine et détecter toute contamination croisée19. MISHUM étend des exigences analogues aux systèmes humanisés, en couvrant la source des cellules souches hématopoïétiques humaines ou des PBMC, le régime de conditionnement, la souche hôte, l'efficacité de reconstitution vérifiée par cytométrie en flux, et la surveillance du rejet greffon contre hôte (GvHD)20. OBSERVE (Oncology Best-practices: Signs, Endpoints and Refinements for In Vivo Experiments), un consensus EurOPDX/INFRAFRONTIER de 2024, fournit des recommandations spécifiques aux modèles de cancer chez les rongeurs en matière d'affinement et de bien-être, complétant ainsi les cadres plus généraux PREPARE et ARRIVE 2.023,42. Les recommandations consensuelles de 2024 du PDXNet du NCI abordent la conception des études, l'analyse de la croissance tumorale et la catégorisation des réponses dans les expériences de pharmacologie sur PDX, et mettent à disposition un ensemble public d'outils analytiques43.
Ces cadres ne sont pas entièrement harmonisés, et une étude moderne de xénogreffe peut devoir satisfaire simultanément aux exigences des recommandations PDX-MI, MISHUM, OBSERVE et PDXNet. En pratique, le numéro de passage, la formule de mesure de la tumeur, la source de l'hôte, la méthode d'authentification et la stratégie analytique préétablie sont souvent omis43. Un schéma de rapport unifié couvrant les systèmes CDX, PDX et humanisés demeure un besoin non comblé. Les référentiels publics de modèles PDX incluent le référentiel de modèles dérivés de patients du NCI (PDMR), le portail de données EurOPDX et PDX Finder, qui recensent collectivement plusieurs milliers de modèles accompagnés de données génomiques, histologiques et pharmacologiques afin de faciliter l'identification et l'acquisition des modèles18. Les études CDX exigent un profilage STR systématique et un contrôle de la contamination, tandis que les études PDX nécessitent un lien avec le cas du donneur, une confirmation moléculaire des caractéristiques conductrices lorsque cela est possible, et une documentation du contenu cellulaire humain par rapport au contenu murin au fil des passages19. L'estimation du volume tumoral reste incohérente entre les études, différentes formules étant appliquées sans divulgation explicite, ce qui modifie les estimations de l'effet du traitement et complique la comparaison entre études ; la standardisation des métriques de croissance, des seuils de réponse, des règles de censure et des formats de visualisation est donc tout aussi importante que la standardisation des méthodes d'engraftement43.
Fidélité génomique, évolution clonale et interprétation translationnelle
Les PDX conservent les mutations conductrices et les profils de nombre de copies plus fidèlement que les CDX au cours des premiers passages, ce qui soutient leur utilisation pour le développement de biomarqueurs, les études de résistance et la modélisation co-clinique44. Toutefois, une évolution tumorale spécifique à la souris, un remplacement du stroma et un reprogrammation épigénétique surviennent au cours des passages, et certaines discordances apparentes reflètent un échantillonnage sous-clonal de tumeurs spatialement hétérogènes plutôt qu'une dérive induite par le modèle45. Les premiers passages offrent une correspondance biologique plus forte que les matériaux largement passagés, bien que les deux soient façonnés par les pressions sélectives liées au site d'implantation, à l'immunité de l'hôte et aux traitements antérieurs45. Deux principes pratiques en découlent : les modèles PDX doivent être caractérisés de manière longitudinale plutôt que supposés statiques, et l'intégration du séquençage, de l'histopathologie, du profilage transcriptionnel et de la réponse au traitement est recommandée lorsque le choix du modèle a des conséquences importantes en aval44.
Modèles de souris humanisées et applications en immuno-oncologie
Les systèmes humanisés reconstitués avec des PBMC humains, des HSC CD34⁺ ou des tissus BLT permettent de pallier l'incapacité des hôtes PDX conventionnels à modéliser un microenvironnement immunitaire humain intact. Les modèles hu-PBMC permettent une reconstitution rapide des lymphocytes T, mais sont limités par une maladie du greffon contre l'hôte xénogénique (GvHD) apparaissant en trois à six semaines ; les modèles hu-CD34 nécessitent 8 à 16 semaines pour une reconstitution multilignée, mais permettent des études plus longues9. L'introduction de transgènes codant pour des cytokines humaines a encore amélioré la reconstitution de lignées immunitaires spécifiques. Les souris NSG-SGM3 (transgéniques pour l'IL-3, le GM-CSF et le SCF humains) favorisent le développement des cellules myéloïdes et des mastocytes46. Les souris MISTRG (humanisées pour le M-CSF, l'IL-3, le GM-CSF, le SIRPα et la thrombopoïétine) et les souris MISTRG6 (en plus humanisées pour l'IL-6) sur un fond génétique Rag2⁻/⁻ Il2rg⁻/⁻ produisent la reconstitution myéloïde, des cellules NK et des macrophages tissulaires la plus complète actuellement disponible, et permettent l'engraftement de cellules souches et progénitrices hématopoïétiques dérivées de moelle osseuse adulte que d'autres souches ne parviennent pas à accueillir47. Les souris NOG-EXL (transgéniques pour l'IL-3 et le GM-CSF humains sur fond NOG) permettent une reconstitution myéloïde et des mastocytes à des concentrations plus faibles de cytokines que les NSG-SGM3, ce qui se traduit par une meilleure survie à long terme et un syndrome d'activation macrophagique moins sévère, les rendant plus adaptées aux études prolongées d'humanisation et de tumeurs. Les souris humanisées engreffées avec des lymphocytes T humains permettent de modéliser le syndrome de libération de cytokines (CRS), offrant ainsi la possibilité de caractériser précliniquement le profil de sécurité des activateurs bispécifiques des lymphocytes T, des anticorps ciblant le CD3 et des autres biomédicaments activateurs des lymphocytes T. Aucune souche n'est universellement supérieure ; le choix dépend de la lignée immunitaire étudiée et de la durée de l'expérience.
La configuration la plus fidèle est le PDX humanisé autologue, dans lequel des cellules hématopoïétiques et un tissu tumoral provenant du même patient sont greffés conjointement, éliminant ainsi toute incompatibilité du CMH entre les compartiments immunitaire et tumoral47. Chiorazzi et ses collègues ont démontré en 2023 que les modèles PDX MISTRG6 autologues génèrent des populations immunitaires humaines innées et adaptatives qui pénètrent dans le microenvironnement tumoral, recréent les programmes d'activation et d'épuisement des lymphocytes T CD8⁺, et produisent une signature myéloïde pro-tumorale induite par le VEGF-A, dont l'inhibition supprime la croissance tumorale accrue, validant ainsi cette configuration comme une plateforme d'évaluation des immunothérapies47. Phoon et ses collègues ont étendu cette approche au mélanome, montrant que les modèles PDX humanisés par PBMC autologues reproduisent la variabilité interindividuelle de la réponse au blocage des points de contrôle immunitaire et aux cytokines IL-2 modifiées48,49. Une approche autologue parallèle, le transfert adoptif de lymphocytes intra-tumoraux (TIL) dérivés du patient et expansés ex vivo dans des souris porteuses de tumeurs PDX appariées, a été utilisée pour modéliser l'efficacité de la thérapie par TIL dans le mélanome et d'autres tumeurs solides50. L'interprétation des études d'immunothérapie dans les systèmes humanisés nécessite toutefois une certaine prudence : plusieurs anticorps dirigés contre les points de contrôle immunitaires (par exemple, anti-CTLA4, anti-PD1) présentent une réactivité croisée restreinte selon les espèces, la fonction des cellules dendritiques et la présentation de l'antigène restent incomplètes dans la plupart des souches humanisées, et des structures telles que les organes lymphoïdes tertiaires et les centres germinatifs pleinement fonctionnels sont rarement reconstitués51.
Thérapie par cellules CAR-T et modèles de xénogreffe
La thérapie par cellules CAR-T a obtenu plusieurs approbations réglementaires pour les malignités hématologiques, et l'évaluation par xénogreffe chez des souris immunodéficientes porteuses de tumeurs CDX ou PDX constitue la plateforme préclinique standard pour les produits CAR-T humains avant leur translation clinique52. Le déficit immunologique des hôtes de type NSG exclut l'activation des macrophages, la présentation croisée par les cellules dendritiques et la suppression médiée par les lymphocytes T régulateurs du système expérimental, et les xénogreffes murines n'ont pas permis de prédire les toxicités systémiques induites par les cytokines observées ultérieurement chez les patients52. Une revue systématique et une méta-analyse publiées en 2025, portant sur 422 essais cliniques et 3 157 études précliniques, ont révélé que les signaux d'efficacité préclinique observés dans les modèles de xénogreffe CAR-T sont largement homogènes, indépendants de l'antigène et ne permettent pas de distinguer entre les constructions CAR qui réussissent ou échouent par la suite dans les essais cliniques53. En 2025, Fløe et ses collègues ont montré que les différences au niveau de l'espèce en matière de signalisation des cytokines, de densité antigénique, de répertoire des récepteurs des lymphocytes T et de communication croisée entre tumeur et système immunitaire limitent la capacité de translation des données de xénogreffe CAR-T, et que les modèles syngéniques sont utilisés dans environ 4 % des études précliniques CAR-T publiées52,53. Le syndrome de libération de cytokines (CRS) et le syndrome de neurotoxicité associé aux cellules immunitaires effectrices (ICANS) ne sont pas reproduits dans les xénogreffes NSG standard. Des études mécanistiques menées sur des hôtes NSG-SGM3 ont indiqué que le CRS est principalement induit par l'IL-1 et l'IL-6 d'origine monocytaire, l'IL-1 et l'IL-6 étant différentiellement nécessaires pour le CRS et la neurotoxicité. De plus, la neutralisation du GM-CSF réduit le CRS et l'inflammation neurologique tout en préservant l'activité antitumorale des cellules CAR-T. Ces voies sont modélisées dans des configurations d'xénogreffes humanisées autologues ou transgéniques pour les cytokines, et non dans les xénogreffes conventionnelles basées sur le NSG. Les modèles murins syngéniques de CAR-T offrent une plateforme complémentaire permettant d'évaluer les interactions des cellules CAR-T avec un système immunitaire hôte intact, au prix d'une dépendance à la biologie cible murine plutôt qu'humaine. L'évaluation basée sur les xénogreffes a permis la translation clinique de la thérapie CAR-T ciblant le CD19, où l'activité contre les modèles de LAL-B et de LNH-B chez les hôtes NSG a correspondu à des réponses cliniques durables54.
Développement pharmaceutique, découverte de biomarqueurs et traduction assistée par l'intelligence artificielle
Les modèles PDX visent à prédire les réponses cliniques aux médicaments avec une fidélité supérieure à celle des modèles CDX ou GEMM. L'essai clinique PDX (PCT) de Novartis de 2015 mené par Gao et ses collègues a appliqué un plan expérimental 1 × 1 × 1 à environ 1 000 modèles PDX, 62 régimes thérapeutiques et six indications, permettant d'identifier des associations génotype-réponse ainsi que des mécanismes de résistance établis et nouveaux12. L'application du concept 1 × 1 × 1 au niveau du patient individuel est limitée par un délai de mise en place de 3 à 6 mois, ce qui place généralement les décisions guidées par les modèles PDX en deuxième ou troisième ligne de traitement10. Les études PDX ont contribué à l'identification de biomarqueurs cliniques validés, notamment la mutation de KRAS comme prédicteur de la résistance aux anti-EGFR dans le cancer colorectal, les mutations activatrices d'EGFR et la mutation T790M pour le choix des inhibiteurs de tyrosine kinase dans le cancer pulmonaire non à petites cellules (NSCLC), l'amplification d'HER2 dans les cancers du sein et gastrique, ainsi que la résistance au platine dans le cancer de l'ovaire10.
De grandes bases de données sur la réponse aux médicaments chez les modèles PDX ont permis l'application de méthodes d'apprentissage automatique à la prédiction de la réponse thérapeutique. En 2025, Yang et ses collègues ont décrit TRANSPIRE-DRP, un cadre d'apprentissage profond utilisant un apprentissage par adaptation de domaine non supervisé afin de traduire les données transcriptomiques PDX en prédictions de réponse au niveau du patient, évalué pour le céfuximab, le paclitaxel et la gemcitabine55. En 2024, Tosca et ses collègues ont publié un cadre de modélisation translationnelle qui a permis de ramener à l'échelle humaine les taux de croissance tumorale PDX selon une relation allométrique, afin de prédire le temps de doublement du volume tumoral et la survie sans progression dans des populations de patients non traités, couvrant onze types de cancers solides, avec 91 % des médianes prédites du temps de doublement du volume tumoral situées à moins d'un facteur 1,5 des observations cliniques56. Des défis non résolus persistent : un biais de sélection dans les biobanques en faveur des tumeurs greffables, une validation clinique prospective limitée, et l'absence de voie réglementaire définie pour les preuves précliniques issues de l'intelligence artificielle33,55.
Les plates-formes de xénogreffe répondent à différentes questions translationnelles selon les stades de développement, sans se concurrencer pour un rôle unique. Les modèles CDX restent centraux pour les travaux mécanistiques précoces et le criblage à haut débit ; les modèles PDX offrent la fidélité génomique et l'hétérogénéité interindividuelle nécessaires à la validation des biomarqueurs et à la modélisation des réponses cliniques ; les configurations humanisées et autologues humanisées permettent de répondre à des questions spécifiques aux immunothérapies, que les xénogreffes conventionnelles ne peuvent aborder ; enfin, les plates-formes basées sur les organoïdes augmentent le débit ex vivo lorsque le tissu est limité ; ces plates-formes soutiennent collectivement l'évaluation préclinique de thérapeutiques anticancéreuses nouvelles, établies ou alternatives57,58,59. Des cadres d'intelligence artificielle et d'apprentissage automatique tels que TRANSPIRE-DRP et les modèles translationnels PK/PD relient désormais les données de réponse aux médicaments dans les modèles PDX aux prédictions de réponse au niveau du patient, mais leur utilité clinique dépend de la qualité et de la standardisation de l'annotation des modèles sous-jacents. Les principales questions non résolues concernent la validité prédictive, la reproductibilité des rapports, la représentativité des biobanques et le statut réglementaire des preuves précliniques issues de l'IA. Les progrès dépendront moins de l'introduction de nouvelles catégories de modèles que d'une utilisation rigoureuse des modèles existants, soutenue par des métadonnées harmonisées, une évaluation longitudinale de la fidélité et une intégration transparente entre plates-formes.
Conclusions
Les modèles de xénogreffe ont évolué à partir d'implants sous-cutanés simples de lignées cellulaires établies vers un cadre expérimental multifacette comprenant les modèles CDX et PDX, les variantes orthotopiques et métastatiques, ainsi que les systèmes humanisés reconstitués immunitairement, y compris les configurations autologues. Cette évolution a été motivée par la reconnaissance progressive que la fidélité à la biologie du cancer humain, en termes de paysage génomique, d'hétérogénéité intratumorale et de microenvironnement tumoral, constitue un déterminant principal de la valeur prédictive préclinique.
Les modèles CDX restent centraux en oncologie préclinique, car ils constituent la plateforme in vivo la plus utilisée et la plus rentable pour l'évaluation précoce des médicaments, fournissant des données reproductibles et évolutives permettant l'optimisation des doses, la caractérisation PK/PD, l'évaluation de l'inhibition de la croissance tumorale et l'analyse des critères d'efficacité liés à la survie. Les modèles PDX offrent la fidélité nécessaire à la découverte de biomarqueurs, à la conception d'essais co-cliniques et aux applications pharmacologiques qui dépendent de la préservation des caractéristiques génomiques et histologiques du donneur. La hiérarchie de l'immunodéficience — allant des souris nude et SCID aux modèles NSG, NOG, NRG et BRG, avec l'apparition récente du rat SRG — reflète une perméabilité à l'engraftement de plus en plus affinée. Les configurations humanisées et autologues étendent ces plateformes à l'évaluation des inhibiteurs de points de contrôle immunitaire, des anticorps bispécifiques et des thérapies par cellules CAR-T, bien que des limitations immunologiques au niveau des espèces persistent.
L'amélioration de la traduction préclinique exige une conception rigoureuse des études et une communication normalisée. PDX-MI, MISHUM, OBSERVE et les recommandations consensuelles du NCI PDXNet fournissent les cadres de reporting nécessaires ; l'adoption cohérente par les chercheurs, les revues scientifiques et les organismes de financement reste le facteur déterminant essentiel de leur impact. La trajectoire de la recherche sur les xénogreffes converge vers quatre priorités : une communication normalisée sur toutes les plateformes, un choix rationnel de plateforme adapté à la question translationnelle, l'amélioration continue de l'ingénierie des modèles humanisés, et des cadres de traduction pilotés par l'intelligence artificielle capables de transformer de grands ensembles de données PDX en prédictions de réponse cliniquement exploitables.
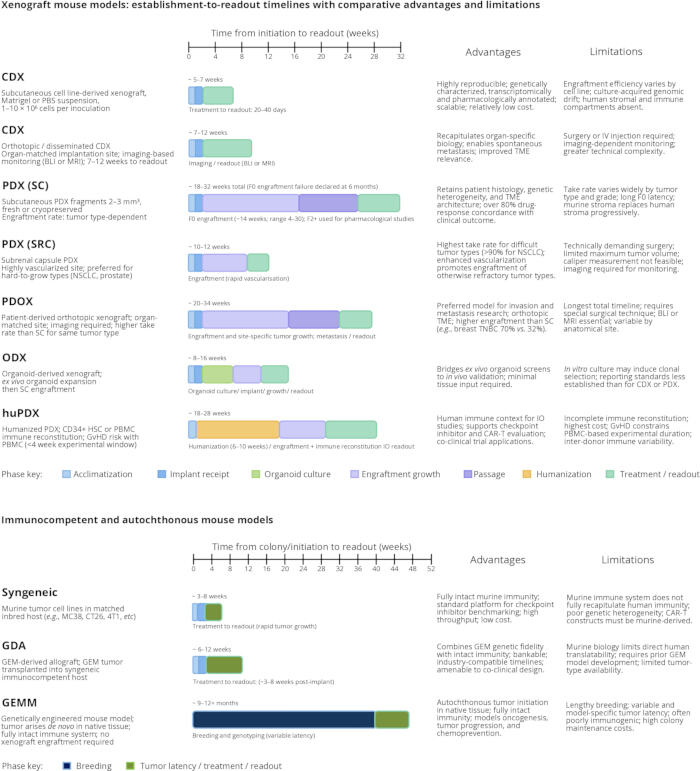
Figure 1 : Modèles murins de xénogreffe : chronologies de la mise en place à la lecture des résultats, avec avantages et limites comparatifs. Les chronologies allant de l’initiation à la lecture expérimentale sont présentées pour les principales plates-formes précliniques utilisées dans le développement de médicaments en oncologie, regroupées selon le statut immunitaire de l’hôte. Le panneau supérieur concerne les modèles de xénogreffe chez des hôtes immunodéficients : xénogreffes dérivées de lignées cellulaires (CDX) sous-cutanées, orthotopiques ou disséminées, xénogreffes dérivées de patients (PDX) sous-cutanées, PDX sous la capsule rénale (PDX-SRC), xénogreffes orthotopiques dérivées de patients (PDOX), xénogreffes dérivées d’organoïdes (ODX) et PDX humanisés (huPDX). Le panneau inférieur concerne les plates-formes immunocompétentes et autochtones : modèles syngéniques, allogreffes dérivées de modèles murins génétiquement modifiés (GDA) et modèles murins génétiquement modifiés (GEMM). Pour chaque plate-forme, les phases expérimentales sont codées par couleur (acclimatation, réception de l’implant, culture d’organoïdes, engraftement et croissance, passage, humanisation, traitement/lecture ; ou reproduction et latence tumorale/traitement/lecture pour les modèles autochtones), avec des durées totales approximatives indiquées en semaines. Les avantages et limites propres à chaque plate-forme sont résumés dans le panneau droit. Les chronologies reflètent les procédures opérationnelles standard mises en œuvre chez Altogen Labs et sont conformes aux plages publiées dans le domaine (https://altogenlabs.com/xenograft-models) ; les durées réelles varient selon le type de tumeur, la souche d’hôte, la conception de l’étude et la cinétique d’engraftement. BLI, imagerie bioluminescente ; GvHD, maladie du greffon contre l’hôte ; HSC, cellule souche hématopoïétique ; IO, immuno-oncologie ; IRM, imagerie par résonance magnétique ; NSCLC, cancer du poumon non à petites cellules ; PBMC, cellule mononucléée du sang périphérique ; SC, sous-cutané ; TME, microenvironnement tumoral ; TNBC, cancer du sein triple négatif. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
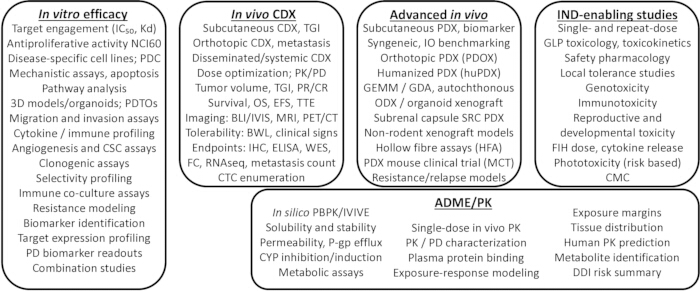
Figure 2: Protocole intégré en oncologie préclinique : de la in vitro efficacité par des études précliniques permettant le dépôt d'une demande d'essai clinique (IND)Schéma du parcours progressif du développement préclinique de médicaments, organisé en quatre étapes séquentielles. In vitro l'efficacité englobe la liaison à la cible (IC50, KD), activité antiproliférative sur des panels de lignées cellulaires incluant le NCI-60 et des lignées spécifiques à certaines maladies, cellules dérivées de patients (PDC), tests mécanistiques et d'analyse des voies, modèles tridimensionnels et organoïdes tumoraux dérivés de patients (PDTO), tests de migration et d' invasion, profilage cytokinique et immunitaire, angiogenèse et tests sur les cellules souches cancéreuses, tests de clonogénicité, profilage de sélectivité, tests de co-culture immunitaire, modélisation de la résistance, identification de biomarqueurs, profilage d'expression des cibles, lectures des biomarqueurs pharmacodynamiques et études de combinaison. In vivo CDX couvre les modèles CDX sous-cutanés, orthotopiques et disséminés ou systémiques, destinés à l'optimisation des doses, à la caractérisation PK/PD, à l'évaluation du volume tumoral et de l'inhibition de la croissance tumorale (TGI), à la classification des réponses partielles et complètes (PR/CR), aux critères d'évaluation de la survie (OS, EFS, TTE), à l'imagerie multimodale (BLI/IVIS, IRM, TEP/TDM), aux paramètres d'évaluabilité incluant la perte de poids corporel (BWL) et les signes cliniques, aux critères moléculaires (IHC, ELISA, WES, cytométrie en flux, RNA-séquençage, dénombrement des métastases) ainsi qu'au dénombrement des cellules tumorales circulantes (CTC). Avancé in vivo les plateformes comprennent les modèles PDX sous-cutanés et orthotopiques, les modèles PDX sous la capsule rénale (SRC), les modèles PDX humanisés, les modèles syngéniques pour l'évaluation comparative en immuno-oncologie, les modèles GEMM et GDA, les modèles ODX, les modèles de xénogreffe chez des non-rongeurs, les tests en fibre creuse (HFA), les essais cliniques chez la souris PDX (MCT) et les modèles de résistance ou de rechute. Les études permettant l'engagement d'une demande d'essai clinique (IND) comprennent la toxicologie GLP à dose unique et à doses répétées, la toxicocinétique, la pharmacologie de sécurité, la tolérance locale, la génotoxicité, l'immunotoxicité, la toxicité reproductive et développementale, l'estimation de la dose pour le premier essai chez l'humain (FIH), l'évaluation de la libération de cytokines et l'évaluation de la phototoxicité selon une approche basée sur le risque. Les caractérisations parallèles en chimie, fabrication et contrôle (CMC) ainsi qu'en absorption, distribution, métabolisme et excrétion/cinétique pharmaceutique (ADME/PK) incluent la modélisation in silico PBPK et IVIVE, la solubilité et la stabilité, la perméabilité et l'efflux par la glycoprotéine P (P-gp), l'inhibition et l'induction du cytochrome P450 (CYP), ainsi que des tests métaboliques in vivo PK, liaison aux protéines plasmatiques, modélisation exposition-réponse, distribution tissulaire, prédiction de la PK humaine, identification des métabolites et évaluation du risque d'interactions médicamenteuses (IM). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Déclarations de divulgation
L'auteur est employé par Altogen Labs (Austin, TX, USA), une organisation de recherche contractuelle qui fournit des services de recherche en oncologie préclinique. Figure 1 et Figure 2 sont des schémas originaux créés par l'auteur. Les figures intègrent des chronologies et des flux de travail dérivés des procédures opérationnelles standard d'Altogen Labs. Aucun conflit d'intérêts déclaré.
Références
- Sung H, Ferlay J, Siegel RL, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Islami F, Wiese D, Schafer EJ, Sung H, Jemal A. Stage-specific cancer survival in Black and White persons by urbanicity of county of residence, United States, 2015-2021. Cancer. 2025:e70073.
- Johnson JI, Decker S, Zaharevitz D, et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 2001;84(10):1424-1431.
- Voskoglou-Nomikos T, Pater JL, Seymour L. Clinical predictive value of the in vitro cell line, human xenograft, and mouse allograft preclinical cancer models. Clin Cancer Res. 2003;9(11):4227-4239.
- Jung J. Human tumor xenograft models for preclinical assessment of anticancer drug development. Toxicol Res. 2014;30(1):1-5.
- Liu Y, Wu W, Cai C, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8:160.
- Okada S, Vaeteewoottacharn K, Kariya R. Application of highly immunocompromised mice for the establishment of patient-derived xenograft (PDX) models. Cells. 2019;8(8):889.
- Blanchard Z, Brown EA, Ghazaryan A, et al. PDX models for functional precision oncology and discovery science. Nat Rev Cancer. 2025;25(3):153-166.
- Shultz LD, Brehm MA, Garcia-Martinez JV, et al. Humanized mice for immune system investigation: progress, promise and challenges. Nat Rev Immunol. 2012;12(11):786-798.
- Hidalgo M, Amant F, Biankin AV, et al. Patient-derived xenograft models: an emerging platform for translational cancer research. Cancer Discov. 2014;4(9):998-1013.
- Dobrolecki LE, Airhart SD, Alferez DG, et al. Patient-derived xenograft (PDX) models in basic and translational breast cancer research. Cancer Metastasis Rev. 2016;35(4):547-573.
- Gao H, Korn JM, Ferretti S, et al. High-throughput screening using patient-derived tumor xenografts to predict clinical trial drug response. Nat Med. 2015;21(11):1318-1325.
- Izumchenko E, Paz K, Ciznadija D, Sloma I, Katz A, Vasquez-Dunddel D, et al. Patient-derived xenografts effectively capture responses to oncology therapy in a heterogeneous cohort of patients with solid tumors. Ann Oncol. 2017;28(10):2595-2605.
- Khanna C, Hunter K. Modeling metastasis in vivo. Carcinogenesis. 2005;26(3):513-523.
- Ribatti D. The chick embryo chorioallantoic membrane (CAM) assay. Reprod Toxicol. 2017;70:97-101.
- Fazio M, Ablain J, Chuan Y, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-418.
- Conte N, Mason JC, Halmagyi C, et al. PDX Finder: a portal for patient-derived tumor xenograft model discovery. Nucleic Acids Res. 2019;47(D1):D1073-D1079.
- Meehan TF, Conte N, Goldstein T, et al. PDX-MI: minimal information for patient-derived tumor xenograft models. Cancer Res. 2017;77(21):e62-e66.
- Stripecke R, Münz C, Schuringa JJ, et al. Innovations, challenges, and minimal information for standardization of humanized mice. EMBO Mol Med. 2020;12(7):e8662.
- Brehm MA, Wiles MV, Greiner DL, et al. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 2014;410:3-17.
- King MA, Covassin L, Brehm MA, et al. Human peripheral blood leucocyte non-obese diabetic-severe combined immunodeficiency interleukin-2 receptor gamma chain gene mouse model of xenogeneic graft-versus-host-like disease and the role of host major histocompatibility complex. Clin Exp Immunol. 2009;157(1):104-118.
- Percie du Sert N, Hurst V, Ahluwalia A, et al. The ARRIVE guidelines 2.0: updated guidelines for reporting animal research. Br J Pharmacol. 2020;177(16):3617-3624.
- Sajjad H, Imtiaz S, Noor T, et al. Cancer models in preclinical research: a chronicle review of advancement in effective cancer research. Anim Models Exp Med. 2021;4(2):87-103.
- Mosely SI, Prime JE, Sainson RC, et al. Rational selection of syngeneic preclinical tumor models for immunotherapeutic drug discovery. Cancer Immunol Res. 2017;5(1):29-41.
- Flanagan SP. "Nude", a new hairless gene with pleiotropic effects in the mouse. Genet Res. 1966;8(3):295-309.
- Rygaard J, Povlsen CO. Heterotransplantation of a human malignant tumour to "Nude" mice. Acta Pathol Microbiol Scand. 1969;77(4):758-760.
- Chen J, Liao S, Xiao Z, et al. The development and improvement of immunodeficient mice and humanized immune system mouse models. Front Immunol. 2022;13:1007579.
- Shoemaker RH. The NCI60 human tumour cell line anticancer drug screen. Nat Rev Cancer. 2006;6(10):813-823.
- Barretina J, Caponigro G, Stransky N, et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 2012;483(7391):603-607.
- Liu M, Yang X. Patient-derived xenograft models: current status, challenges, and innovations in cancer research. Genes Dis. 2025;12(5):101520.
- Rubio-Viqueira B, Jimeno A, Cusatis G, et al. An in vivo platform for translational drug development in pancreatic cancer. Clin Cancer Res. 2006;12(15):4652-61.
- Bertotti A, Migliardi G, Galimi F, et al. A molecularly annotated platform of patient-derived xenografts ("xenopatients") identifies HER2 as an effective therapeutic target in cetuximab-resistant colorectal cancer. Cancer Discov. 2011;1(6):508-23.
- Sartore-Bianchi A, Lonardi S, Martino C, et al. Pertuzumab and trastuzumab emtansine in patients with HER2-amplified metastatic colorectal cancer: the phase II HERACLES-B trial. ESMO Open. 2020;5(5):e000911.
- Ovcharenko D, Chitjian C, Kashkin A, et al. Two dichloric compounds inhibit in vivo U87 xenograft tumor growth. Cancer Biol Ther. 2019;20(9):1281-1289.
- Hernandez MC, Bergquist JR, Leiting JL, et al. Patient-derived xenografts can be reliably generated from patient clinical biopsy specimens. J Gastrointest Surg. 2019;23(4):818-824.
- Noto FK, Sangodkar J, Adedeji BT, et al. The SRG rat, a Sprague-Dawley Rag2/Il2rg double-knockout validated for human tumor oncology studies. PLoS One. 2020;15(10):e0240169.
- De La Rochere P, Guil-Luna S, Decaudin D, et al. Humanized mice for the study of immuno-oncology. Trends Immunol. 2018;39(9):748-763.
- Hoffman RM. Patient-derived orthotopic xenografts: better mimic of metastasis than subcutaneous xenografts. Nat Rev Cancer. 2015;15(8):451-2.
- Okano M, Oshi M, Butash A, et al. Orthotopic implantation achieves better engraftment and faster growth than subcutaneous implantation in breast cancer patient-derived xenografts. J Mammary Gland Biol Neoplasia. 2020;25(1):27-36.
- Scott CL, Becker MA, Haluska P, et al. Patient-derived xenograft models to improve targeted therapy in epithelial ovarian cancer treatment. Front Oncol. 2013;3:295.
- De Vleeschauwer SI, van de Ven M, Oudin A, et al. OBSERVE: guidelines for the refinement of rodent cancer models. Nat Protoc. 2024;19(9):2571-2596.
- Meric-Bernstam F, Lloyd MW, Koc S, et al. Assessment of patient-derived xenograft growth and antitumor activity: the NCI PDXNet consensus recommendations. Mol Cancer Ther. 2024;23(7):924-938.
- Woo XY, Giordano J, Srivastava A, et al.; PDXNET Consortium; EurOPDX Consortium. Conservation of copy number profiles during engraftment and passaging of patient-derived cancer xenografts. Nat Genet. 2021;53(1):86-99.
- Hynds RE, Huebner A, Pearce DR, et al. Representation of genomic intratumor heterogeneity in multi-region non-small cell lung cancer patient-derived xenograft models. Nat Commun. 2024;15(1):4653.
- Wunderlich M, Chou FS, Sexton C, et al. Improved multilineage human hematopoietic reconstitution and function in NSGS mice. PLoS One. 2018;13(12):e0209034.
- Chiorazzi M, Martinek J, Krasnick B, et al. Autologous humanized PDX modeling for immuno-oncology recapitulates features of the human tumor microenvironment. J Immunother Cancer. 2023;11(7):e006921.
- Phoon YP, Lopes JE, Pfannenstiel LW, et al. Autologous human preclinical modeling of melanoma interpatient clinical responses to immunotherapeutics. J Immunother Cancer. 2024;12(4):e008066.
- Tsimafeyeu I, Makhov P, Ovcharenko D, et al. A novel anti-FGFR1 monoclonal antibody OM-RCA-01 exhibits potent antitumor activity and enhances the efficacy of immune checkpoint inhibitors in lung cancer models. Immunooncol Technol. 2024;23:100725.
- Jespersen H, Lindberg MF, Donia M, et al. Clinical responses to adoptive T-cell transfer can be modeled in an autologous immune-humanized mouse model. Nat Commun. 2017;8(1):707.
- Morton JJ, Bird G, Refaeli Y, et al. Humanized mouse xenograft models: narrowing the tumor-microenvironment gap. Cancer Res. 2016;76(21):6153-6158.
- Fløe LVB, Pedersen MG, Møller BK. Animal models in preclinical evaluation of CAR-T cell therapy: advantages and limitations. Biochim Biophys Acta Rev Cancer. 2025;1880(6):189455.
- Andreu-Sanz D, Gregor L, Carlini E, et al. Predictive value of preclinical models for CAR-T cell therapy clinical trials: a systematic review and meta-analysis. J Immunother Cancer. 2025;13(6):e011698.
- Duncan BB, Dunbar CE, Ishii K. Applying a clinical lens to animal models of CAR-T cell therapies. Mol Ther Methods Clin Dev. 2022;27:17-31.
- Yang J, Wu T, Xue F, et al. TRANSPIRE-DRP: a deep learning framework for translating patient-derived xenograft drug response to clinical patients via domain adaptation. J Transl Med. 2025;23(1):1340.
- Tosca EM, Ronchi D, Rocchetti M, et al. Predicting tumor volume doubling time and progression-free survival in untreated patients from patient-derived-xenograft (PDX) models: a translational model-based approach. AAPS J. 2024;26(5):92.
- Ovcharenko D, Mukhin D, Ovcharenko G. Alternative cancer therapeutics: unpatentable compounds and their potential in oncology. Pharmaceutics. 2024;16(9):1237.
- Altogen Labs. Xenograft models in oncology: CDX, PDX, organoids, and humanized immuno-oncology platforms. Austin (TX): Altogen Labs; https://altogenlabs.com/xenograft-models/
- Sirotkin AV, Ovcharenko D, Mlyncek M. Identification of protein kinases that control ovarian hormone release by selective siRNAs. J Mol Endocrinol. 2010;44(1):45-53.