Cette revue synthétise les données sur le contrôle de la qualité mitochondriale (biogenèse, dynamique et mitophagie) au cours des différentes étapes de la spermatogenèse, en reliant les modifications métaboliques et le remaniement structural à l'infertilité masculine, et en identifiant les lacunes méthodologiques afin de guider les recherches futures.
Article de revue
Contrôle de la qualité mitochondriale : un gardien de la spermatogenèse
Dans cet article
Résumé
Résumé
L'infertilité masculine est en augmentation à l'échelle mondiale. La spermatogenèse est un processus énergivore étroitement lié au contrôle de qualité mitochondrial (MQC), incluant la biogenèse, la dynamique de fusion-fission et la mitophagie. Nous synthétisons ici les données actuelles à travers les stades développementaux des cellules germinales, en mettant en évidence les changements spécifiques à chaque stade, passant d'une production d'ATP soutenue par la glycolyse à un métabolisme dominé par la phosphorylation oxydative (OXPHOS), ainsi que la remodélisation de l'architecture mitochondriale en gaine du segment intermédiaire. Nous résumons les données génétiques et fonctionnelles impliquant OPA1/MFN1-2 dans la fusion des membranes interne et externe, DRP1/FIS1/MFF dans la fission et l'organisation de la gaine, ainsi que les rôles de la mitophagie dépendante et indépendante de PINK1-Parkin dans le contrôle de qualité mitochondrial, tout en reconnaissant que l'élimination du cytoplasme et le maintien de l'acrosome durant la spermiogenèse pourraient impliquer l'autophagie générale plutôt que la mitophagie spécifiquement. Un dysfonctionnement mitochondrial—excès d'espèces réactives de l'oxygène (ROS), effondrement du potentiel de membrane mitochondrial (MMP), dynamique dysrégulée ou mitophagie déficiente—compromet la spermatogenèse et la fonction spermatique. Nous identifions également des lacunes méthodologiques limitant la transposition clinique, notamment l'absence de phénotypage standardisé et de preuves génétiques humaines. Clarifier la causalité et la ciblabilité pharmacologique du MQC pourrait soutenir les recherches futures en matière de diagnostics ou de thérapeutiques dans l'infertilité masculine.
Introduction
La qualité du sperme est en déclin à travers le monde, et l'incidence de l'infertilité masculine causée par une qualité spermatique anormale est en augmentation1. Une méta-analyse récente a montré qu'entre 1973 et 2011, le nombre de spermatozoïdes chez les hommes d'Amérique du Nord, d'Europe, d'Australie et de Nouvelle-Zélande avait diminué de 50 à 60 %2, et ce déclin s'est accéléré depuis 20003. La baisse accélérée de la qualité du sperme a été signalée dans le monde entier2,3,4,5,6. Les causes de cette diminution nécessitent des études supplémentaires ainsi que des mesures ciblées pour protéger la fertilité masculine.
La spermatogenèse se déroule dans les tubules séminifères des testicules. Il s'agit d'un processus en forme de vague impliquant des combinaisons spécifiques de cellules spermatogéniques le long de l'axe longitudinal des tubules séminifères, conduisant finalement les cellules souches spermatogoniales (SSCs) à proliférer et à se différencier en spermatozoïdes7. Chez les mammifères, la spermatogenèse constitue l'un des processus de différenciation les plus complexes et les plus longs en biologie. Chez l'homme, un cycle spermatogénique complet dure de 64 à 74 jours, chaque cycle de l'épithélium séminifère durant 16 jours. Ce processus complexe implique des modifications importantes de la forme, du nombre et de la répartition des mitochondries8.
Le contrôle de qualité mitochondrial (MQC) — l'ensemble coordonné des processus de biogenèse mitochondriale, de fusion, de fission et de mitophagie sélective — maintient l'intégrité de l'organelle face à des besoins bioénergétiques variables8,9. Dans le testicule, le MQC est spécifique à chaque stade et soutient la transition des spermatogonies proliférantes vers la méiose et la spermiogenèse, aboutissant à l'assemblage d'une gaine mitochondriale fortement compactée dans la pièce intermédiaire du spermatozoïde9. Figure 1 illustre le mécanisme du MQC durant la spermatogenèse. La perturbation des composants du MQC peut entraîner une spermatogenèse déficiente et une subfécondité chez les organismes modèles comme chez l'homme. Cette revue rassemble les connaissances mécanistiques actuelles et expose les perspectives de transfert translationnel.
Revue et perspective
Spermatogenèse et métabolisme énergétique mitochondrial
La spermatogenèse comprend trois étapes séquentielles : la prolifération mitotique, la méiose et la spermiogenèse, impliquant la prolifération des spermatogonies, leur différenciation en spermatocytes, la division méiotique, la maturation des spermatides et la spermiation dans la lumière des tubules séminifères. Les spermatogonies sont classées en types réservistes et renouvelants. Certaines spermatogonies sont conservées comme cellules souches, tandis que d'autres participent à la spermatogenèse par différenciation. En outre, certaines subissent une mort cellulaire programmée, telle que l'apoptose. Les spermatocytes primaires diploïdes subissent deux cycles de division méiotique pour se différencier en spermatides haploïdes. Pendant la spermiogenèse, les spermatides rondes cessent de se diviser et se transforment en spermatides fortement allongées, qui finissent par donner des spermatozoïdes matures.
La spermatogenèse nécessite des interactions coordonnées entre les cellules germinales (y compris les spermatogonies, les spermatocytes, les spermatides et les spermatozoïdes) et les cellules de Sertoli soutenantes, ainsi que le maintien de l'intégrité de la barrière hémato-testiculaire10,11. La barrière hémato-testiculaire, formée par des jonctions serrées entre des cellules de Sertoli adjacentes, divise l'épithélium séminifère en compartiments basal et adluminal, créant ainsi un microenvironnement spécialisé essentiel au développement des cellules germinales et le maintenant11,12. Par conséquent, la spermatogenèse — depuis les cellules souches spermatogoniales jusqu'aux spermatozoïdes matures — se déroule au sein de ce microenvironnement testiculaire unique. Le processus de production des spermatozoïdes dépend fortement de la fonction mitochondriale13. En tant que centre du métabolisme énergétique dans les cellules eucaryotes, les mitochondries sont considérées comme essentielles à la production de spermatozoïdes. La formation des spermatozoïdes dépend fortement de l'approvisionnement énergétique et des fonctions de signalisation des mitochondries. Dans les cellules germinales en développement, les mitochondries fournissent non seulement l'ATP essentiel à la spermatogenèse, mais influencent également ce processus en participant à la signalisation intracellulaire, à la régulation du cycle cellulaire et à la mort cellulaire programmée13. Dans les cellules de Leydig, les mitochondries jouent un rôle crucial dans la production des hormones stéroïdiennes, et la synthèse mitochondriale d'ATP est nécessaire à la production de testostérone dans ces cellules interstitielles testiculaires14. De plus, en tant que seul organite possédant un ADN indépendant, l'ADN mitochondrial est étroitement lié à la qualité des spermatozoïdes. Par conséquent, comprendre l'état mitochondrial et ses mécanismes régulateurs est important pour révéler le processus de la spermatogenèse et maintenir la fertilité masculine.
Le métabolisme énergétique est essentiel pour la spermatogenèse, qui nécessite une quantité importante d'ATP. Les deux voies principales de production d'ATP sont la phosphorylation oxydative mitochondriale (OXPHOS) et la glycolyse. L'approvisionnement en ATP dépend du stade ; alors que l'OXPHOS devient de plus en plus importante durant la méiose et la formation du piètement, la glycolyse contribue de manière significative à la production d'ATP, notamment dans les spermatozoïdes matures. La glycolyse soutient également la maturation, la mobilité et le passage des spermatozoïdes dans les voies reproductrices femelles en fournissant un approvisionnement énergétique souple et rapide.
Cependant, dans les spermatogonies et les premiers spermatocytes, les mitochondries sont relativement petites et présentent une activité OXPHOS limitée. À mesure que la spermatogenèse progresse vers des stades ultérieurs, tels que les spermatocytes, les spermatides et les spermatozoïdes, les mitochondries subissent un remaniement et leur activité OXPHOS devient plus spatialement concentrée et plus efficace. De plus, en raison de la barrière hémato-testiculaire, les substrats disponibles varient selon les stades. Les spermatogonies, situées dans le compartiment basal de l'épithélium séminifère, peuvent accéder au glucose circulant et produire de l'énergie par glycolyse. En revanche, les spermatocytes et les spermatides situés dans le compartiment adluminal sont séparés du sang et de l'interstitium par la barrière hémato-testiculaire et dépendent des cellules de Sertoli pour absorber le glucose via des transporteurs de glucose (GLUT), puis le convertir en pyruvate par glycolyse. Le pyruvate est ensuite transformé en lactate par la lactate déshydrogénase (LDH). Le lactate est transporté vers les spermatocytes via des transporteurs de monocarboxylates (MCT), où il est reconverti en pyruvate par la LDH, puis transformé en acétyl-CoA par la pyruvate déshydrogénase (PDH) pour entrer dans le cycle de l'acide tricarboxylique (TCA). Enfin, le pyruvate est transporté vers les mitochondries via le transporteur mitochondrial du pyruvate afin de favoriser l'OXPHOS.
Détérioration de la spermatogenèse par un dysfonctionnement mitochondrial
Pendant la spermiation, les spermatozoïdes matures sont libérés des cellules de Sertoli dans la lumière des tubules séminifères, puis transportés vers l'épididyme. Ce processus nécessite un apport énergétique important provenant des mitochondries. Lorsque la fonction mitochondriale est altérée, la spermatogenèse est entravée. Les signes clés de dysfonction mitochondriale incluent une production excessive d'espèces réactives de l'oxygène (ROS), des modifications du potentiel membranaire mitochondrial (MMP), un déséquilibre des dynamiques de fission et de fusion mitochondriales, une biogenèse mitochondriale altérée, une mitophagie déficiente et une perturbation de l'homéostasie des ions calcium.
Le processus par lequel les mitochondries produisent de l'ATP par phosphorylation oxydative est également accompagné de la production d'espèces réactives de l'oxygène (ERO). Les mitochondries constituent la principale source d'ERO, qui sont principalement générées au niveau des complexes respiratoires I et III de la chaîne de transport d'électrons mitochondriale (CTE)15. Dans des conditions physiologiques normales, des concentrations appropriées d'ERO participent à des voies de signalisation régulant la spermatogenèse. Toutefois, un excès d'ERO peut entraîner un déséquilibre redox, provoquant un stress oxydatif et altérant la spermatogenèse. Ainsi, l'équilibre entre le métabolisme énergétique mitochondrial et la production d'ERO est un facteur clé pour assurer la spermatogenèse.
Une OXPHOS mitochondriale efficace nécessite l'entrée de substrats carbonés respiratoires (par exemple, le pyruvate, les acides gras) à travers la membrane mitochondriale externe vers l'espace intermembranaire. Ces substrats sont ensuite transportés vers la matrice via des transporteurs situés dans la membrane mitochondriale interne, où ils participent au cycle de l'acide citrique (TCA). Au cours du cycle TCA, ces substrats carbonés subissent une dégradation oxydative, produisant du nicotinamide adénine dinucléotide (NADH) et du flavin adénine dinucléotide (FADH2). Ces produits cèdent des électrons à la chaîne de transport des électrons (ETC) et alimentent l'OXPHOS pour la synthèse d'ATP à partir d'ADP et de phosphate inorganique (Pi). Des interruptions dans le cycle TCA ou les voies de la chaîne de transport des électrons peuvent altérer la production de spermatozoïdes16. Le potentiel membranaire mitochondrial (MMP), en tant qu'indicateur de l'état énergétique cellulaire et de la fonction mitochondriale, s'est révélé associé à la mobilité des spermatozoïdes17 et à la capacité fécondante globale18.
Sous stress mitochondrial, la fission peut séparer les segments mitochondriaux endommagés, tandis que la fusion peut favoriser le mélange du contenu et la complémentation fonctionnelle. Les mitochondries endommagées ou excédentaires peuvent ensuite être dégradées et recyclées par mitophagie. Ensemble, la biogenèse mitochondriale, la fission, la fusion et la mitophagie constituent le contrôle de qualité mitochondrial (MQC), qui soutient la fonction et le remodelage mitochondriaux19.
La spermatogenèse implique la différenciation des spermatogonies en spermatozoïdes, ce qui entraîne non seulement des changements importants de la morphologie cellulaire, mais nécessite également le soutien et la régulation du métabolisme énergétique. En tant que centrales énergétiques des cellules, les mitochondries jouent un rôle essentiel dans des aspects clés de la spermatogenèse, notamment l'approvisionnement en énergie, la transduction du signal et la mort cellulaire programmée. Au cours de la spermatogenèse, les besoins métaboliques des cellules germinales varient selon les stades de développement. Le nombre et la morphologie des mitochondries subissent des modifications importantes durant la spermatogenèse. Lors de la formation des spermatozoïdes, de nombreuses mitochondries sont éliminées, tandis que celles qui sont conservées s'organisent dans la pièce intermédiaire du spermatozoïde pour former une gaine mitochondriale autour de l'axonème et des structures associées du flagelle. Ainsi, au cours de la spermatogenèse, les mitochondries présentes dans diverses cellules testiculaires subissent continuellement des processus de fusion et de fission, nécessitant un mécanisme efficace et précis de contrôle de qualité mitochondrial (MQC) afin d'assurer leur fonction normale et de répondre aux besoins énergétiques élevés de la spermatogenèse. Lors de la production des spermatozoïdes, la morphologie et le nombre de mitochondries subissent des changements significatifs, et le contrôle de qualité mitochondrial joue un rôle fondamental dans ce processus. Les protéines cibles clés impliquées dans le contrôle de qualité mitochondrial sont répertoriées dans Table 1.
Spermiogenèse et dynamique mitochondriale
Les mitochondries sont des organites hautement dynamiques dont la morphologie, la taille et la distribution subcellulaire sont continuellement remodelées par une fusion et une fission coordonnées, un processus appelé collectivement dynamique mitochondriale. Dans des conditions physiologiques normales, la fusion et la fission sont en équilibre dynamique, ce qui maintient l'homéostasie mitochondriale, facilite la complémentation fonctionnelle et assure un héritage mitochondrial adéquat lors de la division cellulaire. La perturbation de cet équilibre — qu'elle soit due à une abolition génétique, à des défauts de modification post-traductionnelle ou à un stress pathologique — altère la fonction mitochondriale, compromet la production d'énergie et finit par entraver la spermatogenèse. La régulation précise de la dynamique mitochondriale est particulièrement cruciale dans les cellules germinales, car la spermatogenèse implique des changements métaboliques importants et un remodelage morphologique étendu qui exigent une adaptation spécifique à chaque stade de l'architecture et de l'activité mitochondriales.
La fusion mitochondriale est médiée par MFN1 et MFN2 sur la membrane mitochondriale externe et par OPA1 sur la membrane interne, facilitant le mélange du contenu, la complémentation fonctionnelle et le maintien de l'intégrité de l'ADN mitochondrial. La fusion n'est pas seulement une réponse de défense, mais un mécanisme dépendant du contexte qui soutient l'héritage mitochondrial et l'adaptation métabolique durant la différenciation des cellules germinales. Lors de la différenciation des spermatogonies, l'expression de MFN augmente, et la perte de MFN1 ou de MFN2 entraîne une oxydation de l'ADN et une apoptose dans les spermatogonies et les spermatocytes, conduisant à une infertilité masculine20,21. Des mutations de MFN1 provoquent une atrophie testiculaire chez la souris, avec une réduction marquée des spermatocytes et un échec de la production de spermatozoïdes, tandis que les spermatogonies indifférenciées restent intactes, suggérant que MFN1 est nécessaire pour la progression méiotique20. MFN2, en revanche, régule à la fois les fonctions mitochondriales et du réticulum endoplasmique, jouant un rôle distinct dans la spermatogenèse21.
La fission mitochondriale est orchestrée par DRP1, qui est recruté à la membrane externe mitochondriale par l'intermédiaire de protéines adaptatrices telles que FIS1, MFF, MID49 et MID51. Une fois recruté, DRP1 s'assemble en oligomères de forme annulaire qui resserrent et divisent les mitochondries de manière dépendante du GTP. Ce processus implique trois étapes principales : l'activation de DRP1 par phosphorylation, son recrutement à la membrane externe via des interactions avec FIS1, MFF, MID49 et MID51, puis son assemblage en une structure en anneau qui entoure et comprime les mitochondries, consommant du GTP et produisant deux organites distincts. La fission n'est pas simplement un mécanisme d'élimination des mitochondries dépolarisées ou destiné à répondre à des besoins énergétiques accrus ; au contraire, il s'agit d'un processus coordonné qui régule la distribution mitochondriale, la ségrégation des composants endommagés, l'héritage lors de la division cellulaire et la remodélisation de l'architecture mitochondriale. Les souris dépourvues de DRP1 présentent une létalité embryonnaire22,23 ; les souris déficientes en MFF montrent une fertilité réduite et un comptage spermatozoïde diminué, offrant ainsi un modèle précieux pour l'étude de la fission mitochondriale dans le développement des cellules germinales mâles24. La fission mitochondriale est essentielle à la formation adéquate de la gaine mitochondriale durant la spermiogenèse.
La spermatogenèse est un processus exigeant sur le plan énergétique, reposant principalement sur la glycolyse dans les spermatogonies et sur la phosphorylation oxydative (OXPHOS) dans les spermatocytes et les spermatides. L'OXPHOS est particulièrement critique pendant la méiose, et son efficacité dépend de dynamiques mitochondriales intactes25,26. Après la méiose, MFF et d'autres protéines de fission régulent la fission mitochondriale et participent à la formation de la gaine mitochondriale du spermatozoïde24. Pendant la spermiogenèse, certaines mitochondries sont conservées de manière sélective et remodelées en une gaine, tandis que les mitochondries excédentaires et les composants cytoplasmiques sont éliminés par autophagie27. Des protéines telles que OPA1, DRP1 et MFF pourraient constituer des cibles de recherche prometteuses pour améliorer la fonction spermatique, mais leur pertinence thérapeutique nécessite une validation supplémentaire. Une étude plus approfondie du contrôle de la qualité mitochondriale (MQC) dans la spermatogenèse humaine pourrait faciliter de futures recherches diagnostiques ou thérapeutiques en matière d'infertilité masculine.
Spermatogenèse et autophagie mitochondriale
La mitophagie joue un rôle essentiel dans la spermatogenèse28. Elle implique principalement l'englobement des mitochondries endommagées par des autophagosomes. Ces derniers, contenant des mitochondries lésées, fusionnent ensuite avec les lysosomes, et les mitochondries sont dégradées par l'action lysosomale, permettant ainsi l'élimination des mitochondries endommagées et assurant un contrôle de qualité. La voie classique de l'autophagie mitochondriale est la voie PINK1/Parkin, bien que des voies indépendantes de PINK1/Parkin aient également été décrites29.
L'autophagie contribue au maintien de l'intégrité de l'acrosome, de la polarisation des spermatides et de la dégradation des composants cytoplasmiques durant la spermatogenèse, bien que ces processus reflètent une autophagie générale plutôt qu'une mitophagie sélective, sauf si l'élimination mitochondriale est spécifiquement démontrée. Des études ont montré que la mitophagie est étroitement liée à la dynamique mitochondriale, et que la fission mitochondriale pourrait faciliter la mitophagie afin d'éliminer les mitochondries excédentaires ou endommagées30. FIS1, bien qu'il s'agisse d'une protéine de fission mitochondriale, participe également à la mitophagie durant la spermatogenèse31. RAB7A intervient dans la formation des mitophagosomes et la maturation des autophagosomes32. FIS1 interagit avec la protéine GTPase mitochondriale TBC1D1533,34. TBC1D15 régule l'activité de RAB7A, qui est impliquée dans la fusion des vésicules et des lysosomes ainsi que dans la maturation des autophagosomes34,35. Lorsque FIS1 est inactivé, RAB7A peut rester actif à la surface mitochondriale, entraînant une croissance et une tubulation anarchiques de la membrane de l'autophagosome ; l'agrégation de LC3 peut alors être observée par microscopie optique35. La mitophagie peut également survenir indépendamment de la fission mitochondriale médiée par DRP1, de sorte que la fission ne doit pas être considérée comme obligatoire pour l'élimination mitochondriale35.
Pendant la spermiogenèse, les spermatides sont débarrassés de leurs composants cellulaires excédentaires, et des études ont montré que les autophagosomes sont particulièrement abondants dans les spermatides36. Le gène autophagique fondamental Atg7 est associé à la polarisation des spermatides et à l'élimination du cytoplasme au cours de la spermatogenèse ; toutefois, les types précoces de cellules germinales semblent moins affectés dans ce contexte27,36. De plus, la mitophagie est renforcée dans les modèles testiculaires lésés, notamment dans les cellules de Leydig29, les cellules souches/progéniteurs spermatogoniaux37,38, les cellules de Sertoli39 et les testicules immatures de rat exposés à des toxiques40. Lors de la spermatogenèse, l'autophagie mitochondriale est liée à l'apoptose et à d'autres formes de mort cellulaire programmée, affectant ainsi la production de spermatozoïdes dans les testicules41,42.
Contexte bibliométrique
Une analyse bibliométrique ciblée de la collection Web of Science Core Collection, couvrant la période de 1970 à 2023, a été réalisée à l’aide des termes de recherche « spermatogenèse » et « MQC » ; les études portant sur des non-mammifères et les documents non pertinents ont été exclus, et VOSviewer 1.6.20 a été utilisé pour la visualisation43. Après dépouillement, 1 019 articles provenant de 1 217 institutions réparties dans 66 pays et impliquant 5 705 auteurs ont été retenus. Le nombre de publications a augmenté régulièrement (figure 2A). Les États-Unis et la Chine ont contribué au plus grand nombre d’articles (212 et 196 respectivement), et les États-Unis ont obtenu le nombre de citations le plus élevé (12 295 ; figure 2B). Les réseaux institutionnels et des auteurs sont résumés dans les figures 2C et 2D.
L'analyse de la co-occurrence des mots-clés (fréquence > 7) a révélé un accent mis sur la mobilité des spermatozoïdes, le stress oxydatif, l'apoptose ou mort cellulaire programmée, les dommages de l'ADN, la peroxydation lipidique et la qualité spermatique (Figure 3). Ces profils bibliométriques soutiennent, sans les remplacer, l'analyse mécanistique : le domaine de recherche est centré sur les atteintes oxydatives et les paramètres de mobilité, tandis que les preuves humaines directes reliant les voies spécifiques de contrôle qualité mitochondrial à l'infertilité restent limitées.
Conclusions
Avec les progrès de la biotechnologie, la recherche sur la fertilité masculine s'est orientée de la morphologie descriptive et de la motilité vers les mécanismes moléculaires et cellulaires de la spermatogenèse. Les mitochondries jouent un rôle central dans ce processus : elles produisent de l'ATP, soutiennent le remaniement pendant la méiose et la spermiogenèse, et sont très sensibles aux agressions oxydatives et environnementales44. Pour maintenir leur fonctionnalité sous ces stress, les mitochondries dépendent du contrôle qualité mitochondrial (MQC), qui intègre la biogenèse, la dynamique de fusion-fission et la mitophagie. La perturbation de ces voies altère le développement des cellules germinales, l'architecture de la pièce intermédiaire du spermatozoïde et, en fin de compte, la fertilité. En conclusion, les données disponibles appuient un modèle spécifique aux étapes dans lequel la dynamique mitochondriale et la mitophagie contribuent à coordonner la production d'énergie, le remaniement des organites et l'élimination des composants endommagés durant la spermatogenèse. Toutefois, les preuves directes chez l'humain et le phénotypage standardisé restent limités ; les protéines liées au MQC doivent donc être considérées comme des cibles de recherche candidates nécessitant une validation supplémentaire, plutôt que comme des cibles thérapeutiques établies.
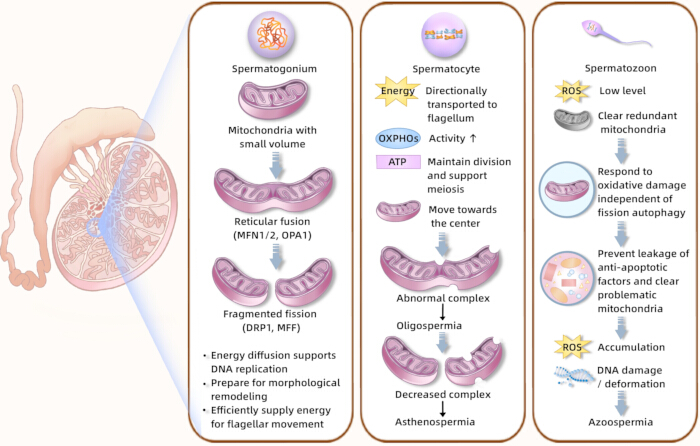
Figure 1. Mécanisme du contrôle de qualité mitochondrial au cours de la spermatogenèse. Métabolisme énergétique et remaniement mitochondrial selon les stades de la spermatogenèse. Le schéma illustre le couplage métabolique entre les cellules de Sertoli et les cellules germinales, les transporteurs de glucose, les transporteurs de monocarboxylates, la production d'ATP, la transition d'un métabolisme soutenu par la glycolyse vers la phosphorylation oxydative durant la méiose et la spermiogenèse, ainsi que les lésions mitochondriales liées aux espèces réactives de l'oxygène. Abréviations : ATP = adénosine triphosphate ; OXPHOS = phosphorylation oxydative ; ROS = espèces réactives de l'oxygène. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
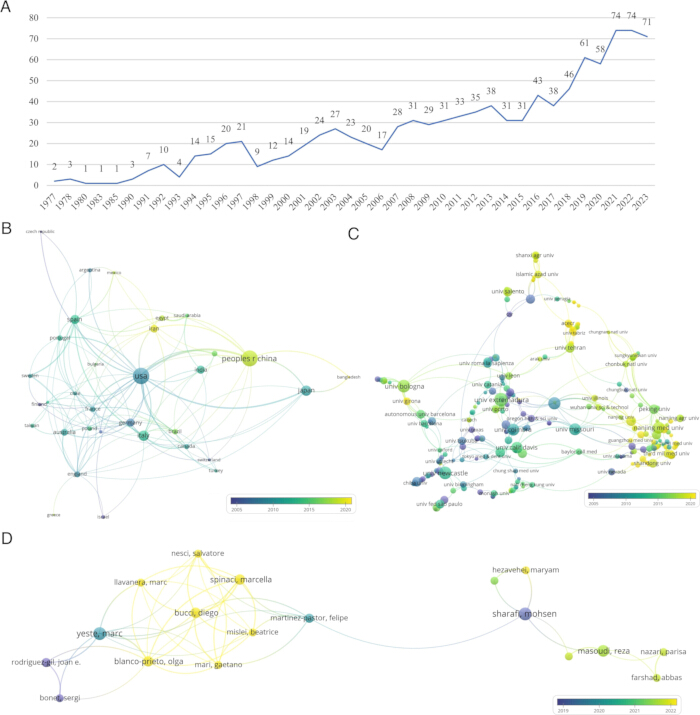
Figure 2. Analyse nationale, institutionnelle, par auteur des publications et des collaborations. (A) Nombre annuel de publications dans le domaine de la spermatogenèse et du MQC. (B) Carte de répartition temporelle des publications collaboratives internationales dans le domaine de la spermatogenèse et du MQC. (C) Carte de répartition temporelle des collaborations institutionnelles dans le domaine de la spermatogenèse et du MQC. (D) Carte de répartition temporelle des publications par auteur dans le domaine de la spermatogenèse et du MQC. Les nœuds indiquent le nombre de publications ; la couleur des nœuds indique la période de publication, allant des plus anciennes aux plus récentes ; les lignes représentent les relations collaboratives, les lignes plus épaisses indiquant une collaboration plus étroite. Abréviation : MQC = contrôle de la qualité mitochondriale. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
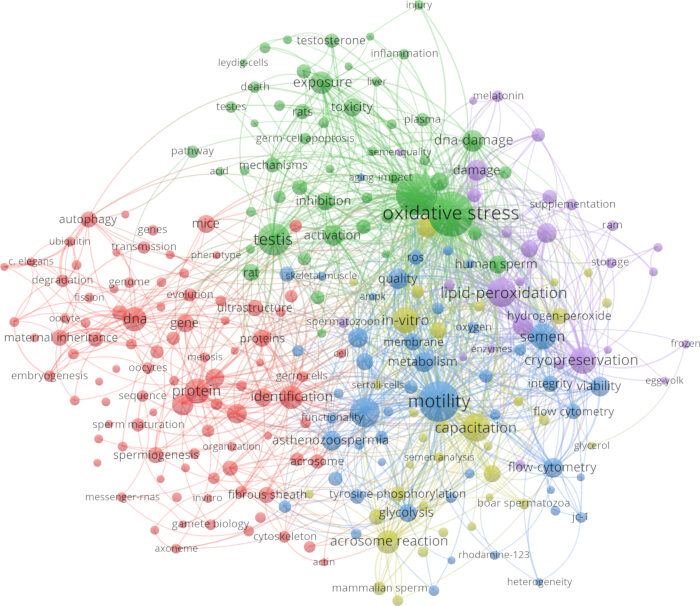
Figure 3. Graphique de co-occurrence des mots-clés à haute fréquence. Les nœuds représentent les mots-clés à haute fréquence ; la taille des nœuds indique la fréquence ; la couleur des nœuds reflète le regroupement, les nœuds de même couleur correspondant à des sujets plus étroitement liés ; les lignes illustrent les relations entre les mots-clés, les lignes plus épaisses indiquant des relations plus fortes. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Processus de CQM | Protéine cible |
| Fusion mitochondriale | Optic atrophy 1 (OPA1) |
| Mitofusine 1 (MFN1) | |
| Mitofusine 2 (MFN2) | |
| Fission mitochondriale | Protéine apparentée à la dynamine 1 (DRP1) |
| Protéine mitochondriale de fission 1 (FIS1) | |
| Facteur de fission mitochondriale (MFF) | |
| Mitophagie | Protéine kinase putative induite par PTEN (PINK1) |
| Ligase d'ubiquitine Parkine (ligase d'ubiquitine E3 Parkine) |
Tableau 1 : Protéines cibles clés dans le contrôle de qualité mitochondrial. Le tableau recense des protéines représentatives impliquées dans la fusion mitochondriale, la fission mitochondriale et la mitophagie durant la spermatogenèse.
Déclarations de divulgation
Les auteurs n'ont aucune incompatibilité d'intérêts à déclarer.
Remerciements
Ce travail a été soutenu par le projet de la Fondation des sciences naturelles du Ningxia (2025AAC030481, 2024AAC03715), la Fondation nationale des sciences naturelles de Chine (82560939, 82505601), le programme clé de recherche et développement du Ningxia (2025FRG05005, 2025BEG2008), la Fondation des sciences naturelles de Pékin (7254520), la Fondation chinoise des sciences postdoctorales (2025T181076), le programme de parrainage des jeunes scientifiques émérites de l'Association chinoise pour la science et la technologie (YESS20240193), le programme de soutien aux jeunes talents de l'Association chinoise de médecine traditionnelle chinoise (CACM-2024-QNRC2-B17), ainsi que le projet de construction d'une discipline clé de haut niveau en médecine traditionnelle chinoise de l'Administration nationale de la médecine traditionnelle chinoise (zyyzdxk-2023238).
Références
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.