Cette étude évalue le traitement par Qi-fu-yin (QFY) chez des souris 5xFAD. Les résultats montrent que l'administration de QFY est associée à une amélioration des performances d'apprentissage et de mémoire, à une réduction du dépôt cérébral d'Aβ et de la sénescence cellulaire, ainsi qu'à une atténuation des lésions structurales synaptiques dans le cortex cérébral.
Article de recherche
Effets du Qi-fu-yin sur l'amélioration des troubles cognitifs et la réduction de la sénescence cellulaire dans le cerveau de souris 5xFAD
* These authors contributed equally
Dans cet article
Résumé
Résumé
Bien que le mécanisme d'action de Qi-fu-yin (QFY), une prescription de médecine traditionnelle chinoise, ne soit pas entièrement compris, celle-ci a montré un potentiel thérapeutique dans la maladie d'Alzheimer (MA). Cette étude visait à examiner la relation entre le traitement par QFY et l'altération cognitive chez des souris 5xFAD. Nous avons utilisé la force de préhension, marche, nidification en colonie, boîte de transfert, test du labyrinthe aquatique de Morris et ELISA pour évaluer les niveaux d'Amyloïde-β protéine 1-42 (Aβ1-42), Aβ1-40, protéine associée à la croissance 43 (GAP-43), synaptophysine (SYN) et protéine de densité post-synaptique 95 (PSD-95) dans les cerveaux de souris 5xFAD. Une analyse cytokinique par Luminex a été utilisée pour quantifier les niveaux du phénotype sécrétoire associé au sénescence (SASP) dans le cortex. La quantité de sénescence associée β-galactosidase (SA-β-Gal), Aβ le dépôt et les épines dendritiques dans le cerveau des animaux ont été mesurés par SA-βcoloration Gal, immunohistochimie et coloration Golgi-Cox, respectivement. Le traitement QFY a réduit de manière spectaculaire l'A corticalβ charge amyloïde et diminution de l'expression de p21 chez les souris 5xFAD, selon les tests d'immunofluorescence. Chez les souris 5xFAD, la thérapie QFY a nettement amélioré les performances d'apprentissage et de mémoire, atténué vieillissement, et augmenté les quantités de protéines GAP-43, PSD-95 et SYN dans le cortex des souris. Après le traitement par QFY, une diminution significative de Aβ plaque et SA-β- Activité de la Gal dans le cerveau, ainsi que Aβ1-42 et Aβ1-42/Aβ1-40 niveaux dans l'hippocampe. Les niveaux d'IL-1α, IL-1β, IL-6, IL-17A et IFN-γ étaient considérablement réduites dans le cortex des souris 5xFAD. Les analyses de composantes principales (ACP) et de corrélation de Pearson ont révélé une forte association négative entre les cytokines de la SASP et les niveaux de protéines synaptiques. Ces résultats suggèrent une association entre le traitement par QFY et l'amélioration du déclin cognitif lié à l'âge ainsi que des phénotypes de sénescence cellulaire chez les souris 5xFAD, accompagnée d'une atténuation des lésions structurales synaptiques. Ces observations soutiennent la poursuite des investigations sur le QFY en tant que candidat thérapeutique potentiel pour la maladie d'Alzheimer.
Introduction
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protocole
Toutes les expériences sur les animaux ont été approuvées par le Comité d'éthique du bien-être des animaux de laboratoire de l'Université de médecine traditionnelle chinoise du Shandong (SDUTCM20221101001).
Médicaments
La poudre sèche en granulés QFY a été préparée et testée par le centre de recherche et développement Houpu de Lunan Pharmaceutical. La donepezil et la mémantine ont été achetées auprès de Shanghai Yuanye Technology. Des souris mâles 5xFAD, dont le poids corporel initial était compris entre 19 et 27 g, ont été utilisées dans cette étude. La dose de QFY a été dérivée de la dose clinique humaine de 43 g/j, ce qui correspond à 16,297 g/j après ajustement pour la poudre sèche en granulés QFY. La dose moyenne pour la présente expérience a été calculée à partir de la dose clinique humaine (16,297 g/70 kg × 9,1 = 2,11861 g/kg/j). La dose élevée a été fixée à deux fois la dose moyenne (4,24 g/kg/j), et la dose faible à la moitié de la dose moyenne (1,06 g/kg/j). Toutes les solutions médicamenteuses ont été administrées à un volume de 0,1 mL pour 10 g de poids corporel.
Pour le contrôle positif, une administration combinée de donepezil et de chlorhydrate de mémantine a été utilisée. Les doses ont été déterminées en se référant aux doses actuellement utilisées en clinique (10 mg/j et 20 mg/j, respectivement) ainsi qu'aux données antérieures de notre groupe de recherche, conduisant à un régime de 1,0 mg/kg/j de donepezil associé à 2,8 mg/kg/j de mémantine, pour une dose totale combinée de 3,8 mg/kg/j. La concentration finale du mélange donepezil-mémantine a été préparée à 0,38 mg/mL, calculée en divisant 3,8 mg/kg par le volume d'administration de 0,1 mL par 10 g de poids corporel.
Des solutions de QFY à faible, moyenne et forte dose ont été préparées comme suit : 5,3 g, 10,6 g et 21,2 g de poudre sèche de QFY ont été placés chacun dans des béchers séparés de 100 mL, mélangés avec 30 mL d'eau purifiée en agitant soigneusement, transférés dans des cylindres gradués, puis complétés à un volume final de 50 mL avec de l'eau purifiée, donnant des concentrations massiques finales respectives de 0,106 g/mL, 0,212 g/mL et 0,424 g/mL. Pour le témoin positif, 5 mg de donepezil et 14 mg de mémantine ont été dissous dans de l'eau purifiée et ajustés à un volume final de 50 mL. Les animaux de chaque groupe ont reçu une fois par jour la solution médicamenteuse correspondante par gavage oral.
Animaux
Les souris transgéniques 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] ont été élevées en laboratoire. Les animaux ont tous été maintenus dans un environnement SPF à l'Université de médecine traditionnelle chinoise du Shandong, avec une température de 22–24 oC, une humidité de 50–60 %, et un cycle lumineux de 12 heures d'obscurité et 12 heures de lumière. La nourriture et l'eau ont été fournies aux animaux en permanence.
À l'âge de 2,5 mois, des souris mâles 5xFAD ont été réparties aléatoirement en cinq groupes : 5xFAD non traitées, donepézil plus mémantine, faible dose de QFY, dose moyenne de QFY et forte dose de QFY. Des souris mâles témoins de type sauvage (WT) appariées par âge ont servi de groupe contrôle WT. Les traitements ont été administrés une fois par jour pendant 220 jours. (Figure 1).
Tests comportementaux
Test de force de préhension
La force musculaire squelettique des membres antérieurs des souris a été mesurée à l’aide d’un dynamomètre de préhension23. Pendant l’expérience, l’appareil de test était positionné horizontalement, de sorte que la souris reste parallèle à la surface de la table. Une fois l’appareil allumé, la souris était placée délicatement sur la plaque de préhension. Lorsque la souris avait saisi fermement la plaque, sa queue était tirée vers l’arrière avec une force uniforme jusqu’à ce qu’elle relâche sa prise. La force maximale de préhension était alors enregistrée. Cette mesure était répétée trois fois, et la moyenne de ces valeurs était utilisée pour déterminer la force de préhension de la souris.
Test de la démarche
La régularité de la démarche des souris a été mesurée à l'aide du système CatWalk XT. L'expérience a été divisée en une période d'entraînement et une période de test24. Un jour auparavant, les souris expérimentales ont été transférées dans la salle expérimentale afin de leur permettre de s'adapter au nouvel environnement. Pendant la période d'entraînement, les souris étaient placées au point de départ et parcouraient le canal jusqu'au point d'arrivée. Chaque souris était entraînée trois fois par jour. Après trois jours d'entraînement (jusqu'à ce que chaque souris traverse rapidement le canal), les souris étaient ramenées dans leur cage. La période de test était identique à la période d'entraînement, et le logiciel informatique analysait automatiquement chaque trajectoire de mouvement. Des points verts apparaissaient si la trajectoire était valide, des points oranges si elle était non valide, et au moins trois points verts étaient requis par souris pour être considérée comme valide ; les données ont été analysées à l'aide du logiciel CatWalkXT 10.0.
Test de la boîte de transfert
Le test de la boîte de transfert a été utilisé pour évaluer la capacité d'évitement actif conditionnel chez les souris25. L'appareil était constitué d'une boîte de transfert (18 cm x 18 cm) placée dans une chambre insonorisée. L'expérience comprenait une période d'apprentissage de 4 jours suivie d'une période de test d'1 jour. Chaque jour d'apprentissage, les souris bénéficiaient d'une période d'adaptation de 120 s dans la boîte de transfert avant le début de l'entraînement. Chaque essai commençait par un stimulus conditionné de 6 s (ton de 70 dB à 1000 Hz combiné à une lumière de 500 lux), suivi d'un choc plantaire de 3 s à 0,3 mA délivré par le plancher grillagé, et se terminait par un intervalle inter-essai de 12 s. Si la souris passait dans le compartiment opposé pendant le stimulus conditionné, le choc était omis et la réponse était enregistrée comme un évitement actif. Si la souris ne traversait pas pendant le stimulus conditionné mais passait pendant le choc plantaire, cela était enregistré comme une réponse d'évitement passif. Si la souris ne traversait pas durant tout l'essai, cela était enregistré comme un échec d'évasion. L'entraînement était répété pendant 4 jours consécutifs avec 30 essais par jour. Pendant la période de test (jour 5), le choc plantaire était omis tandis que tous les autres paramètres restaient identiques à ceux de la période d'apprentissage. Le nombre de réponses d'évitement actif était enregistré comme mesure principale de l'apprentissage et de la mémoire.
Labyrinthe aquatique de Morris
Le test du labyrinthe aquatique de Morris a été utilisé pour évaluer les capacités d'apprentissage spatial et de mémoire des animaux expérimentaux26. L'expérience a été réalisée dans un réservoir de 120 cm de diamètre et de 50 cm de profondeur. Le réservoir était rempli d'eau blanche trouble, dont la température était maintenue à 21 °C. Une plateforme de 10 cm de diamètre a été installée à 1 cm sous la surface de l'eau dans l'un des quadrants. Des repères visuels ont été placés autour du bassin comme points de repère spatiaux pour les souris. Le processus d'apprentissage s'est déroulé sur quatre jours consécutifs, chaque session quotidienne commençant dans l'un des trois quadrants. Les positions de départ variaient de manière pseudo-aléatoire parmi les quatre points cardinaux. À chaque essai, la procédure prenait fin lorsque l'animal atteignait avec succès la plateforme. Une durée maximale de 60 s par essai a été fixée ; si l'animal ne parvenait pas à localiser la plateforme dans ce délai, il était guidé délicatement vers celle-ci. Après avoir rejoint la plateforme, l'animal se voyait accorder un bref repos de 10 s avant d'être ramené dans sa cage d'origine. Une fois la période d'apprentissage terminée, la phase de test commence 24 h plus tard. Le jour 5, les souris sont placées depuis le quadrant opposé à celui de la plateforme. La latence d'échappement pendant la phase de test, le temps de déplacement dans le quadrant cible et le nombre de passages au-dessus de l'emplacement initial de la plateforme sous l'eau ont été enregistrés.
Test de nidification en colonie
Les activités quotidiennes des animaux expérimentaux ont été évaluées à l'aide du test de nidification en colonie27. L'expérience a duré 24 h, avec trois animaux par groupe. Après l'administration du médicament le même jour, de nouvelles cages ont été préparées, garnies de 6 g de papier doux destiné à la nidification, et des photographies ont été prises à 6 h, 12 h et 24 h. À la fin de l'expérience, le papier était dispersé dans toute la cage, sans morsure : 1 point. Les morceaux de papier étaient regroupés sur un côté de la cage, mais de façon lâche, sans nids formés, ni déchirure ni pliage apparents : 2 points ; les morceaux de papier étaient rassemblés et pliés en un nid formé mais relativement plat, sans déchirure évidente : 3 points ; un nid profond, composé de papier largement déchiqueté, obtenait un score de 4. À la fin de l'expérience, les fragments de papier intacts (définis comme des fragments pesant >0,1 g qui n'avaient pas été déchirés ou intégrés au nid) ont été soigneusement recueillis, séchés à l'air libre, puis pesés à l'aide d'une balance électronique (précision : 0,01 g).
Échantillonnage et collecte d'échantillons
Nous avons prélevé des échantillons uniquement à partir des groupes WT, 5xFAD et QFY (2,12 g/kg/j). Après l'asphyxie au CO2, les têtes ont été sectionnées, l'hémisphère droit a été rapidement ouvert pour séparer l'hippocampe et le cortex, rincé avec une solution saline tamponnée au phosphate (PBS), puis placé dans des tubes congelés de 1,5 mL dans de l'azote liquide. Les échantillons ont été conservés à -80 oC en vue de tests biochimiques. L'hémisphère gauche a été fixé par immersion dans du paraformaldéhyde à 4 % pendant 24 h, déshydraté par immersion dans de l'éthanol absolu, inclus dans de la cire de paraffine, coupé en sections de 5 µm, puis déparaffinisé pour la détection immunohistochimique.
Dosage immuno-enzymatique (ELISA)
Des ELISA ont été réalisés pour quantifier les niveaux de protéines cibles dans les tissus cérébraux. Les concentrations d'Aβ1–40 et d'Aβ1–42 dans les homogénats d'hippocampe ont été mesurées à l'aide de kits commerciaux, tandis que les niveaux corticaux de GAP-43, de PSD-95 et de SYN ont été déterminés à l'aide de kits provenant de Jiangsu Enzyme Immunoassay Industry. Toutes les procédures ont été strictement réalisées conformément aux protocoles des fabricants. Des séries standards ont été préparées par dilution sérielle selon les instructions des kits. La disposition de la microplaque comprenait des puits témoins, des puits standards, des puits d'échantillons 5xFAD, des puits d'échantillons traités par QFY (2,12 g/kg/j) et des puits de type sauvage. Avant le chargement, tous les échantillons ont été dilués au demi avec le diluant fourni. Les réactifs ont été ajoutés en maintenant la pointe de la pipette perpendiculaire au fond du puit, puis légèrement agités pour assurer un mélange complet.
Après la scellement de la plaque, une incubation initiale a été réalisée à 37 °C pendant 30 min. Pendant cette période, le tampon de lavage a été préparé en diluant le stock concentré avec de l'eau ultrapure dans un rapport de 1:29 (1 mL de concentré pour 29 mL d'eau). Après l'incubation, le film de scellement a été retiré, le liquide a été éliminé et la plaque a été séchée par tamponnement. Chaque puits a ensuite été rempli avec 200 µL de tampon de lavage, laissé reposer pendant 30 s, puis vidé ; ce cycle a été répété 5 fois. Un réactif marqué par une enzyme (50 µL) a ensuite été ajouté dans tous les puits sauf les témoins blancs, puis la plaque a été rescellée et incubée à nouveau à 37 °C pendant 30 min, suivie d'une étape identique de lavage répétée cinq fois.
Pour le développement de la couleur, 50 µL de solution chromogène A ont été ajoutés à chaque puits, suivis de 50 µL de solution chromogène B, avec un mélange doux après chaque ajout. La plaque a été incubée à 37 °C à l’abri de la lumière pendant 10 min. La réaction enzymatique a été interrompue en ajoutant 50 µL de solution d’arrêt par puits, ce qui a rapidement transformé la couleur bleue en jaune. L’absorbance (densité optique) a été mesurée à 450 nm à l’aide d’un lecteur de microplaques, les puits témoins servant de référence ; toutes les mesures ont été effectuées dans les 15 min suivant l’arrêt de la réaction.
Luminex
Les niveaux corticaux des facteurs SASP ont été mesurés à l'aide du kit Bio‑Plex Pro Mouse Cytokine 23‑plex Assay, tous les protocoles étant réalisés conformément aux instructions du fabricant. Les réactifs ont été sortis du stockage à 4 °C et laissés équilibrer à température ambiante pendant 30 min avant utilisation. Les stocks standards ont été dilués en série afin de générer une courbe standard à sept points, plus un puits témoin, conformément au protocole du kit. Les billes magnétiques ont été pré-mélangées et diluées à la concentration de travail recommandée ; les anticorps de détection ont été préparés sous forme de solutions de travail ; et le concentré de tampon de lavage a été dilué à 1x avec de l'eau déionisée. Le conjugué PE‑streptavidine a également été dilué à 1x à l'aide du tampon de dilution fourni.
Pour le dosage, 50 µL de suspension de billes, d'étalons, de contrôles de qualité et d'échantillons tissulaires dilués (5,6 µg/µL) ont été ajoutés séquentiellement dans les puits désignés selon la disposition de la plaque. La plaque a ensuite été scellée et incubée toute la nuit à 4 °C avec agitation orbitale à 800 tr/min. Après l'incubation, les billes ont été lavées trois fois avec 200 µL de tampon de lavage par puits. Ensuite, 50 µL de l'anticorps de détection préparé ont été ajoutés à chaque puits, et la plaque a été incubée pendant 1 h à température ambiante sous agitation à 800 tr/min. Après trois nouveaux cycles de lavage, 50 µL de solution working de streptavidine-PE ont été ajoutés, et la plaque a été incubée pendant 30 min supplémentaires à température ambiante dans les mêmes conditions d'agitation. Une étape finale de lavage (trois fois avec 200 µL de tampon de lavage) a été effectuée, après quoi 150 µL de tampon de lavage ont été ajoutés à chaque puits, et la plaque a été agitée pendant 2 min à température ambiante à 800 tr/min avant d'être lue sur l'appareil Bio-Plex.
Coloration SA-β-Gal et immunohistochimie
La coloration SA-β-Gal a été réalisée selon le protocole du kit de coloration par la β-galactosidase de sénescence. Après la coloration SA-β-Gal, les sections ont subi une récupération des antigènes par chauffage dans un tampon au citrate (pH 6,0). L'activité peroxydasique endogène a été bloquée par une incubation des sections dans une solution bloquante des peroxydases pendant 10 min à température ambiante. Les sections ont ensuite été incubées avec un anticorps monoclonal de lapin anti-Aβ₁-₄₂ (1:400) à 4 °C toute la nuit. Après lavage, les sections ont été incubées avec un anticorps secondaire IgG anti-lapin/souris pendant 20 min à température ambiante. Après nouveaux lavages, la réactivité immunohistochimique a été visualisée à l'aide de DAB pendant 2 min. Enfin, les sections ont été déshydratées, clarifiées et montées avec une résine neutre en vue de leur examen microscopique.
Immunofluorescence
Pour la coloration par immunofluorescence, les sections en paraffine ont été déparaffinisées dans le xylène (3 × 15 min) puis réhydratées à l’aide d’une série d’alcools gradués (100 %, 95 % et 75 % ; 2 × 5 min chacun). La récupération des épitopes a été réalisée en immergeant les sections dans un tampon citrate de sodium 1x à 95 °C pendant 30 min, puis en laissant refroidir progressivement jusqu’à la température ambiante. Après trois rinçages avec du tampon salin phosphate contenant du Tween 20 (PBST) (5 min chacun), les sections ont été perméabilisées et bloquées avec un sérum de chèvre normal à 10 % contenant 0,3 % de Triton X‑100 pendant 90 min à température ambiante. Les sections ont ensuite été incubées avec des anticorps primaires dirigés contre p21/CIP1/CDKN1A (1:200) et Aβ₁‑₄₂ (1:400) à 37 °C pendant 2 h. Après quatre lavages avec du PBST (5 min chacun), les sections ont été incubées avec des anticorps secondaires conjugués à la fluorochrome Alexa Fluor, spécifiques à l’espèce (1:500), à 37 °C pendant 2 h à l’abri de la lumière. Après des lavages supplémentaires (4 × 5 min dans du PBST), les sections ont été montées avec un milieu de montage antifade contenant du DAPI et observées au microscope à fluorescence.
Coloration Golgi-Cox
La coloration de Golgi-Cox a été réalisée à l’aide d’un kit commercial, conformément aux instructions du fabricant. Les solutions A et B ont été mélangées 24 heures avant l’expérience. Après euthanasie des souris, les tissus cérébraux ont été rapidement extraits, rincés au PBS, puis immergés dans le mélange des solutions A et B. Les tissus ont été conservés à température ambiante à l’abri de la lumière pendant 6 heures, après quoi la solution d’imprégnation a été remplacée par une solution fraîche et l’incubation a été poursuivie pendant 2 semaines supplémentaires à température ambiante à l’abri de la lumière (au moins 2 mL de solution d’imprégnation par tissu cérébral). Les tissus ont ensuite été transférés dans la solution C et incubés pendant 24 heures, puis remplacés par de la solution C fraîche et incubés pendant 7 jours supplémentaires à température ambiante à l’abri de la lumière. Les tissus cérébraux ont été sectionnés à une épaisseur de 100 µm à l’aide d’un vibratome. Les sections ont été montées sur des lames recouvertes de gélatine et laissées sécher à température ambiante pendant 3 jours. Les lames ont été rincées deux fois à l’eau distillée (5 minutes chacun), puis immergées dans un mélange des solutions D, E et eau distillée (dans un rapport 1:1:2) pendant 15 minutes. Après deux nouveaux rinçages à l’eau distillée (5 minutes chacun), les sections ont été déshydratées par des solutions d’éthanol graduelles (50 %, 75 % et 95 % ; 5 minutes chacune), suivies de quatre rinçages dans de l’éthanol absolu (4 minutes chacun) et de trois rinçages dans le xylène (5 minutes chacun). Enfin, les sections ont été recouvertes d’un milieu de montage. Les images ont été acquises au microscope, et la densité des épines dendritiques a été quantifiée à l’aide d’ImageJ.
Analyse statistique
Tous les résultats ont été exprimés comme moyenne ± écart-type. Les données ont été analysées et représentées graphiquement à l'aide de GraphPad Prism 8.1.0. Le test t de Student a été utilisé pour comparer deux groupes. Pour les comparaisons impliquant plusieurs groupes, une ANOVA à un facteur a été utilisée, avec des comparaisons par paires effectuées à l'aide du test de Dunnett. La signification statistique a été fixée à p < 0,05.
Analyses multivariées et de corrélation
Une analyse en composantes principales (ACP) a été réalisée à l'aide de GraphPad Prism 8.0.1 afin de visualiser le regroupement par groupe des facteurs SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 et CCL5) parmi les groupes WT, 5xFAD et QFY (2,12 g/kg/jour) (n = 8 par groupe). Le diagramme des scores a été généré à partir des deux premières composantes principales. Aucune transformation des données n'a été appliquée avant l'ACP. Une analyse de corrélation de Pearson a été effectuée pour évaluer les relations linéaires entre les facteurs SASP et les protéines synaptiques (PSD-95, GAP-43 et SYN), ainsi qu'avec Aβ₁₋₄₀, Aβ₁₋₄₂ et le rapport Aβ₁₋₄₂/Aβ₁₋₄₀. L'analyse a été réalisée à l'aide de GraphPad Prism, avec un seuil de significativité bilatéral de p < 0,05. Des matrices de corrélation et une carte thermique ont été générées pour visualiser l'intensité et la direction des associations.
Résultats
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
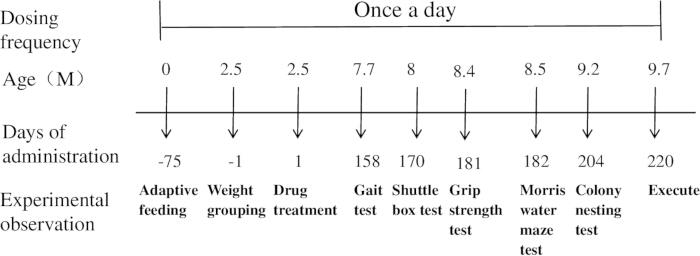
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
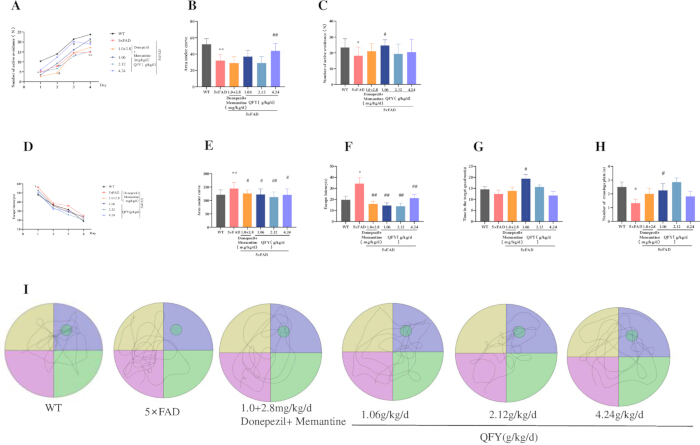
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
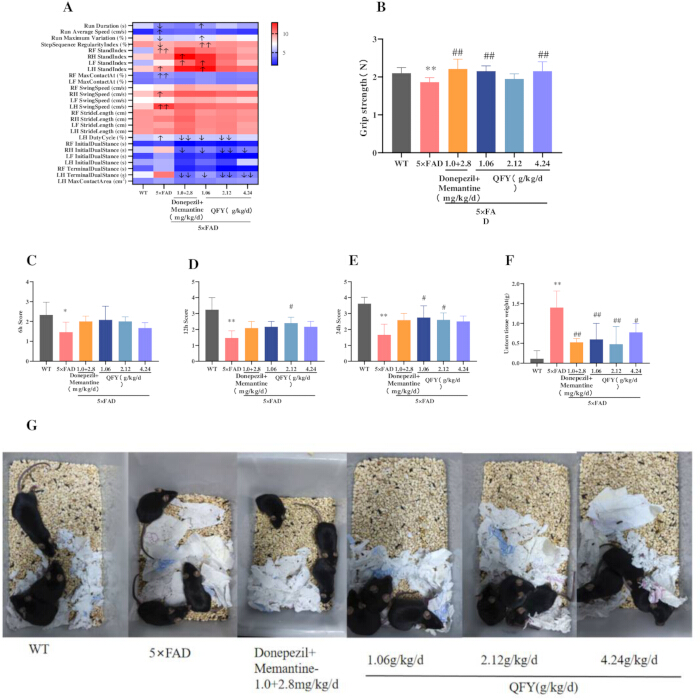
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
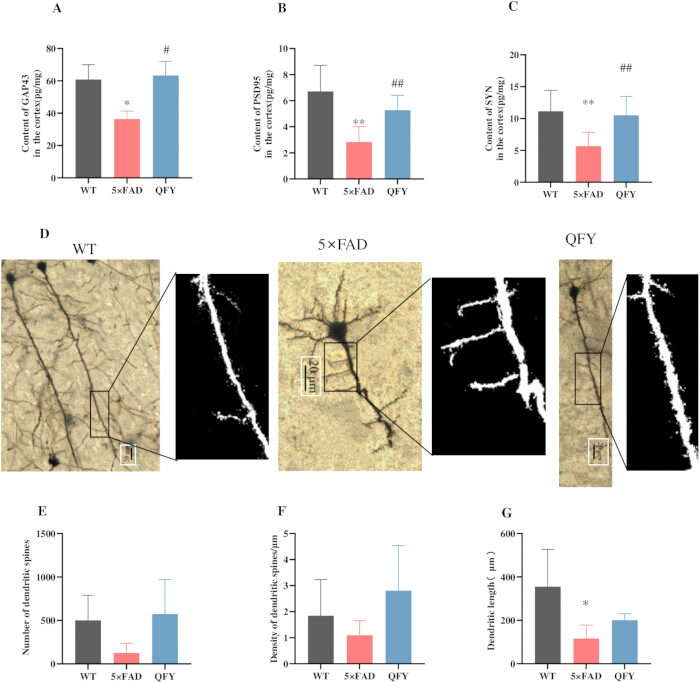
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
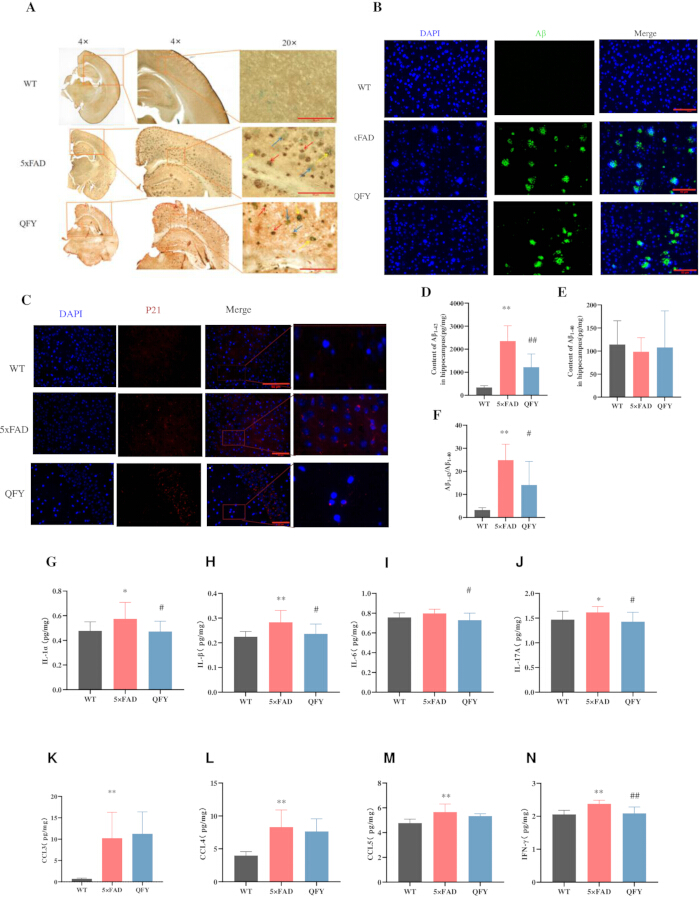
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
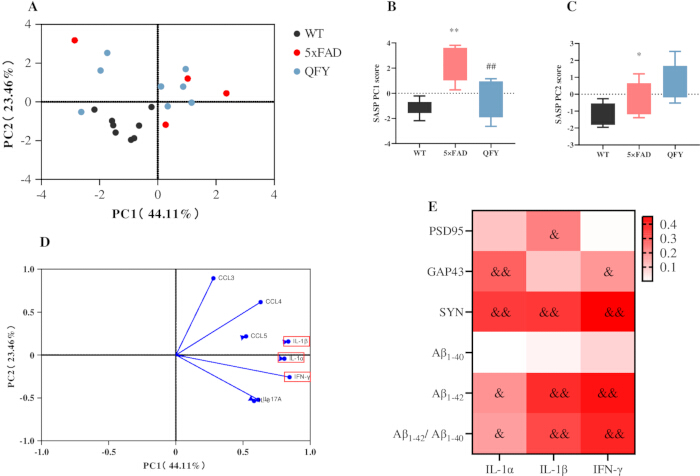
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
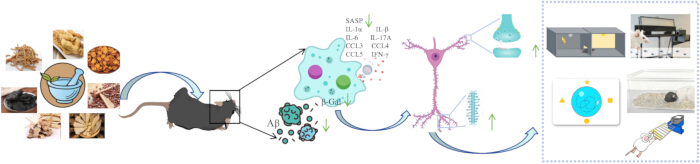
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Discussion
La plasticité synaptique neuronale joue un rôle clé dans la fonction cognitive. Dans le cerveau des patients atteints de la maladie d'Alzheimer (AD), les dépôts d'Aβ se propagent dans différentes régions, provoquant directement des lésions structurales synaptiques, une perte des synapses excitatrices et un déclin cognitif28. La protéine GAP-43 (une protéine membranaire présynaptique)29, la protéine PSD-95 (une protéine d'échafaudage localisée dans la membrane postsynaptique)30 et la synaptophysine (SYN, une phosphoprotéine associée aux vésicules synaptiques)31 jouent un rôle important dans la plasticité structurale synaptique et la pathogenèse de la maladie d'Alzheimer32. La présente étude a révélé que le traitement par QFY améliorait l'apprentissage et la mémoire, réduisait la charge en plaques Aβ et restaurait la structure synaptique en augmentant le nombre d'épines dendritiques ainsi que les niveaux protéiques de GAP-43, de PSD-95 et de SYN dans le cerveau de souris 5xFAD.
Le vieillissement est un facteur de risque crucial dans le développement de la MA et favorise la production d'Aβ. Les signes caractéristiques du vieillissement incluent une diminution de la force musculaire, un déséquilibre de la démarche et une altération des activités de base de la vie quotidienne33,34. La sénescence cellulaire, caractérisée par la SA-β-Gal, a été associée au vieillissement et à l'apparition de maladies liées à l'âge, telles que la MA11,35. L'élimination sélective des cellules en sénescence prolonge la durée de vie en bonne santé et retarde l'apparition des maladies liées à l'âge36. L'élimination des cellules sénescents par des approches génétiques ou pharmacologiques a atténué le dépôt d'Aβ et amélioré les fonctions d'apprentissage et de mémoire chez des souris modèles de MA37. Un traitement combiné à base de dasatinib et de quercétine (D+Q) réduit la sénescence des cellules progénitrices oligodendrocytaires, atténue la neuroinflammation, diminue la charge en plaques Aβ et l'activité de la SA-β-Gal, prévient l'accumulation d'Aβ et les troubles cognitifs chez des souris APP/PS137. Un traitement par mémantine a significativement réduit l'activité de la SA-β-Gal dans le cerveau de souris SAMP8 et amélioré l'apprentissage et la mémoire spatiale ; un effet similaire a été observé avec la combinaison de mémantine et de donepezil38. La présente étude a révélé que le traitement par QFY améliore la démarche, renforce les muscles des membres antérieurs et améliore les capacités dans les activités de base de la vie quotidienne, notamment en atténuant la sénescence cellulaire, comme indiqué par la coloration à la SA-β-Gal dans le cerveau de souris 5xFAD.
Les patients atteints de la maladie d'Alzheimer (AD) et les modèles animaux présentent tous deux des astrocytes, des microglies, des cellules endothéliales et des neurones sénescentes39,40. La sécrétion du SASP, qui comprend des chimioattractants et des cytokines inflammatoires, constitue une caractéristique distinctive de la sénescence cellulaire ; une sécrétion excessive de SASP peut entraîner une inflammation chronique, provoquant des lésions tissulaires et une sénescence cellulaire41. La sécrétion continue de SASP, incluant l'IL-1α, l'IL-1β, l'IL-6, l'IL-8, l'IFN-γ, le CCL2, le CCL3, le CCL4, le CCL5, le CXCL1, etc., favorise l'inflammation chronique, la sénescence paracrine des cellules normales, des modifications du métabolisme cellulaire et de la régulation épigénétique, ainsi que la production continue d'Aβ42,43,44,45. Les niveaux d'IL-1α, d'IL-1β, d'IL-6, d'IL-17A et d'IFN-γ sont fortement augmentés dans le cerveau des patients atteints de la maladie d'Alzheimer et des modèles de la maladie46. Des études ont montré que le D+Q peut inhiber la sécrétion de facteurs inflammatoires, notamment l'IL-1α et l'IFN-γ, et réduire les plaques d'Aβ ainsi que l'activité de la SA-β-Gal chez les souris APP/PS137. L'étude a révélé que le QFY réduisait l'expression de plusieurs facteurs du SASP, notamment l'IL-1α, l'IL-1β, l'IL-6, l'IL-17A et l'IFN-γ, atténuant ainsi le phénotype inflammatoire associé à la sénescence.
La protéine p21 appartient à la famille CIP/KIP d'inhibiteurs des kinases dépendantes des cyclines et agit comme un frein direct sur les complexes cycline-CDK2/4, induisant ainsi un arrêt en phase G1/G2 en cas de stress cellulaire, de dommages à l'ADN ou de vieillissement. Une augmentation prolongée de l'abondance de p21 est généralement interprétée comme l'entrée dans un programme sénescence stable47,48. Des données récentes révèlent que les souris 5xFAD présentent une charge cérébrale anormalement élevée de p21, laquelle est nettement réduite après un traitement combiné avec D+Q49. Conformément à ces observations, la présente étude a montré que l'administration de QFY réduisait de manière significative les plaques d'Aβ corticales et atténuait l'expression de p21 chez ces animaux.
Dans leur ensemble, ces résultats suggèrent une association entre le traitement par QFY et l'amélioration du déclin cognitif lié à l'âge ainsi que des phénotypes de sénescence cellulaire chez les souris 5xFAD, accompagnée d'une atténuation des lésions structurales synaptiques (Figure 7).
Plusieurs limites de cette étude doivent être reconnues. Premièrement, seuls des souris mâles 5xFAD ont été utilisées, et il reste à déterminer si les effets observés dépendent du sexe. Deuxièmement, bien que les données actuelles démontrent des associations fortes entre l'atténuation des phénotypes liés au vieillissement cellulaire et l'amélioration cognitive, nous n'avons pas mené d'expériences d'intervention mécanistique directe permettant d'établir une relation de causalité. Troisièmement, la pertinence translationnelle de ces résultats pour la maladie d'Alzheimer humaine est limitée par les différences entre espèces et par l'absence de données cliniques de pharmacocinétique. Des études futures intégrant des animaux femelles, des interventions spécifiques au sénescence, et des essais cliniques bien conçus sont nécessaires afin de confirmer et étendre ces résultats.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à déclarer.
Remerciements
Ce travail a été soutenu par des subventions de la National Natural Science Foundation of China (82205078, 82374062), de la Shandong Provincial Natural Science Foundation (ZR2026MS1293, ZR2021QH157), du projet scientifique et technologique sur la médecine traditionnelle chinoise de la province du Shandong (M20251730), des projets scientifiques et technologiques de la région autonome du Tibet, en Chine (XZ202601ZY0167), ainsi que du programme d'innovation technologique de la province du Shandong (Fonds pour le développement scientifique et technologique local guidé par le gouvernement central) (YDZX2023137), portant sur le projet intitulé « Développement et recherche d'industrialisation des gélules entérosolubles Tongli, une médecine traditionnelle chinoise de classe 1 ».
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Médicaments | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Mémanthine | Shanghai Yuanye Technology | lot. J21HB189391 | |
| Qi-fu-yin | Centre de recherche et développement Houpu, Lunan Pharmaceutical | lot. 2209001 | |
| Tests comportementaux | |||
| CatWalk XT | Noldus | Logiciel CatWalkXT 10.0 | |
| Dynamomètre de préhension | Bileadbiosci | BLD-ZL-20 | |
| labyrinthe aquatique de Morris | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Boîte de transfert | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Anticorps | |||
| Anti-Aβ1-42 anticorps | Abcam | Cat. n° ab201061 | |
| Anticorps anti-p21/CIP1/CDKN1A | Novus Biologicals | Réf. NBP3-15661 | |
| Kits de dosage | |||
| Aβ1-40 kit ELISA | Thermo Fisher Scientific | Cat. n° KHB3482 | |
| Aβ1-42 kit ELISA | Thermo Fisher Scientific | Cat. n° KHB3442 | |
| Kit d'essai Bio-Plex Pro Cytokine Souris 23-plex | R&D Systèmes | Cat. n° LXLBM23-1 | |
| Kit ELISA GAP-43 | Industrie de l'immunoenzymologie de Jiangsu | Réf. MM-47506M1 | |
| Kit de coloration de Golgi-Cox | BeiJing Biolead Biology Sci & Tech Co | Cat# PK401 | |
| Kit ELISA PSD-95 | Industrie de l'immunodosage enzymatique du Jiangsu | Réf. MM-45953M1 | |
| Sénescence β-Kit de coloration par galactosidase | Beyotime | Cat# C0602 | |
| Kit ELISA de synaptophysine (SYN) | Industrie de l'immunoenzymologie de Jiangsu | Réf. MM-46504M1 | |
| Produits chimiques & Réactifs | |||
| Immunoglobuline G anti-lapin et anti-souris (anticorps secondaire) | Démarrage | Cat. n° S0C1001 | |
| chromogène DAB | Démarrage | Cat. n° S0C1001 | |
| Logiciel | |||
| CatWalk XT | Noldus Information Technology | Version 10.0 | |
| ImageJ | National Institutes of Health (NIH) | Version 1.53 |
Références
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.