La présente étude vise à clarifier la relation entre le polymorphisme miR-146a rs2910164 et la prédisposition à la rhinite allergique (AR). Des taux plasmatiques plus faibles de miR-146a et le génotype GG du rs2910164 sont associés à un risque accru de RA, à une intensification des réponses inflammatoires et à des manifestations cliniques plus sévères chez les patients atteints de RA.
Article de recherche
Étude d'association du polymorphisme Rs2910164 du Mir-146a avec la susceptibilité à la rhinite allergique
Dans cet article
Résumé
Résumé
La rhinite allergique (RA) ne représente pas une menace pour la vie des patients, mais elle altère gravement leur qualité de vie. La microARN-146a (miR-146a) joue un rôle essentiel dans la régulation immunitaire et les réponses inflammatoires ; toutefois, la relation entre le polymorphisme miR-146a rs2910164 et la prédisposition à la RA n'est pas encore entièrement comprise. Cette étude cas-témoins a été conçue afin d'analyser l'influence du polymorphisme miR-146a rs2910164 sur la susceptibilité à la RA. L'étude comprenait au total 180 volontaires sans RA et 211 patients atteints de RA. L'expression de la miR-146a plasmatique a été mesurée par RT-qPCR ; le génotype rs2910164 a été déterminé par la méthode TaqMan-qPCR. La technique ELISA a été utilisée pour mesurer les concentrations sériques d'IgE, d'IL-4, d'IL-6 et d'IL-10. Une analyse de corrélation de Pearson a évalué les corrélations linéaires entre l'expression de la miR-146a et le score TNSS, le score RQLQ, ainsi que la concentration des facteurs sériques. Les facteurs de risque de la RA ont été identifiés par régression logistique. Le génotype GG et l'allèle G du polymorphisme miR-146a rs2910164 étaient significativement plus fréquents chez les patients atteints de RA que chez les témoins sains. Le taux plasmatique de miR-146a était réduit chez les patients atteints de RA. Le niveau plasmatique de miR-146a était plus bas chez les patients atteints de RA porteurs du génotype GG, qui présentaient des réponses allergiques et inflammatoires plus actives. L'expression de la miR-146a était étroitement liée aux symptômes allergiques et à la gravité des manifestations cliniques. La régression logistique indique que les concentrations sériques d'IgE et d'IL-4 constituaient des facteurs de risque indépendants pour la RA, tandis que l'IL-10 et l'expression de la miR-146a représentaient des facteurs protecteurs indépendants. De faibles concentrations plasmatiques de miR-146a sont observées chez les patients atteints de RA, et le génotype GG du polymorphisme miR-146a rs2910164 augmente la susceptibilité à la RA.
Introduction
La rhinite allergique (RA) est un trouble inflammatoire non infectieux, médié par un allergène, qui affecte la muqueuse nasale. Les symptômes cliniques typiques de la RA comprennent un nez qui gratte, une congestion nasale, un écoulement nasal clair et des éternuements fréquents1. Dans les cas plus graves, les patients peuvent également présenter une diminution du sens de l'odorat, voire une altération de la qualité du sommeil. Des données épidémiologiques indiquent que la prévalence mondiale de la RA augmente d'année en année, atteignant entre 10 % et 25 %2. Bien que la RA ne mette pas directement la vie des patients en danger, elle perturbe gravement le sommeil, l'apprentissage et le travail, réduit considérablement la qualité de vie et impose un fardeau économique important aux individus et à la société3. Des études ont confirmé que la RA constitue un facteur de risque pour l'asthme, et au fur et à mesure que la maladie progresse, les patients ont davantage tendance à développer une sinusite ou des polypes nasaux, augmentant ainsi encore davantage le fardeau de la maladie4,5. Par conséquent, la prévention et la prise en charge de la RA deviennent une tâche essentielle dans le domaine des maladies respiratoires. Toutefois, la physiopathologie de la RA n'est pas encore entièrement élucidée. Une exploration approfondie des mécanismes physiopathologiques de la RA et l'élaboration de stratégies thérapeutiques ciblées revêtent une importance cruciale. Il s'agit également des questions scientifiques actuelles qui doivent être résolues de manière urgente.
L'apparition de la RA est liée à des facteurs environnementaux et génétiques6. Les recherches actuelles considèrent généralement que l'effet synergique de la prédisposition génétique individuelle et de l'exposition à l'environnement allergène constitue le facteur moteur central du développement de la RA. L'équipe de Brozek a en outre confirmé que l'interaction entre la prédisposition génétique de l'organisme et les expositions environnementales est la cause fondamentale de la RA2. Dans le domaine de l'étude des mécanismes génétiques de la RA, le polymorphisme génétique est progressivement devenu le centre d'intérêt des chercheurs. Les polymorphismes de nucléotide unique (SNP), en tant que forme prédominante de polymorphisme génétique, sont la cause principale de la variation de l'information génétique chez les organismes7. Des preuves croissantes indiquent que le génotype TT au niveau du rs7044343 d'IL-33 pourrait constituer une cible potentielle pour la prévention et le traitement de la RA8. De plus, le génotype TT au niveau du site C-159T du promoteur de CD14 agit comme un marqueur prédictif du risque de RA9. Cela indique que les SNP des gènes clés peuvent servir de cibles moléculaires importantes pour l'évaluation du risque de RA, la mise en place d'alertes précoces et la réalisation d'une prévention et d'un traitement précis. Cela fournit des indices cruciaux pour une compréhension approfondie du mécanisme de prédisposition génétique à la RA.
De nombreuses études ont révélé qu'une expression anormale des microARN (miARN) constitue l'un des facteurs moteurs essentiels de l'apparition et du développement d'un large éventail de maladies10. Les miARN possèdent la caractéristique d'exister de manière stable dans les fluides corporels, ce qui en fait des marqueurs moléculaires hautement sensibles pour le diagnostic des maladies. Le miR-146a est une molécule d'ARN non codant dotée de fonctions biologiques étendues11. Le polymorphisme rs2910164 est situé dans la région en tige-boucle de la séquence précurseur du miR-146a. Une variation à ce site peut affecter l'efficacité du traitement et de la maturation du pré-miR-146a, modifiant ainsi le niveau d'expression du miR-146a mature et influençant les réponses immunitaires et inflammatoires en aval. Des études antérieures ont confirmé qu'une surexpression du miR-146a peut réduire significativement l'hyperréactivité bronchique dans des modèles murins d'asthme et inhiber l'activation des lymphocytes sensibilisés12. En ciblant et en inhibant l'activité du récepteur du facteur de croissance épidermique (EGFR), le miR-146a peut efficacement atténuer les lésions inflammatoires de la sinusite13. De plus, la surexpression du miR-146a peut également atténuer les symptômes pathologiques du modèle murin de rhinite allergique (AR) en bloquant la voie de signalisation du récepteur de type Toll 4 (TLR4)14. Ces observations soulignent le rôle essentiel du miR-146a dans la modulation des maladies du système respiratoire.
Les données existantes issues d'études sur les polymorphismes génétiques indiquent que la fréquence de l'allèle G au locus miR-146a rs2910164 est étroitement associée à l'hyperréactivité bronchique15. Ce polymorphisme nucléotidique unique (SNP) est également considéré comme un biomarqueur potentiel du risque d'asthme dans la population coréenne15. De plus, l'équipe de Jimenez-Morales a révélé que le génotype CC au locus miR-146a rs2910164 conférait une protection contre l'asthme16. Toutefois, aucune étude pertinente n'a rapporté d'association entre le polymorphisme miR-146a rs2910164 et la susceptibilité à la rhinite allergique (AR). Cette étude vise donc à vérifier l'influence du polymorphisme de miR-146a rs2910164 sur la rhinite allergique, fournissant ainsi une nouvelle base théorique pour la pathogénèse, le diagnostic clinique et le traitement de cette affection.
Protocole
Déclaration éthique :
Tous les participants ont été pleinement informés de l'objectif de notre expérience et ont signé un formulaire de consentement éclairé. Cette recherche a été approuvée par le comité d'éthique de l'hôpital affilié de Longyan de l'université médicale du Fujian (numéro d'approbation : LYREC2023-k007-01). Toutes les procédures ont été réalisées conformément aux lignes directrices, aux réglementations en vigueur et à la Déclaration d'Helsinki.
Inclusion des participants, critères d'éligibilité et collecte des échantillons
Un total de 211 individus diagnostiqués avec un rhume allergique (RA) et de 180 participants en bonne santé (non-RA) ont été recrutés au sein du service d'oto-rhino-laryngologie du cabinet externe de l'Hôpital affilié de Longyan de l'Université médicale du Fujian entre janvier 2023 et mai 2025. Les critères de diagnostic du RA ont été adoptés à partir des lignes directrices de la Société chinoise d'allergologie pour le diagnostic et le traitement du rhume allergique17. Les patients devaient présenter au moins deux symptômes cliniques de RA, notamment des démangeaisons nasales, des éternuements, une congestion nasale ou un écoulement nasal. En outre, l'examen de la muqueuse nasale devait révéler une pâleur et un œdème, et le résultat du test cutané de prick (SPT) ou du test d'IgE sérique devait être positif. Le test de prick a été réalisé par un personnel spécialisé dans la salle de dépistage des allergènes du cabinet externe afin de garantir l'exactitude et la cohérence des résultats. Tous les patients atteints de RA ont rempli le questionnaire sur la qualité de vie dans la rhino-conjonctivite (RQLQ) et ont été évalués selon le score total des symptômes nasaux (TNSS) avec l'aide du personnel médical, et les scores ont été enregistrés pour une analyse ultérieure.
Des volontaires sains subissant des examens physiques de routine à l'hôpital ont été recrutés pour former le groupe sans RA. Les participants éligibles ne présentaient ni antécédents personnels ni familiaux de RA, ni antécédents d'asthme ou d'autres maladies allergiques, ni sinusite chronique ou autres maladies inflammatoires de la cavité nasale, ni infection des voies respiratoires au cours du mois précédent. De plus, les personnes ayant des antécédents de maladies graves cardiaques, hépatiques, pulmonaires ou rénales, ou de toute tumeur maligne, ont été exclues de l'étude.
Des échantillons de sang veineux périphérique ont été prélevés chez les deux groupes de volontaires. Une partie du sang veineux anticoagulé a été utilisée pour l'extraction de l'ADN et l'extraction de l'ARN plasmatique. Une autre partie du sang veineux a été séparée afin d'obtenir du sérum, utilisé pour la détection de facteurs sériques (immunoglobuline E (IgE), interleukine-4 (IL-4), IL-6 et IL-10).
Extraction de l'ADN :
200 µL d'échantillons de sang veineux périphérique ont été utilisés pour l'extraction de l'ADN à l'aide d'un kit d'extraction de l'ADN génomique à partir de sang total (voir Tableau des matériels). Les échantillons de sang ont été recueillis dans des tubes anticoagulants contenant de l'héparinate de lithium, puis aliquotés et congelés à -20 °C pour stockage. Les procédures opérationnelles spécifiques doivent strictement suivre les instructions du kit. Enfin, 100 µL de tampon d'élution ont été utilisés pour éluer l'ADN. La pureté des échantillons d'ADN extraits a été déterminée à l'aide d'un analyseur d'acides nucléiques/protéines (spectrophotomètre) (le rapport OD₂₆₀/OD₂₈₀ se situait entre 1,8 et 2,0). Les échantillons d'ADN après analyse ont été stockés à -20 °C en vue de leur utilisation ultérieure dans les expériences de génotypage ultérieures.
Détection du génotype
Un kit de génotypage SNP TaqMan était disponible pour détecter la répartition des génotypes miR-146a rs2910164. Les informations relatives au kit ont été saisies dans la liste des consommables. Le volume total de la réaction PCR était de 10 µL, contenant 5 µL de Master Mix, 0,5 µL de mélange d'amorces et de sondes de typage, 10 ng d'ADN matrice et de l'eau sans RNase. L'amplification de l'ADN a été réalisée à l'aide de l'appareil de PCR quantitative en temps réel Roche LightCycler 480 II avec détection fluorescente. Conditions de réaction : dénaturation initiale à 95 °C pendant 10 min ; 40 cycles (15 secondes à 95 °C, 1 min à 60 °C), avec lecture de la fluorescence FAM/VIC à 60 °C. Une fois l'amplification terminée, les signaux de double fluorescence FAM/VIC recueillis ont été analysés à l'aide du logiciel LightCycler 480, et les données de génotype ont été traitées statistiquement. Un signal FAM unique représente un génotype homozygote, un signal VIC unique représente un autre génotype homozygote, et la présence des deux signaux indique un génotype hétérozygote. Les échantillons présentant des signaux anormaux ou des résultats incohérents lors de la répétition seront testés à nouveau. Chaque expérience a été réalisée en incluant un contrôle sans matrice et un contrôle positif pour assurer la qualité. Tous les échantillons ont fait l'objet de trois réplicats techniques.
RT-qPCR
L'extraction totale des microARN (miARN) du plasma a été réalisée à partir de 100 µL de plasma en utilisant un kit dédié d'extraction de miARN. Les informations relatives au kit ont été saisies dans la liste des consommables. La concentration en ARN a été déterminée à l'aide d'un spectrophotomètre. Le rapport OD₂₆₀/OD₂₈₀ des échantillons de miARN extraits et validés était compris entre 1,8 et 2,0. Une quantité de 200 ng d'ARN a été utilisée pour la transcription inverse afin de synthétiser l'ADN complémentaire (ADNc), selon les instructions standard du kit. La transcription inverse a été effectuée dans un volume total de 20 µL, comprenant une incubation à 42 °C pendant 60 min, suivie d'une inactivation à 85 °C pendant 5 min. La réaction de qPCR a été préparée selon le protocole établi, dans un volume total de 20 µL. Le mélange réactionnel a été préparé comme suit : 10 µL de pré-mélange pour qPCR, 0,4 µL d'amorce sens, 0,4 µL d'amorce antisens, 1 µL de matrice d'ADNc et 8,2 µL d'eau sans RNase. Des amorces spécifiques pour miR-146a et le gène de référence interne U6 ont été utilisées. L'amplification a été réalisée à l'aide de l'appareil de PCR quantitative en temps réel Roche LightCycler 480 II. Les conditions de cyclage thermique en qPCR étaient les suivantes : dénaturation initiale à 95 °C pendant 30 s, suivie de 40 cycles de dénaturation à 95 °C pendant 5 s et d'hybridation-élongation à 60 °C pendant 30 s. Tous les échantillons ont fait l'objet de trois réplicats techniques. Les données expérimentales ont été analysées à l'aide du logiciel LightCycler 480. En utilisant U6 comme référence interne pour corriger les variations entre échantillons, on calcule d'abord ΔCt (valeur de Ct de miR-146a - valeur de Ct de U6), puis ΔΔCt (ΔCt du groupe expérimental - ΔCt du groupe témoin), et enfin le niveau d'expression relative de miR-146a est obtenu par 2⁻ΔΔCt.
ELISA
Les concentrations sériques d'IgE, d'IL-4, d'IL-6 et d'IL-10 ont été mesurées à l'aide de kits ELISA. Les procédures expérimentales ont été réalisées conformément au mode d'emploi. Les étapes spécifiques étaient les suivantes : premièrement, la solution de lavage concentrée a été diluée, et les standards ont été dilués de manière progressive afin de préparer les solutions de travail pour la courbe d'étalonnage. Deuxièmement, 50 µL de diluant, de solution standard et d'échantillon à tester ont été ajoutés dans les puits et incubés à 37 °C pendant 60 min. Après l'incubation, les puits ont été lavés trois fois avec la solution de lavage. Ensuite, 50 µL de solution de travail d'anticorps marqué par une enzyme ont été ajoutés, puis les plaques ont été incubées à 37 °C pendant 30 min. Une fois l'incubation terminée, le liquide a été éliminé, les puits ont été lavés à nouveau, puis la solution chromogène a été ajoutée et incubée pendant 15 min à 37 °C à l'abri de la lumière. Après l'ajout de la solution d'arrêt, l'absorbance a été mesurée à 450 nm à l'aide d'un lecteur de microplaques. Les concentrations des échantillons ont été calculées à partir de la courbe d'étalonnage. Chaque échantillon a été testé trois fois. Les données présentant un coefficient de variation inférieur à 10 % ont été considérées comme valides. Des puits témoins et des puits blancs ont été prévus durant l'expérience pour le contrôle qualité. La plage de détection et la sensibilité du kit étaient conformes aux spécifications indiquées dans le manuel du fabricant.
Statistiques des données
Les données expérimentales ont été analysées à l'aide des logiciels SPSS et GraphPad Prism 9. Les données sont présentées sous forme de moyenne ± écart-type (moyenne ± SD). Le test de Shapiro-Wilk a été utilisé pour évaluer la normalité des variables continues, et le test de Levene a été appliqué pour vérifier l'homogénéité des variances. La comparaison des variables continues entre les deux groupes a été effectuée à l'aide du test t pour échantillons indépendants. Une ANOVA à un facteur suivie du test post-hoc de Tukey a été réalisée pour les comparaisons entre plusieurs groupes, et une ANOVA à deux facteurs a été utilisée pour évaluer les effets principaux de deux facteurs indépendants ainsi que leur effet d'interaction. Les valeurs aberrantes ont été identifiées et exclues selon la règle des 3 écarts-types. Aucune donnée manquante n'a été détectée dans cette étude. La courbe caractéristique de fonctionnement du récepteur (ROC) a été utilisée pour analyser l'efficacité diagnostique de miR-146a dans la rhinite allergique (AR). Les paramètres pertinents de la courbe ROC et les intervalles de confiance à 95 % ont été calculés à l'aide d'algorithmes statistiques intégrés. Une analyse de corrélation de Pearson a été utilisée pour mesurer la corrélation linéaire entre l'expression de miR-146a et les concentrations des facteurs sériques. Des analyses de régression logistique univariée et multivariée ont été menées pour identifier les facteurs de risque de la rhinite allergique (AR). Les variables présentant une valeur p < 0,05 lors de l'analyse univariée ont été incluses dans le modèle de régression logistique multivariée. Une valeur de p < 0,05 a été considérée comme statistiquement significative.
Résultats
Caractéristiques des participants et répartition des génotypes
Les données cliniques de base des deux groupes de sujets ont été analysées statistiquement. Les résultats ont indiqué que les taux sériques d'IgE, d'IL-4, d'IL-6 et d'IL-10 présentaient des différences significatives. Par rapport au groupe de volontaires sans RA, la concentration sérique d'IgE, d'IL-4 et d'IL-6 était augmentée dans le groupe de patients atteints de RA, tandis que le taux d'IL-10 était diminué (Tableau 1). La répartition des génotypes de miR-146a rs2910164 a été déterminée par la méthode TaqMan-qPCR. Les résultats de l'analyse ont montré que le génotype GG (χ2=7,018, OR (IC 95 %) = 0,471 (0,269-0,825), p=0,008) et l'allèle G (χ2=7,474, OR (IC 95 %) = 0,637 (0,506-0,894), p=0,006) du rs2910164 étaient plus fréquents dans le groupe de patients atteints de RA par rapport au groupe sans RA. La répartition des génotypes au locus rs2910164 respectait l'équilibre de Hardy-Weinberg (pHWE = 0,191) (Tableau 2).
Analyse de l'expression de miR-146a dans le plasma
Le niveau d'expression de miR-146a dans le plasma a été mesuré dans les deux cohortes étudiées. Une réduction marquée du niveau de miR-146a a été observée chez les patients atteints de RA (Figure 1A). L'analyse de la courbe ROC a montré que miR-146a possède une bonne efficacité diagnostique pour la RA (Figure 1B). La AUC était de 0,891. Pour la valeur seuil optimale de 0,785, la sensibilité était de 83,89 %, la spécificité de 79,44 % et l'indice de Youden de 0,633. En fonction du génotype miR-146a rs2910164, les deux groupes de sujets ont été respectivement divisés en trois sous-groupes : GG, GC et CC. Les différences d'expression de miR-146a dans chaque sous-groupe ont été comparées. Les résultats statistiques ont montré que dans le groupe sans RA, l'expression de miR-146a ne présentait aucune différence statistiquement significative entre les différents sous-groupes de génotype (Figure 1C) ; dans le groupe RA, le niveau d'expression de miR-146a plasmatique dans le sous-groupe de génotype GG était significativement inférieur à celui des sous-groupes de génotype GC et CC (Figure 1D). Ces données indiquent que l'expression de miR-146a plasmatique est réduite chez les patients atteints de RA porteurs du génotype GG de rs2910164.
Analyse des cytokines sériques et corrélation avec l'expression de miR-146a
Ensuite, les taux sériques d’IgE, d’IL-4, d’IL-6 et d’IL-10 dans les différents sous-groupes génétiques des sujets ont été analysés statistiquement. Les résultats statistiques n’ont révélé aucune différence significative des concentrations sériques d’IgE, d’IL-4, d’IL-6 et d’IL-10 entre les différents sous-groupes génétiques (Figure 2A-D) ; dans le groupe RA, les concentrations sériques d’IgE, d’IL-4 et d’IL-6 chez les patients porteurs du génotype GG étaient significativement plus élevées que chez les patients ayant les génotypes GC et CC, tandis que le taux d’IL-10 sérique était plus faible (Figure 2A-D). Une analyse de corrélation de Pearson a été utilisée pour étudier les corrélations linéaires entre l’expression de miR-146a plasmatique et le score TNSS, le score RQLQ, ainsi que les concentrations sériques d’IgE, d’IL-4, d’IL-6 et d’IL-10. Les résultats ont indiqué que l’expression de miR-146a était significativement corrélée négativement avec le score TNSS, le score RQLQ et les concentrations sériques d’IgE, d’IL-4 et d’IL-6, tandis qu’elle était corrélée positivement avec le taux sérique d’IL-10 (Tableau 3). Ces résultats suggèrent que le niveau d’expression de miR-146a est étroitement lié à la gravité de la RA ainsi qu’aux niveaux de réactions allergiques et d’inflammation.
Analyse des facteurs de risque pour la rhinite allergique
Une régression logistique univariée a été utilisée pour analyser les facteurs de risque de la RA, et les résultats ont indiqué que l'IgE (OR = 1,719, IC à 95 % = 1,151-2,568, p = 0,008), l'IL-4 (OR = 1,602, IC à 95 % = 1,073-2,392, p = 0,021), l'IL-6 (OR = 1,566, IC à 95 % = 1,048-2,341, p = 0,029), l'IL-10 (OR = 0,649, IC à 95 % = 0,435-0,968, p = 0,034) et l'expression de la miR-146a (OR = 0,149, IC à 95 % = 0,096-0,233, p < 0,001) avaient un effet sur l'apparition de la RA. Après ajustement pour les facteurs de confusion par une analyse de régression logistique multivariée, il a été statistiquement établi que l'IgE (OR = 1,724, IC à 95 % = 1,092-2,722, p = 0,019), l'IL-4 (OR = 1,943, IC à 95 % = 1,206-3,131, p = 0,006), l'IL-10 (OR = 0,479, IC à 95 % = 0,296-0,773, p = 0,003) et l'expression de la miR-146a (OR = 0,148, IC à 95 % = 0,093-0,235, p < 0,001) constituaient des facteurs de risque indépendants pour la RA (Tableau 4).
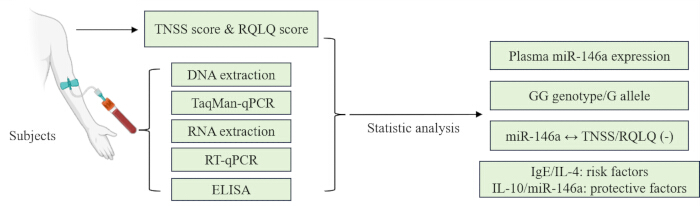
Figure 1 : Schéma du flux opératoire. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
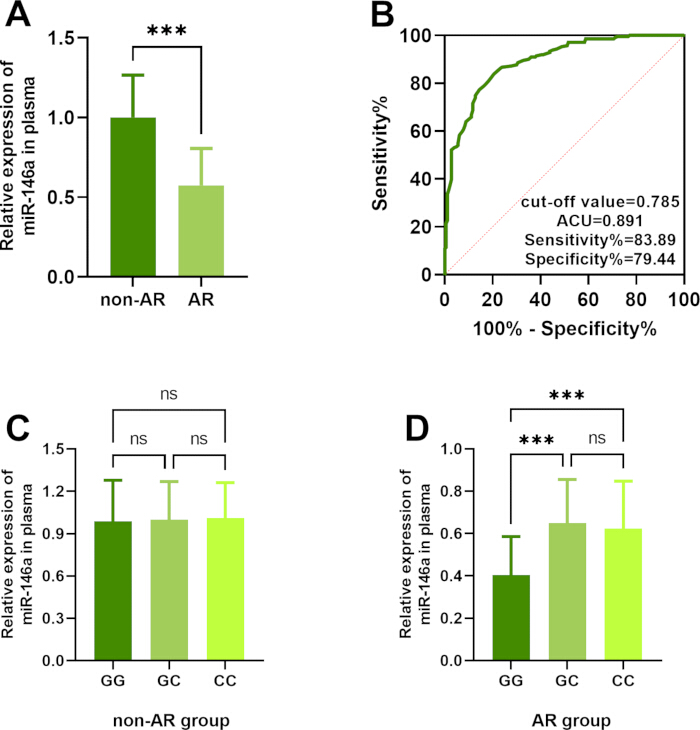
Figure 2. Expression de miR-146a plasmatique et performance diagnostique dans la RA.
(A) Expression relative de miR-146a plasmatique chez des volontaires sans RA et chez des patients atteints de RA. (B) Courbe ROC évaluant la performance diagnostique de miR-146a plasmatique pour la RA. (C) Expression de miR-146a plasmatique parmi les sous-groupes de génotypes GG, GC et CC dans le groupe sans RA. (D) Expression de miR-146a plasmatique parmi les sous-groupes de génotypes GG, GC et CC dans le groupe RA. Les données sont présentées sous forme de moyenne ± écart-type. ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
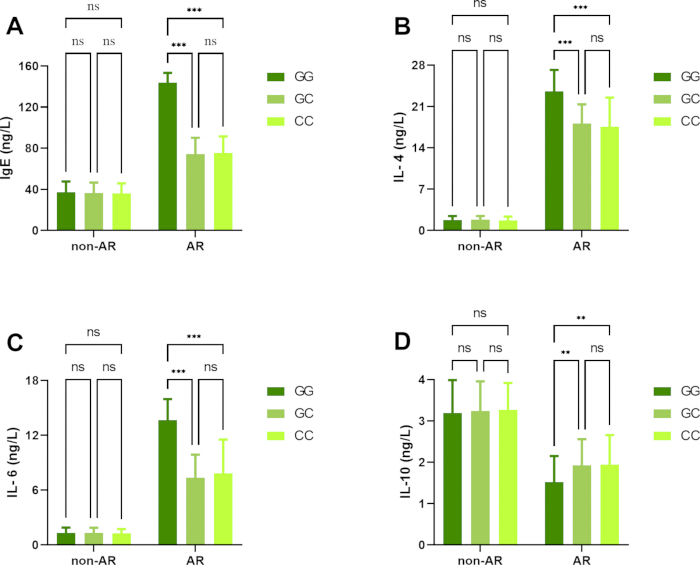
Figure 3. Concentration sérique de cytokines chez des sujets présentant différents génotypes de miR-146a rs2910164 dans les groupes non-AR et AR.
Niveaux sériques de (A) IgE, (B) IL-4, (C) IL-6 et (D) IL-10 dans les sous-groupes de génotypes GG, GC et CC des groupes non-AR et AR. Les données sont exprimées comme moyenne ± écart-type. *p < 0,05, **p < 0,01, ***p < 0,001 ; ns, non significatif. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Information | non-AR | AR | p-valeur |
| Âge (années) | 42,37±12,43 | 41,81±11,86 | 0,316 |
| IMC (kg/m2) | 23,72±2,36 | 23,58±2,71 | 0,302 |
| Sexe (hommes, n) | 87 | 97 | 0,641 |
| Fumeur | 81 | 94 | 0,929 |
| IgE (IU/ml) | 36,17±10,44 | 116,52±24,38 | <0,001 |
| IL-4 (ng/L) | 1,76±0,61 | 18,74±4,62 | <0,001 |
| IL-6 (ng/L) | 1,29±0,57 | 9,63±3,79 | <0,001 |
| IL-10 (ng/L) | 3,26±0,68 | 1,74±0,73 | <0,001 |
| TNSS | / | 5,92±1,82 | |
| RQLQ | / | 2,43±1,16 | |
| Abréviation : AR, rhinite allergique ; IMC, indice de masse corporelle ; IgE, immunoglobuline E ; IL, interleukine ; TNSS, score total des symptômes nasaux ; RQLQ, questionnaire sur la qualité de vie dans la rhinoconjonctivite ; p<0,05 indique une signification statistique. | |||
Tableau 1 : Caractéristiques cliniques des participants à l'étude.
Comparaison des caractéristiques démographiques, des taux sériques de cytokines et des scores d'évaluation clinique entre les groupes sans AR et avec AR. Les abréviations sont définies dans la note de bas de tableau.
| rs2910164 | non-AR (n=180) (%) | AR (n=211) (%) | Χ2 | p-valeur | OR (IC à 95 %) |
| Modèle codominant | |||||
| GG | 31 (17,22 %) | 57 (27,01 %) | 1 | ||
| GC | 82 (45,56 %) | 96 (45,50 %) | 2,832 | 0,092 | 0,637 (0,376-1,079) |
| CC | 67 (37,22 %) | 58 (27,49 %) | 7,018 | 0,008 | 0,471 (0,269-0,825) |
| Modèle dominant | |||||
| GG + GC | 113 (62,78 %) | 153 (72,51 %) | 1 | ||
| CC | 67 (38,22 %) | 58 (27,49 %) | 4,232 | 0,04 | 0,639 (0,417-0,980) |
| Modèle récessif | |||||
| GG | 31 (17,22 %) | 57 (27,01 %) | 1 | ||
| GC + CC | 149 (82,78 %) | 154 (72,99 %) | 5,34 | 0,021 | 0,562 (0,344-0,919) |
| Allèles | |||||
| G | 144 (40,00 %) | 210 (49,76 %) | 1 | ||
| C | 216 (60,00 %) | 212 (50,24 %) | 7,474 | 0,006 | 0,637 (0,506-0,894) |
| pHWE | 0,494 | 0,191 | |||
| Abréviation : AR, rhinite allergique. OR, rapport de cotes ; pHWE>0,05 suggère que le groupe est conforme à l'équilibre de Hardy-Weinberg. p < 0,05 indique une signification statistique. Remarque : Le génotype GG a été défini comme groupe de référence (OR = 1,000) pour tous les modèles génétiques. | |||||
Tableau 2 : Association entre le polymorphisme miR-146a rs2910164 et la rhinite allergique.
Répartition des génotypes et des allèles rs2910164 dans les groupes sans RA et avec RA analysée à l’aide de modèles génétiques codominants, dominants, récessifs et alléliques.
| Éléments | miR-146a | TNSS | RQLQ | IgE | IL-4 | IL-6 | IL-10 |
| Corrélation de Pearson | 1 | -0,742 | -0,736 | -0,806 | -0,756 | -0,727 | 0,757 |
| p-valeur | / | <0,001 | <0,001 | <0,001 | <0,001 | <0,001 | <0,001 |
| Abréviation : TNSS, score total des symptômes nasaux ; RQLQ, questionnaire sur la qualité de vie liée à la rhinoconjonctivite ; IgE, immunoglobuline E ; IL, interleukine ; p<0,05 indique une signification statistique. | |||||||
Tableau 3 : Corrélation entre l'expression plasmatique de miR-146a et les paramètres cliniques et inflammatoires.
Analyse de corrélation de Pearson entre l'expression plasmatique de miR-146a et le score TNSS, le score RQLQ, le taux d'IgE sérique et les concentrations des cytokines chez les participants à l'étude.
| Éléments | Analyse de régression univariée | Analyse de régression multivariée | ||||
| OR | IC à 95 % | p-valeur | OR | IC à 95 % | p-valeur | |
| Âge | 0.984 | 0.661-1.465 | 0.937 | |||
| IMC | 1.301 | 0.799-2.119 | 0.29 | |||
| Sexe | 1.099 | 0.738-1.638 | 0.641 | |||
| Fumeur | 1.018 | 0.683-1.519 | 0.929 | |||
| IgE | 1.719 | 1.151-2.568 | 0.008 | 1.724 | 1.092-2.722 | 0.019 |
| IL-4 | 1.602 | 1.073-2.392 | 0.021 | 1.943 | 1.206-3.131 | 0.006 |
| IL-6 | 1.566 | 1.048-2.341 | 0.029 | 1.489 | 0.924-2.353 | 0.088 |
| IL-10 | 0.649 | 0.435-0.968 | 0.034 | 0.479 | 0.296-0.773 | 0.003 |
| Expression de miR-146a | 0.149 | 0.096-0.233 | <0.001 | 0.148 | 0.093-0.235 | <0.001 |
| Abréviation : AR, rhinite allergique ; IMC, indice de masse corporelle ; IgE, immunoglobuline E ; IL, interleukine. | ||||||
Tableau 4 : Analyse de régression logistique des facteurs associés à la rhinite allergique.
Analyses de régression logistique univariée et multivariée évaluant les variables démographiques, les cytokines sériques et l'expression de la miR-146a plasmatique comme facteurs associés à la RA.
Fichier supplémentaire 1 : Données brutes Veuillez cliquer ici pour télécharger ce fichier.
Discussion
La rhinite allergique (RA) est une maladie inflammatoire allergique chronique des voies respiratoires. Le mécanisme fondamental de la RA est qu'après l'exposition de l'organisme à des allergènes, des lésions inflammatoires de la muqueuse nasale sont médiées par l'IgE17,18. Les symptômes cliniques comprennent principalement des démangeaisons nasales, une congestion nasale, des éternuements et un écoulement nasal clair, ce qui altère gravement la qualité de vie des patients. Des études épidémiologiques et génétiques ont confirmé que la prédisposition génétique exerce un effet vital et indispensable sur l'apparition et l'évolution de la RA19. Cette étude a en outre révélé que le polymorphisme miR-146a rs2910164 était étroitement associé à la susceptibilité à la RA, et que le génotype GG du rs2910164 pourrait constituer un génotype pathogène. La concentration sérique élevée d'IgE, d'IL-4 et d'IL-6, conjuguée à la diminution du taux d'IL-10 observée chez les patients atteints de RA, indique une réponse allergique et inflammatoire exacerbée, en accord avec les caractéristiques immunopathologiques de la maladie.
Des travaux antérieurs ont montré que le polymorphisme de nucléotide unique (SNP) de la miR-146a contribue à la pathogenèse de diverses maladies allergiques, telles que l'arthrite rhumatoïde20, le lupus érythémateux systémique21 et la maladie inflammatoire de l'intestin22. Rasha et al. ont en outre rapporté que la distribution de la fréquence du génotype GG et de l'allèle G au locus rs2910164 était significativement corrélée à la susceptibilité à la maladie inflammatoire de l'intestin22. L'équipe de Hai-Bo a découvert que le génotype CC au locus rs2910164 constituait un génotype protecteur contre le psoriasis. Les individus porteurs du génotype GG présentent un risque significativement plus faible de développer le psoriasis23. Plusieurs études ont signalé que le polymorphisme rs2910164 était étroitement lié à la susceptibilité à l'asthme, et il a été confirmé que le génotype GG augmentait significativement le risque de développer l'asthme15,16,24. Cette étude a en outre révélé que la fréquence de distribution du génotype GG de la miR-146a rs2910164 chez les patients atteints de rhinite allergique (AR) était plus élevée que dans le groupe témoin sain, suggérant que le génotype GG pourrait augmenter la susceptibilité à l'AR. L'enrichissement observé du génotype GG et de l'allèle G dans le groupe AR renforce davantage l'hypothèse d'une contribution potentielle de la variation génétique miR-146a rs2910164 à la susceptibilité à la maladie. Chez les patients AR porteurs du génotype rs2910164 GG, les concentrations sériques d'IgE, d'IL-4, d'IL-6 et d'IL-10 étaient augmentées. Le profil modifié des cytokines observé chez les individus porteurs du génotype GG suggère une réponse inflammatoire et allergique plus marquée, ce qui pourrait contribuer à une susceptibilité accrue à la maladie. Ce résultat indique que le génotype GG pourrait être impliqué dans la pathogenèse de l'AR en renforçant la réponse allergique et inflammatoire.
En tant que régulateur essentiel de la réponse inflammatoire, le miR-146a exerce un effet anti-inflammatoire puissant. La surexpression du miR-146a régule les gènes en aval et atténue de manière significative plusieurs lésions liées à l'inflammation25,26,27. Des études antérieures ont confirmé que la surexpression du miR-146a peut efficacement supprimer la réponse inflammatoire de la conjonctivite allergique en augmentant l'expression du facteur de transcription forkhead box protein 3 (FOXP3)28. De plus, des expériences animales ont révélé que l'extinction du miR-146a chez des souris mutantes présente un risque plus élevé de développer un emphysème par rapport aux souris de type sauvage, confirmant ainsi le rôle protecteur du miR-146a dans les maladies respiratoires29. Dans le modèle de sinusite, le miR-146a inhibe l'activation de la mucine 5AC (MUC5AC), réduisant ainsi l'inflammation muqueuse et la sécrétion excessive de mucus13. Les résultats de cette étude ont montré que le niveau de miR-146a chez les patients atteints de rhinite allergique (AR) était diminué, et que l'expression plasmatique du miR-146a chez les patients porteurs du génotype rs2910164 GG était encore plus faible. Ces résultats indiquent que le génotype rs2910164 GG pourrait influencer la susceptibilité à la rhinite allergique par son association avec une expression réduite du miR-146a et une régulation immunitaire altérée. Le génotype GG pourrait réduire l'expression du miR-146a, affaiblissant ainsi sa fonction régulatrice anti-inflammatoire et augmentant la susceptibilité à la rhinite allergique. L'analyse de corrélation de Pearson a en outre mis en évidence une association entre le niveau d'expression du miR-146a et la gravité de la rhinite allergique, ainsi qu'avec l'état inflammatoire. L'expression du miR-146a était linéairement et négativement corrélée avec les scores TNSS, RQLQ et les concentrations sériques d'IgE, d'IL-4 et d'IL-6 ; elle était linéairement et positivement corrélée avec le niveau d'IL-10. Cela indique que chez les patients atteints de rhinite allergique ayant une expression plus faible de miR-146a, les symptômes cliniques sont plus sévères, la qualité de vie est davantage altérée, et les réactions allergiques ainsi que les réponses inflammatoires sont plus intenses.
Cette étude était une étude cas-témoins. L'analyse a confirmé une association significative entre le polymorphisme miR-146a rs2910164 et la susceptibilité à la RA. Toutefois, la recherche présente encore certaines limites. D'une part, la taille d'échantillon relativement faible pourrait restreindre la généralisabilité de nos résultats et ne permet pas de caractériser précisément les caractéristiques de distribution du génotype rs2910164 dans la population. D'autre part, cette étude démontre uniquement l'association entre le polymorphisme miR-146a rs2910164 et la susceptibilité à la RA, mais ne permet pas de démontrer clairement la relation causale entre ce polymorphisme et la RA. Par conséquent, à l'avenir, une étude de cohorte prospective sera menée afin d'inclure davantage de patients, de préciser les liens entre le polymorphisme miR-146a rs2910164 et l'apparition, l'évolution et le pronostic de la RA, et de fournir une base théorique plus solide pour la prévention et le traitement de la RA.
Dans l'ensemble, l'expression de la miR-146a plasmatique était diminuée chez les patients atteints de RA, et le génotype GG du rs2910164 était associé à une susceptibilité accrue à la maladie. Cette étude fournit un marqueur moléculaire potentiel permettant d'identifier les individus présentant un risque accru de RA et offre une base pour de futures recherches sur les mécanismes génétiques sous-jacents au développement et à l'évolution de la maladie.
Déclarations de divulgation
Il n'y a aucune divulgation dans cet article.
Disponibilité des données :
Toutes les données générées ou analysées au cours de cette étude sont incluses dans cet article sous forme de fichier supplémentaire. Toute demande complémentaire peut être adressée à l'auteur correspondant.
Contribution des auteurs :
YMY a apporté des contributions importantes à la conception et à la planification, à l'acquisition des données ou à l'analyse et à l'interprétation des données, et a participé à la rédaction du manuscrit. YYH a aidé à l'acquisition des données, à l'analyse des données et à l'analyse statistique. GML et JCW ont contribué à l'interprétation des résultats et ont révisé de manière critique le manuscrit. Tous les auteurs ont lu et approuvé le manuscrit final.
Remerciements
Non applicable.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| tube à centrifuger de 15 mL | Corning | 430791 | Pour la séparation du plasma, le conditionnement en sous-échantillons et l'extraction des acides nucléiques |
| Applied Biosystems TaqMan Genotyping Master Mix | Thermo Fisher Scientific | 4371355 | 2× mélange maître concentré optimisé pour la génotypage de SNP, contenant une ADN polymérase Taq à démarrage chaud, des dNTP, des ions magnésium, un tampon de réaction et un colorant ROX de référence. Aucune préparation manuelle du système requise. Compatible avec le TaqMan SNP Genotyping Assay mentionné ci-dessus, il fournit un système enzymatique stable pour l'amplification des SNP et le génotypage fluorescent, avec une bonne reproductibilité et des résultats de regroupement clairs. |
| Applied Biosystems TaqMan SNP Genotyping Assay (rs2910164, miR-146a) | Thermo Fisher Scientific | C__15946974_10 | Mix préconçu d'amorces et de sondes pour le génotypage de SNP du locus humain miR-146a rs2910164. Contient des amorces PCR spécifiques et deux sondes fluorescentes MGB. Le marqueur VIC détecte l'allèle C et le marqueur FAM détecte l'allèle G. Permet de distinguer précisément les trois génotypes (CC, CG, GG) dans un seul tube de réaction, adapté à la discrimination allélique en point final sur des instruments de PCR quantitative. |
| Tubes de prélèvement sanguin anticoagulants BD au lithium héparinate | BD Vacutainer | 367884 | Biochimie clinique, tests d'urgence et recherche en hématologie |
| Graphpad | États-Unis | / | Graphisme scientifique professionnel & logiciel de statistiques, standard en biologie/médecine, ne nécessite aucune programmation. Principales fonctionnalités : tests t, ANOVA, analyse de survie, régression non linéaire (par exemple, courbes dose-réponse) ; génère des graphiques prêts pour la publication (histogrammes, nuages de points, courbes de survie) pour des applications comme la qPCR, le Western blot et les tests cellulaires. |
| Kit ELISA d'immunoglobuline E (IgE) | Jiancheng | H108-1-2 | Application : Recherche sur la réponse immunitaire, les maladies allergiques |
| Kit ELISA pour l'interleukine-10 (IL-10) | Jiancheng | H010-1-2 | Application : Recherche sur l'inflammation, la régulation immunitaire et les biomarqueurs cliniques |
| Kit ELISA pour l'interleukine-4 (IL-4) | Jiancheng | H005-1-2 | Domaine de recherche : inflammation, réponse immunitaire Th2, réaction allergique |
| Kit ELISA pour l'interleukine-6 (IL-6) | Jiancheng | H007-1-2 | Application : Recherche sur l'inflammation, la régulation immunitaire et les biomarqueurs cliniques |
| LightCycler 480 Software (v1.5 /v1.6) | Roche Diagnostics | / | Logiciel officiel de Roche permettant l'acquisition des données de qPCR en un clic, l'analyse quantitative, l'analyse des courbes de fusion et le génotypage des SNP (méthode TaqMan en point final + HRM). |
| Kit miRcute de synthèse de la première chaîne d'ADNc pour microARN, version améliorée | TIANGEN | KR211-02 | Adapté à la transcription inverse de tous les ARNmi matures |
| Kit de purification et d'isolement des miARN à partir de sérum/plasma miRcute | TIANGEN | DP503 | Échantillon applicable : sérum humain, plasma, surnageant cellulaire |
| Roche LightCycler 480 Instrument II (système de PCR en temps réel) | Roche Diagnostics | 05015278001 | Quantification par qPCR + Génotypage de SNP (y compris TaqMan) + Analyse par courbe de fusion à haute résolution (HRM) |
| SPSS 27.0 | États-Unis | / | Logiciel tout-en-un de statistiques en sciences sociales et médicales, piloté par menu (sans codage), idéal pour les échantillons de grande taille & des conceptions complexes. Fonctions principales : statistiques descriptives, ANOVA, régression, khi-deux, analyse de survie, fiabilité, calcul de la taille de l'échantillon ; prend en charge le nettoyage des données & import multi-format (Excel/CSV) pour des données cliniques, d'enquête et épidémiologiques |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | FP205-02 | Mélange maître amélioré à haute spécificité ; tampon optimisé avec facteur de liaison H minimisant les dimères d'amorces & non spécifiques ; Taq hot-start + ROX pour LightCycler 480 II ; haute sensibilité & reproductibilité ; idéal pour les gènes peu abondants, les échantillons complexes et le génotypage à haut débit. |
| Photomètre pour microplaques Thermo Scientific Multiskan FC | Thermo | 51119180 | Lecteur de plaques multimode haut de gamme ; absorbance (incluant 450 nm) + fluorescence + luminescence ; linéarité 0–4 anticorps±2 %) à 450 nm, écart-type de la précision&<0,001 Abs ; compatible 96/384 puits, plage dynamique automatique ; idéal pour ELISA, viabilité cellulaire, dosages immuno-enzymatiques, interactions moléculaires. |
| Spectrophotomètre UV-Vis Thermo Scientific NanoDrop One | Thermo | / | Spectrophotomètre UV-Vis microvolume de référence ; 1–2 μL échantillon, pas de cuvette nécessaire ; mesure directe des acides nucléiques (260 nm), des protéines (280 nm), de l'OD600 avec concentration & rapports de pureté (A260/A280, A260/A230) ; analyse en spectre complet 190–850 nm, auto-étalonnage, écran tactile ; idéal pour la qPCR, le séquençage à haut débit (NGS), le contrôle qualité de la purification des protéines. |
| Kit d'extraction d'ADN génomique à partir de sang total | TIANGEN | DP304-03 | Échantillon applicable : sang total périphérique, cellules sanguines, échantillons de tissus |
Références
- Bernstein, J. A., Bernstein, J. S., Makol, R. & Ward, S. Allergic Rhinitis: A Review. JAMA. 331 (10), 866-877, (2024).
- Brozek, J. L. et al. Allergic Rhinitis and its Impact on Asthma (ARIA) guidelines-2016 revision. J Allergy Clin Immunol. 140 (4), 950-958, (2017).
- Pagel, J. M. L. & Mattos, J. L. Allergic Rhinitis and Its Effect on Sleep. Otolaryngol Clin North Am. 57 (2), 319-328, (2024).
- Nappi, E. et al. Comorbid allergic rhinitis and asthma: important clinical considerations. Expert Rev Clin Immunol. 18 (7), 747-758, (2022).
- Grimm, D., Hwang, P. H. & Lin, Y. T. The link between allergic rhinitis and chronic rhinosinusitis. Curr Opin Otolaryngol Head Neck Surg. 31 (1), 3-10, (2023).
- Wise, S. K. et al. International consensus statement on allergy and rhinology: Allergic rhinitis - 2023. Int Forum Allergy Rhinol. 13 (4), 293-859, (2023).
- Vignal, A., Milan, D., SanCristobal, M. & Eggen, A. A review on SNP and other types of molecular markers and their use in animal genetics. Genet Sel Evol. 34 (3), 275-305, (2002).
- Falahi, S. et al. Association between IL-33 Gene Polymorphism (Rs7044343) and Risk of Allergic Rhinitis. Immunol Invest. 51 (1), 29-39, (2022).
- Kamel, M. A. et al. Association of serum CD14 level and functional polymorphism C-159T in the promoter region of CD14 gene with allergic rhinitis. Clin Exp Med. 23 (8), 4861-4869, (2023).
- Vishnoi, A. & Rani, S. miRNA Biogenesis and Regulation of Diseases: An Updated Overview. Methods Mol Biol. 2595 1-12, (2023).
- Vijayakumar, S., Yesudhason, B. V., Anandharaj, J. L., Kalaivanan, L. & Selvan Christyraj, J. R. S. Exosomes and Their miRNA as a Potential Biomarker in the Diagnosis of Parkinson's Disease. ACS Chem Neurosci. 16 (15), 2756-2766, (2025).
- Han, S., Ma, C., Bao, L., Lv, L. & Huang, M. miR-146a Mimics Attenuate Allergic Airway Inflammation by Impacted Group 2 Innate Lymphoid Cells in an Ovalbumin-Induced Asthma Mouse Model. Int Arch Allergy Immunol. 177 (4), 302-310, (2018).
- Yan, D. et al. Human Neutrophil Elastase Induces MUC5AC Overexpression in Chronic Rhinosinusitis Through miR-146a. Am J Rhinol Allergy. 34 (1), 59-69, (2020).
- Wang, J. et al. MiR-146a mimic attenuates murine allergic rhinitis by downregulating TLR4/TRAF6/NF-kappaB pathway. Immunotherapy. 11 (13), 1095-1105, (2019).
- Trinh, H. K. T. et al. Association of the miR-196a2, miR-146a, and miR-499 Polymorphisms with Asthma Phenotypes in a Korean Population. Mol Diagn Ther. 21 (5), 547-554, (2017).
- Jimenez-Morales, S. et al. MiR-146a polymorphism is associated with asthma but not with systemic lupus erythematosus and juvenile rheumatoid arthritis in Mexican patients. Tissue Antigens. 80 (4), 317-321, (2012).
- Bayar Muluk, N., Bafaqeeh, S. A. & Cingi, C. Anti-IgE treatment in allergic rhinitis. Int J Pediatr Otorhinolaryngol. 127 109674, (2019).
- Lv, R. et al. Research progress of anti-IGE treatment for allergic rhinitis. Am J Otolaryngol. 46 (3), 104646, (2025).
- Davila, I. et al. Genetic aspects of allergic rhinitis. J Investig Allergol Clin Immunol. 19 Suppl 1 25-31, (2009).
- Bogunia-Kubik, K. et al. Significance of Polymorphism and Expression of miR-146a and NFkB1 Genetic Variants in Patients with Rheumatoid Arthritis. Arch Immunol Ther Exp (Warsz). 64 (Suppl 1), 131-136, (2016).
- El-Akhras, B. A. et al. mir-146a genetic polymorphisms in systemic lupus erythematosus patients: Correlation with disease manifestations. Noncoding RNA Res. 7 (3), 142-149, (2022).
- Ghorab, R. A. et al. MiR-146a (rs2910164) Gene Polymorphism and Its Impact on Circulating MiR-146a Levels in Patients with Inflammatory Bowel Diseases. Inflammation. 48 (3), 1193-1205, (2025).
- Gong, H. B., Zhang, S. L., Wu, X. J., Pu, X. M. & Kang, X. J. Association of rs2910164 polymorphism in MiR-146a gene with psoriasis susceptibility: A meta-analysis. Medicine (Baltimore). 98 (6), e14401, (2019).
- Dong, J., Sun, D. & Lu, F. Association of two polymorphisms of miRNA-146a rs2910164 (G > C) and miRNA-499 rs3746444 (T > C) with asthma: a meta-analysis. J Asthma. 58 (8), 995-1002, (2021).
- Zhou, Z., Zhu, Y., Gao, G. & Zhang, Y. Long noncoding RNA SNHG16 targets miR-146a-5p/CCL5 to regulate LPS-induced WI-38 cell apoptosis and inflammation in acute pneumonia. Life Sci. 228 189-197, (2019).
- Olivieri, F. et al. miR-21 and miR-146a: The microRNAs of inflammaging and age-related diseases. Ageing Res Rev. 70 101374, (2021).
- Xiong, J. R. et al. miR-146a Regulates Neuroinflammation and Immune Cell Function in Neurodegenerative Diseases. Curr Med Sci. 45 (4), 725-744, (2025).
- Guo, H. et al. MiR-146a upregulates FOXP3 and suppresses inflammation by targeting HIPK3/STAT3 in allergic conjunctivitis. Ann Transl Med. 10 (6), 344, (2022).
- Yoshikawa, H. et al. miR-146a regulates emphysema formation and abnormal inflammation in the lungs of two mouse models. Am J Physiol Lung Cell Mol Physiol. 326 (1), L98-L110, (2024).