Ce protocole décrit l'enregistrement électrophysiologique extracellulaire de signaux de pace-maker de nage évoqués visuellement à partir du rhopalium isolé de la méduse cubique Tripedalia cystophora, fournissant une mesure quantitative du comportement d'évitement d'obstacles pour une étude précise du traitement de l'information visuelle et de l'intégration sensorimotrice.
Article de méthode
Enregistrement électrophysiologique extracellulaire de signaux de pace-maker de nage évoqués visuellement à partir du rhopalium isolé de Tripedalia cystophora
Dans cet article
Résumé
Résumé
La méduse cuboméduse Tripedalia cystophora associe des yeux à lentille formant des images et des comportements guidés par la vision bien caractérisés à un système nerveux rhopalial abordable composé d'environ 1000 neurones, ce qui en fait un modèle émergent pour l'étude au niveau système du traitement de l'information visuelle et de l'intégration sensorimotrice. Des neurones pacemakers de nage génèrent des commandes motrices contrôlant directement les contractions de la cloche, et ces signaux peuvent être enregistrés extracellulairement à partir du nerf épidermique du pédoncule d'un rhopalium isolé, fournissant un indicateur quantitatif de la sortie motrice induite par la vision. L'intensité de la réponse du pacemaker, quantifiée comme une activité neuronale normalisée dérivée du nombre de signaux du pacemaker et de la fréquence instantanée, augmente avec le contraste du stimulus au-dessus du seuil de transition décisionnel (DTT), permettant une évaluation graduée de l'intégration sensorimotrice induite par la vision. Dans ce protocole, nous détaillons la fabrication d'électrodes de succion extracellulaires, l'isolement des rhopalia, la configuration de la chambre d'enregistrement, la présentation du stimulus visuel à l'œil inférieur à lentille, la vérification au niveau du matériel du chronométrage du stimulus, le positionnement de l'électrode sur le nerf épidermique du pédoncule, ainsi que l'acquisition synchronisée des données électrophysiologiques et des données de stimulus à l'aide de matériel de laboratoire standard.
Introduction
Comprendre comment les systèmes nerveux traitent l'information sensorielle et la transforment en comportements adaptatifs constitue un défi central en neurosciences. Des progrès importants ont été réalisés chez des organismes modèles complexes et volumineux, tels que Drosophila melanogaster, dont le cerveau composé d’environ 200 000 neurones a permis une analyse détaillée de l’organisation des circuits neuronaux1, parmi d'autres modèles génétiquement accessibles dotés d'outils sophistiqués d'imagerie et de cartographie des circuits. Toutefois, la complexité même de ces systèmes rend difficile l'obtention d'une compréhension complète, à l'échelle du système entier, des relations entre entrée sensorielle, calculs neuronaux et sortie comportementale. À l'opposé du spectre de la complexité, les petits systèmes entièrement cartographiés, comme celui de Caenorhabditis elegans, composé de 302 neurones2, ainsi que d'autres modèles à nombre minimal de neurones, offrent une taille facilement abordable, mais ils ne possèdent pas d'yeux formant des images ni les comportements guidés par la vision qui en dépendent.
Tripedalia cystophora, la méduse cubique des Caraïbes (Figure 1A), s'impose comme un système modèle pour l'étude du traitement de l'information visuelle et de l'intégration sensorimotrice au niveau des systèmes, occupant une position particulière entre ces deux extrêmes3. Le protocole décrit ici (Figure 1) a pour objectif de rendre accessible à la communauté neuroscientifique plus large tout le potentiel expérimental de cet organisme.
T. cystophora possède un système visuel d'une sophistication remarquable pour un animal de sa complexité neuronale. Chacune des quatre structures sensorielles appelées rhopalies porte six yeux, dont deux yeux à lentille formant une image : l'œil à lentille supérieur (ULE) et l'œil à lentille inférieur (LLE)4 (Figure 1B). Ces organes ne sont pas de simples structures photoréceptrices : ils sont équipés d'une lentille à indice de réfraction progressif de type Matthiessen, une conception optique également présente dans les yeux des vertébrés, ainsi que d'une rétine évertie dans laquelle environ 600 photorécepteurs dans l'œil LLE et 400 dans l'œil ULE se connectent directement à des neurones de second ordre5,6,7. La composition moléculaire du mécanisme photorécepteur, incluant les opsines cnidops homologues aux c-opsines des vertébrés et les composants associés de la phototransduction8,9,10, suggère fortement qu'il s'agit de photorécepteurs hyperpolarisants, plaçant ainsi le système visuel de T. cystophora dans la même grande catégorie fonctionnelle que l'œil des vertébrés, malgré son origine évolutive indépendante.
Critiquement, ces investissements optiques s'accompagnent de comportements élaborés, caractérisables expérimentalement et guidés par la vision. T. cystophora se déplace dans l'habitat optiquement complexe de la mangrove en utilisant la navigation à longue distance et la détection de faisceaux lumineux afin de maintenir sa position dans cet habitat11,12, ainsi que des comportements d'évitement d'obstacles pour contourner les racines aériennes immergées12,13,14. Le cadre neuroéthologique sous-jacent à ce travail repose sur l'idée que le comportement constitue le seul indicateur valable du traitement sensoriel chez les animaux non linguistiques. Étant donné que nous ne pouvons pas demander aux animaux ce qu'ils perçoivent, la conception expérimentale doit être adaptée à des stimuli que l'animal est capable de détecter et de comprendre, ainsi qu'à des comportements qu'il est capable d'exécuter. Cela implique que les questions expérimentales doivent être formulées selon les modalités de l'animal, et non selon celles de l'expérimentateur. Le comportement d'évitement d'obstacles chez T. cystophora illustre ce principe. L'épiderme de la méduse boîte n'est constitué que d'une seule couche cellulaire, ce qui rend une collision avec une racine aérienne immergée potentiellement fatale en raison des dommages causés à son corps fragile. Comme l'intégration inter-rhopalienne ne se produit qu'en aval via le nerf en anneau15, aucun système nerveux rhopalien (RNS) unique ne reçoit les entrées binoculaires superposées nécessaires pour calculer la profondeur à partir de la disparité stéréoscopique. L'animal exploite alors une propriété fondamentale de l'optique sous-marine : le contraste entre un objet et l'eau environnante diminue rapidement avec l'augmentation de la distance. Un obstacle à fort contraste est donc un obstacle proche, représentant une menace immédiate, tandis qu'un obstacle à faible contraste est éloigné et encore sans danger. L'animal utilise le contraste comme indicateur de distance16. Chez les animaux en comportement libre, le comportement d'évitement d'obstacles (OAB) repose sur une décision de type « aller/ne pas aller » ; un événement est déclenché lorsque l'animal détecte un obstacle sous-marin dont le contraste dépasse le seuil de transition décisionnel (DTT), seuil au-delà duquel l'obstacle est suffisamment proche pour constituer une menace, et initie alors la réponse « aller » : 3 à 5 contractions rapides de la cloche, un virage de 120 à 180°, puis une nage rapide s'éloignant de l'obstacle14 (Figure 1C). La réponse graduelle du pacemaker au-dessus du DTT reflète l'urgence graduelle de la menace16. Le OAB fournit ainsi un test comportemental particulièrement approprié pour l'étude de l'intégration sensorimotrice : un seul paramètre visuel bien défini (le contraste) contrôle une réponse motrice stéréotypée et quantifiable, ce qui en fait un système idéal pour étudier les bases neuronales de la prise de décision guidée par la vision.
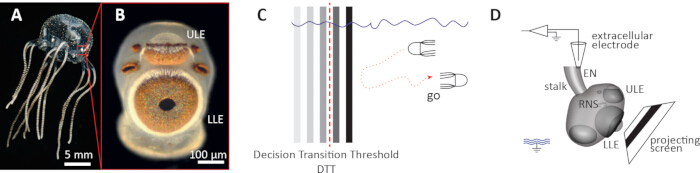
Figure 1 : Aperçu du dispositif expérimental utilisant le rhopalium isolé de Tripedalia cystophora pour l’enregistrement électrophysiologique extracellulaire. (A) Méduse adulte de T. cystophora. Échelle : 5 mm. Le cadre rouge indique la position d’un rhopalium sur la marge du cloche. (B) Vue agrandie d’un rhopalium isolé. L’œil à lentille supérieur (ULE) et l’œil à lentille inférieur (LLE) sont des yeux formant une image. Échelle : 100 µm. Image de Dan-Eric Nilsson, reproduite avec autorisation. (C) Illustration schématique du comportement d’évitement d’obstacle (OAB). En dessous du seuil de transition décisionnel (DTT, ligne pointillée rouge), l’animal continue de nager vers l’obstacle (pas d’action). Au-dessus du DTT, le comportement d’évitement d’obstacle est initié (action). (D) Schéma du dispositif d’enregistrement électrophysiologique avec rhopalium isolé. Le rhopalium est positionné face à l’écran de projection incliné. L’électrode extracellulaire enregistre les signaux du pacemaker natatoire depuis le nerf épidermique du pédoncule (EN). RNS : système nerveux rhopalial ; ULE : œil à lentille supérieur ; LLE : œil à lentille inférieur ; EN : nerf épidermique du pédoncule. Le symbole de masse indique l’électrode de référence du bain. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
Le substrat neural assurant ce traitement visuel est le SNS, composé d’environ 1000 neurones par rhopalium17. Malgré ce nombre limité de neurones, le SNS présente une architecture sophistiquée. Des preuves issues de l’immunohistochimie suggèrent qu’il est organisé en regroupements distincts de neurones exprimant des profils de néuropeptides différents18, ce qui est compatible avec une architecture de traitement compartimentée. On suppose que l’information visuelle est traitée par des regroupements oscillatoires subordonnés (ROC), chacun étant associé à un œil spécifique du rhopalium, et convergeant vers un regroupement oscillatoire terminal (ROCt) — proposé pour correspondre à la population de cellules pacemaker qui génère le signal de sortie motrice contrôlant les contractions de la cloche3. Nous proposons que le ROCt intègre les informations sensorielles traitées provenant des ROC et génère le signal du pacemaker natatoire qui commande la sortie motrice comportementale, et que la synchronisation entre les ROC et le ROCt sous-tend la transformation de l’entrée visuelle en sortie comportementale de contrôle3 (Figure 2).
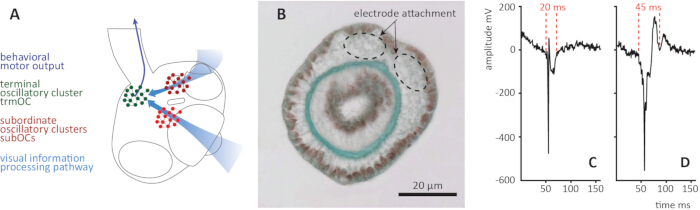
Figure 2 : Origine du circuit neural et identification électrophysiologique du signal du pacemaker natatoire chez Tripedalia cystophora. (A) Schéma du système nerveux rhopalial. L'information visuelle est traitée par des groupes oscillatoires subordonnés (subOC, en rouge) associés aux yeux individuels, puis converge vers le groupe oscillatoire terminal (trmOC, en vert). On suppose que le trmOC intègre les informations sensorielles traitées provenant des subOC et génère le signal du pacemaker natatoire qui commande la sortie motrice comportementale. Les flèches bleu clair indiquent le trajet de traitement de l'information visuelle ; la flèche bleu foncé indique la sortie motrice comportementale. (B) Micrographie électronique en transmission (MET) de la surface transversale du pédoncule épidermique. Les cercles en pointillés indiquent les deux points d'attache du nerf bifurqué du pédoncule épidermique sur la face adorale du pédoncule, correspondant aux emplacements de positionnement des électrodes d'enregistrement. (C) Signal similaire à un potentiel d'action. La forme d'onde se caractérise par une déviation rapide et étroite d'une durée d'environ 20 ms (indiquée par des lignes rouges en pointillés). (D) Signal du pacemaker natatoire provenant du trmOC. La forme d'onde est plus large, avec une durée caractéristique d'environ 45 ms (indiquée par des lignes rouges en pointillés), et présente une morphologie composée reflétant l'activité sommée de plusieurs neurones du trmOC. Bien que les amplitudes des signaux soient comparables entre les deux types, la durée et la morphologie de la forme d'onde constituent les critères fiables de discrimination pour l'analyse en aval. Toutes les valeurs électrophysiologiques sont post-amplification (×1000). Modifié avec autorisation de Bielecki et al.24. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Cette architecture crée une opportunité expérimentale exceptionnelle. Le signal du pacemaker natatoire généré par le trmOC commande les contractions de la cloche de manière strictement univoque19 et peut être enregistré extracellulairement à partir du nerf pédiculaire épidermique d'un rhopalium isolé13,20. Cela signifie que les commandes motrices évoquées visuellement, et par extension les réponses comportementales orientées par la vision, peuvent être surveillées par des méthodes électrophysiologiques sur un préparat dont les effecteurs moteurs ont été entièrement retirés14. Le rhopalium isolé occupe ainsi un intermédiaire méthodologique difficile à obtenir dans d'autres systèmes : il offre le contrôle expérimental d'un préparat réduit, incluant la définition précise de stimuli visuels spatio-temporels, tout en conservant une lecture directe et quantitative de la sortie neuronale pertinente pour le comportement. En conditions normales, les signaux du pacemaker apparaissent à une fréquence de 0,5–1 Hz ; les réponses d'évitement d'obstacles évoquées visuellement se caractérisent par une augmentation à 2–3 Hz, offrant ainsi une fenêtre de signal claire pour l'analyse14 (Figure 1D).
Cette combinaison de propriétés rend la préparation isolée du rhopalium de T. cystophora particulièrement adaptée à l'étude au niveau système du traitement visuel et de l'intégration sensorimotrice. Cette préparation convient aux chercheurs souhaitant étudier le traitement visuel, l'intégration sensorimotrice ou la dynamique des réseaux oscillatoires dans un système nerveux accessible doté d'yeux formant des images et de comportements guidés par la vision bien caractérisés4. Elle nécessite un équipement standard d'électrophysiologie, un projecteur commercial modifié et un microscope de dissection, et peut être mise en place dans un laboratoire ne disposant pas d'infrastructures spécialisées. Le paradigme d'apprentissage mécano-visuel associatif — l'association de stimulations visuelles et mécanosensorielles simultanées — précédemment décrit pour cette préparation14 peut être mis en œuvre comme une extension du protocole d'enregistrement de base décrit ici.
Protocole
Aucune approbation éthique relative aux animaux n'était requise pour cette étude. Les cnidaires, y compris Tripedalia cystophora, ne relèvent pas du champ d'application de la directive 2010/63/UE relative à la protection des animaux utilisés à des fins scientifiques, qui s'applique uniquement aux céphalopodes et aux vertébrés. Les animaux utilisés dans cette étude ont été collectés dans des criques de mangroves près de La Parguera, Porto Rico, États-Unis, une zone qui n'est pas partie au protocole de Nagoya sur l'accès aux ressources génétiques et au partage des avantages ; aucun consentement préalable ni accord d'accès et de partage des avantages n'était donc requis. Tripedalia cystophora n'est pas inscrit comme espèce menacée ou protégée au titre de la CITES ou de toute législation nationale applicable en matière de conservation.
1. Configuration de la scène et de la chaîne de signal
REMARQUE : Tous les composants matériels et leurs connexions sont illustrés dans la Figure 3. Reportez-vous à la Figure 3 tout au long de cette section. Toutes les étapes de cette section doivent être terminées avant de manipuler l'animal. La chambre d'enregistrement n'est pas encore remplie d'eau de mer à ce stade.
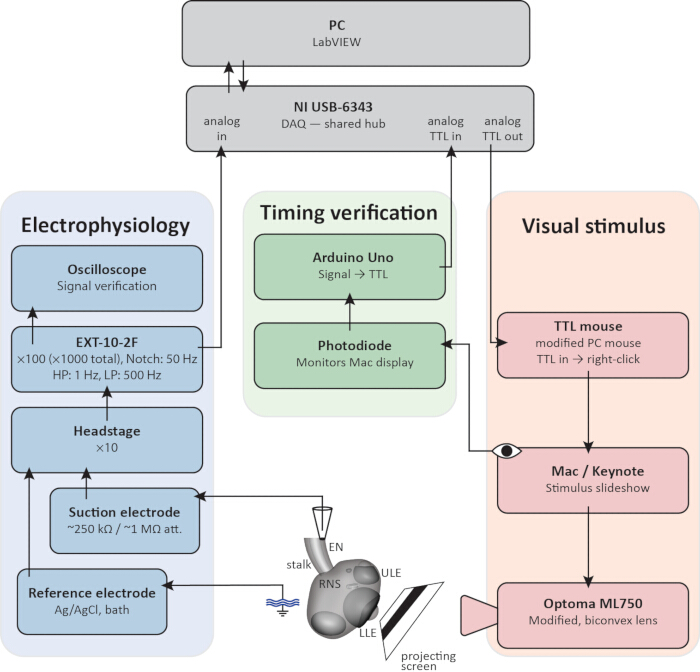
Figure 3 : Schéma des connexions pour la préparation d'électrophysiologie extracellulaire de rhopalium isolé. L'ordinateur exécutant l'interface virtuelle (VI) et l'appareil d'acquisition de données (DAQ) (en haut, gris) sert de centre d'intégration commun pour les trois chaînes de signaux. Chaîne d'électrophysiologie (bleue) : les signaux du pacemaker natatoire sont enregistrés à partir du nerf du pédoncule épidermique (EN) au moyen d'une électrode de succion (~250 kΩ en pointe libre, ~1 MΩ fixée) et d'une électrode de référence en pastille Ag/AgCl placée dans le bain, amplifiés par la tête d'amplification EXT-10-2F (×10) et l'amplificateur principal (×100, gain total ×1000), avec filtrage passe-bande (HP : 1 Hz, LP : 500 Hz) et filtre réjecteur 50/60 Hz, surveillés sur l'oscilloscope et acquis par le DAQ. Chaîne de stimulus visuel (rouge) : une impulsion TTL du DAQ fait avancer le diaporama de stimulus via une souris d'ordinateur modifiée (souris TTL), pilotant le projecteur DLP (modifié, lentille biconvexe) pour projeter le stimulus sur la paroi inclinée de l'écran de la chambre d'enregistrement devant l'œil à lentille inférieure (LLE). Chaîne de vérification du synchronisme (verte) : une photodiode surveille le carré indicateur noir et blanc affiché à l'écran de l'ordinateur, qui passe du blanc au noir au début du stimulus et revient au blanc à la fin ; une Arduino Uno convertit ce signal en une impulsion TTL enregistrée par le DAQ comme fenêtre de stimulus vérifiée. RNS : système nerveux rhopalien ; ULE : œil à lentille supérieure ; LLE : œil à lentille inférieure ; EN : nerf du pédoncule épidermique. Toutes les valeurs d'amplitude sont post-amplification (×1000). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
- Construction de la chambre d'enregistrement
- Concevez ou imprimez en 3D une chambre d'enregistrement ayant des dimensions internes suffisantes pour accueillir le prélèvement, l'extrémité de la micropipette de maintien et l'extrémité de l'électrode d'enregistrement.
NOTE : Les caractéristiques de conception fonctionnellement critiques sont le rebord pour couvre-objet, qui positionne le rhopalium à 2 mm du bord du couvre-objet par rapport à l'écran de projection, et les dimensions de l'écran (16 mm × 12 mm, incliné à 60°), qui déterminent ensemble l'angle sous-tendu par le stimulus visuel au niveau de l'œil à lentille inférieure. La chambre décrite ici possède une empreinte au sol de 30 mm × 30 mm et une épaisseur de paroi d'environ 5 mm. Des dessins techniques sont fournis dans Figure 4. - Placez le couvre-objet de la chambre à numération Roth de 20 mm × 26 mm sur les rebords prévus dans la chambre d'enregistrement. Le couvre-objet reste en place par flottabilité négative et ne nécessite aucune fixation adhésive.
- Montez la chambre d'enregistrement sur la platine du microscope à l'aide des trous traversants M6. Une platine de translation x-y-z est recommandée, car elle facilite l'alignement précis de l'image projetée sur la paroi d'écran de projection de la chambre d'enregistrement.
- Reliez les orifices d'entrée et de sortie des canaux de circulation de la chambre d'enregistrement (Figure 4A) à un bain d'eau thermostaté circulant à 28 °C.
NOTE : La température de la chambre d'enregistrement doit être maintenue entre 28 et 30 °C tout au long de l'expérience.
- Concevez ou imprimez en 3D une chambre d'enregistrement ayant des dimensions internes suffisantes pour accueillir le prélèvement, l'extrémité de la micropipette de maintien et l'extrémité de l'électrode d'enregistrement.
- Configuration optique (Figure 3, chaîne de stimulus visuel)
ATTENTION : Ne regardez pas directement la sortie du projecteur, en particulier avant l'installation des filtres de densité neutre (section 4). Le retrait du système de lentilles d'origine supprime l'atténuation intégrée de la lumière et peut provoquer des lésions oculaires.- Retirez le système de lentilles d'origine du projecteur.
- Montez une lentille biconvexe unique (f = 30 mm) devant l'ouverture de sortie du projecteur afin de focaliser l'image projetée sur la paroi d'écran de projection de la chambre d'enregistrement.
- Alignez le projecteur de sorte que l'image projetée soit nette sur la paroi d'écran de projection de la chambre d'enregistrement et remplisse entièrement les dimensions de l'écran (16 mm × 12 mm).
NOTE : Les filtres de densité neutre ne sont pas insérés à ce stade. L'intensité appropriée du filtre est déterminée empiriquement lors de l'étalonnage biologique de la section 4.
- Assemblage de la chaîne de signal (Figure 3, chaînes d'électrophysiologie et de vérification du chronométrage)
- Reliez le porte-électrode au bras de tête fourni avec l'amplificateur EXT-10-2F et fixez ce bras de tête dans un micromanipulateur MM33.
- Reliez le bras de tête à l'amplificateur principal. Le gain du bras de tête est de ×10. Réglez le gain de l'amplificateur principal à ×100, obtenant ainsi un gain total de ×1000.
- Reliez la sortie de l'amplificateur à un canal d'entrée analogique d'un convertisseur analogique-numérique (DAQ).
- Reliez le DAQ à l'ordinateur PC exécutant LabVIEW (version 2018 ou similaire) via USB.
- Reliez la sortie TTL de l'Arduino Uno à un canal d'entrée analogique dédié du DAQ.
- Placez la photodiode au-dessus du carré indicateur noir et blanc affiché sur l'écran d'ordinateur (étape 1.4.2). Reliez la borne positive de la photodiode à la broche d'entrée analogique A0 de l'Arduino Uno et la borne négative à la masse. Le programme Arduino implémentant la logique de surveillance de la photodiode et de seuil de sortie TTL est fourni en matériel supplémentaire (Fichier Supplémentaire 1).
- Conception de la géométrie du stimulus (Figure 3, chaîne de stimulus visuel)
- Concevez le stimulus visuel dans le logiciel de présentation comme une barre grise verticale en mouvement sur fond blanc, imitant un obstacle racinaire de palétuvier. Réglez le fond à la luminosité blanche maximale.
NOTE : Le niveau de gris de la barre par rapport au fond blanc détermine le contraste du stimulus et est fixé lors de la caractérisation de l'irradiance dans la section 4. La barre doit sous-tendre un angle visuel de 30° pour l'œil à lentille inférieure (mesuré au centre du champ visuel) et se déplacer à 10° s-1 sur toute la largeur du champ visuel, en restant toujours à l'intérieur de celui-ci. L'angle visuel d'un obstacle projeté peut être déterminé par :
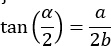
où α est l'angle visuel, a est la largeur de la caractéristique de l'image, et b est la distance entre l'œil à lentille inférieure et l'écran. Le mouvement de la barre est implémenté comme une animation continue unique (par exemple, l'effet « Déplacer » de Keynote) appliquée à l'objet barre dans une seule diapositive, plutôt que comme une séquence de diapositives discrètes. Un fichier de stimulus représentatif implémentant cette animation est fourni en matériel supplémentaire (Fichier Supplémentaire 2). Comme la largeur et la vitesse de la barre sont spécifiées en angle visuel et non en unités physiques, les deux doivent être converties en millimètres et mm/s à l'aide de l'équation ci-dessus, en fonction de la distance de travail spécifique et des dimensions de l'écran de la chambre d'enregistrement, avant d'être saisies comme taille de l'objet et durée de l'animation dans le logiciel de présentation. - Incluez un petit carré indicateur noir et blanc dans un coin de la diapositive, qui passe du blanc au noir au début du déplacement de la barre et revient au blanc à la fin du stimulus. Surveillez ce carré sur l'écran d'ordinateur à l'aide de la photodiode pour vérifier le chronométrage du stimulus à l'étape 3.3.
NOTE : Le carré indicateur noir et blanc apparaît nécessairement dans l'image projetée sur l'écran de la chambre d'enregistrement, car il doit faire partie de la diapositive pour apparaître sur l'écran d'ordinateur pendant la présentation. Toutefois, sa taille est ajustée pour occuper uniquement la zone sensible de la photodiode sur l'écran d'ordinateur. Lorsqu'il est projeté sur l'écran de la chambre, il est suffisamment petit pour ne pas être perçu comme une caractéristique visuelle distincte par l'œil à lentille inférieure, et sa contribution à la luminosité globale de l'écran est négligeable et n'induit pas de réponses d'activation/désactivation lumineuse4,13,20. - Faites avancer les diapositives du logiciel de présentation à l'aide d'un déclenchement automatique ou manuel.
- Option A (automatisée) : Construisez une souris à logique transistor-transistor (TTL) en modifiant une souris PC standard de manière à ce qu'une brève impulsion TTL de 5 V reçue depuis la sortie du DAQ remplace le signal de clic droit. Reliez la souris TTL à l'ordinateur de présentation via USB. Configurez le logiciel de présentation pour faire avancer les diapositives sur une entrée de clic droit.
- Option B (manuelle) : Déclenchez manuellement l'avancement des diapositives au moment prévu du début du stimulus. Comme c'est la fenêtre de stimulus validée par l'Arduino (canal 3), et non le signal de déclenchement lui-même, qui est utilisée comme enregistrement définitif du chronométrage pour l'analyse (étape 6.2.1), le déclenchement manuel ne compromet pas la précision du chronométrage, bien qu'il exige une synchronisation précise de l'opérateur pendant l'acquisition et soit moins pratique que l'option automatisée.
- Concevez le stimulus visuel dans le logiciel de présentation comme une barre grise verticale en mouvement sur fond blanc, imitant un obstacle racinaire de palétuvier. Réglez le fond à la luminosité blanche maximale.
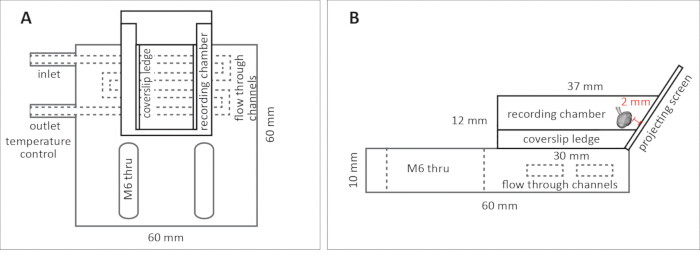
Figure 4 : Chambre d'enregistrement pour la préparation du rhopalium isolé. (A) Schéma en vue de dessus. La chambre d'enregistrement est encadrée par des canaux à circulation continue destinés à la régulation thermique par double enveloppe, avec des orifices d'entrée et de sortie (OD 4,2 mm, ID 2,5 mm) indiqués. Les rebords pour lamelle s'étendent longitudinalement le long des deux parois internes de la chambre, supportant la lamelle du cytocompteur à mi-hauteur de la chambre. Des trous traversants M6 servent de points de fixation pour fixer la chambre sur la platine du microscope. Dimensions globales : 60 mm × 60 mm. (B) Schéma en vue latérale avec cotes. La chambre d'enregistrement a une hauteur interne de 12 mm et une largeur supérieure de 37 mm. L'une des parois de la chambre forme l'écran de projection, incliné à 60° par rapport à la verticale afin de s'aligner sur l'axe optique de l'œil à lentille inférieure. Le rebord pour lamelle positionne le rhopalium au bord de la lamelle, face à l'écran de projection. La distance de travail de 2 mm indiquée reflète la configuration spécifique de cette chambre, de cet écran et de ce projecteur décrite dans ce protocole ; les lecteurs adaptant ce dispositif à d'autres équipements doivent recalculer une distance de travail appropriée pour leur propre montage à l'aide de l'équation indiquée à l'étape 1.4.1. Les canaux à circulation continue destinés au contrôle de la température sont intégrés à la base de la chambre d'enregistrement et n'entrent pas en contact avec la préparation. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
2. Fabrication des électrodes
REMARQUE : Les électrodes de succion extracellulaires sont constituées de capillaires en verre dont les extrémités sont effilées afin de former une ouverture adaptée à l'adhérence par succion et à l'enregistrement des potentiels électriques. Le capillaire en verre assure l'isolation électrique, garantissant que seuls les potentiels au niveau de l'extrémité sont enregistrés. Un fil d'argent inséré dans le capillaire est relié à l'amplificateur. Cette configuration permet des enregistrements multi-unités, captant les potentiels électriques provenant de groupes de cellules marquantes situées au niveau de l'extrémité de l'électrode, mesurés par rapport à une électrode de référence placée dans le bain. Les électrodes doivent être fabriquées le jour même de leur utilisation, avant la session d'enregistrement. Les électrodes stockées sont sujettes à l'obstruction de la pointe, ce qui empêche l'aspiration d'eau de mer dans le capillaire et rend l'électrode non fonctionnelle. Les capillaires en verre étirés possèdent des pointes fines et fragiles. Manipulez-les avec précaution lors de la fabrication afin d'éviter toute blessure par perforation, et jetez les capillaires cassés, rejetés ou usagés dans un conteneur désigné pour les objets tranchants.
- Tirage du tube capillaire en verre
- Charger un tube capillaire en verre borosilicate (1,16 mm de DI × 2,00 mm de DO × 80 mm de L) dans le tireur de micropipettes.
- Exécuter le programme de tirage suivant : Ligne 1 (×1) : chaleur 535, tirage 0, vitesse 12, temps 200, pression 600, rampe 540. Lignes 2–4 (×3) : chaleur 532, tirage 0, vitesse 12, temps 100.
NOTE : Ces paramètres sont spécifiques à l'appareil, au verre et au filament utilisés, et peuvent nécessiter un ajustement sur un autre appareil ou après usure du filament ; les considérer comme un point de départ plutôt qu'une spécification fixe. - Retirer délicatement l'électrode tirée et la conserver en position pointe vers le haut afin d'éviter tout dommage mécanique.
- Polissage de la pointe de l'électrode
- Polir la pointe afin d'obtenir une surface lisse et perpendiculaire à l'axe du capillaire, apte à former un joint étanche sous vide. Se référer aux deux options proposées ci-dessous ; l'option A (microfours) est recommandée.
- Option A : Polissage avec un microfours (recommandé)
- Monter l'électrode tirée dans un microfours.
- Sous un grossissement de 600× (objectif 40×, oculaire 15×), positionner la pointe près du filament chauffant.
- Chauffer et polir la pointe jusqu'à ce que l'ouverture présente une résistance d'environ 250 kΩ (correspondant à environ 1 MΩ au contact du tissu). À un grossissement de 600×, cela correspond à environ trois graduations sur l'échelle réticulaire de l'oculaire.
NOTE : Pour mesurer la résistance de l'électrode, relier un multimètre entre le noyau BNC (relié au fil d'argent de l'électrode) et l'électrode de référence du bain (pastille Ag/AgCl), une fois l'électrode remplie d'eau de mer. La mesure de la résistance électrique n'est pas requise pour les enregistrements évoqués visuellement standards, où la qualité du signal est le critère principal d'adéquation de l'électrode (étape 6.1.5) ; elle devient nécessaire lorsque ce montage est utilisé pour le paradigme d'apprentissage associatif nécessitant une délivrance de courant calculée, ce qui dépasse le cadre du présent protocole14. - Laisser l'électrode refroidir complètement avant de la retirer du microfours.
- Option B : Polissage manuel sans microfours
ATTENTION : Cette étape utilise une flamme ouverte (brûleur à éthanol). Éloigner les matériaux inflammables de la flamme et respecter les précautions standard en laboratoire pour les flammes ouvertes.- Tenir brièvement la pointe du capillaire tiré dans la flamme d'un brûleur à éthanol jusqu'à ce que le verre fonde et scelle la pointe en formant une petite goutte.
- Laisser la pointe scellée refroidir complètement.
- Déposer une goutte d'eau déionisée sur une feuille de papier abrasif fin (grain 1200) et maintenir le capillaire perpendiculairement à la surface du papier.
- Polir la pointe en effectuant de petits mouvements circulaires, en alternant entre les sens horaire et anti-horaire.
- Continuer prudemment le polissage jusqu'à ce qu'une petite quantité d'eau chargée de débris de verre soit aspirée dans la pointe par capillarité.
- Fixer un tube en caoutchouc à l'extrémité opposée du capillaire et le relier à une seringue.
- Appliquer une aspiration douce pour faire passer de l'eau déionisée à travers la pointe, éliminant ainsi les débris de verre.
- Si les débris persistent, polir légèrement pendant une courte durée supplémentaire et répéter l'étape de rinçage.
NOTE : Le débit cible à travers la pointe terminée est d'environ 1 cm de colonne d'eau par 10 s sous une aspiration douce. Le succès de la fabrication de la pointe est défini par le résultat d'enregistrement (signal de faible bruit et d'amplitude élevée), et non par l'apparence de la pointe. Environ 40 % à 50 % des électrodes fabriquées, quelle que soit l'option de polissage, permettent de tels enregistrements, bien que le facteur limitant diffère entre les deux méthodes. Pour le polissage au microfours (option A), l'échec provient le plus souvent d'une géométrie de pore irrégulière survenue lors de l'étape de tirage (étape 2.1), que le polissage thermique ultérieur ne peut pas corriger entièrement. Pour le polissage manuel (option B), le succès dépend principalement de l'habileté de l'opérateur ; l'échec le plus fréquent est un pore trop grand dû à un surpolissage. Un pore lisse, de taille correcte et rond augmente considérablement la probabilité d'obtenir un enregistrement de haute qualité, mais ne le garantit pas — le résultat fonctionnel est le seul critère qui compte finalement.
- Montage de l'électrode
- Insérer le tube capillaire poli dans le support d'électrode, en veillant à ce que le fil Ag/AgCl (argent/chlorure d'argent) soit bien tendu et sans pli à l'intérieur du capillaire en verre, puis monter l'ensemble sur le bras de la tête amplificatrice fourni avec l'amplificateur EXT-10-2F. Fixer solidement le bras de la tête amplificatrice sur le micromanipulateur MM33.
NOTE : Si le fil d'argent n'est pas chloruré, le chlorurer électrochimiquement en immergeant à la fois le fil d'argent de l'électrode et une électrode solide en argent séparée dans une solution de KCl 2 M, reliés par des fils isolés à une source de courant continu de 12 V. Appliquer le courant par intervalles d'environ 2 minutes, en inspectant visuellement le fil entre chaque étape ; le fil est suffisamment chloruré lorsqu'il s'est nettement assombri, généralement en moins de 5 minutes au total. Rincer abondamment à l'eau déionisée après la chloruration. Un fil non chloruré peut introduire un décalage de tension continue important et instable.
ATTENTION : La chloruration électrolytique en solution de KCl génère du chlore et de l'hydrogène gazeux. Effectuer cette opération dans un endroit bien ventilé. Éliminer la solution usée de chloruration de KCl conformément aux directives institutionnelles relatives aux déchets dangereux. - Remplir l'électrode immédiatement avant l'enregistrement en aspirant directement de l'eau de mer depuis la chambre d'enregistrement remplie jusqu'à ce que la solution interne atteigne la moitié de la hauteur du fil d'argent. Voir l'étape 3.1 pour la procédure de remplissage.
NOTE : Les micropipettes de maintien n'exigent pas les spécifications optiques ou électriques des électrodes d'enregistrement. Les électrodes rejetées lors de la fabrication (étape 2.2) en raison d'un diamètre de pointe excessif (résistance inférieure à 250 kΩ) ou d'une géométrie de pointe excentrée conviennent à cette utilisation et doivent être conservées. Il n'est pas nécessaire de fabriquer des micropipettes de maintien spécifiques.
- Insérer le tube capillaire poli dans le support d'électrode, en veillant à ce que le fil Ag/AgCl (argent/chlorure d'argent) soit bien tendu et sans pli à l'intérieur du capillaire en verre, puis monter l'ensemble sur le bras de la tête amplificatrice fourni avec l'amplificateur EXT-10-2F. Fixer solidement le bras de la tête amplificatrice sur le micromanipulateur MM33.
3. Validation du système
Cette section permet de vérifier que l'ensemble du système d'enregistrement — électrode, chaîne de signal, délivrance du stimulus et vérification du chronométrage — fonctionne correctement avant l'introduction du dispositif expérimental. La chaîne de signal complète est illustrée dans la Figure 3. Vérifiez que toutes les connexions sont en place avant de poursuivre.
- Remplissage de la chambre et préparation des électrodes
- Remplir la chambre d'enregistrement avec de l'eau de mer filtrée à 0,20 µm provenant du réservoir de culture. Cela garantit une continuité de la composition chimique entre l'environnement de culture et la chambre d'enregistrement, évitant ainsi l'exposition du rhopalium à des composés étrangers ou à des variations de la chimie de l'eau qui pourraient affecter l'activité du pacemaker ou la viabilité de la préparation.
- Remplir l'électrode de succion d'enregistrement en aspirant directement de l'eau de mer depuis la chambre d'enregistrement dans la capillarité, jusqu'à ce que la solution interne atteigne la moitié de la hauteur du fil d'argent. Remplir la micropipette de maintien avec suffisamment d'eau de mer provenant de la chambre d'enregistrement pour permettre l'adhésion par succion au cristal.
- Placer une électrode en pastille frittée Ag/AgCl (argent/chlorure d'argent) dans le bain d'enregistrement et la connecter à l'entrée de référence de la tête d'amplification.
- Mise à la terre et vérification du bruit
ATTENTION : Ce montage implique l'utilisation d'équipements électriques en proximité immédiate de l'eau de mer. Garder toutes les connexions électriques et tous les équipements éloignés de la chambre et de tout déversement, et respecter les consignes de sécurité électrique de l'institution applicables au travail en environnement humide.- Mettre tous les instruments à la terre en un seul point commun (configuration de mise à la terre en étoile) afin d'éviter les boucles de masse.
- Surveiller le signal sur l'oscilloscope. Vérifier que la ligne de base est propre et dépourvue de bruit avant de poursuivre.
NOTE : Les cages de Faraday ne sont généralement pas utilisées dans notre laboratoire pour les enregistrements extracellulaires, car une mise à la terre rigoureuse en étoile s'avère systématiquement plus efficace que le blindage physique pour éliminer le bruit électrique (50/60 Hz).
- Chaîne de vérification du synchronisme
- Exécuter l'instrument virtuel LabVIEW (VI) (fourni en matériel supplémentaire, Fichier Supplémentaire 3). Exécuter le VI pendant la validation du système. Cela envoie une impulsion TTL à la souris TTL pour déclencher la génération du stimulus, et génère un fichier de sortie .txt permettant de vérifier que tous les canaux — signal électrophysiologique, TTL LabVIEW et TTL Arduino — sont correctement acquis avant l'introduction de la préparation expérimentale.
NOTE : Le délai entre la commande TTL enregistrée par LabVIEW et le début du stimulus confirmé par Arduino varie de manière imprévisible d'un enregistrement à l'autre et n'est pas corrigé à ce stade ; il est plutôt déterminé et ajusté individuellement pour chaque enregistrement lors de l'analyse (étape 7.2.1). - Vérifier que l'impulsion TTL provenant du DAQ déclenche correctement la génération du stimulus et que le stimulus visuel est bien projeté sur l'écran selon le plan expérimental.
- Vérifier qu'Arduino Uno détecte le changement du carré indicateur noir et blanc sur l'écran de l'ordinateur et envoie une impulsion TTL au DAQ.
NOTE : Arduino Uno échantillonne la tension de la photodiode via analogRead(A0). Lorsque la valeur mesurée descend en dessous d'un seuil déterminé empiriquement (61 sur la plage 0–1023 d'analogueRead dans ce montage), la broche de sortie numérique 5 est fixée à 5 V (TTL haut) ; lorsque la valeur remonte au-dessus du seuil, la sortie revient à 0 V. Ce seuil dépend du montage et doit être recalibré pour chaque écran et configuration d'éclairage ambiant. - Confirmer que l'impulsion TTL de la fenêtre de stimulus provenant d'Arduino Uno est correctement enregistrée dans le fichier .txt généré par le VI LabVIEW, aux côtés du canal électrophysiologique et du canal TTL numérique du VI.
NOTE : Le signal de la photodiode n'est pas enregistré directement par le DAQ, car la sortie brute de la photodiode est trop bruitée pour une détection fiable du stimulus à l'entrée du DAQ. La conversion en une impulsion TTL propre par Arduino Uno assure un signal de synchronisation fiable et à faible bruit. Le programme Arduino implémentant la surveillance de la photodiode et la sortie TTL est fourni en matériel supplémentaire (Fichier Supplémentaire 1). La fréquence de rafraîchissement Arduino de 1 kHz correspond à la fréquence d'échantillonnage du DAQ, garantissant ainsi qu'aucune information temporelle n'est perdue. - Une fois tous les canaux vérifiés, vider la chambre d'enregistrement et retirer l'électrode de la chambre en prévision de la section 4.
- Exécuter l'instrument virtuel LabVIEW (VI) (fourni en matériel supplémentaire, Fichier Supplémentaire 3). Exécuter le VI pendant la validation du système. Cela envoie une impulsion TTL à la souris TTL pour déclencher la génération du stimulus, et génère un fichier de sortie .txt permettant de vérifier que tous les canaux — signal électrophysiologique, TTL LabVIEW et TTL Arduino — sont correctement acquis avant l'introduction de la préparation expérimentale.
4. Étalonnage de la lumière et détermination du contraste
REMARQUE : Cette section établit la configuration optique correcte pour la stimulation visuelle de l'œil à lentille inférieur et détermine les valeurs d'irradiance nécessaires aux calculs de contraste. Un rhopalium sacrificiel est utilisé pour l'étape de calibration biologique. La caractérisation de l'irradiance est effectuée sans aucune préparation dans la chambre. Cette section est longue. La calibration biologique, la caractérisation de l'irradiance à tous les niveaux de gris et les calculs de contraste peuvent nécessiter une séance dédiée avant le jour de l'enregistrement. Le rhopalium utilisé pour la calibration biologique doit être mis au rebut après cette section et ne peut pas être utilisé pour les enregistrements.
- Étalonnage biologique
- Remplir la chambre d’enregistrement avec de l’eau de mer filtrée à 0,20 µm provenant du réservoir de culture.
- Isoler un rhopalium et le transférer dans la chambre d’enregistrement en suivant la procédure décrite à la section 5.
- Positionner le rhopalium sur le bord de la lame à couvrir, face à l’écran de projection, à l’aide de la micropipette de maintien (Figure 1D).
NOTE : Le positionnement du rhopalium sur le bord de la lame plutôt que sur sa surface présente deux avantages : premièrement, le bord de la lame peut être placé à une distance fixe et reproductible de l’écran de projection, assurant une distance de travail constante pour tous les enregistrements ; deuxièmement, l’œil à lentille inférieur n’a pas besoin de regarder à travers le verre de la lame pour voir l’écran, évitant ainsi une distorsion angulaire du stimulus visuel. La distance entre le bord de la lame et l’écran de projection détermine l’angle apparent de tous les stimuli projetés pour l’œil à lentille inférieur et doit rester constante durant tous les enregistrements. Dans la chambre décrite dans ce protocole, cette distance est de 2 mm. - Fixer l’électrode d’enregistrement au nerf du pédoncule épidermique en suivant la procédure décrite à l’étape 6.1.
- Présenter un obstacle de contraste maximal (c ≈ 1,0, barre noire sur fond blanc) se déplaçant sur toute la largeur du champ visuel et évaluer la réponse du signal du pacemaker (Figure 1C ; Figure 5).
NOTE : Une mesure photométrique a confirmé un contraste maximal atteignable de c ≈ 0,99 entre les niveaux de gris les plus clairs et les plus foncés du système de projection utilisé, reflétant une luminance résiduelle au point noir du projecteur plutôt qu’une limitation de la conception du stimulus ; c’est la raison de la notation approximative (c ≈ 1,0) utilisée tout au long de ce protocole pour les stimuli de contraste maximal.
NOTE : (CRITIQUE) Une réponse satisfaisante consiste en une augmentation marquée de la fréquence du signal du pacemaker supérieure à 2 Hz, apparaissant sous forme d’un bref pic temporellement verrouillé lorsque le bord avant de l’obstacle atteint le centre du champ visuel, plutôt qu’une augmentation prolongée durant toute la présentation du stimulus, avec environ 5 à 15 signaux du pacemaker émis pendant ce pic (Figure 5B). L’intensité de la réponse, tant en fréquence qu’en nombre de signaux, augmente avec le contraste du stimulus ; la réponse à un stimulus de contraste maximal (c ≈ 1,0) doit donc être aussi forte que possible, car cela indique un bon alignement de l’œil à lentille inférieur, une fixation correcte de l’électrode et un étalonnage adéquat du projecteur, et garantit une plage dynamique suffisante pour distinguer les réponses à des niveaux de contraste plus faibles. Ceci confirme que les photorécepteurs fonctionnent dans leur plage dynamique et ne sont pas saturés par un excès d’irradiance. Si aucune modulation de la fréquence du pacemaker n’est observée malgré une préparation saine présentant une activité spontanée du pacemaker de 0,5 à 1 Hz, une saturation des photorécepteurs due à une irradiance excessive doit être suspectée. Insérer un filtre neutre (par exemple, Thorlabs NE01A, densité optique = 0,1, selon les besoins) dans l’ensemble de l’objectif et répéter l’étalonnage. Augmenter progressivement l’atténuation jusqu’à l’obtention d’une réponse robuste de la fréquence du pacemaker. Tous les enregistrements ultérieurs doivent être réalisés avec cette configuration de filtre en place. - Une fois une réponse biologique satisfaisante obtenue, noter la configuration du filtre à densité neutre. Cette configuration reste fixe pour tous les enregistrements ultérieurs réalisés avec ce dispositif optique.
- Retirer le rhopalium de la chambre d’enregistrement et le jeter. Le rhopalium utilisé pour l’étalonnage biologique ne peut pas être utilisé pour les enregistrements en raison du temps écoulé pendant la procédure d’étalonnage.
- Caractérisation de l’irradiance
- Vider la chambre d’enregistrement et s’assurer que la surface de l’écran de projection est sèche. Placer la fibre du spectromètre directement sur la surface de l’écran de projection, perpendiculairement à celle-ci.
NOTE : La plupart des fibres optiques des spectromètres ne sont pas étanches. La chambre doit être vide et la surface de l’écran sèche avant de placer la fibre sur l’écran. - À l’aide du logiciel de présentation, illuminer uniformément l’écran de projection avec chaque niveau de gris à mesurer et enregistrer l’irradiance (350–700 nm) à l’aide du spectromètre.
NOTE : Il est recommandé de procéder du niveau de gris maximal au niveau minimal (blanc au noir), car le spectromètre risque le plus d’être saturé à des niveaux élevés d’irradiance. Une recalibration du temps d’intégration peut être nécessaire à différents points de la gamme de niveaux de gris afin d’éviter à la fois la sur-exposition et la sous-exposition. Ce processus, pour l’ensemble des niveaux de gris, est long et doit être planifié en conséquence. - Corriger chaque valeur d’irradiance mesurée en fonction du spectre d’absorption de l’opsine à 500 nm de T. cystophora présente dans l’œil à lentille inférieur21,22.
NOTE : La correction par opsine est effectuée en multipliant l’irradiance mesurée à chaque longueur d’onde par le coefficient de réceptance correspondant du modèle de pigment visuel de Govardovskii pour un λmax de 500 nm21, puis en sommant sur la plage de longueurs d’onde mesurée pour obtenir une valeur unique d’irradiance corrigée par opsine. Ce calcul peut être réalisé dans n’importe quel logiciel courant de tableur une fois les données brutes d’irradiance spectrale acquises. - Calculer le contraste de chaque niveau de gris à l’aide des valeurs d’irradiance corrigées :

où Iw est l’irradiance corrigée par opsine du fond blanc et Ig est l’irradiance corrigée par opsine de la barre grise ou noire. Les valeurs de contraste varient de 0 (barre indiscernable du fond) à 1 (contraste maximal, barre noire sur fond blanc). - À partir des valeurs de contraste calculées, identifier les niveaux de gris correspondant aux niveaux de contraste requis pour le protocole expérimental. Mettre à jour le diaporama du logiciel de présentation avec ces niveaux de gris.
NOTE : Le contraste étant un rapport de valeurs d’irradiance, il est insensible aux variations uniformes de l’intensité absolue de la lampe sur tous les niveaux de gris. La caractérisation de l’irradiance n’a donc pas besoin d’être répétée entre les séances d’enregistrement, tant que la configuration optique reste inchangée. Toutefois, les utilisateurs sont invités à vérifier la stabilité de l’irradiance si des variations inattendues de la réponse au stimulus sont observées entre les séances.
- Vider la chambre d’enregistrement et s’assurer que la surface de l’écran de projection est sèche. Placer la fibre du spectromètre directement sur la surface de l’écran de projection, perpendiculairement à celle-ci.
<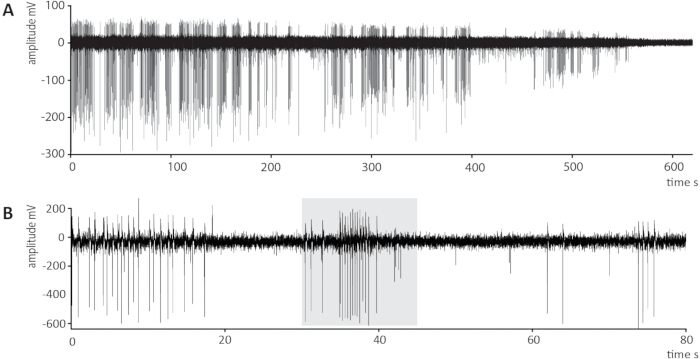
Figure 5 : Enregistrements extracellulaires représentatifs des signaux de pacemaker de nage provenant du rhopalium isolé de Tripedalia cystophora. (A) Exemple de perte progressive du scellement de l'électrode au cours d'une session d'enregistrement prolongée. L'amplitude du signal de pacemaker commence à diminuer vers 200–250 s, reflétant une détérioration du contact électrique entre la pointe de l'électrode et le nerf du pédoncule épidermique, et le signal est complètement perdu vers 580–600 s. L'amplitude du signal et le bruit de fond diminuent parallèlement, ce qui constitue la signature caractéristique d'une perte de scellement. (B) Enregistrement représentatif d'une réponse de détection d'obstacle induite visuellement au-dessus du DTT. La zone grise ombrée indique la fenêtre de stimulus, définie par le signal TTL Arduino, pendant laquelle une barre verticale de contraste élevé (c = 0,80) a été déplacée sur toute la largeur du champ visuel de l'œil à lentille inférieure. La fréquence du signal de pacemaker augmente nettement pendant la fenêtre de stimulus, en accord avec une réponse de détection d'obstacle induite visuellement, puis revient vers la fréquence de base après la fin du stimulus. Des signaux de pacemaker spontanés survenant en dehors de la fenêtre de stimulus sont attendus et ne constituent pas des réponses induites visuellement. Noter que la différence d'échelle sur l'axe des y entre les panneaux reflète la qualité différente des enregistrements montrés et n'implique pas une différence de puissance du signal ; en électrophysiologie extracellulaire, l'amplitude du signal dépend de la qualité du scellement de l'électrode plutôt que de l'amplitude de la réponse physiologique. Toutes les valeurs sont post-amplification (×1000). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
5. Isolement et transfert du rhopalium
REMARQUE : Cette procédure est effectuée à chaque fois qu'un rhopalium est nécessaire : une fois avec un rhopalium sacrificiel pour l'étalonnage biologique à la section 4, puis successivement pour chaque rhopalium expérimental utilisé à la section 6. À chaque occasion, tous les composants matériels doivent être entièrement assemblés et vérifiés avant de manipuler l'animal. Le nombre de rhopalia expérimentaux est déterminé par le plan expérimental.
- À l’aide d’une pipette plastique jetable dont la pointe a été coupée pour obtenir une ouverture d’environ 8 mm de diamètre, transférer un animal unique du réservoir de culture vers une boîte de Pétri de 35 mm contenant de l’eau de mer filtrée sur 0,20 µm provenant du réservoir de culture.
- Éliminer l’excès d’eau de mer jusqu’à ce que l’animal soit aplati contre la boîte et immobile, sans toutefois être desséché.
- À l’aide de ciseaux fins (ciseaux de Vannas, lame de 0,025 mm × 0,015 mm), sectionner le pédoncule reliant le rhopalium à la cloche à environ deux tiers de la longueur du pédoncule, mesurée à partir de l’insertion du rhopalium (c’est-à-dire en direction distale par rapport au rhopalium). Immédiatement après la section, remplir à nouveau la boîte de Pétri avec de l’eau de mer filtrée sur 0,20 µm provenant du réservoir de culture.
ATTENTION : Les ciseaux de Vannas sont extrêmement tranchants. Manipuler avec précaution pendant la dissection afin d’éviter toute blessure.
REMARQUE : Le rhopalium peut se rétracter dans la niche rhopalienne après la section. Le fait de remplir à nouveau la boîte de Pétri avec de l’eau de mer filtrée permettra, dans la plupart des cas, de le déloger. Si ce n’est pas le cas, utiliser une pipette Pasteur pour le rincer doucement.
À l’aide d’une pipette Pasteur (150 mm), transférer le rhopalium isolé vers la chambre d’enregistrement d’électrophysiologie placée sur la platine du microscope. (ÉTAPE CRITIQUE) Veiller à ce que le rhopalium reste constamment immergé dans l’eau de mer pendant et après le transfert. L’exposition à l’air endommagera irréversiblement le prélèvement. - À l’aide d’une pipette de transfert, replacer l’animal dans le réservoir de culture.
REMARQUE : La perte d’un seul rhopalium n’altère pas de manière significative le comportement normal de la méduse cubique ; les animaux conservant au moins un rhopalium continuent d’afficher des comportements normaux d’alimentation et d’interaction avec les faisceaux lumineux. De plus, les rhopalia se régénèrent entièrement, y compris la restauration du signal de pacemaker et des réponses normales des photorécepteurs, dans les deux semaines suivant leur retrait23. L’animal peut être réutilisé lors de séances ultérieures jusqu’à ce que tous les rhopalia aient été retirés. Une fois les quatre rhopalia enlevés, l’animal n’est plus capable de générer de signaux de pacemaker pour la nage ni de contractions de la cloche, et il est éliminé de manière humane par rejet dans l’évier du laboratoire, conformément à la procédure d’élimination des tissus rhopaliaux (étape 6.2.5).
6. Enregistrement
- Positionnement du rhopalium et fixation de l'électrode
- Remplir l'électrode de succion d'enregistrement en aspirant directement l'eau de mer depuis la chambre d'enregistrement dans le capillaire jusqu'à ce que la solution interne atteigne la moitié du fil d'argent. Remplir la micropipette de maintien avec suffisamment d'eau de mer prélevée dans la chambre d'enregistrement pour permettre une adhérence par succion au cristal.
- Monter la micropipette de maintien sur un micromanipulateur. Fixer la pointe de la micropipette de maintien au cristal de sulfate de calcium (CaSO₄) situé à l'extrémité distale du rhopalium en appliquant une légère succion via une seringue Luer-lock. Le cristal fournit un point d'ancrage mécanique solide sans endommager le tissu nerveux.
- À l'aide de la micropipette de maintien, positionner le rhopalium sur le bord de la lame couvre-objet, face à l'écran de projection (Figure 1D).
NOTE : (CRITIQUE) La distance entre l'œil à lentille inférieur et l'écran de projection doit être mesurée et notée, car elle est nécessaire pour calculer l'angle apparent (angle d'acceptation) des caractéristiques de l'image projetée sur l'œil à lentille inférieur à l'aide de :
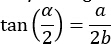
où α est l'angle visuel, a est la largeur de la caractéristique de l'image, et b est la distance entre l'œil à lentille inférieur et l'écran. À une distance de travail de 2 mm, une image projetée de 16 mm × 12 mm (l × h) couvre environ 150° horizontalement et 120° verticalement du champ visuel circulaire de 170° de l'œil à lentille inférieur. La distance de travail doit rester constante pour tous les enregistrements, car toute déviation invaliderait les calculs angulaires des stimuli présentés et empêcherait une comparaison directe entre les enregistrements. - En maintenant la position du rhopalium avec la micropipette de maintien, avancer l'électrode d'enregistrement vers la surface tranchée du pédoncule à l'aide d'un second micromanipulateur.
NOTE : Le nerf épidermique du pédoncule s'étend longitudinalement sur toute la longueur du pédoncule, depuis le point d'attachement du rhopalium jusqu'au nerf en anneau15. Sur la surface tranchée, les terminaisons nerveuses du nerf épidermique bifurqué sont exposées et accessibles au contact de l'électrode sur la face adorale du pédoncule — le côté tourné vers les yeux à lentille (Figure 2B). - Appliquer une légère succion via la seringue Luer-lock jusqu'à l'obtention d'un signal stable.
NOTE : Les terminaisons nerveuses ne sont pas toujours visuellement identifiables sur la surface tranchée. Positionner la pointe de l'électrode sur la région où le nerf épidermique du pédoncule est attendu selon les repères anatomiques et appliquer une légère succion. Une fixation adéquate de l'électrode est indiquée par l'apparition de signaux de pacemaker importants, bien résolus, avec une forme d'onde cohérente à la fréquence attendue de 0,5 à 1 Hz (Figure 5). Les signaux de pacemaker se distinguent des signaux de type potentiel d'action par la durée et la morphologie de la forme d'onde (Figure 2C,D)13,20,24. L'apparition de signaux de pacemaker stables constitue le critère définitif d'un positionnement correct de l'électrode, et non la confirmation visuelle du contact nerveux. Si aucun signal n'est obtenu, relâcher la succion, repositionner légèrement la pointe de l'électrode sur la surface tranchée, puis réappliquer la succion. Une succion excessive risque d'obstruer la pointe avec des débris tissulaires ou d'endommager mécaniquement la terminaison nerveuse. Une perte progressive de l'amplitude du signal et un bruit de fond croissant pendant l'enregistrement indiquent une perte d'étanchéité de l'électrode (Figure 5A). - Laisser le montage s'acclimater pendant au moins 10 minutes après la fixation de l'électrode avant de commencer les enregistrements. Pendant cette période, maintenir l'écran de projection illuminé avec un fond blanc et la barre grise positionnée immobile sur un côté du champ visuel, en dehors du centre.
NOTE : Avant de commencer l'acclimatation, confirmer la réactivité du montage en présentant un stimulus unique de contraste maximal (c ≈ 1,0) ; les rhopaliums qui ne répondent pas sont exclus de l'ensemble de données. La période d'acclimatation permet au montage de se stabiliser après la perturbation mécanique causée par la fixation de l'électrode. Maintenir l'écran blanc avec une barre immobile garantit que les photorécepteurs sont adaptés à la lumière dans les conditions de base qui prévaudront pendant la stimulation visuelle, et que la fréquence de base initiale du pacemaker est stable avant la présentation du premier stimulus. C'est un avantage pratique supplémentaire de l'utilisation d'un logiciel de présentation pour le contrôle des stimuli. Le contenu de l'écran pendant l'acclimatation et entre les enregistrements est directement visible et entièrement contrôlable sans programmation supplémentaire. - Une fois un signal de pacemaker stable établi, optimiser les réglages du filtre passe-bande sur l'amplificateur extracellulaire afin de maximiser le rapport signal/bruit tout en préservant l'amplitude et la morphologie de la forme d'onde du signal, en surveillant l'effet sur l'affichage de l'oscilloscope. Utiliser les réglages initiaux suivants : passe-haut à 1 Hz et passe-bas à 500 Hz ; activer le filtre coupe-bande 50/60 Hz (module intégré EXT-10-2F). Ajuster selon les besoins en fonction du signal observé.
NOTE : Augmenter la fréquence de coupure passe-haut au-delà de 1 Hz atténuera progressivement les composantes à basse fréquence du signal de pacemaker, réduisant son amplitude et compromettant potentiellement la détection du signal. L'amplitude cible du signal après amplification pour des signaux de pacemaker propres et facilement identifiables est de 400 à 600 mV, avec un maximum d'environ 1 V.
- Acquisition des données
- Configurer le VI (fourni en matériel supplémentaire, Fichier Supplémentaire 3) pour acquérir simultanément les canaux suivants via le DAQ à une fréquence d'échantillonnage de 1 kHz :
Canal 1 : Signal électrophysiologique (signal de pacemaker amplifié et filtré provenant de l'EXT-10-2F)
Canal 2 : Sortie analogique TTL générée par LabVIEW vers la souris TTL
Canal 3 : Horodatage analogique TTL Arduino Uno (enregistre la fenêtre de stimulus vérifiée — début défini par le passage au niveau haut du TTL, fin défini par le retour au niveau bas du TTL — tel que détecté par la photodiode surveillant le carré indicateur noir et blanc sur l'écran de l'ordinateur).
NOTE : Le canal 2 enregistre le moment prévu de la délivrance du stimulus, et le canal 3 enregistre la fenêtre réelle du stimulus vérifiée. Le canal 3 doit être utilisé comme enregistrement définitif du chronométrage du stimulus pour toutes les analyses. - Régler la durée d'enregistrement selon le protocole expérimental. Pour une séquence standard de présentation de stimulus composée d'une période de base de 30 s avant le stimulus, d'environ 15 s de stimulation visuelle et d'une période de 35 s après le stimulus, régler la durée totale d'enregistrement à 80 s.
NOTE : Ce protocole utilise généralement 10 réplicats biologiques (rhopaliums), de préférence obtenus à partir de 10 animaux différents, afin d'évaluer l'intensité de la réponse, conformément à Bielecki et al. (2023)14. Dans un même montage, le rhopalium isolé reçoit l'ensemble du protocole de stimulus visuel, présenté séquentiellement du contraste le plus faible au plus élevé ; cet ordre empêche l'animal de s'habituer à l'absence de conséquence aversive à contraste élevé, ce qui pourrait sinon réduire la réactivité aux stimuli de contraste inférieur présentés ultérieurement. Les enregistrements successifs sont initiés à des intervalles fixes de 2 minutes, ce qui donne un intervalle de 105 s entre la fin d'une période de stimulus et le début du suivant (suffisant pour que la fréquence du pacemaker revienne à la base avant le stimulus suivant). Aucun réplicat technique n'est effectué ; chaque rhopalium reçoit une seule présentation par niveau de contraste dans sa séquence de stimuli. - Le VI LabVIEW (fourni en matériel supplémentaire, Fichier Supplémentaire 3) génère automatiquement une impulsion TTL à partir du DAQ vers la souris TTL au moment approprié dans la séquence d'enregistrement, faisant avancer la diapositive et initiant le début du stimulus visuel. Enregistrer les données acquises sous forme de fichier .txt délimité par des tabulations. Lors de l'utilisation du VI fourni, les métadonnées d'enregistrement sont encodées manuellement dans le nom du fichier au moment de l'enregistrement.
NOTE : Il est recommandé aux utilisateurs d'établir une convention de nommage cohérente avant de commencer les enregistrements. Un identifiant de montage est un code unique (par exemple, un numéro d'animal ou de session) permettant de retracer un enregistrement donné jusqu'au rhopalium et à la session expérimentale spécifiques dont il provient. Le schéma exact de nommage est laissé à la préférence de l'expérimentateur, à condition qu'il soit systématique et permette de retrouver sans ambiguïté tout enregistrement à son montage correspondant — par exemple, un nom de fichier pourrait combiner la date et l'heure de l'enregistrement avec les paramètres de stimulus pertinents (par exemple, niveau de contraste, dimensions de la barre, vitesse). - Après la fin de tous les enregistrements pour un rhopalium donné, éliminer le tissu du rhopalium par élimination standard dans l'évier du laboratoire.
NOTE : Il est recommandé aux utilisateurs d'établir une convention de nommage cohérente avant de commencer les enregistrements. Un nom de fichier systématique incluant la date, l'identifiant du montage et la condition de stimulus est suffisant pour l'analyse ultérieure. Le logiciel de présentation est préféré aux stimuli visuels générés par LabVIEW pour deux raisons pratiques : premièrement, il garantit que l'image projetée sur l'œil à lentille inférieur entre les enregistrements est connue et contrôlée à tout moment, évitant ainsi une stimulation visuelle involontaire par les interfaces logicielles ou les écrans du système ; deuxièmement, il élimine le risque de noir total entre les sessions d'enregistrement, ce qui provoquerait une réponse d'extinction de la lumière dans les photorécepteurs et introduirait une activité de pacemaker parasite dans la période de base suivante. La taille angulaire perçue et la vitesse de la barre varient de manière non linéaire à travers le champ visuel en raison de la géométrie de l'œil à lentille. Cette non-linéarité n'est pas corrigée pour deux raisons : premièrement, les animaux en nage libre n'approchent pas les obstacles à vitesse ou direction constante, ce qui rend la correction angulaire peu pertinente du point de vue naturaliste ; deuxièmement, corriger la taille angulaire nécessiterait des changements dans la luminance globale de l'écran, ce qui déclencherait la réponse lumière ON/OFF impliquée dans la détection des faisceaux lumineux de mangrove.
- Configurer le VI (fourni en matériel supplémentaire, Fichier Supplémentaire 3) pour acquérir simultanément les canaux suivants via le DAQ à une fréquence d'échantillonnage de 1 kHz :
7. Analyse des données
- Discrimination du signal du pacemaker dans Igor Pro
NOTE : Les signaux du pacemaker de nage sont discriminés des signaux de type potentiel d'action dans l'enregistrement électrophysiologique brut avant l'analyse de fréquence. Ces deux types de signaux peuvent apparaître simultanément pendant l'enregistrement et doivent être distingués avant d'extraire les données temporelles du pacemaker. Des exemples représentatifs des deux types de signaux et de leurs caractéristiques morphologiques distinctives sont fournis dans Figure 2C,D.- Importer le fichier de données .txt dans Igor Pro (version 6.37 ou ultérieure) à l’aide du plugin Neuromatic (version 2.00).
- Discriminer les signaux du pacemaker de nage des signaux de type potentiel d’action en fonction de la durée du signal et de la morphologie de l’onde.
NOTE : Les signaux du pacemaker de nage présentent une durée caractéristique d’environ 45 ms et une morphologie d’onde composée reflétant l’activité sommée de plusieurs neurones pacemakers. Les signaux de type potentiel d’action ont une durée plus courte d’environ 10 ms et une forme d’onde plus aiguë et unitaire. L’amplitude du signal seule ne constitue pas un critère de discrimination fiable, car les deux types de signaux peuvent atteindre des amplitudes comparables24 (Figure 2C,D). Une figure représentative illustrant les caractéristiques morphologiques distinctives des signaux du pacemaker de nage et des signaux de type potentiel d’action est fournie (Figure 2C,D). Les utilisateurs sont encouragés à se familiariser avec les deux types de signaux avant l’analyse, car une mauvaise identification introduirait des erreurs dans l’estimation de la fréquence du pacemaker. Les caractéristiques morphologiques des signaux sont cohérentes au sein d’une même préparation, mais peuvent varier légèrement entre différentes préparations ; les critères de discrimination doivent donc être évalués pour chaque préparation individuellement, en utilisant les caractéristiques morphologiques décrites ci-dessus comme guide général plutôt que comme seuils universels fixes. Pour les formes d’onde ambiguës ou intermédiaires qui ne peuvent pas être classées avec certitude, résoudre l’ambiguïté dans le sens opposé au résultat attendu ou hypothétisé — par exemple, exclure un événement ambigu si un nombre plus élevé de signaux soutiendrait l’hypothèse testée, ou l’inclure si un nombre plus faible la soutiendrait — afin d’éviter de surestimer la force apparente du résultat. - Extraire l’horodatage de chaque signal du pacemaker de nage identifié afin d’obtenir une série temporelle des événements du pacemaker pour chaque enregistrement, puis exporter ces horodatages (par exemple vers un tableur ou un fichier .csv) pour une analyse statistique ultérieure.
- Analyse de fréquence
- Calculer la fréquence du signal du pacemaker comme l’inverse de l’intervalle entre les signaux sur l’ensemble de l’enregistrement.
- Évaluer l’effet du stimulus visuel en comparant la fréquence du pacemaker pendant la période de référence avant le stimulus, la période de stimulus et la période post-stimulus, en utilisant les horodatages des signaux du pacemaker corrigés pour le délai entre la commande TTL enregistrée par LabVIEW (Canal 2) et le début vérifié du stimulus par Arduino (Canal 3).
NOTE : L’œil inférieur réagit au stimulus selon le timing du TTL vérifié, et non selon la commande enregistrée par le logiciel ; par conséquent, l’heure de début vérifiée de chaque enregistrement est exportée avec les horodatages bruts du pacemaker et du TTL vers un tableur (Tableau Supplémentaire 1) et utilisée directement par le script d’analyse SAS pour classer chaque signal du pacemaker dans sa fenêtre pré-stimulus, stimulus ou post-stimulus (Figure 6) ; aucune modification des horodatages n’est effectuée à l’étape du tableur. En conditions de base non perturbées, la fréquence du signal du pacemaker est de 0,5 à 1 Hz. Les réponses d’évitement d’obstacles induites par un stimulus visuel au-dessus du DTT se caractérisent par une augmentation de la fréquence du pacemaker à 2–3 Hz. Le maximum physiologique est d’environ 4 Hz, correspondant à un intervalle minimal entre signaux de 250–280 ms25. Étant donné que la fréquence de base du pacemaker varie entre les préparations, les valeurs de fréquence de chaque enregistrement sont normalisées par rapport à la fréquence moyenne propre à cet enregistrement, calculée à partir des périodes pré-stimulus et post-stimulus (en excluant la période de stimulus elle-même). Cette normalisation permet de comparer l’amplitude de la réponse entre différentes préparations, indépendamment des différences de fréquence de base du pacemaker. Les procédures statistiques complètes pour évaluer la significativité de la réponse, y compris le modèle non linéaire utilisé pour comparer les périodes de base, de stimulus et post-stimulus, sont décrites dans Bielecki et al. (2023)14 ; le code d’analyse SAS correspondant est disponible à l’adresse doi : 10.17632/csgymw8kjk.1. Un exemple représentatif de flux d’analyse, depuis le signal brut jusqu’à la discrimination, au calcul et à la normalisation de la fréquence, puis à la métrique finale de réponse, est fourni dans Figure 7.
- Évaluer l’effet du stimulus visuel en comparant la fréquence du pacemaker pendant la période de référence avant le stimulus, la période de stimulus et la période post-stimulus, en utilisant les horodatages des signaux du pacemaker corrigés pour le délai entre la commande TTL enregistrée par LabVIEW (Canal 2) et le début vérifié du stimulus par Arduino (Canal 3).
- Calculer la fréquence du signal du pacemaker comme l’inverse de l’intervalle entre les signaux sur l’ensemble de l’enregistrement.
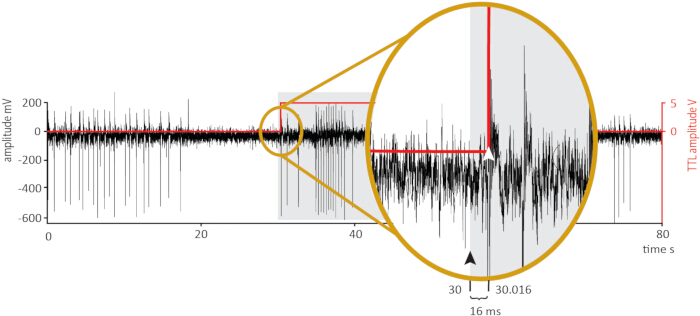
Figure 6 : Démonstration représentative de la correction du timestamp du stimulateur cardiaque pour une synchronisation validée par stimulus. Enregistrement type illustrant le délai entre la commande TTL enregistrée par le VI et le début du stimulus validé par l'Arduino, vérifié individuellement pour chaque enregistrement à l’aide de la chaîne temporelle Arduino/photodiode et exporté dans un tableur (Tableau Supplémentaire 1) pour une utilisation directe par le script d’analyse SAS afin de classer chaque horodatage du signal du stimulateur cardiaque dans la fenêtre pré-stimulus, stimulus ou post-stimulus. Tracé noir (axe des y gauche) : signal électrophysiologique (mV). Tracé rouge (axe des y droit) : amplitude TTL (V). La zone grise ombrée indique la fenêtre de stimulation nominale telle qu’horodatée par la commande TTL enregistrée par le logiciel. Inset : vue agrandie du début du signal TTL. La flèche noire indique l’heure d’envoi de la commande TTL enregistrée par LabVIEW (t = 30,000 s, Canal 2) ; la flèche blanche indique le début du stimulus validé détecté via la chaîne Arduino/photodiode (t = 30,016 s, Canal 3). L’intervalle de 16 ms illustré constitue un exemple représentatif parmi ceux situés dans la plage <20 ms rapportée pour le déclenchement automatique du dispositif TTL-mouse (Résultats). Étant donné que ce délai est constant au sein d’un enregistrement donné, la transition de décalage correspondante n’est pas illustrée séparément. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
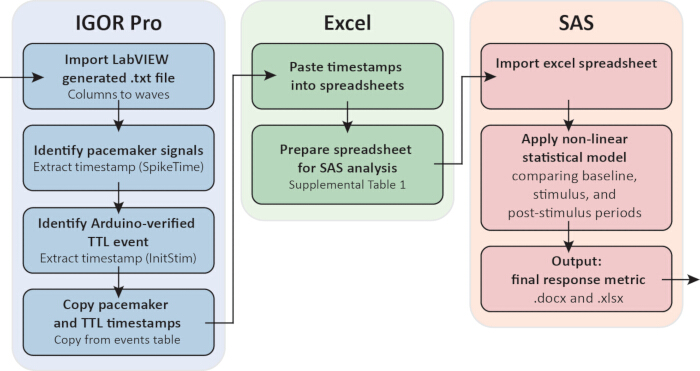
Figure 7 : Exemple de flux de travail d'analyse, depuis l'enregistrement brut jusqu'au paramètre final de réponse. Le signal du stimulateur cardiaque et les horodatages TTL sont extraits du tableau d'événements d'Igor Pro/Neuromatic : les événements du signal du stimulateur cardiaque sont identifiés par leur durée et leur morphologie d'onde (étape 7.1.2), et l'activation du stimulus validée par Arduino (InitStim, canal 3) est extraite pour chaque enregistrement sous forme d'horodatage absolu, et non de délai calculé. Ces horodatages sont copiés dans un tableur (Tableau Supplémentaire 1), qui est préparé pour l'analyse avec SAS en calculant l'intervalle inter-impulsions (Intval) et l'horodatage médian (MidTime) pour chaque événement du signal du stimulateur cardiaque. SAS importe le tableur préparé et applique un modèle statistique non linéaire (Bielecki et al., 202314) comparant la fréquence du stimulateur cardiaque pendant les périodes pré-stimulus, stimulus et post-stimulus, classées par rapport à l'activation du stimulus validée pour chaque enregistrement, afin de produire le paramètre final de réponse (résumé au format .docx, tableaux de données au format .xlsx). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Résultats
Qualité du signal et activité spontanée du pacemaker
Après une fixation réussie de l'électrode sur le nerf du pédoncule épidermique sectionné, des signaux spontanés de pacemaker doivent apparaître immédiatement sur l'oscilloscope. Un enregistrement de haute qualité se caractérise par des signaux de pacemaker importants et bien résolus, d'une amplitude post-amplification de 400–600 mV, survenant à une fréquence spontanée stable de 0,5–1 Hz, sur une ligne de base à faible bruit (déviation crête d'environ 10–15 mV de chaque côté du zéro, correspondant à un rapport signal-sur-bruit d'environ 27–40:1 dans la plage d'amplitude cible) (Figure 5B). Des enregistrements dont l'amplitude du signal est aussi faible que 100 mV peuvent être analysés, mais ils augmentent considérablement le temps de discrimination du signal dans Igor Pro et ne sont pas recommandés, en particulier pour les opérateurs inexpérimentés. La morphologie de l'onde composée du signal de pacemaker, reflétant l'activité sommée de plusieurs neurones trmOC, le distingue des signaux plus courts et plus pointus, de type potentiel d'action, qui peuvent également être présents dans l'enregistrement24 (Figure 2C,D). Comme décrit à l'étape 7.1, ces deux types de signaux doivent être discriminés avant l'analyse selon la durée du signal (~45 ms pour les signaux de pacemaker contre ~10 ms pour les signaux de type potentiel d'action) et la morphologie de l'onde. L'amplitude seule ne constitue pas un critère de discrimination fiable. La discrimination des signaux dans ce protocole a été effectuée par un seul opérateur expérimenté ; des statistiques formelles de fiabilité inter-observateurs n'ont donc pas été calculées (voir Discussion, Limitations).
Réponse du pacemaker induite par stimulation visuelle
Dans une préparation saine et réactive, la présentation d'un stimulus en forme de barre verticale en mouvement au-dessus du DTT vers l'œil de l'objectif inférieur produit une réponse claire du pacemaker, verrouillée dans le temps. La fréquence du signal du pacemaker augmente jusqu'à 2–3 Hz, coïncidant avec le passage du bord avant de l'obstacle au centre du champ visuel, puis revient vers la fréquence de base après la fin du stimulus14 (Figure 5B). Le moment de début du stimulus a été vérifié à l'aide de la chaîne de synchronisation Arduino/photodiode (étape 3.3), plutôt que de se fier au timestamp indiqué par LabVIEW. Lorsqu'une souris TTL est utilisée pour faire avancer le logiciel de présentation, la plage vérifiée est <20 ms ; avec un déclenchement manuel (un opérateur cliquant sur une souris non modifiée synchronisée avec le début souhaité), la plage vérifiée est de 100–150 ms. Étant donné que l'analyse de la réponse utilise le début vérifié (canal 3) plutôt que le déclencheur indiqué par le logiciel (canal 2), cette plage n'affecte pas la quantification de la réponse, quel que soit le mode de déclenchement utilisé. Cette augmentation de fréquence constitue le corrélat électrophysiologique du comportement d'évitement d'obstacle observé chez les animaux nageant librement, et sa présence confirme à la fois la viabilité de la préparation et l'alignement optique correct de l'œil de l'objectif inférieur par rapport à l'écran de projection.
L'amplitude de la réponse du stimulateur cardiaque est évaluée à l'aide de la fréquence instantanée du signal, calculée comme l'inverse de l'intervalle inter-signal entre deux événements consécutifs du stimulateur cardiaque. Cette approche nécessite au minimum deux signaux consécutifs du stimulateur cardiaque pour établir une valeur de fréquence, offrant ainsi une protection intrinsèque contre la détection de réponses faussement positives à partir de signaux isolés uniques.
Le contraste du stimulus de barre mobile détermine l'amplitude de la réponse évoquée. Dans Bielecki et al. (2023)14, trois niveaux de contraste ont été utilisés (c = 0,20, 0,40 et 0,80), espacés d'un diaphragme entier. Ces valeurs spécifiques de contraste ont été choisies afin de maintenir la durée totale du protocole dans la fenêtre d'enregistrement viable d'environ 1 h. Les chercheurs qui étudient les limites de sensibilité au contraste de l'œil à lentille inférieure, ou d'autres propriétés spécifiques de la réponse visuelle, doivent sélectionner des niveaux de contraste adaptés à leur question expérimentale, plutôt que d'adopter ces valeurs de manière prescriptive.
Enregistrements sous-optimaux et modes de défaillance
En pratique, environ 90 % (9 sur 10) des préparations satisfaisant au critère de viabilité d'acclimatation (étape 6.1.6) permettent d'obtenir une activité spontanée stable et une réponse évoquée visuelle mesurable ; cette proportion dépend fortement de l'expérience de l'opérateur. Les préparations restantes échouent le plus souvent pour l'une des raisons suivantes : le mode d'échec le plus fréquent est la perte progressive du scellement de l'électrode au cours de la session d'enregistrement. Ce phénomène se manifeste par une réduction progressive à la fois de l'amplitude du signal du pacemaker et du niveau de bruit de fond, reflétant une dégradation du contact électrique entre la pointe de l'électrode et l'extrémité nerveuse (Figure 5A). Si ce type de profil est observé, la succion doit être relâchée puis réappliquée après un léger repositionnement de la pointe de l'électrode sur la surface du pédoncule sectionné. Si l'amplitude du signal ne se rétablit pas, la viabilité de la préparation doit être évaluée en recherchant une activité spontanée du pacemaker. L'absence totale de signal après plusieurs tentatives de reconnexion, dans une préparation isolée depuis plus de 1 h, reflète très probablement une détérioration de la préparation plutôt qu'une défaillance de l'électrode, et une nouvelle préparation doit être utilisée.
Un deuxième mode de défaillance est l'absence de réponse évoquée visuellement malgré une activité spontanée de pacemaker stable. Cela devrait inciter à réévaluer la configuration optique avant de conclure que le prélèvement est inactif. Les causes les plus fréquentes sont un mauvais alignement de l'œil à lentille inférieure par rapport à l'écran de projection et une saturation des photorécepteurs due à un excès d'irradiance. La procédure d'étalonnage biologique décrite à l'étape 4.1.5 doit être répétée, et l'atténuation du filtre de densité neutre augmentée si nécessaire. Il convient également de vérifier que le stimulus de la barre en mouvement reste dans le champ visuel tout au long de son déplacement, car la sortie du stimulus du champ visuel provoquerait une réponse d'extinction de la lumière et introduirait une activité de pacemaker parasite dans l'enregistrement.
Un troisième motif — un bruit de fond élevé masquant les signaux du stimulateur cardiaque — reflète le plus souvent un problème de mise à la terre ou une interférence secteur. La configuration de mise à la terre en étoile décrite à l'étape 3.2.1 doit être vérifiée, et le filtre coupe-bande 50/60 Hz doit être activé.
Fichier supplémentaire 1 : Programme Arduino. Met en œuvre une détection de l'apparition du stimulus basée sur une photodiode : l'Arduino Uno échantillonne la photodiode, surveillant à 1 kHz le carré indicateur noir et blanc affiché sur l'écran de présentation (étape 1.4.2), convertit le signal analogique brut en une impulsion numérique TTL propre au moyen d'une comparaison par seuil, puis émet cette impulsion comme signal validé de chronométrage du stimulus (canal 3, étape 6.2.1).Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 2 : Exemple de fichier de stimulus. Exemple de fichier provenant d'un logiciel de présentation (Keynote) mettant en œuvre le stimulus visuel de barre mobile sous la forme d'une animation d'objet continu unique et d'un carré indicateur noir et blanc pour la vérification du chronométrage (étape 1.4). Les lecteurs concevant leurs propres séquences de stimulus doivent s'assurer que l'affichage reste stable pendant une période d'adaptation suffisante avant chaque début de stimulus ; la boucle de rétroaction photodiode/Arduino (étape 3.3) vérifie le chronométrage réel du stimulus, indépendamment du logiciel de présentation ou de la conception des diapositives utilisés.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 3 : Instrument virtuel LabVIEW (VI). Configurez le DAQ NI USB-6343 avec deux canaux d'entrée analogique — AI0 (signal électrophysiologique provenant de l'amplificateur) et AI1 (TTL de début du stimulus vérifié par Arduino, signal de rétroaction du photodiode) — et un canal de sortie analogique, AO0, qui délivre une impulsion TTL à la souris TTL au moment programmé du stimulus afin d'avancer la diapositive du logiciel de présentation. Le fichier .txt résultant enregistre trois colonnes : le signal électrophysiologique (AI0), l'horodatage enregistré par LabVIEW de la commande de déclenchement AO0 (un enregistrement logiciel, et non un signal réacquis), et le TTL vérifié par Arduino (AI1).Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Format du fichier d'entrée SAS. Définitions des colonnes et exemple détaillé pour le tableur téléchargé dans SAS afin d'effectuer l'analyse statistique (étape 7.2.1). Quatre horodatages consécutifs de signaux de stimulateur cardiaque, provenant d'un enregistrement représentatif, illustrent le calcul de l'intervalle interimpulsion (Intval) et de l'horodatage médian (MidTime) utilisés dans le calcul de la fréquence ; le dernier événement listé ne comporte pas de valeur Intval/MidTime, car aucun horodatage ultérieur n'existe pour compléter l'intervalle.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Plusieurs étapes de ce protocole sont essentielles pour obtenir des enregistrements fiables. La plus déterminante est la fabrication et la préparation de l'électrode de succion. Bien que toute électrode optimisant le rapport signal-sur-bruit soit acceptable pour des enregistrements standards de pacemaker évoqués visuellement, une résistance attachée d'environ 1 MΩ devient particulièrement critique lorsque le montage est utilisé pour délivrer un stimulus électrique inconditionné, car elle est nécessaire au calcul du courant délivré14. Pour les seuls besoins d'enregistrement, le critère principal est la qualité du signal plutôt qu'une valeur de résistance spécifique.
Tout aussi critique est l'étalonnage biologique du système optique avant de commencer les enregistrements (étape 4.1.5). Étant donné que la sortie du projecteur, la configuration de l'objectif et la réflectance de l'écran interagissent pour déterminer l'irradiance effective au niveau de l'œil inférieur de l'objectif, aucune valeur universellement applicable d'irradiance ne peut être précisée. L'étalonnage biologique (utilisant la réponse en fréquence du pacemaker à un stimulus de contraste maximal comme critère de la plage dynamique des photorécepteurs) fournit une méthode auto-validée, indépendante du matériel, pour établir une intensité de stimulus appropriée. Cette étape ne doit pas être omise, car la saturation des photorécepteurs due à une irradiance excessive abolira les réponses du pacemaker induites par stimulation visuelle et pourrait être interprétée à tort comme une préparation non réactive.
Il est essentiel de maintenir l'immergence du rhopalium pendant toute la durée de l'isolement et du transfert. Le système nerveux rhopalien est extrêmement sensible à la dessiccation, et une exposition brève à l'air peut endommager irréversiblement le prélèvement. Toutes les étapes de transfert doivent être effectuées en présence d'eau de mer, et la chambre d'enregistrement doit être remplie d'eau de mer du réservoir filtrée à 0,20 µm avant l'introduction du rhopalium.
Enfin, le positionnement des électrodes sur la surface du pédoncule sectionné exige de la patience. Les terminaisons nerveuses épidermiques du pédoncule ne sont pas toujours visuellement identifiables, et un positionnement correct doit être confirmé par l'apparition de signaux spontanés de pacemaker sur l'oscilloscope.
La cause la plus fréquente d'échec d'enregistrement est la perte du scellement de l'électrode pendant la séance. Pour minimiser ce risque, tous les protocoles doivent être réalisés dans l'heure suivant l'isolement du rhopalium. La limite d'une heure recommandée ici constitue un choix pratique prudent, reflétant l'attente générale selon laquelle une préparation neuronale isolée, déconnectée du reste de l'animal, ne peut être considérée comme restant pleinement représentative d'une fonction physiologique intacte indéfiniment, même lorsque l'activité de pacemaker persiste. Les rhopalia isolés restent viables, au sens où ils génèrent des signaux de pacemaker détectables, pendant une durée nettement supérieure à la fenêtre d'enregistrement utilisée dans ce protocole, jusqu'à environ 5 h après l'isolement ; toutefois, il n'a pas été systématiquement établi si les réponses enregistrées tardivement au cours de cette période restent pleinement représentatives d'une préparation intacte, et la limite de 1 h est utilisée comme une marge de sécurité prudente plutôt qu'un seuil précisément défini. La perte progressive du scellement de l'électrode constitue un mode de défaillance technique distinct et facilement identifiable, et représente la cause la plus fréquente de perte de signal au cours d'une seule séance d'enregistrement (voir ci-dessous), mais cela n'exclut pas une contribution de l'état de la préparation à des modifications plus subtiles de la réponse dans le temps. Si une perte de scellement survient pendant un enregistrement, la succion peut être relâchée, l'électrode repositionnée sur la surface du pédoncule sectionné, puis la succion réappliquée. Toutefois, si la préparation a été isolée depuis plus d'une heure, il est préférable de commencer une nouvelle préparation plutôt que d'investir du temps à résoudre les problèmes d'une préparation en déclin.
Les paramètres de filtrage doivent être considérés comme des points de départ plutôt que comme des paramètres fixes. Les valeurs des filtres passe-bande indiquées dans ce protocole (passe-haut à 1 Hz, passe-bas à 500 Hz, réjection à 50/60 Hz) sont celles qui optimisent le rapport signal sur bruit dans l’environnement d’enregistrement des auteurs. Les laboratoires confrontés à des niveaux différents d’interférences électriques ou utilisant des modèles d’amplificateurs différents peuvent devoir ajuster empiriquement ces paramètres via les commandes de l’amplificateur, tout en surveillant le signal sur l’affichage de l’oscilloscope au début de chaque session.
Si une activité spontanée de pacemaker est absente après la fixation de l'électrode, il convient d'évaluer la préparation avant de diagnostiquer un problème lié à l'électrode. Un rhopalium isolé sain présente des signaux spontanés de pacemaker à une fréquence de 0,5 à 1 Hz, quelques minutes après la fixation de l'électrode. L'absence d'activité spontanée reflète le plus souvent un dommage de la préparation survenu lors de l'isolement ou du transfert, plutôt qu'une défaillance de l'électrode. Inversement, si une activité spontanée est présente mais qu'aucune réponse évoquée visuellement n'est obtenue, l'étalonnage optique doit être répété avant de conclure que la préparation est inréactive.
Pour les laboratoires adaptant ce protocole à différents matériels, la chaîne de vérification du chronométrage utilisant la souris TTL et l'Arduino Uno décrite à l'étape 3.3 peut être remplacée par tout système fournissant un enregistrement matériel, indépendant du logiciel, de la fenêtre de stimulation, acquis de manière synchrone avec l'enregistrement électrophysiologique. La mise en œuvre spécifique décrite ici a été conçue pour relier l'environnement d'acquisition LabVIEW sur un PC au logiciel de présentation sur un ordinateur distinct, et reflète une solution pratique à un défi courant d'intégration entre plates-formes. Le principe fondamental selon lequel les déclencheurs logiciels seuls sont insuffisants pour une analyse précise du chronométrage entre la stimulation et la réponse s'applique indépendamment de la plate-forme matérielle utilisée.
La limitation principale de la préparation de rhopalium isolé est qu'elle permet l'enregistrement à partir d'un seul rhopalium en isolation. Chez l'animal intact, les quatre rhopalia sont reliés par le nerf en anneau15 et leurs sorties sont intégrées pour produire un comportement de nage coordonné. La communication entre rhopalia n'est pas accessible dans cette préparation. Toutefois, pour l'étude du traitement de l'information visuelle au sein d'un système nerveux rhopalial unique, cette isolation constitue un avantage plutôt qu'un inconvénient. Elle élimine l'influence perturbatrice des entrées provenant d'autres rhopalia et permet de caractériser complètement les propriétés de réponse visuelle d'un seul SNC.
L'isolement du rhopalium exclut également le contexte sensoriel multimodal au-delà du rhopalium lui-même ; les chimiorécepteurs présumés décrits anatomiquement à sa surface17 n'ont pas été fonctionnellement associés à la réponse du pacemaker, de sorte que le signal peut raisonnablement être interprété comme un indicateur du traitement visuel, largement dépourvu d'entrées non visuelles. Une limitation plus fondamentale est que l'enregistrement extracellulaire du nerf du pédoncule capte uniquement le signal intégré de sortie motrice trmOC. Les contributions individuelles des sous-OC au traitement visuel ne peuvent pas être résolues électrophysiologiquement ; cela nécessite des approches d'imagerie in vivo à résolution spatiale. La méthode électrophysiologique décrite ici constitue donc une mesure de la commande motrice intégrée finale, et non des étapes intermédiaires du traitement au sein du SNC.
Cela a une conséquence pratique importante : le protocole d'électrophysiologie du rhopalium isolé n'est pas une méthode autonome. Il est impératif d'effectuer une analyse comportementale sur l'animal entier avant de concevoir des expériences avec le rhopalium isolé, afin d'identifier quels stimuli visuels déclenchent des comportements modifiant la fréquence des contractions de la cloche. Les comportements qui ne provoquent pas de changement dans la fréquence du signal du pacemaker ne peuvent pas être évalués à l'aide de cette approche. Le signal électrophysiologique mesure spécifiquement la sortie motrice de la nage, et les plans expérimentaux doivent s'appuyer sur une caractérisation comportementale préalable afin de s'assurer que les stimuli choisis influencent cette sortie.
Le taux de réussite de l'enregistrement et la classification des signaux dépendent tous deux de l'expérience de l'opérateur. Environ 90 % des préparations satisfaisant au critère de viabilité d'acclimatation (étape 6.1.6) produisent une activité spontanée stable et une réponse évoquée visuellement mesurable entre les mains d'un opérateur expérimenté ; cette proportion devrait être plus faible au début de la courbe d'apprentissage. La discrimination des signaux entre les formes d'onde de type pacemaker et celles ressemblant à des potentiels d'action (étape 7.1.2) a été effectuée par un seul opérateur expérimenté dans cette étude ; comme la mesure formelle de la fiabilité inter-observateurs nécessite plusieurs observateurs indépendants, il n'a pas été possible de calculer une statistique d'accord inter-observateurs. La cohérence interne a plutôt été assurée en comparant les formes d'onde ambiguës à un signal d'identité connue au sein du même enregistrement, généralement une réponse évoquée à contraste maximal.
Les choix matériels et logiciels décrits dans ce protocole — un objectif de projecteur modifié, une souris TTL personnalisée, la chaîne de synchronisation Arduino, et LabVIEW/Igor Pro/SAS — reflètent l'équipement et les compétences déjà disponibles dans le laboratoire des auteurs, et non une exigence de la méthode. L'objectif de projecteur a été modifié parce que la configuration standard ne répondait pas aux exigences du montage. La souris TTL fait office de relais entre l'ordinateur de stimulation et l'ordinateur d'acquisition : LabVIEW envoie une impulsion TTL à la souris et enregistre l'heure d'envoi (canal 2), et le clic de la souris déclenche la génération du stimulus via USB. Étant donné que le délai entre cet événement enregistré et le changement réel sur l'écran est variable, une chaîne indépendante composée d'une photodiode et d'Arduino vérifie l'apparition réelle du stimulus et renvoie une seconde impulsion TTL vers la DAQ (canal 3) ; une alternative commerciale à la souris pourrait exister, mais les auteurs n'en ont pas connaissance. Aucun de ces composants matériels ne nécessite de compétences particulières en fabrication ni un coût élevé, et tout système d'acquisition de remplacement doit simplement satisfaire à la même exigence d'échantillonnage multi-canal synchronisé à 1 kHz, ainsi qu'aux compétences électroniques ou de programmation associées. À une exception près : la personnalisation d'un amplificateur analogique adapté requiert des compétences en conception de circuits bas bruit que l'on ne suppose pas acquises chez le lecteur.
T. cystophora allie la sophistication visuelle de systèmes génétiquement accessibles tels que Drosophila et le poisson-zèbre à la traçabilité au niveau des circuits de systèmes numériquement simples comme C. elegans : le système nerveux rhopalial comprend environ 1000 neurones, contre environ 200 000 dans le cerveau de Drosophila1 et 302 dans l'ensemble du système nerveux de C. elegans2. Un autre avantage de ce système réside dans sa hiérarchie sensorielle : T. cystophora possède plusieurs modalités sensorielles, notamment la mécanoréception (implication fonctionnelle démontrée dans l'apprentissage associatif14) et une chimioréception présumée (décrite anatomiquement mais non démontrée fonctionnellement17), en plus de la vision. Toutefois, dans la préparation isolée du rhopalium, seule la vision a été fonctionnellement démontrée comme déclenchant la réponse du pacemaker évaluée par ce protocole, permettant d'interpréter le signal comme un indicateur relativement exempt de confusion du traitement visuel, sans la complexité d'interprétation qui surgit lorsque plusieurs sens actifs simultanés influencent conjointement une réponse comportementale. Les stimuli visuels peuvent être précisément définis en termes d'espace, de temps et de contraste, tandis que le signal du pacemaker peut être utilisé comme un indicateur quantitatif de la sortie motrice induite par la vision, pertinent pour le comportement de l'animal entier14.
Au-delà de l'électrophysiologie visuelle, le prélèvement de rhopalium isolé a été appliqué avec succès à l'investigation pharmacologique du SNC par des dosages de neurotransmetteurs et de neuromodulateurs ajoutés au bain, permettant d'identifier les systèmes de transmetteurs qui modulent la sortie du pacemaker24. Ce prélèvement est également compatible avec les approches d'imagerie calcique et d'imagerie de voltage. Des travaux préliminaires non publiés réalisés dans le laboratoire des auteurs, utilisant un indicateur calcique perméant aux cellules, confirment la faisabilité de l'imagerie calcique avec ce prélèvement ; l'imagerie de voltage n'a pas encore été testée. Ces approches pourraient tester directement l'architecture du réseau subOC–trmOC elle-même, qui reste un modèle opérationnel, et offriraient la résolution spatiale nécessaire pour analyser séparément l'activité des subOC et des trmOC durant une stimulation visuelle, une capacité que l'enregistrement extracellulaire seul ne peut pas fournir. Ensemble, ces approches complémentaires établissent le rhopalium isolé de T. cystophora comme un prélèvement particulièrement accessible pour des études au niveau des systèmes du traitement visuel et de l'intégration sensorimotrice dans un système nerveux de complexité définie et limitée.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun intérêt concurrentiel.
Remerciements
Les auteurs remercient Dan-eric Nilsson pour l'utilisation de l'image du rhopalium (Figure 1B), l'assistance technique fournie par Mathias Hoppe, Ingo Klein, Olaf Wendt et Holger Voigt (Université de Kiel), ainsi que l'aide des membres du groupe Biologie Sensorielle (Université de Copenhague) pour l'entretien des cultures. Financé par la Deutsche Forschungsgemeinschaft (DFG, Fondation allemande pour la recherche) – Identifiant du projet 567357102 (J.B.)
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Boîte de Pétri de 35 mm | Nunc | 153066 | Toute boîte de Pétri équivalente convenant à l'usage |
| Arduino Uno | Arduino | — | Convertit le signal de la photodiode en TTL pour la vérification du moment des stimuli ; fréquence de rafraîchissement de 1 kHz |
| Lentille biconvexe f = 30 mm | Linos | G063-022-000 | Remplace la lentille du fabricant ; focalise l'image sur la paroi de l'écran de projection de la chambre d'enregistrement |
| Tube capillaire en verre borosilicaté, diamètre intérieur 1,16 mm × diamètre extérieur 2,00 mm × longueur 80 mm | Science Products | GB200-8P | Pour la fabrication de l'électrode de succion |
| Pipette jetable de transfert | Sarstedt | 86.1171 | Extrémité coupée pour obtenir une ouverture d'environ 8 mm, utilisée pour le transfert de l'animal |
| Support d'électrode PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | Support de type BNC avec orifice de succion ; fourni avec un fil d'argent d'environ 0,25 mm |
| Amplificateur extracellulaire EXT-10-2F | NPI Electronic | — | Amplificateur différentiel couplé en alternatif ; préamplificateur ×10, amplificateur principal ×100, gain total ×1000 ; filtre passe-bande intégré : passe-haut à 1 Hz, passe-bas à 500 Hz ; filtre coupe-bande 50/60 Hz activé ; fourni avec bras de support du préamplificateur |
| Couvre-objet de compteur sanguin de 20 mm × 26 mm | Carl Roth | L 189 | Repose sur les rebords du couvre-objet par flottabilité négative ; plus robuste que les couvre-objets standards |
| Igor Pro 6.37 | WaveMetrics Inc. | Version 6.37 | Lake Oswego, OR, États-Unis ; pour l'analyse des signaux du pacemaker |
| LabVIEW 2016 | National Instruments | Version 2016 | Logiciel de contrôle d'acquisition et de stimuli ; le VI est fourni en matériel supplémentaire |
| Seringue à raccord Luer-lock | — | — | Générique ; toute seringue de laboratoire standard à raccord Luer-lock convient |
| Microforge MF-2 | Narishige | — | Pour le polissage de la pointe de l'électrode (Option A) |
| Micromanipulateur MM33 | Märzhäuser Wetzlar | 00-42-101-0000 (droit) / 00-42-102-0000 (gauche) | Manuel, trois axes ; deux nécessaires (pour la pipette de maintien et l'électrode d'enregistrement) |
| Tireur de micropipettes Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Programme de tirage : Ligne 1×1 : chauffage 535, traction 0, vitesse 12, durée 200, pression 600, rampe 540 ; Lignes 2–4 × 3 : chauffage 532, traction 0, vitesse 12, durée 100 |
| Module complémentaire Neuromatic v2.00 | — | Version 2.00 | Pour Igor Pro ; discrimination des signaux du pacemaker et extraction des horodatages |
| Filtre neutre | Thorlabs | NE10A | Transmission de 10 % ; l'atténuation doit être validée empiriquement par étalonnage biologique (étape 4.1) |
| DAQ NI USB-6343 | National Instruments | 781438-01 | DAQ multifonction 16 bits ; acquisition en électrophysiologie, délivrance de stimuli souris en TTL, entrée TTL Arduino ; fréquence d'échantillonnage de 1 kHz |
| Projecteur DLP Optoma ML750 | Optoma | ML750 | Système de lentilles du fabricant retiré ; remplacé par une lentille biconvexe unique f = 30 mm |
| Oscilloscope DS1102E | Rigol | DS1102E | Pour la surveillance en temps réel du signal pendant le positionnement de l'électrode et l'optimisation du filtre |
| Pipette de Pasteur de 150 mm | Carl Roth | 4518 | Pour le transfert du rhopalium |
| Photodiode BRW21 | OSRAM | BRW21 | Photodiode au silicium ; surveille le carré indicateur noir et blanc sur l'écran de l'ordinateur |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, Caroline du Nord, États-Unis ; analyse statistique de la réponse du pacemaker ; code disponible à l'adresse doi: 10.17632/csgymw8kjk.1 |
| Tuyau en silicone | Erich Eydam KG | 9205000 | Pour la connexion de succion entre le support d'électrode et la seringue |
| Filtre à seringue Filtropur S, 0,20 µm PES | Sarstedt | 83.1826.001 | Pour filtrer l'eau de mer du réservoir de culture destinée à la chambre d'enregistrement et aux boîtes de préparation |
| Ciseaux de Vannas | World Precision Instruments | 500086 | Lame de 0,025 mm × 0,015 mm ; pour la section du pédoncule rhopalial |
| WTE var 3185 | Assistent | — | Contrôleur de température de bain-marie |
Références
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.