Des analyses intégrées de bioinformatique et expérimentales ont identifié LINC01871 comme un prédicteur potentiel de la sensibilité aux inhibiteurs de la cycline-dépendante kinase 4/6 et ont montré que la surexpression de LINC01871 supprime la prolifération du cancer du sein et est associée à une réduction de la signalisation NF-κB.
Article de recherche
Sensibilité aux inhibiteurs des kinases dépendantes des cyclines 4/6 médiée par LINC01871 dans le cancer du sein humain
Dans cet article
Résumé
Résumé
Le cancer du sein demeure la malignité la plus fréquemment diagnostiquée chez la femme, et la résistance aux inhibiteurs de la cycline-dépendante kinase 4 et 6 (CDK4/6) limite l'efficacité du traitement à long terme. Cette étude visait à identifier des ARN non codants longs (lncARN) associés à une sensibilité prédite aux inhibiteurs de CDK4/6 et à examiner leurs fonctions biologiques dans le cancer du sein. Des données transcriptomiques provenant de The Cancer Genome Atlas (TCGA) et des données de sensibilité aux médicaments issues de la base Genomics of Drug Sensitivity in Cancer 2 (GDSC2) ont été intégrées, et la sensibilité aux médicaments a été prédite à l'aide de l'algorithme oncoPredict. Des lncARN candidats ont été identifiés par analyse différentielle d'expression, analyse de réseau de co-expression génique pondérée, analyse pronostique et apprentissage automatique. Les fonctions biologiques de LINC01871 ont ensuite été évaluées à l'aide d'expériences in vitro et in vivo. Soixante-deux lncARN associés à une sensibilité prédite au ribociclib et au palbociclib ont été identifiés, et six lncARN centraux ont été sélectionnés. LINC01871 a montré la performance discriminatoire la plus élevée pour la sensibilité prédite aux médicaments. Une surexpression de LINC01871 était associée à une augmentation de la sensibilité des cellules cancéreuses du sein au ribociclib et au palbociclib, à une inhibition de la prolifération cellulaire, à une promotion de l'apoptose et à une suppression de la signalisation du facteur nucléaire kappa B (NF-κB). Une analyse transcriptomique unicellulaire a révélé une forte expression de LINC01871 dans les cellules T et les cellules natural killer (NK), tandis que des analyses transcriptomiques d'infiltration immunitaire ont montré qu'une forte expression de LINC01871 était associée à une infiltration immunitaire accrue. Ces résultats identifient LINC01871 comme un biomarqueur candidat de la sensibilité aux inhibiteurs de CDK4/6 et démontrent ses effets suppresseurs de tumeur dans le cancer du sein. Des études cliniques et mécanistiques supplémentaires sont nécessaires pour valider sa valeur prédictive et son intérêt thérapeutique.
Introduction
Le cancer du sein demeure une cause majeure de mortalité par cancer chez les femmes dans le monde entier, malgré les progrès constants réalisés dans sa prise en charge clinique1,2. Le traitement s'est progressivement étendu au-delà de la thérapie endocrinienne et de la chimiothérapie pour intégrer des approches ciblant spécifiquement des voies moléculaires3. Parmi celles-ci, les inhibiteurs des kinases dépendantes des cyclines 4 et 6 (CDK4/6), tels que le ribociclib, le palbociclib et l'abémaciclib, ont procuré des bénéfices cliniques importants dans les cancers du sein positifs pour le récepteur des œstrogènes et/ou pour le récepteur de la progestérone4,5,6. Néanmoins, un traitement prolongé peut s'accompagner d'une résistance acquise, ce qui limite la durée de l'efficacité thérapeutique7.
L'inhibition de CDK4/6 agit principalement par l'intermédiaire de l'axe régulateur du cycle cellulaire Rb–E2F. L'inhibition de l'activité CDK4/6–cycline D diminue la phosphorylation de la protéine du rétinoblastome (Rb), permettant à la Rb hypophosphorylée de restreindre la transcription dépendante de E2F et, par conséquent, de favoriser l'arrêt en phase G1 et de limiter la prolifération des cellules tumorales8. Bien que plusieurs mécanismes contribuant à la résistance aux inhibiteurs de CDK4/6 aient été caractérisés, ils n'expliquent pas entièrement les différences de réponse au traitement. Ces mécanismes incluent une activation anormale de la voie phosphatidylinositol 3-kinase/protéine kinase B/cible mammalienne de la rapamycine (PI3K/AKT/mTOR) et une surexpression des complexes cycline–CDK9,10. Notamment, les composants de la voie PI3K/AKT/mTOR sont eux-mêmes des cibles thérapeutiques dans les maladies avancées11. Dans leur ensemble, ces observations indiquent qu'il reste à identifier d'autres déterminants moléculaires de la sensibilité et de la résistance aux inhibiteurs de CDK4/6. La pertinence clinique des biomarqueurs prédictifs est illustrée par les stratégies émergentes guidées par des biomarqueurs dans le cancer du sein métastatique positif pour les récepteurs hormonaux. L'analyse sériée de l'ADN tumoral circulant (ctDNA), par exemple, peut détecter l'émergence de mutations ESR1 pendant un traitement à base d'inhibiteurs de CDK4/6. Les études PADA-1 et SERENA-6 ont montré que cette détection moléculaire peut orienter un changement précoce de thérapie endocrinienne tout en maintenant l'inhibition de CDK4/612,13. Toutefois, les mutations ESR1 ne représentent qu'un seul déterminant de la réponse thérapeutique et ne peuvent pas expliquer tous les cas de sensibilité ou de résistance. Cette limite revêt une importance clinique croissante, car les patients atteints d'un cancer du sein métastatique positif pour les récepteurs hormonaux et négatif pour HER2 qui progressent sous un traitement à base d'inhibiteurs de CDK4/6 disposent désormais de plusieurs options thérapeutiques ultérieures, notamment des dégradeurs oraux sélectifs du récepteur des œstrogènes, des inhibiteurs de la voie PI3K/AKT et des conjugués anticorps–médicament. L'identification de biomarqueurs candidats supplémentaires associés à une sensibilité différentielle aux inhibiteurs de CDK4/6 pourrait donc aider à distinguer les patients les plus susceptibles de bénéficier de ces thérapies de ceux qui pourraient nécessiter une adaptation précoce du traitement.
Les ARN non codants longs (lncARN) sont des transcrits dépourvus de capacité de codage protéique et qui participent à la régulation de nombreux processus biologiques. Plusieurs lncARN ont été impliqués dans la progression tumorale et la réponse au traitement. Dans le carcinome épidermoïde buccal, LOC100506114 a été signalé comme promoteur de la prolifération et de la migration par son interaction avec le facteur de transcription RUNX et la régulation subséquente de l'expression des gènes en aval14. Dans le cancer du sein, HISLA a été associé à une augmentation de la glycolyse et à une résistance accrue à l'apoptose15, tandis que LINC02568 contribue à la résistance endocrinienne par la régulation d'ESR1 et de CA1216. Malgré l'implication reconnue des lncARN en biologie du cancer, leur relation avec la résistance aux inhibiteurs de CDK4/6 reste insuffisamment caractérisée. Dans cette étude, une stratégie intégrée d'approche multi-omique et d'apprentissage automatique a été utilisée pour identifier des lncARN associés à une sensibilité prédite au ribociclib et au palbociclib, permettant de mettre en évidence LINC01871 comme candidat. Nous avons ensuite examiné l'association de LINC01871 avec la sensibilité aux deux composés et évalué ses effets sur la prolifération des cellules cancéreuses du sein à l'aide d'approches expérimentales in vitro et in vivo.
Protocole
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Résultats
LINC01871 est étroitement associé à la sensibilité au ribociclib et au palbociclib
Les valeurs de CI50 prédites pour le ribociclib et le palbociclib ont été estimées chez les patients du groupe TCGA-BRCA à l'aide des données GDSC2 et classées par ordre croissant. Les patients appartenant au premier quartile des valeurs prédites de CI50 ont été affectés au groupe sensible, tandis que ceux du dernier quartile ont été affectés au groupe résistant (Figure 1A,B). La comparaison de ces groupes a permis d'identifier les ARNl différentiellement exprimés pour chaque médicament (Figure supplémentaire 1A,B). Une analyse WGCNA a par ailleurs identifié des modules d'ARNl significativement associés à la sensibilité prédite au ribociclib et au palbociclib (Figure 1C,D ; Figure supplémentaire 1C,D). L'intégration des quatre jeux de gènes obtenus a permis de dégager 62 ARNl partagés (Figure 1E), dont 18 étaient significativement associés au pronostic dans les analyses de régression de Cox univariée et de survie de Kaplan-Meier. Une régression LASSO a ensuite été appliquée pour affiner davantage cet ensemble, conduisant à six ARNl pertinents sur le plan pronostique : ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 et LINC01871 (Figure 1F,G ; Figure supplémentaire 2A). Leur capacité à discriminer la résistance prédite aux médicaments a ensuite été comparée par analyse AUC. Parmi les six candidats, LINC01871 a fourni la valeur moyenne AUC la plus élevée pour le ribociclib et le palbociclib (Figure 1H–J ; Figure supplémentaire 2B,C).
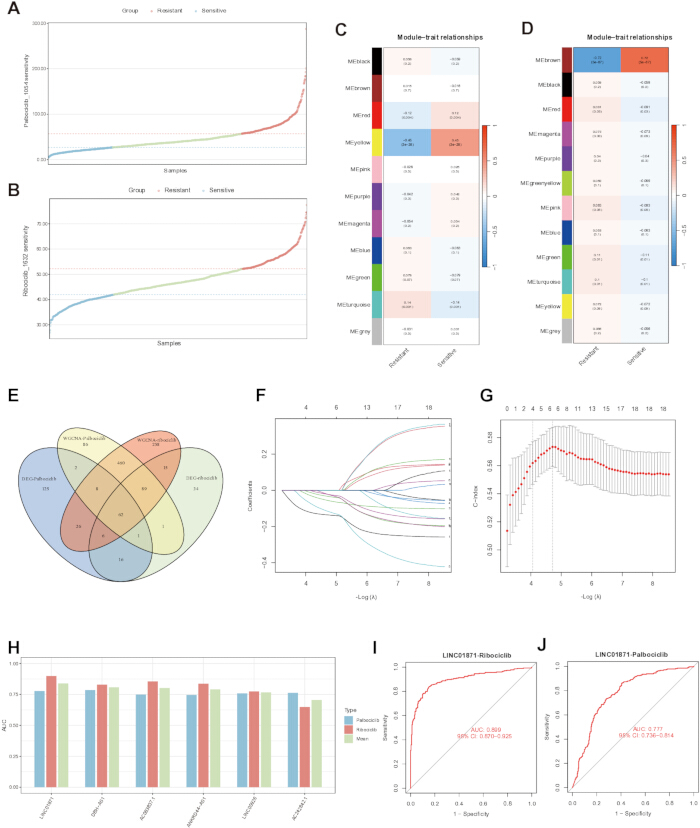
Figure 1. Identification de ARN non codants longs associés à une sensibilité prédite au ribociclib et au palbociclib.
(A,B) Répartition des valeurs prédites de concentration inhibitrice demi-maximale (IC50) pour le palbociclib (A) et le ribociclib (B) dans la cohorte de carcinome mammaire invasif du Cancer Genome Atlas (TCGA-BRCA), estimée à l’aide du jeu de données Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Analyse de réseau de co-expression génique pondérée (WGCNA) montrant les associations entre modules et caractères pour le palbociclib (C) et le ribociclib (D). (E) Diagramme de Venn illustrant les gènes partagés entre les ensembles de gènes différentiellement exprimés et les ensembles de gènes dérivés de l’analyse WGCNA associés aux deux médicaments. (F,G) Régression par l’opérateur de sélection et de réduction absolue minimale (LASSO) pour la sélection d’ARN non codants longs (lncRNA) ayant une pertinence pronostique. (H) Comparaison des valeurs de la surface sous la courbe caractéristique de fonctionnement du récepteur (AUC) pour les six lncRNA sélectionnés par LASSO. (I,J) Courbes caractéristiques de fonctionnement du récepteur (ROC) évaluant la capacité de LINC01871 à distinguer la sensibilité prédite au ribociclib (I) et au palbociclib (J). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
La surexpression de LINC01871 améliore la sensibilité aux médicaments dans les cellules du cancer du sein
Dans la cohorte TCGA-BRCA, une expression plus élevée de LINC01871 était associée à des valeurs prédites de CI50 plus faibles pour le ribociclib et le palbociclib (Figure 2A,B). Cette relation a été approfondie dans le sous-groupe cliniquement pertinent, positif pour les récepteurs hormonaux et négatif pour HER2 (n = 599). Dans ce sous-groupe, les valeurs prédites de CI50 pour les deux agents étaient significativement plus faibles chez les patientes présentant une forte expression de LINC01871 que chez celles à faible expression. De plus, l'expression de LINC01871 était inversement corrélée aux valeurs prédites de CI50 du ribociclib et du palbociclib (Figure supplémentaire 3A,B). L'association calculée a ensuite été étudiée expérimentalement. Des tests de cytotoxicité ont montré une sensibilité accrue au ribociclib et au palbociclib dans les cellules du cancer du sein surexprimant LINC01871 par rapport aux cellules contrôles contenant le vecteur (Figure 2C,D). La cytométrie en flux a révélé une proportion plus élevée de cellules en phase G1 et une proportion plus faible en phase S après la surexpression de LINC01871, en accord avec un arrêt accru en phase G1 (Figure 2E). Dans les tests de formation de colonies, des concentrations croissantes de ribociclib ou de palbociclib réduisaient progressivement la formation de colonies (Figure 2F,G). À des concentrations équivalentes de médicament, la capacité de formation de colonies était significativement plus faible dans les cellules surexprimant LINC01871 que dans les cellules contrôles. L'analyse par immunobuvardage a également montré des niveaux plus faibles de CDK4, CDK6 et cycline D1, accompagnés d'une réduction de la phosphorylation de RB, dans les cellules surexprimant LINC01871 (Figure 2H). Ces modifications moléculaires sont compatibles avec l'arrêt accru en phase G1 observé après la surexpression de LINC01871.
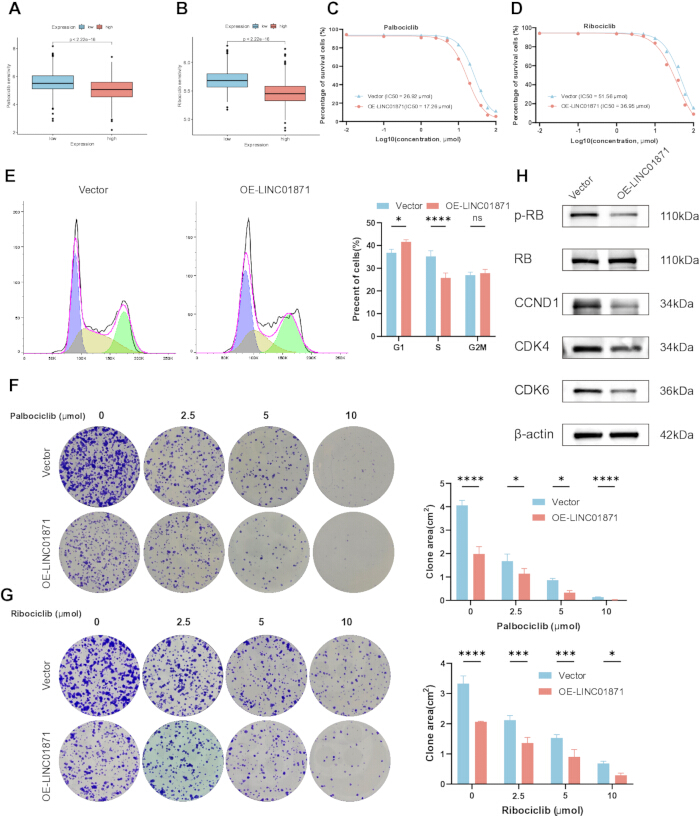
Figure 2. Association de la surexpression de LINC01871 avec la sensibilité aux inhibiteurs de la cycline-dépendante kinase 4/6 dans les cellules de cancer du sein. (A,B) Sensibilité prédite au palbociclib (A) et au ribociclib (B) selon une expression faible ou élevée de LINC01871. (C,D) Courbes de réponse-dose aux médicaments pour le palbociclib (C) et le ribociclib (D) dans des cellules contrôles portant un vecteur et des cellules surexprimant LINC01871, avec les valeurs correspondantes de concentration inhibitrice demi-maximale (IC50) indiquées dans chaque graphique. (E) Évaluation par cytométrie en flux de la distribution dans le cycle cellulaire des cellules contrôles portant un vecteur et des cellules surexprimant LINC01871. (F,G) Formation de colonies après traitement avec des concentrations croissantes de palbociclib (F) et de ribociclib (G). (H) Analyse par immunoblot de la cycline-dépendante kinase 4 (CDK4), de la cycline-dépendante kinase 6 (CDK6), de la cycline D1 (CCND1), de la protéine du rétinoblastome (RB) et de la RB phosphorylée (p-RB), la β-actine servant de contrôle de chargement. OE-LINC01871, surexpression de LINC01871 ; ns, non significatif. Toutes les expériences ont été réalisées indépendamment en triplets. Les données sont présentées sous forme de moyenne ± écart-type. Les valeurs d'IC50 ont été déterminées par régression non linéaire. La distribution dans le cycle cellulaire et les données de formation de colonies ont été analysées à l'aide d'une ANOVA à deux facteurs. *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Les patients présentant une forte expression de LINC01871 avaient tendance à avoir de meilleurs résultats cliniques
L'association pronostique de LINC01871 a été davantage examinée dans la cohorte TCGA-BRCA. Les analyses de Kaplan-Meier ont indiqué qu'une expression plus élevée de LINC01871 était généralement associée à une survie globale plus longue et à un intervalle sans progression plus étendu (Figure 3A ; Figure supplémentaire 3C). La comparaison des échantillons appariés et non appariés a également révélé une expression significativement plus faible de LINC01871 dans les tissus tumoraux par rapport aux tissus normaux (Figure 3B,C). Nous avons ensuite examiné la relation entre l'expression de LINC01871 et les caractéristiques clinicopathologiques. Une expression plus faible de LINC01871 avait tendance à être associée à une taille tumorale plus importante et a été observée chez les patients enregistrés comme décédés par rapport à ceux enregistrés comme vivants (Figure 3D,E). Chez les patients ayant reçu une radiothérapie, une analyse de sous-groupe a montré des résultats de survie significativement plus favorables chez ceux présentant une forte expression de LINC01871 (Figure supplémentaire 3D). Un nomogramme pronostique intégrant l'expression de LINC01871 ainsi que plusieurs caractéristiques cliniques a ensuite été élaboré (Figure supplémentaire 3E). Une analyse de calibration a montré un bon accord entre les probabilités de survie estimées par le nomogramme et les résultats observés (Figure supplémentaire 3F).
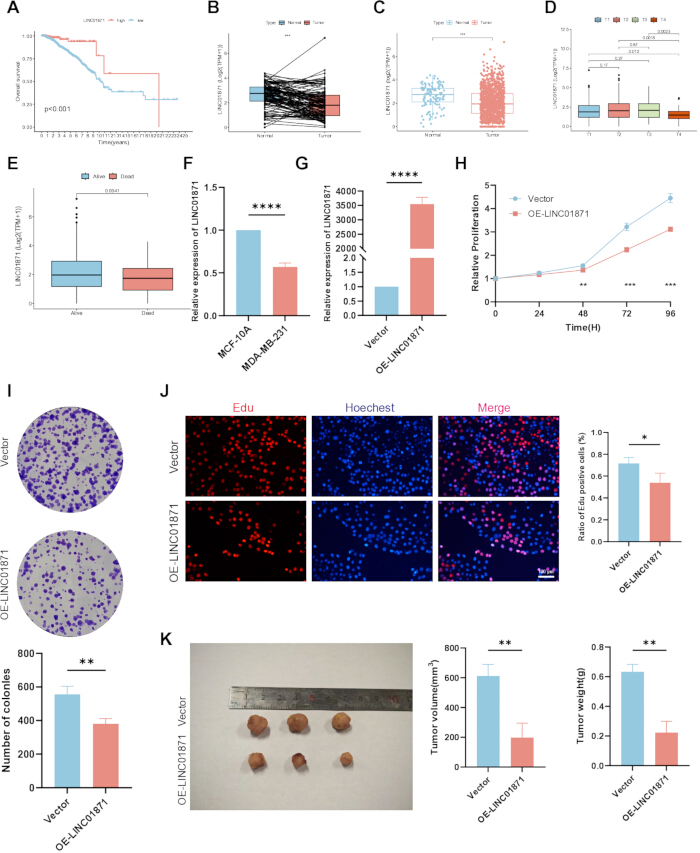
Figure 3. Expression de LINC01871, associations pronostiques et inhibition de la prolifération du cancer du sein.
(A) Analyse de Kaplan-Meier de la survie globale stratifiée selon l'expression de LINC01871. (B,C) Analyses appariées (B) et non appariées (C) comparant l'expression de LINC01871 entre tissus normaux et tissus tumoraux. (D,E) Expression de LINC01871 en fonction de la catégorie T de la tumeur (D) et du statut de survie (E). (F) Comparaison de l'expression relative de LINC01871 entre cellules MCF-10A et MDA-MB-231. (G) Confirmation par transcription inverse suivie d'une réaction en chaîne par polymérase en temps réel (RT-qPCR) de la surexpression de LINC01871 dans les cellules MDA-MB-231. (H–J) Évaluation de la prolifération cellulaire par test au kit de comptage cellulaire-8 (CCK-8) (H), test de formation de colonies (I) et test d'incorporation d'ethynyl-2′-desoxyuridine (EdU) (J). L'échelle dans le panneau J représente 100 μm. (K) Apparence, volume et poids des tumeurs xénogreffées dans les groupes contrôle vecteur et surexpression de LINC01871. TPM, transcrits par million ; OE-LINC01871, surexpression de LINC01871. La survie globale a été évaluée par analyse de Kaplan-Meier avec le test du log-rang. Les comparaisons appariées entre tissus tumoraux et normaux ont été évaluées à l'aide du test de Wilcoxon. Pour les autres comparaisons entre deux groupes, un test t de Student non apparié ou un test U de Mann-Whitney a été choisi après évaluation de la normalité par le test de Shapiro-Wilk. Les mesures au CCK-8 ont été analysées par une analyse de variance à deux facteurs. Les expériences in vitro comprenaient trois réplicats biologiques indépendants, tandis que les expériences de xénogreffe comprenaient trois souris par groupe. Les données sont présentées sous forme de moyenne ± écart-type. *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
La surexpression de LINC01871 supprime la prolifération des cellules tumorales et est associée à une réduction de la signalisation NF-κB
L'effet inhibiteur de LINC01871 sur la prolifération des cellules tumorales a été davantage étudié à l'aide de modèles in vitro et in vivo. L'expression de LINC01871 était significativement plus élevée dans la lignée cellulaire épithéliale mammaire normale que dans la lignée cellulaire de cancer du sein (Figure 3F). La mise en place réussie du modèle de surexpression de LINC01871 a été confirmée par RT-qPCR, qui a montré une expression de LINC01871 nettement augmentée par rapport au groupe contrôle vecteur (Figure 3G). Des essais CCK-8 ont ensuite révélé une capacité proliférative significativement réduite dans les cellules surexprimant LINC01871 (Figure 3H). Conformément à cette observation, la surexpression de LINC01871 diminuait la capacité de formation de colonies (Figure 3I) et réduisait la proportion de cellules positives pour EdU (Figure 3J). Dans le modèle de xénogreffe, les tumeurs issues de cellules surexprimant LINC01871 étaient significativement plus petites que celles issues de cellules contrôle vecteur (Figure 3K).
Afin d'explorer les mécanismes potentiels sous-jacents à ces effets, des analyses d'enrichissement fonctionnel ont été réalisées à l'aide de deux jeux de gènes : les gènes différentiellement exprimés entre les groupes à forte et faible expression de LINC01871, et les gènes identifiés comme co-exprimés avec LINC01871 par analyse de corrélation de Pearson. L'analyse GO de ces jeux de gènes a révélé des associations avec plusieurs fonctions liées au système immunitaire, notamment la liaison au récepteur des cellules T, la liaison au complexe protéique du complexe majeur d'histocompatibilité (CMH), la régulation positive de l'activation des leucocytes et l'activité des récepteurs immunitaires (Figure 4A,C). L'analyse KEGG a également identifié des voies associées à l'immunité, notamment la signalisation par le récepteur des cellules T, ainsi que la voie du point de contrôle de l'expression du ligand de mort programmée 1 (PD-L1) et de la protéine de mort cellulaire programmée 1 (PD-1) dans le cancer. Un enrichissement a également été observé pour les voies de signalisation Janus kinase/activateur de la transcription et transducteur de signal (JAK-STAT) et NF-κB (Figure 4B,D). Étant donné que la signalisation NF-κB a été identifiée dans les deux analyses d'enrichissement, son activité a été examinée plus en détail par immunobuvardage. La phosphorylation de la protéine p65 était nettement plus faible dans les cellules surexprimant LINC01871 que dans le groupe témoin (Figure 4E), une observation compatible avec une activation réduite de la voie NF-κB. La relation entre la surexpression de LINC01871 et l'apoptose a également été évaluée. L'immunobuvardage a montré une augmentation de l'expression de la protéine pro-apoptotique Bax et une diminution de l'expression de la protéine anti-apoptotique Bcl-2 après surexpression de LINC01871 (Figure 4F). La cytométrie en flux a par ailleurs révélé une proportion significativement plus élevée de cellules apoptotiques dans le groupe surexprimant LINC01871 par rapport au groupe contrôle porteur du vecteur (Figure 4G).
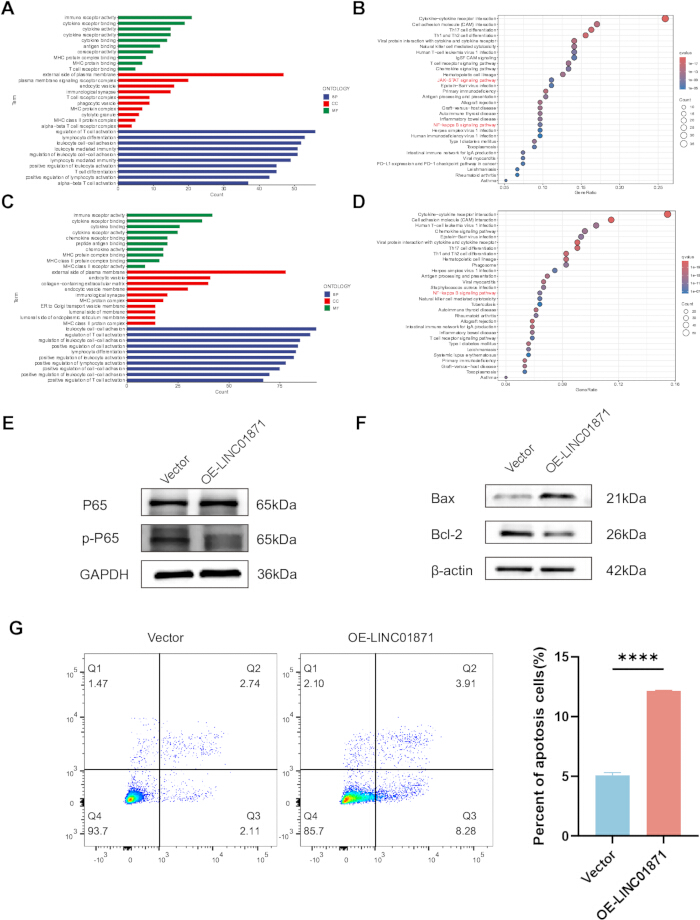
Figure 4. Association de LINC01871 avec la signalisation du facteur nucléaire kappa B et l'apoptose.
(A,B) Analyses d'enrichissement de l'ontologie génique (GO) (A) et de l'Encyclopédie de Kyoto des gènes et des génomes (KEGG) (B) des gènes présentant une expression différentielle entre les groupes à forte et faible expression de LINC01871. (C,D) Analyses d'enrichissement de l'ontologie génique (GO) (C) et de KEGG (D) des gènes coexprimés avec LINC01871. (E) Analyse par immunoblotting du facteur nucléaire kappa B (NF-κB) protéines de la voie P65 et P65 phosphorylée (p-P65), la glyceraldehyde-3-phosphate déshydrogénase (GAPDH) servant de témoin de chargement. (F) Analyse par immunotransfert des protéines liées à l'apoptose B-cell lymphoma 2 (Bcl-2) et protéine Bcl-2 associée à X (Bax), en utilisant β-actine comme témoin de chargement. (G) Évaluation et quantification par cytométrie en flux de l'apoptose dans les cellules contrôle vecteur et les cellules surexprimant LINC01871. Toutes les expériences in vitro comprenaient trois réplicats biologiques indépendants. Les images de western blot présentées sont représentatives de trois expériences biologiques indépendantes. Les données sont exprimées comme moyenne ± SD. Les comparaisons entre les cellules témoins et les cellules surexprimant LINC01871 ont été effectuées à l'aide d'un test t de Student non apparié. t-test ou test U de Mann-Whitney après évaluation de la normalité à l'aide du test de Shapiro-Wilk. *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Analyse pancancérogène de LINC01871
Étant donné les caractéristiques suppresseur de tumeur associées à LINC01871 dans le cancer du sein, nous avons étendu l'analyse à plusieurs types de cancer afin de caractériser son expression et ses associations pronostiques. Une expression différentielle de LINC01871 a été observée dans plusieurs malignités en plus du cancer du sein (Figure 5A). Dans l'adénocarcinome du côlon (COAD), le carcinome à cellules claires du rein (KIRC), le carcinome papillaire rénal (KIRP), le carcinome épidermoïde du poumon (LUSC) et le carcinome thyroïdien (THCA), des différences significatives entre les tissus tumoraux et normaux ont été détectées dans les comparaisons appariées comme non appariées (Figure 5B). Des analyses de survie ont en outre révélé des associations pronostiques significatives pour LINC01871 dans le carcinome épidermoïde de la tête et du cou (HNSC), le KIRC, le gliome de bas grade du cerveau (LGG), l'adénocarcinome du rectum (READ), le mélanome cutané (SKCM), le carcinome endométrial du corps utérin (UCEC), le carcinome urothélial de la vessie (BLCA), le carcinome hépatocellulaire (LIHC) et l'adénocarcinome de la prostate (PRAD) (Figure 5C–E).
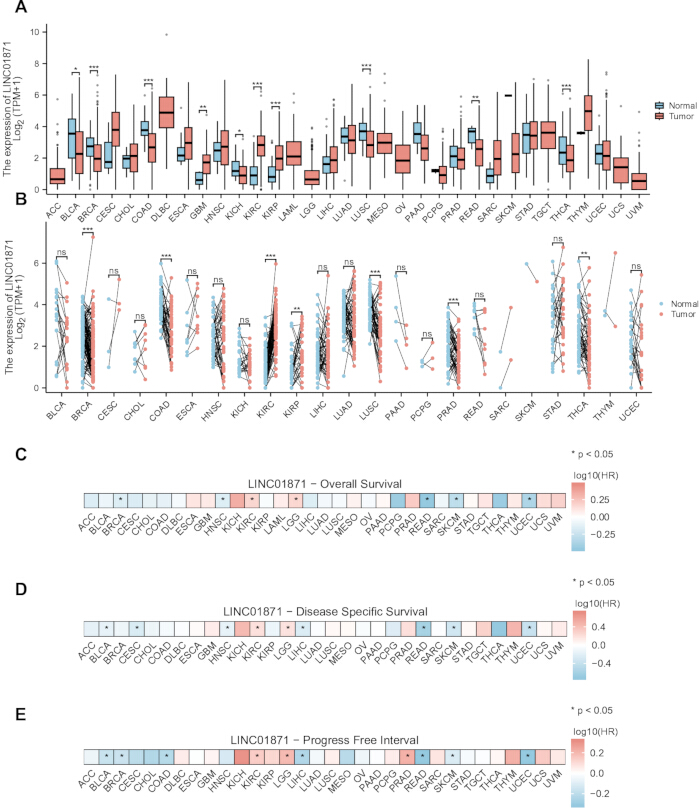
Figure 5. Analyse pancancéreuse de l'expression et du pronostic de LINC01871.
(A,B) Comparaison de l'expression de LINC01871 entre les tissus tumoraux et normaux à travers plusieurs types de cancer, à l’aide d’analyses non appariées (A) et appariées (B). (C–E) Associations pronostiques de LINC01871 montrant les rapports de risque transformés logarithmiquement pour la survie globale (C), la survie spécifique au décès (D) et l’intervalle sans progression (E). HR, rapport de risque ; TPM, transcrits par million ; ns, non significatif. Les abréviations des types de cancer sont basées sur la nomenclature du Cancer Genome Atlas. Les données non appariées tumeur–normal ont été évaluées à l’aide du test de Mann–Whitney U (A), tandis que les données appariées tumeur–normal ont été évaluées à l’aide du test de Wilcoxon pour échantillons appariés (B). Les associations avec la survie globale, la survie spécifique au décès et l’intervalle sans progression ont été examinées par régression univariée de Cox (C–E). *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Corrélation entre l'expression de LINC01871 et l'infiltration des cellules immunitaires
Nous avons ensuite caractérisé la répartition cellulaire de LINC01871 à l'aide de données de séquençage ARN unicellulaire provenant d'échantillons de cancer du sein (GSE161529). Après contrôle de qualité, correction des effets de lot, regroupement en clusters et annotation des types cellulaires, les populations identifiées comprenaient des cellules épithéliales, des lymphocytes T CD8⁺, des lymphocytes T, des macrophages, des fibroblastes, des cellules natural killer (NK) et des lymphocytes B (Figure 6A). Parmi ces populations, l'expression de LINC01871 était la plus marquée dans les lymphocytes T et les cellules NK (Figure 6B,C). Nous avons donc approfondi l'analyse de la relation entre LINC01871 et le microenvironnement immunitaire à l'aide d'estimations d'infiltration basées sur le transcriptome. L'analyse CIBERSORT a révélé que le groupe à forte expression de LINC01871 présentait des proportions estimées plus élevées de plusieurs populations immunitaires, notamment des lymphocytes T CD8⁺, des cellules NK et des macrophages M1, ainsi que des proportions estimées plus faibles de lymphocytes T régulateurs (Treg) et de macrophages M2 (Figure 6D). De même, les scores immunitaires dérivés de l'analyse ESTIMATE étaient plus élevés dans les échantillons présentant une forte expression de LINC01871 (Figure 6E). Une analyse par ssGSEA utilisant des gènes marqueurs de cellules immunitaires rapportés précédemment a produit des profils globalement concordants (Figure 6F). L'extension de cette analyse à différents types de cancer a révélé des corrélations significatives entre l'expression de LINC01871 et l'abondance estimée de multiples populations de cellules immunitaires (Figure 6G).
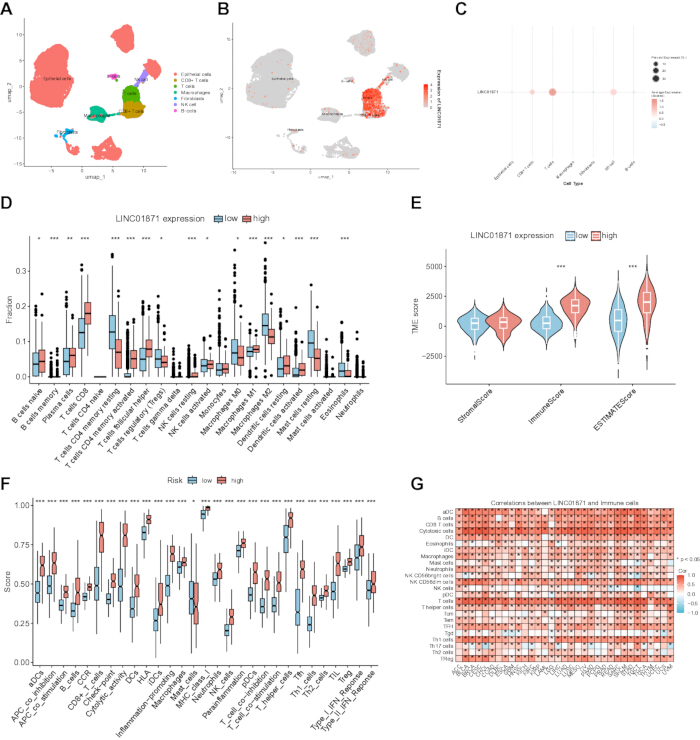
Figure 6. Analyses de l'expression au niveau monocellulaire et de l'infiltration immunitaire de LINC01871.
(A) Représentation UMAP (Uniform Manifold Approximation and Projection) des populations cellulaires annotées identifiées à partir de données de séquençage de l'ARN monocellulaire. (B) Graphique fonctionnel UMAP illustrant la distribution de l'expression de LINC01871 parmi les populations cellulaires annotées. (C) Nuage de points montrant la proportion de cellules exprimant LINC01871 et l'expression moyenne normalisée pour chaque type cellulaire. (D) Proportions relatives des 22 populations de cellules immunitaires dans les groupes à faible et forte expression de LINC01871, estimées par la méthode CIBERSORT (Cell-type Identification by Estimating Relative Subsets of RNA Transcripts). (E) Scores stromal, immunitaire et du microenvironnement tumoral obtenus à l'aide de la méthode ESTIMATE (Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data). (F) Scores liés à l'immunité obtenus par analyse d'enrichissement de jeux de gènes à l'échelle monocellulaire (ssGSEA) dans les groupes à faible et forte expression de LINC01871. (G) Associations pancancéreuses entre l'expression de LINC01871 et l'infiltration des cellules immunitaires estimées par ssGSEA. NK, cellules tueuses naturelles ; TME, microenvironnement tumoral. Les abréviations des types de cancer sont basées sur la nomenclature du Cancer Genome Atlas. Les différences entre les groupes à faible et forte expression de LINC01871 ont été évaluées à l'aide du test de Mann–Whitney U (D–F). Les associations pancancéreuses entre l'expression de LINC01871 et l'infiltration des cellules immunitaires ont été évaluées par une analyse de corrélation de Spearman (G). *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
Disponibilité des données :
Les ensembles de données analysés dans cette étude sont accessibles publiquement via The Cancer Genome Atlas (TCGA ; https://portal.gdc.cancer.gov) et le Gene Expression Omnibus (GEO ; https://www.ncbi.nlm.nih.gov/geo/). Les jeux de données utilisés comprennent le cohort TCGA-BRCA et GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Les figures supplémentaires 1 à 3 présentent des analyses bioinformatiques et pronostiques supplémentaires. Le tableau supplémentaire 1 recense les séquences d'amorces utilisées pour la réaction de transcription inverse suivie d'une amplification en chaîne par polymérase quantitative (RT-qPCR), et le tableau supplémentaire 2 recense les anticorps primaires et secondaires utilisés pour les analyses par immunoblotting. Les scripts R utilisés pour les analyses bioinformatiques et statistiques sont fournis sous forme de fichier supplémentaire 1.
Figure supplémentaire 1. Identification des gènes différentiellement exprimés et des modules de réseau de co-expression pondérée des gènes associés à la sensibilité prédite aux inhibiteurs de CDK4/6.
(A,B) Diagrammes en volcan montrant les gènes différentiellement exprimés entre les groupes prédits résistants et prédits sensibles pour le ribociclib (A) et le palbociclib (B). (C,D) Dendrogrammes de regroupement générés par WGCNA, illustrant le regroupement des gènes et l'attribution des modules pour le ribociclib (C) et le palbociclib (D). Les gènes différentiellement exprimés ont été définis comme ceux présentant un log absolу2 changement d'expression d'au moins 0,5 et un ajusté P valeur de <0.05. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 2. Performances pronostique et prédictive de cinq autres ARNl candidats.
(A) Analyses de survie de Kaplan-Meier de cinq autres ARNl candidats identifiés par régression LASSO. (B,C) Analyses des courbes ROC montrant la performance diagnostique de ces cinq ARNl pour prédire la résistance au ribociclib (B) et au palbociclib (C). Les analyses correspondantes de LINC01871 sont présentées dans les Figures 1 et 3. Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 3. Évaluation pronostique de LINC01871 dans le cancer du sein.
(A) Valeurs prédites de la concentration inhibitrice demi-maximale (IC50) pour le ribociclib et le palbociclib dans les groupes à expression élevée et faible de LINC01871 au sein du sous-groupe positif pour les récepteurs hormonaux et négatif pour le récepteur 2 du facteur de croissance épidermique humain (RH-positif/HER2-négatif). (B) Analyses de corrélation de Spearman entre l'expression de LINC01871 et les valeurs prédites d'IC50 pour le ribociclib et le palbociclib dans le sous-groupe RH-positif/HER2-négatif. (C) Analyse de survie de Kaplan-Meier de l'intervalle sans progression (PFI) selon l'expression de LINC01871. (D) Analyse de survie de Kaplan-Meier des patientes ayant reçu une radiothérapie, stratifiée selon l'expression de LINC01871. (E) Nomogramme intégrant l'expression de LINC01871 et les caractéristiques clinicopathologiques pour prédire la survie globale dans l'ensemble de la cohorte TCGA-BRCA. (F) Courbes de calibration évaluant la concordance entre les probabilités de survie prédites et observées pour le nomogramme à 1, 3 et 5 ans. Les comparaisons du panneau A ont été analysées à l'aide du test U de Mann-Whitney, et les corrélations du panneau B ont été évaluées par analyse de corrélation de Spearman. IC50, concentration inhibitrice demi-maximale ; PFI, intervalle sans progression ; HR, récepteur hormonal ; HER2, récepteur 2 du facteur de croissance épidermique humain. *P < 0,05, **P < 0,01, ***P < 0,001 et ****P < 0,0001 ; ns, non significatif. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1. Séquences d'amorces utilisées pour la réaction de transcription inverse suivie d'une réaction en chaîne par polymérase quantitative (RT-qPCR).
Séquences d'amorces sens et antisens (5′→3′) utilisées pour l'analyse par RT-qPCR de LINC01871 et du gène de référence endogène GAPDH. Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2. Anticorps primaires et secondaires utilisés pour l'analyse par immunobuvardage.
Anticorps primaires et secondaires utilisés pour l'analyse par immunobuvardage, incluant la protéine cible ou la spécificité de l'anticorps, le fournisseur, le numéro de catalogue, l'espèce de l'hôte, la dilution de travail et l'Identifiant de ressource pour la recherche (RRID). Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1. Scripts R utilisés pour les analyses bioinformatiques et statistiques.
Ce fichier supplémentaire contient les scripts R utilisés pour effectuer les analyses bioinformatiques et générer les figures présentées dans cette étude, notamment l'analyse transcriptomique, l'analyse d'expression différentielle, l'analyse de réseau de co-expression génique pondéré (WGCNA), la régression par l'opérateur de réduction et de sélection par valeur absolue (LASSO), l'analyse de survie, l'analyse caractéristique de fonctionnement du récepteur (ROC), l'analyse d'enrichissement fonctionnel, l'analyse d'infiltration immunitaire, l'analyse de séquençage d'ARN monocellulaire, ainsi que la création des figures. Chaque script correspond aux figures principales et supplémentaires présentées dans le manuscrit. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
La compréhension croissante de la biologie du cancer a conduit à l'identification de nouvelles cibles thérapeutiques et a établi les thérapies ciblées comme un composant important du traitement du cancer17. Toutefois, le développement de résistances au traitement continue de limiter leur efficacité à long terme. Dans cette étude, l'intégration d'analyses multi-omiques avec des approches d'apprentissage automatique a permis d'identifier LINC01871 comme un candidat associé à une sensibilité prédite au ribociclib et au palbociclib. Des analyses expérimentales ont en outre montré qu'une surexpression de LINC01871 augmentait la sensibilité aux deux agents in vitro et supprimait la prolifération des cellules cancéreuses du sein dans des modèles cellulaires et de xénogreffe. Ces effets étaient accompagnés d'une activité réduite de la voie NF-κB, suggérant une relation potentielle entre LINC01871 et cette voie de signalisation. Ces observations pourraient être pertinentes au regard de l'utilisation croissante de biomarqueurs pour orienter les décisions thérapeutiques lors de traitements basés sur des inhibiteurs de CDK4/6. Toutefois, les données probantes soutenant LINC01871 diffèrent sensiblement de celles disponibles pour les approches guidées par des biomarqueurs établis. Par exemple, la surveillance de l'ADN tumoral circulant pour les mutations d'ESR1 a fait l'objet d'une évaluation prospective en tant que stratégie d'adaptation du traitement endocrinien. En revanche, LINC01871 demeure un biomarqueur candidat et ne devrait pas encore être considéré comme approprié pour la prise de décision clinique. Cette distinction est particulièrement importante car les options thérapeutiques après progression sous traitement par inhibiteur de CDK4/6 dans le cancer du sein métastatique HR-positif/HER2-négatif incluent désormais des dégradeurs oraux sélectifs du récepteur des œstrogènes, des inhibiteurs de la voie PI3K/AKT et des conjugués anticorps-médicament18,19. Dans ce paysage thérapeutique en évolution, des biomarqueurs capables de distinguer les différences de sensibilité aux inhibiteurs de CDK4/6 pourraient potentiellement aider à la stratification thérapeutique. Bien que nos résultats soutiennent une association entre LINC01871 et la sensibilité au ribociclib et au palbociclib, les données actuelles proviennent d'estimations computationnelles de la sensibilité aux médicaments ainsi que d'expériences in vitro. Des cohortes prospectives avec une exposition documentée aux inhibiteurs de CDK4/6 et des résultats cliniques seront donc nécessaires pour déterminer si LINC01871 possède une valeur prédictive chez les patients.
L'efficacité thérapeutique des inhibiteurs de CDK4/6 dans le cancer du sein positif pour le récepteur des œstrogènes et/ou le récepteur de la progestérone a été démontrée dans plusieurs essais cliniques4,5,6. Leur utilité potentielle dans le cancer du sein triple négatif a également fait l'objet d'investigations20,21. Par exemple, Yang et al. ont montré qu'une inhibition simultanée de CDK4/6 et de CDK7 entravait la prolifération des cellules de cancer du sein triple négatif22. D'autres études ont identifié des altérations moléculaires pouvant modifier la réponse à l'inhibition de CDK4/6. L'inhibition de GPX4 augmente la sensibilité au palbociclib, tant dans le cancer du sein positif pour le récepteur des œstrogènes que dans le cancer du sein triple négatif23, tandis que C9orf142 a été associé à une résistance aux inhibiteurs de CDK4/6 dans le cancer du sein triple négatif20. Inversement, l'inhibition d'ACAA1 augmente la sensibilité des cellules de cancer du sein aux inhibiteurs de CDK4/624. La plupart des travaux existants sur les déterminants moléculaires de la réponse aux inhibiteurs de CDK4/6 se sont concentrés sur les gènes codants pour des protéines, laissant ainsi une caractérisation moins complète du rôle des ARnl. Nos résultats élargissent ce domaine en identifiant LINC01871 comme un ARN non codant potentiellement associé à la réponse aux inhibiteurs de CDK4/6. Des tests de cytotoxicité et de formation de colonies, combinés à une évaluation par cytométrie en flux et à l'analyse de protéines liées au cycle cellulaire, ont systématiquement associé une surexpression de LINC01871 à une sensibilité accrue au ribociclib et au palbociclib. Des tests de prolifération distincts et un modèle de xénogreffe ont par ailleurs confirmé une association inhibitrice entre la surexpression de LINC01871 et la croissance du cancer du sein.
Afin d'explorer les mécanismes susceptibles sous-tendre ces observations, nous avons examiné les profils fonctionnels des gènes exprimés de manière différentielle entre les groupes à forte et faible expression de LINC01871, ainsi que des gènes coexprimés avec LINC01871. Les analyses GO et KEGG ont associé les deux ensembles de gènes à des processus liés à l'immunité et à la signalisation NF-κB. Cette découverte est pertinente pour la régulation du cycle cellulaire, car il a déjà été rapporté que la voie NF-κB augmente l'expression de la cycline D, favorisant ainsi la progression du cycle cellulaire25,26. Zhou et al. ont en outre montré que NF-κB peut interagir avec le promoteur de CDK6 et stimuler la transcription de CDK627. Des interactions entre NF-κB et la voie PI3K/AKT/mTOR ont également été décrites28, cette dernière étant impliquée dans la résistance aux inhibiteurs de CDK4/611. Dans leur ensemble, ces observations fournissent un fondement justifiant l'étude de l'activité de NF-κB dans le contexte de LINC01871. Conformément aux résultats d'enrichissement, les cellules surexprimant LINC01871 présentaient une moindre phosphorylation de P65. Néanmoins, ces données établissent une association plutôt qu'un mécanisme régulateur direct, et le mode d'action par lequel LINC01871 influence la signalisation NF-κB reste à déterminer.
Le microenvironnement immunitaire représente un autre facteur potentiel influant sur la réponse aux inhibiteurs de CDK4/6. Les cellules T γδ, par exemple, ont été décrites comme favorisant la résistance par des effets médiés par les macrophages CX3CR1⁺29. Luo et al. ont observé une infiltration plus importante de cellules T CD8⁺ et de cellules NK dans les tumeurs de patients ayant développé une résistance aux inhibiteurs de CDK4/6 à des moments ultérieurs30. Notre analyse unicellulaire a montré que l'expression de LINC01871 était plus marquée dans les cellules T et les cellules NK que dans les cellules épithéliales. Des analyses complémentaires basées sur le transcriptome ont associé une expression plus élevée de LINC01871 à une infiltration estimée plus importante de cellules T CD8⁺, de macrophages M1 et de cellules NK, ainsi qu'à une infiltration estimée plus faible de macrophages M2 et de cellules T régulatrices (Treg). Les cellules T CD8⁺, les macrophages M1 et les cellules NK ont été associées à une activité immunitaire antitumorale, tandis que les macrophages M2 ont été liés à des fonctions favorisant la tumeur31,32,33,34. Ensemble, nos résultats suggèrent qu'une expression plus élevée de LINC01871 pourrait être associée à un microenvironnement tumoral plus immunoréactif. Cette interprétation reste toutefois préliminaire, car les estimations des cellules immunitaires ont été déduites de profils transcriptomiques plutôt que mesurées directement, et des études fonctionnelles seront nécessaires pour établir si LINC01871 joue un rôle dans la modulation du microenvironnement immunitaire.
Plusieurs limites doivent être reconnues lors de l'interprétation de ces résultats. Premièrement, LINC01871 a été identifié par une analyse intégrative multi-omique dans laquelle la réponse au médicament a été déduite par calcul plutôt que mesurée chez des patientes recevant des inhibiteurs de CDK4/6. Bien que des expériences in vitro directes aient montré une sensibilité accrue au palbociclib et au ribociclib suite à la surexpression de LINC01871, ces résultats n'établissent pas sa valeur prédictive chez les patientes. Des cohortes indépendantes avec une exposition documentée aux inhibiteurs de CDK4/6 et des données de réponse clinique seront donc nécessaires pour évaluer LINC01871 comme biomarqueur prédictif. Deuxièmement, l'analyse de découverte a été initialement menée sur l'ensemble de la cohorte TCGA-BRCA, qui regroupe des sous-types de cancer du sein cliniquement hétérogènes. L'association entre LINC01871 et la sensibilité prévue au médicament a également été observée au sein du sous-groupe HR-positif/HER2-négatif ; toutefois, une confirmation dans des populations cliniquement traitées de ce sous-groupe reste nécessaire. Troisièmement, nos analyses de réponse aux médicaments se sont limitées au palbociclib et au ribociclib, car les données correspondantes de réponse à l'abémaciclib n'étaient pas disponibles dans le jeu de données GDSC2 utilisé pour cette étude. Il demeure donc inconnu si l'association observée s'étend à l'abémaciclib. Quatrièmement, malgré les effets suppresseurs tumoraux observés dans les expériences cellulaires et les modèles de xénogreffes, le lien moléculaire entre LINC01871 et la signalisation NF-κB n'a pas été établi. Une diminution de la phosphorylation de P65 accompagne la surexpression de LINC01871, mais le mécanisme responsable de cette association nécessite des investigations supplémentaires. De même, les observations liées à l'immunité proviennent principalement d'analyses computationnelles basées sur le transcriptome et doivent être interprétées comme des associations, et non comme une preuve que LINC01871 régule directement le microenvironnement immunitaire de la tumeur. Enfin, la résistance aux inhibiteurs de CDK4/6 implique de nombreux processus biologiques, et il est peu probable que LINC01871 explique toute la complexité de la réponse au traitement. Des recherches ultérieures devraient donc inclure des cohortes spécifiques aux sous-types, l'évaluation de l'abémaciclib, la validation expérimentale des associations liées à l'immunité, des études mécanistiques sur la relation entre LINC01871 et la signalisation NF-κB, ainsi qu'une évaluation clinique prospective afin de déterminer si LINC01871 présente une utilité en tant que biomarqueur prédictif.
Déclarations de divulgation
Conflit d'intérêts :
Les auteurs déclarent ne pas avoir d'intérêts concurrents.
Remerciements
Cette recherche a été soutenue par la Fondation des sciences naturelles de la province du Fujian (subvention no 2022J011056). Les auteurs remercient The Cancer Genome Atlas (TCGA) et le Gene Expression Omnibus (GEO) d'avoir mis à disposition les ensembles de données publiques utilisés dans cette étude.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Aiguilles de seringue 25 G | Beyotime | FS802-30pcs | Aiguilles de seringue jetables utilisées pour le rétracteur buccal et le desserrement facultatif du ligament parodontal |
| Solution de paraformaldéhyde à 4 % | Solarbio | P1110 | Solution de paraformaldéhyde à 4 % utilisée pour la fixation des échantillons |
| Éthanol à 75 % | Ouse Medical Devices Store | N/A | Éthanol médical à 75 % utilisé pour la désinfection de surface |
| Souris C57BL/6 | Charles River | 213 | Souris mâles C57BL/6 âgées de 8 semaines et pesant entre 22–29 g |
| Carprofène | Solarbio | C5350 | Analgésique postopératoire administré par voie sous-cutanée à 5 mg/kg |
| Boules de coton | Ouning Medical Devices | N/A | Boules de coton stériles utilisées pour le nettoyage buccal et l’hémostase |
| CTAn v1.18.4.0+ | SkyScan | N/A | Logiciel utilisé pour l’analyse d’images μCT |
| DataViewer v1.5.6.2 | SkyScan | N/A | Logiciel utilisé pour visualiser et exporter les images μCT reconstruites |
| Gants digitaux | LeSu Office | MEKU-1/2/3B | Gants digitaux utilisés pour protéger le pouce pendant l’extraction |
| Plaque de mousse | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Plaque de mousse utilisée comme plateforme opératoire et de fixation |
| Aliment gélatineux | ReadyDietech | J10001 | Régime postopératoire fourni au fond de la cage pendant 3 jours, le cas échéant |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Logiciel utilisé pour l’analyse statistique et la génération de graphiques |
| Lampe frontale | Bazhou Pengen Protective Equipment Factory | N/A | Lampe frontale utilisée pour éclairer le champ opératoire |
| Plaque chauffante | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Plaque chauffante préchauffée à environ 38 °C pour la récupération postopératoire |
| Phantom d’hydroxyapatite | QRM | QRM-70127 | Phantom de calibration utilisé pour convertir les valeurs d’atténuation CT en densité minérale osseuse |
| Dispositif de grossissement | Olympus Corporation | SZX10 | Dispositif utilisé pour inspecter les pointes de pince dentée et le logement d’extraction sous grossissement |
| Masque | Senlun Medical Devices Specialty Store | N/A | Masque chirurgical |
| Scanner micro-tomographique à rayons X | Bruker SkyScan | SkyScan 1276 | Scanner μCT utilisé à 80 kV, 500 μA et une résolution de voxel de 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Logiciel utilisé pour la reconstruction tridimensionnelle |
| Sal de pentobarbital sodique | Sigma-Aldrich | P3761 | Sel de pentobarbital sodique utilisé comme solution anesthésique à 1 % |
| Solution tamponnée au phosphate (PBS) | Solarbio | P1010 | Poudre de solution tamponnée au phosphate 0,01 M, pH 7,2–7,4 |
| Solution antiseptique à la povidone-iodine | Belkon Pharmacy Flagship Store | N/A | Solution à la povidone-iodine utilisée pour la désinfection abdominale |
| Élastiques | Foshan Puli Rubber Products Factory | N/A | Élastiques utilisés pour assembler le rétracteur buccal |
| Solution saline | Thermo Fisher | BR0053G | Comprimés salins utilisés pour préparer la solution de nettoyage buccal |
| Régime alimentaire standard | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Régime standard utilisé pour l’élevage courant et ramolli pour l’alimentation postopératoire |
| Stérilisateur à vapeur | Installation institutionnelle | N/A | Équipement utilisé pour stériliser les pinces dentées et la solution saline |
| Compresseurs de coton stériles | Kangbailai Medical Devices Store | N/A | Compresseurs de coton stériles à usage unique |
| Gants stériles | Senlun Medical Devices Specialty Store | N/A | Gants stériles en latex |
| Tissu non tissé stérile | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Tissu non tissé stérile utilisé pour couvrir la surface opératoire et la plaque chauffante |
| Bonnet chirurgical stérile | Senlun Medical Devices Specialty Store | N/A | Bonnet chirurgical stérile |
| Tenue chirurgicale | Senlun Medical Devices Specialty Store | N/A | Tenue chirurgicale propre portée pendant l’intervention |
| Bandes adhésives | Thermo Fisher | 15947 | Bandes adhésives utilisées pour fixer les membres de la souris |
| Pinces ophtalmiques dentées | Beyotime | FS229 | Pinces ophtalmiques dentées utilisées comme pinces dentaires |
| Pommade ophtalmique vétérinaire | Dechra Veterinary Products | 143-16 | Pommade ophtalmique appliquée après l’anesthésie pour prévenir le dessèchement cornéen |
Références
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.