Ce protocole décrit un modèle murin de lésion pulmonaire associée à la maladie à coronavirus 2019 induite par l'administration intranasale combinée du syndrome respiratoire aigu sévère coronavirus 2 et du lipopolysaccharide. Ce modèle permet d'étudier les réponses inflammatoires pulmonaires, les réponses interféron de type I altérées et les interventions thérapeutiques potentielles.
Article de méthode
Un modèle murin de lésion pulmonaire associée à la maladie à coronavirus 2019 induite par le coronavirus du syndrome respiratoire aigu sévère 2 et le lipopolysaccharide
43 vues
⸱
11 septembre 2026
* These authors contributed equally
Dans cet article
Résumé
Résumé
Malgré la mise en œuvre généralisée de la vaccination et des thérapies antivirales, l'infection par le SARS-CoV-2 continue de provoquer une morbidité et une mortalité importantes chez les populations vulnérables, soulignant le besoin urgent de modèles expérimentaux fiables pour étudier la pathogenèse de la COVID-19, élucider les mécanismes d'action des médicaments et évaluer des stratégies thérapeutiques potentielles. L'infection par le SARS-CoV-2 peut entraîner des lésions pulmonaires graves, caractérisées par des réponses inflammatoires excessives et une immunité antivirale médiée par l'interféron de type I (IFN-I) altérée ; toutefois, les modèles animaux actuels restent limités dans leur capacité à reproduire les réponses immuno-inflammatoires dysrégulées associées à la COVID-19. Un modèle murin d'atteinte pulmonaire associée à la COVID-19 induit par le SARS-CoV-2 et le LPS a été développé afin de reproduire des caractéristiques immunopathologiques clés de la maladie. Ce modèle induit des anomalies pathologiques marquées dans le tissu pulmonaire, notamment une infiltration de cellules inflammatoires, une destruction de la structure alvéolaire et une expression accrue de cytokines pro-inflammatoires, accompagnées d'une réponse altérée en IFN-I. Cette étude fournit une description détaillée des procédures utilisées pour établir le modèle murin d'atteinte pulmonaire induit par le SARS-CoV-2 et le LPS, et caractérise systématiquement le modèle par l'analyse des modifications histopathologiques pulmonaires, de la charge virale, des cytokines inflammatoires et des niveaux d'IFN-I. Ce modèle offre une plateforme expérimentale pour étudier les mécanismes immuno-inflammatoires sous-jacents aux lésions pulmonaires associées à la COVID-19 ainsi que les processus impliqués dans la réparation du tissu pulmonaire, tout en fournissant une base pour évaluer des stratégies thérapeutiques visant à atténuer la dysrégulation immuno-inflammatoire et à favoriser la récupération de la fonction pulmonaire.
Introduction
Depuis son apparition à la fin de 2019, le SARS-CoV-2 a provoqué un défi mondial de santé publique, et l'évolution continue du virus continue de poser des défis aux vaccins et aux stratégies thérapeutiques existants1,2,3. Par conséquent, une investigation approfondie des lésions pulmonaires associées à la COVID-19 est essentielle pour élucider les mécanismes de la maladie et faire progresser les stratégies thérapeutiques.
L'infection par le SARS-CoV-2 peut provoquer des lésions pulmonaires graves et peut même évoluer vers un syndrome de détresse respiratoire aiguë (SDRA) et un syndrome de dysfonction multiviscérale4,5. Un nombre croissant de données suggère que la pathogenèse des lésions pulmonaires associées à la COVID-19 est très complexe, une caractéristique clé étant la dysrégulation des réponses immunitaires et inflammatoires6,7,8,9. D'une part, l'infection par le SARS-CoV-2 peut induire une réponse inflammatoire excessive, entraînant une libération massive de cytokines pro-inflammatoires telles que l'interleukine-6 (IL-6), l'interleukine-1β (IL-1β) et le facteur de nécrose tumorale-α (TNF-α), déclenchant ainsi une « tempête de cytokines »10,11, considérée comme un facteur majeur des lésions pulmonaires et de la progression de la maladie. D'autre part, au stade précoce de l'infection, le SARS-CoV-2 peut supprimer la réponse IFN-I de l'hôte par plusieurs mécanismes, entraînant une immunité antivirale médiée par l'IFN-I altérée12,13,14. Par conséquent, une réponse interféron retardée accompagnée d'une élévation des niveaux de cytokines pro-inflammatoires est considérée comme une caractéristique distinctive de la COVID-196,15.
Les modèles animaux actuellement disponibles pour la COVID-19 reposent largement sur des souris transgéniques exprimant hACE2, des souches virales adaptées à la souris, ou d'autres espèces telles que les furets et les primates non humains16,17. Toutefois, les modèles conventionnels d'infection par le SARS-CoV-2 chez la souris échouent souvent à reproduire intégralement les caractéristiques hyperinflammatoires de la COVID-1918,19,20. Le LPS, un agoniste du TLR4, induit des réponses inflammatoires intenses et est couramment utilisé dans les modèles de lésion pulmonaire aiguë21. Par conséquent, le modèle induit par le SARS-CoV-2 et le LPS décrit dans cette étude est conçu pour des investigations centrées sur les lésions pulmonaires associées à la COVID-19, en particulier les mécanismes sous-jacents à l'activation inflammatoire excessive et aux réponses immunitaires antivirales altérées. Comparé aux modèles utilisant uniquement le SARS-CoV-2, cette approche met en évidence les caractéristiques immuno-inflammatoires tout en conservant le contexte de l'infection virale. Ce modèle présente un potentiel considérable pour l'étude des mécanismes immuno-inflammatoires, plutôt que pour la modélisation de la transmission virale ou du déroulement naturel complet de l'infection par le SARS-CoV-2.
Ce protocole décrit la mise en place procédurale d'un modèle murin d'atteinte pulmonaire associée à la COVID-19 induite par le SARS-CoV-2 et le LPS. Compte tenu des limites des modèles existants à reproduire la dysrégulation immuno-inflammatoire associée à la COVID-19, cette approche offre une plateforme pratique pour l'étude des mécanismes de la maladie et l'évaluation de stratégies thérapeutiques potentielles. Le modèle a été évalué systématiquement par histopathologie pulmonaire, charge virale, cytokines inflammatoires et réponses en IFN-I.
Protocole
Cette étude a établi un modèle murin de lésion pulmonaire associée à la COVID-19 par instillation intranasale de SARS-CoV-2 et de LPS, offrant ainsi une alternative stable et rentable aux modèles murins transgéniques. Le protocole expérimental a été approuvé par le Centre de contrôle et de prévention des maladies du Sichuan et a reçu une approbation en matière d'éthique animale [CDC du Sichuan (approbation d'éthique animale) n° 005 (2025)]. Toutes les procédures ont été réalisées en stricte conformité avec les lignes directrices pertinentes et les réglementations en matière de biosécurité.
Des informations détaillées sur les réactifs principaux et l'équipement sont fournies dans le Tableau des matériaux.
1. Conception du protocole d'étude
- Attribuer aléatoirement des souris BALB/c au groupe témoin ou au groupe modèle.
- Administrer le SARS-CoV-2 par voie intranasale aux souris du groupe modèle au jour 0.
- Administrer le LPS par voie intranasale aux souris du groupe modèle au jour 2.
- Administrer un volume équivalent de sérum physiologique par voie intranasale aux souris témoins aux points temporels correspondants.
- Sacrifier toutes les souris au jour 3 après l'infection par le SARS-CoV-2 et prélever le tissu pulmonaire pour la validation du modèle.
NOTE : Le déroulement expérimental est illustré dans Figure 1A.
2. Préparation
- Préparation des animaux
- Utiliser des souris femelles BALB/c spécifiques sans pathogènes (SPF) âgées de 6 à 8 mois et pesant environ 25 à 30 g.
- Répartir aléatoirement les souris en deux groupes, témoin ou modèle, à l’aide d’une table de nombres aléatoires, avec quatre animaux par groupe.
- Élever les souris dans des conditions standard de laboratoire avec un accès libre à la nourriture et à l’eau.
NOTE : Des études antérieures ont montré que les souris âgées sont plus sensibles à l’infection intranasale par le SARS-CoV-2 que les souris jeunes18,22. Par conséquent, des souris BALB/c âgées ont été choisies dans cette étude afin de faciliter la mise en place d’un modèle de lésion pulmonaire associée au SARS-CoV-2. - Inoculer chaque souris par voie intranasale avec 100 µL de suspension virale, correspondant à une dose infectieuse finale de 4,5 x 10⁵ TCID₅₀ par souris.
NOTE : Le SARS-CoV-2 a été fourni par le Centre de contrôle et de prévention des maladies du Sichuan. La souche utilisée dans cette étude était la variante Omicron du SARS-CoV-2, avec une concentration virale de 4,5 x 10⁶ TCID₅₀/mL.
PRÉCAUTION : Étant donné que le SARS-CoV-2 est un micro-organisme hautement pathogène, toutes les manipulations liées au virus doivent être effectuées dans une installation de niveau de biosécurité animale 3 (ABSL-3). Optimiser la dose infectieuse en fonction d’expériences préliminaires lors de l’utilisation de différentes variantes virales ou de modèles animaux.
- Préparation de la solution de travail
- Préparation de la solution mère de LPS : Peser 3 mg de poudre de LPS et les dissoudre dans 1 mL de sérum physiologique. Mélanger doucement ou agiter au vortex jusqu’à dissolution complète afin d’obtenir une solution mère à une concentration de 3 mg/mL. Avant administration, diluer davantage cette solution mère avec du sérum physiologique pour atteindre la concentration de travail souhaitée, en fonction du poids corporel des souris.
- Préparation de la solution anesthésique : Reconstituer la poudre avec l’eau stérile pour injection fournie dans le paquet de Zoletil afin de préparer une solution au rapport masse/volume requis pour une utilisation ultérieure.
- Préparation de la solution virale de travail : Décongeler lentement sur de la glace, dans une hotte de sécurité biologique, 1 mL de suspension virale de SARS-CoV-2 avant utilisation.
NOTE : Suivre les instructions des fabricants respectifs lors de la préparation et de l’utilisation de toutes les solutions de travail.
3. Administration intranasale chez la souris
- Pesez chaque souris avant l'administration et enregistrez le poids corporel.
- Calculez les doses de Zoletil et de LPS en fonction du poids corporel de chaque souris.
- Préparez les solutions de travail correspondantes et prélevez les volumes requis à l’aide d’une seringue appropriée pour l’administration ultérieure.
- Immobilisation de la souris : Saisissez délicatement la peau au niveau de la nuque à l’aide du pouce et de l’index de la main gauche, en tenant la peau située derrière les oreilles et le cou.
- Placez l’animal dans la paume de la main tout en utilisant l’annulaire et l’auriculaire pour maintenir le dos et la queue. Positionnez la souris en décubitus dorsal, le ventre complètement exposé et le corps stabilisé.
- Antisépsie : Désinfectez le site d’injection abdominale avec de l’éthanol à 75 % à l’aide d’un coton stérile.
- Anesthésie : Insérez l’aiguille de la seringue contenant le Zoletil (25 mg/kg) à environ 0,5 cm sur le côté de la ligne médiane du bas-ventre. Enfoncez l’aiguille à un angle de 45° dans la cavité péritonéale sur une profondeur d’environ 2 à 3 mm après avoir pénétré la peau. Aspirez pour vous assurer qu’il n’y a pas de sang, puis administrez lentement l’anesthésique.
NOTE : Optimisez la dose d’anesthésique en fonction d’expériences pilotes afin d’assurer une anesthésie adéquate et de minimiser la mortalité. Évitez les ponctions répétées afin de limiter les lésions tissulaires. - Confirmation de l’anesthésie : Vérifiez l’état anesthésié en observant une respiration stable et régulière, sans signe de dyspnée ni de détresse respiratoire.
- Instillation intranasale de SARS-CoV-2 (jour 0) : Administrez lentement, goutte à goutte, 100 µL de suspension virale de SARS-CoV-2 (50 µL par narine) sur les narines externes à l’aide d’une micropipette ou d’une seringue, durant un cycle respiratoire régulier et au début de l’inspiration.
- Alternez les narines afin de favoriser une inhalation uniforme. Traitez les souris témoins avec un volume équivalent de sérum physiologique en suivant la même procédure.
NOTE : Administrez la solution goutte à goutte, en vous assurant que chaque goutte est inhalée dans la cavité nasale avant d’appliquer la suivante, jusqu’à atteindre le volume cible. - Manipulation après administration : Maintenez la tête de la souris légèrement surélevée pendant environ 30 à 60 secondes après l’instillation intranasale afin de faciliter l’acheminement de la solution vers les voies respiratoires inférieures. Replacez les souris dans leurs cages dès l’apparition des signes de récupération de l’anesthésie et surveillez-les jusqu’à ce que la conscience soit entièrement restaurée.
- Enregistrement et surveillance : Notez le volume administré et le numéro d’identification de chaque souris. Surveillez continuellement les animaux pendant toute la durée de l’expérience en ce qui concerne leur survie et leur état physiologique général.
- Instillation intranasale de LPS (jour 2) : Administrez du LPS aux souris le jour 2 suivant l’infection par SARS-CoV-2. Effectuez l’administration intranasale de LPS (5 mg/kg) en suivant le même protocole que celui utilisé pour l’administration de SARS-CoV-2. Administrez un volume équivalent de sérum physiologique aux souris témoins selon la même procédure.
NOTE : À cette étape, le LPS et le sérum physiologique ont été administrés selon la même procédure que l’inoculation de SARS-CoV-2, y compris l’anesthésie et la délivrance intranasale.
4. Dissection de la souris et prélèvement du tissu pulmonaire
- Endormir les souris au jour 3 après l'infection par le SARS-CoV-2 pour la collecte des tissus. Anesthésier d'abord les animaux, puis les sacrifier par dislocation cervicale. Traiter les souris témoins selon la même procédure.
NOTE : Pour des procédures détaillées concernant la dislocation cervicale, voir le Fichier Supplémentaire 1. - Fixer la souris euthanasiée en position dorsale sur une planche de dissection, en exposant complètement les régions abdominale et thoracique. Humidifier le pelage abdominal avec de l'éthanol à 75 % afin de minimiser la contamination.
- Utiliser des ciseaux stériles pour couper soigneusement le sternum le long des marges costales bilatérales et ouvrir progressivement la cavité thoracique. Utiliser une pince pour écarter délicatement les tissus et disséquer les poumons progressivement à partir des structures thoraciques environnantes, en minimisant les lésions mécaniques du tissu pulmonaire.
NOTE : Contrôler attentivement l'orientation des pointes des ciseaux pendant la coupe afin d'éviter d'endommager le cœur, les poumons et les structures vasculaires principales. - Placer immédiatement les tissus pulmonaires prélevés dans du PBS prérefroidi ou une solution saline isotonique, puis les rincer doucement 2 à 3 fois pour éliminer le sang résiduel et les débris. Absorber l'excès de liquide en surface à l'aide d'un papier filtre sans peluches, sans comprimer pour éviter d'endommager la structure du tissu.
- Peser rapidement les tissus pulmonaires traités à l'aide d'une balance électronique et enregistrer les mesures.
- Prélever le lobe caudal droit et le fixer immédiatement dans du paraformaldéhyde à 4 %, en utilisant un volume égal à dix fois celui du tissu, pour une analyse histopathologique ultérieure.
ATTENTION : Le paraformaldéhyde est toxique ; le manipuler conformément aux directives de sécurité institutionnelles. - Collecter les tissus pulmonaires restants, les diviser en aliquotes dans des cryotubes, les congeler rapidement dans de l'azote liquide, puis les conserver à −80 °C. Réserver le lobe cranial droit, le lobe moyen droit et le lobe accessoire pour la détection de la charge virale de SARS-CoV-2 et des cytokines pro-inflammatoires, et conserver le poumon gauche pour une analyse par ELISA.
ATTENTION : L'azote liquide est extrêmement froid ; porter des gants cryogéniques et des lunettes de protection adaptés lors de sa manipulation afin d'éviter les brûlures par le froid ou les engelures. - Nettoyer et stériliser soigneusement tous les instruments selon les procédures standard après la dissection. Éliminer les carcasses animales et les déchets biologiques conformément aux directives institutionnelles et réglementaires applicables aux expériences sur les animaux.
5. Coloration par l'hématoxyline-éosine (HE)23
- Fixer les tissus pulmonaires frais dans du paraformaldéhyde à 4 % à température ambiante pendant 24 h.
REMARQUE : Contrôlez soigneusement la durée de fixation. Évitez une fixation insuffisante, qui pourrait entraîner une préservation incomplète du tissu, ainsi qu'une fixation prolongée, qui pourrait provoquer un réticulation excessive des protéines et nuire à la qualité de la coloration. - Traiter les tissus fixés à l'aide d'un appareil automatique de traitement des tissus pour une déshydratation progressive, un éclaircissement et une infiltration à la paraffine.
REMARQUE : Le protocole pour le processeur automatique de tissus est fourni dans Fichier supplémentaire 2. - Placer les tissus imprégnés de paraffine dans des moules d'inclusion. Ajouter de la paraffine fondue et orienter soigneusement le tissu.
- Transférez les moules sur une plaque froide pour solidification. Retirez les blocs de paraffine des moules après durcissement complet.
- Monter les blocs de paraffin sur un microtome et régler la surface de coupe de manière à ce qu'elle soit parallèle à la lame. Réaliser des coupes sériées d'une épaisseur d'environ 3–5 µm.
- Transférez immédiatement les sections dans un bain-marie à environ 45 °C pour la flottaison afin de permettre une expansion complète.
- Prendre les sections à l'aide de lames en immergeant verticalement une extrémité de la lame dans l'eau et utiliser une pince pour faciliter l'adhérence correcte des sections sur la surface de la lame.
- Placer les lames dans un 65 °C sécher au sèche-lame pendant environ 1 h pour améliorer l'adhérence du tissu.
REMARQUE : Ajuster le temps de séchage en fonction du type de tissu, de l'épaisseur des sections et des conditions de l'équipement. Éviter la surchauffe afin de prévenir les dommages tissulaires. - Effectuer une coloration HE sur les coupes séchées à l'aide d'un colorateur automatique.
REMARQUE : Le protocole pour le colorateur automatisé est fourni dans Fichier supplémentaire 3. - Retirez les sections colorées et faites-les sécher à l'air. Appliquez une goutte de milieu de montage neutre et posez une lame de couverture sur les lames. Examinez les sections au microscope optique après solidification du milieu de montage.
6. Expression de la charge virale du SARS-CoV-2 et des cytokines pro-inflammatoires dans le tissu pulmonaire
- Homogénéisation du tissu pulmonaire
- Préparer des tubes d'homogénéisation exempts de RNase en ajoutant 4 à 5 billes d'acier inoxydable (3 mm de diamètre) et 900 µL de tampon de lyse prérefroidi comme milieu d'homogénéisation.
NOTA : Ajuster le volume de tampon de lyse en fonction du poids du tissu, généralement selon un rapport d’environ 9 mL pour 1 g de tissu. - Peser environ 50 mg de tissu pulmonaire, hacher finement le tissu et le transférer dans le tube d'homogénéisation.
- Homogénéiser le tissu à l’aide d’un broyeur à tissus (60 Hz, 60 s, pendant 2 à 3 cycles avec des intervalles de 10 s entre les cycles).
NOTA : Optimiser les paramètres d’homogénéisation en fonction de l’appareil et du type de tissu. - Examiner l’échantillon après homogénéisation afin de s’assurer d’une disruption complète. Répéter le processus d’homogénéisation s’il reste des fragments visibles jusqu’à obtention d’un lysat homogène.
- Préparer des tubes d'homogénéisation exempts de RNase en ajoutant 4 à 5 billes d'acier inoxydable (3 mm de diamètre) et 900 µL de tampon de lyse prérefroidi comme milieu d'homogénéisation.
- Extraction colonne de l'ARN total à partir du tissu pulmonaire
NOTA : Extraire l’ARN total du tissu pulmonaire à l’aide d’une méthode de purification par colonne selon les instructions du fabricant. Appliquer des méthodes alternatives d’extraction de l’ARN selon les manuels produits correspondants le cas échéant.- Transférer l’homogénat dans un nouveau tube microcentrifuge de 2 mL exempt de RNase. Ajouter 100 µL de solution d’élimination de l’ADN génomique (gDNA Eliminator). Fermer hermétiquement le tube et agiter vigoureusement pendant 15 à 20 s.
- Ouvrir brièvement le bouchon, ajouter 180 µL de chloroforme et vortexer soigneusement pendant 15 s.
ATTENTION : Le chloroforme est volatil et toxique ; manipuler sous hotte chimique ou dans un endroit bien ventilé, et porter des équipements de protection individuelle appropriés afin d’éviter toute inhalation ou contact cutané. - Incuber l’échantillon à température ambiante pendant 2 min, puis centrifuger à 12 000 x g pendant 15 min à 4 °C.
- Transférer délicatement la phase aqueuse supérieure dans un nouveau tube. Ajouter un volume égal d’éthanol à 70 % et mélanger soigneusement par vortexage.
NOTA : Éviter de perturber l’interphase et la couche organique lors du prélèvement de la phase aqueuse afin de garantir la pureté de l’ARN. Passer directement à l’étape suivante après l’ajout d’éthanol à 70 %, sans centrifugation. - Transférer le mélange dans une colonne de centrifugation et centrifuger à 8 000 x g pendant 15 s. Jeter le flux traversant.
- Ajouter 700 µL de tampon de lavage dans la colonne de centrifugation et centrifuger à 8 000 x g pendant 15 s. Jeter le flux traversant.
- Ajouter 500 µL de tampon de lavage dans la colonne de centrifugation et centrifuger à 8 000 x g pendant 15 s. Répéter cette étape de lavage une fois.
- Transférer la colonne de centrifugation dans un nouveau tube collecteur et centrifuger à 12 000 x g pendant 1 min afin d’éliminer tout résidu de tampon de lavage.
- Placer la colonne de centrifugation dans un nouveau tube microcentrifuge de 1,5 mL exempt de RNase. Ajouter 30 µL d’eau exempte de RNase directement au centre de la membrane et centrifuger à 8 000 x g pendant 1 min pour éluer l’ARN.
NOTA : Ajuster le volume d’eau exempte de RNase entre 30 et 50 µL selon les applications en aval. Utiliser un volume d’élution plus faible lorsque une concentration élevée d’ARN est requise.
- Détection de la charge virale du SARS-CoV-2 par PCR numérique en temps réel (RT-dPCR)
NOTA : Un test RT-dPCR en une étape a été utilisé pour la quantification absolue de l’ARN du SARS-CoV-2. Des jeux spécifiques d’amorces-sondes ciblant le gène de la nucléocapside (N) ont été utilisés pour déterminer le nombre de copies d’ARN viral.- Dégeler les échantillons d’ARN et les réactifs sur de la glace.
- Préparer le mélange de réaction RT-dPCR selon les instructions du fabricant.
- Combiner 20 µL de mélange de réaction RT-dPCR avec 20 µL de matrice d’ARN. Vortexer brièvement le mélange, le centrifuger rapidement, puis le maintenir sur de la glace.
- Charger les 40 µL de mélange de réaction dans les puits de la puce de PCR numérique et sceller la puce conformément au protocole de l’appareil.
- Réaliser l’amplification selon les conditions de cyclage thermique suivantes : 50 °C pendant 40 min (1 cycle), 95 °C pendant 2 min (1 cycle), suivis de 40 cycles de 95 °C pendant 15 s et 57 °C pendant 60 s. Régler les canaux de détection sur VERT (250 ms) et ROUGE (150 ms).
- Détection de l’expression des cytokines inflammatoires par PCR quantitative en temps réel (RT-qPCR)
- Déterminer la concentration et la pureté de l’ARN à l’aide d’un spectrophotomètre UV.
- Utiliser 1 000 ng d’ARN total par réaction pour la transcription inverse afin de synthétiser l’ADN complémentaire (ADNc) selon les instructions du fabricant.
- Réaliser la RT-qPCR en utilisant 100 ng d’ADNc par réaction comme matrice, avec un mélange maître PCR SYBR Green et des amorces spécifiques aux gènes. Utiliser les conditions de cyclage suivantes : 95 °C pendant 2 min, suivies de 40 cycles de 95 °C pendant 5 s et 60 °C pendant 10 s. Les séquences des amorces sont indiquées dans le tableau 1.
NOTA : Optimiser les conditions de réaction en fonction des réactifs et instruments spécifiques utilisés, et suivre les instructions correspondantes du fabricant. - Utiliser GAPDH comme gène de référence interne et calculer les niveaux d’expression génique relative selon la méthode 2−ΔΔCt.
7. Détection des cytokines pro-inflammatoires dans le tissu pulmonaire par dosage immunoenzymatique (ELISA)24
REMARQUE : Utilisez les kits ELISA conformément aux protocoles spécifiques fournis par les différents fabricants. Suivez strictement les instructions du fabricant correspondant lors de l'utilisation de kits provenant de fournisseurs alternatifs.
- Homogénéisez le tissu pulmonaire comme décrit ci-dessus. Utilisez du PBS ou un tampon de lyse tissulaire spécifique à l'ELISA comme milieu d'homogénéisation.
- Centrifugez les échantillons homogénéisés (par exemple, 12 000 x g, 4 °C, 10 min) et récupérez le surnageant pour les analyses ultérieures.
- Équilibrez le kit ELISA à température ambiante pendant 30 min avant utilisation. Retirez les bandes de microplaque nécessaires du sachet en aluminium.
- Préparez les étalons, les puits d'échantillons et les puits témoins selon les instructions du fabricant. Ajoutez 50 µL d'étalons dans les puits d'étalonnage et 10 µL d'échantillon plus 40 µL de tampon de dilution d'échantillon dans les puits d'échantillons. Effectuez deux réplicats techniques pour chaque étalon et chaque échantillon.
- Ajoutez 100 µL d'anticorps de détection conjugué à la peroxydase de raifort (HRP) dans chaque puit d'étalon et d'échantillon, sauf dans les puits témoins. Scellez la plaque avec un film adhésif et incubez à 37 °C pendant 60 min.
- Éliminez le liquide de chaque puit après l'incubation et tapez délicatement la plaque sur du papier absorbant pour éliminer le liquide résiduel.
- Ajoutez du tampon de lavage dans chaque puit, laissez agir pendant 1 min, puis éliminez le tampon. Essuyez la plaque pour l'assécher. Répétez cette étape de lavage cinq fois au total.
- Ajoutez successivement 50 µL de solution substrat A et 50 µL de solution substrat B dans chaque puit. Mélangez doucement la plaque et incubez-la à 37 °C à l'abri de la lumière pendant 15 min pour permettre le développement de la couleur.
- Arrêtez la réaction en ajoutant 50 µL de solution d'arrêt dans chaque puit. Mesurez la densité optique (DO) dans les 10 min à 450 nm à l'aide d'un lecteur de microplaque.
- Élaborez une courbe d'étalonnage en portant les concentrations des étalons en abscisse et les valeurs de DO en ordonnée, puis ajustez la courbe. Calculez les concentrations des cytokines cibles dans les échantillons en substituant les valeurs de DO dans l'équation de la courbe d'étalonnage et multipliez par les facteurs de dilution correspondants.
- Déterminez la concentration totale en protéines dans le tissu pulmonaire à l'aide d'un kit d'essai aux protéines BCA. Normalisez les concentrations finales des cytokines par rapport à la teneur totale en protéines et exprimez les résultats en quantité de cytokine cible par milligramme de protéine totale (par exemple, pg/mg de protéine).
Résultats
La validation du modèle a été effectuée en évaluant les modifications histopathologiques pulmonaires, la charge virale du SARS-CoV-2, ainsi que les niveaux de cytokines pro-inflammatoires et d'interférons de type I dans les groupes témoin et modèle.
Analyse statistique
Les données sont présentées comme moyenne ± erreur standard (ES). Un test t de Student non apparié a été utilisé pour comparer les groupes modèle et contrôle. Ce test a été choisi car il convient pour comparer les moyennes de variables continues entre deux groupes indépendants. Dans cette étude, les souris ont été réparties indépendamment et aléatoirement dans les deux groupes, satisfaisant ainsi à l'hypothèse d'indépendance des échantillons. Une valeur de p < 0,05 a été considérée comme statistiquement significative.
Modifications du poids corporel et de l'indice pulmonaire chez les souris
Comme illustré dans la Figure 1B, par rapport aux valeurs de base avant la modélisation, le poids corporel des souris du groupe modèle était significativement réduit après l'infection, avec une différence statistiquement significative (p < 0,05). Comme indiqué dans la Figure 1C, l'indice pulmonaire des souris du groupe modèle était significativement augmenté par rapport à celui du groupe témoin (p < 0,01), ce qui est conforme aux caractéristiques typiques des lésions pulmonaires. Aucun décès n'a été observé pendant la période expérimentale, et toutes les souris ont survécu jusqu'au point final.
Modifications histopathologiques du tissu pulmonaire et charge virale du SARS-CoV-2 chez les souris
Figure 2 présente les altérations histopathologiques et la charge virale dans les tissus pulmonaires de souris appartenant aux deux groupes. La coloration à l'HE a montré que le groupe témoin présentait une architecture pulmonaire intacte, tandis que le groupe modèle affichait des modifications pathologiques pulmonaires importantes, incluant un épaississement du septum alvéolaire, une infiltration de cellules inflammatoires et une rupture de la structure alvéolaire (Figure 2A). Une analyse quantitative a en outre confirmé que le score de lésion pulmonaire ainsi que le score d'inflammation alvéolaire étaient significativement augmentés dans le groupe modèle par rapport au groupe témoin (p < 0,001), démontrant ainsi l'induction réussie de lésions pulmonaires et de réponses inflammatoires (Figure 2B,C).
En outre, un niveau important d'expression de l'ARN de SARS-CoV-2 a été détecté dans les tissus pulmonaires du groupe modèle. Au troisième jour suivant l'infection, la charge virale moyenne dans le tissu pulmonaire a atteint 5,5 x 10⁸ copies/g (Figure 2D), indiquant une réplication virale réussie et une présence durable à haut niveau dans le poumon.
Modifications des cytokines pro-inflammatoires et de l'IFN-I dans le tissu pulmonaire de souris
Figure 3 illustre les modifications des cytokines inflammatoires et de l'IFN-I dans le tissu pulmonaire de souris. Les résultats ont montré que, par rapport au groupe témoin, l'expression de l'ARNm et les concentrations protéiques d'IL-6, d'IL-1β et de TNF-α dans le tissu pulmonaire du groupe modèle étaient significativement augmentées (p < 0,05) (Figure 3A–F), indiquant une activation marquée de la réponse inflammatoire. En revanche, les résultats de dosage par ELISA ont démontré que les concentrations d'IFN-α et d'IFN-β dans le tissu pulmonaire du groupe modèle étaient significativement réduites par rapport à celles du groupe témoin (p < 0,001) (Figure 3G,H), suggérant une suppression de la réponse immunitaire antivirale.
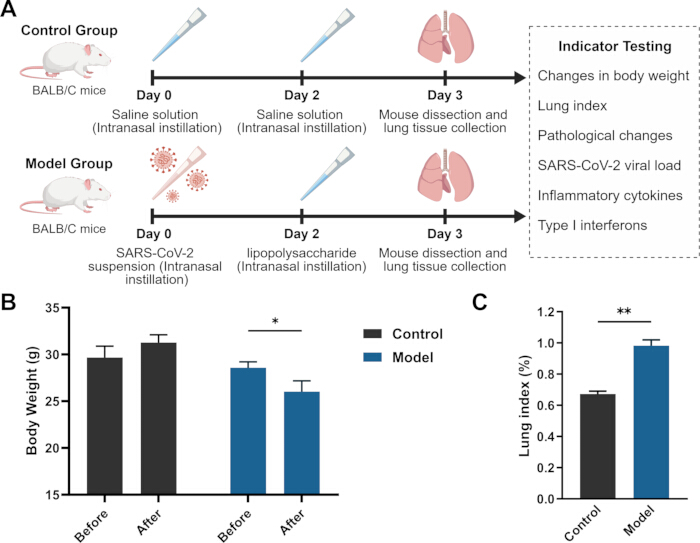
Figure 1 : Schéma du protocole expérimental et variations du poids corporel et de l'indice pulmonaire chez les souris. (A) Schéma du protocole expérimental. (B) Variations du poids corporel des souris. (C) Variations de l'indice pulmonaire des souris. Les données sont présentées comme moyenne ± erreur standard (ES) pour chaque groupe. Le test t de Student a été utilisé pour évaluer les différences statistiques entre les groupes. *p < 0,05 ; **p < 0,01 ; ***p < 0,001. Figure 1A a été créée avec BioGDP.com25. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
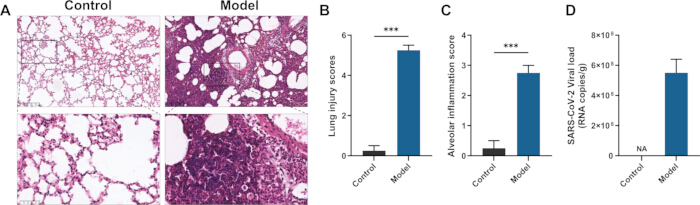
Figure 2 : Modifications histopathologiques et charge virale du SARS-CoV-2 dans le tissu pulmonaire de souris. (A) Coloration à l'HE du tissu pulmonaire de souris. (B) Score de lésion pulmonaire (score de Smith). (C) Score d'inflammation alvéolaire (score de Szapiel). (D) Charge virale du SARS-CoV-2 dans le tissu pulmonaire. Les données sont exprimées comme moyenne ± erreur standard (ES) pour chaque groupe. Le test t de Student a été utilisé pour évaluer les différences statistiques entre les groupes. *p < 0,05 ; **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
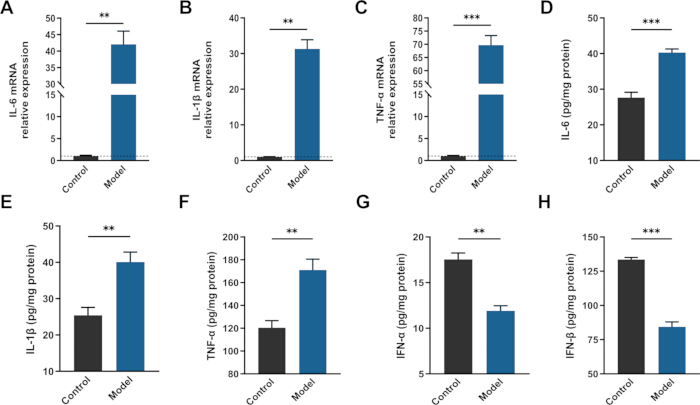
Figure 3 : Modifications des cytokines pro-inflammatoires et de l'IFN-I dans le tissu pulmonaire de souris. (A–C) Expression relative de l'ARNm des cytokines pro-inflammatoires IL-6, IL-1β et TNF-α dans le tissu pulmonaire de souris. (D–F) Niveaux protéiques de l'IL-6, de l'IL-1β et du TNF-α dans le tissu pulmonaire de souris. (G–H) Niveaux d'IFN-α et d'IFN-β dans le tissu pulmonaire de souris. Les données sont présentées sous forme de moyenne ± erreur standard (SE) pour chaque groupe. Le test t de Student a été utilisé pour évaluer les différences statistiques entre les groupes. *p < 0,05 ; **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Amorce | Séquence directe (5’ à 3’) | Séquence inverse (5’ à 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tableau 1 : Séquences d'amorces utilisées dans cette étude. Les séquences d'amorces directes et inversées (5′ vers 3′) pour les gènes cibles et les gènes de référence internes sont indiquées.
Fichier supplémentaire 1 Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 2 Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 3 Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Cette étude a établi un modèle murin de lésion pulmonaire associée à la COVID-19 par instillation intranasale de SARS-CoV-2 et de LPS. Les résultats ont démontré que la co-administration intranasale de SARS-CoV-2 et de LPS induit une réponse inflammatoire intense accompagnée d'une suppression de la signalisation IFN-I. Les souris du groupe modèle ont présenté une perte de poids corporel significative et un indice pulmonaire accru, indiquant une cachexie systémique et une aggravation de la lésion pulmonaire. La coloration à l'HE a en outre confirmé que le groupe modèle présentait une lésion pulmonaire diffuse typique, caractérisée par une rupture de l'architecture alvéolaire et une infiltration étendue de cellules inflammatoires. De plus, par rapport au groupe témoin, les tissus pulmonaires du groupe modèle ont montré une expression significativement accrue de cytokines pro-inflammatoires clés, notamment IL-6, IL-1β et TNF-α, tandis que les niveaux d'IFN-α et d'IFN-β étaient nettement diminués. Ces résultats suggèrent un état de déséquilibre immunitaire caractérisé par une activation excessive des réponses pro-inflammatoires accompagnée d'une immunité antivirale supprimée, renforçant ainsi la valeur potentielle de ce modèle pour reproduire les caractéristiques immunopathologiques de la maladie.
L'infection par le SARS-CoV-2 est considérée comme un facteur moteur central dans le développement des lésions organiques associées à la COVID-1926,27. Dans cette étude, une charge virale élevée a été détectée dans les tissus pulmonaires de souris modèles, accompagnée de lésions pulmonaires diffuses marquées et d'une infiltration de cellules inflammatoires, suggérant que l'infection virale pourrait être un déclencheur clé de la réponse inflammatoire pulmonaire. Conformément à des rapports antérieurs, l'infection par le SARS-CoV-2 peut induire des modifications pathologiques pulmonaires et une activation immunitaire28 ; toutefois, les modèles conventionnels d'infection par le SARS-CoV-2 chez la souris présentent souvent des réponses inflammatoires limitées et pourraient ne pas reproduire pleinement le phénotype hyperinflammatoire observé chez les patients atteints de COVID-1918,19,20. Par conséquent, une stimulation supplémentaire de l'immunité innée pourrait être nécessaire afin d'étudier plus précisément les mécanismes sous-jacents à la dysrégulation immuno-inflammatoire associée à la maladie. Le LPS, un activateur typique de l'immunité innée, se lie au récepteur Toll-like 4 (TLR4) et déclenche à la fois les voies de signalisation dépendantes de MyD88 et celles dépendantes de TRIF, activant ainsi des programmes transcriptionnels inflammatoires clés tels que NF-κB et induisant l'expression de multiples cytokines pro-inflammatoires29. Des études antérieures ont également démontré que la stimulation par le LPS, seule ou en combinaison avec des composants liés au SARS-CoV-2, peut amplifier les réponses inflammatoires et contribuer à des phénotypes semblables aux lésions pulmonaires aiguës, soutenant ainsi la pertinence de l'utilisation du LPS comme stimulus inflammatoire dans la recherche sur la COVID-1930,31,32. Dans la présente étude, des niveaux significativement élevés d'IL-6, d'IL-1β et de TNF-α ont été observés dans les tissus pulmonaires du groupe modèle, suggérant que le LPS agit comme un amplificateur inflammatoire dans le contexte de l'infection par le SARS-CoV-2, plutôt que de simplement représenter une co-infection bactérienne. Comparé aux modèles inflammatoires induits uniquement par le LPS, qui ne comportent pas de fond d'infection virale, le modèle combiné établi dans cette étude intègre les altérations immunitaires induites par le SARS-CoV-2 avec l'activation inflammatoire médiée par le LPS, offrant ainsi une plateforme plus complète pour l'étude des lésions pulmonaires associées à la COVID-19.
Les IFN-I sont des molécules effectrices clés de l'immunité antivirale de l'hôte et exercent des fonctions antivirales larges en induisant un large éventail de gènes stimulés par l'interféron (ISG)33. Toutefois, il a été démontré que le SARS-CoV-2 antagonise la signalisation des IFN-I par plusieurs mécanismes, notamment l'interférence avec la transduction du signal médiée par les récepteurs de reconnaissance de motifs (PRR), la suppression de l'activation du facteur régulateur de l'interféron (IRF) et le blocage de la signalisation JAK-STAT en aval, altérant ainsi les défenses antivirales de l'hôte14,34. Dans cette étude, des niveaux significativement réduits d'IFN-α et d'IFN-β ont été observés dans les tissus pulmonaires du groupe modèle, indiquant qu'en présence des effets synergiques de l'infection virale et de la stimulation par le LPS, l'hôte présentait non seulement une activation inflammatoire excessive, mais aussi une suppression concomitante de l'immunité antivirale. Ce type de dysrégulation immunitaire est considéré comme l'une des caractéristiques immunologiques clés du développement et de la progression de la COVID-198. Par conséquent, le modèle actuel reproduit partiellement ce processus pathologique complexe, offrant ainsi un outil expérimental précieux pour l'étude approfondie de la dysrégulation immunitaire associée à la COVID-19 et pour le développement d'interventions thérapeutiques connexes.
Le modèle murin de la maladie à COVID-19 établi dans cette étude, fondé sur l'administration combinée du SARS-CoV-2 et du LPS, est capable de reproduire des caractéristiques clés de la pathologie de la maladie, notamment une élévation des cytokines pro-inflammatoires et une suppression de la signalisation de l'IFN-I, imitant ainsi partiellement le déséquilibre immunitaire observé lors de lésions pulmonaires associées à la COVID-19. Comparé aux modèles d'infection virale unique, cette approche combinée intègre un stimulus exogène de l'immunité innée afin d'amplifier les réponses inflammatoires pertinentes pour la maladie, permettant ainsi l'étude des processus pathologiques liés à une inflammation excessive et à une immunité antivirale altérée. En conséquence, ce modèle pourrait s'avérer utile pour évaluer in vivo des stratégies candidates de type anti-inflammatoire, immunomodulatrice ou de réparation pulmonaire, en particulier celles ciblant la dysrégulation immunitaire plutôt que la réplication virale seule.
Cependant, plusieurs limites de cette étude doivent être reconnues. Premièrement, le LPS induit l'inflammation principalement par l'activation du TLR4, ce qui ne reflète pas entièrement les interactions complexes entre le virus et l'hôte observées dans le cas clinique de la COVID-19 et pourrait modifier la réponse inflammatoire. Deuxièmement, bien que des expériences comparatives avec des groupes infectés uniquement par le SARS-CoV-2 ou traités uniquement au LPS aient été réalisées lors de la phase préliminaire d'optimisation, ces données ne sont pas incluses dans le manuscrit. De futures études évalueront davantage les effets individuels et combinés du SARS-CoV-2 et du LPS afin de mieux définir la contribution de chaque composant. Troisièmement, ce modèle vise à reproduire les caractéristiques immunopathologiques clés des lésions pulmonaires associées à la COVID-19, en particulier la dysrégulation immuno-inflammatoire, plutôt que l'ensemble du déroulement naturel de l'infection par le SARS-CoV-2. Enfin, bien que la dose de SARS-CoV-2 et la concentration de LPS aient été déterminées à partir d'expériences préliminaires d'optimisation, des variations entre souches de souris, variants viraux, méthodes d'analyse et conditions expérimentales peuvent affecter la reproductibilité du modèle et nécessitent une validation supplémentaire dans différents contextes de recherche. Dans les conditions optimisées décrites dans ce protocole, le taux global de réussite de la mise en place du modèle était d'environ 90 % ; toutefois, ce taux peut varier selon les différents contextes expérimentaux. De futures études pourraient optimiser davantage ce modèle en intégrant différents variants du SARS-CoV-2, des souches de souris génétiquement modifiées ou des approches avancées de profilage immunitaire, telles que l'analyse transcriptomique à la cellule unique, afin de mieux caractériser les interactions entre le virus et l'hôte et d'identifier des cibles thérapeutiques. Ces efforts pourraient améliorer encore la pertinence translationnelle de ce modèle pour la recherche sur la COVID-19.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à divulguer.
Remerciements
Cette recherche a été soutenue par la Fondation nationale des sciences naturelles de Chine (82374291) ; le programme scientifique et technologique du Sichuan (2024NSFJQ0059) ; le sujet spécial de recherche scientifique de l'Administration du Sichuan de la médecine traditionnelle chinoise (2024zd005) ; le projet 2022 « Tianfu Qingcheng Plan » des talents scientifiques et technologiques de premier plan de Tianfu (n° Chuan Qingcheng 1090) ; le fonds de recherche conjoint de la Commission de la santé de Chengdu et de l'Université de médecine traditionnelle chinoise de Chengdu (WXLH202403091).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Procédé automatisé de traitement des tissus | Dakewe Biotech Co., Ltd. | HP300 | Utilisé pour la déshydratation des tissus. |
| Colorateur automatique | Leica Biosystems | LEICA ST5010 | Utilisé pour la coloration HE. |
| Centrifugeuse | DLAB Scientific | D3024R | Utilisée pour la centrifugation des échantillons ou des réactifs. |
| Bain-marie à température constante | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Utilisé pour les bains-marie à température constante. |
| Système de PCR numérique | QIAGEN | QIAcuity One | Utilisé pour la RT-dPCR. |
| SuperMix TransScript tout-en-un pour la synthèse de la première chaîne d'ADN complémentaire pour qPCR (élimination en une étape de l'ADN génomique) | TransGen Biotech Co.,Ltd. | AT341 | Utilisé pour la transcription inverse. |
| Solution d'éosine | BASO | BA4024 | Utilisée pour la coloration histologique. |
| Système de PCR quantitative en temps réel avec détection fluorescente | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Utilisé pour la RT-qPCR. |
| Solution d'hématoxyline | BASO | BA4041 | Utilisée pour la coloration histologique. |
| Logiciel IBM SPSS Statistics | IBM Corp., Armonk, NY, USA | version 22.0 | Utilisé pour l'analyse statistique. |
| Lipopolysaccharides d'Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Utilisés pour la modélisation chez la souris. |
| Lecteur de microplaques | Molecular Devices | SpectraMax Plus 384 | Utilisé pour le Elisa. |
| KIT ELISA pour IFN-α chez la souris | ZCIBIO Technology Co., Ltd. | ZC-37863W | Utilisé pour détecter les niveaux d'IFN-α dans le tissu pulmonaire de souris. |
| KIT ELISA pour IFN-β chez la souris | ZCIBIO Technology Co., Ltd. | ZC-37887W | Utilisé pour détecter les niveaux d'IFN-β dans le tissu pulmonaire de souris. |
| KIT ELISA pour IL-1β chez la souris | ZCIBIO Technology Co., Ltd. | ZC-37974W | Utilisé pour détecter les niveaux d'IL-1β dans le tissu pulmonaire de souris. |
| KIT ELISA pour IL-6 chez la souris | ZCIBIO Technology Co., Ltd. | ZC-37988W | Utilisé pour détecter les niveaux d'IL-6 dans le tissu pulmonaire de souris. |
| KIT ELISA pour TNF-α chez la souris | ZCIBIO Technology Co., Ltd. | ZC-39024W | Utilisé pour détecter les niveaux de TNF-α dans le tissu pulmonaire de souris. |
| KIT RT-PCR en une étape pour PCR numérique | QIAGEN | 4829104 | Utilisé pour la PCR numérique. |
| Machine d'inclusion en paraffine | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Utilisée pour l'inclusion en paraffine du tissu pulmonaire de souris. |
| KIT QuantiNova SYBR PCR Mix | QIAGEN | 1129280 | Utilisé pour la RT-qPCR. |
| KIT RNeasy Plus Universal Mini | QIAGEN | 1062832 | Utilisé pour l'extraction d'ARN total. |
| Microtome | Leica Biosystems | LEICA RM2235 | Utilisé pour les coupes en paraffine. |
| Billes en acier inoxydable pour homogénéisateur de tissus | Beyotime Biotechnology | F6621 | Utilisées pour l'homogénéisation du tissu pulmonaire. |
| Piscine d'amorces XG 1.0 pour PCR numérique | QIAGEN | 4828104 | Utilisée pour la PCR numérique. |
| Zoletil 50 | VIRBAC | BN9VS7A | Utilisé pour l'anesthésie des souris. |
Références
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.