Le miR-488-3p pourrait servir de nouveau marqueur diagnostique non invasif pour la PR. Le miR-488-3p module la fonction biologique des synoviocytes via ROCK1. Il présente une corrélation négative significative avec la gravité de la maladie chez les patients atteints de PR.
Article de recherche
L'expression sérique du mir-488-3p comme biomarqueur diagnostique non invasif chez les patients atteints de polyarthrite rhumatoïde
Dans cet article
Résumé
Résumé
Le diagnostic de l'arthrite rhumatoïde (AR) reste difficile en raison des limites des biomarqueurs existants. L'objectif de l'étude était d'évaluer le potentiel de miR-488-3p sérique comme biomarqueur pour l'AR et de révéler son mécanisme d'action potentiel. L'étude comprenait 135 patients atteints d'arthrite rhumatoïde, 130 patients atteints d'arthrose (AO) et 125 témoins sains. Les niveaux d'expression de miR-488-3p ont été analysés par RT-qPCR. Le mécanisme d'action a été étudié par des tests fonctionnels (CCK-8, cytométrie en flux, ELISA) et des expériences de validation ciblée (gène rapporteur luciférase, RIP). Les niveaux d'expression sérique de miR-488-3p étaient significativement plus faibles chez les patients atteints d'AR que chez les patients atteints d'arthrose (AO) et les témoins sains (p < 0,001). L'analyse de la courbe ROC a montré que miR-488-3p présentait une grande précision diagnostique pour distinguer les patients atteints d'AR des témoins sains et des patients atteints d'AO. miR-488-3p était négativement corrélé avec la vitesse de sédimentation des érythrocytes (VSG), la protéine C-réactive (CRP), le facteur rhumatoïde (FR) et les scores DAS28. La validation fonctionnelle a révélé qu'une surexpression de miR-488-3p inhibait la prolifération et la réponse inflammatoire des synoviocytes tout en induisant l'apoptose. Les études mécanistiques ont montré que miR-488-3p pouvait cibler directement la protéine kinase 1 associée à Rho contenant un motif en coil-coil (ROCK1), qui médie ses effets protecteurs. Le miR-488-3p sérique représente une piste prometteuse en tant que nouveau marqueur diagnostique non invasif pour l'AR et protège les synoviocytes contre les lésions.
Introduction
L'arthrite rhumatoïde (AR) est une maladie auto-immune courante caractérisée par une inflammation synoviale, une érosion articulaire et une destruction1,2. La prévalence mondiale de l'AR est d'environ 0,5 à 1 %3, ce qui affecte gravement la qualité de vie des patients et leur capacité à travailler. La maladie débute de manière insidieuse, et les symptômes précoces sont souvent atypiques, pouvant être facilement mal diagnostiqués ou passés inaperçus4. À mesure que la maladie progresse, elle peut entraîner une déformation articulaire, une perte de fonction et même augmenter le risque de complications telles que les maladies cardiovasculaires5, imposant ainsi un fardeau considérable aux patients, à leurs familles et aux systèmes de santé.
Actuellement, le diagnostic de la PR nécessite une combinaison de symptômes cliniques, de signes, d'analyses de laboratoire et d'évaluations d'imagerie6. Les indicateurs de laboratoire couramment utilisés incluent la vitesse de sédimentation des érythrocytes (VS) et la protéine C-réactive (CRP), qui sont des marqueurs non spécifiques de l'inflammation systémique, ainsi que le facteur rhumatoïde (FR) et les anticorps anti-peptide citrulliné cyclique (anti-CCP), qui constituent des biomarqueurs sérologiques importants pour la PR7,8. Toutefois, ces biomarqueurs traditionnels présentent des limites : le FR peut être positif chez certaines personnes en bonne santé et chez des patients atteints d'autres maladies auto-immunes (taux de faux positifs d'environ 5 %) ; les anticorps anti-CCP, bien qu'ayant une spécificité élevée (>95 %), ont une sensibilité limitée aux stades précoces de la maladie (environ 60–70 %)4,9, et certains patients atteints de PR restent séronégatifs10. Il est donc essentiel de découvrir des biomarqueurs plus sensibles et spécifiques permettant un diagnostic précoce, un suivi de la maladie et une évaluation du pronostic de la PR11.
Les microARN (miARN) constituent un groupe de molécules d'ARN régulateurs non codants endogènes d'environ 22 à 25 bases de longueur12,13. On a découvert que les miARN agissent comme des régulateurs clés dans le développement de diverses maladies, et leur expression anormale est étroitement associée à la pathogenèse des maladies13,14,15, ce qui fait des miARN des biomarqueurs prometteurs pour le diagnostic des maladies et la surveillance thérapeutique. Ces dernières années, le rôle des miARN dans la polyarthrite rhumatoïde (PR) a suscité un intérêt croissant16. Des études ont montré que plusieurs miARN sont associés à une expression dysrégulée (par exemple, miR-146a, miR-155, etc.) dans le sérum, les tissus synoviaux et les cellules mononucléées du sang périphérique (PBMC) des patients atteints de PR17,18,19. Ces miARN contribuent à la pathogenèse de la PR en régulant la production de cytokines inflammatoires, en favorisant la prolifération et l'invasion des cellules synoviales, et en influençant la différenciation des ostéoclastes20. Parmi eux, miR-488 est localisé sur la région 1q25.2 du chromosome humain21, et des études antérieures ont confirmé ses effets neuroprotecteurs : il joue un rôle régulateur dans la progression des gliomes22 et des neuroblastomes23, et notamment, miR-488-3p favorise l'apoptose des chondrocytes ostéoarthrosiques dans l'arthrose (AO)24. Bien que l'AO et la PR soient des maladies articulaires différentes, elles partagent des mécanismes communs dans les processus pathologiques d'inflammation synoviale et de destruction du cartilage25. Nous émettons l'hypothèse que miR-488-3p pourrait jouer un rôle dans la PR en régulant des voies cibles similaires. Toutefois, le rôle spécifique et les mécanismes potentiels de miR-488-3p dans la PR n'ont pas encore été élucidés.
L'étude a examiné les variations des niveaux d'expression sérique de miR-488-3p chez les patients atteints de PR et leur relation avec l'activité de la maladie et les indicateurs cliniques, dans le but d'évaluer sa valeur potentielle en tant que marqueur diagnostique non invasif pour la PR. Cette étude apporte un éclairage nouveau sur le dépistage précoce et la prédiction de l'évolution de la maladie dans la PR, améliorant ainsi le pronostic des patients atteints de PR.
Protocole
L'étude a été approuvée par le Comité d'éthique de l'hôpital Hefei BOE (n° d'approbation 2021–1), et un consentement éclairé écrit a été obtenu de tous les participants avant leur inclusion.
Patients et échantillons
Cette étude a recruté 135 patients atteints de PR (diagnostiquée selon les critères de classification ACR/EULAR 2010) auprès du service de rhumatologie et d'immunologie de l'hôpital Hefei BOE, 130 patients atteints de GO provenant du service d'orthopédie (diagnostiquée selon les critères diagnostiques de l'arthrose de l'Association médicale chinoise 2018) et 125 témoins sains appariés par âge et sexe issus du centre d'examen médical du même hôpital. Les participants avaient entre 30 et 80 ans. Les témoins sains se sont avérés exempts de maladies auto-immunes, de troubles articulaires et d'infections aiguës suite à un examen approfondi de leurs antécédents médicaux, à un examen physique et à des analyses de laboratoire. Les participants ont été exclus s'ils présentaient des maladies auto-immunes associées, des antécédents d'infection ou de traumatisme au cours des trois mois précédents, une tumeur maligne, ou s'ils étaient enceintes ou allaient allaiter.
Échantillonnage et préparation
Du sang veineux à jeun a été prélevé chez tous les sujets de l'étude. Après coagulation à température ambiante pendant 30 min, les échantillons de sérum ont été isolés par centrifugation à 1500 × g pendant 15 min. Le sérum a été stocké à -80 °C jusqu'à analyse ultérieure.
Détection des marqueurs cliniques et sérologiques
Afin d'évaluer de manière exhaustive le statut de la maladie et l'activité inflammatoire, des biomarqueurs cliniques et sérologiques ont été mesurés à l'aide de méthodes standardisées de laboratoire clinique. La VSG a été mesurée selon la méthode de Westergren afin d'évaluer l'inflammation systémique non spécifique. La CRP a été quantifiée à l'aide d'un dosage immunoturbidimétrique (valeur de référence normale : <10 mg/L) pour évaluer la réponse inflammatoire de phase aiguë. Le FR a été mesuré par un dosage immunoenzymatique (ELISA) avec une valeur de référence normale de ≤20 UI/mL. Les anticorps anti-CCP ont été dosés par un ELISA de deuxième génération afin d'obtenir une preuve sérologique pour le diagnostic de la PR.
Lignées cellulaires et culture
Les cellules de synoviocytes humains de type fibroblaste affectées par la PR (HFLS-RA) ont été cultivées dans un milieu de Dulbecco modifié (DMEM) complété avec 10 % de sérum de veau fœtal (SVF) et 1 % de pénicilline-streptomycine. Les cellules ont été maintenues dans un incubateur à 37 °C avec 5 % de CO₂, et les cellules comprises entre les troisième et sixième passages ont été utilisées pour toutes les expériences.
Extraction d'ARN et RT-PCR quantitative en temps réel
L'ARN total a été extrait d'échantillons de sérum à l'aide d'un réactif d'extraction d'ARN. La transcription inverse a été réalisée à l'aide d'un kit de synthèse du brin complémentaire pour les miARN et d'un kit de transcription inverse pour les gènes cibles d'ARN messager (ARNm), conformément aux instructions du fabricant. Une réaction de polymérisation en chaîne en temps réel quantitative (RT-qPCR) a été effectuée à l'aide d'un système de PCR en temps réel et d'un mélange maître PCR à base de SYBR Green. Le programme thermocyclique a été défini à une prédénaturation à 95 °C pendant 30 s, suivie de 40 cycles d'amplification (dénaturation à 95 °C pendant 5 s et recuit/extension à 60 °C pendant 30 s). Chaque échantillon a été analysé en triplets. L'ARN nucléaire petit U6 (U6 snRNA) et la glyceraldéhyde-3-phosphate déshydrogénase (GAPDH) ont servi de gènes de référence endogènes pour la normalisation des miARN et des ARNm, respectivement. Les séquences des amorces ont été résumées dans le Tableau supplémentaire 1. Les niveaux d'expression relative de miR-488-3p et de ses gènes cibles ont été calculés selon la méthode 2−ΔΔCt. Les variations des niveaux d'ARNm des gènes cibles après surexpression ou inhibition de miR-488-3p ont également été analysées afin de vérifier leurs relations régulatrices.
Transfection des cellules
Les cellules HFLS-RA ont été ensemencées dans des plaques de 6 puits à une densité de 5 × 10⁵ cellules/puits. Les cellules ont été transfectées à l’aide d’un réactif de transfection à base de liposomes, conformément aux instructions du fabricant. Les groupes de transfection comprenaient des groupes de transfection simple et des groupes de co-transfection. Les groupes de transfection simple étaient les suivants : 1) contrôle — cellules non transfectées ; 2) contrôle négatif du mimétique (NC) — cellules transfectées avec un contrôle négatif du mimétique de miR-488-3p ; 3) mimétique de miR-488-3p — cellules transfectées avec le mimétique de miR-488-3p ; 4) contrôle négatif de l’inhibiteur — cellules transfectées avec un contrôle négatif de l’inhibiteur de miR-488-3p ; 5) inhibiteur de miR-488-3p — cellules transfectées avec l’inhibiteur de miR-488-3p. Les groupes de co-transfection étaient les suivants : 1) mimétique de miR-488-3p + contrôle d’expression surexprimée (oe-NC) — cellules co-transfectées avec le mimétique de miR-488-3p et le contrôle négatif des vecteurs d’expression surexprimée de ROCK1 ; 2) mimétique de miR-488-3p + oe-ROCK1 — cellules co-transfectées avec le mimétique de miR-488-3p et les vecteurs d’expression surexprimée de ROCK1. Toutes les séquences de transfection sont résumées dans le Tableau supplémentaire 1. Le vecteur d’expression surexprimée de ROCK1 a été construit en clonant la région de la séquence codante (CDS) dans le plasmide pcDNA 3.1. Les cellules transfectées ont été utilisées pour les expériences suivantes 48 heures après la transfection.
Dosage fonctionnel des cellules
Dosage de la prolifération cellulaire (Kit de comptage cellulaire-8 [CCK-8]) : Les cellules HFLS-RA transfectées ont été inoculées dans des plaques de 96 puits à raison de 5 × 10³ cellules/puit, avec trois puits réplicats par groupe. Aux moments 0, 24, 48 et 72 h après transfection, 10 µL de solution CCK-8 ont été ajoutés à chaque puit, suivis d'une incubation à 37 °C pendant 2 h. L'absorbance a été mesurée à 450 nm (longueur d'onde de détection) et 630 nm (longueur d'onde de référence) à l'aide d'un lecteur de microplaques. Le taux de prolifération relatif a été calculé en utilisant le temps 0 h comme valeur de référence.
Détection de l'apoptose (cytométrie en flux) : L'apoptose a été évaluée par analyse à l'aide du test d'apoptose Annexine V-fluorescéine isothiocyanate (FITC)/iodure de propidium (PI). Les cellules ont été transfectées avec les plasmides appropriés, puis recueillies après trypsination. Le taux d'apoptose a été déterminé par cytométrie en flux.
Dosage des facteurs inflammatoires (dosage immunoenzymatique [ELISA]) : les cellules HFLS-RA ont été mises en culture dans des plaques de 24 puits et transfectées avec le mimétique de miR-488-3p, l'inhibiteur de miR-488-3p ou leurs contrôles négatifs correspondants pendant 48 h. Les concentrations d'interleukine-6 (IL-6), de facteur de nécrose tumorale-α (TNF-α) et d'interleukine-1β (IL-1β) dans les surnageants de culture cellulaire ont été quantifiées à l'aide de kits ELISA.
Validation de la cible
Prédiction de la cible : ROCK1 a été prédit comme étant une cible en aval de miR-488-3p à l'aide de la base de données TargetScan26. Les sites de liaison prédits entre miR-488-3p et la région non traduite 3′ (3′UTR) de ROCK1 ont également été identifiés.
Dosage du gène rapporteur Double-Luciférase : La séquence 3′UTR de ROCK1 de type sauvage ou mutante a été clonée dans le plasmide pGL3. Les sites de liaison prédits et les sites mutés sont indiqués dans la Figure 4. Les cellules HEK-293T ont été co-transfectées avec un analogue ou un inhibiteur de miR-488-3p ainsi qu'avec les vecteurs construits27. L'activité luciférase a été mesurée 48 h après la transfection avec l'analogue ou l'inhibiteur de miR-488-3p.
Immunoprécipitation de l'ARN (RIP) : les cellules HFLS-RA ont été incubées avec un anticorps anti-Argonaute 2 (Ago2) (RRID : AB_2882071, dilution 1:200) ou un anticorps de contrôle immunoglobuline G (IgG) (RRID : AB_2819160, dilution 1:5000), suivi d'une extraction de l'ARN et d'une PCR quantitative (qPCR) pour l'enrichissement en ARNm de ROCK1 selon la méthode décrite ci-dessus.
Analyse statistique
L'étude a été analysée statistiquement à l'aide de SPSS 23.0 (RRID : SCR_002865) et de GraphPad Prism 9.0 (RRID : SCR_002798). Les données de mesure ont été exprimées sous la forme moyenne ± écart type (ET). Toutes les expériences ont été réalisées avec trois réplicats biologiques, chaque réplicat biologique étant analysé en triple. Les données brutes ont été jointes en matériau supplémentaire. Les données ont été évaluées à l'aide d'un diagramme de probabilité normale (P-P) avant les tests statistiques paramétriques. Le test t pour échantillons indépendants a été utilisé pour comparer les variables continues de base (par exemple, l'âge, l'indice de masse corporelle [IMC], etc.) et le test du chi-deux a été utilisé pour les variables catégorielles (par exemple, le sexe, etc.). Les niveaux d'expression génique ont été comparés à l'aide d'un test t pour échantillons indépendants. Les variations de la prolifération cellulaire à différents moments ont été analysées par une analyse de variance (ANOVA) à mesures répétées, tandis qu'une ANOVA à un facteur a été utilisée pour comparer les taux d'apoptose déterminés par cytométrie en flux. Une analyse de corrélation a été effectuée à l'aide du coefficient de Spearman (pour les variables ne suivant pas une distribution normale) et du coefficient de Pearson (pour les variables suivant une distribution normale). Les performances diagnostiques ont été évaluées par une analyse de la courbe caractéristique de fonctionnement du récepteur (ROC). La valeur seuil optimale, la sensibilité et la spécificité ont été déterminées à l'aide de l'indice de Youden maximal. Tous les tests statistiques étaient bilatéraux, et une valeur de p < 0,05 a été considérée comme statistiquement significative.
Résultats
Caractéristiques de base des participants à l'étude
Cette étude comprenait 125 témoins sains, 130 patients atteints d'arthrose (OA) et 135 patients atteints de polyarthrite rhumatoïde (RA) pour une analyse systématique (Tableau 1). Aucune différence significative n’a été observée entre les caractéristiques de base des trois groupes en ce qui concerne l’âge (p = 0,191), le sex-ratio (p = 0,203) et l’IMC (p = 0,562), ce qui garantit la comparabilité de la population étudiée. En ce qui concerne les caractéristiques de la maladie, la VSG (82,63 ± 40,32 contre 18,39 ± 6,38 mm/h, p < 0,001) et les taux de CRP (56,33 ± 38,07 contre 10,54 ± 4,98 mg/L, p < 0,001) étaient significativement plus élevés dans le groupe RA que dans le groupe OA, reflétant le niveau d’inflammation systémique. Par ailleurs, le facteur rhumatoïde (FR), un marqueur sérologique associé à la PR, était positif chez 70,37 % (95/135), avec une concentration sérique significativement plus élevée (144,13 ± 81,05 contre 5,10 ± 1,37 UI/mL, p < 0,001) ; le taux de positivité anti-CCP chez les patients atteints de PR était de 56,30 % (76/135), avec un score DAS28 de 4,12 ± 1,36.
Caractéristiques d'expression et valeur diagnostique de l'ARNmi-488-3p chez les patients atteints de PR
Les niveaux d'expression sériques de miR-488-3p étaient significativement diminués chez les patients atteints de PR par rapport aux patients atteints de OA et aux témoins sains (p < 0,0001, Figure 1A). L'analyse de la courbe ROC a montré que miR-488-3p présentait une forte précision diagnostique pour distinguer la PR des cas de OA et des témoins sains : pour différencier la PR des témoins sains, la valeur d'AUC était de 0,931 (IC 95 % : 0,896–0,967), une sensibilité de 96,15 % (IC 95 % : 91,31 %–98,35 %) et une spécificité de 80,95 % (IC 95 % : 73,22 %–86,85 %, p < 0,001, Figure 1B) ; et lorsqu'il s'agissait de distinguer la PR des patients atteints de OA, la valeur d'AUC était de 0,800 (IC 95 % : 0,747–0,854), avec une sensibilité de 85,93 % (IC 95 % : 79,06 %–90,80 %) et une spécificité de 66,15 % (IC 95 % : 57,66 %–73,72 %, p < 0,001, Figure 1C). Une analyse de régression logistique multivariée a identifié miR-488-3p comme un facteur indépendant associé au risque de PR (OR = 0,166, IC 95 % : 0,097–0,284 ; Tableau 2).
Analyse de corrélation de miR-488-3p avec les indicateurs cliniques de la PR
Les niveaux d'expression sériques de miR-488-3p étaient significativement corrélés négativement avec des indicateurs cliniques clés de la PR, notamment la VSG, la CRP, le RF et le DAS28 (tous les p < 0,001 ; Tableau 3). Plus précisément, miR-488-3p était corrélé négativement avec la VSG (r = −0,718), la CRP (r = −0,726), le RF (r = −0,805) et le score DAS28 (r = −0,836) (Tableau 3).
La surexpression du miR-488-3p inhibe la prolifération cellulaire et les réponses inflammatoires, et induit l'apoptose dans les cellules HFLS-RA
Afin d'étudier l'effet de miR-488-3p sur la fonction des HFLS-RA, nous avons modulé son expression par transfection avec des mimiques et des inhibiteurs. L'analyse par RT-qPCR a confirmé que le niveau d'expression de miR-488-3p était significativement plus élevé dans le groupe traité avec le mimique de miR-488-3p par rapport au groupe témoin (p = 0,0001), tandis que le niveau d'expression du groupe traité avec l'inhibiteur de miR-488-3p était significativement plus faible (p = 0,0003, Figure 2A). Le test CCK-8 a montré qu'une surexpression de miR-488-3p inhibait la prolifération cellulaire, qui était significativement plus faible que celle du groupe témoin à 24 h, 48 h et 72 h (p = 0,0208, p < 0,0001, p = 0,0036), et qu'une inhibition de l'expression de miR-488-3p augmentait significativement la prolifération cellulaire (Figure 2B). La cytométrie en flux a montré qu'une surexpression de miR-488-3p favorisait significativement l'apoptose (p = 0,0033, Figure 2C).
Nous avons ensuite réalisé un ELISA afin d'étudier l'effet de la surexpression de miR-488-3p sur les niveaux de cytokines inflammatoires. Les résultats ont montré que lorsque miR-488-3p était surexprimé, les niveaux de cytokines inflammatoires (IL-6, TNF-α et IL-1β) étaient significativement réduits (p < 0,0001, Figure 3A-C), tandis que l'inhibition de l'expression de miR-488-3p produisait l'effet inverse. Ces effets régulateurs significatifs ont été confirmés dans les trois expériences biologiques indépendantes, et les contrôles négatifs n'ont montré aucun changement significatif (p > 0,05).
MiR-488-3p régule l'expression des molécules ROCK1
Afin d'élucider les mécanismes moléculaires sous-jacents au rôle de miR-488-3p dans la progression de la polyarthrite rhumatoïde, nous avons exploré les gènes cibles en aval de miR-488-3p. Des analyses bioinformatiques ont montré que miR-488-3p était prédit pour se lier à la région 3'UTR de ROCK1 (Figure 4A). Le test du double rapporteur luciférase a confirmé que l'activité luciférase était significativement réduite lorsque la 3'UTR sauvage de ROCK1 était co-transfectée avec des mimiques de miR-488-3p (p < 0,0001), et que l'activité luciférase était significativement augmentée lorsque l'expression de miR-488-3p était inhibée (p < 0,0001) ; en revanche, aucun changement significatif de cet effet régulateur n'a été observé après mutation du site de liaison (Figure 4B). Des expériences de précipitation de ribonucléoprotéines immunocapturées (RIP) ont par ailleurs confirmé cette relation régulatrice, montrant que le niveau d'expression de l'ARNm de ROCK1 était significativement plus élevé dans les complexes enrichis par anticorps anti-Ago2 par rapport aux témoins IgG (p < 0,0001, Figure 4C).
De plus, dans les échantillons cliniques, ROCK1 présentait un profil d'expression opposé à celui de miR-488-3p, une surexpression significative de ROCK1 étant observée par rapport aux patients atteints de polyarthrite rhumatoïde et aux témoins sains (Figure 4D). Dans les cellules HFLS-RA, la RT-qPCR a révélé qu'une surexpression de miR-488-3p entraînait une diminution significative de l'expression de ROCK1 (p = 0,0093), tandis qu'une inhibition de miR-488-3p augmentait significativement l'expression de ROCK1 (p = 0,0003, Figure 4E).
ROCK1 assure les effets régulateurs de miR-488-3p sur les cellules HFLS-RA
Dans les cellules HFLS-RA, la suppression de l'expression de ROCK1 induite par la surexpression de miR-488-3p a été inversée par la transfection avec des vecteurs de surexpression de ROCK1 (Figure 5A). De même, l'effet inhibiteur de la surexpression de miR-488-3p sur la prolifération cellulaire a été atténué par la surexpression de ROCK1 (Figure 5B). En outre, la surexpression de ROCK1 a également inversé l'apoptose accrue induite par miR-488-3p (Figure 5C) et rétabli les niveaux de cytokines inflammatoires qui avaient été réduits par la surexpression de miR-488-3p (Figure 5D).
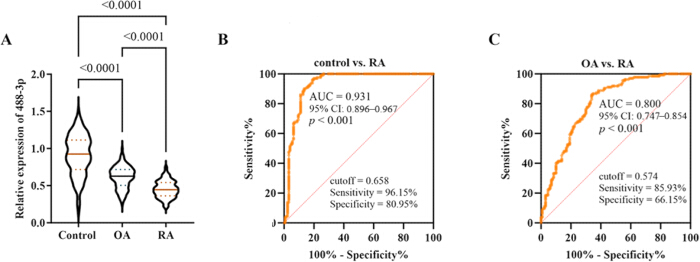
Figure 1. Niveaux d'expression et performances diagnostiques du miR-488-3p chez des patients atteints de polyarthrite rhumatoïde (PR), d'arthrose (AO) et des témoins sains. (A) Comparaison des niveaux d'expression relative de miR-488-3p chez les patients atteints de polyarthrite rhumatoïde, les patients atteints d'ostéoarthrite et les témoins sains.B) Analyse de la courbe ROC (caractéristique de fonctionnement du récepteur) de l'expression de miR-488-3p pour distinguer la polyarthrite rhumatoïde des témoins sains.CAnalyse de la courbe ROC de l'expression de miR-488-3p pour distinguer les patients atteints de polyarthrite rhumatoïde (PR) de ceux atteints d'ostéoarthrite (OA). AUC, aire sous la courbe ; IC, intervalle de confiance. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
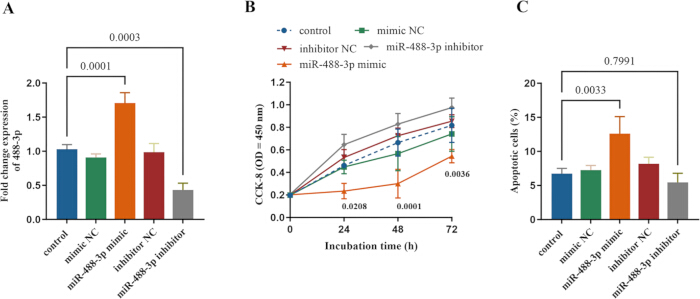
Figure 2. Effets fonctionnels du miR-488-3p dans les cellules HFLS-RA. (A) Expression relative du miR-488-3p dans les cellules HFLS-RA transfectées, déterminée par réaction de transcription inverse quantitative en chaîne par polymérase (RT-qPCR). (B) Effets de la surexpression et de l'inhibition du miR-488-3p sur la prolifération cellulaire. (C) Effets de la surexpression et de l'inhibition du miR-488-3p sur l'apoptose. Les données sont présentées comme moyenne ± ÉT. Toutes les mesures ont été réalisées à partir de trois réplicats biologiques, chacun comprenant trois réplicats techniques. p < 0,05 indique une différence statistiquement significative entre les groupes indiqués. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
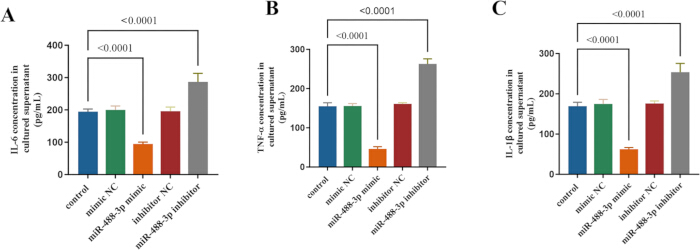
Figure 3. Effet du miR-488-3p sur la sécrétion de cytokines inflammatoires. (A) Interleukine-6 (IL-6). (B) Facteur de nécrose tumorale-α (TNF-α). (C) Interleukine-1β (IL-1β). Les concentrations de cytokines ont été mesurées par dosage immunoenzymatique (ELISA). Les données sont exprimées comme moyenne ± écart-type (SD). Toutes les mesures ont été réalisées à partir de trois réplicats biologiques, chacun comprenant trois réplicats techniques. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
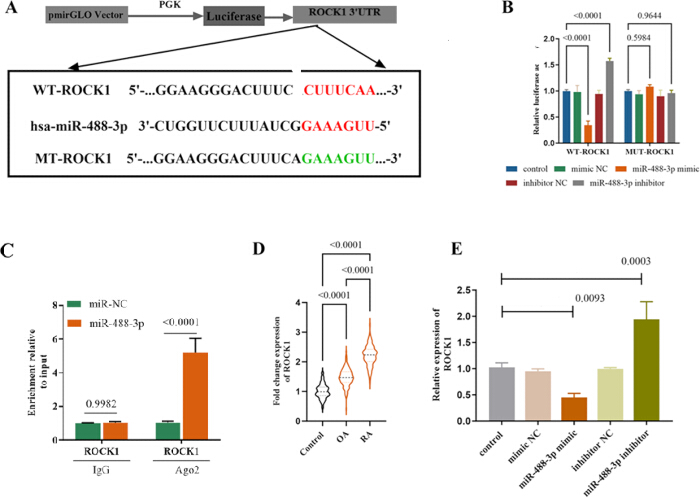
Figure 4. Validation du mécanisme moléculaire sous-jacent à la régulation ciblée de ROCK1 par le miR-488-3p. (A) Site de liaison prédit du miR-488-3p dans la région non traduite 3′ (3′UTR) de ROCK1. (B) Essai rapporteur double luciférase démontrant l'interaction entre le miR-488-3p et la 3′UTR de ROCK1 de type sauvage ou mutée. (C) Essai d'immunoprécipitation de l'ARN (RIP) montrant l'enrichissement de l'ARN messager (ARNm) de ROCK1 dans les complexes enrichis par un anticorps dirigé contre l'Argonaute 2 (Ago2). (D) Niveaux d'expression relatifs de ROCK1 chez des patients atteints de PR, des patients atteints de OA et des témoins sains. (E) Expression relative de ROCK1 dans des cellules HFLS-RA transfectées, déterminée par une réaction de transcription inverse quantitative suivie d'une amplification par polymérase en chaîne (RT-qPCR). Les données sont exprimées comme moyenne ± écart-type (SD). Toutes les mesures ont été réalisées en trois réplicats biologiques, chacun comprenant trois réplicats techniques. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
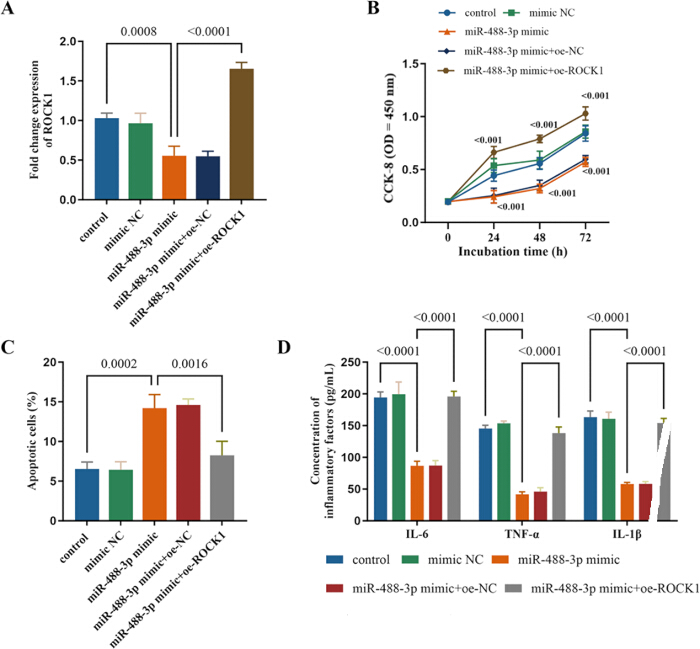
Figure 5. Implication de ROCK1 dans la régulation des cellules HFLS-RA par le miR-488-3p. (A) Régulation de l'expression de ROCK1 dans les cellules HFLS-RA après transfection cellulaire. (B) Effets de la surexpression de ROCK1 sur la prolifération cellulaire en conditions de surexpression du miR-488-3p. (C) Effets de la surexpression de ROCK1 sur l'apoptose en conditions de surexpression du miR-488-3p. (D) Effets de la surexpression de ROCK1 sur la production de cytokines inflammatoires en conditions de surexpression du miR-488-3p. Les données sont exprimées comme moyenne ± écart-type (SD). Toutes les mesures ont été réalisées à partir de trois réplicats biologiques, chacun comprenant trois réplicats techniques. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Variable | Témoin (n = 125) | AO (n = 130) | AR (n = 135) | p-valeur |
| Âge (années) | 55,10 ± 9,30 | 57,21 ± 10,27 | 55,22 ± 11,61 | 0,191 |
| Sexe (homme/femme) | 74/51 | 63/67 | 69/66 | 0,203 |
| IMC (kg/m2) | 22,79 ± 1,73 | 22,98 ± 1,98 | 23,04 ± 2,05 | 0,562 |
| Durée de la maladie (années) | - | 7,96 ± 4,00 | 8,03 ± 3,83 | 0,882 |
| Anti-CCP positif (n/%) | - | - | 76 (56,30) | - |
| VS (mm/h) | 18,39 ± 6,38 | 82,63 ± 40,32 | <0,001 | |
| CRP (mg/L) | 10,54 ± 4,98 | 56,33 ± 38,07 | <0,001 | |
| RF positif | - | - | 95 (70,37) | |
| RF (IU/mL) | - | 5,10 ± 1,37 | 144,13 ± 81,05 | <0,001 |
| DAS28 | - | - | 4,12 ± 1,36 | - |
Tableau 1 : Caractéristiques de base des participants à l'étude. Les trois groupes d'étude étaient comparables en ce qui concerne les caractéristiques démographiques. Les patients atteints de PR présentaient des marqueurs inflammatoires et des taux de FR élevés.
| Variable | OR | IC à 95 % | p-valeur |
| Âge (années) | 1.411 | 0,822–2,422 | 0,211 |
| Sexe (homme/femme) | 1,209 | 0,707–2,067 | 0,489 |
| IMC (kg/m2) | 1,336 | 0,778–2,295 | 0,293 |
| Durée de la maladie (années) | 1,13 | 0,663–1,929 | 0,653 |
| MiR-483-3p | 0,166 | 0,097–0,284 | <0,001 |
Tableau 2 : Facteurs indépendants issus d'une régression logistique multivariée associés à la progression de l'arthrose vers la polyarthrite rhumatoïde. Le miR-488-3p a été identifié comme étant associé au risque de développement de la PR chez les patients atteints de AO.
| Éléments | MiR-488-3p (arthrite rhumatoïde) | p-valeur |
| Corrélation (r) | ||
| VS (mm/h) | -0,718 | <0,001 |
| CRP (mg/L) | -0,726 | <0,001 |
| RF (UI/mL) | -0,805 | <0,001 |
| DAS28 | -0,836 | <0,001 |
Tableau 3 : Corrélations entre le miR-488-3p et les caractéristiques clinicopathologiques des patients atteints de PR. Le miR-488-3p était significativement corrélé négativement avec la VSG, la CRP, le FR et le score DAS28 chez les patients atteints de PR.
Tableau supplémentaire 1. Informations sur les séquences utilisées pour la transfection cellulaire et le dosage PCR. Les séquences des amorces et les réactifs de transfection utilisés dans l'étude sont résumés.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Comme souligné par Smolen et al1 dans les dernières recommandations concernant le diagnostic et le traitement de la PR, le développement de nouveaux biomarqueurs présente une valeur clinique importante. Dans cette étude, nous avons confirmé que le miR-488-3p sérique était significativement sous-régulé chez les patients atteints de PR et présentait des performances diagnostiques prometteuses, avec une sensibilité et une spécificité relativement satisfaisantes. Le diagnostic précoce de la PR a toujours constitué une difficulté clinique, et les biomarqueurs existants ne sont pas suffisamment sensibles pour le diagnostic de la PR, tandis que le potentiel diagnostique significatif du miR-488-3p pourrait combler cette lacune, notamment pour l'identification des patients atteints de PR séronégative. Par rapport aux individus en bonne santé, les patients atteints de PR présentaient une inflammation systémique plus marquée. Bien que les patients atteints de gonarthrose présentent principalement un trouble dégénératif articulaire localisé, une inflammation systémique de bas grade est fréquemment observée. Par conséquent, l'efficacité discriminante du miR-488-3p est nettement plus élevée lorsqu'elle est comparée à celle des individus en bonne santé qu'aux patients atteints de gonarthrose. Les performances diagnostiques du miR-488-3p n'ont pas été comparées directement à celles des biomarqueurs cliniques établis. Les patients inclus dans cette étude ont été diagnostiqués selon la norme clinique actuelle en or pour la PR, qui intègre des biomarqueurs établis tels que les anticorps anti-CCP, le FR, la VS et la CRP. Des différences significatives pour ces marqueurs ont été observées entre les patients atteints de gonarthrose et ceux atteints de PR (Tableau 1). Cette cohorte n'était donc pas adaptée à une comparaison directe des performances diagnostiques du miR-488-3p avec ces biomarqueurs établis. De telles comparaisons nécessitent une cohorte de validation indépendante.
En outre, des niveaux d'expression de miR-488-3p ont été trouvés significativement corrélés négativement avec divers indicateurs cliniques de la PR, notamment les marqueurs inflammatoires systémiques (VS, CRP)28 et les auto-anticorps (RF)6. D'un intérêt clinique particulier, miR-488-3p présentait une forte corrélation négative avec le score d'activité de la maladie (DAS28). Le DAS28 est un indice composite reflétant l'activité de la maladie en fonction du gonflement articulaire, de la douleur à la palpation, de l'inflammation et de l'état clinique des patients. Ainsi, ces résultats suggèrent que miR-488-3p pourrait servir de biomarqueur potentiel de l'activité de la maladie dans la PR. Ils appuient également son rôle régulateur dans la pathogenèse de la PR et pourraient influencer l'évolution de la maladie en inhibant les voies de signalisation inflammatoires ou les réponses auto-immunes29.
Dans des expériences fonctionnelles, nous avons constaté que le miR-488-3p inhibait la prolifération et favorisait l'apoptose des cellules HFLS-RA provenant de patients atteints de PR et réduisait significativement la production de cytokines inflammatoires (IL-6, TNF-α et IL-1β). Les cellules HFLS-RA jouent un rôle clé dans le processus pathologique de la PR30, et leur prolifération anormale ainsi que leur croissance invasive peuvent entraîner une hyperplasie synoviale et une destruction articulaire, tandis que la surproduction de facteurs inflammatoires aggrave davantage les réponses inflammatoires locales et systémiques31. Par conséquent, la régulation de la fonction des cellules HFLS-RA par le miR-488-3p pourrait directement inhiber l'envahissement synovial et l'érosion osseuse dans la PR, fournissant ainsi une base théorique au développement de nouvelles stratégies thérapeutiques ciblées. Des études antérieures ont montré que d'autres ARN interférents, tels que le miR-155, peuvent influencer l'évolution de la PR en régulant la fonction des synoviocytes19, ce qui confirme davantage nos résultats.
Des études mécanistiques ont démontré que le miR-488-3p peut cibler directement ROCK1 et inhiber son expression en se liant à sa région 3'UTR. ROCK1 est une molécule effectrice clé de la voie de signalisation Rho/ROCK, qui intervient dans la réorganisation du cytosquelette, la réponse inflammatoire et la fibrose32. Des études antérieures ont montré que ROCK1 est fortement exprimé dans les synoviocytes de la PR et favorise leur migration et leur invasion33. Comme prévu, la surexpression de ROCK1 a significativement inversé les effets du miR-488-3p sur les cellules HFLS-RA, indiquant son implication dans le rôle régulateur du miR-488-3p dans la progression de la PR.
Cependant, de nombreux travaux restent à accomplir dans les recherches futures. L'expression de miR-488-3p dans les échantillons cliniques a été évaluée par RT-qPCR en utilisant U6 comme référence interne. Des études antérieures ont rapporté des résultats contradictoires concernant la stabilité de U6, notamment dans les échantillons circulants tels que le sérum. Bien que des expériences préliminaires aient été réalisées dans la présente étude afin de garantir la stabilité de U6, la variabilité potentielle de U6 constitue néanmoins une limite, augmentant ainsi le risque de mauvais diagnostic. Une validation supplémentaire à l’aide de gènes de référence interne plus stables est nécessaire. D’autre part, l’évaluation clinique de miR-488-3p s’est appuyée sur une cohorte monocentrique, sans validation externe. La taille de l’échantillon était relativement restreinte, limitée à l’échelle de l’hôpital. Par ailleurs, un suivi longitudinal évaluant la valeur pronostique de miR-488-3p a fait défaut. Ces limites devraient être corrigées dans les études futures. De plus, certaines études montrent que in vivo la livraison des miARN reste un défi majeur pour la traduction clinique34De futures études pourraient valider le potentiel thérapeutique du miR-488-3p in vivo en créant des souris transgéniques à délétion conditionnelle ou en utilisant des systèmes de délivrance ciblés tels que les nanocarriers.35.
En conclusion, cette étude a révélé la valeur potentielle de miR-488-3p dans le diagnostic et la ciblage thérapeutique de la PR. MiR-488-3p a démontré une performance diagnostique élevée et a inhibé la prolifération ainsi que les réponses inflammatoires des cellules HFLS-RA, tout en favorisant l'apoptose. Cela suggère qu'il pourrait constituer une cible prometteuse pour le développement de nouvelles stratégies thérapeutiques contre la PR. Les recherches futures devraient se concentrer sur 1) la validation de la stabilité diagnostique de miR-488-3p dans de grandes cohortes multicentriques, 2) l'exploration de ses effets synergiques avec des agents thérapeutiques existants, tels que les inhibiteurs de JAK ou les produits biologiques28, et 3) l'optimisation des systèmes de délivrance des miARN afin d'améliorer leur faisabilité de translation clinique36.
DISPONIBILITÉ DES DONNÉES :
Les données brutes soutenant les résultats de cette étude sont disponibles dans les matériaux supplémentaires soumis avec ce manuscrit.
Déclarations de divulgation
Les auteurs déclarent qu'ils n'ont aucun conflit d'intérêts.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Kits de détection de l'apoptose par Annexine V-FITC | BD Bioscience | 556547 | apoptose cellulaire |
| anticorps anti-Ago2 | Proteintech | 66720-1-Ig | Immunoprécipitation d'ARN |
| Solution CCK-8 | Dojindo | CK04 | prolifération cellulaire |
| Milieu de culture Eagle modifié de Dulbecco (DMEM) | Thermo Fisher | 121000146 | culture cellulaire |
| Sérum de veau fœtal | Thermo Fisher | 10437028 | culture cellulaire |
| Cytomètre en flux | BD Bioscience | FACSCalibur | apoptose cellulaire |
| Kits ELISA d'anticorps anti-CCP humain | Cusabio | CSB-E09077h | dosage de l'anti-CCP |
| Kits ELISA RF-IgA humain | Feien Biotechnology | EH4270 | dosage du FR |
| Synoviocytes humaines de type fibroblaste dans la polyarthrite rhumatoïde (HFLS-RA) | Cell Applications | HFLS-RA-200 | validation in vitro de la fonction de miR-488-3p |
| anticorps contrôle IgG | Abcam | ab205718 | Immunoprécipitation d'ARN |
| Kits ELISA d'interleukine-1β (IL-1β) | R&D Systems | DY201-05 | concentration cellulaire en IL-1β |
| Kits ELISA d'interleukine-6 (IL-6) | R&D Systems | D6050B | concentration cellulaire en IL-6 |
| Réactif de transfection par liposomes 3000 | Ingenuity Life Technologies | L3000015 | transfection cellulaire |
| Lecteur de microplaques | BioTek | ELx808 | essai ELISA |
| Kits Mir-XTM de synthèse du premier brin d'ARNmi | Nihonbao Bioengineering Co., Ltd. | 638313 | transcription inverse |
| Milieu Opti-MEM | Ingenuity Life Technologies, Inc | 31985070 | transfection cellulaire |
| pcDNA 3.1 | Invitrogen | V790-20 | surdosage de ROCK1 |
| Pénicilline-streptomycine | Thermo Fisher | 15140122 | culture cellulaire |
| Système de laboratoire Phadia 250 | Thermo Fisher | Phadia 250 | analyse sanguine |
| Kits PrimeScriptTM de transcription inverse | Nihonbao Bioengineering Co., Ltd. | RR037A | transcription inverse |
| Iodure de propidium (PI)/ribonucléase (ARNase) | BD Bioscience | 550825 | apoptose cellulaire |
| Système QuantStudio 5 | Applied Biosystems, Inc. | A28138 | essai PCR |
| Réactif RNAiso Plus | Nihonbao Bioengineering Co., Ltd. | 9108 | isolement d'ARN |
| SYBR Green Premix Ex Taq | Nippon Poh Bio-Engineering Co., Ltd. | RR420A | amplification PCR |
| Base de données TargetScan | TargetScan | N/A | prédiction des sites de liaison, (https://www.targetscan.org/) |
| Tina-quant Protéine C-réactive IV | Roche Diagnostics | 7876033190 | dosage de la CRP |
| Kits ELISA du facteur de nécrose tumorale-α (TNF-α) | R&D Systems | DY210-05 | concentration cellulaire en TNF-α |
Références
- Smolen JS, et al. Rheumatoid arthritis. Nat Rev Dis Primers. 2018;4:18001.
- Kook HY, et al. Serum miR-214 as a novel biomarker for ankylosing spondylitis. Int J Rheum Dis. 2019;22(7):1196-201.
- Alamanos Y, Voulgari PV, Drosos AA. Incidence and prevalence of rheumatoid arthritis, based on the 1987 American College of Rheumatology criteria: a systematic review. Semin Arthritis Rheum. 2006;36(3):182-8.
- van der Linden MPM, et al. Long-term impact of delay in assessment of patients with early arthritis. Arthritis Rheum. 2010;62(12):3537-46.
- Anderson J, et al. Rheumatoid arthritis disease activity measures: American College of Rheumatology recommendations for use in clinical practice. Arthritis Care Res (Hoboken). 2012;64(5):640-7.
- Aletaha D, et al. 2010 rheumatoid arthritis classification criteria: an American College of Rheumatology/European League Against Rheumatism collaborative initiative. Arthritis Rheum. 2010;62(9):2569-81.
- Yang J, et al. MicroRNA-488: a miRNA with diverse roles and clinical applications in cancer and other human diseases. Biomed Pharmacother. 2023;165:115115.
- Molendijk M, Hazes JMW, Lubberts E. From patients with arthralgia, pre-RA and recently diagnosed RA: what is the current status of understanding RA pathogenesis? RMD Open. 2018;4(1):e000256.
- van Venrooij WJ, van Beers JJBC, Pruijn GJM. Anti-CCP antibodies: the past, the present and the future. Nat Rev Rheumatol. 2011;7(7):391-8.
- Szodoray P, et al. Anti-citrullinated protein/peptide autoantibodies in association with genetic and environmental factors as indicators of disease outcome in rheumatoid arthritis. Autoimmun Rev. 2010;9(3):140-3.
- Filer A, et al. Utility of ultrasound joint counts in the prediction of rheumatoid arthritis in patients with very early synovitis. Ann Rheum Dis. 2011;70(3):500-7.
- Zuo C, Fan P, Yang Y, Hu C. MiR-488-3p facilitates wound healing through CYP1B1-mediated Wnt/β-catenin signaling pathway by targeting MeCP2. J Diabetes Investig. 2024;15(2):145-58.
- Mendell JT, Olson EN. MicroRNAs in stress signaling and human disease. Cell. 2012;148(6):1172-87.
- Cai Z, Poulos RC, Liu J, Zhong Q. Machine learning for multi-omics data integration in cancer. iScience. 2022;25(2):103798.
- Fabian MR, Sonenberg N. The mechanics of miRNA-mediated gene silencing: a look under the hood of miRISC. Nat Struct Mol Biol. 2012;19(6):586-93.
- Duroux-Richard I, et al. Circulating miRNA-125b is a potential biomarker predicting response to rituximab in rheumatoid arthritis. Mediators Inflamm. 2014;2014:342524.
- Zakeri Z, et al. MicroRNA and exosome: key players in rheumatoid arthritis. J Cell Biochem. 2019;120(7):10930-44.
- Pauley KM, et al. Upregulated miR-146a expression in peripheral blood mononuclear cells from rheumatoid arthritis patients. Arthritis Res Ther. 2008;10(4):R101.
- Kurowska-Stolarska M, et al. MicroRNA-155 as a proinflammatory regulator in clinical and experimental arthritis. Proc Natl Acad Sci U S A. 2011;108(27):11193-8.
- Pers YM, et al. miR-155 contributes to the immunoregulatory function of human mesenchymal stem cells. Front Immunol. 2021;12:624024.
- Fu Q, et al. miR-488-3p alleviates neuropathic pain by regulating target gene ROCK1. Acta Neurobiol Exp (Wars). 2023;83(3):271-9.
- Xue W, et al. PVT1 regulates the malignant behaviors of human glioma cells by targeting miR-190a-5p and miR-488-3p. Biochim Biophys Acta Mol Basis Dis. 2018;1864(5 Pt A):1783-94.
- Muiños-Gimeno M, et al. Human microRNAs miR-22, miR-138-2, miR-148a, and miR-488 are associated with panic disorder and regulate several anxiety candidate genes and related pathways. Biol Psychiatry. 2011;69(6):526-33.
- Le TD, Zhang J, Liu L, Li J. Computational methods for identifying miRNA sponge interactions. Brief Bioinform. 2017;18(4):577-90.
- Scanzello CR, Goldring SR. The role of synovitis in osteoarthritis pathogenesis. Bone. 2012;51(2):249-57.
- McGeary SE, et al. The biochemical basis of microRNA targeting efficacy. Science. 2019;366(6472):eaav1741.
- Liu X, et al. Impaired AGO2/miR-185-3p/NRP1 axis promotes colorectal cancer metastasis. Cell Death Dis. 2021;12(4):390.
- Smolen JS, Aletaha D, McInnes IB. Rheumatoid arthritis. Lancet. 2016;388(10055):2023-38.
- O'Connell RM, Rao DS, Baltimore D. microRNA regulation of inflammatory responses. Annu Rev Immunol. 2012;30:295-312.
- Bottini N, Firestein GS. Duality of fibroblast-like synoviocytes in RA: passive responders and imprinted aggressors. Nat Rev Rheumatol. 2013;9(1):24-33.
- Firestein GS, McInnes IB. Immunopathogenesis of rheumatoid arthritis. Immunity. 2017;46(2):183-96.
- Amano M, Nakayama M, Kaibuchi K. Rho-kinase/ROCK: a key regulator of the cytoskeleton and cell polarity. Cytoskeleton (Hoboken). 2010;67(9):545-54.
- Peng H, et al. ROCK1 induces endothelial-to-mesenchymal transition in glomeruli to aggravate albuminuria in diabetic nephropathy. Sci Rep. 2016;6:20304.
- van der Meel R, et al. Smart cancer nanomedicine. Nat Nanotechnol. 2019;14(11):1007-17.
- Yin H, et al. Non-viral vectors for gene-based therapy. Nat Rev Genet. 2014;15(8):541-55.
- Setten RL, Rossi JJ, Han SP. The current state and future directions of RNAi-based therapeutics. Nat Rev Drug Discov. 2019;18(6):421-46.