Cette étude a démontré que l'ÉUS et le taux sérique de miR-486-3p étaient élevés chez les nouveau-nés atteints d'un syndrome de détresse respiratoire aiguë (SDRA). L'évaluation combinée de ces deux paramètres a amélioré la prédiction de la gravité de la maladie et du pronostic, et le miR-486-3p s'est révélé réguler la fonction des cellules modèles de SDRA en ciblant la ligand canonique Delta-Like 4 de la voie Notch.
Article de recherche
Valeur pronostique du score d'échographie pulmonaire et du miR-486-3p sérique dans le syndrome de détresse respiratoire aiguë néonatale
* These authors contributed equally
Dans cet article
Résumé
Résumé
Cette étude visait à évaluer la valeur pronostique du score d'échographie pulmonaire (LUS) et de la molécule sérique miR-486-3p dans le syndrome de détresse respiratoire aiguë (SDRA) néonatal et à explorer le mécanisme sous-jacent. Au total, 112 nouveau-nés atteints de SDRA et 100 nourrissons sains nés pendant la même période ont été inclus respectivement dans les groupes d'étude et de contrôle sain. Chaque nouveau-né a bénéficié d'une échographie pulmonaire dans les 6 heures suivant son admission en unité de soins intensifs et a été évalué pour le score LUS. La PCR quantitative en temps réel a été utilisée pour quantifier l'expression génique, tandis que des analyses de courbe ROC (caractéristique de fonctionnement du récepteur) et de corrélation de Pearson ont été réalisées afin d'évaluer la performance pronostique et les corrélations. Par ailleurs, un modèle in vitro de SDRA a été établi à l'aide de cellules endothéliales pulmonaires microvasculaires humaines (HPMECs) afin d'explorer le mécanisme sous-jacent du miR-486-3p. Un essai rapporteur double luciférase a été effectué pour confirmer la relation cible entre le miR-486-3p et le ligand 4 de type Delta-like (DLL4), un ligand canonique de la voie Notch. Les résultats ont révélé que le LUS et le miR-486-3p sérique étaient fortement surexprimés chez les nouveau-nés atteints de SDRA. L'analyse de la courbe ROC a montré que le miR-486-3p et le LUS pouvaient prédire respectivement le pronostic néonatal du SDRA (AUC = 0,883 et 0,873, sensibilité : 96,4 % et 89,3 %, spécificité : 77,4 % et 73,8 %), et que la combinaison du miR-486-3p avec le LUS offrait un meilleur pouvoir prédictif (AUC = 0,929, sensibilité : 92,9 %, spécificité : 84,5 %). Sur le plan mécanistique, le miR-486-3p cible DLL4 pour réguler les fonctions biologiques des cellules modèles de SDRA. En résumé, l'évaluation combinée du LUS et du miR-486-3p sérique pourrait constituer une approche prometteuse pour évaluer la gravité de la maladie et prédire le pronostic chez les nouveau-nés atteints de SDRA. Une validation multicentrique supplémentaire reste nécessaire pour confirmer son applicabilité générale.
Introduction
Le syndrome de détresse respiratoire aiguë (SDRA) néonatal est un trouble respiratoire critique mettant la vie en danger, caractérisé principalement par une altération de la fonction du surfactant alvéolaire, ce qui représente un risque majeur pour la survie du nouveau-né1,2. Malgré le développement de diverses modalités thérapeutiques, le pronostic global des nouveau-nés atteints reste insatisfaisant3. Une identification précoce de la gravité de la maladie et une évaluation pronostique précise sont donc essentielles pour optimiser les interventions cliniques et améliorer les résultats pour les patients. Une fois le SDRA installé, la fonction pulmonaire du nouveau-né est gravement altérée, accompagnée d'une perturbation de la ventilation et des échanges gazeux4. L'échographie pulmonaire peut être considérée comme la méthode d'imagerie principale pour le suivi de la ventilation en cas de SDRA5. Elle est devenue l'outil d'imagerie privilégié au chevet du patient pour surveiller les lésions pulmonaires dans le SDRA, et le score d'échographie pulmonaire (LUS) est largement utilisé pour diagnostiquer les maladies respiratoires aiguës du nouveau-né et évaluer la gravité de la maladie ainsi que le pronostic dans les contextes de soins intensifs6. Toutefois, une imagerie ou un test de laboratoire isolé présente des limites inhérentes et ne peut pas entièrement répondre aux besoins d'évaluation clinique7. Par conséquent, l'exploration de nouveaux biomarqueurs afin d'établir un système d'évaluation combiné revêt une grande importance clinique.
Les microARN (miARN) représentent une nouvelle classe de facteurs régulateurs génétiques jouant un rôle essentiel dans la pathogenèse du SDRA8. Par exemple, le miR-141-3p, dont l'expression est réduite, est étroitement associé à la gravité de la maladie dans la fibrose pulmonaire et les lésions pulmonaires9. Le miR-124-3p constitue un facteur protecteur dans le SDRA en ciblant la protéine p6510. Des études antérieures de séquençage à haut débit ont confirmé que le miR-486-3p est significativement surexprimé chez les patients atteints de SDRA11. Des recherches récentes ont mis en évidence l'axe hsa_circ_0006892/miR-486-3p comme un mécanisme moléculaire potentiel impliqué dans le développement du SDRA12. Ces résultats suggèrent que le miR-486-3p est étroitement lié au SDRA. Néanmoins, la valeur pronostique et prédictive du miR-486-3p concernant la gravité et l'évolution du SDRA néonatal reste à élucider complètement.
Actuellement, la radiographie thoracique, l'analyse des gaz sanguins et la détection d'un seul biomarqueur sont les méthodes classiques pour évaluer le SDRA néonatal. L'imagerie thoracique implique une exposition aux rayonnements et ne permet pas une surveillance répétée en temps réel. L'analyse des gaz sanguins reflète uniquement la fonction respiratoire aiguë et manque de valeur prédictive pour le pronostic à long terme. La détection d'un seul microARN fournit des résultats quantitatifs objectifs, mais ne permet pas de refléter les changements morphologiques en temps réel du tissu pulmonaire. Par rapport à ces approches conventionnelles, la combinaison de l'échographie pulmonaire (LUS) et du miR-486-3p sérique intègre les avantages de l'imagerie au chevet du patient et de la détection moléculaire.
Cette étude s'est concentrée sur les nouveau-nés répondant aux critères de SDRA plutôt que sur la DSR classique due à un déficit en surfactant. Ainsi, cette étude vise à évaluer si l'échographie pulmonaire de base et le taux sérique de miR-486-3p permettent de prédire la mortalité à court terme dans le SDRA néonatal. Cette recherche a pour objectif de fournir des données précieuses afin d'améliorer l'évaluation clinique de l'état de la maladie et les évaluations pronostiques à court terme dans le SDRA néonatal.
Protocole
Cette étude a reçu l'approbation éthique du Comité d'éthique médicale du Premier hôpital populaire de Yongkang, en stricte conformité avec la Déclaration d'Helsinki.
Sujets
Cette étude de cohorte observationnelle monocentrique, comprenant une composante expérimentale in vitro, a été menée entre janvier 2022 et décembre 2023. Un total de 112 nouveau-nés consécutifs diagnostiqués avec un SDRA ont été inclus au Premier hôpital populaire de Yongkang. À des fins comparatives, des nourrissons en bonne santé nés pendant la même période et sans antécédent d'asphyxie ou de détresse intra-utérine ont été recrutés comme sujets témoins.
Critères d'inclusion :
Tous les participants répondaient aux critères diagnostiques du syndrome de détresse respiratoire aiguë du nouveau-né tels que définis dans les lignes directrices de Montreux (édition 2017). Le diagnostic a été confirmé par des examens d'imagerie et des évaluations cliniques : les examens radiographiques ont révélé des opacités diffuses dans les deux poumons, compatibles avec un œdème pulmonaire, et l'échocardiographie n'a montré aucune preuve d'hypertension auriculaire gauche, écartant ainsi l'œdème pulmonaire d'origine cardiaque. Les critères supplémentaires comprenaient un début aigu des symptômes et la nécessité d'une ventilation mécanique pendant plus de 3 jours, en l'absence d'infections extrapulmonaires sévères. Un consentement éclairé a été dûment obtenu auprès des familles des nouveau-nés.
Critères d'exclusion :
Les nouveau-nés présentant une insuffisance primaire de surfactant alvéolaire, une maladie cardiaque congénitale, des troubles métaboliques ou d'autres affections sous-jacentes importantes ont été exclus. En outre, les nourrissons présentant des malformations pulmonaires ou de la paroi thoracique ou d'autres anomalies congénitales majeures ont été exclus. La détresse respiratoire néonatale a été exclue.
Données cliniques
L'âge gestationnel, le sexe, le poids à la naissance au moment de l'admission et les caractéristiques maternelles ont été documentés pour tous les participants. Chaque nouveau-né a bénéficié d'une échographie pulmonaire dans les 6 heures suivant son admission en unité de soins intensifs et a été évalué par échographie pulmonaire (LUS). La LUS a été notée sur une échelle allant jusqu'à 36 points, une score plus élevé indiquant une gravité plus importante des symptômes pulmonaires. Des prélèvements sanguins ont été effectués immédiatement après l'admission dans le cadre de l'évaluation clinique initiale et avant toute intervention thérapeutique majeure (par exemple, réadministration de surfactant, intensification du mode de ventilation ou initiation d'agents vasoactifs). Les échantillons sanguins provenant des nouveau-nés en bonne santé ont été recueillis au moment de leur inclusion. Pour l'isolement du sérum, le sang total a été placé dans des tubes séparateurs de sérum et maintenu immobile à température ambiante pendant 30 minutes afin de permettre une formation complète du caillot. Les échantillons ont ensuite été centrifugés à 1500 x g pendant 15 minutes à 4 °C. Le surnageant clair contenant le sérum a été soigneusement aspiré, réparti en aliquotes dans des tubes cryogéniques stériles, puis immédiatement stocké dans un congélateur à très basse température à -80 °C en vue d'analyses ultérieures. Seuls les échantillons de sérum clairs et non hémolytiques ont été utilisés pour les expériences suivantes. Les tubes de prélèvement sanguin utilisés ainsi que le sang résiduel ont été éliminés comme déchets biologiques médicaux conformément aux réglementations institutionnelles.
Regroupement
Tous les nouveau-nés ont été répartis en deux groupes distincts : le groupe léger (stades I-II) et le groupe sévère (stades III-IV), en fonction des résultats initiaux de la radiographie thoracique et de la gravité de l'affection évaluée 24 heures après l'admission. L'interprétation des radiographies thoraciques a révélé le stade I, caractérisé par une diminution bilatérale de la transparence pulmonaire, avec des particules fines et des ombres réticulaires au sein du parenchyme pulmonaire. Le stade II indiquait une extension des lésions vers les zones moyennes et périphériques des poumons, accompagnée de signes d'air bronchogramme. Au stade III, on observait une réduction marquée de la transparence dans les deux poumons, entraînant une disparition des contours du cœur et du diaphragme. Le stade IV était marqué par des signes prononcés d'air bronchogramme, aboutissant à une opacification quasi totale évoquant une apparence de poumon blanc.
Les nouveau-nés diagnostiqués avec un SDRA ont reçu un protocole de prise en charge complet après leur admission en unité de soins intensifs néonatals. Ce protocole comprenait une ventilation mécanique, une sédation, l'administration de surfactant pulmonaire, des traitements anti-inflammatoires, un soutien nutritionnel, une assistance à l'expectoration et des mesures de remplacement hydrique. Le diagnostic néonatal de SDRA a servi de point de départ à l'étude. Les critères d'évaluation ont été définis comme étant soit la guérison réussie du patient et sa sortie, soit le décès du patient en raison d'un traitement inefficace. Selon les résultats cliniques, les participants ont été répartis en deux groupes : le groupe des survivants et le groupe des décédés.
Culture cellulaire et traitement
Des cellules endothéliales microvasculaires pulmonaires humaines (HPMECs) ont été cultivées dans du DMEM supplémenté avec 10 % de sérum de veau fœtal, 100 U/mL de pénicilline et 100 µg/mL de streptomycine. Les cellules ont été maintenues à 37 °C dans un incubateur humide contenant 5 % de CO₂. Pour établir un modèle cellulaire de SDRA, les cellules ont été traitées avec du lipopolysaccharide (LPS) à une concentration de 1 mg/L13,14. L'établissement réussi du modèle a été confirmé par l'observation d'un léger rétrécissement cellulaire au microscope inversé après le traitement au LPS. Après la fin des expériences, le milieu de culture usagé, les cellules mortes et les matériaux de culture jetables ont été éliminés comme déchets biologiquement dangereux.
Transfection cellulaire et regroupement
Les HPMEC ont été ensemencées dans des plaques de culture et incubées jusqu'à une confluence de 70 % avant la transfection. Les complexes de transfection ont été préparés conformément aux instructions du fabricant. Les cellules ont été réparties en groupes : témoin blanc, mimétique de miR-486-3p, contrôle négatif du mimétique, inhibiteur de miR-486-3p, contrôle négatif de l'inhibiteur, mimétique de miR-486-3p + plasmide d'overexpression de DLL4 (OE-DLL4) et mimétique de miR-486-3p + plasmide d'overexpression vide (OE-NC). Les complexes de transfection ont été ajoutés dans les puits correspondants et incubés pendant 4 à 6 heures. Le milieu a été remplacé par un milieu complet frais, puis la culture a été poursuivie pendant 24 à 48 heures avant les expériences ultérieures. Une transfection réussie s'est manifestée par une confluence cellulaire stable sans mort cellulaire excessive.
PCR quantitative en temps réel
L'ARN total a été extrait d'échantillons de sérum et de cellules cultivées à l'aide d'un réactif d'extraction d'ARN. La concentration et la pureté de l'ARN ont été mesurées à l'aide d'un spectrophotomètre, et les échantillons présentant un rapport A260/A280 compris entre 1,8 et 2,1 ont été considérés comme appropriés pour des analyses supplémentaires. L'ADN complémentaire (ADNc) a été synthétisé à l'aide d'un kit de transcription inverse. Une PCR quantitative a ensuite été réalisée à l'aide d'un système de PCR en temps réel avec les conditions de cyclage suivantes : une dénaturation initiale à 95 °C pendant 3 min, suivie de 40 cycles de 95 °C pendant 10 s et de 60 °C pendant 30 s. Pour la détection des microARN, l'expression relative de miR-486-3p a été calculée selon la méthode 2-ΔΔCt, l'ARNsn U6 servant de référence interne. Pour la quantification des ARNm, l'expression de DLL4 a été normalisée par rapport à l'ARNm de GAPDH selon le même algorithme 2-ΔΔCt. Les séquences des amorces étaient les suivantes : amorce directe de miR-486-3p : 5'-GTATGACGGGGCAGCTCAGTA-3' et amorce inverse de miR-486-3p : 5'-CAGTGCGTGTCGTGGAGT-3', amorce directe de U6 : 5'-GGAACGATACAGAGAAGATTAGC-3' et amorce inverse de U6 : 5'-TGGAACGCTTCACGAATTTGCG-3'. Amorce directe de DLL4 : 5'-AGGTGCCACTTCGGTTACAC-3' et amorce inverse de DLL4 : 5'-GGGAGAGCAAATGGCTGATA-3', amorce directe de GAPDH : 5'-GCAAATTCCATGGCACCGT-3' et amorce inverse de GAPDH : 5'-TCGCCCCACTTGATTTTGG-3'.
Dosage de la prolifération cellulaire par CCK-8
Les cellules transfectées ont été ensemencées dans des plaques de 96 puits à une densité de 1 × 10³ cellules par puits et incubées pendant 24, 48 et 72 h. Le milieu de culture a ensuite été aspiré, et les cellules ont été lavées deux fois avec du PBS 1×. Ensuite, 100 µL de PBS 1× frais et 10 µL de solution CCK-8 ont été ajoutés à chaque puits, puis les plaques ont été incubées à 37 °C pendant 2 h. L'absorbance a été mesurée à 450 nm à l'aide d'un lecteur de microplaques, et la prolifération cellulaire a été évaluée en fonction des valeurs d'absorbance. Une réalisation réussie du test était indiquée par des variations temporelles de l'absorbance parmi les groupes expérimentaux.
Dosage de l'apoptose par cytométrie en flux
Les cellules ont été digérées avec de la trypsine à 0,25 %, puis la suspension cellulaire obtenue a été recueillie et centrifugée à 1500 × g pendant 5 min à 4 °C. Le surnageant a été éliminé et les culots cellulaires ont été lavés trois fois avec du PBS 1× prérefroidi. Les cellules ont ensuite été resuspendues dans 500 µL de tampon de liaison 1x, suivies de l'ajout de 5 µL d'Annexine V-FITC et de 5 µL d'iodure de propidium (PI). Après un mélange doux, les échantillons ont été incubés pendant 40 min à température ambiante à l'abri de la lumière. L'apoptose cellulaire a été mesurée par cytométrie en flux, et les données ont été analysées à l'aide du logiciel d'analyse de cytométrie en flux approprié. Une réalisation réussie du test était indiquée par un faible taux d'apoptose dans le groupe témoin normal et une augmentation marquée de l'apoptose dans le groupe modèle de SDRA.
Dosage du gène rapporteur luciférase
Les gènes cibles potentiels de la miR-486-3p ont été identifiés à l'aide de la base de données en ligne TargetScan (http://www.targetscan.org/vert_72/). Après l'identification des sites de liaison prédits, des plasmides rapporteurs de luciférase de type sauvage (DLL4-WT) et mutés (DLL4-MUT) contenant les séquences de liaison correspondantes ont été construits. Les vecteurs DLL4-WT et DLL4-MUT ont été co-transfectés dans les HPMEC conjointement avec des mimiques ou des inhibiteurs de la miR-486-3p, respectivement. L'activité de luciférase relative a ensuite été mesurée à l'aide d'un kit d'essai rapporteur double luciférase. Les signaux de bioluminescence ont été détectés à l'aide d'un luminomètre conformément aux instructions du fabricant. Une validation réussie de la cible était indiquée par une réduction significative de l'activité de luciférase dans le groupe DLL4-WT après la surexpression de la miR-486-3p.
Des informations détaillées sur tous les réactifs, consommables et équipements de laboratoire utilisés dans cette étude sont fournies dans le Tableau des matériaux accompagnant.
Méthodes statistiques
Les analyses statistiques et les visualisations des données ont été réalisées à l'aide de SPSS version 26.0 et de GraphPad Prism version 9.0. Les données de mesure ont été exprimées sous la forme moyenne ± écart-type, les comparaisons entre les moyennes de deux échantillons indépendants étant évaluées par un test t indépendant. Pour les comparaisons entre trois groupes ou plus, une analyse de variance unidirectionnelle (ANOVA) et une ANOVA à mesures répétées ont été utilisées, suivies d'un test de comparaison multiple post-hoc de Tukey afin d'identifier les différences entre groupes. Les données catégorielles ont été exprimées en effectifs (pourcentages), et les comparaisons entre groupes ont été analysées à l'aide du test du chi-deux. Le test de Wilcoxon-Mann-Whitney a été appliqué aux données non paramétriques. De plus, une courbe ROC a été construite afin d'évaluer la valeur prédictive des niveaux d'expression sériques de miR-486-3p et de l'échographie pulmonaire (LUS) pour déterminer la mortalité chez les patients pédiatriques atteints de SDRA. Une analyse de corrélation de Pearson a été utilisée pour examiner les corrélations. Tous les groupes expérimentaux comprenaient trois réplicats biologiques indépendants et des réplicats techniques. L'unité statistique a été définie comme une expérience indépendante, chaque réplicat biologique représentant un lot distinct de culture cellulaire provenant de passages différents, tandis que les réplicats techniques ont été utilisés pour réduire la variation intra-expérimentale. Les données provenant des réplicats techniques ont d'abord été moyennées, puis l'analyse statistique a été effectuée à partir des valeurs moyennes des réplicats biologiques. La significativité statistique a été fixée à p < 0,05.
Résultats
Données de base comparables entre les groupes
Les caractéristiques générales des nourrissons inclus dans l'étude sont présentées dans le Tableau 1. Aucune différence significative n'a été observée dans les caractéristiques démographiques de base entre les deux groupes : âge gestationnel (36,07 ± 2,71 contre 35,72 ± 2,64 semaines, p = 0,347), proportion de sexe masculin (59,0 % contre 66,1 %, p = 0,290), poids de naissance (3,39 ± 0,57 contre 3,33 ± 0,55 kg, p = 0,437), âge maternel (29,18 ± 4,00 contre 29,66 ± 4,05 ans, p = 0,387) et mode d'accouchement (voie basse : 54,0 % contre 58,0 % ; césarienne : 46,0 % contre 42,0 %, p = 0,554), indiquant que ces groupes étaient comparables. D'après l'évaluation à la radiographie thoracique, dans le groupe SDRA, 72 cas (64,3 %) ont été classés comme modérés (grade I-II), tandis que 40 cas (35,7 %) ont été classés comme sévères (grade III-IV).
La gravité du SDRA est corrélée au pronostic du patient
L'analyse comparative des résultats en matière de survie entre le groupe d'enfants atteints de SDRA ayant survécu et ceux décédés est présentée dans le Tableau 2. Parmi les 112 nouveau-nés diagnostiqués avec un SDRA, 84 cas (75 %) ont survécu, tandis que 28 cas (25 %) ont entraîné un décès. Notamment, aucune différence statistiquement significative n'a été observée concernant l'âge du nourrisson, le sexe, le poids à la naissance, l'âge maternel, le mode d'accouchement, les caractéristiques du liquide amniotique, l'étiologie ou d'autres variables entre les deux groupes (p > 0,05). Cependant, une différence significative concernant la gravité du SDRA a été observée (p < 0,01), soulignant ainsi un facteur pronostique crucial.
Les taux de miR-486-3p et de LUS sont élevés dans le SDRA. Une analyse par RT-qPCR a révélé que les concentrations sériques de miR-486-3p étaient significativement augmentées chez les nouveau-nés atteints de SDRA par rapport aux témoins sains. De plus, au sein du groupe SDRA, le groupe sévère présentait des concentrations nettement plus élevées que le groupe léger (P < 0,001) (Figure 1A). Par ailleurs, le LUS était plus élevé dans le groupe SDRA sévère que dans le groupe SDRA léger (p < 0,001) (Figure 1B). Lorsqu'on répartissait les patients atteints de SDRA selon l'évolution clinique, le groupe décédé présentait des taux de LUS et de miR-486-3p nettement plus élevés que le groupe survivant (Figure 1C,D). Une forte corrélation positive a été observée entre le LUS et le miR-486-3p sérique chez les patients décédés (r = 0,832, p < 0,001) (Figure 1E).
La détection combinée améliore la prédiction pronostique
Sur la base du protocole d'analyse ROC, nous avons évalué la performance pronostique des indicateurs individuels et combinés. Les valeurs d'ASC pour la prédiction de la mortalité à court terme étaient de 0,873 (IC 95 % : 0,809-0,936) pour l'ELU et de 0,883 (IC 95 % : 0,822-0,944) pour le miR-486-3p, respectivement. Les valeurs de sensibilité étaient de 89,3 % et de 96,4 %, tandis que les valeurs de spécificité étaient respectivement de 73,8 % et 77,4 %. Les valeurs seuils optimales pour l'ELU et le miR-486-3p étaient respectivement de 15,500 et de 1,465. De plus, l'ASC du modèle prédictif combiné était de 0,929 (IC 95 % : 0,883-0,975), démontrant une sensibilité de 92,9 % et une spécificité de 84,5 % avec la valeur seuil optimale de 1,659 (Figure 1F).
La surexpression de miR-486-3p altère la fonction cellulaire
Suite au protocole de culture cellulaire et d'intervention par le LPS, nous avons construit un modèle cellulaire in vitro de SDRA à l'aide de cellules HPMEC. Les résultats de la qPCR ont montré que l'expression de miR-486-3p augmentait progressivement au fil du temps après la stimulation par le LPS (Figure 2A). L'expression de miR-486-3p a été surexprimée ou inhibée afin d'étudier ses effets sur les cellules modèles de SDRA (Figure 2B). Conformément aux protocoles des tests CCK-8 et de cytométrie en flux, la prolifération cellulaire et l'apoptose ont été mesurées. La surexpression de miR-486-3p a significativement inhibé la prolifération cellulaire et favorisé l'apoptose. À l'inverse, la diminution de miR-486-3p a atténué les lésions cellulaires induites par le LPS (Figure 2C,D).
Le miR-486-3p diminue l'expression de DLL4
Conformément au protocole de construction du plasmide et de l'essai rapporteur double luciférase, nous avons vérifié l'interaction entre le miR-486-3p et le DLL4. Une prédiction par bioinformatique a confirmé un site de liaison conservé entre le miR-486-3p et la région 3’UTR de DLL4 (Figure 3A). L'activité luciférase du groupe wild-type DLL4 a été significativement réduite après la surexpression du miR-486-3p, tandis qu'aucun changement évident n'a été observé dans le groupe muté (Figure 3B), ce qui démontre que DLL4 est un gène cible direct du miR-486-3p. Dans les modèles cellulaires, l'expression de DLL4 a diminué de manière dépendante du temps après un traitement par le LPS (Figure 3C). La modulation de l'expression du miR-486-3p a également régulé négativement les niveaux de DLL4 (Figure 3D).
Dans les échantillons cliniques, l'expression de DLL4 était plus faible chez les nouveau-nés atteints de SDRA que chez les témoins sains, et elle diminuait davantage dans le groupe des décès (Figure 3E–F). Une corrélation négative entre le miR-486-3p et DLL4 a été observée chez les patients décédés (r = -0,795, P < 0,001) (Figure 3G). Tous les tests de qPCR pour DLL4 ont été réalisés en trois réplicats techniques, et les résultats étaient stables.
DLL4 inverse les lésions cellulaires induites par le miR-486-3p
Suite au protocole de co-transfection utilisant le mimétique de miR-486-3p et le plasmide d'overexpression de DLL4, nous avons réalisé des expériences de sauvetage. La PCR quantitative a confirmé que l'expression de DLL4 était efficacement restaurée après la transfection par OE-DLL4 (Figure 4A). Des tests fonctionnels ont montré que l'overexpression de DLL4 inversait partiellement l'effet inhibiteur de miR-486-3p sur la prolifération cellulaire ainsi que son effet pro-apoptotique (Figure 4B,C). Ces résultats indiquent que miR-486-3p module partiellement l'activité cellulaire en ciblant DLL4.
Disponibilité des données :
Toutes les données générées ou analysées au cours de cette étude sont fournies en tant que Fichier supplémentaire 1.
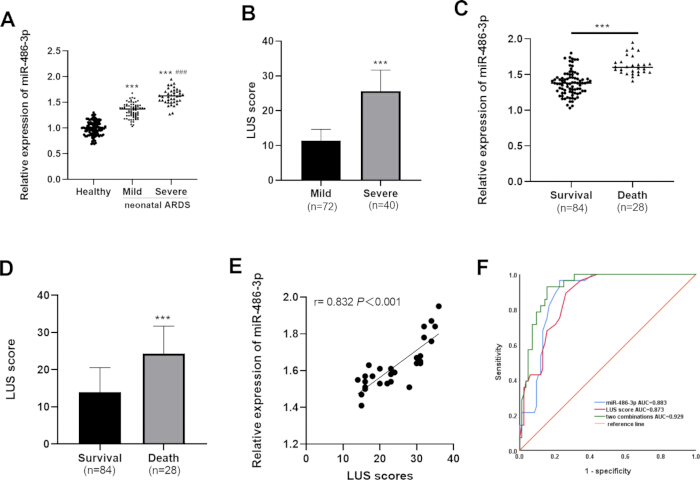
Figure 1 : Comparaison des scores d'échographie pulmonaire (LUS) et des niveaux sériques de miR-486-3p entre les groupes. (A) Niveaux sériques de miR-486-3p chez les nouveau-nés sains et les nouveau-nés atteints de SDRA. (B) Valeurs d'échographie pulmonaire (LUS) chez les nouveau-nés sains et les nouveau-nés atteints de SDRA. (C) Niveaux sériques de miR-486-3p dans le groupe survivant et le groupe décédé. (D) Valeurs d'échographie pulmonaire (LUS) dans le groupe survivant et le groupe décédé. (E) Analyse de corrélation entre le miR-486-3p sérique et l'échographie pulmonaire (LUS) chez les nouveau-nés atteints de SDRA non survivants. (F) Courbes ROC de la détection isolée de l'échographie pulmonaire (LUS), du miR-486-3p isolé, et de la détection combinée pour prédire le pronostic du SDRA néonatal. Toutes les données quantitatives sont présentées sous forme de moyenne ± écart-type ; les barres d'erreur représentent l'écart-type. *** = p <0,001, par rapport au groupe témoin ; ### = p <0,001, par rapport au groupe SDRA léger. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
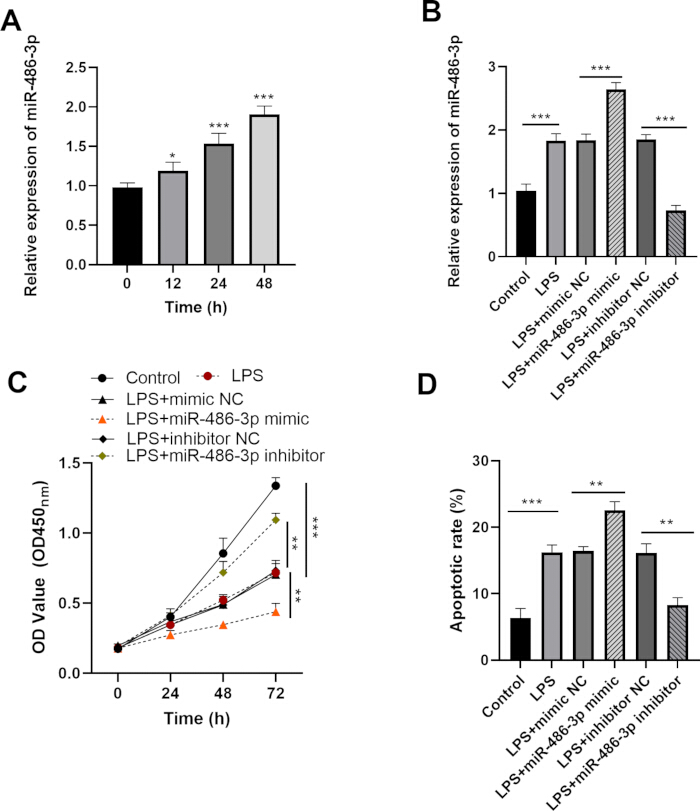
Figure 2 : Effet de miR-486-3p sur les cellules modèles de SDRA. (A) Évolution temporelle de l'expression de miR-486-3p dans les HPMEC après traitement au LPS. (B) Expression relative de miR-486-3p après surexpression ou inhibition. (C) Activité de prolifération cellulaire mesurée par test CCK-8 après modulation de l'expression de miR-486-3p. (D) Taux d'apoptose cellulaire mesuré par cytométrie en flux après modulation de l'expression de miR-486-3p. Toutes les données sont exprimées en moyenne ± écart-type ; les barres d'erreur représentent l'écart-type. Symboles statistiques : * = p <0,05, ** = p <0,01, *** = p <0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
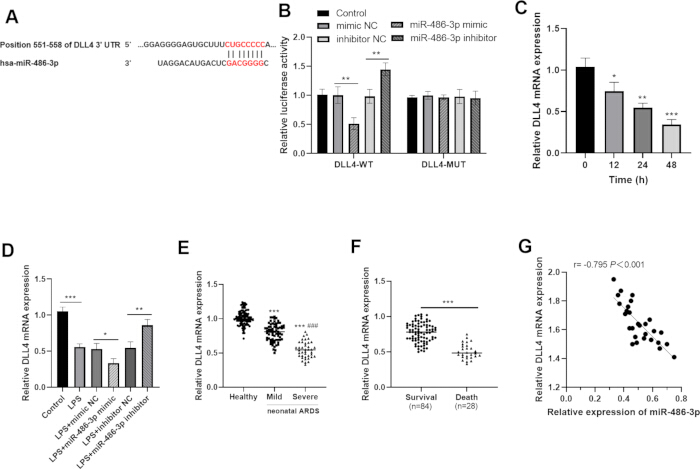
Figure 3 : Vérification de la relation ciblée entre le miR-486-3p et DLL4. (A) Schéma du site de liaison prédit entre le miR-486-3p et la région 3’UTR de DLL4. (B) Le dosage du gène rapporteur luciférase double a confirmé la relation ciblée entre le miR-486-3p et DLL4. (C) Changements dynamiques de l'expression de DLL4 dans les HPMEC après traitement par LPS. (D) Expression de DLL4 après surexpression ou inhibition du miR-486-3p. (E) Niveaux sériques de DLL4 chez les nouveau-nés sains et les nouveau-nés atteints de SDRA. (F) Niveaux de DLL4 dans le groupe survivant et le groupe décédé de nouveau-nés atteints de SDRA. (G) Analyse de corrélation entre le miR-486-3p sérique et DLL4 chez les nouveau-nés atteints de SDRA non survivants. Toutes les données quantitatives sont présentées sous forme de moyenne ± écart-type ; les barres d'erreur représentent l'écart-type. Symboles statistiques : * = p <0,05, ** = p <0,01, *** = p <0,001 par rapport au groupe témoin, ### = p <0,001 par rapport au groupe SDRA léger. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
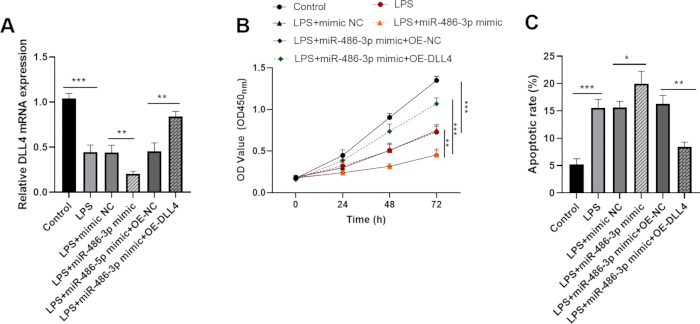
Figure 4 : Effet du ciblage de DLL4 par le miR-486-3p sur les cellules du modèle de SDRA. (A) Détection de l'expression de DLL4 après co-transfection du mimétique de miR-486-3p et d'un plasmide d'overexpression de DLL4. (B) Modifications de l'activité de prolifération cellulaire après la récupération de DLL4. (C) Modifications du taux d'apoptose cellulaire après la récupération de DLL4. Toutes les données sont présentées sous forme de moyenne ± écart-type ; les barres d'erreur représentent l'écart-type. Symboles statistiques : * = p <0,05, ** = p <0,01, *** = p <0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Variable | Sain (n=100) | SDRA néonatal (n=112) | p-valeur |
| Âge gestationnel (semaines) | 36,07 ± 2,71 | 35,72 ± 2,64 | 0,347 |
| Sexe (masculin, %) | 59 (59,0 %) | 74 (66,1 %) | 0,29 |
| Poids de naissance (kg) | 3,39 ± 0,57 | 3,33 ± 0,55 | 0,437 |
| Âge maternel (années) | 29,18 ± 4,00 | 29,66 ± 4,05 | 0,387 |
| Mode d'accouchement | 0,439 | ||
| Voie vaginale | 54 (54,0 %) | 65 (58,0 %) | |
| Césarienne | 46 (46,0 %) | 47 (42,0 %) | |
| Stades du SDRA | --- | ||
| I-II | --- | 72 (64,3 %) | |
| III-IV | --- | 40 (35,7 %) |
Tableau 1 : Caractéristiques de base des nourrissons inclus. Ce tableau résume les informations démographiques de base des nouveau-nés en bonne santé et des nouveau-nés atteints de SDRA. Les données sont présentées sous forme de moyenne ± écart-type pour les variables continues, et de nombre (pourcentage) pour les variables catégorielles. Les valeurs P indiquent les différences statistiques entre les groupes. Abréviations : ARDS = syndrome de détresse respiratoire aiguë.
| Variable | Survie (n=84) | Décès (n=28) | p-valeur |
| Âge gestationnel (semaines) | 35,95 ± 2,58 | 35,04 ± 2,76 | 0,112 |
| Sexe (masculin, %) | 53 (63,1 %) | 21 (75,0 %) | 0,253 |
| Poids à la naissance (kg) | 3,37 ± 0,58 | 3,23 ± 0,42 | 0,248 |
| Âge maternel (années) | 29,49 ± 3,82 | 30,18 ± 4,74 | 0,438 |
| Mode d'accouchement | 0,444 | ||
| Voie vaginale | 47 (56,0 %) | 18 (64,3 %) | |
| Césarienne | 37 (44,0 %) | 10 (35,7 %) | |
| Liquide amniotique anormal | 6 (9,5 %) | 4 (14,3 %) | 0,485 |
| Stades du SDRA | 0,001** | ||
| I-II | 61 (72,6 %) | 11 (39,3 %) | |
| III-IV | 23 (27,4 %) | 17 (60,7 %) | |
| Étiologie | 0,827 | ||
| Étouffement | 33 (39,3 %) | 12 (42,9 %) | |
| Pneumonie | 17 (20,2 %) | 6 (21,4 %) | |
| Sepsie | 12 (14,3 %) | 2 (7,1 %) | |
| Syndrome d'aspiration de méconium | 22 (26,2 %) | 8 (28,6 %) |
Tableau 2 : Comparaison des données cliniques entre le groupe survivant et le groupe décédé chez les nouveau-nés atteints de SDRA. Ce tableau compare les indicateurs cliniques entre les nouveau-nés atteints de SDRA survivants et non survivants. Les données continues sont exprimées en moyenne ± écart-type, et les données catégorielles sont indiquées en nombre (pourcentage). Les valeurs de p indiquent la signification statistique entre les deux groupes. ** = p<0,01. Abréviations : SDRA = syndrome de détresse respiratoire aiguë.
Fichier supplémentaire 1 : Données brutes cliniques et expérimentales soutenant les résultats de cette étude, incluant les mesures individuelles du score d'échographie pulmonaire (LUS), de l'expression sérique de miR-486-3p, de l'expression de DLL4 et des résultats des tests cellulaires.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Le SDRA néonatal est une cause majeure d'insuffisance respiratoire et de mortalité précoce chez les nouveau-nés gravement malades15. Une évaluation précoce et précise de la gravité de la maladie et du pronostic constitue une condition préalable à une intervention individualisée et à la réduction de la mortalité. Un nombre croissant de données confirme que les microARN participent à la progression pathologique du SDRA et représentent des biomarqueurs circulants prometteurs16. Des recherches indiquent que le miR-155 est fortement augmenté chez les patients septiques souffrant de lésion pulmonaire aiguë/SDRA17. De plus, des études ont révélé une augmentation des niveaux sériques de miR-629-5p chez les enfants diagnostiqués avec un SDRA18. Le miR-34a sérique est étroitement associé à la gravité et au pronostic du SDR néonatal19. De nouvelles études démontrent que le miR-375 constitue un biomarqueur diagnostique et pronostique pour le SDRA néonatal20. Semblable à ces molécules décrites, le miR-486-3p sérique peut être détecté de manière stable dans le sang périphérique par PCR quantitative et convient au dépistage rapide en unité de soins intensifs néonatals (USIN). Contrairement au miR-375 et au miR-34a, qui reflètent principalement le début précoce de la maladie, l'expression du miR-486-3p est plus étroitement corrélée à la gravité des lésions pulmonaires et évolue dynamiquement en parallèle avec la progression de la lésion pulmonaire. En combinaison avec l'échographie pulmonaire (LUS), il permet d'obtenir une meilleure précision pronostique concernant la mortalité à court terme. Toutefois, le miR-486-3p présente une spécificité relativement faible pour la maladie, et les données cliniques disponibles restent limitées par rapport à celles des biomarqueurs en microARN bien établis. Dans l'ensemble, le miR-486-3p possède un potentiel pour servir de marqueur dans le diagnostic complémentaire ou la prédiction pronostique du SDRA néonatal.
L'ÉPO est un indicateur d'imagerie mature au chevet du patient qui évalue l'aération pulmonaire en se basant sur les caractéristiques ultrasonores du tissu pulmonaire21. Notamment, l'ÉPO constitue une métrique quantitative efficace pour évaluer l'ampleur de la ventilation alvéolaire22. Des recherches ont confirmé son utilité dans l'évaluation à la fois de la gravité et du pronostic du SDRA néonatal23. Conformément à des études antérieures, notre étude clinique a révélé que les mesures d'ÉPO chez les nouveau-nés atteints de SDRA étaient significativement plus élevées que chez les nouveau-nés en bonne santé. De plus, parmi les nouveau-nés malades, le sous-groupe sévère présentait des valeurs d'ÉPO nettement plus élevées que le sous-groupe léger, soulignant une relation directe entre des lectures élevées d'ÉPO et la gravité de l'atélectasie, de l'œdème pulmonaire et de la consolidation pulmonaire24. Nos résultats ont également indiqué que les patients décédés présentaient des valeurs d'ÉPO remarquablement plus élevées que les survivants. Une forte corrélation positive entre l'ÉPO et le miR-486-3p sérique a été observée chez les nouveau-nés décédés, renforçant davantage la valeur synergique de ces deux indicateurs. Chaque méthode possède des caractéristiques intrinsèques : l'ÉPO est sans rayonnement, portable et adaptée à une surveillance continue au chevet du patient en temps réel, mais son interprétation dépend fortement de l'expérience de l'opérateur et est sujette à des biais subjectifs. La détection du miR-486-3p sérique fournit des résultats quantitatifs objectifs et reproductibles, mais ne permet pas de refléter les changements morphologiques en temps réel du tissu pulmonaire. En pratique clinique, cette approche combinée est recommandée pour une utilisation courante en unité de soins intensifs néonatals. Elle convient à la stratification précoce du risque chez les nouveau-nés suspectés ou confirmés de SDRA, à l'évaluation dynamique régulière de l'évolution de la maladie, ainsi qu'au jugement auxiliaire du pronostic clinique à court terme. Toutefois, cette méthode ne vise pas à remplacer les examens d'imagerie définitifs ou les examens étiologiques ; elle présente une spécificité limitée lorsqu'elle est appliquée à des nouveau-nés souffrant d'autres maladies pulmonaires inflammatoires. En outre, comme notre recherche a été menée dans un seul centre, son applicabilité à des populations issues de différentes régions reste à confirmer.
Cliniquement, nous avons observé que des valeurs élevées d'USP, combinées à des concentrations sériques élevées de miR-486-3p, étaient associées à un pronostic défavorable dans le SDRA néonatal, suggérant que le miR-486-3p pourrait être étroitement lié à une lésion vasculaire pulmonaire sévère et à une capacité altérée de réparation vasculaire dans le poumon immature. Nos expériences cellulaires in vitro ont complété cette observation clinique en démontrant que le miR-486-3p module directement la prolifération et l'apoptose des cellules endothéliales, deux processus fondamentaux régissant l'intégrité vasculaire et la réparation dans le poumon néonatal. De plus, des études ont montré que les ARNmi jouent des rôles cruciaux dans divers processus cellulaires25,26. Il est bien établi que les ARNmi exercent principalement leurs effets par une régulation post-transcriptionnelle des gènes cibles, impliquant majoritairement l'épissage des ARNmi et la répression de la traduction protéique27. Le gène DLL4 joue un rôle important dans le développement vasculaire et l'angiogenèse28. Des recherches ont indiqué que la famille des microARN-30 cible DLL4 pour moduler le comportement des cellules endothéliales durant l'angiogenèse29. Ces résultats suggèrent que la modulation de DLL4 endothélial pourrait être associée à une lésion vasculaire pulmonaire dans le SDRA néonatal. Dans notre étude, nous avons identifié et validé la relation de ciblage entre le miR-486-3p et DLL4. Des analyses ultérieures ont révélé qu'une expression élevée de miR-486-3p inhibait significativement la prolifération des HPMEC induites par le LPS tout en favorisant l'apoptose. Importamment, l'expression de DLL4 pouvait partiellement inverser les effets médiés par le miR-486-3p. Cela suggère que le miR-486-3p cible DLL4 pour affecter la fonction des HPMEC et réguler la progression du SDRA néonatal. Toutefois, il reste à confirmer s'il affecte directement le dysfonctionnement vasculaire pulmonaire et contribue au SDRA. Notamment, DLL4 ne faisait que partiellement revenir aux modifications cellulaires induites par le miR-486-3p. En tant qu'ARNmi typique, le miR-486-3p module plusieurs gènes cibles en aval. De futures études s'attacheront à identifier davantage de gènes cibles afin de préciser le mécanisme complet du miR-486-3p dans le SDRA néonatal.
Enfin, il convient de noter qu'une standardisation rigoureuse des étapes clés du protocole garantit des données fiables et reproductibles. Nous avons harmonisé les procédures de collecte des échantillons, adopté des protocoles standardisés de culture cellulaire et de transfection, et inclus des réplicats indépendants afin de minimiser les erreurs expérimentales. Les problèmes opérationnels courants et leurs solutions sont résumés comme suit : pour l'évaluation par LUS, standardisez le protocole de balayage en 12 régions et les règles de scoring unifiées, et ajustez la posture du nouveau-né pour obtenir des images claires. Pour la détection des miARN sériques, évitez les cycles répétés de congélation-décongélation, vérifiez la pureté de l'ARN (A260/A280 = 1,8–2,1) et incluez des réplicats techniques. Pour les modèles cellulaires induits par LPS, utilisez du LPS fraîchement préparé à 1 mg/L et des conditions de culture stables. Optimisez la confluence cellulaire et le rapport des réactifs lors de la transfection, et remplacez le milieu pour réduire la cytotoxicité. Assurez une lyse cellulaire complète et une exécution standardisée des essais bi-luciférase.
Collectivement, par rapport aux méthodes conventionnelles telles que l'imagerie thoracique, l'analyse des gaz sanguins et le dosage d'un seul biomarqueur, la stratégie combinée LUS/miR-486-3p est sans rayonnement, peu coûteuse et facile à réaliser, avec une performance prédictive améliorée. Elle constitue un outil pronostique complémentaire fiable pour le SDRA néonatal. Sur le plan clinique, cette méthode peut être utilisée pour la stratification précoce du risque et la surveillance dynamique de l'état clinique en unité de soins intensifs néonatals. Elle peut également servir d'indice d'évaluation unifié pour des études multicentriques. Sur le plan mécanistique, l'axe miR-486-3p/DLL4 validé ouvre de nouvelles perspectives pour explorer les mécanismes pathologiques et les thérapies ciblées. Toutefois, cette approche combinée présente également des limites techniques inhérentes. Les résultats de l'ÉUS varient selon les opérateurs, et le miR-486-3p manque de spécificité pour les maladies pulmonaires inflammatoires. Cette méthode ne permet qu'une détection ponctuelle et ne peut pas remplacer les examens d'imagerie définitifs ou les investigations étiologiques.
Malgré les résultats prometteurs, plusieurs limites méritent d'être soulignées. Premièrement, la conception monocentrique restreint la généralisabilité de nos conclusions. Deuxièmement, nous n'avons pas disposé d'une cohorte externe de validation pour confirmer la robustesse des performances prédictives du panel LUS/miR-486-3p. Troisièmement, le miR-486-3p sérique n'a été mesuré qu'à un seul point temporel, ne permettant pas de capturer son association dynamique avec l'évolution de la maladie. Quatrièmement, l'absence d'analyses protéiques complémentaires et de validations in vitro ou in vivo limite la solidité de nos inférences mécanistiques. Enfin, le rôle spécifique du miR-486-3p dans la physiopathologie du SDRA néonatal reste incomplètement élucidé et nécessite des investigations supplémentaires. En conclusion, l'augmentation de la LUS et les niveaux élevés de miR-486-3p sérique chez les nouveau-nés diagnostiqués avec un SDRA constituent des repères significatifs en pratique clinique. L'évaluation synergique de ces deux biomarqueurs pourrait faciliter une prédiction précise de la gravité et du pronostic du SDRA néonatal, démontrant ainsi une certaine valeur d'application clinique.
Déclarations de divulgation
Grammarly a été utilisé pour l'optimisation de l'expression anglaise, la vérification grammaticale et la normalisation du format. Toutes les idées de recherche, expériences, données et conclusions sont des travaux originaux des auteurs.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Tubes PCR de 0,2 mL | Axygen | PCR-02-C | |
| Solution de trypsine-EDTA à 0,25 % | Gibco (Thermo Fisher) | 25200056 | |
| Tubes microcentrifuge de 1,5 mL | Axygen | MCT-150-C | |
| Incubateur de culture cellulaire humidifié à 5 % de CO2 | Thermo Fisher | 3111 | |
| Plaques de culture cellulaire à 6 puits | Corning | 3516 | |
| Plaques de culture cellulaire à 96 puits | Corning | 3599 | |
| Éthanol absolu | Sigma-Aldrich | E7023 | |
| Kit de détection de l'apoptose Annexine V-FITC | BD Biosciences | 556547 | |
| Centrifugeuse de banc | Eppendorf | 5810R | |
| Cabinet de sécurité biologique | Thermo Fisher | 1300 Series A2 | |
| Kit de comptage cellulaire CCK-8 | Dojindo Molecular Technologies | CK04 | |
| Tubes jetables stériles pour prélèvement sanguin | BD Vacutainer | 367815 | |
| Plasmide d'overexpression de DLL4 (OE-DLL4) | GenePharma | EX-M02151 | |
| Plasmide rapporteur luciférase DLL4-MUT | GenePharma | PGL3-DLL4-MUT | |
| Plasmide rapporteur luciférase DLL4-WT | GenePharma | PGL3-DLL4-WT | |
| Milieu DMEM à haute teneur en glucose | Gibco (Thermo Fisher) | 11965092 | |
| Kit d'essai rapporteur double luciférase | Biolab | BL101A | |
| Lecteur d'immunosorbant lié aux enzymes (ELISA) | Thermo Fisher | Multiskan FC | |
| Sérum de veau fœtal (FBS) | Gibco (Thermo Fisher) | 10099141C | |
| Pointes de pipette filtrantes (10 μL, 200 μL, 1000 μL) | Axygen | TF-10-R-S, TF-200-R-S, TF-1000-R-S | |
| Cytomètre en flux | BD Biosciences | FACSCalibur | |
| Tubes pour cytométrie en flux | BD Biosciences | 352054 | |
| Centrifugeuse réfrigérée à grande vitesse | Eppendorf | 5424R | |
| Lipopolysaccharide (LPS) provenant d'E. coli O111:B4 | Sigma-Aldrich | L2630 | |
| Système d'échographie pulmonaire | Mindray | M9 | |
| Spectrophotomètre microvolume | Thermo Fisher | NanoDrop 2000 | |
| Inhibiteur de miR-486-3p | RiboBio | HmiR0000486-AS | |
| Mimétique de miR-486-3p | RiboBio | HmiR0000486 | |
| Jeu d'amorces qPCR pour miR-486-3p | RiboBio | HmiRQP0486 | |
| Inhibiteur contrôle négatif (NC) | RiboBio | HmiR0001-AS | |
| Mimétique contrôle négatif (NC) | RiboBio | HmiR0001 | |
| Plasmide d'overexpression contrôle négatif (OE-NC) | GenePharma | EX-NEG | |
| Solution de pénicilline-streptomycine (100×) | Gibco (Thermo Fisher) | 15140122 | |
| Solution tampon phosphate salin (PBS) 1× | Gibco (Thermo Fisher) | 10010023 | |
| Ensemble de pipettes (10 μL, 20 μL, 200 μL, 1000 μL) | Eppendorf | Research Plus | |
| Solution de coloration à l'iodure de propidium (PI) | BD Biosciences | 556463 | |
| Système de PCR quantitative en temps réel | Applied Biosystems (Thermo Fisher) | 7500 Fast | |
| Eau sans RNase | Invitrogen (Thermo Fisher) | 10977015 | |
| RT-PCR Quick Master Mix | Toyobo | FSQ-101 | |
| Pipettes jetables stériles | Corning | 4487, 4488, 4489 | |
| SYBR Green Real-time PCR Master Mix | Toyobo | QPK-201 | |
| Réactif Trizol | Invitrogen (Thermo Fisher) | 15596026 | |
| Jeu d'amorces qPCR pour l'ARNsn U6 | RiboBio | HmiRQP0001 | |
| Agitateur vortex | Scientific Industries | Vortex-Genie 2 |
Références
- Chi M, Mei YB, Feng ZC. A review on neonatal acute respiratory distress syndrome. Zhongguo Dang Dai Er Ke Za Zhi. 2018;20(9):724-728.
- Garcia MJ, Amarelle L, Malacrida L, Briva A. Novel opportunities from bioimaging to understand the trafficking and maturation of intracellular pulmonary surfactant and its role in lung diseases. Front Immunol. 2023;14:1250350.
- Wu H, et al. The value of oxygen index and base excess in predicting the outcome of neonatal acute respiratory distress syndrome. J Pediatr (Rio J). 2021;97(4):409-413.
- Coppola S, et al. Respiratory mechanics, lung recruitability, and gas exchange in pulmonary and extrapulmonary acute respiratory distress syndrome. Crit Care Med. 2019;47(6):792-799.
- Bello G, Blanco P. Lung ultrasonography for assessing lung aeration in acute respiratory distress syndrome: a narrative review. J Ultrasound Med. 2019;38(1):27-37.
- Wu HL, et al. Lung ultrasound score for monitoring the withdrawal of extracorporeal membrane oxygenation on neonatal acute respiratory distress syndrome. Heart Lung. 2024;63:9-12.
- King A, Blank D, Bhatia R, Marzbanrad F, Malhotra A. Tools to assess lung aeration in neonates with respiratory distress syndrome. Acta Paediatr. 2020;109(4):667-678.
- Zhu Z, et al. Whole blood microRNA markers are associated with acute respiratory distress syndrome. Intensive Care Med Exp. 2017;5(1):38.
- Long G, Zhang Q, Yang X, Sun H, Ji C. Diagnostic and predictive significance of serum miR-141-3p in acute respiratory distress syndrome patients with pulmonary fibrosis. Tohoku J Exp Med. 2024;262(3):157-162.
- Liang Y, et al. MiR-124-3p helps to protect against acute respiratory distress syndrome by targeting p65. Biosci Rep. 2020;40(5).
- Najafipour R, et al. Screening for differentially expressed microRNAs in BALF and blood samples of infected COVID-19 ARDS patients by small RNA deep sequencing. J Clin Lab Anal. 2022;36(11):e24672.
- Zhang S, et al. Clinical significance and potential mechanism of hsa_circ_0006892 in acute respiratory distress syndrome complicated with pulmonary fibrosis. Mol Biol Rep. 2024;51(1):1120.
- Yao MY, et al. Long non-coding RNA MALAT1 exacerbates acute respiratory distress syndrome by upregulating ICAM-1 expression via microRNA-150-5p downregulation. Aging (Albany NY). 2020;12(8):6570-6585.
- Zhang C, Ji Y, Wang Q, Ruan L. MiR-338-3p is a biomarker in neonatal acute respiratory distress syndrome and has roles in the inflammatory response of ARDS cell models. Acta Med Okayama. 2022;76(6):635-643.
- Shi S, et al. Evaluation of the neonatal sequential organ failure assessment and mortality risk in neonates with respiratory distress syndrome: a retrospective cohort study. Front Pediatr. 2022;10:911444.
- Martucci G, et al. Identification of a circulating miRNA signature to stratify acute respiratory distress syndrome patients. J Pers Med. 2020;11(1).
- Wang ZF, Yang YM, Fan H. Diagnostic value of miR-155 for acute lung injury/acute respiratory distress syndrome in patients with sepsis. J Int Med Res. 2020;48(7):300060520943070.
- Zhang C, Ji Y, Wang Q, Ruan L. MiR-629-5p may serve as a biomarker for pediatric acute respiratory distress syndrome and can regulate the inflammatory response. Pediatr Neonatol. 2024. doi:10.1016/j.pedneo.2024.05.003.
- Li Q, Chen Y, Lin L. Value of serum miR-34a and Ang-1 in severity evaluation and prognosis of neonatal respiratory distress syndrome. Emerg Med Int. 2022;2022:5480026.
- Deng Y, Zhang R, Jiang X. Association of umbilical cord blood miR-375 with neonatal respiratory distress syndrome and adverse neonatal outcomes in premature infants. Acta Biochim Pol. 2022;69(3):605-611.
- Ostras O, Shponka I, Pinton G. Ultrasound imaging of lung disease and its relationship to histopathology: an experimentally validated simulation approach. J Acoust Soc Am. 2023;154(4):2410-2425.
- Soliman RM, et al. Prediction of extubation readiness using lung ultrasound in preterm infants. Pediatr Pulmonol. 2021;56(7):2073-2080.
- Huang L, Ye D, Wang J. Analysis of diagnosing neonatal respiratory distress syndrome with lung ultrasound score. Pak J Med Sci. 2022;38(5):1101-1106.
- Chardoli M, et al. Lung ultrasound in predicting COVID-19 clinical outcomes: a prospective observational study. J Am Coll Emerg Physicians Open. 2021;2(6):e12575.
- Jafari N, Abediankenari S. Role of microRNAs in immunoregulatory functions of epithelial cells. BMC Immunol. 2024;25(1):84.
- Sun LL, Li WD, Lei FR, Li XQ. The regulatory role of microRNAs in angiogenesis-related diseases. J Cell Mol Med. 2018;22(10):4568-4587.
- Hynes C, Kakumani PK. Regulatory role of RNA-binding proteins in microRNA biogenesis. Front Mol Biosci. 2024;11:1374843.
- Chowdhury TA, Li K, Ramchandran R. Lessons learned from a lncRNA odyssey for two genes with vascular functions, DLL4 and TIE1. Vascul Pharmacol. 2019;114:103-109.
- Bridge G, et al. The microRNA-30 family targets DLL4 to modulate endothelial cell behavior during angiogenesis. Blood. 2012;120(25):5063-5072.