Ici, nous détaillons une procédure complète pour mesure de la reconnaissance sociale entre nouvelle, à court terme, et des relations à long terme en utilisant un Paradigme expérimental comportemental des Quatre Gobelets. Nous détaillons les avantages et les utilisations possibles de ce paradigme, ainsi que informations importantes pour interpréter précisément les résultats.
Article de méthode
Paradigme de reconnaissance sociale chez la souris pour distinguer les relations à court et à long terme
Dans cet article
Résumé
Résumé
La mémoire sociale est la capacité de se souvenir et de reconnaître des congénères. Il s'agit d'un aspect fondamental du comportement des mammifères, dont les avantages pour la survie sont démontrés chez les mammifères hautement sociables, comme les souris et les humains. Les rongeurs, en particulier les souris, constituent un modèle animal bien établi, largement utilisé pour étudier la mémoire sociale et les mécanismes sous-jacents. La plupart des méthodes existantes mémoire sociale les paradigmes évaluent principalement la reconnaissance sociale à court terme, dans laquelle la durée de la relation et le niveau de familiarité entre le sujet et un agent se situe entre 5 et 15 minutes. Par conséquent, les paradigmes existants et les études antérieures ne pas capturer les souvenirs sociaux issus de relations à long terme et se concentrer sur la dichotomie entre la nouveauté et la familiarité à court terme, laissant un un grand vide dans notre compréhension mécanistique des mémoires sociales. Pour combler ce vide, nous avons conçu un test simple permettant de capturer les réponses de la souris à différents niveaux de familiarité, plaçant ainsi le rappel de la mémoire sociale complexe dans un contexte observable et quantifiable. Dans le paradigme des quatre gobelets, une souris soumise explore librement un arène contenant quatre godets perforés placés dans chaque coin. Ces godets contiennent trois agent souris de niveaux de familiarité variés (stimuli sociaux) : une souris familière à long terme (camarade de cage ; cohabitation de 1 mois), une souris familière à court terme (exposition préalable de 10 minutes), une souris congénère nouvelle, et une tasse vide comme témoin. Les souris mâles CD-1 montrent une préférence pour l'exploration de la souris nouvelle et de la souris familière à long terme plutôt que d'étudier des souris familières à court terme dans ce paradigme. Cette tâche démontre reconnaissance du niveau de familiarité et réduit au minimum les comportements agressifs tout en conservant en contrôlant pour antécédents d'exposition. Ce nouvel essai offre une plateforme permettant de comparer directement les mécanismes neuronaux de la vie sociale mémoire à long terme, à court terme et mémoire nouvelle individus. Le paradigme des quatre gobelets sert de méthode novatrice mesure pour reconnaissance de familiarité à long terme qui viendra compléter les dosages de reconnaissance à court terme existants.
Introduction
La mémoire sociale est une caractéristique fondamentale du comportement social des mammifères et est particulièrement bien développée chez les espèces très sociales telles que les souris et les humains. Chez les rongeurs, la reconnaissance des autres est à la base de dynamiques comportementales essentielles à la survie au sein des groupes familiaux et des unités de congénères, notamment la cohésion du groupe, les hiérarchies de dominance, les comportements d'accouplement et les soins parentaux1,2. Outre son rôle évolutivement avantageux pour la survie animale, la perturbation de la mémoire sociale chez l'humain constitue un marqueur répandu dans plusieurs troubles neuropsychiatriques et neurologiques, notamment le trouble du spectre autistique, la schizophrénie et la maladie d'Alzheimer3,4,5,6. Étant donné que la reconnaissance sociale est fondamentale pour le fonctionnement quotidien des espèces sociales et revêt une importance clinique évidente, la mise au point de tests comportementaux capables de rendre fidèlement compte de sa nature multidimensionnelle et de ses bases neuronales est essentielle. Bien que les paradigmes existants mesurent certains aspects de la reconnaissance sociale chez la souris, la plupart des tests sont conçus pour évaluer les préférences pour la nouveauté en comparant des interactions avec des individus nouveaux versus des relations à court terme établies en quelques minutes ou heures, plutôt que de quantifier la reconnaissance de relations sociales à long terme.
Les approches existantes, telles que le paradigme de la triple chambre ou les paradigmes d'habituations-désinhibition, évaluent la préférence pour la nouveauté après une exposition préalable brève, souvent limitée à 5 à 15 minutes.7,8,9,10,11Ces méthodes ont fourni une compréhension approfondie des mécanismes neuronaux de ces interactions sociales à court terme mémoires chez la souris12,13. Cependant, les souvenirs sociaux naturalistes et la fonction sociale doivent intégrer les mécanismes distincts en jeu dans les relations à long terme, construit par cohabitation, à long terme hiérarchies sociales ou partenaires de reproduction Bien que certaines études utilisent effectivement le paradigme de la triple chambre avec des animaux provenant de la même portée14 ou des souris familières cohébergées avec le sujet pendant jusqu'à 72 h15,16, l'utilisation principale du paradigme repose encore sur la simple dichotomie nouveau versus familier. Cela limite les comparaisons entre plusieurs souris familières différentes. Les paradigmes établis de reconnaissance sociale, biaisés en faveur des étude des relations à long terme, nous identifions un manque évident dans nos connaissances des mécanismes neuronaux sous-jacents à la reconnaissance sociale des relations à long terme.
Pour pallier cette limitation, nous avons mis au point le paradigme des quatre tasses : un test simple et souple conçu pour différencier reconnaissance de plusieurs niveaux de familiarité sociale au sein d'une même session de test. Dans ce paradigme, une souris test explore les quatre coins d'une arène ouverte, chaque contenant a perforé cuvette maintien a conspecifique ou une tasse témoin vide. Les godets contiennent un congénère familier à long terme (camarade de cage), un familiarisation à court terme conspecifique avec une exposition préalable limitée (10 min), un nouveau souris, et un vide témoin. Le temps d'investigation sert d'indice quantitatif de reconnaissance sociale et de préférence sociale. Cette configuration permet des comparaisons simultanées entre différents niveaux de familiarité tout en minimisant les interactions physiques directes et les éventuelles rencontres agressives.
Protocole
Toutes les procédures impliquant des animaux doivent être effectuées conformément aux directives institutionnelles et approuvées par le comité institutionnel de soins aux animaux de l'Université de Floride (IACUC).
1. Préparation et hébergement des animaux
- Utiliser des adultes du même sexe souris élevées en groupe pour toutes les expériences. Manipuler les souris pendant au moins 2 jours afin de les habituer à la manipulation et de réduire leur anxiété avant les tests expérimentaux.
- Héberger les souris dans des cages de laboratoire standards sous un cycle lumineux inversé avec un accès libre à la nourriture et à l'eau.
REMARQUE : Des souris adultes CD-1 et C57BL/6 (âgées de 3 à 4 mois) ont été utilisées pour les expériences représentatives. Les souris étaient logées par groupes de 3 à 4 animaux par cage. Les jeux de données représentatifs comprenaient 10 souris mâles CD-1, 12 souris femelles CD-1 et 31 souris mâles C57BL/6. Le comportement doit être évalué pendant la phase d'activité des animaux (phase sombre). Les souris incluses dans cette étude ont été testées entre 9 h et 18 h et étaient maintenues selon un cycle lumineux inversé (phase sombre de 8 h à 20 h). - Définir un agent familier à long terme comme un congénère de même souche et de même sexe vivant dans la même cage qui a cohabité avec la souris sujet dans la même cage pendant un minimum de 3 à 4 semaines avant le test.
- Sélectionner des congénères familiers et nouveaux à court terme agents de la même souche et du même sexe que la souris soumise à l'expérience.
- S'assurer que les souris nouvelles n'ont eu aucune exposition physique ou olfactive préalable à la souris sujet.
- Sélectionnez un agent nouveau et un agent familier à court terme provenant de cages domestiques différentes afin d'éviter des indices olfactifs similaires entre ces deux agents.
REMARQUE : Enregistrer l'âge approximatif de tous les animaux utilisés et limiter la réutilisation des mêmes agents nouveaux et à court terme plusieurs fois par jour. Si les agents doivent être réutilisés, prévoir >2 heures d'intervalle en cage d'origine entre les essais afin d'éviter les agents stressés.
2. Installation de l'arène
- Placer un propre, arène carrée en champ ouvert (49,5 cm x 49,5 cm x 49,5 cm ; Table des matériels) dans une salle d'essais comportementaux calme.
- Illuminez la zone à l'aide d'une lampe unique, haute ou suspendue, réglée pour environ 8 à 20 lux
- Placer quatre gobelets en plastique perforés de poids identique dans chaque coin de l'arène (Figure 1A).
- Utilisez des gobelets visuellement identiques chaque fois que possible. Si des gobelets de couleurs différentes sont utilisés, équilibrez de manière contrôlée les attributions et les positions des gobelets entre les essais.
- Appuyez sur deux côtés de chaque cupule rincer contre les parois de l'arène afin de limiter l'accès, réduisant au minimum le comportement de dissimulation et standardisant les angles d'exploration.
- Utilisez des récipients suffisamment lourds pour empêcher la fuite et suffisamment hauts pour empêcher l'escalade.
REMARQUE : Dans cette étude, la disposition des gobelets et la position de l'agent ont été pseudo-aléatoirisées entre les sujets en faisant tourner les gobelets en plastique colorés dans le sens horaire, tandis que le type d'agent était déplacé dans le sens antihoraire au cours des essais.
- Placer la caméra suffisamment élevé pour que le dosage complet la boîte est placée dans le champ de vision afin d'éviter les angles morts lors du codage comportemental. Maintenir un éblouissement minimal et un éclairage uniforme sur toute la surface du plancher de la boîte (Figure 1A).
- Nettoyer soigneusement le sol de l'arène et les coupes entre chaque essai en utilisant un désinfectant approprié, suivi d'eau pour éliminer les odeurs résiduelles.
- Laisser sécher complètement l'arène avant de réintroduire animaux
3. Habituation à l'arène le jour 0
- Placer le sujet et ses compagnons de cage dans l'arène contenant quatre gobelets perforés vides et permettre une exploration libre pendant 20 min.
NOTE : Habituer les sujets individuellement pour les expériences avec lien fixe. Des séances d'habituation supplémentaires peuvent être nécessaires. Il est recommandé de prévoir plusieurs jours d'habituation si les souris n'explorent pas entièrement l'arène après une seule journée. - Retirer toutes les souris de l'arène et les ramener dans leur cage d'origine.
- Placer tous les agents sociaux sous les gobelets pendant 10 min afin de les habituer à être immobilisés. Habituer simultanément les agents provenant de la même cage d'origine, un par gobelet (Figure 1B).
- Nettoyer l'arène et les gobelets avant d'introduire des souris provenant d'une nouvelle cage d'origine.
NOTE : Permettre aux souris de se reposer pendant au moins 15 min après leur transport dans la pièce avant de commencer la séance.
4. Ligne de base
- Installer l'arène conformément à la section 2. Maintenir la même configuration de l'arène pendant toutes les journées expérimentales.
- Placer le sujet dans l'arène contenant quatre gobelets vides et permettre une exploration libre pendant 10 min.
NOTE : Ne pas interrompre l'enregistrement à aucun moment, afin qu'il se poursuive sans discontinuité pendant toutes les phases de l' essai en cours.
5. Acquisition à court terme
- Utilisez une coupelle perforée lestée pour contenir le sujet tout en plaçant le dispositif désigné "familiarité à court terme" agent Alternativement, exposer le sujet à l'agent à court terme dans une cage propre.
- Si vous choisissez de réaliser l'exposition en arène, limitez-vous à un espace familier désigné à court terme agent sous l'un des quatre gobelets perforés dans l'arène, en laissant les trois autres gobelets vide.
- Libération le sujet et permettre une exploration libre pendant 10 min (Figure 1B).
REMARQUE : Si vous utilisez la méthode d'exposition à un agent à court terme dans une arène, alternez le coin utilisé pour l'agent familier à court terme entre les sujets afin d'éviter un biais spatial.
6. Intervalle inter-essai (ITI)
- Récupérer le familiarisation à court terme agent et replacez-le dans sa cage d'origine. Laissez le souris sujet rester seule dans l'arène et laisser libre mouvement pendant 10 min.
- Réunir nouveau et familiers à long terme souris témoins pour le test phase.
REMARQUE : Remettre l'agent familier à court terme dans le même récipient utilisé lors de l'acquisition à court terme (section 5). Cette pratique est recommandée afin d'éviter toute nouveauté liée à la position spatiale si l'acquisition à court terme est réalisée dans une arène.
7. Phase de reconnaissance sociale
- Placer une autre coupelle perforée lestée sur la souris soumise à l'expérience.
- Placer une souris sous chacun des trois gobelets perforés lestés : un congénère familier à long terme (camarade de cage), un congénère familier à court terme et un congénère nouveau. Laisser une quatrième tasse désignée vide comme témoin.
REMARQUE : Étiqueter les couvercles des godets pour identifier les emplacements des agents lors de l'évaluation du comportement. - Retirer la coupelle perforée de la souris soumise à l'expérience au centre de l'arène et laisser librement explorer pendant 10 min (Figure 1A).
- Retirer toutes les souris à la fin de l'expérience 10 min intervalle et arrêtez l'enregistrement.
- Retourner toutes les souris dans leurs cages d'origine.
- Nettoyer soigneusement l'arène et les récipients avant le prochain essai.
REMARQUE : Conservez des godets de remplacement en cas de dommage.
8. Évaluation comportementale
- Importer toutes les vidéos enregistrées dans un logiciel d'analyse comportementale capable d'annotations manuelles, tel que le Behavioral Observation Research Interactive Software (BORIS).
REMARQUE : L'évaluation comportementale n'a pas été réalisée en aveugle quant à la position du compagnon de cage, puisque des étiquettes portant l'identifiant de l'agent étaient placées au-dessus de chaque cupule et visibles sur les vidéos, et que le numéro de cage pouvait être déduit. Les évaluateurs ne prêtaient pas activement attention aux étiquettes visibles et étaient en revanche aveugles quant à l'identité de l'agent nouveau et de l'agent à court terme. Tous les évaluateurs ont suivi des définitions opérationnelles prédéfinies du comportement d'investigation ainsi que des critères normalisés d'évaluation. - Définir la matrice comportementale avant l'attribution des scores.
- Définir un épisode d'investigation comme le moment où la souris sujet place son nez à l'intérieur de 1 cm d'une tasse tout en présentant posture d'investigation prolongée
REMARQUE : Inclure les épisodes d'investigation comportant des mastications et des grignotements dirigés vers la tasse. - Annoter manuellement la durée totale de l'investigation pour chaque cup au cours de la phase de test de reconnaissance sociale de 10 minutes. Noter la ligne de base et l'acquisition selon les besoins.
REMARQUE : Un suivi automatisé de la posture peut être utilisé avec une région d'intérêt semi-circulaire de 1 cm entourant chaque cupule. - Exporter des données annotées pour ultérieur analyse statistique
Résultats
Selon le protocole du paradigme des quatre gobelets, des souris mâles CD-1 ont présenté un comportement différentiel d'investigation sociale envers des congénères familiers à long terme (cohabitants), familiers à court terme et nouveaux (Figure 2). Pour chaque agent, un indice de discrimination (DI) a été calculé en fonction des secondes passées à l'investigation de cet agent par rapport au gobelet vide, selon la formule (agent − vide)/(agent + vide), durant la phase de reconnaissance sociale de 10 minutes. Cet indice suivait une distribution normale selon le test de Shapiro-Wilk ; par conséquent, nous avons utilisé des tests statistiques supposant une distribution normale des données. Les souris ont montré une discrimination significativement plus élevée envers le congénère nouveau par rapport au congénère familier à court terme (Figure 2 ; nouveau contre court terme t(9) = 3,70, p ajusté selon Bonferroni-Holm = 0,01). Le paradigme a également révélé que les souris présentaient une discrimination significativement plus élevée envers le cohabitant familier à long terme par rapport au congénère familier à court terme (Figure 2 ; cohabitant contre court terme t(9) = 2,87, p ajusté selon Bonferroni-Holm = 0,04). Aucune différence significative n’a été observée dans la discrimination entre le congénère nouveau et le cohabitant (Figure 2 ; nouveau contre cohabitant t(9) = -1,13, p ajusté = 0,29), suggérant que les souris investiguaient préférentiellement à la fois les congénères nouveaux et familiers à long terme plutôt que le congénère familier à court terme. Le temps d'investigation à chaque emplacement de gobelet durant la phase de base dans l'arène vide ne différait pas selon l'agent social qui occuperait ultérieurement cette position spécifique, confirmant l'absence de préférence préalable pour un gobelet qui aurait pu influencer nos résultats (nouveau de base contre cohabitant de base t(9) = -1,99, p = 0,23 ; nouveau contre court terme de base t(9) = -1,97, p = 0,23 ; cohabitant contre court terme de base t(9) = 0,54, p = 0,60).
En revanche, les souris femelles CD-1 n'ont pas présenté de différences significatives dans l'indice de discrimination entre les congénères nouveau, familiers à court terme et familiers à long terme (Figure 3). Aucune différence significative n'a été observée entre le congénère nouveau et celui familier à court terme (p = 0,35), le nouveau et le colocataire (p = 0,69), ou entre le congénère familier à court terme et le colocataire (p = 0,70). Les souris femelles ont globalement exploré tous les agents plutôt que la coupelle vide, montrant un schéma comportemental distinct dans cette tâche, reflétant peut-être une sociabilité plus marquée par rapport aux souris mâles.
De même, les souris mâles C57BL/6 ont montré une tendance dans le même sens, avec une discrimination plus marquée envers le congénère nouveau qu’envers le congénère familiier à court terme. Cette différence s'approchait, mais n'atteignait pas, le seuil de significativité après correction de Bonferroni-Holm, suggérant une variance interindividuelle plus élevée dans ce groupe plus important de souris C57BL/6 (n = 31) par rapport aux mâles CD-1 (Figure 4 ; p ajusté = 0,055). Aucune différence significative n’a été observée entre le congénère nouveau et le compagnon de cage (p = 0,62), ni entre le congénère familiier à court terme et le compagnon de cage (p = 0,62). Ces résultats suggèrent que le comportement investigatoire marqué des compagnons de cage observé chez les mâles CD1 varie selon les souches et les sexes.
Afin de déterminer si la dominance sociale contribuait à l'investigation des congénères, les scores d'urine-marking David ont été corrélés à l'indice de discrimination entre congénères. Aucune corrélation significative n'a été observée chez les souris mâles CD-1 (coefficient de corrélation de Pearson) r = 0.28, p = 0,44) ou souris mâles C57BL/6 (Pearson's r = 0.10, p = 0,57), ce qui suggère que le rang social n'a pas influencé l'indice de discrimination des congénères de cage.
Ensemble, ces résultats démontrent que le paradigme des quatre gobelets peut détecter une investigation sociale différentielle tout en évaluant simultanément la familiarité à long et à court terme, ainsi que la nouveauté sociale, au cours d'une seule séance comportementale. Il est important de noter que le sexe et la souche peuvent influencer le comportement dans cet essai.
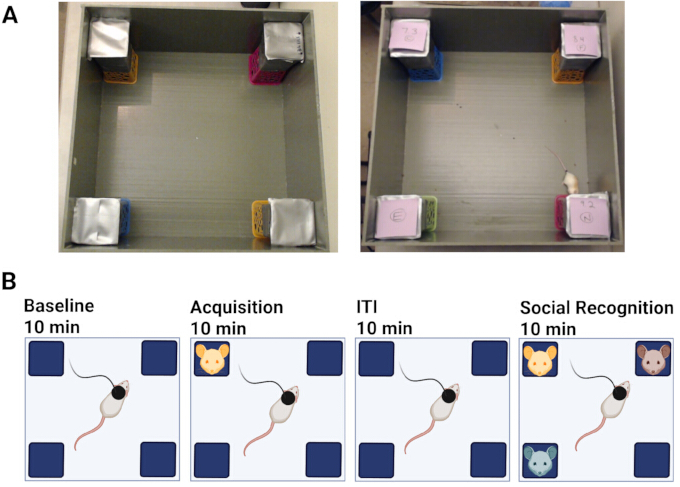
Figure 1 : Installation et processus expérimental du paradigme des quatre gobelets. (A) À gauche, la boîte du paradigme des quatre gobelets avec quatre gobelets perforés vides. À droite, un sujet explorant la boîte du paradigme des quatre gobelets avec quatre gobelets perforés contenant des agents. Les étiquettes indiquent l'identité des agents sociaux afin de faciliter une notation comportementale précise. (B) Schéma comportemental du jour 1 du paradigme. Les couleurs des souris indiquent l'identité des agents. Remarque : les images ont été prises avec un flash d'appareil photo, ce qui donne une apparence plus lumineuse de l'arène par rapport à l'éclairage utilisé lors des expériences, compris entre 8 et 20 lux. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
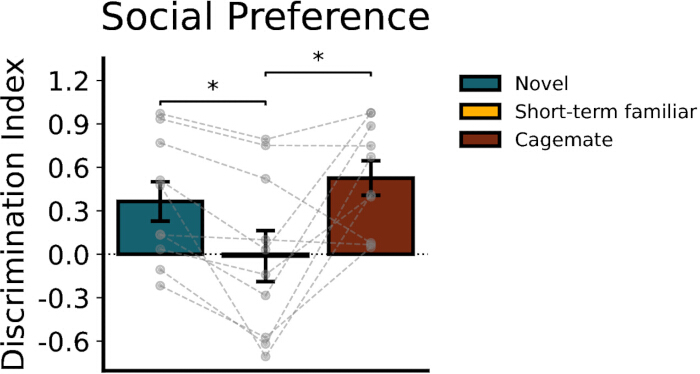
Figure 2: Préférence sociale dans le paradigme des quatre coupes chez des souris mâles CD-1. Indice de discrimination (ID) relatif à l'exploration de congénères nouveaux, familiers à court terme et familiers à long terme (cohabitants) durant la phase de reconnaissance sociale de 10 minutes. L'ID a été calculé selon la formule suivante : (agent – vide)/(agent + vide). Les souris ont montré une discrimination significativement plus élevée envers les congénères nouveaux et cohabitants par rapport au congénère familier à court terme (p < 0,05), tandis qu'aucune différence significative n'a été observée entre la discrimination envers le congénère nouveau et celle envers le congénère cohabitant. Les données sont présentées sous forme de moyenne ± erreur standard pour 10 souris. Les comparaisons statistiques ont été réalisées à l'aide de tests t appariés avec correction de Bonferroni-Holm pour comparaisons multiples. *p < 0,05. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
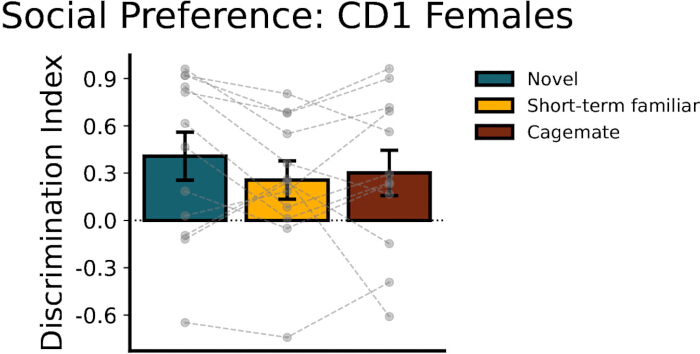
Figure 3 : Préférence sociale dans le paradigme des quatre coupes chez des souris femelles CD-1. Indice de discrimination (ID) concernant l'exploration de congénères nouveaux, familiers à court terme et familiers à long terme (compagnon de cage) durant la phase de reconnaissance sociale de 10 minutes. L'ID a été calculé selon la formule suivante : (agent – vide)/(agent + vide). Aucune différence significative de l'indice de discrimination n'a été observée entre les trois stimuli sociaux. Les données sont présentées sous forme de moyenne ± erreur standard de la moyenne pour 12 souris. Les comparaisons statistiques ont été réalisées à l'aide de tests t appariés avec correction de Bonferroni-Holm pour comparaisons multiples. *p < 0,05. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
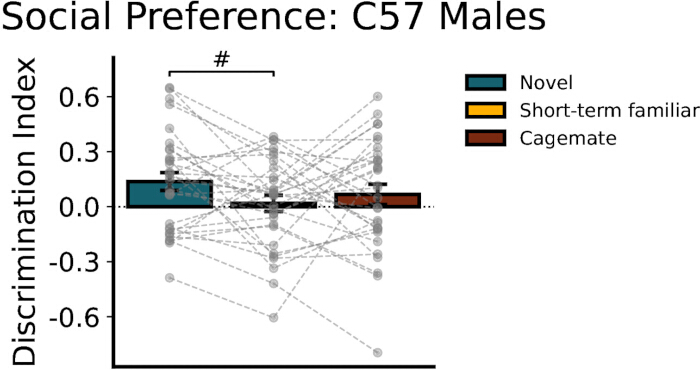
Figure 4 : Préférence sociale dans le paradigme des quatre coupes chez des souris mâles C57BL/6. Indice de discrimination (ID) pour l'exploration des congénères nouveau, familiers à court terme et familiers à long terme (compagnon de cage) durant la phase de reconnaissance sociale de 10 minutes. L'ID a été calculé selon la formule (agent − vide)/(agent + vide). Une tendance vers une discrimination plus importante du congénère nouveau par rapport au congénère familier à court terme a été observée, mais n'est pas restée significative après correction de Bonferroni-Holm (p = 0,055). Aucune différence significative n'a été observée entre le nouveau et le compagnon de cage, ni entre le familier à court terme et le compagnon de cage. Les données sont présentées comme moyenne ± erreur standard de la moyenne pour 31 souris. Les comparaisons statistiques ont été réalisées à l'aide de tests t appariés avec correction de Bonferroni-Holm pour comparaisons multiples. #p < 0,06. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Discussion
Plusieurs considérations essentielles doivent être prises en compte lors de l'application du paradigme des quatre tasses afin de mesurer efficacement et de manière fiable ces dynamiques sociales dans d'autres contextes de laboratoire. L'habituation le jour 0 réduit l'exploration non sociale de l'arène et des tasses, exploration motivée par la nouveauté, qui pourrait autrement masquer l'investigation sociale pendant le test7,8,9. Un contrôle précis de la durée de familiarisation à court terme est également essentiel, car de petites différences dans le temps d'exposition peuvent modifier significativement les schémas de préférence ultérieurs8,9,10. Une période de familiarisation de 10 minutes a été choisie afin d'établir une mémoire sociale à court terme robuste, tout en restant compatible avec les paradigmes de reconnaissance sociale précédemment décrits, qui utilisent des périodes d'exposition brèves pour distinguer les congénères familiers des nouveaux7,8,10. De plus, une période de cohabitation de 3 à 4 semaines a été sélectionnée pour établir une familiarité sociale stable à long terme, grâce à une cohabitation prolongée plutôt qu'à des expositions répétées mais brèves. Cette durée offre une opportunité suffisante pour des interactions sociales soutenues et pour la formation d'une familiarité durable entre les animaux logés ensemble10. La distinction entre la période de familiarisation de 10 minutes et la période de cohabitation de 3 à 4 semaines a été délibérément conçue pour créer deux niveaux qualitativement différents de familiarité (récente et à long terme) au sein d'une même session comportementale. Pendant l'expérimentation, il est nécessaire de contrebalancer les identités des agents selon les positions des tasses entre les essais, afin de contrôler les biais spatiaux intrinsèques chez les souris7,8. L'utilisation répétée des souris agents au cours de plusieurs essais pourrait modifier leur niveau de stress et, par conséquent, influencer le comportement d'investigation des sujets. Pour minimiser les facteurs de confusion potentiels, les souris agents n'étaient pas réutilisées plusieurs fois au cours d'une même journée de test lorsque cela était possible, et l'identité des agents ainsi que la position des tasses étaient contrebalancées entre les sujets. En outre, comme la dominance sociale peut influencer l'investigation sociale, la hiérarchie de dominance a été évaluée à l'aide de scores basés sur la territorialité et sur les scores de David. Aucune relation significative n'a été observée entre le score de David et l'indice de discrimination des congénères de cage chez les souris mâles CD-1 et chez les souris mâles C57BL/6, ce qui suggère que la préférence observée pour les congénères familiers à long terme n'était pas due au statut de dominance. Lors de l'analyse, des définitions opérationnelles cohérentes des comportements d'investigation, en particulier de la durée d'investigation, sont nécessaires pour assurer la reproductibilité entre les observateurs et les cohortes expérimentales. L'un des défis potentiels rencontrés par tous les paradigmes sociaux fondés sur l'investigation est le « plancher d'effet », c'est-à-dire des temps d'investigation proches de zéro qui empêchent toute comparaison. Chez les souches de souris qui présentent de faibles niveaux d'investigation sociale, une réduction supplémentaire de l'éclairage visible et l'utilisation d'un suivi vidéo en infrarouge pourraient réduire l'anxiété et augmenter le comportement exploratoire.
Le protocole permet une certaine souplesse et des modifications selon les objectifs expérimentaux, mais certaines adaptations nécessitent une attention particulière. Le matériau des gobelets constitue une variable essentielle dans le test. Bien que ce protocole utilise des gobelets en plastique perforé, des gobelets métalliques lestés dotés de petites perforations métalliques peuvent réduire les comportements de mastication et les tentatives d’évasion par rapport aux gobelets en plastique léger. L’utilisation de gobelets en plastique peut augmenter les comportements de manipulation, tels que le rongement ou l’escalade, qui doivent être surveillés et annotés lors de l’analyse comportementale. Une approche alternative consiste à remplacer les gobelets perforés par des séparateurs verticaux hauts et perforés, qui isolent chaque coin de l’arène centrale tout en conservant une communication olfactive et une communication visuelle limitée. Bien que cette configuration puisse réduire davantage les comportements d’escalade, l’utilisation de gobelets perforés amovibles présente l’avantage pratique de transformer rapidement une arène standard en champ ouvert en un paradigme à quatre gobelets, sans nécessiter de modifications permanentes. Les interactions excessives avec les gobelets peuvent être atténuées en augmentant leur poids, en modifiant la taille des perforations et en conservant une couleur uniforme afin de réduire les sources de biais. En outre, les souris agents doivent être contrebalancées et ne pas être réutilisées au cours d’une même journée de test afin de limiter les effets involontaires de familiarité.
Plusieurs limites du paradigme des quatre coupes doivent être reconnues. Étant donné que l'interaction sociale est restreinte par des barrières perforées, le test évalue principalement l'investigation initiée par le sujet, non réciproque, fondée sur des indices olfactifs et visuels limités, plutôt que sur un contact physique direct8,9. De plus, l'utilisation de coupes comme barrière physique et visuelle introduit une ambiguïté potentielle dans l'interprétation du comportement d'investigation. Dans les cas où une augmentation de l'investigation des congénères de cage est observée, particulièrement chez les mâles CD-1, il reste incertain si cela reflète uniquement la reconnaissance sociale ou une combinaison d'investigation et de motivation affiliative, incluant des comportements liés à l'aide envers un congénère familier (par exemple, des tentatives d'aider le congénère à s'échapper en mâchant la coupe en plastique). Ces considérations soulignent l'importance d'une interprétation prudente et, chaque fois que possible, de l'utilisation de tests comportementaux complémentaires. Les relations sociales préexistantes entre les congénères de cage, notamment la hiérarchie de dominance, les interactions affiliatives et les expériences sociales antérieures, peuvent également influencer les préférences d'investigation. Toutefois, nous n'avons pas observé de lien apparent entre le rang de dominance et le comportement d'investigation des congénères de cage. Néanmoins, ces facteurs peuvent varier selon les souches, les conditions d'hébergement et les paradigmes expérimentaux, et doivent être pris en compte lors de l'interprétation des préférences liées à la familiarité à long terme.
Par rapport aux tests de reconnaissance sociale existants, le paradigme des quatre coupes permet la comparaison simultanée de plusieurs agents, tels qu'un congénère familier à long terme, un congénère familier à court terme et un congénère nouveau, au cours d'une seule session comportementale. Les paradigmes traditionnels, comme les tests à trois compartiments et les tests d'habituations–désinhibition, évaluent principalement la préférence pour la nouveauté à court terme après de brèves périodes d'exposition7,8,9,10. Des études antérieures ont également intégré des compagnons de cage à long terme aux côtés de congénères nouveaux, notamment dans des paradigmes d'interaction sociale sans restriction et dans des arènes multi-compartiments modifiées conçues pour évaluer la familiarité sociale17,18. Toutefois, ces approches ne comparent pas simultanément des stimuli sociaux familiers à long terme, familiers à court terme et nouveaux dans le même test. En intégrant des compagnons de cage à long terme conjointement avec des agents à court terme, le paradigme des quatre coupes offre un moyen d'étudier les souvenirs sociaux durables issus d'une cohabitation prolongée. Des données représentatives provenant de souris CD-1 mâles et femelles démontrent que le paradigme des quatre coupes peut être appliqué avec succès chez les deux sexes, mettant en évidence des profils comportementaux spécifiques au sexe. De même, des données représentatives provenant de souris CD-1 et C57BL/6 montrent davantage que le paradigme des quatre coupes peut être mis en œuvre efficacement chez plusieurs souches de laboratoire couramment utilisées. Bien que la reconnaissance sociale et la préférence pour la nouveauté varient souvent selon les souches de souris7,19, le profil général de discrimination de la familiarité observé chez les mâles des deux souches suggère que le test est largement applicable. Néanmoins, comme les comportements de reconnaissance sociale peuvent varier selon la souche, le sexe, l'âge et le contexte expérimental, les chercheurs doivent valider le test dans le modèle animal spécifique à leur question. En outre, bien que ce paradigme puisse être adapté dans une arène à quatre bras ou à quatre compartiments, son utilisation dans une arène en champ ouvert permet une meilleure dissociation entre la mémoire de navigation et spatiale, d'une part, et la mémoire sociale, d'autre part. La charge de mémoire spatiale est plus importante lors de la navigation entre des compartiments ou bras distincts ; par conséquent, pour l'étude des mécanismes de la mémoire sociale, la mémoire spatiale doit constituer une variable importante à évaluer. Netser et al. (2017) discutent également de ces limites liées à l'arène typique à trois compartiments, en proposant une alternative analogue en arène à deux compartiments, qui minimise le besoin de navigation spatiale20. Cette méthode convient particulièrement aux études examinant la représentation neuronale de la familiarité sociale, les changements longitudinaux de la cognition sociale, ainsi que les conditions dans lesquelles la mémoire sociale à long terme pourrait être modifiée de manière sélective.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
Remerciements
Ce travail a été soutenu par la bourse McKnight en neurosciences et la bourse Klingenstein en neurosciences attribuées à NPC.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Logiciel de notation comportementale | Logiciel interactif de recherche en observation comportementale | Version 9.12.7 | Logiciel pour l'annotation manuelle d'événements |
| Arena de champ ouvert | Rafferty Machine and Tool | Fait sur mesure | Plaque en fibre de verre FRP structurale, arène carrée (49,5 cm x 49,5 cm x 49,5 cm) ; parois non transparentes, si l'arène est transparente, recouvrir les parois extérieures de papier pour minimiser les distractions pour l'animal |
| Caméra suspendue | Logitech | Logitech C920x HD Pro PC Webcam | Caméra capable d'enregistrement vidéo continu ; montée au-dessus du centre de l'arène |
| Coupelles perforées | Chinco Store | ONG-Chinco-0279 | dimensions des coupelles : 4,01 po L x 4,01 po l x 4,52 po H ; coupelles en plastique ou en métal perforées, pouvant être carrées ou cylindriques |
| Prism | Graph Pad | Version 10.6.0 | Logiciel pour l'analyse des données ; peut être réalisé avec d'autres logiciels |
Références
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible