L'infestation par le nématode reniforme réduit considérablement le rendement du coton et la qualité de la fibre. La lignine renforce les parois cellulaires des plantes et contribue aux défenses structurelles contre les ravageurs, mais son rôle dans la résistance au nématode reniforme chez le coton n'a pas encore été étudié. Cette étude décrit un protocole histochimique permettant de visualiser le dépôt de lignine dans les racines de génotypes de coton (Gossypium arboreum) résistants et sensibles au nématode reniforme, en utilisant une coloration au phloroglucinol.
Article de recherche
Analyse histochimique des différences de lignine entre des génotypes de coton résistants et sensibles aux nématodes réniformes
Dans cet article
Résumé
Résumé
Les nématodes reniformes (Rotylenchulus reniformis) constituent une contrainte majeure pour la production de coton, particulièrement dans le sud des États-Unis. Le nématode reniforme est le deuxième ravageur le plus important parmi plus de 400 espèces de nématodes. Ces nématodes représentent une menace pour la sécurité alimentaire mondiale. Les préoccupations croissantes liées à l’environnement et à la santé humaine, ainsi que le coût des nématicides, ont accru l’intérêt pour les germoplasmes de coton résistants. La paroi cellulaire végétale, en particulier la lignine, est un biopolymère essentiel impliqué dans la résistance au stress biotique. Étant donné que les nématodes infectent les tissus racinaires, des composants de la paroi cellulaire tels que la lignine pourraient contribuer à la défense ; toutefois, les barrières médiées par la lignine dans les racines de coton ne sont pas bien caractérisées. Cette étude a utilisé un protocole histochimique normalisé de coloration au phloroglucinol-HCl afin de visualiser les différences de dépôt de lignine chez des génotypes de coton résistants (A2-514, A2-995) et sensibles (Gossypium arboreum) au stade des vraies feuilles, en l’absence d’infection. Ce colorant se lie spécifiquement aux hydroxycinnamaldéhydes tels que l’aldéhyde coniferylique et l’aldéhyde sinapylique de la lignine en présence d’acide, produisant une couleur violacée rosée permettant de visualiser la lignine. Des profils de coloration distincts de la lignine ont été observés entre les génotypes résistants et sensibles, soutenant un rôle potentiel des défenses structurelles associées à la lignine.
Introduction
Le coton est cultivé dans le monde entier pour sa fibre et est très vulnérable aux ravageurs du sol, en particulier aux nématodes, qui peuvent provoquer des pertes de rendement importantes. Parmi ceux-ci, le nématode reniforme (Rotylenchulus reniformis) est un pathogène majeur affectant le coton et d'autres cultures à l'échelle mondiale, avec des impacts particulièrement marqués dans le sud des États-Unis, où les infestations peuvent réduire les rendements de plus de 50 %.1Cet organisme microscopique vivant dans le sol parasite les racines de cotonnier.2, altérant la vigueur, la biomasse et le rendement en fibres des plantes par perturbation de l'absorption de l'eau et des nutriments ainsi que par la formation de sites d'alimentation (Figure 1). L'infection par le nématode reniforme modifie la croissance de la plante de coton en retardant la floraison, en réduisant la taille et le nombre de capsules et en altérant la qualité de la fibre3. De lourdes pertes ont été signalées au Mississippi, en Alabama et en Louisiane4Les nématicides sont couramment utilisés pour lutter contre les infestations de nématodes, mais leur coût élevé et leurs effets néfastes sur l'environnement et la santé humaine rendent nécessaire la recherche d'alternatives.5,6Le développement d'un matériel génétique résistant représente une approche prometteuse pour atténuer les dégâts causés par le nématode reniforme4Étant donné que les nématodes s'alimentent au sein des tissus racinaires, on émet l'hypothèse que les défenses basées sur la paroi cellulaire, en particulier la lignification, limitent l'envahissement, inhibent les enzymes dégradant la paroi cellulaire produites par l'agent pathogène et entravent l'installation et l'expansion des sites d'alimentation des nématodes.7,8,9. Une lignification accrue a été corrélée à une susceptibilité réduite aux agents pathogènes chez différentes espèces végétales10,11,12,13,14Des recherches antérieures chez le coton ont établi un lien entre l'expression des gènes de la lignine et de la laccase et la résistance au Verticillium dahliae.15 et des études menées sur des cultivars résistants et sensibles au Fusarium ont révélé des taux de lignine plus élevés dans les cultivars résistants16. Des observations similaires chez Arabidopsis et le riz, où la suppression de gènes biosynthétiques de la lignine augmente la susceptibilité, soulignent l'importance de la lignification dans la défense des plantes.
La lignine est un biopolymère phénolique complexe présent dans les parois cellulaires secondaires des plantes vasculaires, où elle confère rigidité structurale, résistance mécanique et hydrophobicité17. Synthétisée via les voies du shikimate et du phénylpropanoïde, la lignine est le deuxième biopolymère terrestre le plus abondant après la cellulose, représentant environ 30 % du carbone organique terrestre18,19. En renforçant le réseau cellulose-hémicellulose, la lignine consolide les tissus porteurs et soutient le développement global de la plante. La lignine est particulièrement abondante dans des tissus hautement spécialisés tels que le xylème, le sclérenchyme, les fibres du phloème et le périderme, formant une barrière hydrofuge essentielle au transport efficace de l'eau et des minéraux. Outre ses fonctions structurales, la lignine agit comme une barrière de défense biochimique et physique, limitant l'entrée des pathogènes et réduisant les dommages causés par les stress biotiques et abiotiques20,21,22. La lignification est un processus dynamique central dans la résistance à un large spectre de pathogènes, incluant les nécrotrophes, les biotrophes et les hémibiotrophes. Sa biosynthèse à partir des monolignols primaires — l'alcool sinapyl, l'alcool coniferyl et l'alcool p-coumaryl — varie selon les espèces, les types de tissus et les stades de développement, influençant ainsi le degré de résistance. L'invasion par un pathogène ou un stress abiotique déclenche souvent un dépôt localisé de lignine, renforçant davantage les défenses de la plante23,24.
Élucider le rôle de la lignine dans la résistance au nématode reniforme est essentiel pour faire progresser les stratégies de gestion du coton. La caractérisation visuelle et biochimique de la distribution de la lignine permet de comprendre la dynamique spatiale et temporelle des modifications de la paroi cellulaire qui sous-tendent les réponses de défense précoces. Cette étude utilise une coloration histochimique au phloroglucinol pour analyser les profils de dépôt de la lignine présents naturellement chez des génotypes de coton résistants et sensibles au nématode reniforme, offrant ainsi un cadre préliminaire pratique pour évaluer les caractères de résistance associés à la paroi cellulaire et orienter les programmes de sélection visant à améliorer la résilience des cultures.
Protocole
Les expériences ont été réalisées dans une serre en utilisant les matériaux végétaux décrits ci-dessous. Tous les produits chimiques, équipements et réactifs utilisés dans cette étude sont détaillés dans le Tableau des matériaux.
Matériel végétal
Des graines ont été obtenues à partir de germoplasmes sensibles (A2‑20, PI 129742 ; A2‑40, PI 183202) et résistants (A2‑514, PI 616008 ; A2‑995, PI 629323). En outre, le cultivar sensible Deltapine 16 a été inclus dans cette étude. Les graines ont été placées dans de l'eau stérile et mises à tremper pendant 24 h à température ambiante. Après l'imbibition, les graines ont été soigneusement rincées à l'eau stérile fraîche afin d'éliminer les contaminants résiduels. Les graines rincées ont ensuite été transférées sur des boîtes de Pétri stériles tapissées de papier essuie-tout préalablement humidifié et stérilisé à l'autoclave, puis incubées pendant 2 jours à température ambiante pour favoriser la germination (Figure 2).
Plantation en serre
Des pots en plastique ont été remplis avec un mélange de terreau préhumidifié à contrôle d'humidité. Le sol a été préhumidifié pendant deux jours avant la transplantation. Les semis germinés ont ensuite été transplantés avec précaution dans le sol préhumidifié et maintenus en serre dans des conditions contrôlées à 28 °C/25 °C jour/nuit jusqu'au stade des vraies feuilles (Figure 2). Trois réplicats biologiques ont été plantés pour chaque génotype.
Collecte des échantillons
Les plantes au stade des vraies feuilles ont été délicatement extraites du sol en desserrant le milieu de culture environnant afin de minimiser les dommages racinaires. Les racines ont été rincées 2 à 3 fois à l’eau pour éliminer les particules de sol adhérentes. Les tissus racinaires et aériens de chaque génotype ont été collectés pour être sectionnés (Figure 3).
Préparation de la solution de coloration au phloroglucinol
Une solution de phloroglucinol à 3 % a été préparée en dissolvant 0,45 g de phloroglucinol dans un mélange de deux parties d'éthanol à 100 % (10 mL) et d'une partie d'HCl concentré (5 mL) dans une hotte. La solution de coloration a été préparée selon une méthode décrite précédemment16.
Préparation des sections et procédure de coloration pour l'analyse histochimique de la lignine
Des sections transversales minces de tissus racinaires et cauliculaires ont été réalisées à l'aide d'un scalpel stérile (Figure 3). Les sections fraîches ont été transférées sur des lames de microscope et recouvertes de 20 µL de solution de coloration au phloroglucinol à 3 % pendant 1 min. Les sections ont ensuite été rincées à l'eau stérile, montées sous lamelle et observées (Figure 4, Figure 5, Figure 6). La même procédure a été utilisée pour les tissus de tige (Supplementary Figure 1).
Imagerie par microscopie
L'imagerie a été réalisée à l'aide d'un microscope numérique. Des lames en verre préparées contenant des échantillons de tissus colorés ont été placées sur la platine du microscope pour l'acquisition d'images. Après l'initialisation du logiciel d'imagerie du microscope, les grossissements souhaités de 100x, 200x et 300x ont été sélectionnés en mode champ clair. Des réglages de mise au point grossière et fine ont été effectués afin de visualiser clairement les motifs de coloration de la lignine dans les sections de tissus. Les images ont été enregistrées et sauvegardées avec leurs numéros d'identification d'échantillon respectifs. Une analyse comparative a ensuite été réalisée en examinant les images provenant des génotypes résistants et sensibles afin d'évaluer les différences de coloration de la lignine. Les images des génotypes résistants et sensibles ont été comparées à l'aide d'ImageJ pour déterminer les différences en pourcentage de surface colorée, en utilisant des seuils uniformes. Les résultats ont été exportés sous forme de fichiers CSV après le traitement des trois réplicats. Des graphiques ont ensuite été élaborés pour comparer les génotypes résistants et sensibles.
Résultats
Analyse histochimique de génotypes de coton résistants et sensibles
L'examen histochimique de sections transversales de racines et de tiges au stade des vraies feuilles a révélé des différences visuelles entre les génotypes résistants et sensibles, comme illustré dans Figure 4, Figure 5 et Supplementary Figure 1 (sections transversales de tige). Des grossissements plus élevés (100x–300x) ont permis d'observer en détail ces différences (Figure 4A–C et Figure 5A–C pour les génotypes résistants et Figure 4D–F et Figure 5D–F pour les génotypes sensibles). Les profils de coloration de la lignine variaient selon les types de tissus : les génotypes résistants présentaient des profils de coloration de la lignine inférieurs ou similaires dans les tiges, tandis que les génotypes sensibles montraient visuellement une lignification tissulaire relativement plus importante (Supplementary Figure 1A–D).
Analyse quantitative des images de coloration de la lignine
Deltapine 16, un cultivar sensible inclus dans cette étude, a présenté une coloration en lignine plus faible (Figure 6A–C) avec des valeurs de pourcentage de surface colorée de 12, 17,8 et 16,3 (Figure 6D). Le génotype sensible A2-40 a présenté des valeurs de pourcentage de surface colorée de 25,2, 19,9 et 28,75, tandis que le génotype résistant, A2-995, a montré des valeurs de pourcentage de surface colorée de 54,95, 58,71 et 69,85 (Figure 7). Cependant, A2-20 a présenté des valeurs de pourcentage de surface colorée de 16,6, 21,3 et 20,4, alors que A2-514 a montré des valeurs de pourcentage de surface colorée de 49,8, 34,1 et 43,38 (Figure 8). La comparaison a donné une valeur p de 0,06. Étant donné que ces valeurs ont été obtenues à l’aide de seuils différents, une analyse ImageJ à seuil uniforme a été réalisée en utilisant des seuils identiques de teinte, saturation et luminosité afin d’assurer la reproductibilité entre les réplicats. Le génotype résistant (A2-514) a montré une coloration relativement plus importante que le génotype sensible (A2-20). Le pourcentage de surface colorée a été calculé comme le rapport entre les pixels positifs pour la lignine et le nombre total de pixels du tissu dans la section. La comparaison quantitative à seuil uniforme entre le génotype sensible A2-20 et le génotype résistant A2-514 est présentée dans la Figure 9. Dans l’ensemble, l’analyse à seuil uniforme démontre qu’il existe des différences spécifiques au génotype en matière de lignification parmi ces génotypes.
DISPONIBILITÉ DES DONNÉES :
Les données brutes sont ajoutées en tant que fichier supplémentaire.
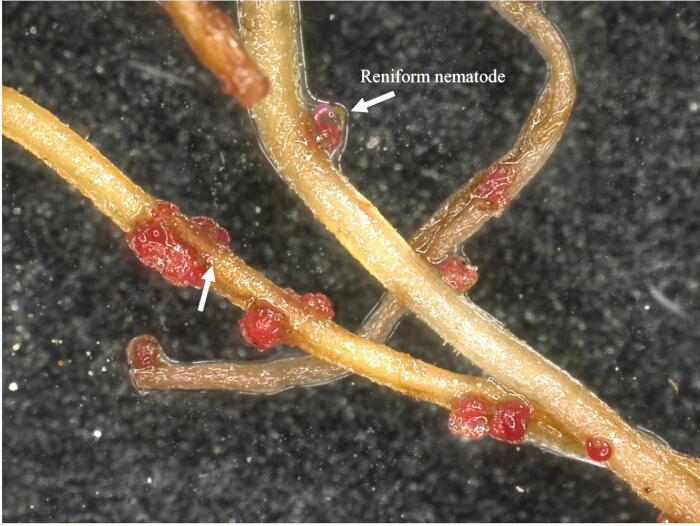
Figure 1 : Vue microscopique de nématodes reniformes se nourrissant sur des racines de coton. Des nématodes reniformes se nourrissant sur des racines de coton sont visibles à un grossissement de 50x après coloration avec un colorant alimentaire rouge. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
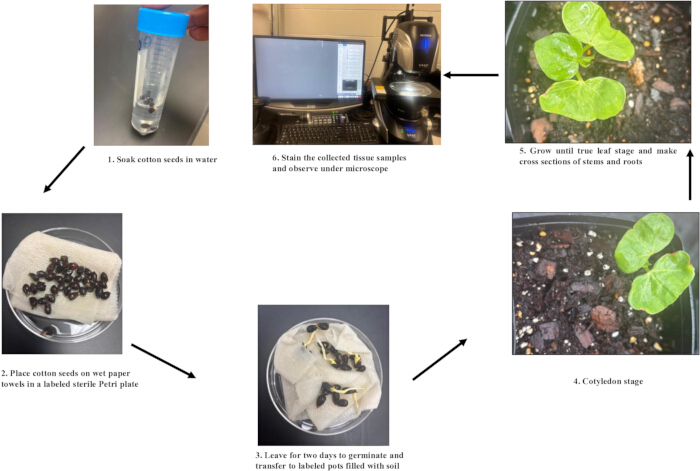
Figure 2 : Préparation du matériel végétal pour l'analyse histochimique de la lignine. Le protocole comprend les étapes suivantes : (1) faire tremper les graines de coton dans l'eau ; (2) placer les graines sur des serviettes en papier humides dans une boîte de Pétri stérile étiquetée ; (3) laisser germer les graines pendant 2 jours, puis transférer les plantules dans des pots étiquetés contenant du sol ; (4) faire pousser les plantules jusqu'au stade cotylédonaire ; (5) poursuivre la croissance des plantes jusqu'au stade feuilles vraies et préparer des sections transversales des tiges et des racines ; et (6) colorer les sections de tissus prélevées et les observer au microscope. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
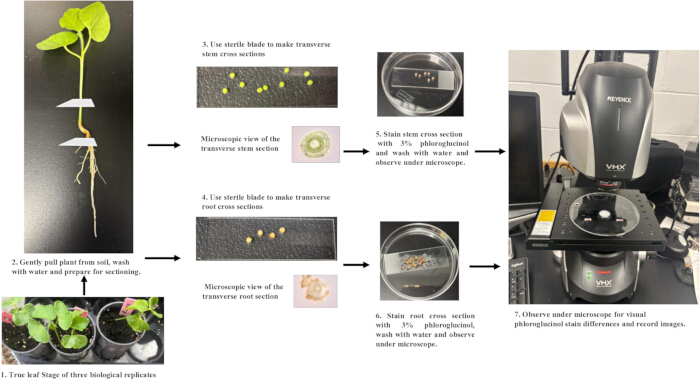
Figure 3 : Prélèvement et coloration de sections de racines et de tiges de coton à l'acide phloroglucinolique-HCl. Le protocole comprend les étapes suivantes : (1) cultiver trois réplicats biologiques jusqu'au stade de feuilles vraies ; (2) extraire délicatement les plantes du sol, les rincer à l'eau et les préparer pour la sectionnement ; (3) utiliser une lame stérile pour préparer des sections transversales de tige ; (4) utiliser une lame stérile pour préparer des sections transversales de racine ; (5) colorer les sections de tige avec de l'acide phloroglucinolique-HCl à 3 %, rincer à l'eau, puis observer au microscope ; (6) colorer les sections de racine avec de l'acide phloroglucinolique-HCl à 3 %, rincer à l'eau, puis observer au microscope ; et (7) observer les sections colorées au microscope afin de visualiser les différences de coloration au phloroglucinol et d'acquérir des images. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
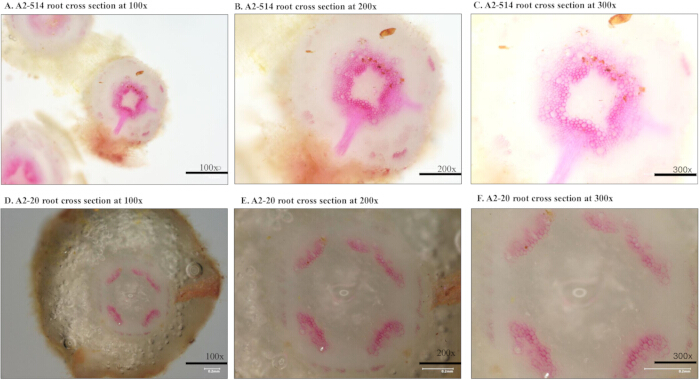
Figure 4 : Coloration de la lignine dans des sections transversales de racines des génotypes de coton A2-514 et A2-20. Sections transversales de racines colorées pour la lignine du génotype résistant A2-514 à un grossissement de (A) 100x, (B) 200x et (C) 300x. Sections transversales de racines colorées pour la lignine du génotype sensible A2–20 à un grossissement de (D) 100x, (E) 200x et (F) 300x. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
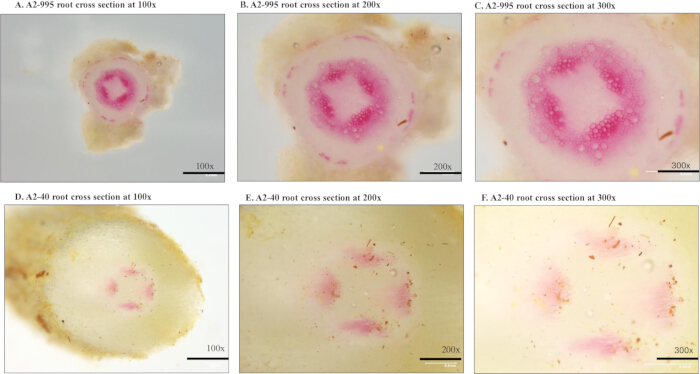
Figure 5 : Coloration de la lignine dans des sections transversales de racines des génotypes de coton A2-995 et A2-40. Sections transversales de racines colorées pour la lignine du génotype résistant A2-995 à un grossissement de (A) 100x, (B) 200x et (C) 300x. Sections transversales de racines colorées pour la lignine du génotype sensible A2-40 à un grossissement de (D) 100x, (E) 200x et (F) 300x. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
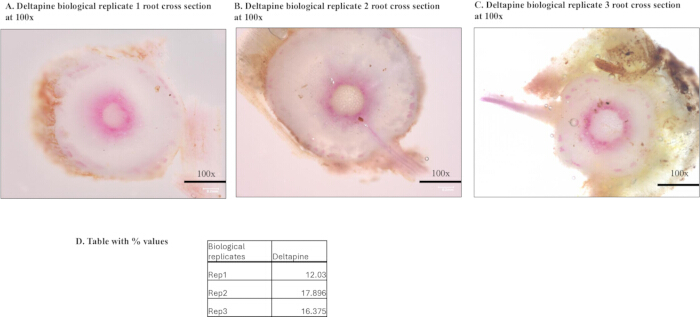
Figure 6 : Coloration de la lignine et analyse quantitative de sections transversales de racines de Deltapine 16. Sections transversales de racines colorées pour la lignine, provenant de trois réplicats biologiques du cultivar sensible Deltapine 16, observées à un grossissement de 100x : (A) réplicat biologique 1, (B) réplicat biologique 2 et (C) réplicat biologique 3. (D) Pourcentage de surface colorée pour les trois réplicats biologiques, déterminé par analyse quantitative à l’aide d’ImageJ. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
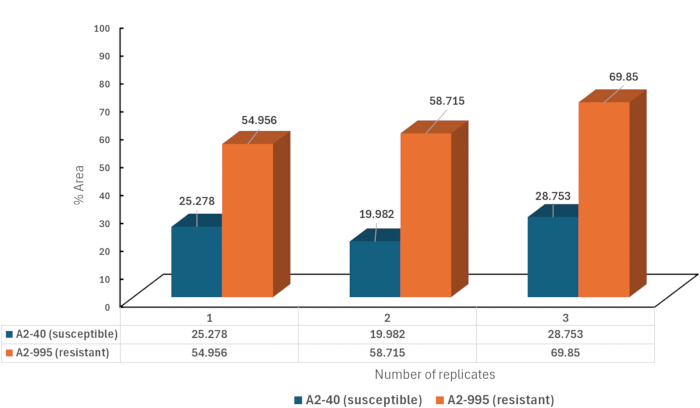
Figure 7 : Analyse quantitative de la coloration de la lignine chez les génotypes de coton A2-40 et A2-995. Pourcentage de surface colorée déterminé par analyse avec ImageJ pour trois réplicats biologiques du génotype sensible A2-40 et du génotype résistant A2-995. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
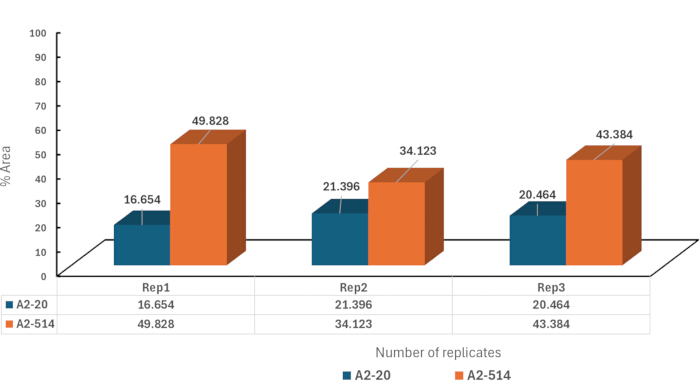
Figure 8 : Analyse quantitative de la coloration de la lignine chez les génotypes de coton A2-20 et A2-514. Pourcentage de surface colorée déterminé par analyse avec ImageJ pour trois réplicats biologiques du génotype sensible A2-20 et du génotype résistant A2-514. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
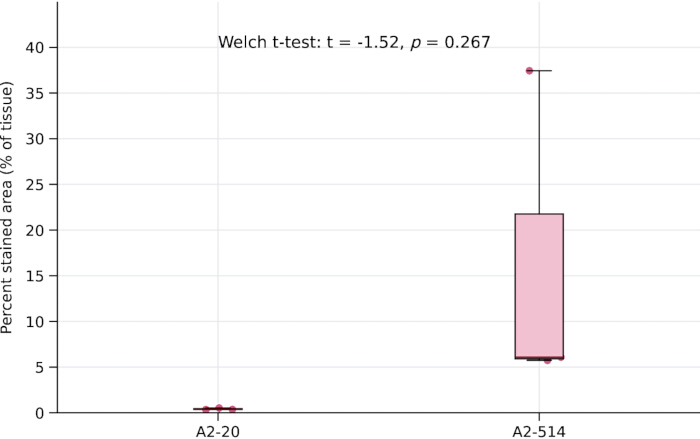
Figure 9 : Quantification à seuil uniforme de la coloration de la lignine chez les génotypes de coton A2-20 et A2-514. Pourcentage de surface colorée chez le génotype sensible A2-20 et le génotype résistant A2-514 après analyse d'image à seuil uniforme. La comparaison statistique a été réalisée à l'aide du test t de Welch (t = −1,52, p = 0,267). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
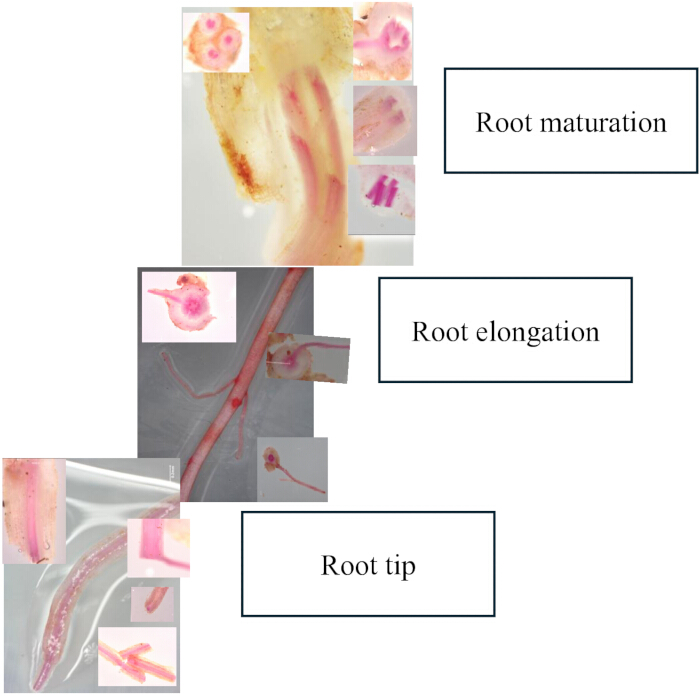
Figure 10 : Visualisation de la coloration de la lignine dans différentes régions racinaires. Images représentatives montrant la coloration de la lignine dans les zones de maturation racinaire, d'élongation racinaire et de l'extrémité racinaire. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Figure supplémentaire 1 : Coloration de la lignine dans des sections transversales de tiges de génotypes de coton résistants et sensibles. Sections transversales de tiges colorées pour la lignine observées à un grossissement de 100x pour (A) le génotype sensible A2-20, (B) le génotype résistant A2-514, (C) le génotype sensible A2-40, et (D) le génotype résistant A2-995. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
La lignine associée aux parois cellulaires des plantes constitue une barrière physique importante contre les ravageurs, notamment les nématodes. Dans la présente étude, des génotypes de coton résistants et sensibles ont montré des différences visuelles distinctes au niveau de la coloration de la lignine, suivant un motif similaire à celui décrit précédemment chez des cultivars résistants et sensibles au Fusarium. La coloration a permis une visualisation claire de la répartition de la lignine dans différentes régions racinaires — zone de maturation, zone d'élongation et apex racinaire — où l'intensité de la lignine augmentait progressivement depuis la partie supérieure de la racine jusqu'à l'apex (Figure 10). Bien que ces motifs offrent des informations anatomiques utiles, la dynamique de la lignine en réponse à l'infection par les nématodes n'a pas été évaluée dans cette étude et devra être confirmée par des recherches futures. Des études antérieures suggèrent que la présence d'un agent pathogène peut induire la biosynthèse de la lignine, renforçant ainsi la nécessité d'examiner les modifications de la lignine sous pression nématodienne. L'incorporation d'analyses biochimiques quantifiant la teneur et la composition en lignine permettrait d'approfondir l'interprétation des profils de coloration observés chez ces génotypes. Dans l'ensemble, ces résultats soulignent le rôle des défenses structurelles médiées par la lignine dans la résistance du coton au nématode reniforme et démontrent l'utilité de la coloration au phloroglucinol pour caractériser ces traits. La combinaison continue d'approches anatomiques, biochimiques et moléculaires permettra d'approfondir la compréhension de la biosynthèse de la lignine et de sa contribution au développement d'une résistance durable contre les nématodes reniformes.
Déclarations de divulgation
Les auteurs n'ont rien à divulguer.
AVERTISSEMENTS
Le USDA est un fournisseur, employeur et prêteur qui garantit l'égalité des chances. La mention de noms commerciaux ou de produits dans cette publication a uniquement pour but de fournir des informations précises et n'implique aucune recommandation ni aucun aval de la part du Département américain de l'agriculture. Les résultats et conclusions présentés dans cet article sont ceux de l'auteur (ou des auteurs) et ne doivent pas être interprétés comme représentant une quelconque décision ou politique officielle du USDA ou du gouvernement des États-Unis.
Remerciements
Les auteurs remercient le Dr Katherine Parys d'avoir permis l'accès aux installations de laboratoire de microscopie utilisées dans cette étude. Les auteurs remercient également le Dr Junping Chen et le Dr Abdulraheem pour leurs suggestions et leur aide à l'amélioration du manuscrit. Cette recherche a été soutenue par le projet USDA-ARS 6066-21000-053-00D.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Mélange de rempotage à contrôle d'humidité | Miracle-Gro | 073561005197 032247557832 | Site web Amazon |
| Microscope | Keyence VHX | VHX3000 | Un microscope à champ clair comparable peut être utilisé |
| Lames de rasoir stériles | Workpro | W018057 | Site web Amazon |
| Planche à découper | Freshware | 15.75"L x 9.8"W x 0.3"Th | Site web Amazon |
| Lames et lamelles | Amscope | BS-50P-100S-22X4 | Toute marque peut être utilisée. Celui-ci est disponible sur Amazon. |
| Eau stérile / Eau distillée / Eau autoclavée | Gibco | 15230147 | Toute marque d'eau stérile autoclavée peut être utilisée |
| Colorant au phloroglucinol | Fischer Scientific | AC241761000 | Disponible chez Fischer Scientific |
| HCl concentré | Fischer Scientific | CAS: 7647-01-0 | Disponible chez Fischer Scientific |
| Éthanol absolu | Fischer Scientific | 64-17-5 | Disponible chez Fischer Scientific |
| Pots | BTPLASTIK | B0DSBQMXHN | Tous pots en plastique peuvent être utilisés, disponibles sur Amazon |
| Plaques de Pétri | Kingdder | B0BS95MCGS | Disponibles sur Amazon et toute autre marque peut être utilisée |
| Serviettes en papier | Tork | MB540A | Disponibles sur Amazon et toute autre marque peut être utilisée |
| Image J | Logiciel | Disponible en ligne | Logiciel gratuit à utiliser |
Références
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.