L'expression plasmatique de LINC00707 est augmentée dans les lésions de la moelle épinière et favorise l'inflammation et le stress oxydatif médiés par les microglies via l'axe de signalisation miR-145-5p/TRAF6. L'inhibition de LINC00707 atténue ces réponses pathologiques, soulignant son potentiel comme cible thérapeutique.
Article de recherche
L'extinction de LINC00707 atténue l'inflammation et le stress oxydatif dans les microglies BV2 stimulées par le LPS via l'axe miR-145-5p/TRAF6 dans la lésion médullaire
109 vues
⸱
11 septembre 2026
* These authors contributed equally
Dans cet article
Résumé
Résumé
La lésion de la moelle épinière (LME) provoque un handicap à vie, réduit considérablement le bien-être et impose un fardeau socio-économique important. Cette étude a examiné le rôle de LINC00707 dans la LME par la régulation de l'axe de signalisation miR-145-5p/TRAF6. Des échantillons de plasma provenant de 30 sujets sains et de 75 patients atteints de LME ont été analysés pour l'expression de LINC00707, de miR-145-5p et de TRAF6 à l'aide de la RT-qPCR. Les associations entre les niveaux plasmatiques de LINC00707 et les facteurs pro-inflammatoires ont été évaluées chez les patients atteints de LME. Des cellules microgliales BV2 ont été exposées à 100 ng/mL de LPS, et les facteurs liés à l'inflammation et au stress oxydatif ont été mesurés. Les interactions moléculaires ont été évaluées à l'aide d'un test rapporteur double luciférase. Une analyse de régression logistique a été utilisée pour identifier les facteurs associés à l'expression de LINC00707. Les niveaux plasmatiques de LINC00707 et de TRAF6 étaient augmentés chez les patients atteints de LME, tandis que les niveaux de miR-145-5p étaient réduits. Les niveaux plasmatiques de LINC00707 étaient positivement corrélés aux niveaux plasmatiques des facteurs inflammatoires. LINC00707 agissait comme une éponge moléculaire pour miR-145-5p, et TRAF6 était un gène cible de miR-145-5p. L'inhibition de LINC00707 a diminué les facteurs inflammatoires, les substances pro-stress oxydatif et les niveaux d'ARNm de TRAF6 dans les cellules BV2. L'inhibition de miR-145-5p a produit des effets opposés. Ces résultats suggèrent qu'une expression élevée de LINC00707 est associée à la gravité de la LME et qu'une diminution de l'expression de LINC00707 pourrait atténuer l'inflammation et le stress oxydatif médiés par les microglies en régulant l'axe de signalisation miR-145-5p/TRAF6.
Introduction
La lésion médullaire (SCI) est une affection traumatique qui endommage la moelle épinière, une composante essentielle du système nerveux central. La SCI perturbe directement les voies de conduction neuronale entre la moelle épinière et le cerveau, entraînant des troubles majeurs des fonctions motrices, sensorielles et autonomiques1,2. Des études épidémiologiques ont rapporté une incidence annuelle d’environ 5 cas pour 100 000 individus, la mortalité liée à la maladie atteignant jusqu’à 16,7 %3,4. Une enquête canadienne a estimé le coût de réadaptation à vie pour chaque patient atteint de SCI à hauteur de 336 000 dollars américains5. L’incidence élevée, la mortalité importante et les coûts substantiels associés au diagnostic, au traitement et à la réadaptation font de la SCI un défi clinique majeur nécessitant des stratégies thérapeutiques améliorées.
La progression pathologique de la lésion médullaire (SCI) comprend deux stades : une lésion primaire et une lésion secondaire. La lésion primaire résulte d'une compression mécanique traumatique ou d'une rupture du tissu médullaire, tandis que la lésion secondaire est induite par des processus pathologiques, notamment l'inflammation et le stress oxydatif6,7. Dans des conditions physiologiques, la neuroinflammation médiée par les microglies contribue à l'homéostasie du système nerveux central8,9,10. Toutefois, après une lésion médullaire, les microglies s'activent de manière excessive et libèrent de grandes quantités de médiateurs pro-inflammatoires11,12. Ces médiateurs provoquent une production excessive d'espèces réactives de l'oxygène (ROS), entraînant des lésions neuronales, la mort cellulaire et l'aggravation de la lésion médullaire secondaire13,14. Par conséquent, la suppression de l'activation excessive des microglies et l'interruption de la cascade inflammatoire représentent des stratégies thérapeutiques prometteuses pour favoriser la récupération neurologique et améliorer les résultats après une lésion médullaire.
Les ARN non codants longs (lncARN) constituent une classe d'ARN non codants de plus de 200 nucléotides qui ne possèdent pas de potentiel de codage protéique15. Initialement considérés comme un « bruit » transcriptionnel, les lncARN sont désormais reconnus comme des régulateurs importants de divers processus physiologiques et pathologiques16. Des études récentes ont démontré que les lncARN jouent des rôles essentiels dans les lésions neuronales. L'ARN non codant intergénique long 707 (LINC00707) s'est imposé comme un régulateur important des troubles du système nerveux. Des études antérieures ont rapporté que LINC00707 aggrave les lésions cérébrales traumatiques en amplifiant l'inflammation médiée par les microglies17. De plus, Zhu et al. ont démontré que la suppression de LINC00707 atténuait de manière significative l'inflammation et l'apoptose induites par le lipopolysaccharide (LPS) dans les cellules PC1218. Ces résultats fournissent une base théorique préliminaire pour explorer le rôle de LINC00707 dans la lésion médullaire (SCI). Cependant, il reste à déterminer si LINC00707 régule l'inflammation médiée par les microglies durant la lésion médullaire (SCI).
Les ARNl agissent comme des éponges moléculaires par le biais du mécanisme d'ARN endogène compétitif (ceARN), piégeant les microARN (miARN) et régulant l'expression des gènes cibles en aval19. Ce mode de régulation est largement impliqué dans la pathogenèse de diverses maladies. Notamment, le miR-145-5p est significativement sous-régulé dans les tissus de lésion médullaire (SCI)20 et lors de lésions induites par le LPS21, et sa surexpression atténue efficacement les réponses inflammatoires et au stress oxydatif des microglies22. Le facteur associé au récepteur du facteur de nécrose tumorale 6 (TRAF6) joue également un rôle essentiel dans la pathologie de la lésion médullaire23,24,25. Cependant, il reste à déterminer si LINC00707, miR-145-5p et TRAF6 exercent des fonctions régulatrices coordonnées dans la lésion médullaire.
Dans la présente étude, l'expression de LINC00707 était significativement augmentée dans les cellules microgliales stimulées par le LPS. Par conséquent, nous avons émis l'hypothèse que LINC00707 pourrait agir comme un régulateur pro-inflammatoire dans la microglie et que sa diminution pourrait atténuer la réponse neuroinflammatoire, améliorant ainsi la progression pathologique de la lésion médullaire (SCI). Cette étude a examiné si LINC00707 régule les réponses inflammatoires microgliales et contribue à la pathogenèse de la SCI.
Protocole
Cette étude a été approuvée par le comité d'éthique de l'hôpital Zhangjiakou First (numéro d'approbation : 2024-KY-18). Tous les participants ont été informés des objectifs de l'étude et des risques éventuels, et ont donné leur consentement éclairé par écrit avant leur inclusion. Des échantillons de sang veineux ont été prélevés chez des sujets témoins sains lors d'examens médicaux de routine et chez des patients présentant une lésion médullaire (SCI) immédiatement après leur admission à l'hôpital. Les analyses en laboratoire ont été réalisées par le laboratoire clinique de l'hôpital. Les outils de recherche utilisés dans ce protocole sont énumérés dans la Table des matériels.
1. Sujets
Un total de 75 patients présentant une lésion médullaire ont été recrutés à l'hôpital Zhangjiakou First entre janvier 2023 et janvier 2025. Les critères d'inclusion étaient une lésion médullaire confirmée par tomodensitométrie (CT) ou imagerie par résonance magnétique (MRI), ainsi qu'un délai entre le traumatisme et l'admission à l'hôpital inférieur ou égal à 12 h. Les critères d'exclusion étaient un antécédent de traumatisme ou de chirurgie de la moelle épinière ou du cerveau au cours des 6 mois précédents, une maladie cardiovasculaire sévère incluant un infarctus du myocarde ou une arythmie, une grossesse ou une période de lactation, ainsi que la présence de tumeurs malignes, une atteinte hépatique ou rénale, une maladie cérébrovasculaire sévère ou des maladies infectieuses.
Selon les normes de classification neurologique de l'American Spinal Injury Association (ASIA)26, 75 patients présentant une lésion médullaire ont été classés en fonction de leur fonction neurologique normale (n = 21), lésion médullaire incomplète (n = 36) et lésion médullaire complète (n = 18). La répartition des sites de lésion était la suivante : cervical, 36,0 % ; thoracique, 30,7 % ; et lombaire, 33,3 %. Trente individus sains appariés à la population étudiée ont été recrutés aléatoirement pour constituer le groupe témoin. Des informations cliniques de base ont été recueillies pour tous les participants. Les critères d'inclusion pour les individus sains étaient l'absence d'antécédents de traumatisme médullaire ou cérébral, de chirurgie ou de troubles neurologiques ; l'absence d'antécédents de maladies inflammatoires chroniques, de troubles auto-immuns ou de malignités ; l'absence de maladie cardiovasculaire, hépatique ou rénale sévère ; l'absence d'infection aiguë ou chronique au cours des 4 semaines précédentes ; l'absence de grossesse ou d'allaitement ; et un appariement par âge et sexe avec le groupe présentant une lésion médullaire.
La mesure d'indépendance fonctionnelle (FIM) a été utilisée pour évaluer l'autonomie fonctionnelle dans les activités quotidiennes. Le score FIM maximal est de 126. Les scores de sensation tactile, d'acmésthésie et moteur ont été utilisés pour évaluer les fonctions sensorielle et motrice. Les scores maximaux de sensation tactile et d'acmésthésie étaient de 112, et le score moteur maximal était de 100. Des scores plus faibles indiquent un déficit neurologique plus sévère.
2. Culture cellulaire, construction du modèle et transfection
Les cellules microgliales murines immortalisées BV2 ont été obtenues auprès du Centre de ressources cellulaires de l'Institut de biotechnologie de Shanghai. Les cellules ont été cultivées dans un milieu de culture modifié d'Eagle (DMEM) à haute teneur en glucose, complété avec 10 % de sérum bovin fœtal (FBS), de pénicilline (100 U/mL) et de streptomycine (100 U/mL). Les cellules ont été maintenues à 37 °C dans un incubateur humidifié contenant 5 % de CO₂.
Pour la construction du modèle, les cellules BV2 ont été stimulées avec 0, 10, 20, 50, 100, 150 ou 200 ng/mL de lipopolysaccharide (LPS) pendant 24 h. La concentration optimale de LPS a été sélectionnée en fonction des résultats expérimentaux.
Pour la transfection, les cellules BV2 ont été ensemencées dans des plaques de 6 puits et transfectées une fois qu'elles ont atteint la confluence appropriée. Un réactif de transfection a été utilisé à raison de 1,5 µL par puits selon les instructions du fabricant. Après 6 h, le milieu de culture a été remplacé par du milieu frais, et les cellules ont été cultivées pendant 24 h supplémentaires. Le construct de silençage de LINC00707, le contrôle négatif correspondant, l'oligonucléotide miR-145-5p et l'oligonucléotide contrôle correspondant ont chacun été utilisés à une concentration de 50 nM par puits. Toutes les expériences de transfection ont été répétées indépendamment au moins 5 fois, avec 3 réplicats parallèles par expérience indépendante. Les données ont été analysées statistiquement à l'aide des résultats d'au moins 5 expériences indépendantes.
3. ELISA
Les surnageants de culture de cellules BV2 transfectées et stimulées par le LPS ont été recueillis par centrifugation à 12 000 × g pendant 10 min, et les concentrations d'interleukine-1β (IL-1β), d'IL-6 et de facteur de nécrose tumorale-α (TNF-α) ont été mesurées à l'aide des kits ELISA correspondants. Brièvement, le test a été réalisé en incubant successivement avec un anticorps biotinylé, un conjugué streptavidine-HRP et un substrat TMB, conformément aux instructions du fabricant. L'absorbance a été mesurée à 450 nm à l'aide d'un lecteur de microplaques. Les concentrations en cytokines ont été déterminées à partir de courbes standards. Chaque échantillon a été mesuré en triplets, et six expériences indépendantes ont été réalisées.
4. Mesure des ERO
Les niveaux intracellulaires d'espèces réactives de l'oxygène (ERO) dans les cellules BV2 stimulées par le LPS ont été mesurés à l'aide d'un kit de dosage des espèces réactives de l'oxygène. Brièvement, les cellules ont été incubées avec 10 µmol/L de DCFH-DA à 37 °C pendant 20 min. Après l'incubation, le surnageant a été éliminé et les cellules ont été lavées 3 fois avec une solution saline tamponnée au phosphate (PBS) afin d'éliminer l'excès de sonde extracellulaire. L'intensité de fluorescence a été mesurée à l'aide d'un lecteur de microplaque aux longueurs d'onde d'excitation et d'émission de 488 nm et 525 nm, respectivement. Les niveaux relatifs d'ERO ont été calculés à partir de l'intensité de fluorescence. Tous les échantillons ont été analysés en triplicata, et l'ensemble de l'expérience a été répété de manière indépendante au moins 5 fois.
5. Détection du malondialdéhyde, de la superoxyde dismutase et du glutathion
Les cellules BV2 traitées ont été recueillies et des homogénats cellulaires ont été préparés. Les échantillons ont été centrifugés à 12 000 × g pendant 10 min à 4 °C afin d'obtenir le surnageant. Des kits de détection commerciaux pour le malondialdéhyde (MDA), la superoxyde dismutase (SOD) et le glutathion (GSH) ont été utilisés conformément aux instructions du fabricant afin de déterminer leurs concentrations dans les surnageants cellulaires. Tous les échantillons ont été analysés en triple, et l'ensemble de l'expérience a été répété de manière indépendante au moins 5 fois.
6. Essai rapporteur double luciférase
Des fragments de la région non traduite 3' (3' UTR) de LINC00707 et de TRAF6 contenant les sites de liaison prévus pour miR-145-5p, ainsi que les séquences mutantes correspondantes, ont été clonés dans le vecteur rapporteur luciférase pmirGLO afin de générer des constructions rapporteuses de type sauvage (WT-LINC00707 et WT-TRAF6) et mutantes (MUT-LINC00707 et MUT-TRAF6). Les cellules BV2 ont été co-transfectées avec les constructions rapporteuses et des oligonucléotides miR-145-5p, puis cultivées pendant 24 h. Les cellules ont ensuite été récoltées, et les activités de la luciférase de luciole et de la luciférase Renilla ont été mesurées à l’aide d’un lecteur de microplaques.
7. RT-qPCR
L'ARN total a été extrait à l'aide d'un réactif d'extraction d'ARN. La qualité de l'ARN a été évaluée à partir du rapport OD₂₆₀/OD₂₈₀, les valeurs comprises entre 1,8 et 2,0 étant considérées comme acceptables. Environ 1 µg d'ARN total a été transcrit en ADN complémentaire (ADNc) à l'aide d'un kit de transcription inverse. L'expression génique a été quantifiée par RT-qPCR en utilisant un mélange maître PCR SYBR Green. La transcription inverse a été réalisée à 42 °C pendant 15 min, suivie d'une inactivation de la transcriptase inverse à 95 °C pendant 3 min. L'ADNc synthétisé a été stocké à −20 °C jusqu'à l'analyse. La PCR quantitative en temps réel a été effectuée avec une étape de pré-dénaturation à 95 °C pendant 1 min, suivie de 40 cycles de dénaturation à 95 °C pendant 5 s et d'hybridation et extension à 60 °C pendant 15 s. Les signaux de fluorescence ont été collectés à la fin de chaque étape d'hybridation et d'extension. Une analyse de la courbe de fusion a été réalisée à 95 °C pendant 15 s, suivie de 60 °C pendant 1 min. Les niveaux d'expression relatifs ont été calculés selon la méthode 2⁻ΔΔCt. GAPDH ou 5S a été utilisé comme référence interne pour la normalisation de l'expression génique. Les séquences des amorces étaient les suivantes : LINC00707, amorce sens 5'-CCAACAGGGTATCAGAATTCTC-3' et amorce antisens 5'-TGCTGACAATAGCCATTAGG-3' ; miR-145-5p, amorce sens 5'-GCCGAGGTCCAGTTTTCCCA-3' et amorce antisens 5'-CTCAACTGGTGTCGTGGA-3' ; TRAF6, amorce sens 5'-ATTACAACTGAGGTGCTTCT-3' et amorce antisens 5'-GCATCTGGTTCTGTTATAGGA-3' ; GAPDH, amorce sens 5'-ATCCCATCACCATCTTCCAGG-3' et amorce antisens 5'-CGCCCCACTTGATTTTGG-3' ; et 5S, amorce sens 5'-TCGTCTGATCTCGGAAGCTAA-3' et amorce antisens 5'-AAGCCTACAGCACCCGGTAT-3'.
8. Analyse statistique
Les analyses statistiques ont été réalisées à l'aide d'un logiciel statistique. La normalité de la distribution des données a été évaluée à l'aide du test de Shapiro-Wilk, un seuil de P > 0,05 indiquant une distribution normale. Les données normalement distribuées ont été exprimées sous la forme moyenne ± écart-type (ET), tandis que les données non normalement distribuées ont été présentées sous la forme médiane (P25, P75). Pour les variables continues à distribution normale, les comparaisons entre deux groupes ont été effectuées à l'aide du test t de Student, et les comparaisons entre plusieurs groupes ont été réalisées à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey. Pour les données non normalement distribuées, le test de Mann-Whitney U a été utilisé pour les comparaisons à deux groupes, et le test de Kruskal-Wallis a été utilisé pour les comparaisons entre plusieurs groupes. Le test du chi-deux a été employé pour analyser les variables catégorielles entre les groupes. Des analyses de régression logistique univariée et multivariée ont été utilisées afin d'évaluer les facteurs cliniques associés à l'expression de LINC00707. Les variables continues ont été dichotomisées selon la médiane de la cohorte (groupe à valeur élevée = 1 ; groupe à valeur basse = 0). Les variables présentant une valeur de P < 0,05 dans l'analyse de régression logistique univariée ont été intégrées dans l'analyse de régression logistique multivariée. Les résultats ont été exprimés sous forme de rapports de cotes (odds ratios, OR) avec des intervalles de confiance à 95 % (IC 95 %), un OR > 1 indiquant une association positive et un OR < 1 une association négative. Toutes les expériences sur les phénotypes cellulaires ont inclus au moins quatre réplicats biologiques indépendants, avec trois réplicats techniques par réplicat biologique. Une valeur de P < 0,05 a été considérée comme statistiquement significative.
Résultats
Les taux plasmatiques de LINC00707 étaient élevés chez les patients atteints de LS
Les caractéristiques cliniques de base de 30 sujets sains et de 75 patients atteints de LS ont été analysées. Par rapport aux sujets sains, les patients atteints de LS présentaient des scores nettement plus faibles en ce qui concerne la sensibilité tactile, l'acmésthésie, la motricité et la mesure d'indépendance fonctionnelle (FIM), indiquant une altération des fonctions sensorielle et motrice. De plus, les taux sériques de cytokines pro-inflammatoires étaient significativement plus élevés chez les patients atteints de LS que chez les témoins sains (Tableau 1, P < 0,001), suggérant une réponse inflammatoire accrue.
| Éléments | HS | SCI | P-valeur |
| (n=30) | (n=75) | ||
| Âge (années) | 45,83±10,06 | 46,17±9,92 | 0,786 |
| IMC (kg/m2) | 22,82±1,57 | 23,94±1,29 | 0,69 |
| Sexe (hommes, n) | 18 | 41 | 0,619 |
| Fumeurs (n) | 11 | 28 | 0,949 |
| Consommation d'alcool (n) | 14 | 33 | 0,804 |
| Classification ASIA de la lésion médullaire (n) | / | ||
| Lésion médullaire complète | / | 18 | |
| Lésion médullaire incomplète | / | 36 | |
| Fonction neurologique normale | / | 21 | |
| Niveau de la lésion médullaire (n, %) | / | ||
| Vertèbre cervicale | / | 27 (36,0 %) | |
| Vertèbre thoracique | / | 23 (30,7 %) | |
| Vertèbre lombaire | / | 25 (33,3 %) | |
| Score de sensibilité tactile | / | 53,42±22,12 | |
| Score d'acmésthésie | / | 53,39±24,68 | |
| Score d'exercice | / | 49,07±18,74 | |
| Score de mesure de l'indépendance fonctionnelle | / | 71,33±19,41 | |
| IL-1β (pg/mL) | 1,47±0,52 | 52,21±11,32 | <0,001 |
| IL-6 (pg/mL) | 2,14±0,97 | 88,47±23,52 | <0,001 |
| TNF-α (pg/mL) | 2,84±1,13 | 61,09±18,24 | <0,001 |
| CRP (mg/L) | 1,42±0,63 | 62,67±21,85 | <0,001 |
| Abbréviations : HS, sujet sain ; SCI, lésion de la moelle épinière ; IMC, indice de masse corporelle ; ASIA, Association américaine de traumatologie médullaire ; FIM, mesure de l'indépendance fonctionnelle ; IL, interleukine ; TNF, facteur de nécrose tumorale ; CRP, protéine C-réactive. | |||
Tableau 1 : Comparaison des caractéristiques cliniques de base entre les sujets sains et les patients atteints de lésion médullaire. Ce tableau compare les caractéristiques démographiques, les scores de fonction neurologique, les variables liées à la blessure et les taux des marqueurs inflammatoires entre les sujets sains et les patients présentant une lésion médullaire. Abréviations : HS, sujets sains ; SCI, lésion médullaire ; ASIA, American Spinal Injury Association ; FIM, Functional Independence Measure ; IL, interlukine ; TNF, facteur de nécrose tumorale ; CRP, protéine C-réactive.
L'expression plasmatique de LINC00707 a été quantifiée par RT-qPCR. Par rapport aux sujets sains, les patients atteints de LS ont présenté une expression plasmatique de LINC00707 significativement augmentée (Figure 1A, P < 0,001). Une analyse de la courbe ROC (caractéristique de fonctionnement du récepteur) a fourni des éléments préliminaires suggérant que l'expression de LINC00707 pourrait avoir une certaine valeur discriminatoire pour distinguer les patients atteints de LS des sujets sains (Figure 1B). De plus, l'expression plasmatique de LINC00707 augmentait avec la gravité clinique croissante de la LS (Figure 1C, P < 0,001). Une analyse de corrélation a montré que l'expression plasmatique de LINC00707 était positivement associée aux taux d'IL-1β (r = 0,635, P < 0,001), d'IL-6 (r = 0,612, P < 0,001), de TNF-α (r = 0,675, P < 0,001) et de protéine C-réactive (CRP ; r = 0,611, P < 0,001) (Figure 1D–G). Ces résultats suggèrent que l'augmentation de l'expression de LINC00707 est associée aux réponses inflammatoires chez les patients atteints de LS.
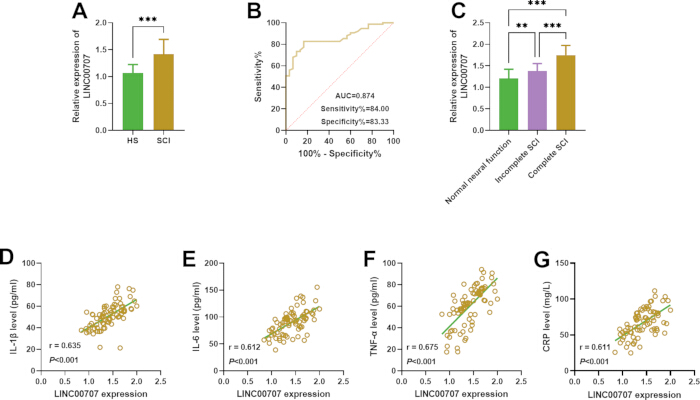
Figure 1 : Expression plasmatique de LINC00707 et ses corrélations avec les facteurs inflammatoires plasmatiques. (A) L'expression plasmatique de LINC00707 était plus élevée chez les patients présentant une lésion de la moelle épinière (SCI) que chez les sujets sains. Une analyse statistique a été réalisée à l'aide d'un test t pour échantillons indépendants. (B) L'analyse de la courbe caractéristique de fonctionnement du récepteur (ROC) a fourni une indication initiale selon laquelle l'expression de LINC00707 pourrait être utile pour distinguer les patients atteints de SCI des sujets sains. (C) L'expression plasmatique de LINC00707 augmentait avec la gravité croissante de la SCI selon la classification de l'Association américaine des lésions médullaires (ASIA). Une analyse statistique a été réalisée par une ANOVA à un facteur suivie du test post hoc de Tukey HSD. (D–G) L'expression plasmatique de LINC00707 était positivement corrélée aux niveaux des facteurs inflammatoires. Une analyse statistique a été effectuée à l'aide d'une analyse de corrélation de Pearson. *P < 0,01 et **P < 0,001. Sujets sains, n = 30 ; patients avec SCI, n = 75. Les données sont présentées sous forme de moyenne ± écart-type (SD). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Les facteurs associés à l'expression de LINC00707 ont été analysés à l'aide de régressions logistiques univariée et multivariée
Des analyses de régression logistique univariée et multivariée ont été réalisées afin d'identifier les facteurs associés à l'expression de LINC00707. L'analyse univariée a montré que la classification ASIA du traumatisme médullaire (OR = 3,912, IC à 95 % : 1,792–8,537, P < 0,001), le score FIM (OR = 0,281, IC à 95 % : 0,108–0,729, P = 0,009) et le taux de CRP (OR = 4,600, IC à 95 % : 1,724–12,271, P = 0,002) étaient associés à l'expression de LINC00707. Après ajustement pour les variables de confusion potentielles, la régression logistique multivariée a révélé que la classification ASIA du traumatisme médullaire (OR = 2,598, IC à 95 % : 1,088–6,203, P = 0,032), le score FIM (OR = 0,303, IC à 95 % : 0,102–0,902, P = 0,032) et le taux de CRP (OR = 3,202, IC à 95 % : 1,024–10,015, P = 0,045) constituaient des facteurs indépendants associés à l'expression de LINC00707 (Tableau 2). Une classification ASIA plus sévère et des taux élevés de CRP étaient associés à une expression plus élevée de LINC00707, tandis qu'un score FIM plus élevé était associé à une expression plus faible de LINC00707. Ces associations renforcent davantage l'hypothèse selon laquelle LINC00707 serait impliqué dans le processus pathologique du traumatisme médullaire.
| Éléments | Analyse de régression univariée | Analyse de régression multivariée | ||||
| OR | IC à 95 % | P-valeur | OR | IC à 95 % | P-valeur | |
| Âge | 1.176 | 0.475-2.914 | 0.725 | |||
| Sexe | 1.303 | 0.524-3.240 | 0.57 | |||
| Classification ASIA des LMC | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| Classification ASIA des LMC | 0.588 | 0.497-1.480 | 0.582 | |||
| Score de la sensibilité tactile | 0.85 | 0.343-2.105 | 0.725 | |||
| Score de l'acmésthésie | 0.854 | 0.345-2.119 | 0.734 | |||
| Score d'exercice | 0.392 | 0.153-1.006 | 0.051 | |||
| Score FIM | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Abbréviations : OR, rapport de cotes ; IC, intervalle de confiance ; ASIA, Association américaine des lésions médullaires ; FIM, mesure de l'indépendance fonctionnelle ; IL, interleukine ; TNF, facteur de nécrose tumorale ; CRP, protéine C-réactive. | ||||||
Tableau 2 : Analyse de régression logistique des facteurs associés à l'expression de LINC00707. Ce tableau présente les analyses de régression logistique univariée et multivariée utilisées pour identifier les facteurs cliniques associés à l'expression de LINC00707 chez les patients ayant subi une lésion de la moelle épinière. Les résultats sont exprimés sous forme de rapports de cotes avec des intervalles de confiance à 95 % et les valeurs P correspondantes. Abréviations : OR, rapport de cotes ; CI, intervalle de confiance ; ASIA, American Spinal Injury Association ; FIM, Functional Independence Measure ; IL, interleukine ; TNF, facteur de nécrose tumorale ; CRP, protéine C-réactive.
L'extinction de LINC00707 a atténué l'inflammation et le stress oxydatif dans les cellules BV2 stimulées par le LPS
Les cellules BV2 ont été traitées avec des concentrations croissantes de LPS (0, 10, 20, 50, 100, 150 ou 200 ng/mL). Une analyse par RT-qPCR a montré que l'expression de LINC00707 augmentait significativement après un traitement avec 100, 150 et 200 ng/mL de LPS (Figure 2A, P < 0,001, n = 6). Sur la base de ces résultats et de rapports antérieurs27˒28, une concentration de 100 ng/mL de LPS a été choisie pour établir le modèle in vitro de SCI. Par rapport au groupe témoin, l'expression de LINC00707 était significativement augmentée dans les cellules BV2 stimulées par le LPS. La transfection avec le si-LINC00707 a efficacement réprimé l'expression de LINC00707 (Figure 2B, P < 0,001, n = 6).
Les effets de l'extinction de LINC00707 sur l'inflammation et le stress oxydatif ont ensuite été évalués. La stimulation par le LPS a significativement augmenté la sécrétion d'IL-1β (Figure 2C, P < 0,001, n = 5), d'IL-6 (Figure 2D, P < 0,001, n = 5) et de TNF-α (Figure 2E, P < 0,001, n = 5), ainsi que les niveaux intracellulaires de ROS (Figure 2F, P < 0,001, n = 6) et la teneur en MDA (Figure 2G, P < 0,001, n = 5). En revanche, la stimulation par le LPS a significativement réduit les niveaux des marqueurs antioxydants SOD (Figure 2H, P < 0,001, n = 6) et GSH (Figure 2I, P < 0,001, n = 5). L'inhibition de LINC00707 a significativement réduit la sécrétion de cytokines pro-inflammatoires et les niveaux de marqueurs pro-oxydants, tout en restaurant les niveaux d'antioxydants dans les cellules BV2 stimulées au LPS. Ces résultats indiquent que l'extinction de LINC00707 atténue les réponses inflammatoires et le stress oxydatif induits par le LPS dans les cellules BV2.
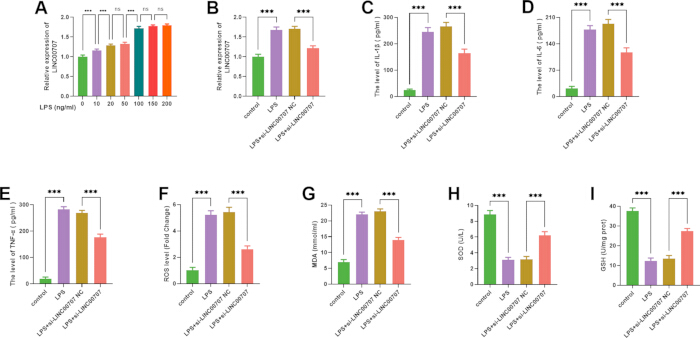
Figure 2 : Effets de l'extinction de LINC00707 sur l'inflammation et le stress oxydatif dans les cellules BV2 stimulées par le LPS. Les cellules BV2 ont été stimulées avec 100 ng/mL de lipopolysaccharide (LPS). (A) L'expression de LINC00707 a été mesurée par RT-qPCR dans les cellules BV2 traitées avec différentes concentrations de LPS. (B) L'expression de LINC00707 était augmentée dans le groupe LPS et réduite après transfection avec si-LINC00707. (C–E) Des dosages ELISA ont montré que la sécrétion de facteurs pro-inflammatoires était augmentée dans le groupe LPS et réduite après extinction de LINC00707. (F–G) Les niveaux d'espèces réactives de l'oxygène (ROS) et la teneur en malondialdéhyde (MDA) étaient augmentés dans le groupe LPS et réduits après extinction de LINC00707. (H–I) L'activité de la superoxyde dismutase (SOD) et les niveaux de glutathion réduit (GSH) étaient diminués dans le groupe LPS et augmentés après extinction de LINC00707. **P < 0,001 ; ns, non significatif. n ≥ 5. Les analyses statistiques ont été réalisées à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. Les données sont exprimées comme moyenne ± écart-type. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
LINC00707 agit comme une éponge moléculaire pour le miR-145-5p
Afin d'étudier le mécanisme moléculaire sous-jacent à la fonction biologique de LINC00707, la base de données ENCORI a été utilisée pour prédire les miARN cibles potentiels. Une analyse bioinformatique a révélé des séquences de liaison complémentaires entre LINC00707 et le miR-145-5p (Figure 3A). Des essais rapporteurs à double luciférase ont montré que l'activité luciférase du construit WT-LINC00707 était significativement réduite par le mimétique du miR-145-5p et augmentée par l'inhibiteur du miR-145-5p. En revanche, aucun des deux traitements n'a affecté l'activité luciférase du construit MUT-LINC00707 (Figure 3B, P < 0,001, n = 4), confirmant ainsi l'interaction directe entre LINC00707 et le miR-145-5p.
L'analyse par RT-qPCR a montré que l'expression de miR-145-5p dans le plasma était significativement diminuée chez les patients atteints de LS par rapport aux sujets sains (Figure 3C, P < 0,001). De plus, l'expression de LINC00707 était corrélée négativement avec celle de miR-145-5p (Figure 3D, P < 0,001), et les niveaux plasmatiques de miR-145-5p diminuaient progressivement avec l'augmentation de la gravité de la LS (Figure 3E, P < 0,001). In vitro, l'expression de miR-145-5p était significativement réduite dans les cellules BV2 stimulées par le LPS par rapport aux cellules témoins, tandis que l'extinction de l'expression de LINC00707 restaurait l'expression de miR-145-5p (Figure 3F, P < 0,001, n = 6). Ces résultats suggèrent que LINC00707 agit comme un ARN endogène compétitif (ceRNA) en piégeant miR-145-5p et régule ainsi son expression au cours de la progression pathologique de la LS.
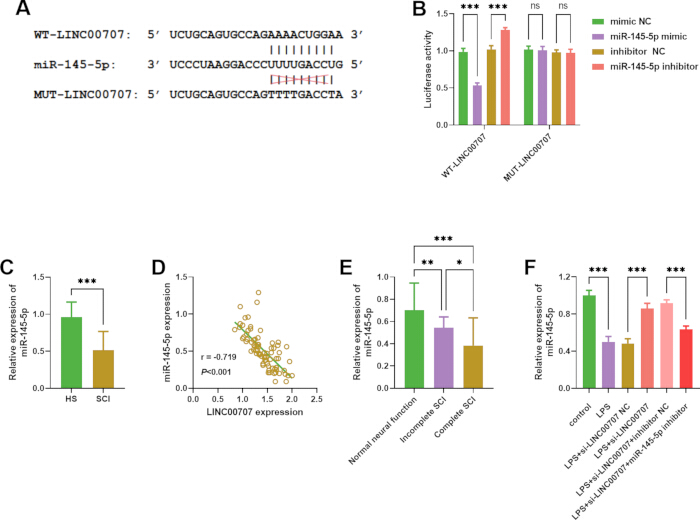
Figure 3. LINC00707 agit comme une éponge moléculaire pour le miR-145-5p. (A) La base de données ENCORI a prédit des séquences de liaison complémentaires entre LINC00707 et le miR-145-5p. (B) Un test rapporteur à double luciférase a confirmé l'interaction entre LINC00707 et le miR-145-5p. Une analyse statistique a été réalisée à l'aide d'une ANOVA à deux facteurs suivie du test post hoc de Tukey HSD. (C) La RT-qPCR a montré que l'expression plasmatique de miR-145-5p était diminuée chez les patients présentant une lésion médullaire. Une analyse statistique a été réalisée à l'aide d'un test t de Student pour échantillons indépendants. (D) L'expression de LINC00707 était négativement corrélée à l'expression de miR-145-5p chez les patients présentant une lésion médullaire. L'analyse statistique a été réalisée à l'aide d'une analyse de corrélation de Pearson. (E) L'expression de miR-145-5p dans le plasma a diminué avec l'augmentation de la gravité de la lésion médullaire selon la classification ASIA. Une analyse statistique a été réalisée à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. (F) L'expression de miR-145-5p était diminuée dans le groupe LPS, augmentée après transfection avec si-LINC00707, et réduite après transfection avec l'inhibiteur de miR-145-5p. L'analyse statistique a été réalisé à l'aide d'une ANOVA à un facteur suivie du test a posteriori de Tukey HSD. P < 0,05, *P < 0,01 et **P < 0,001 ; ns, non significatif. Sujets sains, n = 30 ; patients avec une lésion médullaire (SCI), n = 75 ; expériences sur cellules, n ≥ 4. Les données sont exprimées comme moyenne ± écart-type (SD). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
L'inhibition de miR-145-5p a exacerbé l'inflammation et le stress oxydatif dans les cellules BV2 stimulées par le LPS
Afin d'étudier le rôle de miR-145-5p, les cellules BV2 ont été transfectées avec un inhibiteur de miR-145-5p ou le contrôle négatif correspondant. Les niveaux de cytokines inflammatoires et de marqueurs du stress oxydatif ont ensuite été évalués. Par rapport au groupe contrôle négatif de l'inhibiteur, l'inhibition de miR-145-5p a significativement augmenté la sécrétion de l'IL-1β (Figure 4A, P < 0,001, n = 5), de l'IL-6 (Figure 4B, P < 0,001, n = 5) et du TNF-α (Figure 4C, P < 0,001, n = 5). De plus, les niveaux intracellulaires de ROS (Figure 4D, P < 0,001, n = 6) et la teneur en MDA (Figure 4E, P < 0,001, n = 5) ont été significativement augmentés, tandis que les niveaux de SOD (Figure 4F, P < 0,001, n = 6) et de GSH (Figure 4G, P < 0,001, n = 5) ont été significativement réduits. Ces résultats indiquent que l'inhibition de miR-145-5p inverse les effets protecteurs de l'extinction de LINC00707 sur l'inflammation et le stress oxydatif induits par le LPS dans les cellules BV2.
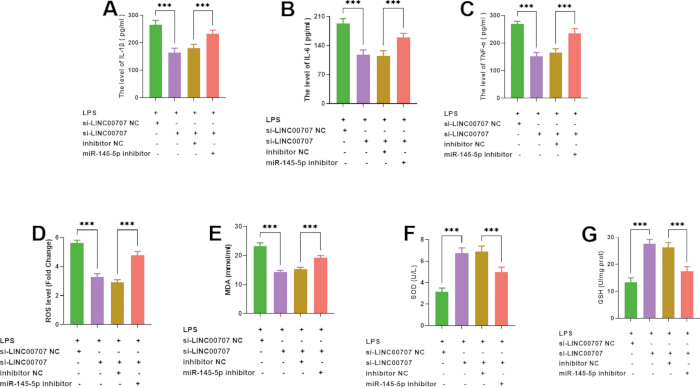
Figure 4 : Effets de l'inhibition de miR-145-5p sur l'inflammation et le stress oxydatif dans les cellules BV2. (A–C) Les résultats de l'ELISA ont montré que la sécrétion de facteurs pro-inflammatoires était significativement augmentée après transfection avec l'inhibiteur de miR-145-5p. (D–E) Les niveaux d'espèces réactives de l'oxygène (ROS) et la teneur en malondialdéhyde (MDA) étaient significativement augmentés après transfection avec l'inhibiteur de miR-145-5p. (F–G) L'activité de la superoxyde dismutase (SOD) et les niveaux de glutathion (GSH) étaient significativement réduits après transfection avec l'inhibiteur de miR-145-5p. **P < 0,001. n ≥ 5. Les analyses statistiques ont été réalisées à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. Les données sont exprimées en moyenne ± ÉT. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
TRAF6 a été identifié comme un gène cible de miR-145-5p
La base de données miRDB a prédit que TRAF6 est une cible potentielle de miR-145-5p. Des séquences de liaison complémentaires entre la région UTR 3′ de TRAF6 et miR-145-5p ont été identifiées (Figure 5A). Des tests rapporteurs à la luciférase double ont montré que l'activité luciférase dans le construit WT-TRAF6 était significativement réduite par le mimétique de miR-145-5p et augmentée par l'inhibiteur de miR-145-5p. En revanche, aucun des traitements n'a affecté l'activité luciférase dans le construit MUT-TRAF6 (Figure 5B, P < 0,001, n = 4), confirmant ainsi que TRAF6 est une cible directe de miR-145-5p.
L'analyse par RT-qPCR a montré que l'expression de l'ARNm de TRAF6 dans le plasma était significativement augmentée chez les patients atteints de LME (Figure 5C, P < 0,001). L'expression de TRAF6 était négativement corrélée à l'expression de miR-145-5p (Figure 5D, P < 0,001), et les niveaux plasmatiques d'ARNm de TRAF6 augmentaient avec la gravité de la LME (Figure 5E, P < 0,001). In vitro, l'expression de TRAF6 était significativement augmentée dans les cellules BV2 stimulées par le LPS par rapport au groupe témoin, mais était significativement réduite après l'extinction de LINC00707 (Figure 5F, P < 0,001, n = 6). En revanche, l'inhibition de miR-145-5p a restauré l'expression de TRAF6 (Figure 5G, P < 0,001, n = 6). Ces résultats indiquent que LINC00707 régule l'expression de TRAF6 par l'intermédiaire de la voie de signalisation de miR-145-5p.
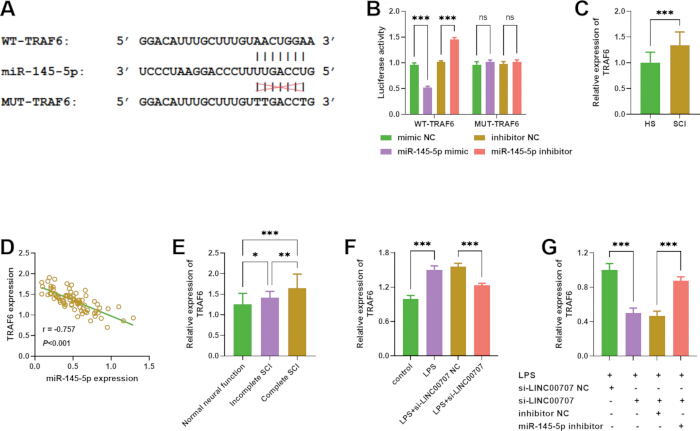
Figure 5 : TRAF6 est un gène cible de miR-145-5p. (A) La base de données miRDB a prédit des séquences de liaison complémentaires entre TRAF6 et miR-145-5p. (B) Un dosage rapporteur à double luciférase a confirmé la relation d'adressage entre TRAF6 et miR-145-5p. Une analyse statistique a été réalisée à l'aide d'une ANOVA à deux facteurs suivie du test post hoc de Tukey HSD. (C) La RT-qPCR a montré que l'expression plasmatique de TRAF6 était augmentée chez les patients atteints de LS. Une analyse statistique a été réalisée à l'aide d'un test t pour échantillons indépendants. (D) L'expression de TRAF6 dans le plasma était négativement corrélée à l'expression plasmatique de miR-145-5p chez les patients atteints de LS. Une analyse statistique a été réalisée à l'aide d'une analyse de corrélation de Pearson. (E) L'expression plasmatique de TRAF6 augmentait avec la gravité croissante de la LS selon la classification ASIA. Une analyse statistique a été réalisée à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. (F) L'expression de TRAF6 était augmentée dans les cellules BV2 stimulées par le LPS et réduite après abolition de LINC00707. Une analyse statistique a été réalisée à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. (G) L'expression de TRAF6 était augmentée suite à l'inhibition de miR-145-5p. Une analyse statistique a été réalisée à l'aide d'une ANOVA à un facteur suivie du test post hoc de Tukey HSD. P < 0,05, *P < 0,01 et **P < 0,001 ; ns, non significatif. Sujets sains, n = 30 ; patients atteints de LS, n = 75 ; expériences cellulaires, n ≥ 4. Les données sont présentées sous forme de moyenne ± ÉT. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
DISPONIBILITÉ DES DONNÉES :
Les jeux de données générés et/ou analysés dans la présente étude sont disponibles dans le dépôt Zenodo : https://doi.org/10.5281/zenodo.21470454.
Discussion
La lésion de la moelle épinière (LME) est un trouble traumatique grave du système nerveux central qui entraîne une altération ou une perte totale de la conduction nerveuse au niveau de la moelle épinière, provoquant des dysfonctionnements moteurs, sensoriels et autonomes permanents, ainsi que des conséquences physiologiques et psychologiques profondes29˒30. La gravité de ces atteintes augmente généralement avec l'importance de la LME. Dans la présente étude, l'expression plasmatique de LINC00707 était élevée chez les patients présentant une LME et corrélée positivement aux taux circulants de cytokines pro-inflammatoires, suggérant un rôle potentiel de LINC00707 dans l'inflammation et le stress oxydatif associés à la LME. Sur la base de ces observations cliniques, nous avons approfondi l'étude du rôle régulateur de LINC00707 dans l'inflammation et le stress oxydatif dans des cellules BV2 traitées par le LPS, dans le contexte de la pathogenèse de la LME.
LINC00707 est impliqué dans divers processus biologiques grâce à la régulation de multiples voies de signalisation31. En plus de réguler la prolifération cellulaire, l'apoptose, la migration et l'invasion, LINC00707 a été montré participant aux réponses inflammatoires et au stress oxydatif18˒32˒33. Des études antérieures ont rapporté une surexpression de LINC00707 dans les cancers du poumon34, du sein35, du col de l'utérus36 et du foie37, où il favorise la progression de la maladie en régulant des cibles moléculaires en aval. De plus, la suppression de LINC00707 favorise la différenciation ostéogénique des cellules souches mésenchymateuses de la moelle osseuse par régulation de miR-103a-3p38. Zou et al. ont en outre démontré que LINC00707 favorise les réponses inflammatoires induites par le LPS dans les cellules MRC-5, confirmant son rôle pro-inflammatoire33. Conformément à ces résultats, la présente étude a montré que l'expression de LINC00707 était significativement augmentée dans les cellules BV2 stimulées par le LPS, tandis que l'extinction de LINC00707 réduisait la production de cytokines pro-inflammatoires et de marqueurs de stress oxydatif. Ces résultats renforcent davantage l'implication de LINC00707 dans les réponses inflammatoires et au stress oxydatif.
On a également signalé que LINC00707 fonctionne comme un ARN endogène compétitif (ceRNA) en régulant le miR-145-5p dans plusieurs affections pathologiques, notamment la maladie cardiaque rhumatismale39, le cancer de la vessie40 et la différenciation ostéogénique41. Des études antérieures ont démontré que le miR-145-5p exerce des effets protecteurs dans la lésion médullaire (SCI) en supprimant l'inflammation et le stress oxydatif42˒43, ainsi qu'en favorisant l'angiogenèse et la réparation neuronale44˒45. Conformément à ces observations, la présente étude a montré que l'expression plasmatique du miR-145-5p était diminuée chez les patients atteints de lésion médullaire et dans les cellules BV2 stimulées par le LPS. On a en outre confirmé que LINC00707 interagit directement avec le miR-145-5p, et que la suppression de LINC00707 restaure l'expression du miR-145-5p. De plus, l'inhibition du miR-145-5p inverse les effets protecteurs de l'extinction de LINC00707 sur les réponses inflammatoires et le stress oxydatif. Ces résultats suggèrent que LINC00707 pourrait contribuer à la progression de la lésion médullaire en régulant les réponses inflammatoires et au stress oxydatif médiées par le miR-145-5p.
Des études antérieures ont démontré que TRAF6 joue un rôle important dans les maladies du système nerveux central46. Des preuves indiquent également que l'inhibition de TRAF6 peut améliorer significativement les lésions médullaires47˒48. La présente étude a en outre identifié TRAF6 comme une cible directe de miR-145-5p. L'expression de TRAF6 était significativement augmentée chez les patients présentant une lésion médullaire et dans les cellules BV2 stimulées par le LPS. De plus, l'extinction de LINC00707 a réduit l'expression de TRAF6, tandis que l'inhibition de miR-145-5p a restauré l'expression de TRAF6. Ces résultats suggèrent que LINC00707 pourrait réguler l'expression de TRAF6 via miR-145-5p au cours des lésions médullaires.
Cette étude suggère que LINC00707 pourrait affecter les réponses inflammatoires et les lésions liées au stress oxydatif induites par les microglies au cours de la lésion médullaire en régulant l'axe de signalisation miR-145-5p/TRAF6. Cette découverte est conforme à un rapport antérieur de Zhu et al., qui ont démontré qu'une diminution de LINC00707 atténuait l'inflammation et l'apoptose induites par le LPS dans les cellules PC-12 ; toutefois, le mécanisme sous-jacent dans leur étude impliquait l'axe miR-30a-5p/Neurod118. Dans leur ensemble, ces résultats suggèrent que LINC00707 pourrait ne pas agir via une cible unique d'ARNmi, mais plutôt à travers des réseaux d'ARNmi distincts selon un mode dépendant du type cellulaire, contribuant ainsi aux processus pathologiques de la lésion médullaire.
Cette étude présente plusieurs limites. Premièrement, seule l'expression de l'ARNm de TRAF6 a été évaluée, tandis que l'expression protéique n'a pas été analysée. Les études futures devraient inclure une validation au niveau protéique, telle qu'une analyse par immunotransfert (Western blot), afin de mieux caractériser la relation régulatoire entre LINC00707, miR-145-5p et TRAF6. Deuxièmement, cette étude a été menée exclusivement au niveau cellulaire à l'aide d'un modèle de microglie BV2 stimulé par le LPS, sans validation in vivo. Compte tenu de la complexité du microenvironnement de la lésion médullaire (SCI), les résultats actuels pourraient ne pas refléter pleinement les conditions physiopathologiques in vivo. Il reste à confirmer si LINC00707 exerce des effets pro-inflammatoires similaires dans des modèles animaux de SCI. Des études futures mettront en place des modèles animaux de SCI afin de valider le rôle régulateur de LINC00707 et ses mécanismes moléculaires sous-jacents. Troisièmement, bien que nos résultats indiquent que LINC00707 agit via la voie de signalisation miR-145-5p/TRAF6 pour influencer l'inflammation, on ignore encore si LINC00707 fonctionne uniquement comme éponge pour des miARN spécifiques ou s'il se lie également directement à certaines protéines. D'autres études sont nécessaires pour préciser ces détails mécanistiques. Quatrièmement, l'analyse de la courbe ROC était basée sur des données provenant d'un seul centre médical et d'un nombre relativement restreint de patients. Cela pourrait avoir introduit un biais, rendant les résultats préliminaires. Des études multicentriques plus larges, incluant davantage de patients, sont nécessaires pour confirmer le potentiel diagnostique des biomarqueurs identifiés.
Les résultats de cette étude suggèrent que LINC00707 pourrait représenter un biomarqueur plasmatique exploratoire et une cible thérapeutique potentielle pour les lésions de la moelle épinière (SCI). Toutefois, la traduction de ces résultats en applications cliniques exigera plusieurs étapes supplémentaires. Premièrement, la valeur discriminante potentielle du LINC00707 plasmatique devra être évaluée dans de plus grands cohortes multicentriques, des cohortes de validation indépendantes et des groupes témoins présentant un traumatisme ou une inflammation pertinente. L'évaluation clinique et l'examen radiologique restent les approches principales pour diagnostiquer la SCI. Deuxièmement, le potentiel thérapeutique du ciblage du LINC00707 devra être évalué dans des modèles animaux afin d'en apprécier l'efficacité et la sécurité. En définitive, la modulation de la voie de signalisation LINC00707/miR-145-5p/TRAF6 pourrait offrir une approche nouvelle pour atténuer la neuroinflammation et le stress oxydatif chez les patients présentant une SCI, bien qu'un travail considérable reste à accomplir pour combler l'écart entre le laboratoire et le chevet du patient.
Dans l'ensemble, l'expression de LINC00707 et de TRAF6 dans le plasma était augmentée, tandis que l'expression de miR-145-5p était diminuée, chez les patients atteints de LS et dans les cellules BV2 stimulées par le LPS. L'inhibition de LINC00707 a atténué les réponses inflammatoires et le stress oxydatif via l'axe de signalisation miR-145-5p/TRAF6, suggérant que cette voie régulatrice pourrait représenter une cible thérapeutique potentielle pour le LS.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun intérêt concurrentiel.
Remerciements
Ce travail a été soutenu par le projet de recherche en sciences médicales du Hebei (subvention no 20251479).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| tube microcentrifuge de 1,5 mL | KIRGEN | KG2211 | Tube en polypropylène avec bouchon à visser, sans DNase/ni RNase, non pyrogène, force centrifuge maximale 20 000 × g, pour le stockage et la centrifugation des échantillons d'ARN/protéines. |
| Plaque de culture cellulaire à 6 puits | Corning | 3516 | Plaque en polystyrène traitée pour culture cellulaire, à fond plat, stérile et emballée individuellement ; volume de puits de 16,8 mL avec une surface de croissance de 9,5 cm² |
| Aiguille de prélèvement sanguin | Becton, Dickinson and Company | 367283 | Aiguille jetable pour prélèvement sanguin BD Vacutainer. Conçue avec une aiguille double extrémité, dont une pour la ponction veineuse et l'autre pour la connexion au porte-tube et au tube sous vide afin de permettre la collecte multipoches. Enduite de silicone afin de minimiser le malaise du patient lors de l'insertion. |
| Tubes de prélèvement sanguin | Becton, Dickinson and Company | 367605 | Tubes à vide de prélèvement sanguin BD Vacutainer. Des bouchons codés par différentes couleurs indiquent divers additifs, correspondant à des tests de laboratoire spécifiques. |
| Ligne cellulaire immortalisée de microglie murine BV2 | Centre de ressources cellulaires de l'Institut de biotechnologie de Shanghai | RRID : CVCL_0182 | Ligne cellulaire murine de microglie immortalisée exprimant de façon stable des marqueurs spécifiques de la microglie (Iba1, CD11b, F4/80). Après stimulation par le LPS, les cellules BV2 sécrètent des cytokines pro-inflammatoires (IL-1β, IL-6, TNF-αα) et accumulent des ERO intracellulaires, ainsi que du MDA, afin de mimétiser l'activation inflammatoire microgliale in vivo après une lésion de la moelle épinière. Les cellules sont cultivées dans un DMEM à haute teneur en glucose, complété avec 10 % de SFB et 1× pénicilline-streptomycine, maintenu à 37 °C avec 5 % de CO₂2 incubateur humidifié ; mis en culture lorsqu'il atteint 70 %–80 % de confluence pour éviter une surexcitation. |
| Kit d'essai de malondialdéhyde (MDA) cellulaire | Nanjing Jiancheng Bioengineering Institute | A003-4-2 | Kit colorimétrique basé sur une microplaque pour la détection quantitative du malondialdéhyde cellulaire, un marqueur de la peroxydation lipidique. Le MDA réagit avec l'acide thiobarbiturique (TBA) lors d'un chauffage pour former des adduits rouges ; l'absorbance est mesurée à 532 nm à l'aide d'un spectrophotomètre à microplaque. Optimisé pour les échantillons d'extraits cellulaires, fonctionne en mode haut débit sur 96 puits, avec une gamme linéaire de quantification couvrant des niveaux faibles à modérés d'oxydation lipidique dans les microglies. |
| CO2 incubateur | Thermo Scientific | 3111 | CO₂ humidifié à enceinte thermostatée par double enveloppe d'eau2 incubateur avec un volume intérieur de 184 L, CO₂ à infrarouge2 capteur, système de filtration de l'air HEPA pour minimiser la contamination microbienne. Maintient un environnement de culture stable à 37 °C, 5 % CO₂2 et une humidité saturée pour la culture prolongée de cellules adhérentes. |
| Kit d'essai du gène rapporteur luciférase double | Beyotime Biotechnology | RG028 | Ce kit double luciférine permet la détection quantitative séquentielle de la luciférase de luciole et de la luciférase Renilla dans des lysats cellulaires. Le signal de la luciférase de luciole est d'abord mesuré à l'aide du substrat luciférine ; le réactif de détection subséquent de Renilla contient un inhibiteur puissant qui élimine >99,9 % de luminescence résiduelle de luciole, assurant une lecture de signal pur de Renilla avec le substrat coelentérazine. Le kit comprend un tampon de lyse cellulaire dédié pour la lyse de cellules adhérentes, compatible avec un luminomètre pour microplaque de 96 puits. Le réactif de luciole est un liquide pré-mélangé prêt à l'emploi ; les valeurs de luminescence de la luciole et de Renilla sont enregistrées séquentiellement afin de calculer l'activité luciférase relative normalisée (rapport luciole/Renilla) pour la validation de cibles ceRNA. |
| Dulbecco's Modified Eagle Medium | Gibco | 11995065 | Le DMEM est un milieu de base largement utilisé pour soutenir la croissance de nombreuses cellules de mammifères. Cette formulation contient du glucose à concentration élevée, du L-glutamine, du rouge de phénol et du pyruvate de sodium. Il nécessite un supplément, généralement 10 % de sérum bovin fœtal (FBS), et un taux de 5 % de CO₂–10 % CO2 environnement pour maintenir un pH physiologique. |
| Sérum fœtal bovin | CHAQUE VERT | 13011-8611 | FCS de qualité supérieure, faible teneur en endotoxines, sans mycoplasmes & bactériophage négatif, supplémenté dans le DMEM à 10 % v/v pour favoriser la croissance cellulaire. |
| GraphPad Prism version 9 | GraphPad Software, San Diego, CA, États-Unis | NA | Logiciel spécialisé en analyse statistique et en représentation graphique de données expérimentales cellulaires in vitro. Toutes les valeurs brutes de qPCR, de dosage ELISA, de stress oxydatif et de luminiscence absorbance du test luciférase double ont été importées dans Prism 9 afin de vérifier la normalité, effectuer des comparaisons paramétriques ou non paramétriques entre groupes, générer toutes les figures quantitatives et calculer les moyennes ± DT, valeurs exactes de P et IC à 95 %, et exporter des figures en haute résolution (300 ppp) conformes aux normes de publication des revues. Les fichiers sources originaux au format .prism de tous les graphiques sont déposés dans un référentiel public de données, comme requis. |
| IBM SPSS Statistics Version 26.0 | IBM Corporation, Armonk, NY, États-Unis | NA | Logiciel statistique complet utilisé pour le tri des données de base des échantillons cliniques, le test de normalité (test de Shapiro-Wilk), le test t indépendant (non apparié), l'analyse de variance à un facteur (ANOVA) avec test de Tukey’correction pour comparaisons multiples, test non paramétrique de Mann-Whitney U, et calcul des valeurs exactes de P et des intervalles de confiance à 95 % pour tous les jeux de données quantitatifs humains et cellulaires. Toutes les données démographiques et de laboratoire des patients cliniques ont été traitées et analysées dans cette plateforme. |
| IL-1β Kit SimpleStep ELISA | Abcam | ab255730 | Ce kit ELISA colorimétrique sandwich à un seul lavage utilise une technologie SimpleStep exclusive, permettant d'achever l'ensemble de la procédure de détection en 90 minutes. Il mesure de façon quantitative l'interleukine-1 de ratβ dans le surnageant de culture cellulaire, le sérum et les échantillons de plasma EDTA/citrate/héparine. La sensibilité de détection atteint 26,58 pg/mL, avec une gamme de quantification linéaire de 54,69–3500 pg/mL. Une microplaque pré-recouverte en bandelettes sécables de 8 puits est incluse. Les signaux d'absorbance sont détectés à 450 nm à l'aide d'un lecteur de microplaque pour calculer l'IL-1β concentration |
| Kit ELISA SimpleStep pour l'IL-6 | Abcam | ab234570 | Un kit ELISA colorimétrique SimpleStep par sandwich optimisé pour la détection quantitative de l'interleukine-6 (IL-6) chez le rat dans des échantillons de surnageant de culture cellulaire, de sérum et de plasma citraté/EDTA/hépariné. Ce kit utilise une procédure en une seule étape d'incubation et un seul lavage, réduisant ainsi le temps total d'analyse à 90 minutes, avec une sensibilité de détection de 43 pg/mL et une gamme de quantification linéaire comprise entre 125 pg/mL et 8000 pg/mL. Un microplaque prérevêtue constituée de bandes détachables de 8 puits est incluse ; les valeurs d'absorbance sont lues à 450 nm à l'aide d'un spectrophotomètre pour microplaque afin de calculer la concentration finale en IL-6. |
| Plaque LightCycler Multiwell 96, blanche | Roche LifeScience, Suisse | 4729692001 | Plaques de réaction blanches en polypropylène à 96 puits, demi-paroi, spécialement optimisées pour l'appareil de PCR en temps réel LightCycler 96. Les parois blanches des puits réduisent les interférences de fluorescence de fond et améliorent la réflexion du signal, ce qui augmente la sensibilité de détection des transcrits peu abondants. Un design à paroi mince uniforme assure une conductivité thermique constante dans tous les puits, compatible avec des volumes de réaction allant de 10 à 50 μL. Sans DNase/ RNase et sans pyrogènes pour les tests d'amplification de ADN complémentaire dérivé de ARN. |
| Réactif de transfection LipofectamineTM 3000 | Thermo Fisher Scientific | L3000015 | Le réactif de transfection par nanoparticules lipidiques associé à l'amplificateur P3000 permet une transfection efficace d'ARNsi/plasmide dans les microglies BV2 avec une faible cytotoxicité. |
| Kit de synthèse de l'ADN complémentaire brin simple lnRcute lncARN | TIANGEN | KR202-02 | Ce kit est spécialement optimisé pour la transcription inverse des ARN non codants longs (lncARN) peu abondants, présentant une teneur en GC variable et des structures secondaires complexes. Il contient un tampon de suppression de l'ADN génomique indépendant permettant d'éliminer la contamination par l'ADN génomique avant la transcription inverse, ainsi qu'un mélange d'amorces spécifiques lnR-RT destiné à enrichir les gabarits de lncARN en longueur complète. La transcriptase inverse modifiée permet une synthèse efficace d'ADN complémentaire longs brins à partir d'une quantité d'ARN total comprise entre 10 ng et 2 ng. |
| Kit de détection d'ARNl lnRcute (SYBR Green) pour PCRq | TIANGEN | FP402 | Un mélange prêt à l'emploi pour PCR quantitative basé sur le SYBR Green, spécialement conçu pour la quantification des ARNl. La polymérase ADN à démarrage chaud médiée par anticorps assure une spécificité élevée d'amplification ; les composants H-compétiteur atténuent les interférences dues à la structure secondaire des matrices d'ARNl riches en GC. Compatible avec l'ADNc généré à partir du kit de transcription inverse lnRcute pour ARNl, et adapté à la quantification de l'expression relative des ARNl faiblement exprimés. |
| Oligonucléotides miR-145-5p | Generalbiol (Wuhan, Chine) | NA | Mimique synthétique de miR-145-5p, inhibiteur et oligonucléotides négatifs correspondants utilisés pour moduler l'activité de miR-145-5p dans les cellules BV2. Utilisés dans les tests d'expression, inflammatoires, de stress oxydatif et de rapporteur luciférase double. |
| Kit miRcute Plus de l'ADNc de première chaîne d'ARNmi | TIANGEN | KR211-02 | Adopte une réaction combinée en un seul tube de polyadénylation et de transcription inverse pour simplifier le protocole expérimental. Le mélange enzymatique contient une poly(A) polymérase d'E. coli, une transcriptase inverse dépourvue de RNase H et un inhibiteur de RNase, ciblant spécifiquement les miARN matures simples brins et évitant ainsi toute interférence amplificatrice provenant des pré-miARN possédant des structures en épingle à cheveux. Convient pour les miARN extraits de lysats cellulaires, de plasma et d'échantillons tissulaires. |
| Kit de détection miRcute Plus pour qPCR d'ARNm (SYBR Green) | TIANGEN | FP411 | Pré-mélange SYBR Green optimisé pour la quantification des ARNmi matures, parfaitement compatible avec les produits de transcription inverse miRcute. Le système tampon améliore l'efficacité d'hybridation des amorces pour les courts amplicons d'ARNmi, offrant des signaux fluorescents stables et une haute sensibilité pour la détection des ARNmi faiblement exprimés. L'ARNsn U6 est couramment utilisé comme référence interne pour la normalisation. |
| Solution de pénicilline-streptomycine (100×) | Beyotime Biotechnology | C0222 | Mélange filtré stérile contenant 10 000 U/mL de pénicilline et 10 mg/mL de streptomycine ; dilution d'emploi 1:100 dans le milieu de culture pour prévenir la contamination bactérienne. |
| Kit d'essai des espèces réactives de l'oxygène avec diluant | Beyotime Biotechnology | S0034M | Ce kit utilise la sonde fluorescente DCFH-DA pour quantifier les espèces réactives de l'oxygène (ROS) intracellulaires. La DCFH-DA traverse la membrane cellulaire et est hydrolysée par les estérases intracellulaires en DCFH, qui est ensuite oxydée par les ROS pour produire la DCF fluorescente. Compatible avec les microplaques 96 puits et les lecteurs de microplaques à fluorescence pour une détection en haut débit (Ex = 488 nm, Em = 525 nm). Équipé d'un diluant spécifique pour la sonde et d'un réactif contrôle positif Rosup afin de stabiliser les signaux de marquage, il convient à la détection du stress oxydatif des microglies BV2 adhérentes sans lyse cellulaire. |
| Kit d'analyse du glutathion réduit (GSH) | Nanjing Jiancheng Bioengineering Institute | A006-1-2 | Kit colorimétrique en microplaque pour la détection du glutathion réduit (GSH), l'antioxydant intracellulaire principal. Le GSH réagit avec l'acide dithiodinitrobenzoïque (DTNB) pour produire un composé chromogène jaune, dont l'absorbance est mesurée à 405 nm à l'aide d'un lecteur de microplaque. Ce kit adapte un protocole classique en tube à une détection en microplaque de 96 puits, permettant une analyse à haut débit des antioxydants dans des lysats cellulaires. |
| si-LINC00707 | GenePharma (Shanghai, Chine) | NA | ARN interférent petit (siARN) conçu pour réduire l'expression de LINC00707 dans les cellules BV2. Utilisé dans des expériences de perte de fonction afin d'évaluer les effets de l'extinction de LINC00707 sur les réponses inflammatoires, le stress oxydatif, l'expression de miR-145-5p et l'expression de TRAF6. |
| si-LINC00707 NC | GenePharma (Shanghai, Chine) | NA | ARNi non ciblant utilisé comme contrôle négatif pour la transfection par si-LINC00707. Utilisé pour contrôler les effets non spécifiques liés à la procédure de transfection et à l'exposition aux ARN interférents. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Prémélange universel de PCR quantitative en temps réel avec SYBR Green pour la quantification relative d'ARNm, contenant une ADN polymérase Taq à démarrage chaud, des dNTP, du SYBR Green I et un colorant de référence ROX pour la normalisation de la fluorescence. Amplification non spécifique faible, efficacité d'amplification stable, largement utilisé pour la quantification de gènes cibles d'ARNm (TRAF6, GAPDH, etc.). |
| Centrifugeuse de table petite taille Thermo Scientific™ Sorvall™ ST 8 | Thermo Scientific | 75200709 | Le choix classique pour les laboratoires cliniques, capable de traiter jusqu'à 24 × Des tubes de prélèvement sanguin de 5/7 mL à la fois. La série R est une version réfrigérée, qui permet une meilleure protection des échantillons nécessitant une centrifugation à basse température. |
| Kit de synthèse d'ADN complémentaire de premier brin TIANScript II | TIANGEN | GKR107-02 | Conçu pour la transcription inverse d'ARNm en vue de la synthèse d'ADNc de grande taille, jusqu'à 12 kb. Équipé d'amorces Oligo (dT) 15 et d'amorces aléatoires hexamériques pour des stratégies d'amorçage flexibles. La transcriptase inverse M-MLV modifiée lit efficacement les régions riches en GC et les structures secondaires complexes des ARNm, avec une grande compatibilité pour l'amplification ultérieure par qPCR des ARNm. |
| TNF-α Kit SimpleStep ELISA | Abcam | ab236712 | Un kit ELISA sandwich SimpleStep, rapide, à un seul lavage, optimisé pour la détection quantitative du facteur de nécrose tumorale du ratα (TNF-α) dans le surnageant de culture cellulaire, le sérum et divers échantillons de plasma. La durée totale du test est de 90 min, avec une sensibilité extrêmement élevée de 1,04 pg/mL et une gamme de détection linéaire comprise entre 15,63 pg/mL et 1000 pg/mL. Équipé d'un détachable 8×plaque pré-enrobée 12 puits ; les valeurs d'OD à 450 nm sont enregistrées pour le TNF finalα calcul quantitatif |
| Kit d'essai de la superoxyde dismutase totale (SOD-T) | Nanjing Jiancheng Bioengineering Institute | A001-3-2 | Kit chromogénique pour microplaque WST-1 permettant la détection de l'activité enzymatique totale de la SOD. La SOD élimine les radicaux anion superoxyde et inhibe la réduction du WST-1. La mesure de l'absorbance à 450 nm à l'aide d'un lecteur de microplaques permet le calcul de l'activité. Convient pour les échantillons d'homogénat cellulaire, de sérum et de tissus, avec un développement colorimétrique stable et une haute répétabilité, destiné à l'évaluation de la capacité antioxydante. |
| TRIzol Reagent | Thermo Fisher Scientific | 15596018 | Réactif monophasique au phénol-guanidine isothiocyanate pour l'isolement en une étape de l'ARN total à partir de cellules de microglie en culture ; extrait simultanément l'ADN et les protéines à partir des mêmes échantillons. |
Références
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.