Ce travail présente un protocole permettant d'obtenir des embryons clonés d'une espèce de cerf en voie de disparition en utilisant des ovocytes énucléés provenant de bovins. Nous décrivons ici la méthodologie détaillée du transfert nucléaire somatique interspécifique et l'utilisation d'ovocytes dépourvus de zone pellucide comme cytoplastes. De plus, les résultats obtenus sont discutés en détail.
Article de méthode
Transfert nucléaire somatique interspécifique utilisant des ovocytes dépourvus de zone pellucide de bovin (Bos taurus) et des fibroblastes de brocket (Mazama americana)
Dans cet article
Résumé
Résumé
Les biotechnologies de la reproduction utilisées chez les animaux permettent d'augmenter les populations d'espèces ayant une valeur génétique élevée. En outre, ces technologies contribuent à la conservation, à la préservation et à la diffusion du matériel génétique d'individus possédant des caractéristiques supérieures. Le sauvetage génétique d'individus sélectionnés a conduit à de nombreuses études menées sur des espèces domestiques dans le but d'extrapoler les résultats à d'autres populations animales ou à des individus spécifiques. L'une de ces approches repose sur le transfert nucléaire de cellules somatiques (SCNT), ou clonage, qui permet de produire des embryons dont le matériel génétique est identique à celui d'un spécimen existant. Parmi les limites de cette technique figure la disponibilité restreinte d'ovocytes provenant d'animaux sauvages. Ainsi, une alternative a émergé sous la forme du transfert nucléaire interspécifique de cellules somatiques (iSCNT), utilisant une cellule somatique (caryoplaste) de l'espèce à cloner comme donneur nucléaire, insérée dans un ovocyte énucléé (cytoplaste) provenant d'une espèce appartenant à un ordre ou à un taxon différent. Cette approche permet d'obtenir des embryons clonés viables. Au Brésil, il existe neuf espèces de cerfs, dont beaucoup sont menacées en raison de la chasse indiscriminée, de la perte d'habitat et d'autres causes. Le cerf roux (Mazama americana) est l'une des espèces touchées par ces conditions. Ce travail présente donc une méthodologie permettant d'obtenir des embryons clonés de cerf roux à l'aide de la technique iSCNT, dans le but de constituer une banque d'embryons destinés à un transfert ultérieur chez des femelles receveuses, contribuant ainsi à assurer la survie de l'espèce.
Introduction
La famille des Cervidés comprend actuellement 55 espèces de mammifères ongulés possédant de vraies bois – des structures osseuses apparentes situées sur la partie supérieure du crâne des mâles, à l'exception du renne (Rangifer tarandus), chez lequel les deux sexes en sont pourvus1, et du chevreuil aquatique chinois (Hydropotes inermis), chez lequel aucun des deux sexes ne possède de bois2. Les cervidés appartiennent à l'ordre des Cétartiodactyles, qui inclut également les familles des Antilocapridés, des Bovidés, des porcs, des Tayassidés, des camélidés, des Tangidés, des girafes et des hippopotames. De manière générale, les cervidés sont des ruminants herbivores qui occupent une grande variété d'habitats à travers le globe, à l'exception du continent antarctique3.
Neuf espèces appartenant à la famille des Cervidés sont actuellement reconnues au Brésil : Odocoileus virginianus (chevreuil de Virginie), Blastocerus dichotomus (cerf des marais), Ozotoceros bezoarticus (chevreuil des pampas), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, et Passalites nemorivagus4.
Cette taxonomie reflète les récentes études moléculaires montrant que le genre Mazama est polyphylétique5, ce qui a conduit à la reconnaissance de Subulo6 et de Passalites7 comme genres distincts et valables. Un grand nombre de ces cervidés néotropicaux sont de plus en plus menacés par les pressions anthropiques, notamment la perte d'habitat, la fragmentation du paysage et la réduction conséquente de la diversité génétique associée à l'isolement des populations8.
Au cours des 100 dernières années, les techniques de reproduction assistée ont été mises en œuvre avec succès d'abord chez les mammifères de laboratoire, et sont progressivement transférées vers des espèces sauvages ayant une haute priorité en matière de conservation9. Par conséquent, la grande majorité des biotechnologies de la reproduction ont été développées à partir du modèle mammalien, et c'est donc ce groupe qui a reçu l'essentiel de l'attention de la recherche. Plusieurs technologies de reproduction ont été adaptées avec succès aux mammifères, notamment l'insémination artificielle, le transfert d'embryons, la fécondation in vitro, le tri sexuel des gamètes et des embryons, ainsi que la cryoconservation des ressources génétiques10. Toutefois, une technique en particulier, le transfert nucléaire de cellules somatiques (SCNT), se distingue des autres par ses résultats et son impact potentiel lorsqu'elle est utilisée chez des espèces menacées11.
Parmi les biotechnologies reproductives disponibles, le clonage permet la génération d'individus génétiquement identiques à l'animal donneur. Le transfert nucléaire de cellules somatiques (SCNT) constitue la stratégie principale utilisée pour le clonage, dans laquelle le noyau d'une cellule somatique est introduit dans un ovocyte énucléé. Toutefois, dans le cas des espèces sauvages, son application est fréquemment limitée par la rareté des donneuses d'ovocytes et par les difficultés techniques liées à la récupération des ovocytes12. Ces contraintes ont conduit au développement du transfert nucléaire interspécifique de cellules somatiques (iSCNT) comme approche complémentaire dans les programmes de conservation, où des ovocytes d'animaux domestiques sont utilisés comme cytoplastes récepteurs pour des noyaux provenant d'espèces menacées (Figure 1). La faisabilité de cette approche a été démontrée par la production réussie de descendants vivants appartenant à plusieurs espèces sauvages grâce à l'iSCNT13,14,15.
Différentes stratégies ont été proposées pour la production d'embryons clonés, selon la manière dont les ovocytes et les cellules donneuses sont manipulés. Dans l'approche classique, les ovocytes présentant une zone pellucide intacte sont énucléés, puis la cellule donneuse est introduite dans l'espace périvitellin et fusionnée par électrofusion16. Une autre possibilité consiste à injecter directement le noyau somatique dans un ovocyte entouré de sa zone pellucide à l'aide de techniques de micromanipulation telles que la microinjection17. En revanche, les systèmes sans zone pellucide (ZP-free) simplifient la procédure de clonage en évitant plusieurs étapes de micromanipulation, car l'énucléation peut être réalisée à l'aide d'une pipette émoussée sans nécessiter d'équipement complexe18. Dans cet essai, nous proposons d'utiliser des ovocytes sans zone pellucide comme cytoplastes lors de la TCNI afin d'obtenir des embryons clonés en combinant un cytoplasme bovin et un karyoplasme de cerf.
Protocole
Une femelle adulte de daim roux a été récupérée par les autorités environnementales à Guaramiranga, Ceará, Brésil (4°13'53.0'' S, 38°56'42.6'' W). L'animal a été reçu sans vie au Laboratoire pour la Conservation des Cervidés Néotropicaux (LACCERNE), Université d'État du Ceará (UECE), Fortaleza, Brésil. Les constatations à la nécropsie ont indiqué que le décès résultait de multiples blessures traumatiques causées par un projectile d'arme à feu entré par la région abdominale dorsolatérale gauche. L'utilisation de ce spécimen a été autorisée par le Comité d'Éthique en Expérimentation Animale de l'Université d'État du Ceará (CEUA-UECE, numéro de protocole 450620/2022) et par l'Institut Brésilien de l'Environnement et des Ressources Naturelles Renouvelables (IBAMA, numéro de protocole 02027.014734/99-34). De plus, l'utilisation d'ovaires bovins a été approuvée par le CEUA/UECE (numéro de protocole 31032.004671/2024-81). Les détails de tous les réactifs et équipements utilisés sont indiqués dans le Tableau des Matériaux. Les données soutenant cette étude sont disponibles sur Zenodo au numéro DOI 10.5281/zenodo.22129414.
1. Solutions et milieux de culture
REMARQUE : Effectuez toutes les opérations de filtration à l’aide d’un filtre stérile de 0,22 µm et conservez le filtrat à 4 °C pendant une semaine au maximum. Conservez la solution mère à -20 °C.
- Milieu de transport : Ajouter 8,1 g de NaCl et 0,045 g de pentabiotique, puis compléter à 900 mL avec de l'eau distillée.
- Solution saline tamponnée au phosphate (PBS) : Ajouter 0,4 g de NaCl, 0,01 g de KCl, 0,077 g de NaH2PO4 et 0,01 g de KH2PO4, puis compléter à 50 mL avec de l'eau ultrapure.
- Milieu de culture cellulaire : milieu de Dulbecco modifié (DMEM) complété avec 10 % (v/v) de sérum bovin fœtal (FBS) et 1,0 % (v/v) de solution de pénicilline, streptomycine et amphotéricine B (ATB).
- Solution de cryoconservation des fibroblastes : DMEM complété avec 10 % (v/v) de FBS, 10 % (v/v) de diméthylsulfoxyde (DMSO) et 2,0 % (v/v) de solution ATB.
- Trypsine-EDTA (0,25 %).
- Milieu de manipulation : milieu de Tyrode tamponné au HEPES contenant de l'albumine, du lactate et du pyruvate (H-TALP). Utiliser ce milieu pour toutes les procédures effectuées en dehors de l'incubateur. Pour 1 L, ajouter 6,763 g de NaCl, 0,239 g de KCl, 0,294 g de CaCl2·2H2O, 0,048 g de MgCl2, 0,168 g de NaHCO3 et 3,575 g de HEPES à 981,86 mL d'eau stérile testée pour les embryons. Agiter doucement puis ajouter 10 mL d'antibiotique-antimycotique, 1 mL de rouge de phénol, 1,44 mL de lactate de sodium, 1 mL de solution mère de pyruvate de sodium 100 mM et 3 g d'albumine sérique bovine (BSA). Ajuster l'osmolalité à 280 mOsm et le pH à une plage de 7,2 à 7,4. Répartir en aliquots de 50 mL et conserver à 4 °C pendant un mois.
- Milieu de maturation in vitro : milieu 199 (TCM-199) complété avec 10 % (v/v) de FBS, 10 ng/mL de facteur de croissance épidermique (EGF), 1 mM de pyruvate de sodium, 100 µM de cystéamine, 10 µg/mL d'hormone folliculo-stimulante (FSH), 1 µg/mL d'estradiol et 1 % (v/v) de solution ATB. Ajuster le pH à 7,2–7,4.
- Solution d'hyaluronidase (concentration finale : 1 mg/mL) : Dissoudre 10 mg d'hyaluronidase dans 10 mL de H-TALP. Préparer des aliquots de 200 µL dans des tubes de 1,5 mL, prêts à l'emploi.
- Solution de pronase (concentration finale : 1,5 mg/mL) : Dissoudre 15 mg de pronase dans 10 mL de H-TALP. Préparer des aliquots de 200 µL dans des tubes de 1,5 mL, prêts à l'emploi.
- Démécolcine (concentration finale : 0,4 µg/mL) : Dissoudre 5 mg de démécolcine (DMC) dans 125 µL de DMSO et préparer des aliquots de 5 µL (solution mère). Congeler les aliquots jusqu'à utilisation. Les diluer en mélangeant 2 µL de la solution mère avec 1998 µL de TCM pour obtenir la solution de travail. Avant utilisation, ajouter 5 µL de la solution de travail à 495 µL de liquide oviductaire synthétique (SOF).
- Hoechst (concentration finale : 10 µg/mL) : Dissoudre 1 mg/mL de Hoechst 33342 dans du H-TALP. Préparer des aliquots de 5 µL et des dilutions 1:100 dans le milieu de culture SOF.
ATTENTION : Le Hoechst 33342, utilisé pour visualiser l'ADN nucléaire sous lumière UV, est un agent intercalant et un puissant mutagène. Manipuler avec des équipements de protection individuelle adaptés. - Phytohémagglutinine (concentration finale : 1 mg/mL) : Dissoudre 5 mg de phytohémagglutinine (PHA) dans 500 µL de H-TALP. Préparer des aliquots de 10 µL dans des tubes de 200 µL. Pour utilisation, ajouter 90 µL de H-TALP.
- Milieux de fusion cellulaire : 0,3 M mannitol, 0,1 mM MgSO4, 0,05 mM CaCl2, HEPES 0,5 mM et 1 mg/mL de polyvinyl alcool (PVA) dans de l'eau ultrapure. Utiliser le jour même de la préparation.
- Ionomycine (concentration finale : 5 µM) : Ajouter 1 mL de DMSO au flacon d'ionomycine (1 mg/flacon). Ajouter 1,67 mL de TCM-199. Congeler des aliquots de 10 µL dans des tubes de 1,5 mL à -20 °C. Pour utilisation, ajouter 990 µL de H-TALP au contenu de chaque tube de 1,5 mL. Protéger de la lumière.
- 6-Diméthylaminopurine (concentration finale : 2 mM) : Dissoudre 10 mg de 6-diméthylaminopurine (6-DMAP). Congeler des aliquots de 50 µL dans des tubes de 1,5 mL à -20 °C. Pour utilisation, ajouter 950 µL de SOF au contenu de chaque tube de 1,5 mL.
- Milieu de culture embryonnaire : 0,2 mM L-glutamine, 0,2 mM pyruvate de sodium, 2 % d'acides aminés essentiels Basal Medium Eagle (BME), 1 % d'acides aminés non essentiels MEM 100×, 1,0 % (v/v) de solution ATB, 2,77 mM myo-inositol, 2,5 % (v/v) de FBS, 10 µL/mL d'ITS (mélange d'insuline, de transferrine humaine et de sélénite de sodium) et 3 g/L de BSA.
2. Prélèvement et manipulation de l'échantillon de tissu donneur
- Lavez et rasez la surface de l'oreille de la femelle donneuse avec du savon et de l'eau, puis désinfectez la zone avec de l'alcool (70 %).
- Prélève un petit échantillon d'oreille (1 × 2 cm) à l’aide d’une lame de scalpel, place-le dans une solution de PBS contenant 4 % d’ATB, et transporte-le au laboratoire en le maintenant à 4 °C.
- Coupe l’échantillon biopsique en petits morceaux à l’aide d’une lame de scalpel et dépose-les dans une boîte de Pétri de 35 mm recouverte de milieu de culture. Incube à 38,5 °C sous humidité saturée avec 5 % de CO₂.
- Renouvelle le milieu de culture toutes les 48 heures jusqu’à ce que les cellules atteignent la confluence, afin de prévenir toute contamination.
- Retire le milieu de culture de la plaque conflue et ajoute 1 mL de trypsine-EDTA à 0,25 % dans une boîte de Pétri de 35 mm pendant 2 minutes.
- Pour inactiver la trypsine, ajoute 2 mL de milieu de culture cellulaire. Transfère la suspension cellulaire dans un tube de 15 mL et centrifuge à 200 x g pendant 10 minutes à température ambiante (≈ 25 °C).
- Élimine le surnageant et resuspende le culot cellulaire dans 10 mL de milieu de culture. Passe la culture de fibroblastes tous les 5 jours.
- Cryopréservé les fibroblastes en resuspendant le culot cellulaire dans 1 mL de solution de cryoconservation. Transfère la suspension cellulaire dans des cryotubes, place-les à -80 °C dans un contenant de congélation à débit contrôlé pendant 18 heures, puis transfère-les dans un réservoir d’azote liquide (-196 °C) jusqu’à utilisation. Après la cryoconservation des fibroblastes, la manipulation cellulaire peut être interrompue et reprise uniquement au moment de la synchronisation du cycle cellulaire.
- Dégèle et cultive les fibroblastes 1 à 2 semaines avant leur utilisation pour la iSCNT.
3. Synchronisation du cycle cellulaire
- Synchroniser le cycle cellulaire par confluence en phase G0/G1.
- Retirer le milieu de culture de la plaque conflue et ajouter 1 mL de trypsine-EDTA à 0,25 % dans une boîte de Pétri de 35 mm pendant 2 min dans l'incubateur à CO₂ à 38,5 °C. Ajouter 2 mL de milieu de culture pour inactiver la trypsine.
- Transférer la suspension cellulaire dans un tube de 15 mL et centrifuger à 200 x g pendant 10 min.
- Retirer le surnageant et resuspendre le culot cellulaire dans 1 à 3 mL de milieu de culture cellulaire pour la iSCNT.
4. Collecte des ovocytes
- Prélever les ovaires de génisses ou de vaches immédiatement après l'abattage et les transporter au laboratoire dans un thermos contenant un milieu de transport, en maintenant une température de 25-30 °C.
- Laver les ovaires deux fois avec le milieu de culture et les placer dans un bécher dans un bain d'eau à 38,5 °C.
- Aspirer le liquide folliculaire des follicules mesurant 2-8 mm de diamètre à l’aide d’une aiguille de calibre 18 fixée à une seringue de 10 mL contenant le milieu H-TALP.
- Transférer le liquide folliculaire aspiré dans un tube conique de 50 mL et le laisser reposer pendant au moins 15 minutes dans un bain d’eau à 38,5 °C.
5. Maturation et dénudation des ovocytes
- Après 15 min, transférer délicatement tout le culot à l’aide d’une pipette Pasteur en plastique dans une boîte de Pétri (100 × 15 mm).
- Utiliser un microscope stéréoscopique pour sélectionner les complexes cumulus-oocyte (CCO) présentant au moins trois couches compactes de cellules du cumulus et correspondant aux grades I à III (Tableau 1)19.
- Laver les CCO trois fois avec du H-TALP demi-concentré, puis deux fois avec le milieu de maturation in vitro.
- Transférer 20 à 25 CCO dans chaque goutte de 100 µL de milieu de maturation in vitro recouverte d’huile minérale. Incuber à 38,5 °C dans une atmosphère contenant 5 % de CO₂ et à humidité saturée pendant 20 à 22 h.
- Éliminer les cellules du groupement de CCO en les pipetant doucement dans 200 µL de solution d’hyaluronidase pendant 2 min.
- Laver les ovocytes pour éliminer les cellules du cumulus dans 2 mL de milieu H-TALP.
- Au microscope stéréoscopique, sélectionner les ovocytes présentant l’expulsion du premier corps polaire (métaphase II - MII) pour les étapes suivantes.
6. Suppression de la zone pellucide, énucléation et reconstruction d'ovocytes sans zone pellucide
- Incuber les ovocytes au stade MII dans une goutte de 100 µL de solution de pronase à 38,5 °C pendant 1 à 2 min. Observer au stéréomicroscope jusqu’à ce que la zone pellucide commence à s’amincir.
- Récupérer immédiatement les ovocytes et les placer dans un milieu de culture supplémenté avec 20 % de SFB afin d’inactiver la pronase.
- Incuber les ovocytes dépourvus de zone pellucide dans un milieu SOF contenant 0,4 µg/mL de démécocline pendant 20 min pour induire une protrusion cytoplasmique contenant de l’ADN, suivie d’une deuxième incubation de 20 min dans le même milieu supplémenté avec 10 µg/mL de Hoechst.
- Transférer les ovocytes sans zone pellucide dans des gouttes de H-TALP et effectuer l’énucléation à l’aide de micromanipulateurs fixés à un microscope inversé.
- Placer l’ovocyte à côté de la pipette de maintien.
- Faire pivoter l’ovocyte jusqu’à ce que la protrusion soit positionnée à la position trois heures, puis aspirer la protrusion avec 5 à 10 % du cytoplasme à l’aide d’une pipette d’injection à embout émoussé de 25 µm.
- Confirmer l’absence réussie du noyau en observant le cytoplasme aspiré sous lumière ultraviolette (Figure 2).
PRÉCAUTION : L’exposition des ovocytes aux colorants d’ADN et à la lumière ultraviolette endommage le matériel génétique et induit un stress oxydatif. Minimiser le temps d’exposition.
7. Fusion cellulaire
- Assembler la chambre de fusion sous un microscope stéréoscopique et la remplir avec 2 mL de milieu de fusion à pH 7.
- Dans une boîte de Pétri de 60 mm, préparer cinq gouttes de 100 µL et une goutte de 30 µL de H-TALP, puis ajouter 50 µL de PHA.
- Ajouter 5 µL de fibroblastes à la goutte de 30 µL de H-TALP, sélectionner les cellules uniformes et réfractiles, puis les transférer dans une goutte de 100 µL de H-TALP.
- Transférer les ovocytes énucléés dans une goutte de 100 µL de H-TALP.
- Exposer l'ovocyte à la goutte de PHA pendant 4 s, le placer sur une cellule et confirmer l'adhérence des deux. Ensuite, transférer le complexe dans une goutte de TALP-H exempte de tout contenu.
- Une fois l'adhérence entre l'ovocyte et la cellule confirmée, transférer le couple dans une plaque contenant 2 mL de milieu de fusion afin de permettre leur décantation. Puis, placer le complexe dans la chambre de fusion entre les électrodes, en positionnant la cellule à la position six ou douze heures.
ATTENTION : Les tampons d'activation utilisés lors de l'électrofusion contiennent de l'ionomycine, qui perturbe l'homéostasie calcique cellulaire. Les champs électriques à haute tension présentent un risque de choc électrique ou d'arc si l'équipement est humide ou manipulé de façon inappropriée. - Réaliser la fusion à l’aide d’une chambre de microfusion dotée d’un écartement d’électrodes de 0,2 mm. À l’aide d’un électroporateur, appliquer une série d’impulsions unique composée de deux impulsions unidirectionnelles en courant continu à 0,72 kV/cm, chaque impulsion durant 30 µs avec un intervalle de 0,1 s entre les impulsions.
- Après l’application de l’impulsion, transférer chaque paire ovocyte-cellule individuellement dans des microgouttes de 5 µL de SOF supplémenté avec 2,5 % de FBS, puis les cultiver à 38,5 °C dans une atmosphère à 5 % de CO₂.
- Évaluer la fusion individuellement après 30 min sous un microscope stéréoscopique.
- Soumettre les structures non fusionnées à un second cycle de fusion.
- Considérer les complexes fusionnés comme des embryons reconstitués dépourvus de zone pellucide et les incuber pendant 2 h jusqu’à l’activation (période de reprogrammation).
8. Activation de l'ovocyte et culture d'embryons
- Incuber les structures reconstituées dans des gouttes de 100 µL de milieu H-TALP contenant 5 µM d'ionomycine pendant 4 min.
- Laver les structures reconstituées dans quatre gouttes de 100 µL de milieu H-TALP.
- Incuber les structures reconstituées dans des gouttes de 100 µL de milieu SOF contenant 2 mM de 6-DMAP pendant 3 h.
- Laver les structures reconstituées dans quatre gouttes de 100 µL de milieu SOF.
- Produire des plaques de micropuits à l'aide d'une capillaire en verre chauffée légèrement pressée sur le fond d'une boîte de Pétri de 35 × 10 mm. Créer entre 20 et 25 micropuits, chacun ayant un diamètre de 500 µm et une profondeur de 250 µm20.
- Placer les embryons reconstitués individuellement dans les micropuits modifiés, les recouvrir de 100 µL de milieu SOF, puis finalement de 3 mL d'huile minérale. Placer les microplaques dans un incubateur à trois gaz contenant 5 % de CO₂, 5 % de O₂ et 90 % de N₂ pendant 7 jours.
Résultats
Les résultats ont été analysés à l'aide du logiciel R (v.4.5.2). Les taux de clivage et de blastocyste ont été comparés entre les paires (cerf/bovin contre bovin/bovin) en utilisant le test exact de Fisher. Dix répétitions ont été réalisées : quatre pour la paire cerf/bovin et six pour la paire bovin/bovin. De plus, pour toutes les analyses, le seuil de significativité a été fixé à 5 %.
Durant le test, 472 ovocytes de bovin obtenus auprès d'un abattoir local ont été utilisés comme récipients cytoplastiques. Toutefois, après maturation in vitro et électrofusion ultérieure, 73 structures n'ont pas fusionné et ont été exclues des étapes suivantes, ce qui a donné 399 structures karyoplaste/cytoplaste correctement fusionnées. Sur ce total, les paires suivantes (karyoplaste/cytoplaste) ont été utilisées : quatre répétitions cerf/bovin (n = 175) et six répétitions bovin/bovin (n = 224) (Tableau 2).
Afin d'évaluer l'impact de la TNCi, des embryons reconstitués sans zone pellucide ont été cultivés dans des micropuits jusqu'au jour 7. Des microphotographies représentatives de morula et de blastocyste sans zone pellucide sont présentées dans la Figure 3.
Tableau 2 présente les taux de clivage et de blastocyste obtenus dans cette expérience. Le taux de clivage ne présentait aucune différence significative (P = 0,74) entre les groupes (paires cerf/bovin et bovin/bovin). En revanche, concernant le taux de formation de blastocystes, une différence statistique (P = 0,02) a été observée, avec un pourcentage plus élevé dans le groupe de clonage intraspécifique. Toutefois, il est important de souligner la limite de puissance pour ce type d'expérience, dans laquelle le nombre de clones interspécifiques est généralement faible.
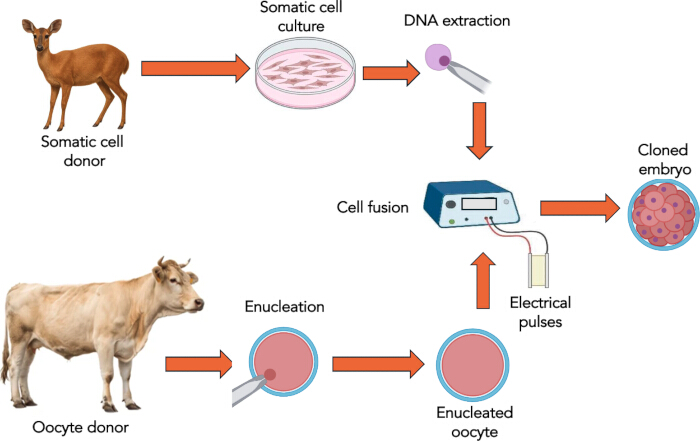
Figure 1 : Étapes schématiques du transfert nucléaire somatique interspécifique. Les vaches sont utilisées comme donneuses de cytoplasmes, tandis que les cerfs sont utilisés comme donneurs de karyoplasmes. Après obtention de l'embryon cloné, celui-ci peut être transféré à des femelles receveuses ou cryopréservé en vue d'un transfert ultérieur. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
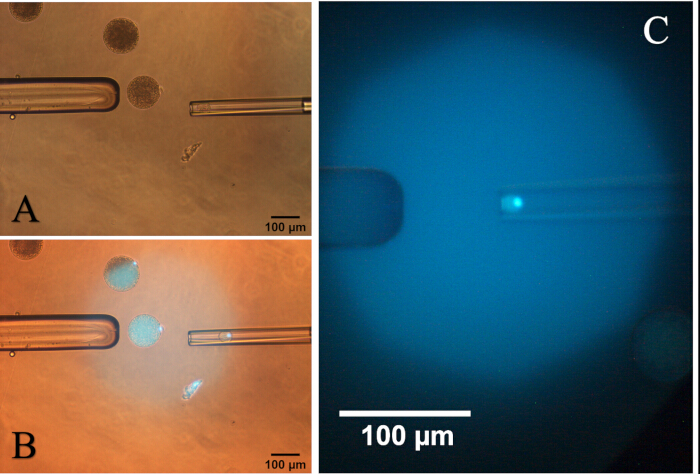
Figure 2 : Photomicrographie d'un ovocyte activé présentant une protrusion cytoplasmique. (A) Rotation de l'ovocyte afin de positionner la protrusion à la position de trois heures. (B) Aspiration de la protrusion avec 5 à 10 % du cytoplasme sous exposition à la lumière ultraviolette. (C) Cytoplasme et sa protrusion dans la pipette d'aspiration sous lumière ultraviolette. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
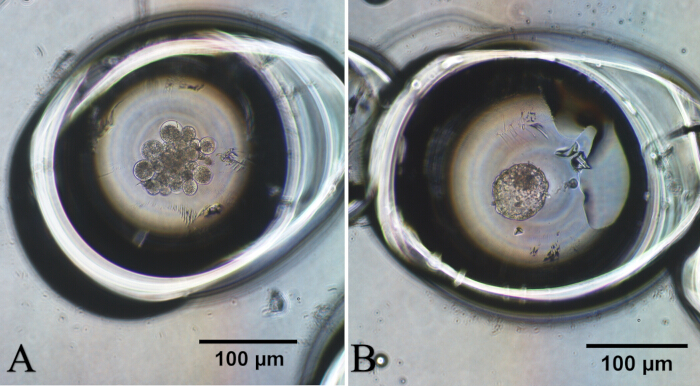
Figure 3 : Photomicrographie d'embryons de cerf produits par transfert nucléaire somatique interspécifique. (A) Embryon cloné au stade de morula. (B) Embryon cloné au stade de blastocyste. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Grade | Nombre de couches de cumulus | Expansion du cumulus |
| I | > 3 | Couverture complète du cumulus avec plusieurs couches cellulaires compactes et légèrement lâches |
| II | 2 - 3 | Légère expansion des couches cellulaires externes |
| III | 1 | Couverture partielle du cumulus et couches cellulaires lâches |
| IV | 0 | Absence de cumulus |
Tableau 1 : Classification des ovocytes bovins destinés à être énucléés et utilisés comme cytoplastes lors du transfert nucléaire somatique interspécifique (adapté de Aguila et al.)19.
| Groupes (carioplaste/cytoplaste) | Nombre de réplicats | Nombre d'embryons reconstitués | Nombre de clivages (%) | Nombre de blastocystes (%) |
| cerf/bovin | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| bovin/bovin | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Des lettres différentes dans la même colonne indiquent une différence statistique. | ||||
| Taux de clivage : P = 0,74 | ||||
| Taux de blastocyste : P = 0,02 | ||||
Tableau 2 : Développement in vitro d'embryons clonés de cerf roux utilisant un cytoplasme bovin. Dix répétitions ont été réalisées : quatre avec des paires cerf/bovin et six avec des paires bovin/bovin. Les taux de clivage et de blastocyste ont été calculés en utilisant le nombre d'embryons reconstitués comme dénominateur.
Discussion
Il est déjà bien établi que le génome d'espèces menacées peut être reprogrammé à l'aide d'ovocytes d'animaux domestiques, en particulier de bovins et de porcs, qui constituent la source la plus abondante de cytoplastes21. L'un des progrès les plus importants réalisés en iSCNT a été le clonage de la chèvre des Pyrénées (Capra pyrenaica pyrenaica), une sous-espèce disparue après la mort de son dernier individu connu. Les embryons reconstitués ont été obtenus en fusionnant des cellules épithéliales de chèvre des Pyrénées avec des ovocytes de chèvre domestique (Capra hircus). Les auteurs ont obtenu la naissance d'une femelle, sans anomalies morphologiques externes apparentes. Toutefois, la descendance présentait une insuffisance respiratoire sévère et est décédée quelques minutes après la naissance22.
L'un des candidats les plus solides pour une « résurrection » est le mammouth laineux (Mammuthus primigenius). Pour que le clonage soit possible, la disponibilité de tissus viables contenant des noyaux identifiables est fondamentale, ce qui s'avère difficile pour une espèce disparue il y a environ 10 000 ans. Même ainsi, les corps de mammouths découverts dans la couche gelée du sol répondent aux exigences minimales pour la TNICi23. Toutefois, les espèces en voie de disparition pourraient constituer des candidates plus appropriées pour bénéficier de l'utilisation de cette technique.
Le taux de segmentation observé dans notre étude a démontré que l'activation et la première division embryonnaire n'étaient pas affectées par la combinaison interspécifique du noyau et du cytoplasme. Pendant la phase de reconstruction, la manipulation et la fusion des structures (caryoplasme/cytoplasme) ont présenté la même facilité technique dans les deux groupes, suggérant une compatibilité structurelle entre les espèces. En ce qui concerne le taux de blastocyste, les résultats suggèrent que, bien que la reconstruction et l'activation précoce de l'embryon iSCNT ne constituent pas un facteur limitant, il existe une incompatibilité nucléocytoplasmique qui se manifeste aux stades ultérieurs du développement, probablement liée à un reprogrammation épigénétique incomplète ou à la transition maternelle-zygotique affectant la capacité de l'embryon hybride à atteindre le stade blastocyste24. L'efficacité de l'iSCNT tend à être plus élevée lorsque les caryoplastes et les cytoplastes proviennent d'espèces phylogénétiquement proches, car la production naturelle d'une descendance hybride viable indique un certain degré de compatibilité nucléocytoplasmique entre les deux espèces23. Ainsi, la SCNT intersous-espèce a déjà permis d'obtenir une descendance saine. Les auteurs ont utilisé un cytoplasme de chienne et un fibroblaste de loup, puis transféré les embryons à 12 femelles, ce qui a conduit à la naissance d'un individu25.
L'utilisation de la TNCi fait face à une importante « limitation énergétique » en ce qui concerne son efficacité biologique et développementale, laquelle diminue fortement à mesure que la distance évolutive entre le noyau donneur et l'ovocyte receveur augmente. Bien qu'elle réussisse entre des espèces étroitement apparentées (par exemple, le bétail domestique et le gaur)26, elle échoue systématiquement à produire des descendants viables ou des lignées cellulaires embryonnaires stables lorsqu'on tente de franchir des frontières taxonomiques plus éloignées.
Le clonage représente un outil important pour les programmes d'élevage animal et de conservation, car il permet la multiplication d'individus génétiquement supérieurs, soutient la production d'animaux transgéniques et contribue à la préservation à long terme de ressources génétiques précieuses grâce aux banques de gènes. Néanmoins, l'adoption du clonage dans les programmes d'élevage est encore limitée par le faible nombre d'animaux vivants obtenus par rapport au nombre d'embryons transférés18. Les approches actuelles de production d'embryons clonés sont généralement divisées en deux catégories : le clonage conventionnel et le clonage sans zone pellucide (ZP-free). Dans l'approche conventionnelle, un micromanipulateur est nécessaire pour éliminer le noyau de l'ovocyte et introduire la cellule somatique donneuse dans le cytoplasme receveur26. Contrairement au clonage conventionnel, la méthode sans zone pellucide est réalisée sans micromanipulation27. Les résultats obtenus dans notre étude étaient très similaires à ceux observés avec l'utilisation de la iSCNT, tant pour le taux de clivage que pour la production de blastocystes20,21.
Enfin, en tenant compte des différentes étapes de cette procédure, il est important de souligner les points critiques et les solutions pratiques aux problèmes rencontrés. En ce qui concerne la suppression de la ZP, le clonage sans zone pellucide présente plusieurs avantages, notamment une manipulation facilitée, un rapport coût-efficacité favorable et un taux de naissances vivantes par embryon transféré relativement amélioré28. La confirmation de l'élimination complète du noyau (énucléation), sans induire de dommages fatals au cytoplasme, détermine si la structure reconstruite pourra correctement soutenir le développement d’un embryon cloné. Bien que l'exposition aux UV soit connue pour avoir des effets nocifs29, elle est couramment utilisée dans la majorité des laboratoires de clonage. Enfin, la culture d'embryons sans zone pellucide se fait sans la protection de l'enveloppe glycoprotéique externe, ce qui entraîne des problèmes majeurs tels qu'une grande fragilité physique lors de la manipulation et une dissociation des blastomères30.
En conclusion, les résultats obtenus dans notre étude doivent être interprétés comme une preuve préliminaire de la faisabilité technique du protocole de transfert nucléaire interspécifique dans la combinaison cerf/bovin, plutôt que comme une preuve définitive de son efficacité productive. Ainsi, des études supplémentaires impliquant un plus grand nombre de réplicats sont nécessaires pour confirmer ces résultats.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à divulguer.
Remerciements
Ce travail a été soutenu par la Fondation cearense pour le soutien au développement scientifique et technologique (FUNCAP, Fortaleza, Brésil, numéro de subvention 11212233/2022) et les Instituts nationaux de science et technologie (INCT/CNPq, numéro de subvention 406866/2022-8).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Aiguille d'aspiration (18G) | LABIMPORT | 353601 | Aiguille jetable, coupe courte |
| 6-diméthylaminopurine (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiotique–antimycosique | Gibco, Thermo Fisher Scientific | 15240062 | |
| albumine sérique bovine | Sigma-Aldrich | A9647 | |
| Chlorure de calcium dihydraté (CaCl2·2H2O | Sigma-Aldrich | C7902 | |
| Flacon de culture cellulaire T-25 | Corning | 430639 | |
| CellTram Microinjecteur | Eppendorf | 5196 000.021 | |
| Centrifuger | Eppendorf | 5702 | Utilisé pour la centrifugation des cellules à 200 × g pendant 10 minutes pour former un culot et laver les échantillons avant les procédures de transfert nucléaire. |
| Tubes à centrifuger (50 mL) | Corning | CLS430291 | |
| Cryotubes (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cystéamine | Sigma-Aldrich | M9768 | |
| Démécolcine | Sigma-Aldrich | D1925 | |
| Eau distillée. | _ | _ | |
| DMSO (congélation des cellules) | Sigma-Aldrich | D2650 | 10 % de cryoprotecteur pour la cryoconservation des cellules donneuses |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Pipette d'énucleation (20–25 µm ID | Narishige | GD-1 | |
| Facteur de croissance épidermique (EGF) | Sigma-Aldrich | E4127 | |
| Acides aminés essentiels BME | Sigma-Aldrich | M5550 | |
| Œstradiol | Sigma-Aldrich | E8875 | |
| EVE Incubateur (5 % O₂)2, 5 % CO₂2, 90 % N2) | médical WTA | REF. 23578 | |
| Sérum de veau fœtal (SVF) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Capillaire en verre avec filament | Narishige | GD-1 | Cette capillarité en verre est utilisée pour créer des micropuits dans la boîte de Pétri |
| Plaque chauffante | médical WTA | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (colorant de l'ADN) | Sigma-Aldrich | B2261 | |
| Pipette de maintien (120 μm DO | Narishige | GD-1 | |
| Hyaluronidase | Sigma-Aldrich | H4272 | |
| Microscope inversé ECLIPSE | Nikon | TE2000-U | |
| Ionomycine (ionophore du calcium A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Panneau de flux laminaire Isocide | Esco | 2120765 | Périmètre de flux laminaire assurant un environnement de travail stérile pour les procédures de culture d'embryons et de cellules. |
| L-glutamine | Sigma-Aldrich | G8540 | |
| Dewar de stockage à azote liquide | Nitroagro | Varie | |
| Sulfate de magnésium (MgSO4) | Sigma-Aldrich | M2643 | |
| Milieu de fusion au mannitol (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| Système de micromanipulateur | Narishige | MM-89 / TransferMan 4r | |
| Tireur de micropipettes | Narishige | Narishige PC-100 | |
| Micropipettes (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Série Recherche Plus | |
| Chambre de microfusion | Eppendorf | 12816532 | Est un accessoire spécialisé à entretoise de 0,2 mm conçu pour des applications d'électroporation |
| Huile minérale (testée sur embryons) | Sigma-Aldrich | M8410 | |
| Multiporateur | Eppendorf | 4308 000.015 | |
| Myo-inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Acides aminés non essentiels MEM | Sigma-Aldrich | M7145 | |
| Pentabiotique | Zoetis | 10005048 | Flacon de 2 400 000 UI. |
| Boîte de Pétri 35 mm (testée sur embryons) | Corning | 430165 | |
| Boîte de Pétri de 60 mm (testée sur embryons) | Corning | 430196 | |
| Phénol rouge | Sigma-Aldrich | P0290 | |
| Embouts de pipette 1000 µL | Eppendorf | 9401030 | |
| Embouts de pipette 200 µL | Eppendorf | 94052300 | |
| Pointes de pipette sans filtre (0,5–10 µL) | Axygen | T-300 | |
| Poly(alcool vinylique) (PVA) | Sigma-Aldrich | P8136 | |
| Pronase (protéase issue de S. griseus) | Sigma-Aldrich | P8811 | |
| Lactate de sodium | Sigma-Aldrich | L7900 | |
| pyruvate de sodium | Sigma-Aldrich | P4562 | |
| Stéréomicroscope | Nikon | SMZ800 | |
| Eau stérile testée pour embryon | Sigma-Aldrich | W3500 | |
| Filtre stérile (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Incubateur à trois gaz (5 % O₂,2, 5 % CO₂2, 90 % N2) | médical WTA | REF. 23578 | |
| Trypsine-EDTA (0,25 %) | Gibco / Thermo Fisher | 25200056 | |
| Eau ultrapureáter | Sigma-Aldrich | W3500 | |
| Lampe UV / Module de fluorescence | Leica / Olympus | Varie | Exposition bref à la lumière UV pour vérifier l'énucléation ; minimiser la phototoxicité |
Références
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible