Cette étude démontre que le miR-1298 est étroitement associé à l'envahissement et à la migration dans le CCR et pourrait agir comme un suppresseur tumoral en inhibant la progression du CCR, soulignant son potentiel en tant que cible thérapeutique novatrice pour le traitement du CCR.
Article de recherche
Rôle de l'axe miR-1298/protéine morphogénétique osseuse 7 dans le cancer colorectal
* These authors contributed equally
Dans cet article
Résumé
Résumé
L'incidence du cancer colorectal (CCR) a augmenté ces dernières années. Nous avons exploré la signification clinique et les mécanismes moléculaires de miR-1298 dans le CCR. Un total de 85 patients atteints de CCR ont été inclus. Tous les niveaux géniques ont été évalués par RT-qPCR. Dans les cellules de CCR, les niveaux de miR-1298 et de la protéine morphogénétique osseuse 7 (BMP7) ont été modulés par transfection cellulaire. La cible de miR-1298 a été prédite par analyse bioinformatique et identifiée à l’aide d’un système rapporteur double luciférase. La fonction des cellules de CCR a été évaluée à l’aide du test CCK-8, du test Transwell et de la cytométrie en flux. La corrélation entre miR-1298 et BMP7 dans les tissus de CCR a été analysée à l’aide de la corrélation de Pearson. miR-1298 était fortement sous-régulé dans le CCR et associé à des caractéristiques clinicopathologiques malignes. Dans les cellules de CCR, miR-1298 inhibait la prolifération, la migration et l’intrusion, et augmentait l’apoptose. BMP7 constituait une cible en aval de miR-1298 et était négativement corrélée à miR-1298. La surexpression de BMP7 inversait partiellement l’effet suppresseur de miR-1298 sur la prolifération, la migration et l’intrusion des cellules de CCR, ainsi que son effet promoteur sur l’apoptose. miR-1298 était associé à l’intrusion et à la migration et pourrait supprimer la progression du CCR. BMP7 pourrait être un médiateur fonctionnel potentiel de miR-1298 dans le CCR.
Introduction
Le cancer colorectal (CCR) constitue un fardeau sanitaire mondial important, figurant parmi les principales causes de décès liés au cancer dans le monde entier1. Le CCR prend naissance dans les cellules épithéliales du côlon et du rectum, se développant généralement progressivement selon un processus multi-étapes appelé progression de l'adénome au cancer, un processus qui s'étend sur plusieurs années2. Les conséquences du CCR sont étendues et multiples. Outre le risque de décès, le CCR peut également avoir un impact significatif sur la vie quotidienne des patients. Le traitement nécessite habituellement une chirurgie majeure, pouvant entraîner des complications telles qu'une colostomie permanente, un dysfonctionnement intestinal, ou des troubles sexuels et urinaires3. De plus, le fardeau financier associé à la chimiothérapie, aux thérapies ciblées et à la surveillance à long terme exerce une pression considérable tant sur les patients que sur le système de santé. Par conséquent, l'étude des mécanismes moléculaires sous-jacents au CCR demeure une priorité essentielle dans le domaine de la santé publique.
Dans le cancer colorectal (CCR), la dysrégulation de microARN (miARN) spécifiques constitue une caractéristique marquante de la tumorigenèse et influence des processus clés4. L'identification de ces miARN différentiellement exprimés renforce non seulement notre compréhension de la pathogenèse du CCR, mais offre également des pistes prometteuses pour de nouveaux biomarqueurs diagnostiques et des cibles thérapeutiques. Parmi les nombreux miARN associés au cancer, le miR-1298 s'est imposé comme une cible majeure de recherche. Des données récentes indiquent que le miR-1298 agit fréquemment comme un suppresseur de tumeur dans divers cancers. Par exemple, dans le cancer du poumon non à petites cellules (CPNPC), il inhibe la croissance et l'invasion cellulaires en ciblant des voies oncogéniques clés5. De même, dans les tumeurs cérébrales, sa sous-expression est associée au développement tumoral, tandis que sa restauration inhibe la progression de la tumeur6. Étant donné son rôle établi de suppresseur de tumeur dans d'autres cancers, le rôle spécifique du miR-1298 dans la carcinogenèse colorectale—en particulier ses cibles en aval et ses conséquences fonctionnelles dans le CCR—reste largement inexploré. Ce manque de connaissances est important, compte tenu du paysage moléculaire distinct du CCR par rapport à d'autres malignités.
La protéine BMP7 est une cytokine sécrétée, fonctionnellement polyvalente, appartenant à la superfamille du facteur de croissance transformant-β (TGF-β)7. Dans le cancer colorectal (CRC), BMP7 joue principalement un rôle promoteur de tumeur. L'expression de BMP7 est fréquemment augmentée dans les tissus et cellules de CRC8. BMP7 accroît l'invasion, la migration et les propriétés semblables à celles des cellules souches des cellules cancéreuses, probablement en activant des cascades de signalisation pro-invasives et en modulant le microenvironnement tumoral pour favoriser la migration9. Dans divers types de cancer, certaines miARN ont été identifiées comme répresseurs post-transcriptionnels directs de BMP7. Par exemple, le miR-137 cible BMP7 dans le cancer du poumon non à petites cellules (NSCLC) afin d'inhiber la prolifération cellulaire10. À la lumière de ces résultats, nous émettons l'hypothèse que BMP7 pourrait être impliquée dans le CRC. Cependant, il n'a pas encore été démontré expérimentalement que le miR-1298 cible directement BMP7 dans le CRC. De plus, aucune étude n'a caractérisé de manière exhaustive l'axe miR-1298/BMP7 dans le CRC en intégrant une validation mécanistique, un phénotypage fonctionnel et une corrélation clinique.
Par conséquent, nous avions pour objectifs : (1) d'étudier le profil régulateur de miR-1298 dans le CCR et son association avec les caractéristiques clinicopathologiques ; (2) de caractériser fonctionnellement les effets de miR-1298 sur la prolifération, l'apoptose, l'invasion et la migration cellulaires dans le CCR ; (3) de valider expérimentalement BMP7 comme cible de miR-1298 dans le CCR ; et (4) d'évaluer la valeur diagnostique et pronostique de miR-1298 chez les patients atteints de CCR. En combinant ces approches complémentaires, nous avons cherché à fournir une compréhension approfondie de l'axe miR-1298/BMP7 dans le CCR et à identifier de nouveaux biomarqueurs ainsi que des cibles thérapeutiques pour cette maladie.
Protocole
Cette étude a été approuvée par le comité d'éthique de l'hôpital neurologique de Wuhan (numéro d'approbation : 20220826). Tous les participants ont donné leur consentement éclairé par écrit avant leur inclusion. Cette étude a été réalisée conformément à la Déclaration d'Helsinki. Le consentement à la publication a été obtenu auprès de tous les participants dont les données ont été incluses. Les détails concernant les réactifs, les kits, les anticorps, les lignées cellulaires, les plasmides et l'équipement utilisés dans cette étude, y compris les fabricants et les références cataloguées, sont fournis dans le Tableau des matériaux.
Patients et échantillons
De mai 2022 à août 2024, nous avons recueilli des échantillons appariés de tissus cancéreux et de tissus non cancéreux adjacents provenant de 85 patients atteints de CCR. Aucun des participants n'avait d'antécédent de cancer, de chimiothérapie ou de radiothérapie. En outre, 71 sujets sains subissant un examen médical ont été inclus dans cette étude.
Prognostic
Les valeurs critiques pour les groupes à expression élevée ou faible de miR-1298 ont été déterminées à partir du niveau d'expression médian dans les échantillons de tissu de CCR. La période de suivi était de 12 mois, le suivi étant effectué par téléphone ou par réexamen. L'événement terminal était le décès. Parmi les 85 patients, 14 décès ont été enregistrés pendant la période de suivi, et il n'y avait aucun patient censuré.
Culture cellulaire et transfection des cellules
La lignée cellulaire normale de colon humain FHC, ainsi que les lignées cellulaires de CCR humain SW480 et HCT-116, ont été obtenues. Les cellules ont été cultivées dans un milieu de type Dulbecco modifié (DMEM) complété avec 10 % de sérum bovin fœtal (FBS). Un agoniste ou un inhibiteur de miR-1298 a été transfecté dans les cellules SW480 et HCT-116 à l’aide de Lipofectamine 3000. Ensuite, l’agoniste de miR-1298 et le pcDNA3.1-BMP7 (OE-BMP7) ou le vecteur pcDNA3.1 (OE-NC) ont été co-transfectés dans les cellules SW480 et HCT-116. Les étapes spécifiques étaient les suivantes : les cellules ont été cultivées à 37 °C avec 5 % de CO₂ jusqu’à ce qu’elles atteignent une confluence de 70 % à 80 %. Les cellules ont été semées à raison de 5 x 10⁴ cellules par puits dans une plaque de 24 puits et incubées toute la nuit. Un mélange de transfection contenant 250 µL d’Opti-MEM, 1,25 µL de Lipofectamine 3000, 1,5 µL de P3000, 50 nM d’ARNmi et 1 µg de plasmide a été préparé et incubé pendant 15 min avant d’être ajouté aux cellules. Le milieu a été remplacé par du DMEM complet après 6 h, et les échantillons ont été collectés après 48 h.
Analyse bioinformatique
La cible de la miR-1298 a été prédite à l'aide de la base de données TargetScan 8.0 (https://www.targetscan.org/vert_80/). Le site de liaison prédit entre la miR-1298 et BMP7 a ensuite été identifié.
Essai rapporteur double luciférase
Le type sauvage et le mutant 3′Les séquences UTR de BMP7 contenant le site de liaison prédit pour le miR-1298 ont été clonées dans le vecteur rapporteur double luciférase pmirGLO afin de générer respectivement les plasmides rapporteurs BMP7 Wt et BMP7 Mut. Pour le dosage de la luciférase, les cellules SW480 et HCT-116 ont été co-transfectées soit avec le plasmide BMP7 Wt, soit avec le plasmide BMP7 Mut, en combinaison avec un mimétique du miR-1298, un inhibiteur de ce microARN ou leurs contrôles négatifs correspondants. Les étapes spécifiques étaient les suivantes : les cellules ont été semées dans des plaques de 24 puits à une densité de 4 x 10⁴ cellules par puits. Chaque puits a été co-transfecté avec 0.8 µg de plasmide rapporteur, 50 nM de mimétique de miR-1298, d'inhibiteur ou de leur contrôle négatif correspondant, et de Lipofectamine 3000. Après 8 h, le milieu de culture a été aspiré et les cellules ont été lysées par ajout de 100 µL de tampon de lyse passive (PLB) pendant 15 min. A 20 µL un aliquot du lysat a été transféré dans une plaque de dosage blanche, 50 µL de LAR II a été ajouté, et l'activité de la luciférase de luciole a été mesurée. Un supplémentaire 50 µL Arrêter&Le réactif #38;Glo a été ajouté pour mesurer la luciférase Renilla. Enfin, la normalisation des données a été effectuée.
RT-qPCR
L'ARN a été extrait de cellules cultivées, de sérum et de tissus de CCR congelés à l'aide du réactif TRIzol. Brièvement, les cellules ont été lysées directement dans 1 mL de TRIzol par boîte de 10 cm ; les fragments de tissus ont été homogénéisés dans du TRIzol sur de la glace. Après séparation des phases au chloroforme et précipitation à l'isopropanol, les culots d'ARN ont été lavés avec de l'éthanol à 75 %, séchés à l'air et dissous dans de l'eau exempte de RNase. La pureté et la concentration de l'ARN ont été déterminées à l'aide d'un spectrophotomètre à microvolume (A260/A280 = 1,8–2,1, A260/A230 > 2,0). Pour l'analyse des ARNm, l'ADN génomique résiduel a été éliminé à l'aide de gDNA Eraser, et 500 ng d'ARN ont été rétrotranscrits à l'aide du Kit de réactifs PrimeScript RT avec oligo(dT) et hexamères aléatoires (37 °C pendant 15 min et 85 °C pendant 5 s). Pour l'analyse des miARN, 100 ng d'ARN ont été rétrotranscrits avec un amorçage en boucle spécifique pour miR-1298-5p ou U6 à l'aide du Kit de synthèse de la première chaîne Mir-X miRNA (16 °C pendant 30 min, 42 °C pendant 30 min et 85 °C pendant 5 s). Des témoins sans RT et sans matrice ont été inclus à chaque essai. L'ADNc a été dilué de manière appropriée et stocké à −80 °C jusqu'à la qPCR. Les niveaux de miR-1298 et de BMP7 ont été quantifiés à l'aide de la chimie SYBR Green. U6 et GAPDH ont été utilisés comme contrôles endogènes pour la normalisation des miARN et des ARNm, respectivement. L'expression relative a été calculée selon la méthode comparative 2−ΔΔCt. Les séquences des amorces (5′–3′) étaient les suivantes : miR-1298-sens : TCGGCAGGTTCATTCGGCTGTC, antisens : CTCAACTGGTGTCGTGGA ; U6-sens : CTCGCTTCGGCAGCACA, antisens : AACGCTTCACGAATTTGCGT ; BMP7-sens : CAAGAACCAGGAAGCCCTGC, antisens : TTCTTACAGGCCTGCCTCTGG ; et GAPDH-sens : GACATGCCGCCTGGAGAAAC, antisens : AGCCCAGGATGCCCTTTAGT. Les conditions de réaction pour la qPCR étaient les suivantes : 95 °C pendant 2 min, 35 cycles de 95 °C pendant 30 s, 60 °C pendant 30 s et 72 °C pendant 60 s. Les matrices d'ADNc ont été diluées en série (5 fois) pour générer des courbes standards. L'efficacité d'amplification E a été calculée à l'aide de la formule E = (10-1/pente-1) x 100 %. L'efficacité d'amplification des amorces a été calculée comme suit : EmiR-1298 = 102,1 %, EBMP7 = 96,3 %, EGAPDH = 100,3 %, EU6 = 99,8 %. Toutes les amorces se situaient dans la plage d'efficacité acceptable de 90–110 %. Toutes les expériences de RT-qPCR comprenaient trois réplicats biologiques indépendants, chacun avec 3 réplicats techniques. La stabilité de U6 et de GAPDH a été évaluée à l'aide de l'algorithme geNorm. Les valeurs M des deux gènes étaient inférieures au seuil recommandé de 1,5, confirmant leur pertinence.
Dosage par le kit de comptage cellulaire-8 (CCK-8)
Les cellules SW480 et HCT-116 ont été semées dans des plaques de 96 puits à raison de 2 x 10³ cellules/puit dans 100 µL de DMEM complet et incubées pendant 24 h. À 48 h post-transfection, les plaques ont été incubées pendant 1 h à 37 °C. L'absorbance à 450 nm a été mesurée à l'aide d'un lecteur de microplaques. Six puits réplicats ont été utilisés par groupe, et un témoin contenant le milieu plus le CCK-8 sans cellules a été soustrait.
Cytométrie en flux
L'apoptose a été évaluée par cytométrie en flux à l'aide d'un kit de détection de l'apoptose Annexine V-FITC/PI. À 48 h post-transfection, les cellules SW480 et HCT-116 ont été récoltées par trypsination, lavées deux fois avec du PBS froid, puis resuspendues dans du tampon de liaison 1x à une concentration de 1 x 10⁶ cellules/mL. Des aliquotes de 1 x 10⁵ cellules ont été transférées dans des tubes FACS, colorées avec 5 µL d'Annexine V-FITC et 5 µL de PI pendant 15 min à température ambiante à l'abri de la lumière, puis diluées avec 400 µL de tampon de liaison avant l'acquisition. Des contrôles non colorés, monocolorés et traités à la staurosporine (témoins positifs) ont été inclus pour la compensation et le réglage des fenêtres d'analyse. Les données ont été analysées à l'aide du logiciel FlowJo (FlowJo 10.2).
Migration et invasion cellulaires
La migration et l'innovation cellulaires ont été évaluées à l'aide de chambres Transwell à 24 puits munies de membranes PET de 8 µm de diamètre de pore. Pour les essais d'innovation, la membrane supérieure a été préalablement recouverte de 50 µL de Matrigel à 37 °C pendant 2 h, puis réhydratée avec du DMEM sans sérum pendant 30 min avant la mise en culture ; les essais de migration ont omis cette étape de revêtement. Les cellules SW480 et HCT-116 transfectées ont été mises en condition dans du DMEM sans sérum pendant 12 h, puis 2 x 10⁴ cellules dans 100 µL de DMEM sans sérum contenant 0,1 % de BSA ont été mises en culture dans la chambre supérieure. La chambre inférieure a été remplie avec 600 µL de DMEM contenant 10 % de FBS, servant de chimioprotecteur. Après 24 h (migration) ou 48 h (innovation) à 37 °C, les cellules non migrées situées sur la surface supérieure ont été retirées à l’aide d’un coton-tige. Les cellules situées sur la surface inférieure ont été fixées avec du paraformaldéhyde à 4 % pendant 15 min, colorées avec du violet de crésyl à 0,1 % pendant 20 min, rincées, puis séchées à l’air. Cinq champs aléatoires par membrane ont été photographiés à un grossissement de 200x à l’aide d’un microscope inversé et comptés manuellement par deux observateurs indépendants.
Immunotransfert
Les protéines cellulaires totales ont été extraites en homogénéisant les cellules dans un tampon de lyse RIPA complété par un cocktail d'inhibiteurs de protéases. Les concentrations protéiques ont été déterminées à l'aide d'un kit d'analyse des protéines BCA. Des quantités équivalentes de lysats protéiques (50 µg) ont été séparées par électrophorèse sur gel de SDS-PAGE à 10 %, puis transférées sur des membranes en PVDF. Après blocage des sites de fixation non spécifiques avec de l'albumine de sérum bovin (BSA) à 2 %, les membranes ont été incubées avec des anticorps primaires dirigés contre BMP7 (1:1 000) et GAPDH (1:2 000) pendant 90 min à 37 °C. Après trois lavages avec du PBST, les membranes ont été incubées avec un anticorps secondaire conjugué à la peroxydase de raifort (HRP). Les bandes protéiques ont été visualisées à l'aide d'un réactif chimiluminescent ECL.
Analyse statistique
Les données ont été analysées à l'aide du logiciel SPSS 27.0. Toutes les valeurs sont exprimées en moyenne ± écart-type (ET), sauf indication contraire. Le test de Shapiro-Wilk a été utilisé pour vérifier la distribution normale. Les différences intergroupes entre les deux groupes ont été déterminées à l'aide d'un test t de Student non apparié bilatéral. La comparaison de l'expression de miR-1298 entre les tissus tumoraux du CCR et les tissus non cancéreux adjacents a été réalisée à l'aide d'un test t de Student apparié. Avant d'effectuer le test paramétrique, le test de Levene a été utilisé pour évaluer l'homogénéité des variances. Pour les comparaisons entre plusieurs groupes, les données paramétriques ont été analysées par une ANOVA à un facteur, avec le test HSD de Tukey pour les comparaisons par paires a posteriori. La corrélation entre miR-1298 et BMP7 dans les tissus de CCR a été évaluée à l'aide d'une analyse de corrélation de Pearson. Une valeur p < 0,05 a été considérée comme statistiquement significative.
Résultats
Le miR-1298 était fortement réduit dans le CRC
Dans les tissus de CRC, les niveaux de miR-1298 étaient inférieurs à ceux des tissus non cancéreux adjacents (Figure 1A). L'analyse des métastases ganglionnaires a révélé que les niveaux de miR-1298 étaient plus bas chez les patients présentant une métastase ganglionnaire que chez ceux sans métastase ganglionnaire (Figure 1B). Chez les patients atteints de CRC dont la taille de la tumeur était > 5 cm, le miR-1298 était significativement plus faible que chez les patients dont la taille de la tumeur était ≤ 5 cm (p = 0,017 ; Figure 1C). Le miR-1298 diminuait avec la progression du stade tumoral, avec des différences significatives entre le stade 1 et le stade 3 (p = 0,047) et entre le stade 1 et le stade 4 (p = 0,009 ; Figure 1D). Dans le sérum des patients atteints de CRC, le miR-1298 était fortement réduit (Figure 1E), et l'analyse de la courbe ROC a montré une AUC de 0,889, avec une sensibilité de 78,82 % et une spécificité de 83,10 % (Figure 1F).
Sur la base du niveau d'expression médian de miR-1298, les patients atteints de CCR ont été répartis en deux groupes : faible et forte expression. Chez les patients atteints de CCR, miR-1298 était étroitement associé au stade TNM (p < 0,001), taille de la tumeur (p = 0,003), métastases ganglionnaires (p = 0,003) et la différenciation tumorale (p = 0,035). Toutefois, le miR-1298 n'était pas associé à l'âge (p = 0,832) ou le sexe (p = 0.165) (Tableau 1). L'analyse de Kaplan-Meier a montré que les patients atteints de CCR présentant une faible expression de miR-1298 avaient une survie globale plus courte que ceux avec une expression élevée de miR-1298 (test du log-rank p = 0.039; Figure 1G). Une analyse de régression de Cox a indiqué qu'une expression réduite de miR-1298 pourrait constituer un indicateur pronostique potentiel chez les patients atteints de CCR (p = 0.035, Tableau 2).
Le miR-1298 supprimait la prolifération et favorisait l'apoptose dans les cellules de CCR
Dans les cellules SW480, la transfection avec un analogue ou un inhibiteur du miR-1298 modifiait efficacement l'expression du miR-1298, avec une différence significative entre les groupes inhibiteur NC et inhibiteur du miR-1298 (p = 0,005 ; Figure 2A). La surexpression du miR-1298 réduisait la viabilité cellulaire et favorisait l'apoptose, tandis que la suppression du miR-1298 augmentait la viabilité cellulaire et diminuait l'apoptose ; l'apoptose différait significativement entre les groupes inhibiteur NC et inhibiteur du miR-1298 (p = 0,008 ; Figure 2B,C). Dans les cellules HCT-116, la transfection modifiait de manière similaire l'expression du miR-1298 (p = 0,002 ; Figure 2D), et des différences significatives entre les groupes inhibiteur NC et inhibiteur du miR-1298 ont été observées pour la viabilité cellulaire (p = 0,007 ; Figure 2E) et l'apoptose (p = 0,005 ; Figure 2F).
Le miR-1298 supprime la migration et l'envahissement des cellules de CCR
La surexpression du miR-1298 a réduit le nombre de cellules SW480 et HCT-116 migratrices et invasives, tandis que l'inhibition du miR-1298 a augmenté la migration et l'envahissement cellulaires (Figure 3A–D). Chez les cellules SW480, le nombre de cellules invasives était nettement inférieur dans le groupe traité avec le mimétique du miR-1298 par rapport au groupe contrôle avec le mimétique NC (p = 0,004 ; Figure 3B).
Le BMP7 était une cible du miR-1298 dans le CCR
TargetScan a indiqué que le BMP7 pourrait être une cible du miR-1298 (Figure 4A). Des tests de rapporteur bi-luciférase dans les cellules SW480 et HCT-116 ont montré qu'une surexpression ou une inhibition du miR-1298 modifiait l'activité luciférase du rapporteur BMP7 Wt, mais pas celle du rapporteur BMP7 Mut (Figure 4B,C). Dans les cellules HCT-116, l'activité luciférase du rapporteur BMP7 Wt était significativement plus faible dans le groupe traité avec le mimétique du miR-1298 que dans le groupe contrôle (mimique NC) (p = 0,002 ; Figure 4C). Dans les tissus de CCR, le BMP7 était fortement augmenté (Figure 4D). De plus, une corrélation négative a été observée entre le BMP7 et le miR-1298 (Figure 4E). Dans les cellules SW480 et HCT-116, la surexpression du miR-1298 inhibait le BMP7 au niveau de l'ARN et au niveau protéique, tandis que l'inhibition du miR-1298 entraînait une surexpression du BMP7 (Figure 4F,G).
Le miR-1298 pourrait exercer un effet suppresseur de tumeur dans le CCR par la régulation de BMP7
Dans les cellules SW480, la modulation réussie de l'expression de BMP7 a été confirmée (Figure 5A). La surexpression de BMP7 a partiellement inversé la diminution de la viabilité cellulaire et l'augmentation de l'apoptose induites par la surexpression du miR-1298, tandis que la diminution de BMP7 a davantage réduit la viabilité cellulaire et accru l'apoptose (Figure 5B,C). Dans les cellules HCT-116, la modulation réussie de l'expression de BMP7 a également été confirmée (Figure 5D), avec des effets correspondants sur la viabilité cellulaire et l'apoptose (Figure 5E,F). Dans les cellules SW480, l'expression de BMP7 et la viabilité cellulaire étaient significativement plus faibles dans le groupe miR-1298 mimic + si-BMP7 que dans le groupe miR-1298 mimic + si-NC (p = 0,002 et p = 0,005, respectivement ; Figure 5A,B). L'apoptose différait significativement entre les groupes miR-1298 mimic + OE-BMP7 et miR-1298 mimic + OE-NC (p = 0,001 ; Figure 5C). Dans les cellules HCT-116, la viabilité cellulaire était significativement plus faible dans le groupe miR-1298 mimic + si-BMP7 que dans le groupe miR-1298 mimic + si-NC (p = 0,002 ; Figure 5E). Une expression élevée de BMP7 a partiellement inversé les effets suppresseurs du miR-1298 sur la migration et l'invasion des cellules de CCR, tandis que la diminution de BMP7 a renforcé ces effets inhibiteurs (Figure 6A–D). Dans les cellules SW480, la diminution de BMP7 a significativement réduit le nombre de cellules migrantes et invasives par rapport au groupe si-NC (p = 0,003 et p = 0,020, respectivement ; Figure 6A,B). Dans les cellules HCT-116, la surexpression de BMP7 a significativement modifié le nombre de cellules migrantes par rapport au groupe OE-NC (p = 0,030 ; Figure 6C), tandis que la diminution de BMP7 a significativement réduit le nombre de cellules invasives par rapport au groupe si-NC (p = 0,007 ; Figure 6D).
DISPONIBILITÉ DES DONNÉES :
Les données soutenant les résultats de cette étude sont fournies sous forme de fichier supplémentaire.
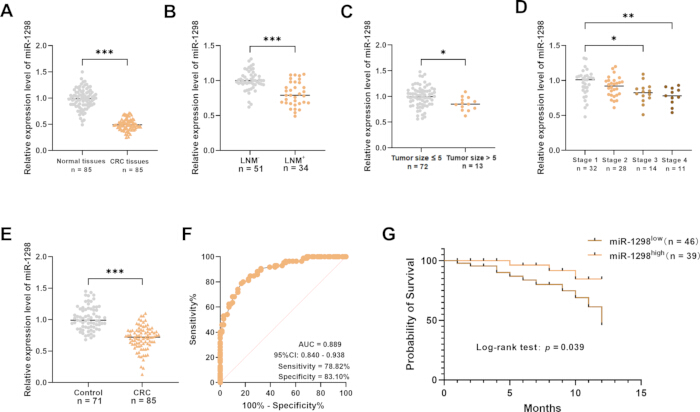
Figure 1 : Expression de miR-1298 dans les tissus de CCR. (A) Expression relative de miR-1298 dans les tissus de CCR et les tissus non cancéreux adjacents. (B) Expression relative de miR-1298 dans les tissus de CCR provenant de patients avec (MGN+) et sans (MGN−) métastase ganglionnaire. (C) Expression relative de miR-1298 dans les tissus de CCR selon la taille de la tumeur. (D) Expression relative de miR-1298 dans les tissus de CCR selon le stade tumoral. (E) Expression relative de miR-1298 sérique chez les patients atteints de CCR et les témoins sains. (F) Courbe caractéristique de fonctionnement du récepteur (ROC) pour miR-1298 sérique permettant de distinguer les patients atteints de CCR des témoins sains. (G) Courbes de survie globale de Kaplan-Meier pour les patients atteints de CCR selon une faible ou forte expression de miR-1298. *p < 0,05 ; **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
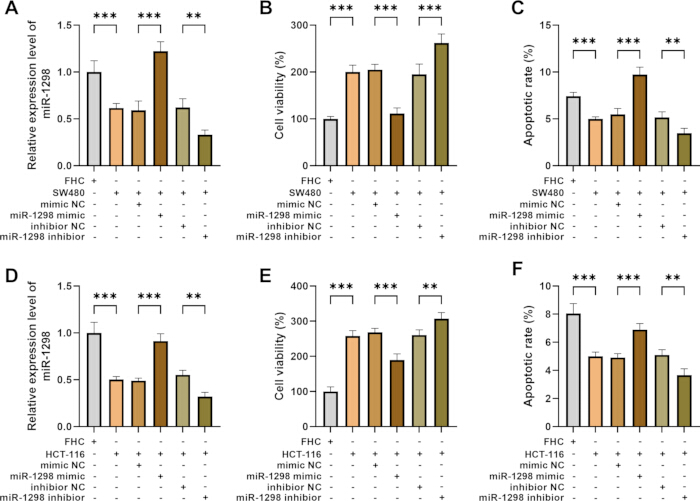
Figure 2 : Effets de miR-1298 sur la prolifération et l'apoptose des cellules de CCR. (A) Expression relative de miR-1298 dans les cellules FHC et SW480 après transfection avec un mimétique de miR-1298, un NC mimétique, un inhibiteur de miR-1298 ou un NC inhibiteur. (B) Viabilité cellulaire des cellules SW480 après surexpression ou inhibition de miR-1298. (C) Apoptose des cellules SW480 après surexpression ou inhibition de miR-1298. (D) Expression relative de miR-1298 dans les cellules FHC et HCT-116 après transfection avec un mimétique de miR-1298, un NC mimétique, un inhibiteur de miR-1298 ou un NC inhibiteur. (E) Viabilité cellulaire des cellules HCT-116 après surexpression ou inhibition de miR-1298. (F) Apoptose des cellules HCT-116 après surexpression ou inhibition de miR-1298. Les données sont présentées sous forme de moyenne ± ÉT. Les barres d'erreur représentent l'ÉT. **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
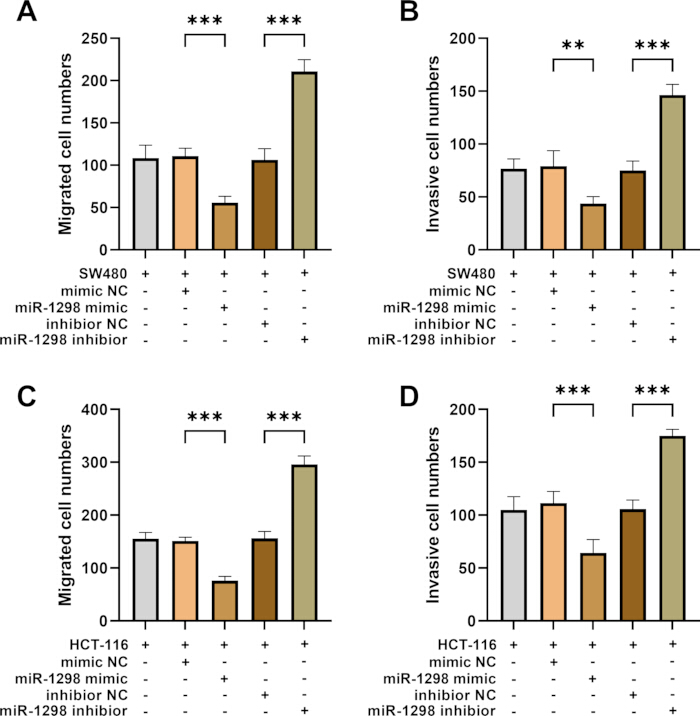
Figure 3: Effets de la miR-1298 sur la migration et l' invasion de Cancer colorectal cellules (ANombre de cellules migrées chez les cellules SW480 après transfection avec un mimétique de miR-1298, un contrôle négatif du mimétique (mimic NC), un inhibiteur de miR-1298 ou un contrôle négatif de l'inhibiteur (inhibitor NC).BNombre de cellules invasives dans les cellules SW480 après transfection avec un mimétique de miR-1298, un mimétique NC, un inhibiteur de miR-1298 ou un inhibiteur NC.CNombre de cellules migrées chez les cellules HCT-116 après transfection avec un mimétique de miR-1298, un mimétique NC, un inhibiteur de miR-1298 ou un inhibiteur NC.D) Nombre de cellules invasives dans les cellules HCT-116 après transfection avec un mimétique de miR-1298, un mimétique NC, un inhibiteur de miR-1298 ou un inhibiteur NC. Les données sont exprimées comme moyenne ± SD. Les barres d'erreur représentent l'écart type.p < 0.01; ***p < 0.001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
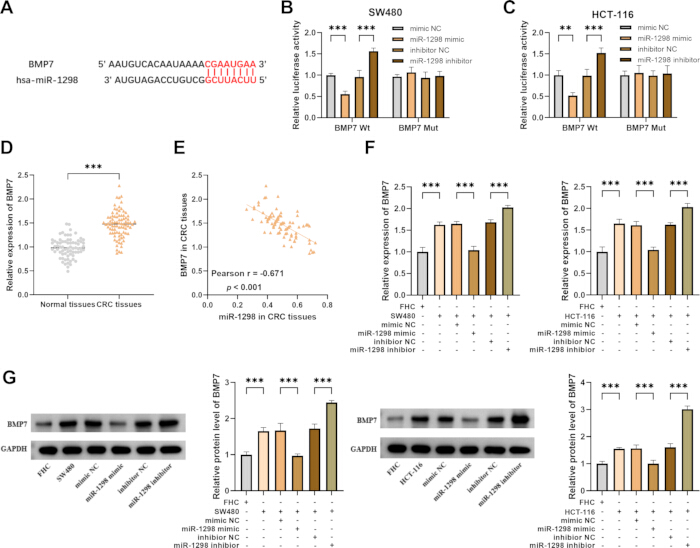
Figure 4 : Relation d'adressage entre le miR-1298 et le BMP7. (A) Site de liaison prédit entre le miR-1298 et la région 3′ UTR du BMP7. (B) Activité luciférase relative des capteurs BMP7 Wt et BMP7 Mut après surexpression ou inhibition du miR-1298 dans les cellules SW480. (C) Activité luciférase relative des capteurs BMP7 Wt et BMP7 Mut après surexpression ou inhibition du miR-1298 dans les cellules HCT-116. (D) Expression relative du BMP7 dans les tissus de CCR et les tissus non cancéreux adjacents. (E) Corrélation entre l'expression du miR-1298 et celle du BMP7 dans les tissus de CCR. (F) Expression relative du BMP7 dans les cellules SW480 et HCT-116 après transfection avec un mimétique du miR-1298, un mimétique NC, un inhibiteur du miR-1298 ou un inhibiteur NC. (G) Niveaux protéiques relatifs de BMP7 dans les cellules SW480 et HCT-116 après transfection avec un mimétique du miR-1298, un mimétique NC, un inhibiteur du miR-1298 ou un inhibiteur NC. **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
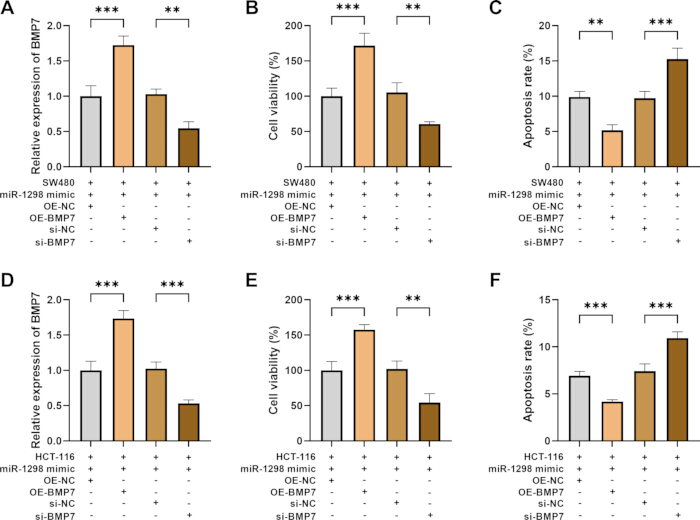
Figure 5 : Co-régulation par le miR-1298 et la BMP7 de la prolifération et de l'apoptose dans les cellules de CCR. Les cellules SW480 et HCT-116 ont été co-transfectées avec un analogue du miR-1298 et OE-NC, OE-BMP7, si-NC ou si-BMP7. (A) Expression relative de BMP7 dans les cellules SW480. (B) Viabilité cellulaire dans les cellules SW480. (C) Apoptose dans les cellules SW480. (D) Expression relative de BMP7 dans les cellules HCT-116. (E) Viabilité cellulaire dans les cellules HCT-116. (F) Apoptose dans les cellules HCT-116. Les données sont exprimées en moyenne ± ÉT. Les barres d'erreur représentent l'ÉT. **p < 0,01 ; ***p < 0,001. Abréviations : OE-NC = contrôle négatif de surexpression ; OE-BMP7 = surexpression de BMP7 ; si-NC = ARN interférent court, contrôle négatif ; si-BMP7 = ARN interférent court ciblant BMP7. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
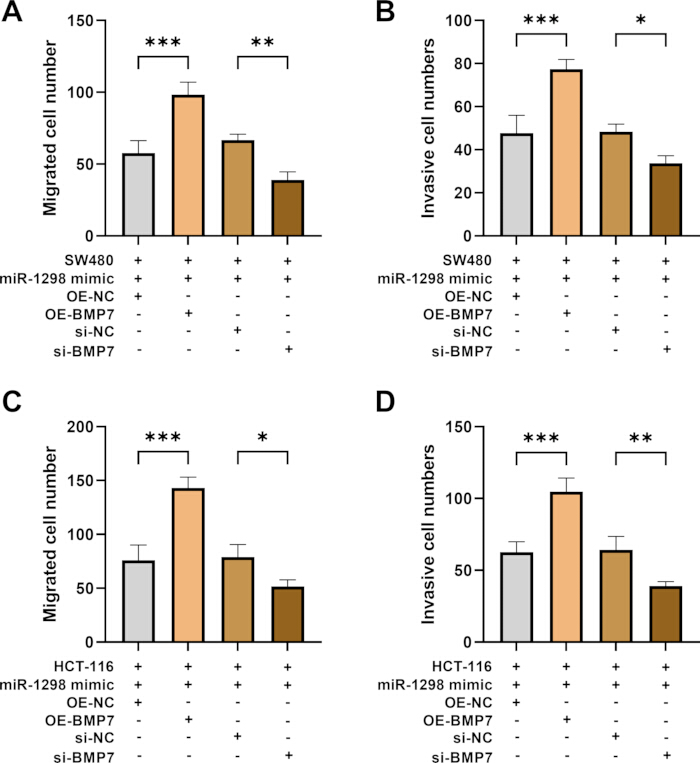
Figure 6 : Co-régulation par le miR-1298 et le BMP7 de la migration et de l'invasion des cellules de CCR. Les cellules SW480 et HCT-116 ont été co-transfectées avec un analogue du miR-1298 et OE-NC, OE-BMP7, si-NC ou si-BMP7. (A) Nombre de cellules migrées chez les cellules SW480. (B) Nombre de cellules invasives chez les cellules SW480. (C) Nombre de cellules migrées chez les cellules HCT-116. (D) Nombre de cellules invasives chez les cellules HCT-116. Les données sont exprimées en moyenne ± ÉT. Les barres d'erreur représentent l'ÉT. *p < 0,05; **p < 0,01; ***p < 0,001. Abréviations : OE-NC = contrôle négatif de surexpression ; OE-BMP7 = surexpression du BMP7 ; si-NC = ARN interférent petit, contrôle négatif ; si-BMP7 = ARN interférent petit ciblant le BMP7. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Variable | Total | miR-1298 | p valeur | |
| (n = 85) | Faible (n = 46) | Élevé (n = 39) | ||
| Âge (années) | ||||
| ≤50 | 49 | 27 | 22 | 0,832 |
| >50 | 36 | 19 | 17 | |
| Sexe (homme/femme) | ||||
| Homme | 44 | 27 | 17 | 0,165 |
| Femme | 41 | 19 | 22 | |
| Stade TNM | ||||
| 1–2 | 60 | 41 | 19 | <0,001*** |
| 3–4 | 25 | 5 | 20 | |
| Taille de la tumeur (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0,003** |
| >5 | 13 | 12 | 1 | |
| Métastases ganglionnaires | ||||
| Oui | 34 | 25 | 9 | 0,003** |
| Non | 51 | 21 | 30 | |
| Differentiation tumorale | ||||
| Bas grade | 53 | 24 | 29 | 0,035* |
| Haut grade | 32 | 22 | 10 | |
Tableau 1 : Association entre les caractéristiques clinicopathologiques et les niveaux d'expression de miR-1298 chez les patients atteints de CCR. Les patients ont été répartis en deux groupes selon l'expression de miR-1298, faible (n = 46) et élevée (n = 39), et les associations entre l'expression de miR-1298 et les caractéristiques clinicopathologiques ont été évaluées. *p < 0,05 ; **p < 0,01 ; ***p < 0,001. Abréviations : CCR = cancer colorectal ; TNM = tumeur, ganglions, métastases.
| Variable | Rapport de risque | IC à 95 % | p valeur | |
| Inférieur | Supérieur | |||
| Âge | 0.776 | 0.186 | 3.242 | 0.728 |
| Sexe | 0.614 | 0.152 | 2.474 | 0.492 |
| Stade TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Taille de la tumeur | 8.078 | 1.833 | 35.587 | 0.006** |
| Métastase ganglionnaire | 6.584 | 1.134 | 38.245 | 0.036* |
| Differentiation tumorale | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tableau 2 : Analyse de régression de Cox des facteurs pronostiques chez les patients atteints de CCR. Une analyse de régression de Cox a été réalisée afin d'évaluer l'association entre les caractéristiques clinicopathologiques, l'expression de la miR-1298 et le pronostic chez les patients atteints de CCR. *p < 0,05 ; **p < 0,01. Abréviations : CI = intervalle de confiance ; CCR = cancer colorectal ; TNM = tumeur, ganglions, métastases.
Fichier supplémentaire. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Le cancer colorectal (CRC) impose un fardeau important sur les individus et la société en raison de son incidence élevée et de son taux de mortalité élevé. Malgré des programmes de dépistage tels que la coloscopie, un grand nombre de patients atteints de CRC sont encore diagnostiqués à un stade avancé, ce qui souligne le besoin urgent de biomarqueurs plus efficaces et non invasifs pour la détection précoce11. De plus, le pronostic du CRC métastatique reste sombre, la résistance aux médicaments et la récidive de la maladie étant relativement fréquentes12. Par conséquent, une compréhension approfondie des mécanismes moléculaires sous-jacents à l'initiation, à la progression et à la métastase du CRC est essentielle pour développer de nouvelles thérapies ciblées et surmonter la résistance au traitement. Le CRC est hautement hétérogène, ce qui signifie que des tumeurs apparemment similaires peuvent présenter des différences importantes au niveau du comportement13. La recherche en cours est donc cruciale pour améliorer la détection précoce, faire progresser le traitement personnalisé et, en fin de compte, améliorer la survie des patients atteints de CRC.
Des anomalies dans les miARN sont impliquées dans le développement, le stade et le pronostic du CCR14. En raison de leur stabilité dans les fluides corporels, les miARN présentent également un grand potentiel en tant que biomarqueurs diagnostiques et pronostiques non invasifs15. Dans cette étude, le miR-1298 était sous-régulé dans les tissus de CCR, et son expression était associée au stade TNM et à la métastase ganglionnaire, suggérant un rôle potentiel dans la progression du CCR. Notamment, notre étude est la première à caractériser de manière exhaustive l'expression du miR-1298 dans une cohorte clinique de CCR et à démontrer son association avec des paramètres clinicopathologiques clés, notamment le stade TNM, la métastase ganglionnaire et la différenciation tumorale.
La dysrégulation de processus cellulaires fondamentaux — notamment la prolifération, l'apoptose, la migration et l'invasion — est un facteur fondamental du développement et de la mortalité liés au cancer16. Une prolifération incontrôlée permet aux cellules tumorales de subir une expansion clonale initiale. Parallèlement, l'évasion de l'apoptose permet à ces cellules de survivre et de s'accumuler malgré des dommages internes ou des stress externes. Cette combinaison conduit à la croissance de la tumeur primitive17,18. Par conséquent, les thérapies ciblées qui s'attaquent aux moteurs moléculaires de ces caractéristiques sont essentielles au développement de traitements efficaces contre le CCR. Les ARNmi contribuent au développement tumoral en régulant le phénotype malin des cellules cancéreuses19. L'ARNmi-1298 est l'un de ces ARNmi. Par exemple, la diminution de l'expression de l'ARNmi-1298-5p favorise la progression du cancer gastrique20. L'augmentation de l'expression de l'ARNmi-1298 supprime la prolifération des cellules du cancer du sein, induit l'apoptose et provoque un arrêt du cycle cellulaire21. De plus, l'ARNmi-1298-5p agit également comme un suppresseur tumoral dans le cancer de la vessie22. Les résultats de cette étude ont indiqué qu'une surexpression de l'ARNmi-1298 inhibait la prolifération, la migration et l'invasion, tout en augmentant l'apoptose, suggérant ainsi qu'il pourrait supprimer le phénotype malin du CCR. Importamment, notre étude va au-delà des rapports antérieurs en évaluant systématiquement les principaux phénotypes malins dans les cellules de CCR, offrant ainsi une caractérisation fonctionnelle plus complète de l'ARNmi-1298 dans ce type de cancer spécifique.
En ce qui concerne ses effets favorisant la tumeur, la BMP7 peut promouvoir la prolifération des cellules cancéreuses en régulant des voies de signalisation telles que PI3K/AKT23. En modulant le niveau de facteurs anti-apoptotiques comme Bcl-2, la BMP7 confère aux cellules cancéreuses une résistance à l'apoptose24. De plus, la BMP7 renforce principalement la migration et l'invasion des cellules cancéreuses en induisant une transition épithélio-mésenchymateuse (EMT)25. L'implication de la BMP7 dans la promotion du cancer est conforme à notre observation selon laquelle la BMP7 était augmentée dans les tissus de CCR. Une analyse par bioinformatique a suggéré que la BMP7 pourrait être une cible de miR-1298 et a identifié un site de liaison prédit entre miR-1298 et BMP7. En outre, des expériences de sauvetage ont indiqué que la BMP7 agissait probablement comme un médiateur fonctionnel de miR-1298 dans le CCR. Compte tenu des voies de signalisation associées à la BMP7 dans le cancer, nous avons formulé l'hypothèse supplémentaire que l'axe miR-1298/BMP7 régule les voies de signalisation en aval (SMAD, PI3K/AKT, EMT) qui contrôlent le comportement des cellules de CCR. De manière cruciale, nous avons validé expérimentalement cette prédiction par des tests de rapporteur luciférase, confirmant la liaison directe de miR-1298 à la région 3′ UTR de BMP7. En outre, des expériences de sauvetage ont démontré qu'une restauration de la BMP7 inversait partiellement les effets suppresseurs de tumeur induits par la surexpression de miR-1298, fournissant ainsi une preuve fonctionnelle que la BMP7 constituait un médiateur en aval de miR-1298 dans le CCR. À notre connaissance, il s'agit de la première étude à établir l'axe régulateur miR-1298/BMP7 dans le cancer colorectal.
Outre les connaissances mécanistiques, notre étude a fourni des preuves translationnelles appuyant l'utilité clinique de miR-1298. L'analyse de la courbe ROC a démontré que miR-1298 pourrait présenter une valeur diagnostique dans le cancer colorectal (CRC). L'analyse de survie a en outre révélé qu'une faible expression de miR-1298 était associée à un pronostic moins favorable, et l'analyse de régression de Cox a indiqué qu'une diminution de miR-1298 pourrait constituer un facteur pronostique pour le CRC, ce qui confirme la valeur potentielle de miR-1298 comme biomarqueur diagnostique et pronostique du cancer colorectal.
Cette étude présente certaines limites. En ce qui concerne les échantillons cliniques, comme cette étude s'est principalement appuyée sur des données provenant d'un seul centre, des études de validation multicentriques futures seront nécessaires pour confirmer de manière plus robuste le rôle suppresseur de tumeur de miR-1298 dans le CCR. Cette étude s'est concentrée sur des expériences cellulaires in vitro, qui n'ont pas entièrement reflété la complexité du microenvironnement tumoral in vivo. L'absence de modèles de tumeurs xénogreffées constituait l'une des limites de cette étude. Des recherches futures devraient inclure une validation in vivo afin de mieux élucider le rôle de l'axe miR-1298/BMP7 dans le microenvironnement tumoral. De plus, des expériences futures pourraient valider davantage les voies en amont et en aval de l'axe miR-1298/BMP7 par des prédictions bioinformatiques ainsi que par des expériences in vitro et in vivo. La période de suivi était relativement courte, ce qui a limité la maturité de l'estimation de la survie à long terme. Bien que des analyses de Kaplan-Meier et des régressions de Cox aient été réalisées, les résultats ont pu être influencés par la durée relativement courte du suivi. Un suivi prolongé est actuellement en cours afin de confirmer la valeur pronostique de miR-1298 dans le CCR. En outre, les voies de signalisation en aval (SMAD, PI3K/AKT, EMT) régulées par l'axe miR-1298/BMP7 dans le contrôle du comportement des cellules de CCR n'ont pas été vérifiées expérimentalement dans cette étude et nécessitent une exploration supplémentaire. Cette étude n'a pas réalisé d'expériences de sauvetage inversées (inhibiteur de miR-1298 + siARN contre BMP7). De telles expériences fourniraient des preuves complémentaires quant à savoir si l'extinction de BMP7 pourrait inverser les effets promoteurs de tumeur induits par l'inhibition de miR-1298. L'absence de ce type d'expérience de sauvetage affaiblit nos conclusions mécanistiques. Des études futures intégrant cette conception expérimentale de sauvetage inversé et une validation in vivo seront nécessaires pour établir pleinement la fonction de l'axe miR-1298/BMP7 dans le CCR.
En résumé, le miR-1298 pourrait être lié à la progression du CCR. Fonctionnellement, le miR-1298 pourrait inhiber la prolifération, l'envahissement et la migration des cellules de CCR. La BMP7 pourrait être un médiateur fonctionnel potentiel du miR-1298 dans le CCR.
Déclarations de divulgation
Les auteurs n'ont pas d'intérêts financiers ou non financiers pertinents à divulguer.
Remerciements
Les auteurs déclarent qu'aucun financement, subvention ou autre soutien n'a été reçu lors de la préparation de ce manuscrit.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Solution de violet de crésyl à 0,1 % | Sigma-Aldrich | C0775 | |
| Kit de SDS-PAGE à 10 % | Epizyme | PG112 | |
| Paraformaldéhyde à 4 % | Sigma-Aldrich | P6148 | |
| Plaque de culture cellulaire 6 puits | Corning | 3516 | |
| Plaque de culture cellulaire 96 puits | Corning | 3599 | |
| Kit de détection de l'apoptose Annexine V-FITC/PI | Divers (par exemple, Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) ou 556547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| Kit BCA | Sangon | C503021 | |
| Plasmide rapporteur du mutant BMP7 3‘-UTR | Construit sur mesure (cloné dans pmirGLO) | Sur commande | |
| Amorces BMP7 | Sangon Biotech (Shanghai, Chine) | Synthèse sur commande | |
| Plasmide rapporteur du BMP7 sauvage 3‘-UTR | Construit sur mesure (cloné dans pmirGLO) | Sur commande | |
| Kit de comptage cellulaire-8 (CCK-8) | Dojindo (Japon) | CK04 | |
| Flacon de culture cellulaire (T-25) | Corning | 430639 | |
| DMEM (milieu Eagle modifié de Dulbecco‘s) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Sérum de veau fœtal (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| Ligne cellulaire FHC (épithélium colique humain normal) | ATCC | CRL-1831 | |
| Cytomètre en flux | BD Biosciences | FACSCanto™ II | |
| Logiciel FlowJo V10 | FlowJo, LLC | — | |
| Amorces GAPDH (témoin endogène pour ARNm) | Sangon Biotech (Shanghai, Chine) | Synthèse sur commande | |
| Ligne cellulaire HCT-116 (carcinome colorectal humain) | ATCC | CCL-247 | |
| Anticorps secondaire conjugué à la HRP | Beyotime | A0208 | |
| Microscope inversé | Nikon (ou équivalent) | Eclipse Ts2 | |
| Réactif de transfection Lipofectamin 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Système de dosage de la luciférase | Promega | E1500 | |
| Matrice de membrane basale Matrigel | Corning | 354230 | |
| Lecteur de microplaques | BioTek (Agilent) | Synergy H1 | |
| Inhibiteur de miR-1298 | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| Mimétique de miR-1298 | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| Amorces de miR-1298 | Sangon Biotech (Shanghai, Chine) | Synthèse sur commande | |
| Kit de synthèse du premier brin miRNA Mir-X | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| Opti-MEM | Gibco | 31985070 | |
| tampon de lyse passif | Promega | E194A | |
| Vecteur pcDNA3.1 (témoin de vecteur vide) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (plasmide d'expression surexprimé OE-BMP7) | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| Vecteur d'expression cible d'ARNmi bi-luciférase pmirGLO | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| Kit de réactifs PrimeScript RT (temps réel parfait) | Takara (Japon) | RR037A | |
| Kit de réactifs PrimeScript RT avec éraseur d'ADNg | Takara Bio | RR047A | |
| Cocktail d'inhibiteurs de protéase | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| Tubes microcentrifuges sans RNase (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| Pointes de pipette sans RNase | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| si-NC | GenePharma (Shanghai, Chine) | Sur commande (synthétisé à la commande) | |
| Staurosporine (témoin positif d'apoptose) | Sigma-Aldrich | S5921 | |
| Ligne cellulaire SW480 (adénocarcinome colorectal humain) | ATCC | CCL-228 | |
| Master Mix SYBR Green qPCR | Takara (Japon) | RR036A | |
| Chambre Transwell (24 puits, taille de pore 8,0 µm) | Corning (Costar) | 3422 | |
| Réactif TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| Amorces U6 (témoin endogène pour ARNmi) | Sangon Biotech (Shanghai, Chine) | Synthèse sur commande |
Références
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.