Ce protocole permet de visualiser le dépôt de composants de la paroi cellulaire tels que la lignine et la pectine dans des sections transversales de tiges de luzerne (Medicago sativa L.). L'objectif est d'identifier les tissus spécifiques de la tige qui pourraient être ciblés afin de développer de nouvelles lignées de luzerne possédant des caractéristiques de digestibilité de la tige souhaitables.
Article de méthode
Incubation in vitro avec du liquide ruminal et coloration histologique de composants sélectionnés des parois cellulaires chez la tige de luzerne (Medicago sativa L.)
Dans cet article
Résumé
Résumé
L'accumulation de composants de la paroi cellulaire au fur et à mesure de la croissance des plantes limite la valeur nutritionnelle des fourrages pour les ruminants. En particulier, le dépôt de lignine dans les tissus végétaux entrave la dégradation des glucides pariétaux que sont la cellulose et l'hémicellulose, réduisant ainsi la quantité d'énergie disponible à partir du fourrage. Toutefois, le composant pectine, hautement digestible de la paroi cellulaire, est facilement accessible à la dégradation. Des informations sur le dépôt de lignine et de pectine dans différents types cellulaires de la tige peuvent fournir des éclairages mécanistiques sur les facteurs à l'origine de la variabilité de la digestibilité des tiges parmi les lignées de luzerne. L'incubation in vitro de sections transversales de tige dans du liquide ruminal simule les processus que subissent les tissus de la tige dans le rumen. Associée à une coloration histologique et à l'analyse microscopique, cette méthode permet de visualiser les modifications de la dégradation tissulaire au cours du temps ainsi que la localisation de la lignine et de la pectine dans la tige. La coloration de Wiesner réagit avec les unités aldéhyde guaïacyliques (G) de la lignine, en la teintant en fuchsia. De même, le rouge de ruthénium interagit avec les groupes carboxyliques de la pectine, colorant la pectine dans la tige dans des teintes allant du rose au brun en passant par l'orange. Ce protocole décrit la digestion de sections transversales de tige de luzerne après exposition aux micro-organismes ruminaux, suivie d'une coloration permettant de visualiser les motifs de lignine et de pectine dans les parois cellulaires. Cette méthode peut être utilisée pour identifier les tissus de la tige dans lesquels la lignine et la pectine sont présentes ou absentes, facilitant ainsi les comparaisons entre différentes lignées de luzerne.
Introduction
Une paroi cellulaire entoure chaque cellule végétale. La cellulose, l'hémicellulose, la lignine et la pectine sont des composants de la paroi cellulaire et contribuent aux fibres végétales, une partie nécessaire de l'alimentation des ruminants. Alors que les pectines sont des polysaccharides hautement digestibles (solubles)1, la lignine est un polymère indigestible qui limite la dégradation des fibres2. La lignine réduit donc la digestibilité des plantes et diminue finalement l'énergie disponible pour le ruminant à partir du fourrage. Toutefois, la lignine soutient des fonctions physiologiques végétales importantes, telles que la conduction de l'eau dans toute la plante en renforçant les éléments des traîchées3. Des travaux antérieurs ont montré que des modifications des fibres du tige visant à réduire la teneur en lignine ou à augmenter celle en pectine pourraient améliorer la digestibilité du tige et la valeur nutritive du fourrage4. Ce protocole se concentre donc sur ces deux composants de la paroi cellulaire. Les concentrations totales de lignine et de pectine dans la paroi cellulaire du tige ne fournissent pas suffisamment d'informations pour expliquer les mécanismes sous-jacents à la digestibilité des fibres du tige5. Une incubation in vitro avec du liquide ruminal et une coloration histologique peuvent fournir des informations au niveau cellulaire en visualisant les différences dans les composants de la paroi cellulaire entre des plantes présentant des degrés variables de digestibilité des fibres du tige4,6. Dans le présent protocole, la luzerne (Medicago sativa L.), une légumineuse fourragère vivace courante, sert d'espèce modèle pour illustrer les répartitions de la lignine et de la pectine dans les tissus du tige, qui contiennent davantage de lignine mais moins de pectine que les feuilles.
In vitro, l'incubation avec du liquide ruminal simule la digestion des fourrages dans l'estomac du ruminant, permettant d'observer les effets de l'anatomie des fourrages sur leur digestibilité. En créant dans un tube à essai des conditions similaires à celles du rumen, des coupes transversales de tiges fixées sur des lames de verre peuvent être prélevées à différents moments afin d'évaluer le degré de dégradation tissulaire après exposition au liquide ruminal6. Cette méthode offre une approche relativement simple, rapide et peu coûteuse pour visualiser les structures anatomiques des tiges de luzerne7 et pour examiner comment les types cellulaires contenant des composants de paroi cellulaire différents évoluent au fur et à mesure de la digestion de la tige.
La coloration histologique des sections transversales de tiges permet de visualiser les composants des parois cellulaires. La phloroglucinol et l'acide chlorhydrique (HCl) se combinent pour former la coloration de Wiesner, qui met en évidence les tissus de la tige contenant des unités de lignine riches en guaïacyle8 en réagissant avec les monomères d'aldehyde G C6C3 (coniféraldéhyde)9. La lignine est constituée de plusieurs sous-unités monomériques ; toutefois, dans cet article, le terme « lignine » désigne uniquement le monomère de type G, car il s'agit du monomère qui réagit avec la coloration de Wiesner10 et qui est donc visualisé à l'aide de ce protocole. Certains tissus, comme les vaisseaux du xylème, sont toujours lignifiés6. Dans les autres cas, le dépôt de lignine dans les tissus de la tige de luzerne commence lorsque la croissance secondaire (cambiale) débute et coïncide avec l'arrêt de l'élongation des entrenœuds de la tige6. Le rouge de ruthénium se lie aux substances pectiques, qui contiennent des groupes carboxyles parfois estérifiés et partageant certaines chaînes latérales11. Les groupes carboxyliques des pectines présents dans la lamelle moyenne et les parois cellulaires primaires interagissent avec le rouge de ruthénium11. La pectine joue un rôle dans l'élongation cellulaire et est donc présente dans les cellules durant la croissance primaire. Dans tout le manuscrit, le terme « pectine » désigne de manière générale l'ensemble des pectines pouvant être présentes. L'association de la coloration histologique à une incubation in vitro dans le rumen permet d'observer l'emplacement des composants de la paroi cellulaire dans la tige et met en évidence les modifications subies par différents types cellulaires au cours de la digestion ruminale. En fin de compte, ce protocole peut être utilisé pour identifier les cellules de la tige contenant de la lignine et des pectines et pour caractériser les profils observés chez différentes lignées de luzerne et à différents temps d'incubation.
Protocole
Cette recherche a été menée conformément aux directives institutionnelles relatives aux sujets animaux (IACUC 2301-40689B).
1. Étiquetage des tubes d'échantillons
- Préparation et étiquetage des tubes d'échantillons pour l'incubation, le stockage et la coloration
- Étiqueter préalablement cinq séries distinctes de tubes coniques de centrifugation jetables de 50 mL à bouchon vissable pour chaque échantillon. Ajouter l'identifiant de l'échantillon et la durée d'incubation à chaque tube selon les utilisations décrites ci-dessous.
- Étiqueter les tubes de maintien avant incubation et y ajouter 35 mL d'eau ultrapure.
- Étiqueter les tubes d'incubation destinés à être utilisés dans les sections 3 et 4. Organiser les tubes dans des porte-tubes séparés selon la durée d'incubation (0, 4, 8, 24, 48 ou 96 h).
NOTA : Utiliser un marqueur indélébile de qualité industrielle afin d'éviter que les étiquettes ne s'effacent dans le bain-marie. - Étiqueter les tubes de stockage après incubation et y ajouter 35 mL d'un mélange 50:50 de glycérine à 100 % et d'eau ultrapure. Utiliser ces tubes pour conserver les coupes transversales digérées sur des lames jusqu'à la coloration.
- Étiqueter les tubes préalables à la coloration et y ajouter 35 mL d'un mélange 50:50 d'éthanol à 200 degrés et d'eau ultrapure. Utiliser ces tubes pour extraire la glycérine des coupes transversales avant la coloration.
- Étiqueter les tubes d'hydratation et y ajouter 35 mL d'eau ultrapure.
2. Sectionnement transversal des tiges et montage sur lames
- À l’aide de pinces, sélectionner un segment de tige à la fois parmi les tiges échantillons et exciser le centre du segment.
NOTE : Utiliser quatre tiges par échantillon comme réplicats techniques pour chaque réplicat biologique. Choisir aléatoirement les quatre tiges parmi toutes les tiges possibles de chaque échantillon. Utiliser un ensemble supplémentaire de tiges standards comme témoin pour tous les essais d’incubation. - Découper deux rectangles en mousse rigide d’isolant en polystyrène expansé, chacun mesurant environ 2,5 cm de long et 0,6 cm d’épaisseur. Tailler une petite encoche en biseau sur la longueur de chaque pièce afin qu’un entrenœud de tige s’insère fermement entre les deux morceaux de mousse.
- Monter le « sandwich » de tige sur la platine d’un microtome à coulisse capable de produire des sections de 100 μm d’épaisseur. À l’aide d’un pinceau fin, déposer une goutte d’eau sur la tige et sur la lame du microtome pour faciliter une section nette.
- Découper des sections transversales de tige d’une épaisseur de 100 μm. Utiliser le pinceau pour transférer chaque section transversale vers une boîte de Pétri pré-étiquetée contenant de l’eau ultrapure pour un stockage temporaire, et retirer toute trace de mousse de la boîte.
NOTE : Remplacer la lame du microtome si la mousse se déchire, car une déchirure peut indiquer que la lame est émoussée. - Étiqueter manuellement deux lames en verre standard de 25 mm × 75 mm pour chaque échantillon à chaque temps d’incubation (2 colorations × 6 points temporels = 12 lames par échantillon pour chacun des réplicats biologiques). Indiquer sur chaque étiquette l’identifiant de l’échantillon, le temps d’incubation et la coloration utilisée.
- Découper un morceau de ruban adhésif double face de 2 mm de largeur et de 2,5 cm de long. Placer le côté court du ruban à 0,5 cm du bas de la lame, le côté adhésif vers le bas, puis appuyer fermement sur le côté en papier ciré du ruban tout en portant des gants pour assurer une bonne adhérence.
NOTE : Réaliser cette étape sur une surface plane afin d’éviter de casser les lames en verre. - Utiliser un microscope stéréoscopique pour orienter toutes les sections transversales dans le même sens. Retirer le papier ciré du ruban adhésif double face et, tout en conservant l’orientation des sections transversales, les transférer sur le ruban à l’aide d’un pinceau fin humidifié. Garder les sections transversales légèrement humides.
- Recouvrir les sections transversales avec le papier ciré et rouler légèrement le pinceau dessus pour fixer fermement les sections au ruban adhésif double face. Retirer le papier ciré puis placer la lame montée contenant quatre sections transversales dans le tube de maintien pré-étiqueté décrit à l’étape 1.1.2, en veillant à ce que l’eau ultrapure recouvre les sections montées.
- Pour la coloration au rouge de ruthénium et à la coloration de Wiesner, placer deux lames dos à dos dans chaque tube de maintien, le ruban adhésif double face tourné vers l’extérieur.
NOTE : Après avoir monté toutes les lames et les avoir placées dans des tubes contenant de l’eau ultrapure, conserver les lames toute la nuit à température ambiante si nécessaire.
3. Préparation pour l'incubation in vitro de sections transversales de tige
- Utiliser les tubes à centrifuger jetables de 50 mL avec bouchon à vis préparés pour l'incubation (voir 1.1.3). Regrouper tous les tubes d'échantillons pour chaque intervalle d'incubation sur un seul support en plastique.
- Utiliser une balance analytique à quatre décimales pour peser 0,2 g d'une norme de tige de maïs broyée à 1 mm sur du papier d'analyse, puis transférer soigneusement le matériau dans chaque tube d'incubation, à l'exception des tubes à 0 h, qui servent de témoin non incubé. Boucher les tubes et les mettre de côté jusqu'à utilisation.
NOTE : La norme de tige de maïs fournit l'énergie nécessaire au maintien des micro-organismes du rumen pendant l'incubation, car la biomasse des sections transversales de la tige est insuffisante pour préserver l'activité microbienne. - Remplir un bain-marie à circulation d'eau avec suffisamment d'eau et l'équilibrer à 39 °C avant de commencer l'incubation. Régler la profondeur d'eau de manière à atteindre le trait de 35 mL sur les tubes de 50 mL, et utiliser un aérateur si nécessaire afin d'assurer une circulation et une température uniformes de l'eau.
- Préparation du tampon de McDougall pour la solution d'inoculation
- Préparer le tampon de McDougall au plus tard 2 jours avant le début des incubations.
NOTE : Mélanger le tampon de McDougall avec du liquide de rumen selon un rapport de 4:1 pour préparer la solution d'inoculation. Ajuster le volume du tampon en fonction du nombre d'échantillons, et préparer suffisamment de solution d'inoculation pour fournir 30 mL par tube. - Prélever 1 600 mL d'eau ultrapure. Transférer 1 L dans un flacon Erlenmeyer plat de 3 L et réserver 600 mL pour le transfert et le rinçage des réactifs.
- Placer un barreau aimanté dans le flacon Erlenmeyer et positionner ce dernier sur une plaque agitatrice.
- Placer un entonnoir en plastique dans le flacon Erlenmeyer. Ajouter 15,7 g de bicarbonate de sodium (NaHCO₃), 5,9 g de phosphate disodique anhydre (Na₂HPO₄), 0,91 g de chlorure de potassium (KCl), 0,75 g de chlorure de sodium (NaCl), 0,19 g de sulfate de magnésium heptahydraté (MgSO₄·7H₂O) et 0,06 g de chlorure de calcium dihydraté (CaCl₂), en ajoutant un réactif à la fois et en attendant la dissolution complète de chacun avant d'ajouter le suivant. Utiliser des portions des 600 mL d'eau ultrapure réservés pour rincer l'entonnoir après chaque ajout.
- Après l'ajout du chlorure de calcium dihydraté, insérer un diffuseur de CO₂ pour faciliter la dissolution et barboter la solution. Une fois la solution devenue limpide, continuer le barbotage pendant 10 à 15 minutes supplémentaires.
- Boucher hermétiquement le flacon et fixer le bouchon avec du ruban adhésif, car le réchauffement du tampon pourrait provoquer une pression interne.
- Conserver la solution à 20 °C pendant un maximum de 2 jours. Placer la solution dans un bain-marie à 39 °C la veille de son utilisation, ou directement dans le bain-marie à 39 °C si elle doit être utilisée le lendemain.
- Préparer le tampon de McDougall au plus tard 2 jours avant le début des incubations.
4. Incubation in vitro de sections transversales de tige
- Le jour de l'incubation, verser 47 mL d'eau et 4 mL de NaOH 1 N dans un bécher de 100 mL placé sous hotte, puis ajouter 0,625 g de cystéine-HCl. Dans un second bécher de 100 mL, ajouter 0,625 g de sulfure de sodium à 47 mL d'eau, et maintenir les deux solutions séparées jusqu'à la préparation de la solution d'inoculation.
- Remplir un thermos isolant d'eau chaude afin de créer un environnement chaud pour le transport des micro-organismes du rumen de la vache jusqu'au laboratoire. Apporter un seau de vingt litres pour transférer l'eau chaude du thermos.
- Se rendre à l'étable pour prélever du liquide ruminal chez la vache canulée attribuée à l'expérience par la gestion de l'étable.
REMARQUE : Prélevez le liquide ruminal à peu près à la même heure de la journée et toujours sur la même vache tout au long d'une expérience afin de minimiser les variations. Coordonnez-vous avec la gestion de l'étable pour annoncer à l'avance vos passages afin de prélever le liquide ruminal. - Identifier la vache expérimentale et porter des équipements de protection individuelle appropriés, y compris une blouse de laboratoire, une protection oculaire, des surchaussures et des gants longs jusqu'aux épaules.
REMARQUE : Réserver les procédures des étapes 4.4 à 4.8 au personnel autorisé en vertu du protocole IACUC applicable. - Transférez l'eau chaude du thermos dans le seau de cinq gallons. Préparez deux couches de gaze de qualité 50 (chiffon de fromage) pour filtrer le matériel ruminal.
- Prélèvement de liquide ruminal à partir d'une vache canulée
- Ouvrir soigneusement la canule et placer le bouchon dans un seau de cinq gallons contenant de l'eau tiède afin d'éviter de contaminer le bouchon. À l'aide d'une main gantée, prélever suffisamment de matériel provenant du rumen pour accéder à l'interface solide-liquide du rumen.
- Une fois à l'interface solide-liquide, prélevez plusieurs poignées de matériel et pressez-les à travers deux couches de gaze de qualité 50, d'environ 45 cm de côté chacune, dans un thermos à bouchon vissé préalablement réchauffé. Jetez le matériel résiduel après avoir fait passer le liquide ruminal à travers la gaze.
- Répéter l'étape 4.6.2 jusqu'à ce qu'il y ait 1 L de liquide ruminal dans le thermos pour chaque série de 60 tubes d'innoculation, en ajustant le volume selon les besoins en fonction du nombre d'échantillons à incuber.
REMARQUE : Les vaches canulées ont des limites spécifiques quant à la quantité de liquide ruminal pouvant être prélevée au cours d'une semaine donnée. Communiquez avec le gestionnaire de l'étable afin de vous assurer que la quantité de liquide ruminal prélevée ne dépasse pas la limite autorisée pour la vache.
- Une fois suffisamment de liquide ruminal recueilli, fermer hermétiquement le thermos afin de maintenir sa température. Remettre en place la canule et utiliser l’eau chaude du seau de cinq gallons pour le nettoyage.
- Jeter les surbottes, les gants et la gaze souillés dans le récipient approprié pour élimination en quittant la grange. Retourner au laboratoire dès que possible afin de maintenir la température et les conditions anoxiques du liquide ruminal.
- Une fois revenu au laboratoire, mélanger les deux solutions d'agent réducteur (voir 4.1) sous la hotte et les homogénéiser pour préparer la solution de réduction.
- Placer un bécher en verre d'une capacité d'au moins 2 L contenant un grand barreau magnétique sur un agitateur chauffant réglé sur <30 °C, et positionner un CO₂ diffuser au-dessus du liquide. Ajouter 1 600 mL de tampon de McDougall et agiter lentement sans permettre au CO₂ diffuseur en contact avec le liquide.
REMARQUE : Utilisez un bécher en polypropylène si désiré à cette basse température. Utilisez du CO₂ pour déplacer O₂ et contribuent à maintenir des conditions anoxiques. - Tapisser un grand entonnoir de deux couches de gaze de grade 50 et le placer au-dessus d'un cylindre gradué de 2 L. Filtrer 400 mL de liquide ruminal et l'ajouter au tampon de McDougall (voir 3.4.7) pour préparer la solution d'inoculation.
- Ajouter 80 mL de la solution de réduction (voir 4.9) à la solution d'inoculation et mélanger lentement. Maintenir le CO₂ empêcher le diffuseur d'entrer en contact avec le liquide.
- Dans la hotte, retirer les bouchons des tubes d'incubation et les ranger dans des supports séparés selon le temps d'incubation. Déboucher les tubes de maintien préalable à l'incubation en prévision du transfert des lames (voir 1.1.2).
- Sélectionnez aléatoirement un tube de maintien pré-incubation à la fois et utilisez une pince pour transférer les lames en verre montées vers le tube d'incubation correspondant (voir 1.1.3). Placez chaque tube d'incubation contenant les lames montées dans un petit porte-échantillons et mettez de côté le tube de maintien pré-incubation.
REMARQUE : Deux personnes doivent effectuer les étapes 4.14 à 4.15. Lorsque cela est possible, minimiser le refroidissement du mélange liquide du rumen-solution tampon. - Prélevez 30 mL de solution d'inoculation dans une seringue de 60 mL munie d'une aiguille large et sans biseau. Déversez lentement la solution le long de la paroi du tube d'incubation, purgez le tube avec du CO₂ pendant environ 20 s, boucher le tube et le remettre sur la rack.
- Placer les porte-tubes contenant les tubes inoculés dans un 39 °C bain-marie. Agiter doucement les tubes au moins une fois par jour et changer quotidiennement la position des porte-tubes afin de minimiser un chauffage inégal.
REMARQUE : La formation de bulles de gaz dans les tubes indique une fermentation active. - À la fin de chaque période d'incubation, retirer le support correspondant du bain-marie. Ouvrir un tube à la fois, sortir chaque lame et rincer doucement les résidus solides et la solution d'inoculation résiduelle avec de l'eau ultrapure.
- Placer les lames rincées dans les tubes de stockage post-incubation contenant le mélange glycérine-eau décrit à l'étape 1.1.4.
5. Coloration des coupes transversales pour la lignine
- Si les lames ont été conservées dans un mélange glycérol-eau à 50:50, transférez les deux lames contenant les coupes montées dans des tubes de rinçage préalable au colorant contenant la solution d'éthanol et d'eau ultrapure (voir 1.1.5). Conservez les tubes toute la nuit au réfrigérateur pour éliminer le glycérol avant la coloration.
- Préparez une solution de phloroglucinol (PG) à 3 % en dissolvant 0,3 g de PG dans 10 mL d'éthanol absolu dans un erlenmeyer de 25 mL entouré de papier d'aluminium afin de protéger le réactif photosensible de la lumière. Bouchonner le flacon, puis l'étiqueter avec le nom de la solution, la date de préparation et le nom du préparateur, et le conserver à 20 °C.
- Retirez les lames des tubes réfrigérés et transférez-les temporairement dans les tubes d'hydratation décrits à l'étape 1.1.6, contenant de l'eau ultrapure à 100 %.
NOTE : Maintenez les coupes hydratées pendant la manipulation afin de minimiser l'oxydation, qui pourrait endommager les sections et affecter l'imagerie ultérieure. - Préparez la coloration de Wiesner sous hotte à l'aide d'une pipette en mélangeant 50 μL de PG à 3 % dans l'éthanol (voir 5.2) avec 25 μL d'acide chlorhydrique (HCl) dans un bécher de 50 mL.
NOTE : Ajustez les quantités en fonction du nombre de lames tout en conservant un rapport PG/HCl de 2:1.
ATTENTION : Manipulez l'acide chlorhydrique sous hotte car il est corrosif pour les métaux, provoque de graves brûlures cutanées et des lésions oculaires, et peut entraîner des irritations respiratoires. Évitez d'inhaler les vapeurs ou les aérosols, portez des gants, des vêtements, une protection oculaire et une protection faciale adaptés, et lavez soigneusement la peau exposée après manipulation. - Retirez une lame du tube et tamponnez délicatement la surface de la lame autour du ruban adhésif double face avec un papier sans peluches afin d'empêcher le colorant de s'écouler hors du ruban. Placez la lame sur un petit plateau en plastique et utilisez une pipette pour appliquer plusieurs gouttes de colorant de Wiesner sur les coupes transversales.
- Réglez une minuterie sur 12 min et recouvrez les lames de papier d'aluminium pour les protéger de la lumière. Vérifiez l'état des coupes transversales pendant la coloration et renouvelez l'application du colorant si nécessaire afin d'éviter le dessèchement.
NOTE : Évitez que les coupes transversales ne s'assèchent car l'oxydation pourrait endommager le tissu et affecter l'imagerie ultérieure. - Au bout de 12 min, retirez délicatement l'excès de colorant de Wiesner à l'aide d'un papier sans peluches. Rincez le tissu avant le montage afin de réduire l'exposition de l'objectif du microscope aux vapeurs corrosives de HCl.
- Appliquez 1 à 2 gouttes de mélange glycérol-eau à 50 % sur chaque coupe transversale et recouvrez avec une lame de couvre-objet de 24 mm × 30 mm (épaisseur n° 1,5). Procédez immédiatement à l'analyse microscopique et à l'acquisition d'images.
NOTE : Acquérez les images dans les 6 à 8 h car la coloration de Wiesner est sensible au temps et pourrait devenir jaune et se diffuser hors de la coupe transversale avec le temps.
6. Coloration en coupe transversale pour la pectine
- Suivre l'étape 5.1 pour éliminer le mélange glycérine-eau ultrapure des lames stockées avant la coloration.
- Préparer une solution de rouge de ruthénium à 0,02 % en dissolvant 0,02 g de rouge de ruthénium dans 100 mL d'eau ultrapure dans un ballon Erlenmeyer de 125 mL entouré de papier d'aluminium afin de protéger le réactif photosensible de la lumière. Boucher le flacon, puis l'étiqueter avec le nom de la solution, la date de préparation et le nom du préparateur, et le conserver à 20 °C.
- Retirer les lames des tubes contenant de l'éthanol-eau ultrapure réfrigérés et transférer les lames correctement étiquetées portant les sections montées vers des tubes contenant de l'eau ultrapure à 100 % (voir 1.1.6) pour une conservation temporaire.
NOTE : Respecter les précautions d'hydratation décrites à l'étape 5.3. - Retirer une lame de l'eau ultrapure à l'aide de pinces et tamponner l'eau autour du ruban avec un tissu peu pelucheux afin d'empêcher la coloration de s'étendre sur le verre. Placer la lame sur un petit plateau en plastique.
- Appliquer plusieurs gouttes de solution de rouge de ruthénium (voir 6.2) pour recouvrir uniformément les coupes transversales. Couvrir les lames avec du papier d'aluminium pendant 10 min pour les protéger de la lumière, puis rincer délicatement la coloration à l'eau ultrapure pendant 2 min.
- Éliminer l'excès d'eau sur la lame et appliquer 1 à 2 gouttes de mélange glycérine-eau ultrapure à 50 % sur chaque coupe transversale. Recouvrir les coupes transversales avec une lame couvre-objet de 24 mm × 30 mm (épaisseur n° 1,5) et procéder à l'analyse microscopique et à l'acquisition d'images.
NOTE : Réaliser l'analyse microscopique le jour même pour des résultats optimaux.
7. Imagerie en champ clair
- Observer les coupes transversales en illumination en champ clair à l’aide d’un microscope aux grossissements 10×, 20× et 40×. Voir le Tableau 1 pour les paramètres et réglages d’acquisition des images.
Résultats
L'utilisation de tubes à centrifuger pour simuler des conditions du rumen a permis une digestion in vitro relativement rapide et peu coûteuse de sections transversales de tiges de Medicago sativa. À l'aide d'un microtome à glissement, des sections transversales de 100 μm d'épaisseur ont été préparées à partir de tiges de M. sativa (Figure 1A). Les sections transversales de tige ont été fixées sur des lames en verre à l'aide de ruban adhésif double face (Figure 1B) et immergées dans une solution d'inoculation de liquide ruminal pendant des périodes d'incubation variant de 4 h à 96 h (Figure 1C). Pour l'incubation in vitro, des tubes à centrifuger jetables de 50 mL munis de bouchons ont été utilisés comme récipients d'incubation et enrichis avec 0,2 g de tiges de maïs broyées à 1 mm afin de maintenir les micro-organismes du rumen tout au long de l'incubation. Les tubes ont été incubés dans un bain-marie maintenu à 39 °C (Figure 1D). Une fermentation active par les micro-organismes du rumen a été confirmée visuellement par la formation de bulles de gaz dans la solution d'inoculation. Les matériaux requis pour ce protocole sont couramment disponibles dans les laboratoires de chimie humide. Le ruban adhésif double face n'a pas empêché la dégradation du tissu lors de l'exposition au liquide ruminal, mais a permis de retenir les parties de la tige restantes après la digestion, facilitant ainsi la coloration ultérieure et la visualisation microscopique.
Des sections transversales de tige qui n'ont pas été soumises à une incubation in vitro (0 h) ont permis de visualiser les composants initiaux des parois cellulaires dans différents tissus de la tige. Les sections transversales colorées avec la coloration de Wiesner ont révélé les tissus présentant une coloration associée à la lignine (Figure 2A–E), tandis que les sections colorées au rouge de ruthénium ont mis en évidence les tissus présentant une coloration associée aux pectines (Figure 3A–E). Dans les sections colorées à la Wiesner, les fibres du phloème primaire matures présentaient une coloration fuchsia (Figure 2B–E). Les vaisseaux du xylème et le xylème interfaciculaire présentaient également une coloration fuchsia (Figure 2B–D). La coloration au rouge de ruthénium a été observée dans l'épiderme, le collenchyme, le chlorenchyme, le phloème secondaire (Figure 3B–E) et la moelle (Figure 3B–D). Certains xylèmes interfaciculaires et fibres du phloème primaire ont également été colorés au rouge de ruthénium (Figure 3B–E). Les sections transversales complètes de tige ont été visualisées en assemblant une grille d'images de 5 × 5 prises à un grossissement de 10× (Figure 2A et Figure 3A). Des images supplémentaires d'une région de la section transversale de la tige ont été acquises à 10× (Figure 2B et Figure 3B), 20× (Figure 2C et Figure 3C) et 40× au-dessus (Figure 2D et Figure 3D) et au-dessous (Figure 2E et Figure 3E) du cambium vasculaire.
Les tissus colorés par la méthode de Wiesner des sections transversales de tige de M. sativa étaient visibles lors de toutes les incubations in vitro, de 0 h à 96 h (Figure 4A–F). À 0 h, toutes les cellules présentaient des contours nets (Figure 4A). Après 8 h, des signes de dégradation tissulaire étaient apparents, marqués par le flou des contours des cellules aux parois minces et non lignifiées (c’est-à-dire non colorées) (par exemple, le collenchyme) et par la disparition de certaines cellules (par exemple, le phloème secondaire). Après 24 h, la structure tridimensionnelle en spirale des vaisseaux xylémiens est devenue plus évidente à mesure que les tissus environnants se dégradaient (Figure 4D). Au-delà de 24 h, les cellules non colorées se sont progressivement dégradées et ont disparu (Figure 4D–F). À mesure que ces tissus se dégradaient, la perte de soutien anatomique a provoqué l’effondrement latéral de l’épiderme non coloré, donnant l’apparence d’un ruban de cellules fines et transparentes à 24, 48 et 96 h (Figure 4D–F).
In vitro, l'incubation de sections transversales de tige de M. sativa suivie d'une coloration au rouge de ruthénium a permis de visualiser la coloration associée aux pectines dans les tissus de la tige après 0 à 96 h d'exposition au liquide du rumen (Figure 5A–F). Entre 0 et 4 h, les bords nets autour de toutes les cellules indiquent qu'elles étaient intactes (Figure 5A,B). Lorsque le temps d'incubation progressait jusqu'à 8 h, les tissus à parois cellulaires minces et non lignifiées dans le cortex, notamment le collenchyme, le chloroenchyme et le phloème secondaire, perdaient progressivement leur intégrité structurale, entraînant un flou des contours cellulaires (Figure 5C). À 24, 48 et 96 h, la majeure partie du tissu cortical environnant avait disparu, tandis que certaines parties de l'épiderme, du xylème interfaciculaire, de la moelle et des tissus vasculaires restaient visibles (Figure 5D–F). La perte de la structure anatomique environnante s'accompagnait d'un effondrement latéral de la région épidermique. À 96 h, la quantité de tissu coloré au rouge de ruthénium était nettement inférieure à celle observée aux temps d'incubation précédents (Figure 5F). Dans l'ensemble, la perte progressive du tissu de la tige durant l'incubation s'est accompagnée d'une réduction du nombre de cellules présentant une coloration positive au rouge de ruthénium. La dégradation et la disparition des cellules minces, non lignifiées et associées aux pectines étaient attendues, car les pectines se dégradent facilement au fil du temps.
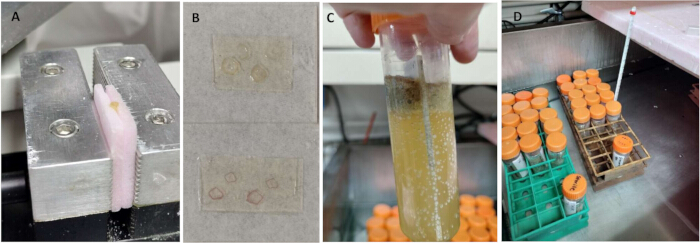
Figure 1: In vitro incubation de sections transversales de tiges de luzerne. (ADes segments de tige de luzerne ont été insérés entre deux morceaux d'isolant rigide en mousse de polystyrène expansé et montés sur une platine mobile de microtome pour la réalisation de coupes transversales.B) Quatre coupes transversales, chacune 100 μm épais, ont été fixés sur une lame de verre à l'aide de ruban adhésif double face pour in vitro incubation et coloration histologique. (CDeux lames de verre ont été placées dos à dos, avec le ruban adhésif double face orienté vers l'extérieur, dans un tube de 50 mL contenant 30 mL de solution d'inoculation composée de liquide du rumen et de tampon, ainsi que 0,2 g de tige de maïs broyée à 1 mm. Le tube a été purgé avec du CO₂ puis fermé hermétiquement pour l'incubation. La présence de bulles de gaz le long des parois du tube indiquait une fermentation active par les microorganismes du rumen durant l'incubation.D) Des porte-échantillons contenant les tubes de 50 mL ont été maintenus dans un 39 °C bain-marie pendant toute la durée de l'incubation. Le niveau d'eau recouvrait la solution d'inoculation tout en restant en dessous des ouvertures des tubes, empêchant ainsi l'eau d'entrer dans les tubes. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
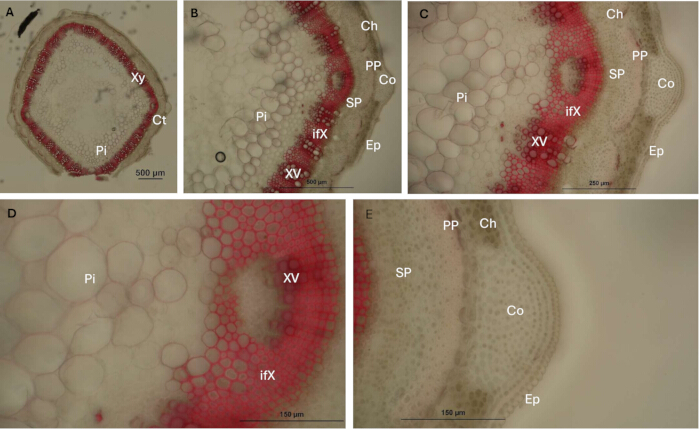
Figure 2 : La coloration de Wiesner des tissus de tige de luzerne indique la répartition des composants des parois cellulaires lignifiés. (A–E) Des coupes transversales de tige de luzerne non digérées (temps d'incubation = 0 h) ont servi de référence initiale pour identifier les tissus de la tige présentant une coloration de Wiesner. Les vaisseaux du xylème (XV), le xylème interfaciculaire (ifX) et les fibres du phloème primaire matures (PP) se colorent en fuchsia. Grossissements et échelles : (A) grille 5 × 5 d'images assemblées acquises avec un grossissement de 10×, échelle = 500 μm ; (B) 10×, échelle = 500 μm ; (C) 20×, échelle = 250 μm ; (D, E) 40×, échelles = 150 μm. Abréviations : Xy = xylème ; Ct = cortex ; Pi = moelle ; Ep = épiderme ; Co = collenchyme ; Ch = chlorenchyme ; SP = phloème secondaire ; XV = vaisseaux du xylème ; ifX = xylème interfaciculaire ; PP = fibres du phloème primaire matures. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
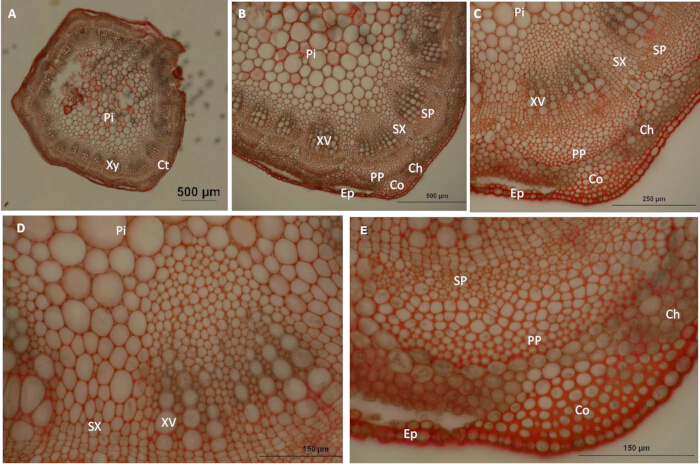
Figure 3 : La coloration au rouge de ruthénium des tissus de tige de luzerne indique la distribution des polysaccharides pectiques dans les parois cellulaires. (A–E) Des sections transversales de tige de luzerne non digérées (temps d'incubation = 0 h) ont servi de référence initiale pour identifier les tissus de la tige présentant une coloration au rouge de ruthénium. L'épiderme (Ep), le collenchyme (Co), le chlorenchyme (Ch), le phloème secondaire (SP) et la moelle (Pi) présentaient une coloration rouge. Le xylème secondaire (SX) et le phloème primaire mature (PP) présentaient également une coloration, tandis que les vaisseaux du xylème (XV) restaient relativement non colorés. Grossissements et échelles : (A) grille d'images assemblées de 5 × 5, acquise avec un grossissement de 10×, échelle = 500 μm ; (B) 10×, échelle = 500 μm ; (C) 20×, échelle = 250 μm ; (D, E) 40×, échelles = 150 μm. Abréviations : Xy = xylème ; Ct = cortex ; Pi = moelle ; Ep = épiderme ; Co = collenchyme ; Ch = chlorenchyme ; SP = phloème secondaire ; XV = vaisseaux du xylème ; SX = xylème secondaire ; PP = phloème primaire mature. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
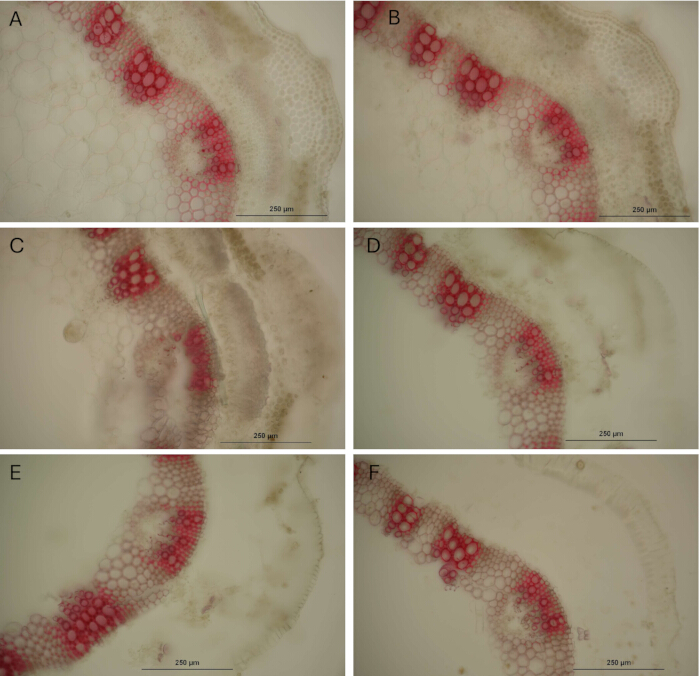
Figure 4 : Modifications des tissus de la tige de luzerne après incubation in vitro et coloration de Wiesner. Des sections transversales de tiges de luzerne provenant des mêmes entrenœuds ont été soumises à une incubation in vitro avec du liquide ruminal pendant (A) 0 h, (B) 4 h, (C) 8 h, (D) 24 h, (E) 48 h et (F) 96 h. Les vaisseaux xylémiens (XV), le xylème interfaciculaire (ifX) et les fibres phloémiennes primaires matures (PP) ont conservé la coloration de Wiesner tout au long des périodes d'incubation. Une faible coloration du ifX a été observée dans les tissus jeunes de la tige. À mesure que la durée d'incubation augmentait, les tissus environnants perdaient progressivement leur intégrité structurale, rendant ainsi les structures vasculaires colorées restantes de plus en plus visibles. Les barres d'échelle = 250 μm. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
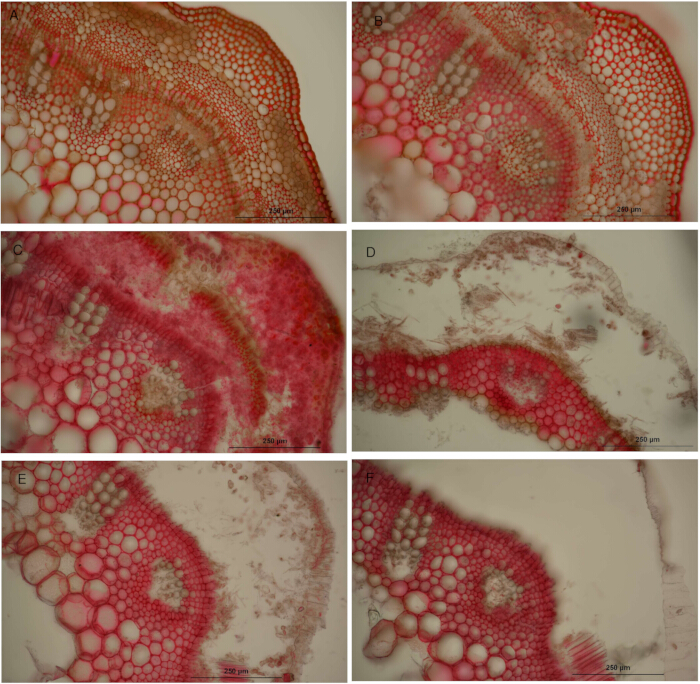
Figure 5 : Modifications des tissus de la tige de luzerne après incubation in vitro et coloration au rouge de ruthénium. Des coupes transversales de tiges de luzerne provenant des mêmes entrenœuds ont été soumises à une incubation in vitro avec du liquide ruminal pendant (A) 0 h, (B) 4 h, (C) 8 h, (D) 24 h, (E) 48 h et (F) 96 h. La coloration au rouge de ruthénium a été observée dans plusieurs tissus de la tige, tandis que les vaisseaux xylémiens (XV) sont restés relativement non colorés. Avec l’augmentation du temps d’incubation, une perte progressive de la structure tissulaire et de la coloration au rouge de ruthénium a été observée. Certaines parties des vaisseaux xylémiens, du xylème interfaciculaire (ifX) et de la région épidermique (Ep) sont restées visibles aux temps d’incubation plus tardifs. Barres d’échelle = 250 μm. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Paramètre | Réglage |
| Rapide (mise au point) | 2000 × 1328 |
| Qualité (acquisition) | 2000 × 1328 |
| Mode couleur | Couleur RVB |
| Profondeur de bits | 8 bits par canal |
| Profondeur de couleur effective | RVB 24 bits (8 bits R + 8 bits V + 8 bits B) |
| Gain | 2 |
| Temps d'exposition à 10x (ms) | 30 |
| Temps d'exposition à 20x (ms) | 50 |
| Temps d'exposition à 150x (ms) | 150 |
Tableau 1 : Paramètres du microscope et de la caméra pour l'acquisition d'images. Paramètres du microscope, de la caméra et de l'acquisition d'images utilisés pour l'imagerie en champ clair à l'aide d'un microscope droit équipé d'une caméra numérique couleur et d'un logiciel d'imagerie.
Discussion
Le matériel de luzerne utilisé dans la présente étude était constitué de clones provenant de cinq lignées de luzerne. Deux lignées expérimentales ont été sélectionnées après deux cycles de sélection divergente pour la digestibilité in vitro de la fibre au détergent neutre (IVNDFD), à partir de plantes mères présentant soit une faible IVNDFD à 16 h et une faible IVNDFD à 96 h, soit une forte IVNDFD à 16 h et une forte IVNDFD à 96 h12. Trois lignées commerciales au fond génétique inconnu ont également été incluses dans l'étude, et les plantes mères ont été sélectionnées sur la base d'une analyse par spectroscopie proche infrarouge afin d'identifier des individus présentant (a) la teneur la plus élevée en lignine, (b) la teneur la plus faible en lignine, et (c) la teneur la plus faible en fibre au détergent neutre et en fibre au détergent acide. Les cinq lignées de luzerne ont été transplantées en mai 2021 depuis une serre vers des essais champêtres répétés sur deux sites du Minnesota, États-Unis. Pour les récoltes de première et de deuxième coupe de chaque saison de croissance, 10 tiges de chaque lignée de luzerne ont été récoltées aux stades végétatif, début de bourgeonnement, début de floraison, floraison et gousses vertes du développement de la plante. Le septième entrenœud à partir de la base de chaque tige a été prélevé et placé dans un tube de 50 mL contenant un mélange 50:50 d'éthanol à 200 degrés et d'eau ultrapure, en vue d'un stockage jusqu'à l'incubation des sections transversales. Cette méthode a été élaborée à partir de travaux antérieurs réalisés par le groupe de laboratoire dans les années 1990, dans lesquels le septième entrenœud avait été choisi comme unité d'étude4,6.
In vitro, l'incubation avec du liquide ruminal et la coloration histologique des tiges de luzerne ont été utilisées pour mieux comprendre les modalités de dépôt des composants de la paroi cellulaire au sein des tissus tige dégradés. Les incubations in vitro simulent le degré de dégradation que subit une tige de luzerne dans le rumen, et la coloration histologique ultérieure met en évidence la lignine et les pectines dans les cellules où ces composants de la paroi restent détectables après une digestion microbienne contrôlée dans le temps. L'utilisation d'un microtome à glissière permet d'obtenir une épaisseur standardisée des coupes transversales, réduisant ainsi les artefacts de sectionnement susceptibles d'interférer avec les résultats13. Bien que seules la lignine et les pectines aient été examinées dans le présent protocole, d'autres colorants comme le bleu de toluidine, le bleu d'Astra et le Direct Red 23 peuvent également être utilisés pour la coloration histologique de ces composants et d'autres éléments de la paroi cellulaire14,15,16. De plus, la lumière polarisée peut être utilisée pour détecter la cellulose dans les parois cellulaires, et des réactifs fluorescents tels que le safranin O permettent de visualiser la lignine17 ainsi que les polysaccharides pariétaux. En outre, des anticorps peuvent être utilisés pour marquer spécifiquement certaines pectines18. Au-delà de la luzerne, ce protocole pourrait être appliqué à d'autres espèces. Toutefois, les réponses à la coloration peuvent varier selon les espèces, les génotypes, les stades de développement et les conditions environnementales19.
L'utilisation d'un ruban adhésif double face peu coûteux pour fixer des sections transversales de tige sur des lames de verre a déjà été décrite6,20. Avant de commencer ce protocole d'incubation in vitro, il était nécessaire d'identifier un ruban adhésif double face capable de résister à l'immersion dans un liquide pendant plusieurs jours et facilement disponible. Plusieurs types de rubans, différant par leur usage industriel prévu et leur épaisseur, ont été évalués. Brièvement, des morceaux de ruban double face d'un pouce de long ainsi que des sections transversales de tige ont été fixés sur des lames de verre puis immergés dans l'eau pendant des durées variables sur une période d'une semaine, afin de déterminer s'ils restaient solidement fixés aux lames. Certains rubans adhésifs se sont détachés des lames de verre, tandis que d'autres sont devenus opaques après une exposition prolongée au liquide. La perte de transparence du ruban a gêné l'observation microscopique et empêché l'obtention d'images de haute qualité des sections transversales de tige. Un ruban adhésif double face en vinyle s'est révélé le plus performant parmi les adhésifs testés. Le ruban utilisé lors des expériences initiales avait été acheté dans les années 1990 et restait efficace ; toutefois, le même produit n'a pas pu être réapprovisionné pour les expériences ultérieures. Par conséquent, le ruban sélectionné doit être testé préalablement à son utilisation afin de s'assurer que le ruban et les sections transversales restent bien fixés tout au long de la période d'incubation. Le ruban doit également rester transparent pour permettre l'acquisition d'images de haute qualité.
La partie d'incubation in vitro du protocole comportait plusieurs étapes sensibles au temps qui nécessitaient une planification et une coordination minutieuses. Le temps total requis pour la procédure d'incubation in vitro peut varier selon la taille de l'expérience. Par exemple, afin d'obtenir un jeu de données robuste de sections transversales de tiges, quatre tiges uniques de luzerne étaient montées sur chaque lame pour chaque échantillon × intervalle d'incubation in vitro × combinaison de colorants. Avec 16 échantillons, six intervalles d'incubation et deux colorants, un total de 768 sections transversales de tiges était nécessaire pour chaque série d'incubation in vitro. Environ 8 h étaient nécessaires pour préparer les 768 sections transversales, qui pouvaient ensuite être conservées toute la nuit dans des boîtes de Pétri contenant de l'eau ultrapure et montées le jour suivant. Avant le montage, 192 lames en verre et 96 tubes à centrifuger (50 mL) devaient être étiquetés. Le montage des sections prenait encore 8 h supplémentaires, car les sections étaient orientées de manière cohérente entre les intervalles d'incubation et les colorants afin de faciliter les comparaisons entre les tissus des tiges. Cette approche prenait plus de temps que le montage aléatoire des sections. Les lames montées étaient conservées toute la nuit dans de l'eau ultrapure avant le début de l'incubation in vitro le jour suivant. Pendant que les sections transversales de tiges de luzerne étaient préparées et montées, le tampon de McDougall devait également être préparé. Ce tampon pouvait être préparé au maximum 2 jours avant le début de l'incubation in vitro et devait être chauffé à 39 °C avant l'inoculation des sections montées. Ainsi, une planification et une préparation soigneuses étaient nécessaires pour mener à bien le protocole.
La coloration de Wiesner est couramment utilisée pour visualiser les structures associées à la lignine dans les tissus végétaux. Bien que cette méthode de coloration soit relativement simple21 et raisonnablement spécifique22, elle colore les groupes terminaux cinnamaldéhyde associés aux unités de lignine guaïacyl (G)13. Chez les angiospermes dicotylédones comme la luzerne, les unités G et syringyl (S) constituent les principaux composants du polymère de lignine, bien que des sous-unités à cycle H soient également présentes. La coloration de Wiesner peut donc sous-estimer la teneur totale en lignine dans la tige, car elle ne réagit pas avec la lignine S. Les unités G et S peuvent être présentes dans le xylème interfaciculaire et les fibres du phloème primaire (c’est-à-dire les tissus scléreux) ; par conséquent, bien que les unités S ne réagissent pas à la coloration de Wiesner, la coloration des unités G peut indiquer la présence de structures associées à la lignine dans ces tissus. La coloration de Mäule pourrait être utilisée pour visualiser les unités S et fournir une représentation plus complète des unités de lignine dans la tige13. Des variations de l’intensité de la coloration au rouge de ruthénium peuvent également survenir selon l’état d’estérification ou de désestérification de l’acide pectique23. La coloration peut varier d’une teinte jaune-orangée à une couleur rouge vif. Comme le rouge de ruthénium peut interagir avec plusieurs glucides, l’utilisation de cette coloration peut entraîner une surestimation de la teneur en pectine dans les tissus11. Étant donné que la proportion de lignine augmente au fur et à mesure que la tige de luzerne mûrit, la lignine peut également interférer avec la coloration de la pectine dans les tiges âgées. Les différences entre les nuances d’une même coloration peuvent être difficiles à distinguer visuellement ; toutefois, les technologies d’analyse d’image peuvent aider à surmonter cette limitation.
Après une incubation in vitro avec du liquide ruminal et une coloration histologique, des sections transversales de tiges peuvent être visualisées au microscope, et des images peuvent être acquises pour une analyse ultérieure. Étant donné que la coloration de Wiesner s'estompe en moins de 24 heures9, l'analyse microscopique en champ clair des tiges colorées pour la lignine doit être effectuée le jour même de la coloration, idéalement dans les 6 à 8 heures suivant celle-ci, afin d'assurer une coloration uniforme entre les images. La coloration au rouge de ruthénium conserve son intensité dans le temps ; par conséquent, l'acquisition des images le jour même est moins critique. Néanmoins, les images colorées au rouge de ruthénium ont également été acquises dans les 6 à 8 heures suivant la coloration, par souci de cohérence. Les images ont été acquises à l’aide d’une caméra numérique couleur à haute définition et haute résolution équipée d’un capteur d’image CMOS grand format. Les mêmes réglages d’exposition, de gain analogique, de profondeur de bits, de qualité d’image et de mise au point ont été utilisés afin d’assurer la comparabilité entre les images et de minimiser les variations introduites par des différences de paramètres d’acquisition. Le temps d’exposition a été ajusté en fonction du grossissement (10×, 20× et 40×) afin d’éviter les surexpositions ou sous-expositions et d’obtenir des images de haute qualité. Par conséquent, les comparaisons doivent être effectuées entre des images acquises au même grossissement afin de réduire les variations liées à des réglages d’exposition différents. Les paramètres d’imagerie peuvent nécessiter un ajustement selon le microscope et la caméra utilisés (Tableau 1). D'autres techniques de microscopie, notamment la microscopie électronique à balayage 6,20 et la microscopie en fluorescence14,15,17, ont également été utilisées pour visualiser les composants de la paroi cellulaire, bien que la microscopie en champ clair ait été employée dans le présent protocole.
Ce protocole a généré un vaste ensemble de données composé d'images de sections transversales de tiges (>15 000), qui pourrait être exploité pour compléter les informations qualitatives obtenues dans ce protocole par des colorations histologiques et les étendre à une analyse quantitative à l'aide de technologies d'apprentissage automatique. Des pipelines efficaces d'analyse d'images peuvent automatiser et accélérer l'extraction de données quantitatives à partir des images. Une collaboration avec des informaticiens peut faciliter la mise au point d'outils permettant de prétraiter les images, d'éliminer les bruits parasites et d'extraire les caractéristiques d'intérêt afin de tester plusieurs hypothèses. Les approches d'apprentissage automatique nécessitent des ensembles de données d'entraînement et de test appropriés et suffisamment volumineux pour garantir des performances robustes du modèle. Les petits ensembles de données peuvent être analysés à l'aide d'approches plus simples d'analyse d'images, telles que la mesure manuelle des caractères d'intérêt à l'aide d'un logiciel d'analyse d'images comme ImageJ24 ou à l'aide du logiciel d'analyse d'images associé au microscope25. Par conséquent, la prise en compte de l'utilisation prévue des images en aval peut améliorer l'efficacité du choix du type et du nombre d'images à acquérir, ainsi que de l'approche analytique ultérieure.
Déclarations de divulgation
Les auteurs déclarent que la recherche a été menée sans aucune relation commerciale ou financière pouvant être interprétée comme un conflit d'intérêts potentiel. La mention de noms commerciaux ou de produits commerciaux dans cette publication a uniquement pour but de fournir des informations spécifiques et n'implique aucune recommandation ni aucun aval de la part du Département américain de l'agriculture. Le USDA est un fournisseur et employeur garantissant l'égalité des chances. Toutes les expériences ont été menées conformément aux lois en vigueur aux États-Unis, pays dans lequel elles ont été réalisées.
Remerciements
Les auteurs remercient R. Ted Jeo pour ses précisions sur les travaux antérieurs connexes. Ils remercient également le University Imaging Center de l'Université du Minnesota - Twin Cities pour avoir fourni un accès aux logiciels d'acquisition et d'analyse d'images microscopiques afin de préparer les images à la publication. Ce travail a été soutenu par le Département de l'agriculture des États-Unis – Service de recherche agricole [062-21500-001-000D] et par l'accord de coopération sans assistance (n° 58-5062-2-016).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Feuille d'aluminium | Boardwalk | 7106BW | 18 in × 1 000 ft ; utilisée pour protéger les solutions de coloration sensibles à la lumière |
| Chlorure de calcium dihydraté, min. 99 % | Sigma Life Science | C7902-500G | N° CAS 10035-04-8 ; réactif pour le tampon de McDougall’s |
| Logiciel de caméra | Nikon | NIS-Elements AR 5.42.04 | Logiciel d'imagerie 64 bits utilisé pour l'acquisition et l'analyse d'images |
| Gaz de dioxyde de carbone | Matheson | UN1013 | Qualité technique ; utilisé pour maintenir des conditions anoxiques pendant la préparation et l'incubation |
| Bain-marie à circulation d'eau | Precision | — | Bain-marie à circulation thermostaté utilisé pour maintenir les échantillons à 39 °C |
| Étalon de tige de maïs | Université du Minnesota | NA | Récolté à l'automne 2023 à Saint-Paul, Minnesota, États-Unis ; broyé à 1 mm et utilisé comme substrat microbien |
| Lame de couverture | Thermo Scientific | 3419 | 24 mm × 30 mm, épaisseur n° 1,5, 1 once |
| Caméra microscopique couleur Digital Sight 10 avec capteur d'image CMOS grand format FX | Nikon | MQA20000 | Caméra numérique couleur utilisée pour acquérir des images microscopiques en champ clair |
| Microscope stéréoscopique | Nikon | SMZ18 | Microscope stéréo utilisé pour orienter et positionner les sections transversales de tige |
| Adhésif double face | SelloTape Office Vinyl Double Sided Tape | 4270 | 2 mm × 53 m ; utilisé pour fixer les sections transversales de tige sur des lames de verre |
| Balance électrique | AND | GH-202 | Balance analytique avec une lisibilité à quatre décimales |
| Flacon d'Erlenmeyer (125 mL) | Kimax | 25600 | Flacon de 125 mL ; compatible avec bouchon n° 5 |
| Flacon d'Erlenmeyer (25 mL) | Pyrex | 4980 | Flacon de 25 mL ; compatible avec bouchon n° 0 |
| Éthanol (200 preuves) | Fisher Scientific | 04-355-720 | Éthanol absolu utilisé pour la préparation des solutions de coloration et des rinçages préalables à la coloration |
| Isolant rigide en mousse de polystyrène expansé | Owens Corning | 1407788 | 1 in × 2 ft × 2 ft, R-5, mousse de 15 psi ; utilisée pour supporter les entrenœuds de tige pendant la sectionnement |
| Pince à épiler | Fisher Scientific | 10-316A | Pince de laboratoire utilisée pour manipuler les segments de tige, les lames et les sections montées |
| Lames de verre | FisherBrand | 125503 | 25 mm × 75 mm × 1 mm ; utilisées pour monter les sections transversales de tige |
| Flacon sphérique (6 L) | Pyrex | CLS43205L-4EA | Flacon en verre de 6 L utilisé pour la préparation ou la manipulation de grands volumes de solution |
| Glycérine, liquide de qualité laboratoire | Fisher Science Education | 525342C | N° CAS 56-81-5 ; glycérine utilisée dans les solutions de montage et de conservation |
| Sarbacane double épaisseur, qualité 50 | JINIOHEE Shop | B0FL27KXRN | 100 % coton, blanchi ; utilisé pour filtrer le matériel ruminal et le liquide ruminal |
| Cylindre gradué (10 mL) | Pyrex | 700024 | Cylindre gradué de 10 mL utilisé pour mesurer des volumes liquides |
| Acide chlorhydrique | Fisher | A1445-500 | N° CAS 7647-01-0 ; utilisé avec la phloroglucinol pour préparer la coloration de Wiesner |
| Marqueur industriel super permanent | Sharpie | 13601 | Pointe fine ; utilisé pour étiqueter les tubes d'incubation avec des marquages résistants à l'eau |
| Hydrate de chlorure de L-cystéine | Sigma-Aldrich | C121800-10G | N° CAS 345909-32-2 ; agent réducteur utilisé dans la préparation de la solution d'incubation |
| Papier essuie-tout sans peluches | Kimberly-Clark | 34155 | 4,5 in × 8,5 in ; utilisé pour éponger l'excès de liquide sur les lames sans laisser de fibres |
| Lame de microtome profil bas | Leica 819 | 63065-LP | Lame de remplacement profil bas utilisée pour préparer des sections transversales de tige uniformes |
| Sulfate de magnésium heptahydraté | Fisher Chemical | M80-500 | N° CAS 10034-99-8 ; réactif pour le tampon de McDougall’s |
| Barreau d'agitation magnétique | Fisher Scientific | 03-411-783 | 76 mm × 12 mm ; utilisé pour mélanger les solutions tampon et d'inoculation |
| Étiquettes d'adresse postale | Avery | 5167 | 1/2 in × 1 3/4 in ; utilisées pour l'identification des échantillons et des lames |
| Pinceau | Loew-Cornell | — | Série 7000, n° 3 rond ; pinceau fin utilisé pour transférer et manipuler les sections transversales de tige |
| Boîtes de Pétri avec couvercles | Becton Dickinson Labware | 81731119 | 60 mm × 15 mm ; utilisées pour le stockage temporaire des sections transversales de tige dans de l'eau ultrapure |
| Phloroglucinol, 1,3,5-trihydroxybenzène | Sigma-Aldrich | P3502-25G | N° CAS 108-73-6 ; réactif utilisé pour préparer la coloration de Wiesner |
| Pipette (100 μL) | Gilson | P 1000 ; 767547M | Pipette à volume réglable utilisée pour distribuer les solutions de coloration |
| Entonnoir utilitaire en plastique | Nalgene | 10-437-23E | 150 mm ; utilisé pour le transfert et la filtration des réactifs |
| Bécher en polypropylène (4 L) | Nalgene | 1201-4000 | Bécher résistant aux produits chimiques de 4 L utilisé pour la préparation et le mélange des solutions d'inoculation |
| Chlorure de potassium | Fisher Chemical | P217-500 | N° CAS 7447-40-7 ; réactif pour le tampon de McDougall’s |
| Blades de rasoir | Personna | 66-0089 | Épaisseur de 0,009 in ; utilisées pour le dégrossissage manuel du matériel végétal |
| Rouge de ruthénium, oxychlorure de ruthénium ammonié | Sigma | R-2751 | N° CAS 11103-72-3 ; colorant histologique utilisé pour visualiser les substances pectiques |
| Ciseaux | Fiskars | 1063071 | Ciseaux polyvalents utilisés pour couper le ruban adhésif, la mousse et autres consommables |
| Tubes coniques à vis de centrifugation (50 mL) | Corning | 430828 | Polypropylène, non pyrogène ; utilisés pour le maintien, l'incubation, le rinçage et le stockage des échantillons |
| Microtome à coulisse | Leica | 2000R | Microtome à coulisse utilisé pour préparer des sections transversales de tige de 100 μm d'épaisseur |
| Bicarbonate de sodium, qualité ACS | Fisher Chemical | S233-3 | N° CAS 144-55-8 ; réactif pour le tampon de McDougall’s |
| Chlorure de sodium | Fisher Chemical | — | N° CAS 7647-14-5 ; réactif pour le tampon de McDougall’s |
| Hydroxyde de sodium | Fisher Chemical | S318-500 | N° CAS 1310-73-2 ; utilisé dans la préparation de la solution réductrice |
| phosphate disodique anhydre (Na2HPO4) | Sigma Aldrich | S-9763 | N° CAS 7558-79-4 |
| Sulfure de sodium anhydre, ACS, min. 98,0 % | Oakwood Chemicals | 245960 | N° CAS 1313-84-4 ; agent réducteur utilisé dans la préparation de la solution d'incubation |
| Spatule de laboratoire cuillère | Fisher Scientific | 14-375-10 | Spatule de laboratoire utilisée pour transférer les réactifs en poudre |
| Agitateur magnétique | Thermolyne by Sybron | 7200 | Agitateur magnétique utilisé pour mélanger les solutions tampon et d'inoculation |
| Seringue (60 mL) avec aiguille large | Monoject | 935401028 | Seringue de 60 mL avec aiguille à large orifice utilisée pour distribuer la solution d'inoculation |
| Porte-tubes | Thermo Scientific | 14-809-44 | Supports utilisés pour organiser et maintenir les tubes d'incubation de 50 mL |
| Thermomètre | FisherBrand | 13201663 | Thermomètre de laboratoire utilisé pour vérifier la température des solutions et du bain d'eau |
| Microscope droit | Nikon | Eclipse Ni | Microscope droit en champ clair utilisé pour visualiser et imager les sections transversales de tige colorées |
| Pompe utilitaire | Little Giant Pump Co. | 502203 | Modèle 2E-38N ; 115 VAC, 60 Hz, 1,7 A ; utilisée pour faire circuler l'eau et maintenir une température uniforme du bain |
| Papier à peser | VWR Scientific Products | 12578-165 | Papier à peser jetable utilisé pour peser et transférer les réactifs solides et le substrat de tige de maïs |
Références
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible