Cet article présente un protocole rapide et reproductible permettant de modéliser les troubles de la mémoire de reconnaissance induits par la privation de sommeil chez la souris, en combinant une privation de sommeil par manipulation douce, un test de reconnaissance d'objet nouveau et une analyse des biomarqueurs hippocampiques chez les mêmes animaux au cours d'un processus de 10 jours, incluant une journalisation structurée des interventions et des critères prédéfinis de contrôle qualité.
Article de méthode
Un flux de travail rapide pour la modélisation des déficits de la mémoire de reconnaissance induits par la privation de sommeil chez la souris à l'aide de la reconnaissance d'objet nouveau et de biomarqueurs hippocampiques
* These authors contributed equally
Dans cet article
Résumé
Résumé
Un sommeil insuffisant contribue au déclin cognitif et pourrait accélérer les processus neurodégénératifs. Cet article présente un protocole rapide et reproductible permettant de modéliser des déficits de la mémoire de reconnaissance induits par la privation de sommeil chez la souris, tout en reliant les résultats comportementaux à des altérations moléculaires hippocampiques. Le protocole utilise un paradigme de privation de sommeil par manipulation douce d'une durée de 5 h, appliqué immédiatement après une session standardisée de familiarisation de 10 min au test de reconnaissance d'objet nouveau (NOR). La mémoire de reconnaissance est évaluée à l'aide d'un test NOR de 5 min après un intervalle de rétention précisément défini de 5 h, suivi immédiatement par la collecte de l'hippocampe des mêmes animaux afin de quantifier les cytokines pro-inflammatoires, notamment l'interleukine-1 bêta (IL-1β), l'interleukine-6 (IL-6) et le facteur de nécrose tumorale-alpha (TNF-α), ainsi que des marqueurs du stress oxydatif, notamment la superoxyde dismutase (SOD), la glutathion peroxydase (GPx) et le malondialdéhyde (MDA). L'avancée méthodologique principale ne réside pas dans les techniques comportementales ou biochimiques individuelles, qui sont bien établies, mais dans leur standardisation opérationnelle au sein d'un flux de travail intégré. Le protocole exige un journal structuré et quantifiable des interventions par manipulation douce, ancre l'entraînement et la privation à un point temporel circadien fixe, préserve les liens au niveau individuel entre les enregistrements NOR et les échantillons tissulaires, et précise a priori des critères de contrôle qualité et d'analyse. La procédure est conçue pour minimiser la contention physique et l'exercice forcé, peut être réalisée dans une fenêtre expérimentale courte, et est proposée comme un protocole de référence candidat que les laboratoires individuels peuvent utiliser pour évaluer leur propre mise en œuvre de la privation de sommeil par manipulation douce, sous réserve de réplication indépendante.
Introduction
Le sommeil est un processus physiologique fondamental essentiel au fonctionnement cérébral, à l'apprentissage et à la consolidation de la mémoire1. Un sommeil insuffisant est associé à un dysfonctionnement cognitif, à des troubles de l'humeur et à la progression de maladies neurodégénératives2. La privation expérimentale de sommeil (SD) chez les rongeurs est largement utilisée pour étudier les conséquences neurobiologiques d'une perte aiguë de sommeil. L'hippocampe, une région cérébrale centrale pour la mémoire déclarative et spatiale, est particulièrement vulnérable à la privation de sommeil3.
Plusieurs procédures sont disponibles pour induire une privation de sommeil chez les rongeurs. La méthode modifiée des plates-formes multiples peut réduire efficacement le sommeil paradoxal, mais risque d'entraîner un stress considérable et une fatigue physique importante4. En revanche, la manipulation douce (GH) maintient l'éveil par une stimulation sensorielle légère, telle que des tapotements sur la cage, une perturbation de la litière ou la présentation d'un nouveau matériel de nidification dès l'apparition de signes de sommeil. Une courte période de manipulation douce appliquée immédiatement après l'apprentissage peut perturber la consolidation de la mémoire dépendante de l'hippocampe, tout en évitant bon nombre des facteurs de confusion associés aux paradigmes de privation prolongée5. Étant donné que les interventions dans ce protocole sont déclenchées par des indices posturaux et comportementaux d'éveil plutôt que par une détection du sommeil paradoxal confirmée par EEG, la manipulation douce telle qu'appliquée ici constitue une méthode établie de privation totale de sommeil et non une technique spécifique au sommeil paradoxal, et elle est utilisée sous cette forme depuis plusieurs décennies6.
Le test de reconnaissance d'objet nouveau (NOR) est un dosage largement utilisé pour évaluer la mémoire de reconnaissance. Il repose sur la tendance naturelle des rongeurs à explorer un objet nouveau plus qu'un objet familier, sans nécessiter de récompense, de punition ni d'entraînement intensif7,8. On a montré que la privation de sommeil aiguë altère la discrimination entre objets nouveaux, fournissant ainsi un indicateur comportemental efficace d'une consolidation de la mémoire perturbée9. Au niveau moléculaire, la privation de sommeil peut induire une neuroinflammation hippocampique et un stress oxydatif, incluant une augmentation des niveaux de cytokines pro-inflammatoires et de produits de peroxydation lipidique, ainsi qu'une réduction de la capacité antioxydante10,11.
Le défi lié à l'application de ce modèle ne réside pas dans la disponibilité de ses éléments individuels, mais dans le manque de cohérence opérationnelle entre les études. La manipulation douce est souvent rapportée sans enregistrement structuré de l'intensité de l'intervention ; les paramètres comportementaux et moléculaires sont fréquemment recueillis sur des cohortes distinctes ; et les critères de contrôle qualité concernant le comportement d'exploration et la planification de la taille de l'échantillon ne sont pas toujours explicites. L'objectif général du présent article est de proposer un protocole normalisé pour modéliser les déficits de la mémoire de reconnaissance induits par la privation de sommeil, tout en associant chez les mêmes animaux les résultats comportementaux à des mesures moléculaires hippocampiques. La méthode comble ces lacunes en matière de reproductibilité en combinant, dans un seul protocole de 10 jours, une fenêtre de 5 h de manipulation douce après l'entraînement, un journal de l'intensité de l'intervention, la collecte comportementale et tissulaire sur la même cohorte, ainsi que des critères analytiques prédéfinis (Figure 1). Le manque de normalisation dans la mise en œuvre de la manipulation douce a déjà été signalé précédemment dans la littérature méthodologique sur la recherche sur le sommeil6.
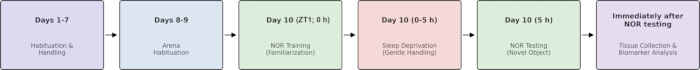
Figure 1. Représentation schématique du déroulement expérimental. Le protocole s'étend sur 10 jours, incluant la manipulation et l'habituation, suivis d'une journée de test cruciale comprenant une phase de familiarisation de 10 min avec le test NOR, une privation de sommeil de 5 h pendant le sommeil à ondes lentes (GH), un test NOR de 5 min, puis la collecte immédiate de tissu hippocampique chez les mêmes animaux pour l'analyse de biomarqueurs. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Protocole
Toutes les procédures animales ont été examinées et approuvées par le Comité de bien-être et d'éthique des animaux de laboratoire d'AILIMO (Zhejiang AILIMO Biotechnology Co., Ltd.) dans le cadre d'une demande soumise par l'hôpital Nanjing Drum Tower (Chercheur principal : Yuan Liu), numéro d'approbation AP CODE : ALM202605070, approuvé le 7 mai 2026 (valable 4 ans), conformément aux réglementations institutionnelles et nationales en vigueur. Utiliser des souris mâles adultes C57BL/6J âgées de 8 à 12 semaines pour le protocole décrit ci-dessous.
1. Préparation et habituation des animaux
- Élever les souris dans des conditions standard de laboratoire à 22 °C ± 1 °C et une humidité de 50 % à 60 %, avec un cycle de 12 h de lumière/12 h d'obscurité (allumage à 07 h 00, défini comme ZT0). Fournir un accès ad libitum à une nourriture standard pour rongeurs et à de l'eau.
- Manipuler chaque souris pendant 3 à 5 minutes chaque jour pendant au moins 7 jours consécutifs avant les tests.
REMARQUE : Cette procédure minimise le stress induit par la manipulation, qui pourrait fausser le comportement exploratoire. - Préparer une arène NOR carrée, opaque, mesurant 40 cm × 40 cm × 40 cm, avec des parois non réfléchissantes. Utiliser une arène dont la couleur contraste avec la couleur du pelage des animaux.
- Sélectionner des objets NOR suffisamment lourds pour éviter tout déplacement et fabriqués en matériau non poreux. Utiliser des objets qui se distinguent par leur forme et leur texture, tout en étant comparables par leur taille globale.
REMARQUE : Figure 2 montre la configuration d'entraînement et de test. - Les jours 8 et 9, transférer les souris dans la salle de test 1 heure avant l'habituation. Placer chaque souris dans l'arène vide pendant 10 minutes, puis la ramener dans sa cage d'origine.
- Nettoyer l'arène et les objets avec de l'éthanol à 70 % entre chaque animal. Laisser l'éthanol sécher à l'air pendant environ 3 à 5 minutes dans des conditions de ventilation standard de laboratoire avant d'introduire l'animal suivant.
PRÉCAUTION : L'éthanol est hautement inflammable. Assurer une ventilation adéquate et l'éloigner de toute source d'ignition.
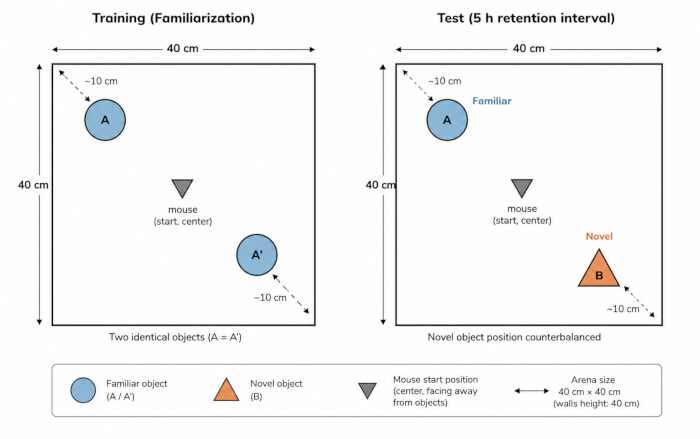
Figure 2. Schéma de l'appareil de reconnaissance d'objet nouveau et du plan expérimental. Pendant la phase de familiarisation, placer deux objets identiques (A et A′) dans des coins opposés de l'arène. Pendant la phase de test, après un intervalle de rétention de 5 h, remplacer l'un des objets familiers par un objet nouveau (B). Équilibrer la position de l'objet nouveau entre les côtés gauche et droit d'un animal à l'autre, environ la moitié des animaux de chaque groupe recevant l'objet nouveau dans chaque position, afin de minimiser les biais spatiaux. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
2. Entraînement au NOR (Familiarisation)
- Au jour 10, commencer l'entraînement au NOR à ZT1 (08h00 selon l'horloge lumineuse indiquée). Conserver cet horaire de début pour tous les groupes afin de minimiser les variations circadiennes.
- Transférer les souris dans la salle de test 1 heure avant le début de la séance d'entraînement. Placer deux objets identiques (A et A′) dans des coins opposés de l'arène, à environ 10 cm des murs.
- Fixer les objets au sol si nécessaire.
- Placer la souris au centre de l'arène, orientée dos aux objets. Laisser la souris explorer librement pendant 10 minutes.
- Enregistrer le comportement à l’aide d’un système de suivi vidéo aérien. Définir l’exploration active comme le fait de diriger le nez vers un objet à une distance ≤2 cm, de le renifler ou de le toucher avec le nez.
NOTE : Ne pas comptabiliser le fait de s’asseoir sur un objet ou de grimper dessus sans reniflage actif comme une exploration d’objet. - Enregistrer et analyser le comportement NOR à l’aide du logiciel EthoVision XT version 17.5 équipé d’une caméra aérienne Basler acA1300-60gm. Configurer le logiciel de suivi avec une zone de détection au niveau du nez de ≤2 cm autour de chaque objet pour évaluer l’exploration active, conformément aux critères définis à l’étape 2.5.
- À la fin de la séance de familiarisation de 10 minutes, retirer immédiatement la souris de l’arène.
- Nettoyer soigneusement l’arène et les objets avec de l’éthanol à 70 % avant d’introduire l’animal suivant.
3. Privation de sommeil par manipulation douce
- Avant la séance d'entraînement du jour 10, attribuez à chaque animal un code d'identification unique. Conservez ce code d'identification tout au long de l'enregistrement du comportement et du prélèvement des tissus.
- Attribuez les animaux aux groupes SD et NSD selon un ratio de 1:1 à l’aide de nombres aléatoires générés par ordinateur avec la fonction ALEA d’Excel.
- Immédiatement après l'entraînement NOR, ramenez les souris NSD dans leurs cages d'origine et laissez-les sans perturbation pendant 5 h. Maintenez les animaux SD et NSD dans des conditions environnementales identiques et au sein de la même fenêtre temporelle circadienne.
- Immédiatement après l'entraînement NOR, commencez la privation de sommeil GH pour les souris SD. Maintenez l'éveil pendant 5 heures consécutives dans la cage d'origine.
- Surveillez continuellement les animaux. Intervenez lorsque la souris adopte des postures liées au sommeil, telles que s'enrouler sur elle-même, fermer les yeux ou rester immobile de façon prolongée.
- Appliquez la stimulation progressivement, en commençant par un léger tapotement sur la cage. Si nécessaire, perturbez légèrement la litière, introduisez un objet nouveau et propre tel qu’un tube en papier, ou touchez délicatement l’animal avec un pinceau doux.
- Évitez toute contention physique, toute locomotion forcée et toute stimulation aversive ou douloureuse.
- Remplissez le journal d'intervention présenté dans Tableau 1 pour chaque cage tout au long des 5 h de la période GH. Notez le nombre approximatif d'interventions par heure, le type d'intervention prédominant, ainsi que toute déviation par rapport au protocole ou tout problème lié au bien-être.
- Utilisez le même modèle de journal d'intervention pour tous les groupes.
PRÉCAUTION : N'utilisez pas de contention physique, d'exercice forcé ou de stimuli douloureux, car ceux-ci peuvent indépendamment influencer la mémoire, le stress et les réponses inflammatoires.
| Numéro de cage/cohort | H1 | H2 | H3 | H4 | H5 | Type(s) d'intervention dominants | Déviations ou observations relatives au bien-être |
| Numéro d'enregistrement | Nombre d'enregistrements H1 | Nombre d'enregistrements H2 | Nombre d'enregistrements H3 | Nombre d'enregistrements H4 | Nombre d'enregistrements H5 | Tapotement / litière / objet nouveau / brosse douce | Enregistrer si présent |
Tableau 1 : Modèle de journal d'intervention de manipulation douce. Enregistrez l'identifiant de la cage ou du groupe, le nombre d'interventions de manipulation douce effectuées chaque heure pendant la période de privation de sommeil de 5 h (H1–H5), le ou les types d'intervention dominants, ainsi que toute déviation au protocole ou observation relative au bien-être.
4. Phase de test NOR
- Exactement 5 h après la fin de l'entraînement NOR, commencer la phase de test NOR afin de maintenir un intervalle de rétention fixe de 5 h.
- Placer un objet familier (A) et un objet nouveau (B) dans l'arène.
- Équilibrer la position de l'objet nouveau entre les animaux en alternant sa place entre les côtés gauche et droit, de sorte qu'environ la moitié des animaux de chaque groupe reçoivent l'objet nouveau à gauche et l'autre moitié à droite.
- Placer la souris au centre de l'arène. Laisser la souris explorer librement pendant 5 min.
- Enregistrer la session à l’aide du même système de suivi vidéo aérien utilisé lors de la phase de familiarisation. Appliquer la définition de l’exploration précisée à l’étape 2.5.
- Nettoyer l’arène et les objets avec de l’éthanol à 70 % entre chaque animal.
5. Prélèvement de tissus et dissection de l'hippocampe sur le même lot
- Immédiatement après le test NOR, identifier le même animal ayant subi le test comportemental pour la collecte de tissus.
- Procéder à l'euthanasie de l'animal par découpage cervical sans anesthésie, conformément au protocole animal approuvé, afin d'éviter les effets perturbateurs potentiels des agents anesthésiques sur les biomarqueurs inflammatoires et dépendants de la phosphorylation. Prélever les tissus cérébraux immédiatement après l'euthanasie.
- Conserver l'identifiant unique d'enregistrement comportemental de l'animal sur tous les tubes d'échantillons et les dossiers afin de garantir que chaque échantillon moléculaire reste directement associé au résultat NOR de cet animal.
- Extraire rapidement le cerveau et le placer sur une surface de dissection stérile et glacée.
- Séparer les hémisphères par une incision médiane sagittale. Dissecter l'hippocampe de chaque hémisphère à l'aide de micro-spatules refroidies.
- Plonger brusquement les hippocampes disséqués dans l'azote liquide pour les congeler instantanément. Conserver les échantillons à −80°C jusqu'à l'analyse.
ATTENTION : L'azote liquide peut provoquer de graves blessures par le froid. Porter des équipements de protection individuelle cryogéniques adaptés.
6. Quantification des biomarqueurs de l'hippocampe
- Compléter le tampon de lyse RIPA glacé avec un cocktail inhibiteur combiné de protéases et de phosphatases à une concentration de travail de 1× (10 µL par mL de tampon de lyse à partir d'un stock à 100×).
- Homogénéiser le tissu hippocampique selon un rapport tissu/tampon de 1:10 (p/v) dans le tampon de lyse RIPA glacé complété (10 µL de tampon de lyse par mg de tissu). Pour une masse tissulaire hippocampique typique d'environ 25–30 mg par hémisphère, utiliser environ 250–300 µL de tampon de lyse par hémisphère, soit environ 500–600 µL pour environ 50–60 mg de tissu hippocampique bilatéral.
- Centrifuger l'homogénat RIPA à 14 000 × g pendant 15 min à 4 °C et récupérer le surnageant. Utiliser le surnageant pour la quantification des protéines totales et les trois dosages ELISA des cytokines.
NOTE : Utiliser les tampons d'homogénéisation spécifiques aux kits pour les dosages de la SOD, de la GPx et du MDA conformément aux recommandations des fabricants afin de préserver l'activité enzymatique. - Préparer un homogénat hippocampique séparé à 10 % (p/v) pour les mesures de SOD, GPx et MDA selon un rapport tissu/tampon de 1:9, en utilisant le tampon d'homogénéisation spécifique au kit correspondant au lieu du tampon de lyse RIPA.
- Déterminer la concentration totale en protéines à l'aide d'un dosage protéique BCA.
- Quantifier l'IL-1β, l'IL-6, le TNF-α, la SOD, la GPx et le MDA à l'aide des kits ELISA ou biochimiques spécifiques aux cibles listés dans le Tableau des matériaux. Suivre les instructions du fabricant pour chaque dosage.
- Préparer les étalons dans le tampon de dosage correspondant. Diluer les échantillons de sorte que les valeurs d'absorbance se situent dans la portion linéaire de la courbe d'étalonnage.
- Diluer les échantillons hippocampiques pour les dosages ELISA des cytokines d'environ 1:5 avec le diluant de dosage correspondant. Ajuster la dilution dans une plage de 1:2 à 1:10 selon les besoins afin d'obtenir des valeurs d'absorbance dans la portion linéaire de la courbe d'étalonnage.
- Utiliser directement les surnageants des homogénats hippocampiques à 10 % (p/v) décrits à l'étape 6.4 pour les dosages de la SOD, de la GPx et du MDA. Ne pas appliquer le schéma de dilution utilisé pour les dosages ELISA des cytokines décrit à l'étape 6.8 à ces trois dosages.
- Pour les dosages ELISA de l'IL-1β, de l'IL-6 et du TNF-α, ajouter 100 µL d'étalon ou d'échantillon hippocampique convenablement dilué par puits en double exemplaire et incuber à 37 °C pendant 90 min. Ajouter 100 µL d'anticorps de détection biotinylé et incuber à 37 °C pendant 60 min.
- Ajouter 100 µL de conjugué HRP dans chaque puits des dosages ELISA des cytokines et incuber à 37 °C pendant 30 min. Révéler avec le substrat TMB à 37 °C à l'abri de la lumière pendant environ 15 min.
- Pour le dosage de la SOD, mélanger 20 µL de surnageant d'homogénat hippocampique avec 20 µL de solution enzymatique de travail et 200 µL de solution substrat. Incuber à 37 °C pendant 20 min et mesurer l'absorbance à 450 nm.
- Pour le dosage de la GPx, combiner 200 µL de surnageant d'homogénat hippocampique avec le mélange réactionnel contenant du GSH et incuber à 37 °C pendant 5 min. Arrêter la réaction et centrifuger le mélange à 3500 × g pendant 10 min à 4 °C. Soumettre le surnageant au développement colorimétrique pendant environ 15 min et mesurer l'absorbance à 412 nm en utilisant 200 µL du surnageant réactionnel.
- Pour le dosage du MDA, mélanger 100 µL de surnageant d'homogénat hippocampique avec 1,0 mL de réactif de travail MDA et incuber dans un bain-marie à 95 °C pendant 40 min. Refroidir et centrifuger le mélange. Transférer environ 250 µL du surnageant dans une microplaque et mesurer l'absorbance à 532 nm.
- Pour les dosages ELISA des cytokines, lire l'absorbance à la longueur d'onde spécifiée par le kit, généralement 450 nm, en utilisant une correction par longueur d'onde de référence lorsque celle-ci est disponible.
- Générer une courbe d'étalonnage en utilisant un modèle approprié, tel que la régression logistique à quatre paramètres. Normaliser chaque mesure de biomarqueur au contenu total en protéines.
- Exprimer les concentrations en cytokines en pg/mg de protéine, les activités des enzymes antioxydantes en U/mg de protéine et le MDA en nmol/mg de protéine, lorsque cela est compatible avec le kit sélectionné.
7. Analyse des données et contrôle de qualité
- Extraire le temps d'exploration consacré à l'objet familier (Tfamilier) et l'objet nouveau (Tnouveau) lors de la phase de test NOR.
- Calculer l'indice de discrimination (ID) comme suit :
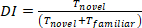 .
REMARQUE : un indice de discrimination (DI) supérieur à 0,5 indique une préférence pour l'objet nouveau. - Exclure un animal de l'analyse NOR lorsque le temps total d'exploration des objets (Tnouveau + Tfamilierest inférieure à 10 s. Appliquer ce critère avant l'analyse au niveau des groupes et indiquer toutes les exclusions.
- Évaluer la normalité pour chaque groupe à l’aide du test de Shapiro-Wilk et l’homogénéité des variances à l’aide du test de Levene. Pour chaque groupe, évaluer l’indice de discrimination (DI) par rapport au niveau de chance de 0,5 à l’aide d’un test t apparié unilatéral bilatéral ; si l’hypothèse de normalité n’est pas satisfaite, utiliser à la place un test de Wilcoxon unilatéral apparié par rangs signés par rapport à 0,5.
- Fixer alpha à 0,05 pour tous les tests statistiques, sauf indication contraire.
- Comparer l'indice de diversité (DI) entre les groupes NSD et SD indépendants à l'aide d'un test t non apparié bilatéral lorsque les hypothèses de normalité et d'homogénéité des variances sont satisfaites. Utiliser un test U de Mann-Whitney dans le cas contraire.
- Analyser le temps d'exploration des objets familiers par rapport aux objets nouveaux à l'aide d'une analyse de variance à mesures répétées à deux facteurs, avec Groupe et Type d'objet comme facteurs. Réaliser des comparaisons par paires post hoc corrigées selon Sidak et indiquer les intervalles de confiance à 95 % associés à toutes les estimations de comparaison entre groupes.
- Comparer chaque biomarqueur hippocampique entre les groupes NSD et SD indépendants à l'aide d'un test t non apparié bilatéral lorsque les hypothèses de normalité et d'homogénéité des variances sont satisfaites. Utiliser un test U de Mann-Whitney dans le cas contraire.
- Lors de l'évaluation de plusieurs biomarqueurs à partir de la même cohorte, contrôlez le taux de faux positifs au sein du panel de biomarqueurs à l'aide de la procédure de Benjamini–Hochberg. Présentez à la fois les p-values nominales et celles ajustées par le taux de faux positifs.
- Effectuer une analyse de puissance a priori à l'aide du logiciel G*Power version 3.1 pour une comparaison indépendante bilatérale, en utilisant l'indice de discrimination dans le test NOR comme critère principal. Baser l'effet attendu sur des études précédemment publiées démontrant un déficit marqué de la préférence pour l'objet nouveau après une privation de sommeil post-apprentissage.
- Effectuer l'analyse de puissance a priori en utilisant une taille d'effet standardisée de Cohen d = 1,35, un alpha bilatéral de 0,05, une puissance de 80 % et un ratio d'affectation de 1:1. Ces paramètres conduisent à une taille d'échantillon minimale calculée de 10 animaux par groupe.
REMARQUE : La taille de l'effet a été estimée à partir de données de reconnaissance d'objets publiées précédemment9. Palchykova et al. ont signalé un effet de groupe significatif sur la durée d'exploration de l'objet nouveau pendant la phase de test (F(1,16) = 8.26, p < 0,007) pour les souris privées de sommeil immédiatement après l'entraînement par rapport aux témoins appariés en temps (n = 9 par groupe), correspondant à celui de Cohen d ≈ 1.36. Une taille d'effet standardisée de d = 1,35 a donc été adopté pour l'analyse de puissance a priori. - Augmenter la taille prévue de l'échantillon de 20 %, soit 12 animaux par groupe (24 animaux au total), afin de tenir compte d'exclusions comportementales ou techniques préspécifiées. Préspécifier l'exploration totale des objets <10 s lors du test NOR, les exclusions liées au bien-être, les enregistrements vidéo inutilisables et les défaillances techniques des dosages sur tissus/échantillons en tant que critères d'exclusion.
- Ne pas exclure d'animaux en fonction du sens ou de l'ampleur de l'effet thérapeutique observé.
- Effectuer les analyses statistiques à l'aide de Python version 3.12, de SciPy version 1.17 pour les tests d'hypothèse et le calcul des tailles d'effet, et de statsmodels version 0.14 pour la correction du taux de faux positifs selon Benjamini–Hochberg.
- Lors de l'utilisation de ce protocole pour générer un jeu de données formel, indiquez les tailles d'effet (par exemple, d de Cohen) d pour les comparaisons entre groupes) accompagnés des valeurs de p pour tous les tests statistiques spécifiés aux étapes 7.4 à 7.9.
Résultats
Une mise en œuvre réussie de ce protocole devrait produire un profil cohérent d'issues comportementales et moléculaires, sans nécessiter l'interprétation d'aucune mesure individuelle de manière isolée. La séquence expérimentale complète est illustrée dans Figure 1, et l'appareil NOR et le dispositif expérimental sont présentés dans Figure 2. Dans le groupe NSD, les souris doivent présenter une préférence marquée pour l'objet nouveau, reflétée par un indice de discrimination (DI) supérieur au niveau de chance de 0,5. Les souris exposées au protocole d'administration de GH 5 h après l'entraînement doivent montrer une préférence atténuée pour l'objet nouveau et un DI inférieur à celui des témoins NSD. Le temps total d'exploration des objets doit rester comparable entre les groupes ; une réduction globale de l'exploration suggérerait la présence de facteurs de confusion liés à la motricité, à l'anxiété ou aux procédures, plutôt qu'un déficit sélectif de la mémoire de reconnaissance. Dans la cohorte actuelle (NSD, n = 12 ; SD, n = 12, dont un animal a été exclu selon le seuil prédéfini de temps d'exploration total à l'étape 7.3, laissant n = 11 pour l'analyse NOR ; cette exclusion a été appliquée de manière cohérente aux analyses de l'indice de discrimination et du temps total d'exploration rapportées ci-dessous), les souris NSD ont présenté un DI moyen de 0,70 ± 0,05 (moyenne ± SD), nettement au-dessus du niveau de hasard de 0,5 (test t pour un échantillon, t(11) = 15.21, p < 0,0001), tandis que les souris SD présentaient un indice de discrimination (DI) moyen de 0,51 ± 0,05, pas significativement différent du hasard (t(10) = 0.49, p = 0,638). L'ID différait significativement entre les groupes (test t non apparié, t(21) = 9.28, p < 0,0001 ; d de Cohen d = 3,87 ; différence moyenne = 0,19, IC 95 % [0,15 ; 0,23]) (Figure 3A). Le temps total d'exploration ne différait pas de manière significative entre les groupes (NSD : 33,5 ± 8,7 s ; ÉT : 29,9 ± 6,2 s; t(21) = 1.13, p = 0.272) (Figure 3B), ce qui est compatible avec un effet sélectif sur la mémoire de reconnaissance plutôt qu'une réduction généralisée du comportement exploratoire.
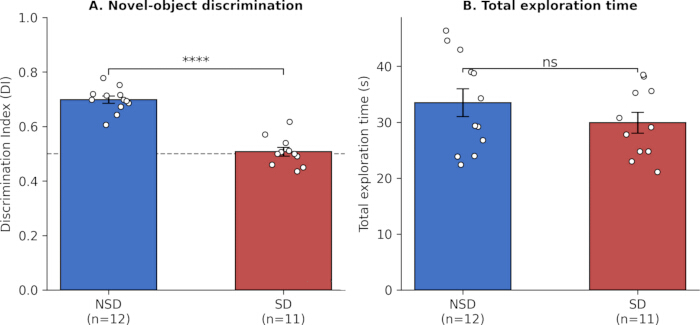
Figure 3. Performance dans la reconnaissance d'objets nouveaux. (A) Indice de discrimination (ID) pour les groupes NSD (n = 12) et SD (n = 11 ; un animal a été exclu selon le seuil prédéfini de temps total d'exploration). La ligne pointillée indique le niveau de chance de 0,5. (B) Temps total d'exploration des objets pendant la phase de test pour les groupes NSD (n = 12) et SD (n = 11 ; la même exclusion que dans le panneau A). Les barres représentent la moyenne ± ERPM ; les cercles ouverts représentent les animaux individuels. ****p < 0,0001 ; ns, non significatif (test t non apparié bilatéral). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Le journal des interventions (Tableau 1) doit montrer que l'état GH a été maintenu à l'aide d'interventions sensorielles douces et progressivement intensifiées, plutôt que par contention ou locomotion forcée. De grandes différences dans le nombre d'interventions horaires entre les cohortes doivent inciter à revoir les conditions de logement, la cohérence des observateurs et les pratiques de manipulation avant d'interpréter des différences comportementales. Parmi les 12 cohortes enregistrées dans cette étude, le nombre d'interventions horaires pendant la fenêtre GH de 5 h variait de 1 à 6 par heure, principalement constitué de tapotements sur la cage et de perturbations de la litière, les interventions avec une brosse douce et des objets nouveaux étant utilisées moins fréquemment ; aucune cage n'a nécessité de contention physique ou de locomotion forcée, et aucune déviation en matière de bien-être n'a été observée.
Les mesures biochimiques recueillies chez les mêmes animaux doivent fournir un contexte moléculaire au phénotype comportemental. Un modèle de privation de sommeil (SD) réussi devrait présenter un profil coordonné d'augmentation de la charge hippocampique en cytokines pro-inflammatoires, de diminution de l'activité des enzymes antioxydantes et d'élévation des marqueurs de peroxydation lipidique par rapport à des témoins appariés non privés de sommeil (NSD). L'association de chaque échantillon tissulaire à l'enregistrement correspondant du test de reconnaissance d'objet nouveau (NOR) permet une évaluation au niveau individuel de la concordance entre comportement et paramètres moléculaires, tout en évitant les variations par lots introduites par l'utilisation de cohortes comportementales et biochimiques distinctes. Dans la cohorte actuelle (NSD, n = 12 ; SD, n = 12), les six biomarqueurs hippocampiques différaient significativement entre les groupes dans le sens attendu, et tous sont restés significatifs après correction FDR de Benjamini–Hochberg appliquée à l'ensemble des six biomarqueurs : IL-1β (NSD 43,4 ± 7,5 contre SD 58,6 ± 5,3 pg/mg de protéine ; t(22) = −5,73, nominal p < 0,0001, ajusté par FDR p < 0.0001, d = −2,34), IL-6 (57,8 ± 8,1 contre 71,8 ± 7,4 pg/mg ; t(22) = −4,42, nominal p = 0,0002, ajusté par FDR p = 0.0002, d = −1,81), TNF-α (40.5 ± 7,8 contre 55,1 ± 7,8 pg/mg ; t(22) = −4,60, nominal p = 0,0001, ajusté pour le FDR p = 0.0002, d = −1,88), SOD (18,0 ± 2,0 contre 14,0 ± 1,8 U/mg ; t(22) = 5,16, nominal p < 0,0001, ajusté par FDR p < 0.0001, d = 2,11), GPx (13,2 ± 0,9 contre 10,8 ± 1,4 U/mg ; t(22) = 4,92, nominal p < 0,0001, ajusté par FDR p < 0.0001, d = 2,01) et MDA (3,5 ± 0,3 contre 4,9 ± 0,8 nmol/mg ; t(22) = −5,59, nominal p < 0,0001, ajusté pour le FDR p < 0.0001, d = −2,28). Ces données sont présentées dans Figure 4. Les points de données individuels présentés dans Figure 3 et Figure 4 sont les mesures expérimentales réelles obtenues dans ce groupe, et toutes les moyennes, tailles d'effet, valeurs de p et intervalles de confiance rapportés ont été calculés directement à partir de ces mêmes données brutes.
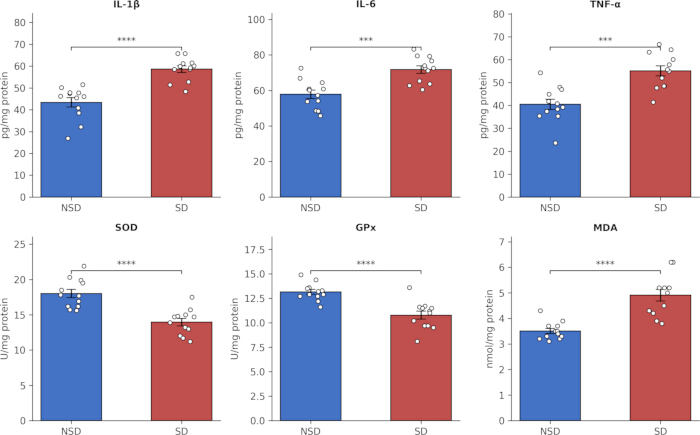
Figure 4. Biomarqueurs hippocampiques chez des souris NSD par rapport à des souris SD. Niveaux hippocampiques de l'IL-1β, de l'IL-6 et du TNF-α (cytokines pro-inflammatoires), de la SOD et de la GPx (enzymes antioxydantes) et du MDA (marqueur de peroxydation lipidique) chez des souris NSD (n = 12) et SD (n = 12). Les barres représentent la moyenne ± erreur standard de la moyenne (ESM) ; les cercles ouverts représentent les animaux individuels. Les symboles de significativité reflètent les valeurs de p ajustées selon la procédure de Benjamini–Hochberg pour le taux de fausses découvertes (FDR) sur l'ensemble des six biomarqueurs. ***p < 0,001 et ****p < 0,0001 après ajustement FDR (tests t non appariés bilatéraux). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Si les souris NSD ne montrent aucune préférence pour l'objet nouveau, si l'exploration totale est inférieure au seuil prédéfini, ou si la variance du biomarqueur est anormalement élevée, vérifiez l'habituation, le choix des objets, la cohérence de l'intervention, l'identification des échantillons et le moment du traitement des tissus avant de répéter la cohorte, comme résumé dans Tableau 2. Ces résultats correspondent à des performances expérimentales sous-optimales nécessitant un dépannage avant interprétation. Dans la cohorte actuelle, un animal SD (M19) a été exclu de l'analyse NOR conformément au seuil prédéfini d'exploration totale (8,7 s ; Étape 7.3), illustrant le type de résultat sous-optimal couvert par ce critère ; aucun animal NSD n'a échoué à montrer une préférence pour l'objet nouveau, et aucune cohorte n'a présenté de variance anormalement élevée du biomarqueur nécessitant la répétition de la cohorte dans ce jeu de données.
| Problème | Cause possible | Solution |
| Exploration globale faible dans le test NOR | Habituation insuffisante, anxiété élevée ou perturbations environnementales excessives | Étendre la manipulation quotidienne ; s'assurer que la pièce d'essai est calme et faiblement éclairée ; vérifier l'habituation à l'arène avant l'entraînement. |
| Absence de préférence pour l'objet nouveau chez les témoins NSD | Objets présentant une préférence innée différente ou insuffisamment distincts | Pré-évaluer les objets chez des animaux naïfs ; utiliser des objets aux textures/formes clairement différentes mais de taille et d'accessibilité comparables. |
| Grande variation du nombre d'interventions GH | Seuils d'observation inconstants ou conditions de cage variables | Former les observateurs à utiliser les mêmes critères d'éveil ; utiliser le même registre d'interventions ; standardiser la litière, l'enrichissement de la cage et les conditions environnementales. |
| Grande variabilité des mesures des biomarqueurs | Délai de dissection, identité des échantillons incohérente ou dégradation des échantillons | Conserver la correspondance entre comportement et identifiants des échantillons ; standardiser le moment de la dissection ; congeler rapidement par trempe ; maintenir les échantillons sur glace pendant l'homogénéisation. |
| Les souris SD montrent un stress marqué | Manipulation trop intense | N'utiliser que des interventions sensorielles douces ; interrompre et suivre les procédures de bien-être approuvées si un stress est observé. |
Tableau 2 : Résolution des problèmes. Problèmes courants rencontrés lors du NOR, de la privation de sommeil par manipulation douce et du protocole d'analyse des biomarqueurs hippocampiques, ainsi que leurs causes possibles et les mesures correctives recommandées.
Discussion
Cet article fournit un cadre rapide et reproductible pour l'étude des déficits de la mémoire de reconnaissance induits par une privation aiguë de sommeil et des modifications moléculaires hippocampiques associées. En appliquant 5 h de manipulation douce immédiatement après une phase d'apprentissage standardisée de 10 min, la procédure cible une fenêtre de consolidation post-apprentissage bien définie et est conçue pour réduire la charge physique associée aux modèles de privation prolongée ou aux procédures basées sur un mouvement forcé4,5. Toutefois, cette soumission ne comprend pas de mesures directes des hormones de stress permettant de confirmer une réponse physiologique au stress plus faible, comme discuté ci-dessous dans les limites de la méthode.
Les facteurs techniques les plus critiques sont l'habituations, le choix cohérent des objets, le respect d'un intervalle de rétention fixe de 5 h et une surveillance continue mais non aversive pendant le GH. Étant donné que le NOR repose sur l'exploration spontanée, une anxiété résiduelle ou une mauvaise habituation à l'arène peut réduire l'exploration des objets et masquer les effets liés à la mémoire8. Le critère d'exclusion prédéfini relatif au temps d'exploration et le journal des interventions constituent des contrôles de qualité pratiques qui aident à distinguer un test comportemental raté d'un phénotype de mémoire authentique. Lorsque l'exploration globale est faible, l'animal témoin NSD ne montre aucune préférence pour l'objet nouveau, le nombre d'interventions GH varie fortement, les mesures de biomarqueurs présentent une grande variabilité ou les souris SD manifestent un stress marqué, les chercheurs doivent consulter les procédures de dépannage correspondantes dans Tableau 2 avant de répéter ou d'interpréter l'expérience.
Plutôt que de représenter une simple concaténation de techniques préalablement établies, la contribution progressive de ce protocole réside dans quatre éléments opérationnels spécifiques destinés à améliorer la reproductibilité plutôt que la disponibilité des techniques. Premièrement, le journal d'intervention obligatoire (Protocole, étape 3 et Tableau 1) introduit un enregistrement quantifiable et comparable permettant de standardiser l'intensité de la privation totale de sommeil (GH) entre différentes cohortes et études. La technique elle-même possède une histoire bien établie, tandis que le présent protocole met l'accent sur la standardisation opérationnelle de sa mise en œuvre. Ceci est conforme à l'histoire établie de la GH en tant que méthode de privation totale de sommeil et au manque noté précédemment de standardisation dans son application à travers les études6. Deuxièmement, le protocole impose un plan expérimental utilisant la même cohorte, dans lequel les paramètres comportementaux et moléculaires sont recueillis chez des animaux identiques et individuellement suivis au sein d'un pipeline unique de 10 jours ; ce plan vise à réduire les variations associées à la collecte de paramètres comportementaux et biochimiques sur des cohortes distinctes. Troisièmement, le protocole fixe la période d'entraînement et de privation à un repère circadien défini (ZT1, Protocole, étape 2) et exige que les cohortes NSD et SD soient maintenues dans des conditions de lumière identiques (Protocole, étape 3), contrôlant ainsi le moment circadien au sein du protocole. Quatrièmement, le protocole précise a priori des critères de contrôle qualité et d'analyse, incluant un seuil minimal de temps d'exploration (Protocole, étape 7), un rapport transparent des exclusions, une planification prospective de la puissance statistique, des tests du DI par rapport au niveau de chance de 0,5, la vérification des hypothèses, une correction pour les comparaisons multiples entre biomarqueurs, et la présentation de la taille de l'effet. Ensemble, ces éléments transforment des méthodes individuellement établies en un flux opératoire explicite et transférable, proposé comme un cadre de référence potentiel contre lequel chaque laboratoire pourra évaluer sa propre mise en œuvre, sous réserve d'adoption et de réplication indépendantes, plutôt que comme un rapport sur une découverte biologique spécifique.
Le protocole présente plusieurs limites. La méthode GH est laborieuse et nécessite une attention continue de l'expérimentateur, ce qui limite le débit expérimental. De plus, la méthode GH maintient l'éveil mais ne quantifie pas en elle-même l'architecture du sommeil. De futures applications pourraient intégrer une validation pilote par EEG/EMG afin de documenter les états de vigilance et de vérifier l'ampleur de la privation de sommeil induite par la procédure GH avant d'appliquer le protocole à une cohorte expérimentale complète. Des mesures de corticostérone pourraient également être intégrées dans de futures applications afin d'évaluer les effets liés au stress de l'intervention. Ces mesures ne font pas partie du protocole actuel et ne doivent donc pas être interprétées comme une validation effectuée dans cette étude. Le test NOR est sensible à la mémoire de reconnaissance, mais n'évalue pas de façon exhaustive la navigation spatiale ou la mémoire de travail ; des tests complémentaires tels que le labyrinthe en Y, le labyrinthe de Barnes ou d'autres tâches en un seul essai peuvent être ajoutés lorsque l'on cherche à obtenir un profil cognitif plus large. La méthode modifiée des plates-formes multiples représente une approche alternative pour induire expérimentalement une privation de sommeil et a déjà été utilisée pour quantifier la perte et la récupération du sommeil4 ; en revanche, le protocole GH actuel met l'accent sur une intervention sensorielle modérée sans locomotion forcée. Toutefois, comme les marqueurs physiologiques de stress n'ont pas été mesurés directement dans ce protocole, aucune conclusion ne peut être tirée ici quant à savoir si la méthode GH induit une réponse de stress physiologique moindre.
La méthode doit donc être considérée comme une plateforme d'entrée standardisée plutôt que comme un modèle complet de toutes les conséquences cognitives de la privation de sommeil. Sa valeur réside dans le lien explicite entre une intervention contrôlée en hormone de croissance (GH) après l'apprentissage, une mesure comportementale conçue pour minimiser la manipulation physique par rapport aux paradigmes de locomotion forcée, la collecte hippocampique sur le même animal et des contrôles de qualité transparents. Le test de reconnaissance d'objets (NOR) offre une approche bien établie en une seule épreuve pour évaluer la mémoire de reconnaissance7,8, et la privation de sommeil a déjà été associée à une reconnaissance d'objets altérée9, à des modifications neuroinflammatoires hippocampiques10, ainsi qu'au stress oxydatif hippocampique et aux déficits mnésiques11. En conséquence, ce cadre peut faciliter les comparaisons entre cohortes et fournir une base pratique pour des études mécanistiques et le criblage d'interventions destinées à atténuer les troubles cognitifs associés à la privation de sommeil ; des travaux antérieurs ont également examiné des interventions ciblant les altérations cognitives et la neuroinflammation liées à la privation de sommeil12. Conformément à cette portée, la présente soumission se concentre sur la mise en place et la standardisation d'un protocole reproductible, tout en fournissant des données représentatives illustrant la performance du protocole ; un ensemble de données plus complet et une interprétation biologique plus large pourront être publiés séparément dans des travaux futurs.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun conflit d’intérêts.
Remerciements
Ce travail a été soutenu par le fonds de formation des jeunes de l'hôpital Nanjing Drum Tower, par la Fondation nationale des sciences naturelles de Chine (subvention no 82502706) et par le programme de recherche fondamentale du Jiangsu (subvention no BK20250258). Des outils d'intelligence artificielle ont été utilisés lors de la rédaction et de la révision du manuscrit, notamment pour rédiger et affiner le texte, ainsi que pour générer et améliorer les figures schématiques.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Éthanol à 70 % | Any supplier | N/A | Nettoyage de l'arène NOR et des objets |
| Souris mâles adultes C57BL/6J (8–12 semaines) | Zhejiang AILIMO Biotechnology Co., Ltd. | N/A | Animaux d'expérience |
| Kit d'analyse des protéines BCA | Thermo Fisher Scientific (Pierce) | 23225 | Dosage et normalisation des protéines totales |
| Logiciel d'analyse du comportement | Noldus Information Technology B.V. | EthoVision XT version 17.5 | Évaluation et analyse de l'exploration NOR |
| Centrifugeuse capable de 14 000 × g à 4 °C | Eppendorf | Centrifuge 5424 R ; Cat. 5404000610 | Clarification des homogénats d'hippocampe |
| Tubes en papier propres | Any supplier | N/A | Intervention de manipulation douce |
| Équipement de protection individuelle cryogénique | Any supplier | N/A | Manipulation sécurisée de l'azote liquide |
| Kit d'analyse de la glutathion peroxydase | Abcam | ab102530 | Quantification de la GPx |
| Homogénéisateur de tissu hippocampique | IKA-Werke GmbH & Co. KG | T 10 basic ULTRA-TURRAX ; Cat. 0003737000 | Homogénéisation du tissu hippocampique dans un tampon de lyse |
| Azote liquide | Any supplier | N/A | Congélation rapide des hippocampes disséqués |
| Kit d'analyse du MDA | Sigma-Aldrich | MAK085 | Quantification du MDA |
| Lecteur de microplaques | Agilent Technologies / BioTek | BioTek Epoch 2 Microplate Spectrophotometer | Mesure de l'absorbance aux longueurs d'onde spécifiées par le kit |
| Microspatules | Any supplier | N/A | Disséction hippocampique ; utilisées froides |
| Kit ELISA souris IL-1β | R&D Systems | MLB00C | Quantification de l'IL-1β |
| Kit ELISA souris IL-6 | R&D Systems | M6000B | Quantification de l'IL-6 |
| Kit ELISA souris TNF-α | R&D Systems | MTA00B | Quantification du TNF-α |
| Séries d'objets A/A′ et B | Any supplier | N/A | Phases de familiarisation et de test NOR |
| Arène NOR opaque (40 cm × 40 cm × 40 cm) | Any supplier | N/A | Tests comportementaux |
| Système d'enregistrement vidéo aérien | Basler AG | acA1300-60gm | Enregistrement vidéo des séances de familiarisation et de test NOR |
| Cocktail d'inhibiteurs de protéases/phosphatases | Thermo Fisher Scientific (Thermo Scientific) | 78440 | Ajouté au tampon de lyse à une concentration de travail de 1× (10 µL/mL à partir d'une solution mère 100×) |
| Tampon de lyse RIPA | Thermo Fisher Scientific | 89900 | Homogénéisation du tissu hippocampique |
| Tubes adaptés au stockage cryogénique | Thermo Fisher Scientific (Nunc) | Nunc CryoTube, 1,8 mL ; Cat. 375418 | Conservation des identifiants spécifiques à chaque animal et stockage du tissu hippocampique disséqué |
| Brosse douce | Any supplier | N/A | Intervention de manipulation douce |
| Kit d'analyse de la SOD | Sigma-Aldrich | 19160 | Quantification de la SOD |
| Logiciel statistique et d'analyse de puissance | G*Power ; Python Software Foundation | G*Power version 3.1 ; Python version 3.12 (SciPy 1.17 ; statsmodels 0.14) | Analyse de puissance a priori et analyses statistiques décrites dans la section 7 du protocole |
| Nourriture standard pour rongeurs | Jiangsu Xietong Pharmaceutical Bio-engineering Co., Ltd. | Régime d'entretien irradié pour rat/souris ; XTI01WC-010 | Alimentation ad libitum des animaux |
| Congélateur −80 °C | Haier Biomedical | DW-86L626 | Stockage à long terme du tissu hippocampique congelé rapidement |
Références
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.