Cette étude a examiné les niveaux d'expression sérique de miR-3619-5p chez des patients atteints de diabète de type 2 et a investigué le rôle régulateur de cette molécule dans la fonction des cellules β pancréatiques. Le miR-3619-5p est sous-régulé dans le DT2 et pourrait être impliqué dans la régulation de la fonction des cellules β pancréatiques en ciblant MTA3.
Article de recherche
Signification clinique de l'expression du miR-3619-5p chez les patients atteints de diabète de type 2 et sa régulation de la prolifération des cellules β pancréatiques
Dans cet article
Résumé
Résumé
La caractéristique pathologique fondamentale du diabète de type 2 (T2D) est l'insuffisance des cellules β pancréatiques ; par conséquent, l'identification de biomarqueurs circulants efficaces et de cibles moléculaires régulant l'homéostasie des cellules β pancréatiques revêt une importance pratique considérable. En tant que molécules régulatrices clés de l'expression génique, les ARN micro (miARN) jouent un rôle important dans la prolifération, l'apoptose et la sécrétion d'insuline des cellules β pancréatiques. L'objectif de cette étude est d'analyser les profils d'expression et la valeur clinique du miR-3619-5p dans le sérum des patients atteints de T2D et de préciser son rôle régulateur dans la prolifération des cellules β pancréatiques. La RT-qPCR a été utilisée pour détecter l'expression du miR-3619-5p et de MTA3. Des courbes ROC ont été utilisées pour évaluer la performance diagnostique. Des analyses bioinformatiques et des tests de luciférase double ont permis de valider la relation cible-ligand. La prolifération cellulaire a été mesurée par test CCK-8, tandis que l'apoptose a été analysée par cytométrie en flux. Les niveaux de sécrétion d'insuline ont été quantifiés par ELISA. Les résultats ont montré que le miR-3619-5p et MTA3 étaient sous-régulés chez les patients atteints de T2D et dans les cellules β pancréatiques. Le miR-3619-5p pourrait constituer un biomarqueur pour le diagnostic du T2D ; sa surexpression favorise la prolifération cellulaire, inhibe l'apoptose et améliore la sécrétion d'insuline. Le miR-3619-5p cible et régule MTA3, et les deux sont fortement corrélés positivement. Un analogue du miR-3619-5p peut inverser les atteintes fonctionnelles des cellules β pancréatiques induites par le si-MTA3. En résumé, le miR-3619-5p est sous-régulé dans le T2D et présente une valeur diagnostique. Le miR-3619-5p pourrait participer à la régulation de la fonction des cellules β pancréatiques en ciblant MTA3.
Introduction
Le diabète de type 2 (DT2), trouble métabolique chronique, se manifeste principalement par une résistance à l'insuline accompagnée d'une perte progressive de la fonction sécrétoire d'insuline, et représente plus de 80 % de tous les cas de diabète1. Sa pathogenèse est complexe, impliquant une combinaison de facteurs génétiques et environnementaux, ainsi que des anomalies dans la régulation cellulaire et moléculaire2,3. Étant donné que les cellules β pancréatiques sont les cellules principales responsables de la sécrétion d'insuline, une diminution anormale de leur capacité proliférative constitue une cause clé de la sécrétion insuffisante d'insuline dans le DT24. Actuellement, le diagnostic clinique du DT2 repose principalement sur des indicateurs traditionnels tels que la glycémie et l'hémoglobine glyquée (HbA1c) ; toutefois, leur sensibilité pour le dépistage précoce et la prédiction de l'évolution de la maladie est limitée5. Il est urgent d'identifier des biomarqueurs sensibles et spécifiques, ainsi que des cibles régulatrices clés, afin de proposer de nouvelles stratégies pour le diagnostic précis et le traitement du DT2.
Sous l'influence de la glucotoxicité induite par une hyperglycémie prolongée, la prolifération des cellules β pancréatiques est restreinte et l'apoptose augmente, entraînant une perte progressive de la sécrétion d'insuline dépendante du glucose ; ce processus constitue un facteur clé de la progression continue de la maladie6,7. Les microARN (miARN) sont impliqués dans divers processus physiologiques cellulaires8 et exercent un effet régulateur crucial sur des processus physiologiques tels que la prolifération des cellules des îlots pancréatiques, l'apoptose et la sécrétion d'insuline9,10. De nombreuses études ont démontré que divers miARN sont exprimés de manière anormale dans le DT2 et sont étroitement impliqués dans la pathogenèse de cette maladie11,12,13. Le miR-3619-5p participe à des processus biologiques tels que la prolifération cellulaire et l'apoptose, et les recherches actuelles sur ce dernier se concentrent principalement sur le domaine de l'oncologie14,15. Une expression anormale du miR-3619-5p a été observée dans diverses tumeurs malignes, notamment le carcinome spinocellulaire de la peau, le cancer du poumon, le cancer colorectal et le cancer gastrique, où il régule des gènes cibles afin d'influencer la prolifération, la métastase et l'apoptose des cellules tumorales16,17,18,19. Toutefois, un manque évident de recherches subsiste concernant les caractéristiques d'expression clinique, la pertinence clinique et les mécanismes régulant la fonction pancréatique du miR-3619-5p dans le DT2.
En tant que membre majeur de la famille MTA, MTA3 médie les interactions protéine-protéine et la régulation transcriptionnelle des gènes, et participe largement à des processus physiologiques clés, tels que la prolifération cellulaire, l'apoptose et le métabolisme20. Les recherches actuelles sur MTA3 se sont principalement concentrées sur l'oncologie21,22,23, avec peu d'études explorant son rôle dans les maladies métaboliques, en particulier le DT2. Certaines études ont montré que MTA3, en tant que gène associé au diabète, participe à la régulation de la fibrose hépatique induite par l'hyperglycémie24. Cela suggère que MTA3 pourrait être impliqué dans la progression du DT2 ; toutefois, il reste à confirmer s'il est régulé par le miR-3619-5p dans le contexte du DT2.
En résumé, les recherches existantes sur le miR-3619-5p se sont principalement limitées aux modèles de tumeurs et d'inflammation ; son profil d'expression clinique dans le DT2 et son rôle dans l'homéostasie des cellules β pancréatiques et les troubles du métabolisme glucidique restent à explorer. Cette étude vise donc à confirmer la relation cible entre le miR-3619-5p et MTA3 en évaluant l'expression et la signification clinique du miR-3619-5p dans le sérum de patients atteints de DT2, et à examiner son rôle régulateur dans la prolifération des cellules β pancréatiques, fournissant ainsi une nouvelle base théorique pour la recherche sur la pathogenèse du DT2 ainsi que pour le diagnostic et le traitement cliniques.
Protocole
Cette étude a été approuvée par le comité d'éthique médicale de l'hôpital populaire de TongzhouBay (n° d'approbation : 2024122001). Les procédures utilisées dans cette étude respectent les principes de la Déclaration d'Helsinki. Un consentement éclairé a été obtenu de la part de tous les participants individuels inclus dans l'étude. Le consentement à la publication a été obtenu pour les données de chaque personne incluse dans l'étude.
Sujets de recherche
Cette étude a sélectionné rétrospectivement 102 patients atteints de DT2 diagnostiqués dans notre hôpital entre janvier 2022 et juin 2023. Les participants éligibles répondaient aux critères diagnostiques du DT2, notamment une glycémie à jeun ≥7,0 mmol/L et une glycémie postprandiale à 2 heures ≥11,1 mmol/L, n'avaient pas reçu de traitement par insuline ou par des antidiabétiques de nouvelle génération au cours des 3 mois précédents, n'avaient aucune complication grave affectant le cœur, le foie, les reins ou d'autres organes, ni antécédent de tumeurs malignes, de maladies auto-immunes ou de maladies infectieuses, et disposaient de dossiers cliniques complets. Ont été exclus les patients atteints de diabète de type 1 ou d'autres formes spécifiques de diabète, ceux en état de stress dû à une infection grave, un traumatisme, une chirurgie ou d'autres causes, ceux ayant utilisé des glucocorticoïdes, des immunosuppresseurs ou des médicaments similaires au cours des 3 mois précédents, ainsi que les femmes enceintes ou allaitantes. Un groupe témoin composé de 80 personnes ayant bénéficié d'examens de santé de routine dans notre hôpital pendant la même période a également été inclus.
Prélèvement des échantillons
Tous les participants à l'étude ont jeûné pendant au moins 8 à 12 heures ; 5 mL de sang veineux ont été prélevés dès le matin et transférés dans des tubes EP sans RNase, puis centrifugés (3000 × g, 10 min) afin de séparer le sérum, qui a été stocké à -80 °C en vue d'une utilisation ultérieure.
Culture cellulaire et traitement
La lignée cellulaire β d'îlots pancréatiques de rat INS-1 a été cultivée dans un milieu RPMI 1640 contenant 10 % de FBS et 1 % de pénicilline-streptomycine. Les cellules INS-1 ont été cultivées dans un milieu contenant 25 mM de glucose afin d'établir un modèle de dommages cellulaires induits par un taux élevé de glucose (HG)25. Dans le groupe non traité, les cellules INS-1 ont été cultivées dans un milieu RPMI 1640 (contenant 11,1 mM de glucose).
La transfection a été réalisée à l'aide du kit de transfection avec des mimétiques de miR-3619-5p, un contrôle miRNA vide (miR-NC), si-MTA3 et un contrôle vide (si-NC). Les mimétiques de miR-3619-5p, l'inhibiteur de miR-3619-5p, l'ARNsi et les contrôles négatifs correspondants ont tous été achetés chez RiboBio. Concentration du mimétique d'ARNmi : 50 nM ; concentration de l'inhibiteur d'ARNmi : 100 nM ; concentration d'ARNsi : 50 nM. Les expériences suivantes ont été réalisées 48 heures après la transfection. Les séquences pertinentes sont indiquées dans le tableau supplémentaire 1.
Réaction de transcription inverse quantitative en chaîne par polymérase (RT-qPCR)
Le réactif TRIzol a été utilisé pour extraire l'ARN total du sérum, tandis que le kit miRNeasy Mini a été utilisé pour extraire l'ARN total des cellules. Pour la détection du miR-3619-5p, la transcription inverse a été réalisée à l'aide d'un kit de transcription inverse ; après la synthèse de l'ADNc, un kit de quantification des microARN a été utilisé, avec U6 comme témoin interne. Pour la détection de MTA3, la transcription inverse en ADNc a été effectuée à l'aide d'un kit de transcription inverse d'ARNm, et la RT-qPCR a été réalisée à l'aide d'un kit de quantification d'ARNm, avec GAPDH comme témoin interne. Les variations d'expression du miR-3619-5p et de MTA3 ont été analysées selon la méthode 2-ΔΔCt. Les séquences des amorces sont indiquées dans le Tableau supplémentaire 1.
Dosage du double luciférase rapporteur (DLR)
Les séquences 3'-UTR sauvages (WT) et mutées (MUT) de MTA3 contenant le site de liaison de la miR-3619-5p ont été clonées dans le vecteur pmirGLO. Ce vecteur a été co-transfecté avec l'analogue de la miR-3619-5p et l'inhibiteur de la miR-3619-5p dans des cellules 293T à l'aide de réactifs de transfection. Les groupes contrôles de transfection comprenaient : le groupe avec le plasmide rapporteur vide (témoin) et le groupe transféré avec un contrôle négatif d'ARNmi (miR-NC). Après 48 h, l'activité luciférase relative a été mesurée à l'aide d'un système de double luciférase rapporteur, l'activité de la luciférase Renilla servant de contrôle interne. Chaque groupe comprenait trois réplicats biologiques indépendants, chaque réplicat biologique étant constitué de trois réplicats techniques.
Dosage de la prolifération cellulaire
Semez les cellules transfectées dans une plaque de 96 puits. Après une culture de 0 h, 24 h, 48 h et 72 h respectivement, ajoutez 10 μL de réactif CCK-8 dans chaque puits, incubez à 37 °C pendant 2 h, puis mesurez l'absorbance à 450 nm à l'aide d'un lecteur de microplaque.
Dosage de l'apoptose
Laver les cellules trois fois avec du PBS, puis les resuspendre dans 200 μL de tampon de liaison contenant 10 μL d'Annexine V-FITC et 5 μL de PI. Incuber 15 minutes à température ambiante à l'abri de la lumière. Ajouter 300 μL de tampon de liaison, puis analyser immédiatement les cellules à l'aide d'un cytomètre en flux pour calculer le taux d'apoptose.
Dosage immuno-enzymatique (ELISA)
Les cellules transfectées ont été semées dans une plaque de 96 puits et privées de sérum toute la nuit à 37 °C. Le milieu de culture a été remplacé par une solution contenant 25 mM de glucose, puis les cellules ont été cultivées pendant 1 h ; le milieu de culture des cellules INS-1 traitées a ensuite été recueilli afin de mesurer la sécrétion d'insuline. Les cellules INS-1 ont été resuspendues dans du méthanol acide, soumises à une sonication, et le surnageant a été récupéré pour déterminer la teneur totale en insuline. Le kit ELISA pour l'insuline de rat a été utilisé, et le dosage a été réalisé conformément aux instructions du fabricant. Ce dosage utilise les étalons fournis avec le kit pour établir une courbe d'étalonnage ; la concentration absolue d'insuline est calculée à partir des valeurs d'absorbance des échantillons, l'unité de concentration absolue étant μUI/mL. Enfin, la capacité de sécrétion d'insuline a été évaluée en normalisant les niveaux d'insuline mesurés dans le milieu de culture par rapport à la teneur intracellulaire totale en insuline. Les données des graphiques statistiques sont exprimées en facteurs de variation, calculés par rapport au groupe témoin.
immunotransfert par méthode Western blot
Les cellules transfectées de chaque groupe ont été récoltées et le tampon de lyse RIPA a été ajouté. La concentration totale en protéines a été déterminée par la méthode BCA. 50 μg de protéines totales a été mélangé avec 5× tampon de charge et chauffé à ébullition pendant 10 min. Après électrophorèse sur gel de polyacrylamide-SDS à 10 %, transférer les protéines sur une membrane de fluorure de polyvinylidène. Bloquer avec du lait écrémé à 5 % pendant 1 h ; ajouter les anticorps primaires MTA3 (1:1000) et GAPDH (1:1000) et incuber toute la nuit à 4 °C; laver la membrane avec du TBST, puis ajouter l'anticorps secondaire de chèvre anti-IgG de lapin marqué avec la peroxydase (1:1000) et incuber à température ambiante pendant 1 h ; révéler par la méthode de chimiluminescence ECL.
Analyse statistique
Les données quantitatives sont exprimées sous la forme moyenne ± écart-type. Avant d'effectuer l'analyse statistique, le test de Shapiro–Wilk a été utilisé pour vérifier la normalité des données, et le test de Levene a été appliqué pour évaluer l'homogénéité des variances, afin de déterminer l'opportunité d'utiliser des tests paramétriques. Les résultats de ces tests ont indiqué que toutes les données quantitatives de cette étude suivaient une distribution normale et satisfaisaient à l'hypothèse d'homogénéité des variances ; par conséquent, des tests paramétriques ont été utilisés pour l'analyse statistique. Un test t pour échantillons indépendants a été employé pour analyser les données de deux groupes, tandis qu'une analyse de variance à un facteur (ANOVA) suivie du test post-hoc de Tukey a été utilisée pour les comparaisons entre plusieurs groupes. Des diagrammes de dispersion ont été utilisés pour évaluer les relations linéaires entre les variables. Une analyse de corrélation de Pearson a été appliquée lorsque les hypothèses de normalité et de linéarité étaient satisfaites. L'analyse de corrélation de Pearson a inclus les 102 participants ; aucun outlier n'a été exclu. Le regroupement des points observé sur le diagramme de dispersion est dû au recouvrement des observations échantillonnées. Toutes les expériences comprenaient trois échantillons répliqués, et chaque expérience a été répétée trois fois. Une valeur de p <0,05 a été considérée comme statistiquement significative.
Résultats
Comparaison des caractéristiques démographiques et des paramètres métaboliques cliniques entre les participants à l'étude
Les résultats de la comparaison ont montré que les taux de glycémie à jeun et d'HbA1c étaient nettement élevés chez les patients atteints de DT2 (P < 0,001), tandis qu'il n'y avait aucune différence significative pour les autres paramètres (P > 0,05) (Tableau 1).
Expression et signification clinique du miR-3619-5p
L'analyse par RT-qPCR a révélé que l'expression de miR-3619-5p dans le sérum des patients atteints de DT2 était significativement réduite (P < 0,001 ; Figure 1A). L'analyse de la courbe ROC a montré que la surface sous la courbe (AUC) pour miR-3619-5p dans le diagnostic du DT2 était de 0,871 (IC à 95 % : 0,820–0,922) (Figure 1B). De plus, les résultats d'une analyse de corrélation de Pearson réalisée sur 102 patients atteints de DT2 ont montré que l'expression de miR‑3619‑5p était nettement et inversement liée à la glycémie à jeun (Figure 1C) et à l'HbA1c (Figure 1D).
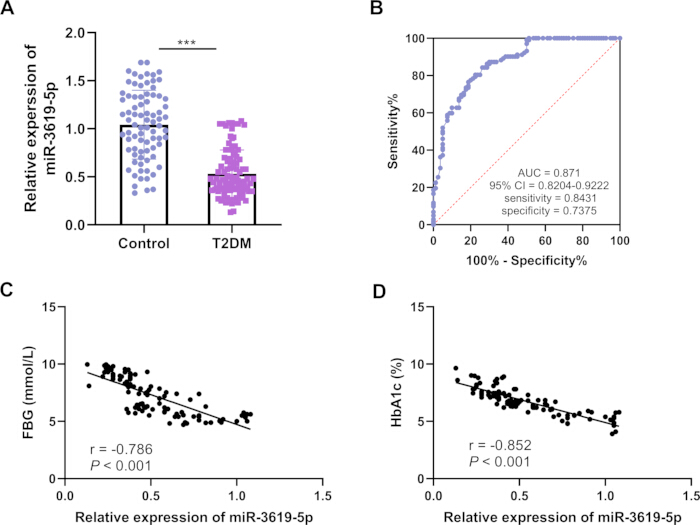
Figure 1 : Expression et signification clinique du miR-3619-5p. (A) Analyse par RT-qPCR de l'expression du miR-3619-5p dans le sérum de patients atteints de DT2. (B) Courbe ROC pour le diagnostic du DT2 à l'aide du miR-3619-5p. (C) Analyse de corrélation de Pearson entre l'expression relative du miR-3619-5p et la glycémie à jeun (GJ). (D) Analyse de corrélation de Pearson entre l'expression relative du miR-3619-5p et l'HbA1c. Les barres d'erreur représentent l'écart type (ET) ; Témoin, n = 80 ; DT2, n = 102. ***P < 0,001 Veuillez cliquer ici pour consulter une version agrandie de cette figure.
L'effet du miR-3619-5p sur la fonction des cellules β pancréatiques
Nous avons réalisé des tests fonctionnels cellulaires sur des cellules β pancréatiques INS-1 traitées au glucose élevé (HG) afin de simuler l'évolution du DT2. Les résultats ont révélé que l'expression de miR-3619-5p était significativement réduite après le traitement au HG (P < 0,001), tandis que la transfection avec un mimétique de miR-3619-5p augmentait fortement son expression (P < 0,01 ; Figure 2A). En ce qui concerne la prolifération et l'apoptose cellulaires, le traitement au HG inhibait fortement la prolifération cellulaire et favorisait l'apoptose (P < 0,001), alors que le mimétique de miR-3619-5p stimulait la prolifération et inhibait l'apoptose après le traitement au HG (P < 0,01 ; Figure 2B,C). Les résultats obtenus par ELISA ont montré que la sécrétion d'insuline était significativement réduite après le traitement au HG (P < 0,001), tandis que le mimétique de miR-3619-5p augmentait la sécrétion d'insuline suite au traitement au HG (P < 0,01 ; Figure 2D).
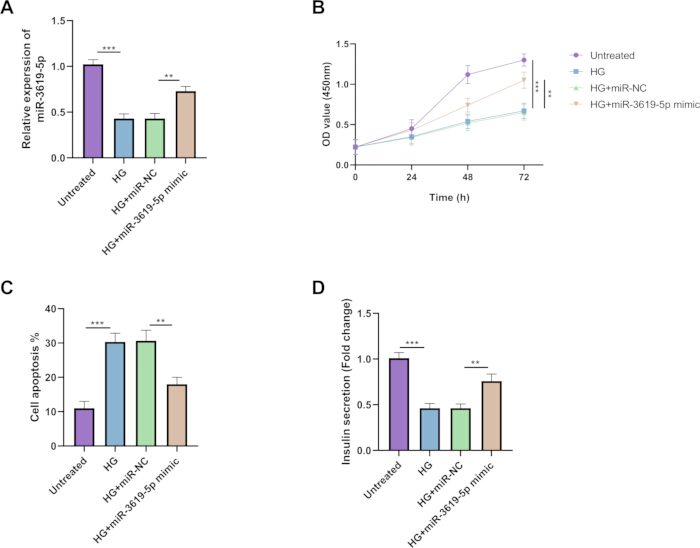
Figure 2 : Effet de la miR-3619-5p sur la fonction des cellules β pancréatiques. Des cellules β pancréatiques INS-1 ont été traitées avec du glucose élevé (HG) afin de simuler l'évolution du DT2. (A) La RT-qPCR a été utilisée pour détecter l'expression de la miR-3619-5p dans les cellules. (B) La prolifération cellulaire a été évaluée à l'aide du test CCK-8. (C) La cytométrie en flux a été utilisée pour évaluer l'apoptose cellulaire. (D) Un dosage immunoenzymatique (ELISA) a été réalisé pour mesurer les niveaux de sécrétion d'insuline (normalisés par rapport au contenu intracellulaire total en insuline). Les barres d'erreur représentent l'écart type (SD), n = 3. ***P < 0,001 ; **P < 0,01 Veuillez cliquer ici pour consulter une version agrandie de cette figure.
Validation des cibles de miR-3619-5p
Les prédictions en bioinformatique ont révélé un total de 174 gènes cibles répartis sur quatre bases de données (Figure 3A), et le site de fixation de MTA3 présente un haut degré de conservation (score Context++ : -0,31 ; centile du score Context++ : 98). Un site de liaison complémentaire entre le miR-3619-5p et la région 3'-UTR de MTA3 (Figure 3B) a été identifié. Les résultats du test DLR ont montré que l'activité luciférase relative du MTA3 WT était significativement augmentée dans le groupe traité avec le mimétique du miR-3619-5p, indiquant que le miR-3619-5p peut se lier à MTA3 (Figure 3C).
L'expression de MTA3 était nettement réduite dans le sérum des patients atteints de DT2 (Figure 3D) ; son expression était également significativement diminuée dans les cellules INS-1 traitées au glucose élevé, tandis que le mimétique de miR-3619-5p augmentait l'expression de MTA3 (Figure 3E). Les résultats de l'immunobuvardage Western ont montré que le mimétique de miR-3619-5p augmentait les niveaux protéiques de MTA3, alors que l'inhibiteur de miR-3619-5p diminuait significativement son expression (Figure supplémentaire 1). Une analyse de corrélation de Pearson a révélé une corrélation positive significative entre les niveaux de miR-3619-5p et de MTA3 dans le sérum de 102 patients atteints de DT2 (Figure 3F). Ces résultats confirment davantage le rôle régulateur positif de miR-3619-5p sur MTA3.
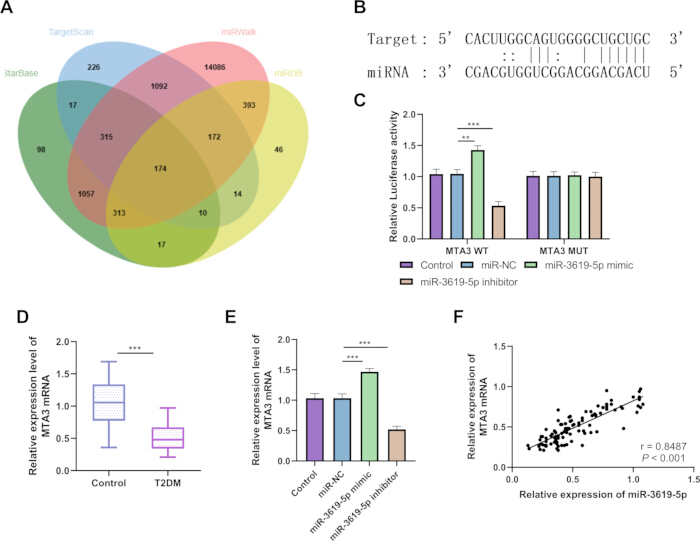
Figure 3 : Validation des cibles de la miR-3619-5p. (A) Gènes cibles communs de la miR-3619-5p identifiés dans les quatre bases de données : TargetScan, miRWalk, StarBase et miRDB. (B) Site de liaison de la miR-3619-5p dans la région 3’-UTR de MTA3. (C) Essai DLR (n = 3). (D) Analyse par RT-qPCR de l'expression de MTA3 dans le sérum de patients atteints de DT2 (Témoin, n = 80 ; DT2, n = 102). (E) Analyse par RT-qPCR de l'expression de MTA3 dans les cellules (n = 3). (F) Analyse de corrélation de Pearson entre l'expression de la miR-3619-5p et celle de MTA3 dans le sérum de patients atteints de DT2 (Témoin, n = 80 ; DT2, n = 102). Les barres d'erreur représentent l'écart type (ET). ***P < 0,001 ; **P < 0,01 Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Les effets de MTA3 sur la fonction des cellules β pancréatiques
Les résultats ont montré que le si-MTA3 réduisait davantage l'expression de MTA3 après un traitement au glucose élevé (HG), tandis que la co-transfection avec un mimétique du miR-3619-5p inversait cet effet (Figure 4A). Le si-MTA3 inhibait davantage la prolifération des cellules traitées au HG, favorisait l'apoptose et aggravait l'altération de la sécrétion d'insuline ; en revanche, la co-transfection avec le mimétique du miR-3619-5p inversait les phénotypes cellulaires susmentionnés induits par le si-MTA3, en restaurant la prolifération cellulaire, en réduisant l'apoptose et en atténuant l'inhibition de la sécrétion d'insuline (Figure 4B–D).
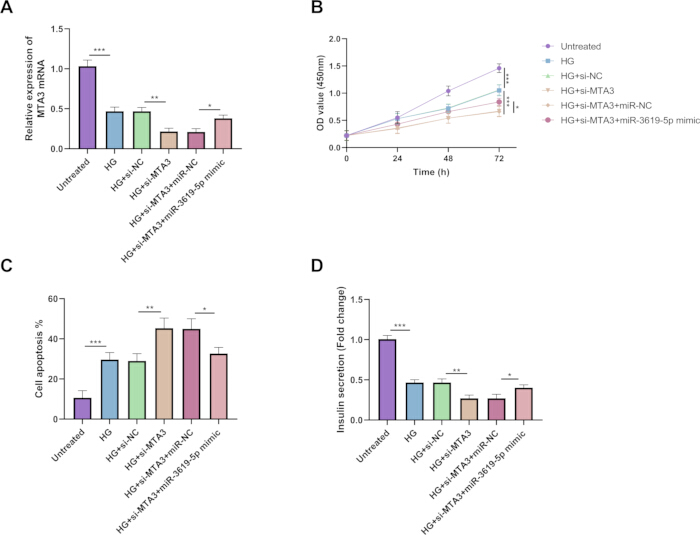
Figure 4 : Effet de MTA3 sur la fonction des cellules β pancréatiques. Les cellules ont été transfectées avec si-MTA3 et un mimétique de miR-3619-5p afin d'étudier davantage l'effet de MTA3 sur la fonction des cellules β pancréatiques. (A) Analyse par RT-qPCR de l'expression de MTA3 dans les cellules. (B) La prolifération cellulaire a été évaluée à l'aide du test CCK-8. (C) Le taux d'apoptose a été déterminé par cytométrie en flux. (D) La sécrétion d'insuline a été mesurée par ELISA (normalisée par rapport au contenu intracellulaire total en insuline). Les barres d'erreur représentent l'écart type (SD), n = 3. ***P < 0,001 ; **P < 0,01 ; *P < 0,05 Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
En résumé, les résultats obtenus à partir d'échantillons cliniques montrent que l'expression sérique de miR-3619-5p est significativement diminuée chez les patients atteints de DT2, et que miR-3619-5p est significativement corrélé avec la glycémie à jeun et l'HbA1c ; des expériences sur cellules ont confirmé que miR-3619-5p peut réguler spécifiquement MTA3, influençant ainsi la viabilité et la fonction sécrétrice d'insuline des cellules β pancréatiques de rat INS-1. Dans leur ensemble, ces résultats suggèrent que miR-3619-5p participe à la régulation de la fonction des cellules β pancréatiques, réalisant ainsi de manière préliminaire l'objectif de recherche de cette étude, qui consistait à examiner le rôle de miR-3619-5p dans le diabète de type 2 et ses mécanismes régulateurs potentiels.
DISPONIBILITÉ DES DONNÉES :
Tous les jeux de données bruts et traités soutenant les conclusions de cette étude sont téléchargés en tant que Fichier supplémentaire 1.
| Indicateurs | Groupe témoin (n = 80) | Groupe DT2 (n = 102) | Valeur de p |
| Âge (années) | 51,41 ± 9,70 | 52,29 ± 7,03 | 0,478 |
| Sexe (hommes/femmes) | 43/37 | 54/48 | 0,914 |
| IMC (kg/m2) | 24,04 ± 3,10 | 24,81 ± 3,04 | 0,093 |
| CT (mmol/L) | 4,60 ± 0,64 | 4,78 ± 0,65 | 0,068 |
| TG (mmol/L) | 1,61 ± 0,18 | 1,67 ± 0,26 | 0,093 |
| HDL-C (mmol/L) | 1,43 ± 0,13 | 1,38 ± 0,18 | 0,085 |
| LDL-C (mmol/L) | 2,55 ± 0,29 | 2,63 ± 0,31 | 0,067 |
| GBF (mmol/L) | 4,96 ± 0,97 | 7,16 ± 1,64 | <0,001 |
| HbA1c (%) | 4,42 ± 0,49 | 6,77 ± 1,16 | <0,001 |
Tableau 1 : Comparaison des paramètres cliniques entre les sujets. DT2, diabète sucré de type 2 ; IMC, indice de masse corporelle ; CT, cholestérol total ; TG, triglycérides ; HDL, lipoprotéines de haute densité ; LDL, lipoprotéines de basse densité ; GJS, glucose sanguin à jeun ; HbA1c, hémoglobine glycosylée.
Tableau supplémentaire 1 : Séquences des amorces et des réactifs utilisées dans cette étude.Veuillez cliquer ici pour télécharger ce fichier.
Figure supplémentaire 1 : Expression protéique de MTA3. Analyse par immunotransfert des niveaux protéiques de MTA3. (A) Niveaux protéiques de MTA3. (B) Images brutes de l'immunotransfert de MTA3. (C) Images brutes de l'immunotransfert de GAPDH. Les barres d'erreur représentent l'écart type (ET), n = 3. ***P < 0,001 ; **P < 0,01Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Données brutes.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Les caractéristiques pathologiques fondamentales du DT2 sont la résistance à l'insuline et un dysfonctionnement des cellules β pancréatiques, la diminution de la capacité proliférative et la réduction du nombre de cellules β pancréatiques étant les facteurs clés responsables d'une sécrétion anormale d'insuline et les moteurs principaux de la progression de la maladie26. L'identification de molécules clés capables de réguler la prolifération des cellules β pancréatiques et d'améliorer leur fonction revêt une grande importance pour le diagnostic et le traitement précis du DT2.
En tant que molécules régulatrices clés de l'expression génique, les ARNmi exercent une fonction essentielle dans la prolifération, l'apoptose et la sécrétion d'insuline des cellules β pancréatiques. De nombreux ARNmi sont étroitement associés à la pathogenèse du DT227,28,29. Song et al. ont découvert que l'inhibition de miR-3619-5p entrave la migration cellulaire dans le cancer colorectal30. D'autres études ont révélé que miR-3619-5p est sous-exprimé chez les patients diabétiques sous dialyse péritonéale31. Toutefois, le rôle et les mécanismes de miR-3619-5p dans le DT2 n'ont pas encore été rapportés. Cette étude a montré que l'expression sérique de miR-3619-5p chez les patients atteints de DT2 était significativement plus faible que dans le groupe témoin sain, ce qui est conforme aux observations de Costa et al.31, suggérant qu'une diminution de l'expression de miR‑3619‑5p pourrait être étroitement liée à l'initiation et au développement du DT2. Une analyse de corrélation a indiqué que l'expression de miR-3619-5p était négativement corrélée à la glycémie à jeun (FBG) et à l'HbA1c, ce qui signifie qu'une expression plus faible de miR-3619-5p est associée à un contrôle glycémique moins bon chez les patients. Cela confirme davantage que miR-3619-5p pourrait être impliqué dans le processus de dysrégulation métabolique du DT2, et que son niveau d'expression pourrait refléter la gravité de la maladie ; cela est cohérent avec les résultats de Chen et al., qui ont signalé que des ARN différentiellement exprimés pourraient participer au métabolisme lipidique, à la sécrétion d'insuline et à la régulation du glucose32. Les résultats de l'analyse de la courbe ROC suggèrent qu'il pourrait constituer un biomarqueur pour le diagnostic du DT2, compensant ainsi le manque de sensibilité du diagnostic précoce lié aux indicateurs traditionnels de glycémie.
Le déclin anormal de la capacité proliférative des cellules β pancréatiques constitue un élément central de l'insuffisance des îlots pancréatiques dans le DT2 ; favoriser la prolifération des cellules β pancréatiques et augmenter leur nombre est essentiel pour améliorer la fonction de sécrétion d'insuline33,34. Cette étude a démontré par des expériences cellulaires que le miR-3619-5p stimule de manière marquée la prolifération des cellules INS-1 et inhibe l'apoptose, augmentant ainsi la sécrétion d'insuline. Ces résultats suggèrent que le miR-3619-5p pourrait améliorer la fonction de sécrétion d'insuline en favorisant la prolifération des cellules β pancréatiques et en inhibant l'apoptose, jouant ainsi un rôle dans la pathogenèse du DT2. Ceci est conforme aux mécanismes régulateurs décrits dans des études antérieures pour les ARNmi dans la prolifération des cellules β pancréatiques, tels que le miR-26a-5p et le miR-765, qui favorisent la prolifération et la différenciation des cellules β pancréatiques en régulant l'expression de gènes cibles35,36.
Cette étude a utilisé des prédictions par bioinformatique et des dosages DLR pour confirmer que MTA3 est un gène cible de miR-3619-5p. En tant que protéine associée à la métastase, MTA3 est largement impliquée dans des processus physiologiques clés tels que la prolifération cellulaire, l'apoptose et le métabolisme20. Des recherches ont montré que MTA3 participe à la régulation de la fibrose hépatique induite par une concentration élevée de glucose24. La suppression de MTA3 médiée par le DT2 est associée à un stress oxydatif accru dans les testicules37. Dans cette étude, MTA3 était sous-régulée dans les cellules traitées au glucose élevé (HG). En conjonction avec les résultats des dosages de prolifération cellulaire, on émet l'hypothèse que si-MTA3 pourrait contribuer à la pathogenèse du DT2 en inhibant la prolifération des cellules β pancréatiques, tandis que miR-3619-5p pourrait atténuer cette inhibition en régulant l'expression de MTA3, améliorant ainsi la fonction des cellules β pancréatiques. La clarification de ce mécanisme affine davantage le réseau moléculaire de la régulation par les miARN de la prolifération des cellules β pancréatiques et ouvre une nouvelle perspective pour la recherche sur la pathogenèse du DT2.
Les résultats de cette étude présentent une valeur clinique et translationnelle potentielle. Le miR-3619-5p sérique peut être détecté dans le sang veineux périphérique ; s'il est validé dans de futures études de cohortes à grande échelle, il pourrait constituer un marqueur biologique auxiliaire permettant aux cliniciens d'identifier les personnes à risque de dysfonction des cellules β pancréatiques, permettant ainsi une stratification précoce du risque. Le miR-3619-5p peut atténuer les lésions induites par l'hyperglycémie sur les cellules β pancréatiques en ciblant et en régulant la voie MTA3 afin de maintenir la survie des cellules β et la sécrétion d'insuline. Cela suggère que l'axe miR-3619-5p/MTA3 pourrait constituer une nouvelle cible pour la protection des îlots pancréatiques dans le diabète, offrant des bases expérimentales fondamentales pour le développement ultérieur de médicaments à base d'acides nucléiques ou d'inhibiteurs de petites molécules destinés à protéger la fonction insulaire.
Plusieurs limites doivent être notées dans la présente étude : premièrement, notre recherche a été menée dans un seul centre ; un biais de sélection peut exister, et la variabilité interindividuelle parmi les participants est relativement limitée. De futures recherches devraient élargir la taille de l'échantillon et réaliser des études multicentriques afin de confirmer le profil d'expression et la valeur clinique de miR‑3619‑5p. Deuxièmement, cette étude a validé la fonction régulatrice de miR-3619-5p dans la prolifération des cellules β pancréatiques uniquement au niveau cellulaire, sans effectuer de validation supplémentaire par des expériences animales. De futures études devraient établir un modèle animal de DT2 afin d'explorer davantage ses mécanismes d'action in vivo. Troisièmement, les ARNmi présentent généralement des caractéristiques multifonctionnelles, et miR-3619-5p pourrait également réguler divers gènes associés. Par ailleurs, les systèmes de transfection in vitro utilisant des ARNmi mimétiques ou des inhibiteurs sont sujets à des effets hors cible potentiels ; une intervention artificielle à fortes doses pourrait activer ou inhiber de manière non spécifique plusieurs voies de signalisation, rendant difficile la reproduction complète du mode d'action observé dans des conditions physiologiques. De futures recherches nécessiteront un criblage ciblé plus complet de tout le transcriptome afin de distinguer la régulation ciblée spécifique des effets biologiques non spécifiques résultant d'effets hors cible. Quatrièmement, bien que cette étude ait utilisé une intervention à 25 mM de glucose dans son modèle in vitro de forte concentration en glucose, aucun groupe contrôle osmotique au mannitol n'a été mis en place ; par conséquent, il n'a pas été possible de distinguer pleinement les effets métaboliques spécifiques au glucose de ceux résultant d'un stress osmotique. De futures expériences devraient inclure un contrôle osmotique afin de mieux élucider le mécanisme par lequel des concentrations élevées de glucose affectent les cellules INS-1. Enfin, il existe une inadéquation entre les échantillons cliniques et les modèles cellulaires in vitro ; bien que les cellules INS-1 constituent un modèle in vitro classique pour l'étude de la maturation fonctionnelle des cellules β pancréatiques, les mécanismes régulateurs observés chez les cellules de rat ne peuvent pas être directement assimilés aux processus biologiques réels chez l'humain. Par conséquent, il convient d'agir avec prudence lors de l'interprétation de la relation régulatrice miR-3619-5p/MTA3 identifiée au niveau cellulaire in vitro dans cette étude en vue d'applications cliniques. De futures études devront utiliser des modèles de cellules β pancréatiques humaines ou des îlots primaires humains afin de valider davantage la conservation de cette voie entre les espèces.
Le miR-3619-5p est sous-régulé dans le sérum et les cellules β pancréatiques des patients atteints de DT2 ; en ciblant MTA3, le miR-3619-5p peut atténuer la dysfonction des cellules β pancréatiques induite par l'hyperglycémie, favoriser la prolifération des cellules β pancréatiques, inhiber l'apoptose et améliorer la sécrétion d'insuline. Cette étude suggère que le miR-3619-5p pourrait être utile pour aider à la stratification du risque de diabète, et que l'axe miR-3619-5p/MTA3 constitue une cible potentielle pour la protection des îlots. À l'avenir, nous réaliserons une étude de cohorte à plus grande échelle afin de valider sa valeur clinique et effectuerons une validation fonctionnelle in vivo à l'aide de modèles animaux de diabète ; parallèlement, nous effectuerons une analyse approfondie des voies de signalisation en aval de MTA3 qui médient les modifications de la fonction des îlots et évaluerons davantage le potentiel translationnel de cette cible dans le cadre d'une thérapie de protection des îlots.
Déclarations de divulgation
Les auteurs n'ont pas d'intérêts financiers ou non financiers pertinents à divulguer.
Remerciements
Cette étude a été soutenue par des stratégies de prévention pour les patients diabétiques atteints d'infections des voies urinaires (n° MSZ2025119).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Kits de détection de l'apoptose Annexine V-FITC/PI | Roche, Switzerland | 11684795910 | Marquage par Annexine V-FITC (10 µL) et PI (5 µL) ; incubation de 15 min à l'obscurité |
| Kit de comptage cellulaire-8 (CCK-8) | Dojindo, Japan | CK04 | Dosage colorimétrique de la viabilité cellulaire ; 10 µL par puits, incubation de 2 h, mesure de l'OD450 |
| D-Glucose | Sigma-Aldrich | G7021 | Ajouté au milieu de culture à 25 mM pour établir un modèle de dommages cellulaires induits par une forte concentration de glucose (HG) |
| Système d'analyse rapporteur double luciférase | Promega, USA | E1910 | Mesure séquentielle des activités de la luciférase de luciole et de la luciférase Renilla |
| Sérum de veau fœtal (FBS) | Gibco, USA | 10437028 | Supplément à une concentration finale de 10 % |
| Cytomètre en flux | Beckman Coulter, USA | CytoFLEX | Analyse par cytométrie en flux pour le calcul du taux d'apoptose |
| Anticorps anti-GAPDH | Abcam, UK | ab181602 | Immunotransfert |
| Amorces GAPDH | Sangon Biotech, China | Custom synthesis | Gène témoin pour la normalisation des ARNm |
| Anticorps secondaire caprin anti-IgG de lapin H&L (HRP) | Abcam, UK | ab6721 | Immunotransfert |
| Ligne cellulaire HEK293T | ATCC, USA | CRL-3216 | Cellules rénales embryonnaires humaines ; haute efficacité de transfection pour les tests de luciférase |
| Ligne cellulaire INS-1 | Sunncell, China | SNL-332 | Ligne cellulaire de rat insulinome ; cultivée dans le milieu RPMI 1640 contenant 10 % de FBS et 1 % de pénicilline-streptomycine |
| Système de PCR en temps réel LightCycler 480 II | Roche, Switzerland | 5015278001 | Amplification par PCR en temps réel ; format plaque 96 ou 384 puits |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | Réactif de transfection à base de lipides |
| Lecteur de microplaques | BioTek, Agilent | Synergy H1 | Mesure de l'absorbance ; les concentrations des échantillons sont interpolées à partir de courbes standards |
| Inhibiteurs de miR-3619-5p | RiboBio, China | miR20017999-1-5 | ARN simple brin synthétisé chimiquement pour inhiber la fonction de miR-3619-5p |
| Mimiques de miR-3619-5p | RiboBio, China | miR10017999-1-5 | ARN double brin synthétisé chimiquement pour la surexpression de miR-3619-5p |
| Amorces de miR-3619-5p | Sangon Biotech, China | Custom synthesis | Amorces spécifiques pour la détection de miR-3619-5p |
| miR-NC (contrôle vide d'ARNmi) | RiboBio, China | miR2N0000001-1-5 | Contrôle négatif non ciblant pour les expériences avec des mimiques/inhibiteurs d'ARNmi |
| Kit miRNeasy Mini | Qiagen, Germany | 217004 | Extraction d'ARN total à partir d'échantillons cellulaires |
| Kit de RT miScript II | Qiagen, Germany | 218160 | Transcription inverse pour ARNmi ; utilise un ajout de queue poly(A) et une amorce oligo-dT |
| Kit de PCR miScript SYBR Green | Qiagen, Germany | 218073 | qPCR basée sur le SYBR Green pour la détection d'ARNmi |
| Anticorps anti-MTA3 | Invitrogen, USA | PA5-100022 | Immunotransfert |
| Amorces MTA3 | Sangon Biotech, China | Custom synthesis | Amorces spécifiques pour la détection de l'ARNm MTA3 |
| Spectrophotomètre NanoDrop 2000 | Thermo Fisher Scientific, USA | ND-2000 | Évaluation de la concentration et de la pureté de l'ARN |
| Pénicilline-Streptomycine | Gibco, USA | 15140122 | Solution antibiotique à 1 % pour prévenir la contamination bactérienne |
| Vecteur d'expression rapporteur double luciférase pmirGLO pour ciblage d'ARNmi | Promega, USA | E1330 | Vecteur rapporteur double luciférase pour la validation de cibles d'ARNmi ; contient les gènes de la luciférase de luciole et de la luciférase Renilla |
| Kit de réactifs PrimeScript RT avec élimination de l'ADN génomique (gDNA Eraser) | TaKaRa, Japan | RR047A | Transcription inverse avec étape d'élimination de l'ADN génomique |
| Kit ELISA d'insuline de rat | Invitrogen, USA | ERINS | Détection quantitative de l'insuline sécrétée par les cellules INS-1 dans le milieu de culture |
| Milieu RPMI 1640 | Gibco, USA | 11875093 | Milieu de culture de base ; supplémenté avec 10 % de FBS et 1 % de pénicilline-streptomycine |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | ARN interférent court ciblant MTA3 pour l'inhibition génique |
| si-NC (contrôle vide pour ARNsi) | RiboBio, China | siB06525141922-1-5 | Contrôle d'ARNsi non ciblant |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | Amplification par qPCR basée sur le SYBR Green |
| Réactif TRIzol | Invitrogen, USA | 15596026 | Extraction d'ARN total à partir d'échantillons de sérum |
| Amorces U6 | Sangon Biotech, China | Custom synthesis | Référence endogène pour la normalisation des ARNmi |
Références
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.